Представлен протокол получения синтетических биомолекулярных конденсатов, состоящих из нанозвезд амфифильной ДНК, начиная с входящих в их состав ДНК-олигонуклеотидов. Конденсаты производятся либо из одного нанозвездного компонента, либо из двух компонентов и модифицируются для поддержания транскрипции РНК in vitro из встроенной матрицы ДНК.
Методическая статья
Синтетические конденсаты и клеточные архитектуры из наноструктур амфифильной ДНК
В этой статье
Краткое содержание
Аннотация
Синтетические капли и конденсаты становятся все более распространенными компонентами передовых биомиметических систем и синтетических клеток, где они могут быть использованы для создания компартментализации и поддержания жизненных реакций. Синтетические наноструктуры ДНК продемонстрировали значительный потенциал в качестве строительных блоков, образующих конденсат, благодаря своей программируемой форме, химической функционализации и способности к самосборке. Недавно мы продемонстрировали, что амфифильные ДНК-нанозвезды, полученные путем мечения ДНК-соединений гидрофобными фрагментами, представляют собой особенно надежное и универсальное решение. Полученные конденсаты амфифильной ДНК могут быть запрограммированы на отображение сложных, многокомпонентных внутренних архитектур, структурно реагировать на различные внешние стимулы, синтезировать макромолекулы, захватывать и высвобождать полезную нагрузку, подвергаться морфологическим трансформациям и взаимодействовать с живыми клетками. В данной работе мы демонстрируем протоколы получения конденсатов амфифильных ДНК, начиная с входящих в состав ДНК олигонуклеотидов. Мы рассмотрим (i) однокомпонентные системы, образующие однородные конденсаты, (ii) двухкомпонентные системы, образующие конденсаты ядро-оболочка, и (iii) системы, в которых конденсаты модифицируются для поддержки транскрипции наноструктур РНК in vitro .
Введение
Синтетические клетки представляют собой устройства микрометрового масштаба (10-50 мкм), сконструированные снизу вверх для воспроизведения функций и структур существующих биологических клеток 1,2. Синтетические клетки часто связаны мембранами, состоящими из липидных двухслойных везикул 3,4,5,6,7, полимерсом 8,9 или протеиносом10,11, которые также могут быть использованы для установления внутренней компартментализации12,13. Вдохновленные безмембранными органеллами, которые, как известно, поддерживают различные функции в живых клетках14, такие структуры, как полимерные коацерваты, биомолекулярные конденсаты и гидрогели, набирают обороты в качестве универсальной и надежной альтернативы для установления как внешней, так и внутренней компартментализации в синтетических клетках 15,16,17,18.
Используя универсальный инструментарий нанотехнологии ДНК19, было разработано множество решений для создания синтетических капель и конденсатов из самосборки искусственных наноструктур ДНК, размер, форма, функциональность, валентность и взаимное взаимодействие которых могут быть точно запрограммированы. Капли или конденсаты ДНК биосовместимы и могут действовать как каркасы как для синтетических клеток, так и для органелл, обеспечивая химические и биомолекулярные реакции21, вычисляя информацию22,23, захватывая и высвобождая грузы24,25 и поддерживая структурные реакции26.
Среди разнообразных конструкций наноструктур ДНК, образующих конденсат, амфифильные нанозвезды ДНК, получившие название С-звезды, оказались надежными и универсальными. С-звезды представляют собой простые разветвленные мотивы, состоящие из неподвижного соединения ДНК (обычно четырехстороннего), из которого выходят двухцепочечные плечи (ds)ДНК28. Затем рукава покрываются гидрофобными фрагментами, обычно холестериновыми, что делает наноструктуры амфифильными и приводит к их конденсации после прямого отжига в одном котле. Конденсаты C-звезды обеспечивают точную структурную и функциональную программируемость, включая возможность создания многокомпонентных архитектур29,30, структурно реагирующих на триггеры ДНК и катионов31, синтезирующих макромолекулы29, захватывающих и высвобождающих полезных нагрузок32 и взаимодействующих с живыми клетками33. Ниже мы опишем и обсудим протоколы получения конденсатов C-звезды, начиная с входящих в их состав олигонуклеотидов.
Протокол обобщает приготовление унарных (однокомпонентных) и бинарных (двухкомпонентных) конденсатов с использованием трех различных конструкций C-звезд (рис. 1) — «Нечувствительный», «TMSD-чувствительный» и «РНК-шаблонный». «Нереагирующая» звезда С (панель А) состоит из четырех «основных нитей» с четкими последовательностями, образующими четырехстороннее соединение. Четыре идентичных модифицированных холестерином олигонуклеотида соединены с соединением, гарантируя, что молекула холестерина присутствует на конце каждого плеча. Нечувствительные С-звезды представляют собой простые, инертные каркасы для унарных и бинарных конденсатов. В «ВМСД-чувствительной» С-звезде (панель В) связь между холестеринированными нитями и соединением обеспечивается цепью «Мостик для пальцев ног», которая имеет свисающий одноцепочечный домен (ss)ДНК «опоры» для пальца ноги. В присутствии цепи ДНК захватчика с комплементарным доменом удержания пальца ноги может быть инициирована реакция34 смещения цепи, опосредованная опозданием пальца ноги, в результате которой захватчик смещает мост пальца ноги, разрывая связь между соединением и гидрофобными фрагментами и инициируя разборку сети32 ДНК. Наконец, «шаблонизирующая РНК» С-звезда (панель С) включает в себя «базовую» модификацию, комплементарную цепи «моста», последняя из которых связывает транскрибируемую матрицу одноцепочной ДНК для аптамера брокколи29. Детали последовательностей составляющих олигонуклеотидов для трех типов конструкций C-звезд, упомянутых здесь, можно найти в дополнительной таблице 1 и в предыдущих работах 29,30,32.

Рисунок 1. Схемы трех различных конструкций нанозвезд амфифильной ДНК (С-звезд). Олигонуклеотидные последовательности для различных примеров описанных здесь С-звезд можно найти в дополнительной таблице 1. (А) Схема С-звезды, предназначенной для образования нечувствительных конденсатов, с компонентами олигонуклеотидных нитей "Ядро 1", "Ядро 2", "Ядро 3", "Ядро 4" (окрашено в оттенки розового) и "Терминальный холестерин" (окрашено в синий цвет). Каждый уникальный цвет представляет собой олигонуклеотидную цепь уникальной последовательности. "Core 1" и "Core 3" частично дополняют "Core 2" и "Core 4", но не комплементарны друг другу. (B) Схема С-образной звезды, предназначенной для разборки при добавлении вторгающейся нити путем смещения нити, опосредованного опорой на носке, как описано в предыдущей работе32. Эта звезда типа «С» состоит из нитей «Core» и «Terminal cholesterol» (окрашены в серый цвет), а также из нити «Terminal complement» (показана оранжевым цветом) и «Toeholding bridge» (показана темно-бирюзовым цветом). Последний содержит шестинуклеотидный выступ, с которым соответствующим образом сконструированная цепь захватчика может связываться и впоследствии полностью вытеснять цепь "Toeholding bridge", что вызывает диссоциацию центрального нанозвездного соединения (состоящего из "Core 1, 2, 3, and 4") от дуплексов, состоящих из цепей "Terminal complement" и "Terminal cholesterol". (C) Схема С-звезды, функционализированной с помощью матрицы ДНК для РНК-аптамера. Она также состоит из нити «Терминальный холестерин» и «Ядра 2, 3 и 4» (все показаны серым цветом), а также расширенной версии нити «Ядра 1» (показана розовым), нити «База» (коричневая), нити «Мостик» (желтая) и «Шаблон Аптамера» (зеленая). Дуплекс ДНК, состоящий из двух последних цепей, образует промоторную область Т7-полимеразы, которая отмечает место начала транскрипции. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этой цифры.
Конденсаты С-звезды образуются при термическом отжиге составляющих олигонуклеотидов, который в представленном здесь протоколе проводится в герметичных стеклянных капиллярах с большим соотношением сторон и прямоугольным сечением. Эти контейнеры имеют несколько ключевых преимуществ: i) Герметизация обеспечивает полное предотвращение испарения на этапах (иногда медленного) отжига; ii) Плоское дно капилляров оптического качества позволяет визуализировать самосборку (или разборку) переходного процесса; iii) высокое соотношение сторон капилляров гарантирует, что тяжелые конденсаты оседают на широкой плоской площади, снижая вероятность коалесценции и агрегации на более поздних стадиях процесса самосборки, которые имели бы место в клиновидных контейнерах (например, микроцентрифужных пробирках), и образуя относительно монодисперсные популяции конденсата; iv) выполнение отжига в удлиненном стеклянном капилляре сводит к минимуму воздействие на образец гидрофобных границ раздела (воздух, пластик или масло), которые, как было замечено, нарушают самосборку путем рекрутирования амфифильных холестеринизированных олигонуклеотидов. После завершения протокола сборки конденсаты могут быть извлечены из стеклянных капилляров для дальнейших экспериментов с использованием дополнительных реагентов.
Протокол
ПРИМЕЧАНИЕ: Протокол разделен на три раздела. В разделе 1 описаны предварительные этапы, включая получение олигонуклеотидов ДНК и стеклянных капилляров. В разделе 2 описывается приготовление конденсатов типа С-звезда различных конструкций, в том числе одно- и двухкомпонентных, и их извлечение из стеклянных капилляров. В разделе 3 описывается использование однокомпонентных РНК-шаблонов конденсатов C-звезды для синтеза аптамера РНК. Пользователь должен следовать надлежащей лабораторной практике на протяжении всего процесса, убедиться в наличии всех необходимых оценок и мер по снижению рисков, а также носить соответствующие средства индивидуальной защиты (СИЗ), включая перчатки, защитные очки и лабораторный халат. Очистка стеклянных капиллярных трубок требует их ультразвуковой обработки, сначала в растворе поверхностно-активного вещества, а затем в изопропаноле или этаноле. Извлечение конденсатов C-звезды из капиллярных трубок требует использования алмазной ручки для надрезания и защелкивания стекла, что сопряжено с риском травмирования осколками стекла. Основные используемые материалы, оборудование и реагенты перечислены в Таблице материалов. Большинство нефункционализированных олигонуклеотидов очищаются поставщиком с использованием стандартного обессоливания, за исключением нитей «extended Core 1» и «Aptamer template», которые заказываются с помощью электрофореза в полиакриламидном геле (PAGE). Модифицированные холестерином олигонуклеотиды очищаются поставщиком с помощью обратной фазы высокоэффективной жидкостной хроматографии (ВЭЖХ).
1. Предварительные требования
ПРИМЕЧАНИЕ: Следующие растворы должны быть приготовлены в сверхчистой воде (тип I) и отфильтрованы с использованием шприцевых фильтров 0,22 мкм: Трис-ЭДТА (TE) буфер, содержащий 10 мМ Трис, 1 мМ ЭДТА, при pH ~8,0; TE буфер с добавлением 2 М NaCl; и TE буфер с добавлением 0,3 М NaCl. Буферные растворы следует использовать в течение 2 недель после приготовления и хранить при температуре 4 °C, когда они не используются. Кроме того, для очистки стеклянных капилляров будет использоваться раствор щелочного оптического моющего средства в 1 об.% в сверхчистой воде.
- Получение ДНК-олигонуклеотидов из лиофилизированного состояния
- Кратковременно центрифугируйте (2000 х г в течение 10-30 с) пробирки с лиофилизированными олигонуклеотидами ДНК, чтобы гранулы лиофилизированной ДНК собирались на дне.
ПРИМЕЧАНИЕ: Центрифугирование проводится при комнатной температуре (RT) в течение 10-30 с. Используемая здесь миницентрифуга по умолчанию имеет скорость 2000 x g (6000 об/мин). - Добавьте соответствующее количество TE-буфера для восстановления каждого олигонуклеотида в концентрации 100 мкМ. Тщательно перебейте Vortex, чтобы обеспечить полное растворение, затем прокрутите трубки вниз, чтобы собрать всю жидкость в соответствии с шагом 1.1.1.
- Для каждого исходного раствора измерить поглощение при длине волны 260 нм и рассчитать конечную концентрацию с использованием коэффициента экстинкции испытуемой олигонуклеотидной последовательности.
ПРИМЕЧАНИЕ: Коэффициент экстинкции для данной олигонуклеотидной последовательности обычно находится в техническом описании поставщика, но также может быть рассчитан с помощью онлайн-инструментов с использованием модели ближайшего соседа35 или табличных значений коэффициента экстинкции отдельных нуклеотидов36. - Регидратированные олигонуклеотиды хранят при температуре 4 °C в течение коротких периодов времени (до 1 недели) или при -20 °C при более длительном хранении (до 6 месяцев).
- Кратковременно центрифугируйте (2000 х г в течение 10-30 с) пробирки с лиофилизированными олигонуклеотидами ДНК, чтобы гранулы лиофилизированной ДНК собирались на дне.
- Чистка стеклянных капиллярных трубок
- Ультразвук в 1% щелочном оптическом моющем средстве для оптических компонентов в деионизированной воде.
- Возьмите необходимое количество стеклянных капиллярных пробирок, которые необходимо очистить, и поместите их в высокий узкий контейнер (например, стакан или центрифужную пробирку объемом 15/50 мл) таким образом, чтобы капилляры не лежали ровно на дне контейнера.
- Добавьте моющее средство в емкость, заполнив ее чуть выше уровня капиллярных трубок. Убедитесь, что внутри капиллярных трубок нет застрявших пузырьков воздуха - при необходимости удалите их стуком. Неплотно накройте контейнер (например, оловянной фольгой или крышкой центрифужной трубки, убедившись, что она не плотно закрыта).
- Установите водяную баню для ультразвуковой обработки на 40 °C, поставьте закрытую емкость вертикально в ванну и обрабатывайте ультразвуком в течение 30 минут. Следите за тем, чтобы фольга, если она используется, не соприкасалась с водой в ванне для ультразвуковой обработки.
ПРИМЕЧАНИЕ: Ультразвуковая ванна, используемая в этом исследовании, по умолчанию имеет частоту ультразвука 60 Гц и мощность ультразвука 150 Вт.
ВНИМАНИЕ: Никогда не добавляйте и не вынимайте предметы из ванны для ультразвуковой обработки во время бега; Всегда сначала ставьте протокол на паузу. - Как только ультразвуковая обработка будет завершена, выключите нагревательный элемент ультразвуковой водяной бани, затем тщательно промойте капилляры в емкости деионизированной или сверхчистой водой - минимум пять раз, каждый раз сбрасывая воду для промывки.
- Ультразвук в 1% щелочном оптическом моющем средстве для оптических компонентов в деионизированной воде.
- Ультразвук в изопропаноле или этаноле.
- К стеклянным капиллярным трубкам в емкости для очистки добавьте изопропанол или этанол (минимум 70%), наполнив чуть выше уровня капиллярных трубок. Как и в шаге 1.2.1.2, убедитесь, что в капиллярных трубках нет пузырьков воздуха, и неплотно накройте контейнер.
- Поместите емкость вертикально в ванночку для обработки ультразвуком и обрабатывайте ультразвуком в течение 15-30 минут.
ВНИМАНИЕ: Изопропанол и этанол легковоспламеняющиеся, с температурой вспышки ниже матической температуры. Сведите к минимуму объемы растворителей, используемых во время очистки, выбрав контейнер подходящего размера, убедитесь, что контейнеры плотно закрыты, и не оставляйте ванну для ультразвуковой обработки без присмотра во время этого этапа. - После завершения ультразвуковой обработки утилизируйте изопропанол или этанол и высушите капилляры азотом, обрабатывая их безворсовой тканью.
2. Приготовление и экстракция конденсатов C-звезды (Рисунок 2)
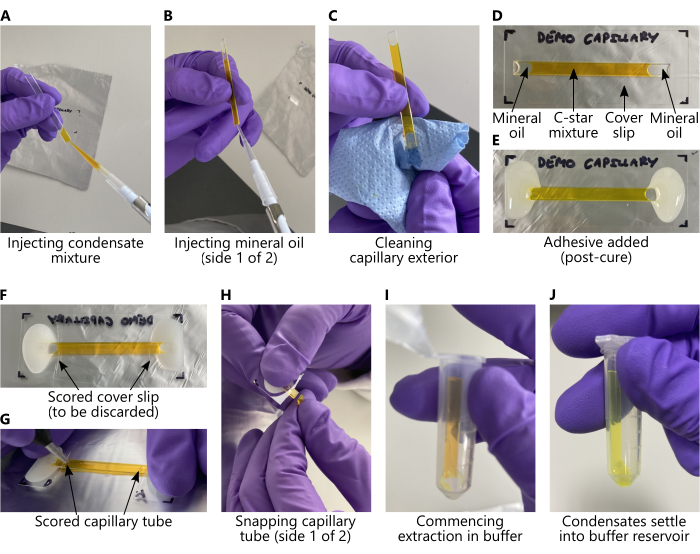
Рисунок 2: Загрузка смесей C-star и извлечение конденсата из стеклянных капиллярных трубок. На всех панелях смесь C-звезд была заменена водным раствором 25 мМ кальцеина для улучшения видимости. (А-Е) Основные этапы, которые необходимо предпринять перед отжигом, в соответствии с разделами 2.1 и 2.2 протокола. (Ф-Дж) Основные этапы, которые необходимо предпринять после отжига, соответствующие разделу 2.3 протокола. Во время экстракции (панели (I-J)) конденсаты ДНК будут осаждаться из капилляра в буферный резервуар до тех пор, пока микроцентрифужная трубка хранится вертикально. Конденсаты не будут видны невооруженным глазом. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этой цифры.
- Приготовление смесей типа С-звезда для однокомпонентных конденсатов
ПРИМЕЧАНИЕ: Подробную информацию о последовательностях для различных конструкций отдельных компонентов можно найти в дополнительной таблице 1 и в предыдущих работах 29,30,32. Протоколы медленного отжига, определенные на этапах 2.1.9 и 2.2.2, были разработаны для обеспечения релаксации нанозвездных сетей в компактные морфологии, учитывая сильно зависящие от температуры реологические свойства нанозвездных сетей37.- Олигонуклеотидные и буферные компоненты будут варьироваться в зависимости от желаемой конструкции C-звезды. Приготовьте смесь 60 мкл однокомпонентных конденсатов C-звезды в концентрации 5 мкМ для нечувствительной четырехплечевой звезды C, чувствительной к TMSD C-звезды или шаблонной РНК звезды C.
- Для каждой конструкции дозатор соответствующих компонентов, перечисленных в дополнительной таблице 2 , должен быть помещен в отдельную микроцентрифужную пробирку и тщательно перемешан с помощью пипетирования.
Примечание: Предполагается, что все исходные растворы олигонуклеотидов находятся в концентрации 100 мкМ в TE. - Извлеките все 60 мкл раствора C-star и осторожно с помощью пипетки введите смесь в очищенную сухую стеклянную капиллярную трубку, как показано на рисунке 2A, стараясь не допустить попадания пузырьков воздуха.
- С помощью пипетки введите примерно 9-12 мкл минерального масла в каждый конец капиллярной трубки, закрывая образец таким образом, чтобы между раствором C-звезды и воздухом не было свободной границы раздела (см. рис. 2B). Затем тщательно высушите капиллярную трубку папиросной бумагой, чтобы убедиться, что на ней нет масла (Рисунок 2C), стараясь не вытолкнуть минеральное масло или раствор C-star из капиллярной трубки. Конечный результат показан на рисунке 2D.
- Приготовьте небольшую партию двухкомпонентного эпоксидного клея, чтобы приклеить каждый конец капиллярной трубки плоской стороной вниз к стеклянной крышке. Убедитесь, что отверстия трубки полностью покрыты клеем, образуя непрерывное уплотнение, как показано на рисунке 2E.
- Отставить для отверждения минимум на 3 часа, но желательно на ночь.
- После ~30 минут отверждения осмотрите слой клея на наличие зазоров в уплотнении, вызванных пузырьками воздуха. Если они присутствуют, запечатайте их с помощью небольшого количества клея.
- Оберните капиллярную трубку, приклеенную к покровному листу, в оловянную фольгу, следя за тем, чтобы фольга оставалась плоской на нижней стороне стеклянного покровного стекла. Фольга обеспечивает хороший тепловой контакт между ним и нагревательным элементом термоамплификатора (см. следующий шаг).
- Поместите упакованный образец в термоамплификатор и отжгите по следующему протоколу: подержите при температуре 95 °C в течение 30 минут, затем охладите с 85 °C до 50 °C при -0,04 °C·мин-1, а затем охладите с 50 °C до RT при -0,5 °C·мин-1.
- Отожженные конденсаты C-звезды хранят при температуре 4 °C или RT в течение длительных периодов времени (месяцев) до тех пор, пока капилляр остается герметичным, так как термический отжиг эффективно стерилизует образец и денатурирует нуклеазы. Держите капилляр плоским во время хранения и обработки, чтобы предотвратить осаждение конденсата к одному концу и его скопление.
- Приготовление смесей C-звезд для бинарных конденсатов
Примечание: Для обоснования выбора популяций C-звезд для двойных систем обратитесь к работе Malouf et al., в которой описаны правила проектирования и ожидаемое фазовое поведение двойных конденсатов C-звезды30.- Для получения бинарных конденсатов соедините 30 мкл объемов смесей C-звезд, описанных на шаге 2.1 выше, с общим объемом 60 мкл, тщательно перемешайте, загрузите в капилляры и выполните шаги 2.1.4-2.1.8.
- Поместите упакованный образец в термоамплификатор и отжгите по следующему протоколу: подержите при температуре 95 °C в течение 30 минут, затем охладите с 85 °C до 40 °C при -0,01 °C·мин-1, а затем охладите с 40 °C до RT при -0,1 °C·мин-1.
- Экстракция конденсатов C-звезды из капиллярных трубок.
- Приготовьте большую (1,5 мл или 2,0 мл) микроцентрифужную пробирку, содержащую 60 мкл 0,3 М NaCl в TE-буфере.
- Разверните образец капилляра и с помощью алмазного карандаша надрежьте нижнюю сторону покровного стекла на каждом внутреннем конце склеиваемого участка (Рисунок 2F). Отломите покровную крышку в этой области и выбросьте соответствующим образом.
- Тщательно очистите капиллярные трубки с помощью этанола и высушите.
- Надрежьте каждый конец капиллярных трубок алмазной ручкой, сначала нижней стороной (Рисунок 2G), затем переверните и надрежьте трубки «правой стороной вверх».
- Убедитесь, что линии надрезов не перекрывают границу раздела вода-масло. Они должны находиться в пределах водной области, чтобы предотвратить попадание масла в извлеченный образец.
- Отломите концы капиллярных трубок (рисунок 2H), сохранив центральную часть трубки и выбросив остальные. Поместите отрезанную капиллярную трубку в микроцентрифужную пробирку, подготовленную на шаге 2.3.1, следя за тем, чтобы дно капиллярной трубки соприкасалось с буферным раствором (рисунок 2I).
- Конденсаты будут осаждаться из трубки в буферный резервуар под действием силы тяжести; Оставьте это на 10 минут (Рисунок 2J). Удалите отрезанную капиллярную трубку и выбросьте ее соответствующим образом. Такой щадящий подход к экстракции ограничивает риск скопления конденсата.
3. Транскрипция аптамера РНК из конденсатов С-звезды, шаблонизирующих РНК
ПРИМЕЧАНИЕ: Для производства аптамера РНК брокколи требуется раствор дифтор-4-гидроксибензилиден имидазолидинона (DFHBI) - порошок DFHBI сначала получают в виде исходного раствора при 10 мМ в диметилсульфоксиде (ДМСО), который затем разводят до 600 мкМ в воде, свободной от РНКазы и ДНКазы.
- Промывка шаблонов РНК конденсатов C-звезды
ПРИМЕЧАНИЕ: Конденсаты РНК-шаблонов C-звезды промывают три раза, чтобы обеспечить удаление несвязанных матричных олигонуклеотидов.- Дайте раствору извлеченных конденсатов отстояться не менее 5 мин, а затем удалите примерно половину объема надосадочной жидкости.
- Для объема экстрагированных конденсатов объемом 60 мкл удалите от 25 до 30 мкл надосадочной жидкости.
- Пипетка начинается с верхней части уровня жидкости, чтобы свести к минимуму количество конденсатов, удаляемых на этом этапе.
- Добавьте тот же объем 0,3 М NaCl в TE для замены удаленной надосадочной жидкости и перемешайте с помощью пипетирования.
- Повторите предыдущие два шага в общей сложности три цикла.
- Дайте раствору извлеченных конденсатов отстояться не менее 5 мин, а затем удалите примерно половину объема надосадочной жидкости.
- Приготовление транскрипционной смеси Т7
ПРИМЕЧАНИЕ: Смесь для транскрипции T7 готовится с использованием комплекта для транскрипции CellScript T7-FlashScribe. Шаг 3.2.2 представляет собой модификацию протокола производителя, с которым можно ознакомиться здесь38. Здесь мы опишем транскрипцию аптамера РНК брокколи, который индуцирует флуоресценцию в DFHBI при связывании. Для других аптамеров с подсветкой замените объем DFHBI, описанный в шаге 3.2.2, соответствующим фторогеном. Для других расшифровок полностью удалите этот компонент.- Приготовьте стоковый раствор 10 мМ DFHBI в ДМСО, затем разбавьте аликвоту до конечной концентрации 600 мкМ, используя воду, свободную от РНКазы и ДНКазы.
- Разморозьте компоненты набора для транскрипции на льду, а затем пипетируйте в автоклавную микроцентрифужную пробирку при комнатной температуре с использованием стерильных наконечников для пипетки: 2 мкл 10x T7-буфера для транскрипции (входит в комплект для транскрипции), 1,8 мкл 100 мМ АТФ, 1,8 мкл 100 мМ CTP, 1,8 мкл 100 мМ UTP, 1,8 мкл 100 мМ GTP, 2 мкл 100 мМ DTT, 2 мкл 600 мкМ DFHBI, 0,5 мкл ингибитора РНКазы, 2 мкл раствора фермента Т7 (входит в комплект для транскрипции).
- Аккуратно перемешайте раствор с помощью пипетки.
- Используйте транскрипционную смесь для этапа 3.3 (синтез транскрипта РНК) сразу после приготовления.
- Синтез РНК-транскрипта
- В камеру, подходящую для микроскопической визуализации, пипетку нанесите 3,3 мкл промытых конденсатов, приготовленных из шаблонов РНК C-звезд, и добавьте общий объем предварительно приготовленной транскрипционной смеси.
- Получайте микроскопические изображения в течение 18 часов, начиная сразу после добавления транскрипционной смеси к конденсатам.
ПРИМЕЧАНИЕ: Настройки микроскопии будут зависеть от подготовленной системы. Убедитесь, что для любых флуорофоров в образце используются соответствующие настройки возбуждения и излучения, а также время воздействия, которое не приведет к насыщению по мере прогрессирования транскрипции. Как и в случае с любой интервальной съемкой, следует найти компромисс между достаточно высокой мощностью лазера или светодиода для получения хорошего сигнала и минимизацией риска фотообесцвечивания. Фотообесцвечивание в течение длительных периодов времени будет сведено к минимуму в системах на основе светодиодов по сравнению с системами на основе лазеров. Рекомендуемые интервалы визуализации: 20 минут в течение первых 2 часов и 30 минут в дальнейшем.
Результаты
После отжига конденсаты C-звезды могут быть визуализированы непосредственно в капиллярной трубке или после экстракции, чтобы подтвердить их образование. Для всех вариантов конструкции C-звезды следует наблюдать отчетливые сферические или многогранные конденсаты диаметром примерно 10-50 мкм, последние образуются при кристаллизации28,32. Для однокомпонентных конденсатов конденсаты должны быть дискретными и однородными по внешнему виду и могут выглядеть многогранными (рисунок 3A) или сферическими (рисунок 3B, C) в зависимости от используемой конструкции звезды C. Морфология бинарных конденсатов зависит от свойств используемых популяций C-звезд, как описано ранее30. На рисунке 3D показаны бинарные конденсаты с ожидаемым разделением фаз, наблюдаемым при визуализации в ярком поле. Наличие пузырьков воздуха в капиллярной трубке также может препятствовать самосборке конденсатов, что часто приводит к скоплению вблизи границы раздела воздуха (рис. 4A, B). Неправильно приготовленные смеси, такие как смеси, в которых отсутствуют олигонуклеотидные компоненты, или смеси, приготовленные с использованием несбалансированной стехиометрии, могут привести к тому, что конденсаты вообще не образуются или образуют несферические соединенные сети или агрегаты, как показано на рисунке 4В. Аналогичным образом, неправильно приготовленные бинарные конденсаты могут демонстрировать агрегацию и сети, а также могут не демонстрировать наблюдаемого разделения фаз, как показано на рисунке 4D.
Для транскрипции аптамеров, освещающих РНК, успешный результат будет наблюдаться при мониторинге увеличения флуоресценции флуоресценции флуорогена с течением времени, например, с помощью микроскопии (рис. 5) или спектрофотометрии.
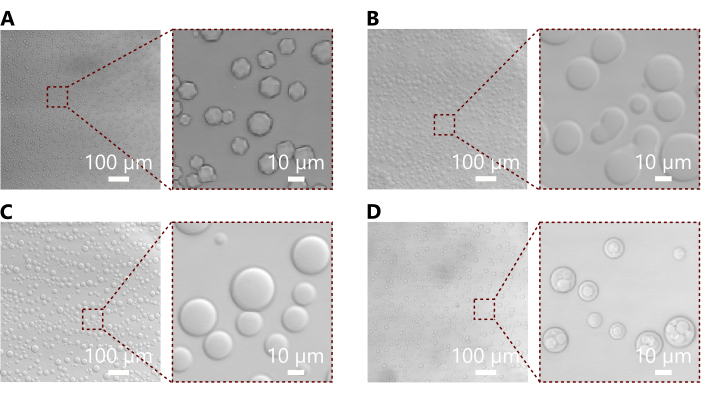
Рисунок 3: Репрезентативные микрофотографии, показывающие отожженные конденсаты С-звезды. (A) Микрофотография яркого поля и врезка, показывающие конденсаты, образованные невосприимчивой звездой типа С с длиной плеча 28 пар оснований. Здесь мы обратим внимание на многогранную морфологию, которая отражает кристаллический порядок меньших C-звезд32. (B) Микрофотография яркого поля и врезка, показывающие конденсаты, образованные из чувствительной к TMSD C-звезды, с длиной плеча 50 пар оснований. Эти конденсаты имеют в целом сферическую форму, хотя многие из них демонстрируют более нерегулярную морфологию, указывающую на слияние нескольких конденсатов, как и ожидалось для более крупных С-звезд, которые имеют тенденцию быть более подвижными32. (C) Микрофотография яркого поля и врезка, показывающие конденсаты, образованные из нечувствительной звезды типа C с длиной плеча 35 пар оснований. Эти конденсаты кажутся сферическими, хотя данные рентгеновского рассеяния под малым углом из предыдущей работы показывают, что их микроструктура является кристаллической. (D) Микрофотография яркого поля и врезка, показывающие бинарные конденсаты, образованные комбинацией популяций звезд типа C, также используемых на панелях (B) и (C). Сочетание этих двух популяций приводит к образованию конденсатов с отчетливым разделением фаз, видимых без флуоресцентного мечения. В других комбинациях может отсутствовать разделение фаз, как описано в предыдущей работе30. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этой цифры.
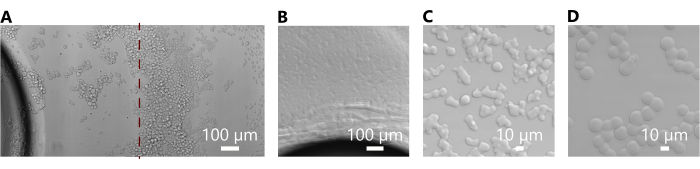
Рисунок 4: Микрофотографии, показывающие распространенные проблемы, возникающие при неправильно приготовленных конденсатах. (A) Микрофотографии яркого поля, показывающие конденсаты, образованные из нечувствительной звезды C с длиной руки 28 пар оснований (которая успешно сформировалась на рисунке 3A) в присутствии воздушного пузыря в капиллярной трубке. Панель состоит из двух микрофотографий, сшитых красной пунктирной линией, и показывает скопление конденсатов вблизи воздушной границы. (B) Микрофотография светлого поля, показывающая конденсаты, образованные из чувствительной к ТМСД С-звезды длиной руки 50 пар оснований (которая успешно сформировалась на рисунке 3B) в присутствии воздушного пузыря в капиллярной трубке. Здесь конденсаты слились, образовав непрерывную взаимосвязанную сеть из-за более текучей природы конденсатов, состоящих из более крупных мотивов C-звезды32. (C) Микрофотография яркого поля, показывающая конденсаты, образованные из нечувствительной звезды типа C с длиной плеча 35 пар оснований (которая успешно сформировалась на рисунке 3C). Морфология неправильная и угловатая, что указывает на ошибку в подготовке, возможно, несбалансированную стехиометрию. (D) Светлопольная микрофотография бинарных конденсатов, образованных комбинацией популяций звезд типа С, как в Fig. 3D. Эти конденсаты тесно связаны, как на панели (С), а также не демонстрируют ожидаемого разделения фаз (см. рисунок 3D), что указывает на ошибку в их подготовке. В то время как точные источники ошибок трудно определить, неправильная стехиометрия или использование неправильных олигонуклеотидных последовательностей являются потенциальными причинами. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этой цифры.
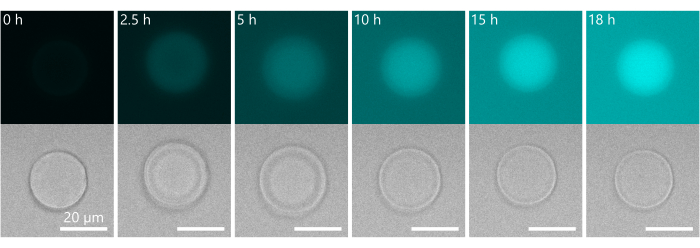
Рисунок 5: Репрезентативные результаты транскрипции встроенной матрицы ДНК для РНК-аптамера. Таймлапс, показывающий синтез аптамера брокколи путем транскрипции матрицы ДНК, встроенной в конденсаты, изготовленные из мотива С-звезды, описанного на рисунке 1С. Аптамер связывается с DFHBI, присутствующим в транскрипционной смеси, вызывая увеличение флуоресценции с течением времени. Здесь примечательно изменение морфологии конденсата с течением времени, который, по-видимому, образует структуру ядро-оболочка. Это явление, вероятно, связано с набуханием внешнего слоя конденсата из-за временного дисбаланса осмотического давления, связанного с местной продукцией аптамера РНК. Образование аптамеров может происходить преимущественно во внешних слоях конденсатов из-за имеющей тенденцию к накоплению в этой области матричной нити аптамера30. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этой цифры.
Дополнительная таблица 1: Подробная информация о последовательности для различных конструкций отдельных компонентов. Пожалуйста, нажмите здесь, чтобы загрузить этот файл.
Дополнительная таблица 2: Объем компонентов для каждой конструкции. Пожалуйста, нажмите здесь, чтобы загрузить этот файл.
Обсуждение
Описанный здесь протокол обеспечивает подход к получению одно- или двухкомпонентных конденсатов из нанозвезд амфифильной ДНК с вариациями конструкции для введения различных ответов в конденсаты. В соответствии с данным протоколом образуются конденсаты в буферном растворе 0,3 М NaCl в TE, но условия буфера могут быть изменены путем соответствующего изменения объемов, перечисленных выше. В предыдущей работе изучалось образование конденсатов С-звезды в 0,2 М NaCl в TE и 0,1 М NaCl в TE и в фосфатно-солевом буфере (PBS)32. Конденсаты C-звезды образуются при конечной концентрации 5 мкМ, но она также может быть изменена путем соответствующей модификации концентраций олигонуклеотидов и/или объемов, добавленных в соответствии с вышеуказанным протоколом. В зависимости от желаемых вариаций может потребоваться приготовление олигонуклеотидных исходных растворов в различных концентрациях и в различных буферах по сравнению с протоколом, описанным в разделе 1, хотя практические аспекты протокола остаются теми же. Дизайн звезды типа «С» может быть легко изменен для внедрения другой функциональности или реакции, как подробно описано в предыдущей работе32. Варианты дизайна включают введение мотивов, которые реагируют на изменения pH32, ионов калия31 или олигонуклеотидных последовательностей30,32. Если требуются новые конструкции, рекомендуется сначала протестировать сборку вычислительно (с использованием таких инструментов, как NUPACK39), а затем проверить образование эквивалентных, не содержащих холестерина нанозвезд с помощью электрофореза в агарозном геле 32,40. Степень разделения фаз в бинарных конденсатах будет зависеть от используемой комбинации популяций C-звезд, как описано в предыдущей работе30. Мы отмечаем, что протоколы отжига, определенные для образования конденсата, требуют гораздо более длительных временных рамок, чем те, которые типичны для сворачивания небольших наноструктур ДНК, подобных отдельным С-звездам. Медленный отжиг действительно необходим для обеспечения равновесия на больших масштабах длины конденсатов. Для однокомпонентных конденсатов предлагаемый протокол имеет продолжительность 17 ч, а для бинарных конденсатов используется еще более длительный протокол отжига (~3 дня) для приближения к термодинамическому равновесию. Мы обнаружили, что эти протоколы дают воспроизводимые результаты для всех различных популяций C-звезд, используемых на сегодняшний день, но если исследователи хотят улучшить пропускную способность выборки, мы бы рекомендовали систематическое исследование, в котором скорости отжига модулируются, чтобы найти кратчайший возможный протокол, при котором желаемая морфология может быть достигнута для тестируемой системы. Рекомендуется не изменять 30-минутную выдержку при температуре 95 °C, так как на этом этапе образец эффективно стерилизуется и обеспечивает долгосрочное хранение в капиллярных пробирках.
Камера, в которой образуются конденсаты C-звезды, имеет решающее значение для их успешного формирования. Камера должна быть изготовлена из стекла или кварца; Использование пластиковых контейнеров, таких как полипропилен, типичный материал для микроцентрифужных пробирок, нарушит самосборку из-за гидрофобных взаимодействий между пластиком и холестериновыми фрагментами. Соотношение сторон контейнера для отжига и концентрация смеси C-звезды также влияют на характеристики конденсатов, в частности на их размер и агрегацию. В частности, если используется более «высокий» контейнер с небольшой площадью поверхности на дне относительно его высоты, конденсаты C-звезды будут осаждаться на дне с высокой поверхностной плотностью, что будет способствовать образованию точек контакта между конденсатами. Если они происходят на поздних этапах процесса термического отжига, когда температура относительно низкая, а конденсаты ведут себя либо как высоковязкие жидкости, либо как твердые вещества, то соприкасающиеся конденсаты не смогут расслабиться в сферические формы и скорее образуют неправильные агрегаты частично слитых конфигураций. При пипетировании смеси C-star в капиллярные трубки следует следить за тем, чтобы не допустить попадания пузырьков воздуха – крупные агрегаты имеют тенденцию образовываться на границе раздела воздух/вода, поэтому извлеченные конденсаты будут иметь неидеальный размер и морфологию. Пересыхание концов капиллярных трубок после введения смеси C-star или минерального масла приведет к улучшению адгезии. Выбранный клей должен быть достаточно вязким, чтобы полностью покрыть отверстия капиллярных трубок, не впитываясь в трубку, инертным по отношению к минеральному маслу, совместимым со стеклом и стабильным при используемых температурах отжига. Мы обнаружили, что двухкомпонентный эпоксидный клей Araldite Rapid подходит для наших целей, несмотря на то, что он рассчитан на температуру всего 80 °C. Пузырьки воздуха или зазоры в клее приведут к неидеально загерметизированным капиллярам, которые имеют тенденцию протекать во время отжига. После того, как клей затвердеет, упаковка образцов в алюминиевую фольгу имеет двойное преимущество: сдерживание любых утечек и улучшение теплового контакта между образцом и термоциклером. Фольга должна быть как можно более гладкой и плоской, чтобы капилляры оставались ровными во время отжига. Отожженные конденсаты в капиллярах могут храниться длительное время при комнатной температуре и при необходимости повторно отжигаться. С образцами следует обращаться осторожно - конденсат может слипаться при контакте, поэтому капилляры следует хранить в горизонтальном положении. Для получения оптимальной микроскопической визуализации покровное стекло можно надрезать и удалить, оставив капиллярные трубки нетронутыми. Конденсаты, как правило, имеют размер более 5 мкм в диаметре, и мы не наблюдали значительного броуновского движения во время их визуализации29,30.
Рекомендуется готовить несколько независимых партий конденсатов C-звезды, чтобы убедиться, что возможные наблюдаемые различия между образцами отражают различия в составе или условиях отжига, а не различия, вызванные потенциальными экспериментальными ошибками.
Мелкие частицы стекла, скорее всего, попадут в раствор конденсата в результате процесса экстракции. Их можно свести к минимуму, тщательно промокнув срезанные концы капиллярной трубки чистой полоской парапленки, которая очень эффективна для захвата стекла, перед помещением разрезанной капиллярной трубки в микроцентрифужную трубку, содержащую буферный раствор. Во время экстракции количество извлекаемых конденсатов может быть максимизировано путем кратковременного вращения микроцентрифужной трубки, содержащей разрезанную капиллярную трубку, хотя это увеличивает вероятность коалесцирования конденсатов и образования неидеальной морфологии. После экстракции конденсат следует хранить при температуре холодильника (обычно 4 °C) и использовать в течение трех дней, чтобы избежать потенциальных проблем с биологическим загрязнением, а также потому, что конденсаты в микроцентрифужных пробирках со временем будут агрегироваться и коалесцировать из-за обычно округлых или заостренных форм этих трубок. Следует избегать очень энергичного пипетирования экстрагированных конденсатов, так как они могут быть повреждены чрезмерным потоком сдвига.
Для транскрипции аптамера РНК может потребоваться изменение объема используемой транскрипционной смеси, поскольку количество и размер конденсатов (и, следовательно, концентрация матрицы) в каждой отдельной реакции не поддаются точному контролю. В экспериментах, описанных в разделе 3, используется избыток транскрипционной смеси относительно теоретической концентрации матрицы. Рекомендуется удерживать надосадочную жидкость, полученную на трех стадиях промывки (раздел 3.1), и использовать их для проведения транскрипционных реакций. Эти эксперименты дадут представление о количестве несвязанного аптамера, присутствующего в растворе.
Одним из главных преимуществ платформы C-star является ее гибкость и модульность. Как описано выше и в предыдущей работе, конденсаты могут быть сконструированы таким образом, чтобы реагировать на ряд входных данных, таких как опосредованное опосредованное опозданием смещение цепи и транскрипция аптамера РНК отдельно или последовательно. В сочетании с присущей ему программируемостью строительных блоков ДНК, нанозвезды амфифильной ДНК представляют собой надежное и универсальное решение для проектирования и подготовки синтетических клеток.
Раскрытие информации
Конфликт интересов не декларируется.
Благодарности
LM, LDM и DT выражают признательность Европейскому исследовательскому совету (ERC) за поддержку в рамках Программы исследований и инноваций Horizon 2020 (ERC-STG No 851667 - NANOCELL). LDM выражает признательность за поддержку со стороны исследовательского гранта Королевского общества для научных сотрудников (RGF/R1/180043) и поддержки от исследовательской стипендии Университета Королевского общества (UF160152, URF/R/221009).
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| 0,22 μ m шприцевые фильтры | Sigma-Aldrich | SLGVR33RB | |
| 24 x 60 мм #1.5 Прямоугольная крышка стекол, Menzel Glä ser | VWR | 631-0853 | |
| 2-Propanol | Sigma-Aldrich | 34683 | |
| 6 л Ультразвуковой очиститель с цифровым таймером и нагревом, 230 В переменного тока | Cole-Parmer | WZ-08895-11 | |
| Araldite Rapid Adhesive 2 Part Эпоксидный клей | RS | ARA-400005 | |
| Bio-Rad C1000 Термоамплификатор | Bio-Rad | 1851197 | |
| Brand Microcentrifuge Tube 2 mL с запирающейся крышкой | Fisher Scientific | 15338665 | 2 мл микроцентрифужные пробирки для экстракции конденсатов C-звезды |
| Diamond Scribing Pen | RS | 394-217 | |
| Дифтор-4-гидроксибензилиден имидазолинон (DFHBI) | Sigma-Aldrich | SML1627 | |
| Диметилсульфоксид (DMSO) | Sigma-Aldrich | 472301 | |
| Eppendorf PCR Clean Бесцветный Safe-Lock Центрифужные пробирки | Fisher Scientific | 0030123301 | 0,5 мл микроцентрифужные пробирки для приготовления смесей C-star |
| Абсолют этанола 99,8+% | Fisher Scientific | 10437341 | 70% этанола достаточно для целей очистки |
| Fisherbrand ZX4 IR Вихревой миксер | Fisherbrand | 13284769 | |
| Hellmanex III | Hellma | 9-307-011-4-507 | |
| Полые прямоугольные капилляры ID 0,40 x 4,00 мм, длина 50 мм CM | Scientific | 2540-50 | |
| Минеральное масло | Sigma-Aldrich | 69794 | |
| , 230 В | ПРИЗМА (ТМ) | ||
| NaCl | Sigma-Aldrich | S3014 | |
| NanoDrop Один спектрофотометр | Thermo Fisher Scientific | ND-ONE-W | Используемые для измерения поглощения олигонуклеотидов для расчетов концентраций |
| Олигонуклеотиды | Интегрированные технологии ДНК | Пользовательские | олигонуклеотидные последовательности уникальны для требуемой конструкции C-звезды. |
| Ингибитор РНКазы ScriptGuard | CELLSCRIPT C-SRI6310K | ингибитор РНКазы | |
| T7-FlashScribe Набор для транскрипции | Cambio | C-ASF3507 | |
| Трис-ЭДТА буфер, 100x стоковый раствор | Sigma-Aldrich | 574793 | |
| UltraPure DNase/RNase-Free Дистиллированная вода | Invitrogen | 10977035 | |
| VWR Spec-Wipe 3 Вайперы | VWR | 21914-758 |
Ссылки
- Buddingh', B. C., Hest, J. C. M. v Artificial cells: Synthetic compartments with life-like functionality and adaptivity. Acc Chem Res. 50 (4), 769-777 (2017).
- Fanalista, F., et al. Shape and size control of artificial cells for bottom-up biology. ACS Nano. 13 (5), 5439-5450 (2019).
- Dora Tang, T. -Y., et al. Fatty acid membrane assembly on coacervate microdroplets as a step towards a hybrid protocell model. Nat Chem. 6 (6), 527-533 (2014).
- Deshpande, S., et al. Spatiotemporal control of coacervate formation within liposomes. Nat Commun. 10 (1), 1800(2019).
- Rubio-Sánchez, R., et al. Thermally driven membrane phase transitions enable content reshuffling in primitive cells. J Am Chem Soc. 143 (40), 16589-16598 (2021).
- Jahnke, K., Huth, V., Mersdorf, U., Liu, N., Göpfrich, K. Bottom-up assembly of synthetic cells with a DNA cytoskeleton. ACS Nano. 16 (5), 7233-7241 (2022).
- Tran, M. P., et al. A DNA segregation module for synthetic cells. Small. 19 (13), 2202711(2023).
- Mason, A. F., Buddingh', B. C., Williams, D. S., Hest, J. C. M. v Hierarchical self-assembly of a copolymer-stabilized coacervate protocell. J Am Chem Soc. 139 (48), 17309-17312 (2017).
- Gumz, H., et al. Toward functional synthetic cells: In-depth study of nanoparticle and enzyme diffusion through a cross-linked polymersome membrane. Adv Sci. 6 (7), 1801299(2019).
- Huang, X., Patil, A. J., Li, M., Mann, S. Design and construction of higher-order structure and function in proteinosome-based protocells. J Am Chem Soc. 136 (25), 9225-9234 (2014).
- Booth, R., Qiao, Y., Li, M., Mann, S. Spatial positioning and chemical coupling in coacervate-in-proteinosome protocells. Angew Chem Int Ed Engl. 58 (27), 9120-9124 (2019).
- Hindley, J. W., et al. Light-triggered enzymatic reactions in nested vesicle reactors. Nat Commun. 9 (1), 1093(2018).
- Zubaite, G., Hindley, J. W., Ces, O., Elani, Y. Dynamic reconfiguration of subcompartment architectures in artificial cells. ACS Nano. 16 (6), 9389-9400 (2022).
- Hirose, T., et al. A guide to membraneless organelles and their various roles in gene regulation. Nat Rev Mol Cell Biol. 24 (4), 288-304 (2023).
- Guindani, C., Silva, L. C. d, Cao, S., Ivanov, T., Landfester, K. Synthetic cells: From Simple Bio-Inspired Modules to Sophisticated Integrated Systems. Angew Chem Int Ed Engl. 61 (16), e202110855(2022).
- Adamala, K. P., et al. Present and future of synthetic cell development. Nat Rev Mol Cell Biol. 25 (3), 162-167 (2023).
- Allen, M. E., et al. Biomimetic behaviors in hydrogel artificial cells through embedded organelles. Proc Natl Acad Sci U S A. 120 (35), e2307772120(2023).
- Cook, A. B., Novosedlik, S., Hest, J. C. M. v Complex coacervate materials as artificial cells. Acc Mater Res. 4 (3), 287-298 (2023).
- Seeman, N. C., Sleiman, H. F. DNA nanotechnology. Nat Rev Mater. 3, 17068(2018).
- Takinoue, M. DNA droplets for intelligent and dynamical artificial cells: from the viewpoint of computation and non-equilibrium systems. Interface Focus. 13 (5), 20230021(2023).
- Liu, W., Lupfer, C., Samanta, A., Sarkar, A., Walther, A. Switchable hydrophobic pockets in DNA protocells enhance chemical conversion. J Am Chem Soc. 145 (13), 7090-7094 (2023).
- Wilner, O. I., Willner, I. Functionalized DNA nanostructures. Chem Rev. 112 (4), 2528-2556 (2012).
- Gong, J., Tsumura, N., Sato, Y., Takinoue, M. Computational DNA droplets recognizing miRNA sequence inputs based on liquid-liquid phase separation. Adv Funct Mater. 32, 2202322(2022).
- Jeon, B. -J., Nguyen, D. T., Saleh, O. A. Sequence-controlled adhesion and microemulsification in a two-phase system of DNA liquid droplets. J Phys Chem. 124 (40), 8888-8895 (2020).
- Sato, Y., Sakamoto, T., Takinoue, M. Sequence-based engineering of dynamic functions of micrometer-sized DNA droplets. Sci Adv. 6 (23), 3471(2020).
- Saleh, O. A., et al. Vacuole dynamics and popping-based motility in liquid droplets of DNA. Nat Commun. 14 (1), 3574(2023).
- Rubio-Sánchez, R., Fabrini, G., Cicuta, P., Michele, L. D. Amphiphilic DNA nanostructures for bottom-up synthetic biology. Chem Commun. 57 (95), 12725-12740 (2021).
- Brady, R. A., Brooks, N. J., Cicuta, P., Di Michele, L. Crystallization of amphiphilic DNA C-Stars. Nano Lett. 17 (5), 3276-3281 (2017).
- Leathers, A., et al. Reaction-diffusion patterning of DNA-based artificial cells. J Am Chem Soc. 144 (38), 17468-17476 (2022).
- Malouf, L., et al. Sculpting DNA-based synthetic cells through phase separation and phase-targeted activity. Chem. 9 (11), 3347-3364 (2023).
- Fabrini, G., Minard, A., Brady, R. A., Antonio, M. D., Michele, L. D. Cation-responsive and photocleavable hydrogels from noncanonical amphiphilic DNA nanostructures. Nano Lett. 22 (2), 602-611 (2022).
- Brady, R. A., Brooks, N. J., Foderà, V., Cicuta, P., Di Michele, L. Amphiphilic-DNA platform for the design of crystalline frameworks with programmable structure and functionality. J Am Chem Soc. 140 (45), 15384-15392 (2018).
- Walczak, M., et al. Responsive core-shell DNA particles trigger lipid-membrane disruption and bacteria entrapment. Nat Commun. 12 (1), 4743(2021).
- Zhang, D. Y., Winfree, E. Control of DNA strand displacement kinetics using Toehold exchange. J Am Chem Soc. 131 (47), 17303-17314 (2009).
- Integrated DNA Technologies OligoAnalyzer Tool. , Available from: https://www.idtdna.com/pages/products/custom-dna-rna/dna-oligos/custom-dna-oligos (2024).
- Cavaluzzi, M. J., Borer, P. N. Revised UV extinction coefficients for nucleoside-5'-monophosphates and unpaired DNA and RNA. Nucleic Acids Res. 32 (1), e13(2004).
- Lattuada, E., Caprara, D., Piazza, R., Sciortino, F. Spatially uniform dynamics in equilibrium colloidal gels. Sci Adv. 7 (49), (2021).
- T7-FlashScribeTM Transcription Kit. , Available from: https://www.cellscript.com/products/018pl0617CS.pdf (2017).
- Zadeh, J. N., et al. NUPACK: Analysis and design of nucleic acid systems. J Comput Chem. 32 (1), 170-173 (2011).
- Walczak, M., Brady, R. A., Leathers, A., Kotar, J., Di Michele, L. Influence of hydrophobic moieties on the crystallization of amphiphilic DNA nanostructures. The Journal of Chemical Physics. 158 (8), 084501(2023).
Перепечатки и разрешения
