В данной работе описан метод нормальной фазы высокоэффективной жидкостной хроматографии для обнаружения и количественного определения критических ретиноидов, участвующих в облегчении зрительной функции как в глазной, так и в системной ткани, в контексте системного поступления витамина А для получения эссенциального светочувствительного родопсинового хромофора 11-цис-ретиналь.
Методическая статья
Количественный анализ пищевых метаболитов витамина А в глазных и неглазных тканях мышей с использованием высокоэффективной жидкостной хроматографии
В этой статье
Краткое содержание
Аннотация
Рецепторы, сопряженные с G-белком (GPCRs) — это суперсемейство трансмембранных белков, которые инициируют сигнальные каскады путем активации своего G-белка при ассоциации с его лигандом. В зрении всех млекопитающих родопсин является GPCR, ответственным за инициацию каскада фототрансдукции. В фоторецепторах родопсин связывается с его хромофором 11-цис-ретиналь и активируется посредством светочувствительной изомеризации 11-цис-ретиналь в полностью транс-ретиналь, который активирует белок трансдуцина G, что приводит к каскаду фототрансдукции.
В то время как фототрансдукция хорошо изучена, процессы, которые участвуют в поступлении в глаз пищевых предшественников витамина А для 11-цис-ретинального поколения, а также заболевания, приводящие к нарушению этого снабжения, еще не до конца изучены. Как только предшественники витамина А всасываются в кишечнике, они хранятся в печени в виде ретиниловых эфиров и высвобождаются в кровоток в виде транс-ретинола, связанного с ретинол-связывающим белком 4 (RBP4). Этот циркуляторный RBP4-ретинол будет абсорбироваться системными органами, такими как печень, легкие, почки и глаза. Следовательно, метод количественной оценки различных метаболитов витамина А в глазах и системных органах имеет решающее значение для изучения правильной функции родопсина GPCR.
В этом методе мы представляем комплексный метод экстракции и анализа для анализа витамина А в мышиной ткани. С помощью высокопроизводительного жидкостного хроматографического анализа в нормальной фазе все соответствующие изомеры ретинальдегидов, ретинолов и ретиниловых эфиров могут быть обнаружены одновременно в течение одного прогона, что позволяет эффективно использовать экспериментальные образцы и повышает внутреннюю надежность различных метаболитов витамина А в одном образце. С помощью этого комплексного метода исследователи смогут лучше оценить системное снабжение витамином А в функции родопсина GPCR.
Введение
Рецепторы, сопряженные с G-белком (GPCR), являются одним из наиболее изученных и охарактеризованных суперсемейств известных белков. Выполняя свою наиболее известную функцию, GPCR служат рецептором клеточной поверхности при передаче сигнала, инициализируя внутриклеточные реакции при связывании с определенным лигандом. GPCR характеризуются семью трансмембранными (TM) спиральными доменами и шестью полными петлевыми доменами. Из шести петель три петли ориентированы внеклеточно, чтобы облегчить связывание лиганда, в то время как остальные три внутриклеточные петли связаны с гетеротримерным G-белком, состоящим из Gα, Gβ и Gγ субъединиц 1,2.
GPCR классифицируются на несколько классов, включая родопсиноподобные рецепторы класса А, семейство секретиновых рецепторов класса В, глутамат класса С, рецепторы феромонов грибов грибов класса D, циклические рецепторы АМФ класса Е и вьющиеся/разглаженные 3,4 класса F. Как следует из названия, подкласс GPCR родопсин-подобного класса А включает родопсин, критически важный GPCR, отвечающий за фототрансдукцию и зрительную функцию. Родопсин содержит все соответствующие ключевые характеристики и структурные элементы, которые обнаруживаются в канонической модели GPCR, включая ранее упомянутые семь спиральных доменов ТМ, шесть внеклеточных и внутриклеточных петель, а также ассоциацию с гетеротримерным G-белком, также известным как трансдуцин (Gt) в фоторецепторах 1,5,6,7. В связывающем кармане родопсина, 11-цис-ретиналь, светочувствительный хромофорный лиганд, связывается с родопсином на лизине 296 через ковалентное основание Шиффа, образуя таким образом 11-цис-ретинилиден 1,8. При поглощении фотона 11-цис-ретинилиден фотоизомеризуется в полностью транс-ретинилиден, вызывая конформационные изменения в родопсине. Таким образом, лиганд 11-цис-ретиналь имеет решающее значение для функции родопсина GPCR, и для преодоления высокой скорости оборота в фоторецепторах необходимо постоянно поддерживать надежный и эффективный запас 11-цис-ретинала.
Ретинальдегиды, такие как 11-цис-ретиналь, принадлежат к группе молекул, называемых ретиноидами, а биологически значимые ретиноиды более широко называются витамином А. Ретиноиды характеризуются циклической конечной группой, соединенной с конъюгированной полиеновой цепью, с полярной конечной группой на другом конце. Не являются исключением из этой характеристики ретинальдегиды и связанные с ними витамеры витамина А, которые содержат β-иононовое кольцо в качестве циклической конечной группы, дитерпеновую полиеновую цепь и различную полярную концевую группу в зависимости от витамера, то есть альдегидную группу для ретинальдегидов, гидроксильную группу для ретинолов, карбоксильную группу для ретиноевых кислот, эфирную связь для ретиниловых эфиров, и т.д. (Рисунок 1)9,10.
Млекопитающие не могут синтезировать витамин А de novo, но растения могут; Таким образом, все ретиноиды в системах млекопитающих должны поступать из рациона растительных производителей к потребителям в пищевой цепи. В канонической модели метаболизма витамина А β-каротин, архетипический растительный провитамин А, всасывается в кишечный энтероцит через рецептор класса В, член 1 (SCARB1), расщепляется на две молекулы полностью транс-ретиналь β-каротиноксигеназой 1 (BCO1/BCMO1), которая связывается с ретинальдегид-связывающим белком 2 (RBP2) и восстанавливается до полностью транс-ретиналь-ретинол ретинолдегидрогеназами (ДДГ), преобразованный в ретиниловые эфиры лецитин-ретинолацилтрансферазой (LRAT), а затем направленный в кровоток в составе хиломикронов 11,12,13,14. С другой стороны, сложные эфиры ретинила, такие как ретинилпальмитат, служат преобладающим провитамином А из животных источников. Ретинилпальмитат из просвета кишечника гидролизуется в полностью транс-ретинол карбоксилэстеразой 1 (CES1) и диффундирует в кишечный энтероцит15. Печень является основным запасающим и гомеостатическим органом для гомеостаза витамина А, который поглощает ретиниловые эфиры внутри этих хиломикронов, которые гидролизуются в полностью транс-ретинол, связанный с клеточным ретинол-связывающим белком 1 (CRBP1) с помощью ретиниловых эфиргидролаз, проникают в звездчатые клетки печени и превращаются обратно в ретиниловые эфиры путем ТАПБР для хранения 13,16, 17. Для поддержания гомеостатического уровня витамина А в организме печень выделяет витамин А в виде полностью транс-ретинола, связанного с сывороточным транспортным комплексом, состоящим из ретинолсвязывающего белка 4 (RBP4) и транстиретина (TTR)15,18,19. В данной рукописи этот комплекс будет называться holo-RBP4.
Чтобы использовать этот системный запас витамина А в крови, системные ткани, включая ткани глаза, где поддерживается надежный источник витамина А, должны иметь метод абсорбции голо-RBP4 в ткани. В богатой фоторецепторами сетчатке в глазной ткани мембранный рецептор, стимулируемый ретиноевой кислотой 6 (STRA6), является транспортером, участвующим в этой функции. В механистических исследованиях было показано, что STRA6 способен способствовать поступлению внеклеточного полностью транс-ретинола из holo-RBP4 в RPE20. Этот импортированный полностью транс-ретинол затем вступает в зрительный цикл, который представляет собой процесс, посредством которого полностью транс-ретинол превращается в 11-цис-ретиналь в РПЭ и внешнем сегменте фоторецептора, тем самым облегчая зрительную функцию при связывании с родопсином 9,21.
После того, как полностью транс-ретинол из циркуляторного голо-RBP4 проникает через гемато-сетчаточный барьер в RPE в глазной ткани через STRA6, полностью транс-ретинол в RPE сначала этерифицируется в ретиниловые эфиры с помощью LRAT, а затем гидролизуется в 11-цис-ретинол с помощью пигментного эпителия, специфичного для сетчатки белка 65 кДа (RPE65). Затем 11-цис-ретинол превращается в 11-цис-ретиналь с помощью ретинолдегидрогеназы 5. Затем этот 11-цис-ретиналь переносится во внешний сегмент (ОС) фоторецептора с помощью интерфоторецепторного ретиноид-связывающего белка (IRBP)9,21. В эндоплазматическом ретикулуме, который окружает ядро фоторецептора во внешнем ядерном слое (ONL), опсины GPCR синтезируются и транспортируются через соединительную ресничку (CC). Моторные белки, участвующие в этом транспорте через КК, являются спорными, но современные гипотезы предполагают, что кинезин и динеин на основе внутрижгутикового транспорта (IFT) или миозин являются вероятными фасилитаторами этого процесса 14,22,23,24,25,26. Как только эти два компонента встречаются в мембранозных дисках в ОС, 11-цис-ретиналь и опсин образуют 11-цис-ретинилиден через ковалентную связь основания Шиффа на лизине 196 на родопсине, готовые к фототрансдукции8.
В то время как экспрессия STRA6 в РПЭ сетчатки помогает облегчить поступление полностью транс-ретинола из голо-RBP4, не было обнаружено, что STRA6 экспрессируется в печени, несмотря на его роль в качестве основного гомеостатического органа для витамина А и способность к приему полностью транс-ретинола из голо-RBP4 15,19,27,28. 29,30,31. В конце концов, был обнаружен аналогичный рецептор, названный рецептором 2 ретинолсвязывающего белка 4 (RBPR2), демонстрирующий способность поглощать полностью транс-ретинол из голо-RBP4, очень похожий на STRA6, но экспрессирующийся в печеночной ткани32.
Таким образом, полное понимание роли родопсина в зрительной функции требует понимания биологических процессов, которые завершаются регенерацией зрительного пигмента. Это, в свою очередь, тесно связано с ранее описанными процессами, включая метаболизм предшественников провитамина А, накопление в печени, высвобождение голо-RBP4 печенью и последующее поглощение голо-RBP4 через мембранные рецепторы STRA6 и RBPR2. Как упоминалось выше, животные модели, такие как мыши, остаются одними из главных моделей в изучении таких процессов. Следовательно, мы хотели бы представить метод экстракции ретиноидов в мышиной ткани, а также метод нормальной фазы высокоэффективной жидкостной хроматографии (ВЭЖХ), который может обнаруживать и количественно определять эти ретиноиды. Используя эти методы, важные ретиноиды, описанные выше, такие как 11-цис-ретинальный родопсин лиганд или основной транспортный ретиноид все транс-ретинол, могут быть проанализированы в глазных, печеночных и системных органах. Оценивая поступление ретиноидов в ткани мышей, мы можем еще больше углубить понимание болезненных состояний и патологий, связанных с логистическим снабжением ретиноидов.
Помимо функции хромофора в зрительной функции посредством ассоциации с опсинами GPCR, ретиноиды также играют важную роль в передаче сигналов клетками млекопитающих через передачу сигналов ретиноевой кислоты, чему способствуют два семейства ядерных рецепторов: рецепторы ретиноевой кислоты (RARs) и рецепторы ретиноидной X (RXR), которые связываются непосредственно с ДНК и регулируют транскрипцию генов.. Эти два семейства рецепторов используют ретиноиды в форме ретиноевых кислот в качестве лиганда. Было показано, что RAR обладают сродством как к полностью транс-ретиноевой кислоте, так и к 9-цис-ретиноевой кислоте, в то время как RXR проявляют сродство только к 9-цис-ретиноевой кислоте34,35. Ретиноевые кислоты в неконтролируемых количествах являются тератогенными, и передача сигналов ретиноевой кислоты должна быть чрезвычайнострого контролируема. Производство ретиноевой кислоты для передачи сигналов должно происходить локально и в очень специфические моменты времени для правильного развития тканей, такие как развитие заднего мозга и конечностей, но бесчисленное множество других примеров используют передачу сигналов ретиноевой кислотой37,38. В клетках, участвующих в передаче сигналов ретиноевой кислоты, ретиноевые кислоты синтезируются двумя группами ферментов: алкоголь/ретинолдегидрогеназы (ADHs/RDHs), которые способствуют окислению ретинолов, поглощенных STRA6 или RBPR2, до ретиналдегидов, и ретиналдегидрогеназы (RALDHs), которые способствуют окислению ретиналдегидов до ретиноевых кислот39. Хотя ретиноевые кислоты не участвуют в передаче сигналов GPCR как таковых, они, тем не менее, являются важнейшим ретиноидом, который также функционирует как лиганд для сигнальных рецепторов.
Хотя это не описано здесь подробно, мы хотели бы отметить ранее разработанные методы обнаружения ретиноидов с использованием ВЭЖХ в различных контекстах, таких как исследования продуктов питания и изучение микробного родопсина. Эти методы используют различные цели и подходы к детектированию ретиноидов, включая использование методов обратной фазы, требующих менее летучих и опасных подвижных фаз 40,41,42, обнаружение ретиноевых кислот и связанных с ними изомеров 40,41, а также очистку и экстракцию из различных биологических источников43. Наш метод направлен на обнаружение изомеров ретинилпальмитата, ретиналдегида и ретинола в тканях млекопитающих. Следует рассмотреть различные протоколы, если предполагаемый вариант использования отличается от этого конкретного приложения.
Протокол
ПРИМЕЧАНИЕ: Все эксперименты на животных были одобрены Институциональным комитетом по уходу за животными и их использованию (IACUC) Университета Миннесоты (протокол # 2312-41637A) и проводились в соответствии с Заявлением ARVO об использовании животных в офтальмологических исследованиях и исследованиях зрения. Выполняйте все вытяжки в темное время суток, под тусклым красным светом для освещения. Помните об остаточном свете, излучаемом дисплеями приборов и светодиодами аксессуаров.
1. Генерация спектрофотометрических стандартных ретиноидов и генерация внешних стандартных кривых
ПРИМЕЧАНИЕ: Подготовьте контейнер для сухого льда для временного хранения ретиноидов перед анализом с помощью ВЭЖХ.
- Взвесьте произвольное, но подходящее количество ретиноидов и растворите их в подходящем растворителе для количественного определения с помощью спектрофотометрии.
ПРИМЕЧАНИЕ: В качестве растворителя, используемого в данном исследовании, используется этанол, а значения молярной абсорбции растворенных в этаноле ретиноидов подробно описаны в таблице 1. Для растворения стандартов и образцов необходимо использовать безводный этанол класса ВЭЖХ. Этанол, очищенный исключительно путем дистилляции, образует азеотропную смесь с водой, содержащую примерно 4% воды по объему. Вода несмешивается с гексановой подвижной фазой и приводит к гидратации неподвижной кремнеземной фазы, что в конечном итоге приводит к деградации колонны. - Используя закон Бера-Ламберта и молярную абсорбцию соответствующего ретиноида, количественно определите концентрацию полученного стандарта (Таблица 1).
Абсорбция = молярная абсорбтивитция (ε) × концентрация моляров × длине пути - Выполняйте серийные разведения для создания концентраций, которые могут генерировать стандартную кривую в диапазоне количественного определения для желаемой ткани.
Примечание: Помните о фундаментальных ограничениях закона Бера-Ламберта, таких как его несправедливость при высоких концентрациях аналита. Чтобы избежать этой проблемы, стандарты разбавленных ретиноидов не должны генерировать значения поглощения больше 1. Для нашего применения в количественном определении ретинола и ретинальдегида в органах мышей мы обнаружили, что калибровочная кривая в диапазоне от 1 до 10 нг может охватить типичные обнаруженные количества. Для количественного определения ретинилпальмитата из печени мышей мы обнаружили, что калибровочная кривая с диапазоном 20-80 мкг может охватить типичные обнаруженные количества. - Путем постепенного изменения объема впрыскиваемого ретиноида из ранее созданного исходного раствора, тем самым постепенно изменяя количество введенного ретиноида, интегрируйте пики для создания внешней стандартной кривой, пригодной для количественного определения ретиноидов, где интегрирование пиков прямо пропорционально количеству введенного ретиноида.
2. Забор тканей и забор образцов
ПРИМЕЧАНИЕ: Подготовьте контейнер для сухого льда для временного хранения ткани перед гомогенизацией тканей и экстракцией ретиноидов. Рекомендуемое количество забора тканей подробно описано в таблице 2. Чтобы учесть вариации ретиноидов из-за различий в содержании в крови для каждой ткани, экстракцию ткани следует проводить на полностью перфузивных мышах, а экстракцию крови следует проводить на отдельных мышах.
- Усыпьте мышей в соответствии с рекомендациями, изложенными в протоколе, продиктованном Комитетом по уходу за животными и их использованию (IACUC) (удушение CO2 здесь).
- Кровь: Сразу после эвтаназии обезглавьте мышей ножницами и слейте кровь из основного туловища мышей в пробирку объемом 1,5 мл.
- Глаз: С помощью щипцов удалите глаза с обезглавленной головы.
- Мозг: С помощью маленьких ножниц разрежьте обезглавленную голову и удалите мозг с помощью щипцов.
- Почки, печень, селезенка, сердце и легкие: с помощью маленьких ножниц сделайте разрез в брюшной полости, разрежьте в верхнем направлении по средней линии и прорежьте грудину и грудную клетку. Удалите обнаженную ткань с помощью щипцов.
3. Гомогенизация тканей
Примечание: Если требуется анализ небольших разделов органов, например, в более крупных органах (например, печени или легочной ткани), весь орган должен быть гомогенизирован, чтобы избежать различий в содержании ретиноидов в разных частях ткани. Вместо этого разделите гомогенат, если требуется меньшее количество ткани. Схема протокола подробно представлена на рисунке 2. Этот модифицированный протокол был адаптирован из Kane and Napoli44.
- Поместите салфетку в трубку измельчителя тканей вместе с 50% ледяным физиологическим раствором (0,9%) и 50% метанолом. В таблице 2 указан объем, используемый для каждого типа тканей.
- Поместите пестик в трубку кофемолки, медленно и аккуратно выполните пять полных оборотов пестиком до получения гомогената.
- Переложите образцы в пробирки объемом 15 мл сразу после гомогенизации.
- Добавьте 2 мл метанола и оставьте на 15 минут при комнатной температуре.
ПРИМЕЧАНИЕ: Если требуется анализ производных оксима ретиналдегида, добавьте 1 мл 0,1 М гидроксиламина гидрохлорида в 0,1 М HEPES (pH 6,5) (Рисунок 1).
4. Экстракция ретиноидов
ВНИМАНИЕ: Гексан легко воспламеняется, летуч и высокотоксичен. При работе с гексаном необходимо использовать респираторы, одобренные Национальным институтом безопасности и гигиены труда (NIOSH), средства защиты глаз, бутиловые перчатки и вытяжной шкаф. При испарении гексана из образцов рекомендуется использовать устройства с усиленной циркуляцией воздуха для предотвращения накопления паров растворителя, например, всасывающие устройства для трубки.
- Добавьте в гомогенат 10 мл гексана и перемешайте пробирку горизонтально в течение не менее 10 с.
ПРИМЕЧАНИЕ: Очень важно, чтобы фазы полностью смешивались. - Центрифугируйте смесь гомогената и гексана в течение 3 мин при 1 000 × г для облегчения разделения фаз.
- Проведите экстракцию 2 раза, чтобы обеспечить полную экстракцию ретиноидов из гомогената. Повторите шаги 4.1 и 4.2.
- Снимите слой гексана с помощью пипетки и поместите слой гексана в отдельный набор стеклянных пробирок объемом 15 мл для вакуумного испарения.
ПРИМЕЧАНИЕ: Для выпаривания используйте пробирки GLASS 15 мл, чтобы избежать прилипания ретиноидов к стенкам пробирки. - С помощью вакуумной центрифуги полностью выпарить гексан.
5. Ресуспензия и анализ ВЭЖХ
ПРИМЕЧАНИЕ: Поскольку система ВЭЖХ, используемая в данной рукописи, представляла собой бинарную насосную систему, четырехкомпонентная подвижная фаза была предварительно смешана в одну бутылку перед началом работы.
ВНИМАНИЕ: Все четыре органических растворителя, используемые в этом методе, являются легковоспламеняющимися, высоколетучими и высокотоксичными. 1,4-диоксан подвержен взрывоопасному образованию перекиси при воздействии кислорода. Держите все сосуды, содержащие 1,4-диоксан, закрытыми, когда они не используются. При работе с этими растворителями необходимо использовать респираторы, одобренные Национальным институтом безопасности и гигиены труда (NIOSH), средства защиты глаз, бутиловые перчатки и вытяжной шкаф. При запуске этих растворителей в ВЭЖХ рекомендуется использовать устройства с улучшенной циркуляцией воздуха для предотвращения накопления паров растворителей, например, всасывающие устройства с трубкой.
- Суспендировать высушенную 15 мл пробирку со 100 мкл гексана; Вортексируйте скважину, чтобы убедиться, что все ретиноиды растворены.
- Пипетка 100 мкл гексана в одну стеклянную вставку для анализа ВЭЖХ.
- Настройка прогона ВЭЖХ (адаптировано из Ландерса и Олсона45): подвижная фаза: 85,4% гексана (v/v), 11,2% этилацетата (v/v), 2% диоксана (v/v), 1,4% 1-октанола (v/v); колонка: две колонки с внутренним диаметром 4,6 мм x 250 нм, 5 μм, соединенные последовательно; многоколонный термостат Температура: 25 °C; объем впрыска: 100 μл; расход: 1 мл/мин; Продолжительность: 40 мин. Использование детектирования поглощения УФ-спектра; оставьте отмеченной опцию для получения УФ-спектра от 200 нм до 400 нм.
6. Идентификация и интеграция пиков
- Определите пики, используя время удержания и УФ-спектры каждого представляющего интерес ретиноида, наблюдаемые при анализе стандартов ретиноидов (Рисунок 3, Таблица 3 и Таблица 4).
- Используя хроматографическую систему данных выбранной системы ВЭЖХ, интегрируйте выявленные пики. Интегрирование, или площадь под кривой, прямо пропорционально количеству анализируемого вещества. Обратитесь к внешней стандартной кривой, созданной на шаге 1, для количественного определения аналита.
- Для анализа хроматограмм, полученных из биологической ткани, используйте ручную интеграцию, а не автоматическую, предлагаемую типичными системами хроматографических данных, поскольку в таких образцах часто наблюдаются вариации в таких параметрах, таких как время удержания.
- Убедитесь, что хроматограммы не демонстрируют неровностей, которые могут указывать на проблемы во время прогона, таких как зашумленные базовые линии или негауссовы пики. Эти проблемы указывают на наличие загрязняющих веществ в ВЭЖХ или износ колонн и должны быть устранены для достоверного анализа.
Результаты
Здесь мы использовали описанный выше метод для обнаружения и количественного определения ретиноидов в глазной и системной ткани мышей и создали репрезентативные хроматограммы. Мы дополнительно дадим краткое описание типичных ретиноидов, которые могут быть обнаружены в этих тканях.
В возрасте 6 месяцев мышей усыпляли с помощью удушенияСО2 . Для поддержания содержания глазных ретиноидов мыши были адаптированы к темноте в течение 2 дней до эвтаназии и экстракции. Два глаза, 0,2 г печени и 75 мкл крови были собраны для экстракции ретиноидов и последующего анализа ВЭЖХ. Что касается глазной ткани, то один глаз был удален без добавления гидроксиламина, в то время как другой был подвергнут лечению гидроксиламином. Для печени и крови лечение гидроксиламином не понадобилось из-за того, что ретинальдегиды обычно не обнаруживаются в этих тканях.
На хроматограмме мышиного глаза, не обработанного гидроксиламином, был идентифицирован 13-цис-ретиналь, один из двух неканонических изомеров ретинальдегида. Кроме того, были идентифицированы как 11-цис-ретиналь, так и полностью транс-ретиналь, два канонических изомера ретинальдегида. На обеих хроматограммах был идентифицирован промежуточный продукт зрительного цикла 11-цис-ретинол, а также основная транспортная форма витамина А — полностью транс-ретинол (рис. 4А).
На хроматограмме мышиного глаза, обработанного гидроксиламином, все ранее упомянутые изомеры ретинальдегида все еще присутствовали. Тем не менее, время удержания этих изомеров было значительно увеличено. Более того, эти изомеры ретинальдегида теперь присутствуют как в виде syn, так и в виде антиизомеров. Во время количественной оценки с помощью интегрирования пиков необходимо суммировать как syn, так и антипики, чтобы получить точное значение интегрирования. Как 11-цис-ретинол, так и полностью транс-ретинол все еще присутствовали (рисунок 4B).
На хроматограмме печеночной ткани мыши в этих тканях были идентифицированы ретинилпальмитат и полностью транс-ретинол. Ретинилпальмитат, ретиниловый эфир, служит основной формой хранения витамина А у млекопитающих и может быть обнаружен в значительных количествах в печеночной ткани млекопитающих. Печень высвобождает витамин А в системные ткани в виде голо-RBP4, содержащего полностью транс-ретинол в комплексе RBP4-транстриетин. Впоследствии в пределах этой хроматограммы может быть идентифицирован большой пик полностью трансретинола (рис. 4C).
На хроматограмме крови мышей был выявлен большой пик полностью транс-ретинола. Учитывая, что голо-RBP4 из печени высвобождается в системные ткани через систему кровообращения, это вполне ожидаемо (рисунок 4D). Характеристическое поглощение в ультрафиолетовом спектре (~250-400 нм) изоформ ретиноидов на нестационарно разрешенных пиках ВЭЖХ может быть полезным для первоначального перекрестного подтверждения качества присутствия изоформы в конкретном соответствующем пике (Рисунок 5).
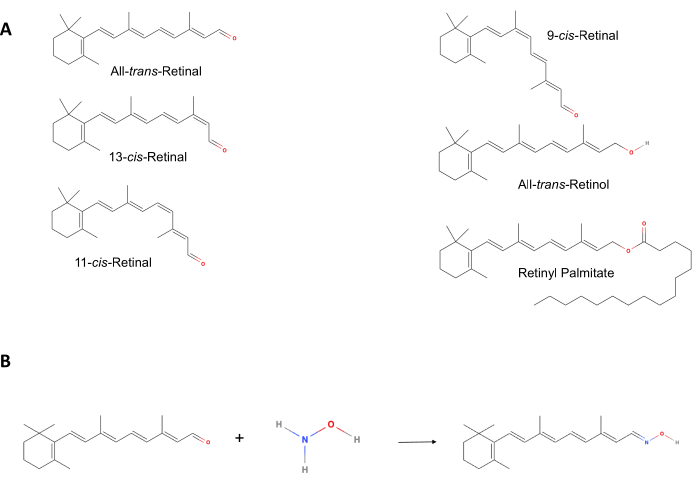
Рисунок 1: Химическая структура ретиноидов. (А) Эти ретиноиды обычно обнаруживаются в экстрагированной мышиной ткани. Обратите внимание на различные полярные концевые группы, а также на различное расположение двойных связей цис в изомерах ретиноидов. (В) Превращение ретинальдегидов в оксимы ретинала повышает эффективность экстракции, предотвращает коэлюирование пиков с ретинилпальмитатом, а также коэлюирование в изомерах ретинальдегида. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этой цифры.

Рисунок 2: Рабочий процесс забора тканей, гомогенизации, экстракции и анализа ретиноидов. Образцы сетчатки и тканей мышей, адаптированных к темноте, были гомогенизированы и экстрагированы. Шаг 1: После усыпления мышей в соответствии с рекомендациями собирают кровь и различные ткани. Шаги 2-4: Затем проводится гомогенизация тканей физиологическим раствором и метанолом, гидроксиламина гидрохлоридом для количественного анализа. Шаги 5-7: Ретиноиды обрабатываются с помощью гексана с последующим выпариванием. Шаги 8,9: Суспендируйте 100 мкл гексана, чтобы убедиться, что все ретиноиды растворены. Шаг 10: Наконец, образцы анализируются с помощью ВЭЖХ. Сокращение: ВЭЖХ = высокоэффективная жидкостная хроматография. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этой цифры.

Рисунок 3: Хроматограмма стандартов ретиноидов и обработанных гидроксиламином стандартов ретиноидов. (A) Эта хроматограмма содержит стандарты ретинилпальмитата, 13-цис-ретинала, 11-цис-ретинала, полностью транс-ретинала, 11-цис-ретинола, 13-цис-ретинола и полностью транс-ретинола. (B) Эта хроматограмма содержит стандарты ретинилпальмитата, 13-цис-ретинала, 11-цис-ретинала, полностью транс-ретинала, 11-цис-ретинола, 13-цис-ретинола и полностью транс-ретинола. Эта хроматограмма содержит син и антиоксим ретинальдегидные изомеры, а также изомеры ретинола. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этой цифры.

Рисунок 4: Репрезентативные хроматограммы. (А) Репрезентативная хроматограмма глазной ткани мыши. Эта хроматограмма содержит ретиноиды, обычно встречающиеся в глазной ткани мышей, включая изомеры ретинальдегида, в дополнение к изомерам ретинола. (B) Репрезентативная хроматограмма глазной ткани мыши, обработанной гидроксиламином. Следует отметить, что вместо химически модифицированных ретинальдегидов, обнаруженных на предыдущих хроматограммах (рис. 4А), эта хроматограмма содержит син и антиоксим ретинальдейд, в дополнение к изомерам ретинола. (C) Репрезентативная хроматограмма ткани печени мыши. Эта хроматограмма содержит ретиноиды, обычно встречающиеся в печеночной ткани мышей, включая ретинилпальмитат и полностью транс-ретинол. (D) Репрезентативная хроматограмма крови мыши. Эта хроматограмма содержит ретиноиды, обычно встречающиеся в крови мышей, в том числе полностью транс-ретинол. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
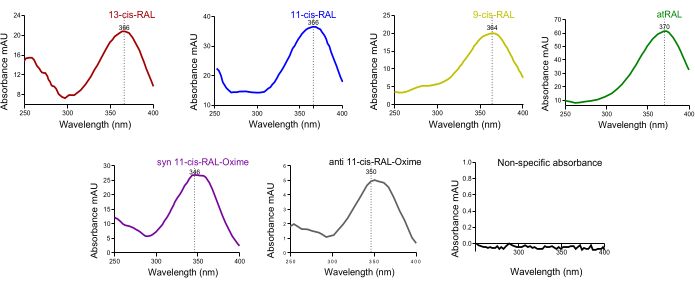
Рисунок 5: Спектр поглощения ультрафиолета изомерами ретинальдегида из глазной ткани мышей. Спектры поглощения (А) 13-цис-ретиналь, (В) 11-цис-ретиналь, (С) 9-цис-ретиналь, (D) полностью транс-ретиналь, (Е) син 11-цис-ретинальный оксим, (F) анти-11-цис-ретинальный оксим. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этой цифры.

Рисунок 6: Обзор модулей ВЭЖХ, подвижного фазового потока и других контрольно-измерительных приборов. Поток подвижной фазы начинается из подготовленных флаконов с растворителем и закачивается под высоким давлением бинарным насосом в автоподатчик, где анализируемый растворитель включается в поток растворителя. Подвижная фаза и аналит поступают в отсек колонки с регулируемой температурой и, наконец, в детектор диодной матрицы для измерения. (A) Красный тонированный экран монитора, сводящий к минимуму фотоизомеризацию ретиноидов. (B) Бинарный насос. (C) Пробоотборник флаконов. (D) Многоколонный термостат. (E) Детектор диодной матрицы. (F) Аналитический сборщик фракций. (G) Контейнер для отходов из полиэтилена высокой плотности. (H) Слева направо, алюминиевый обжимной колпачок, вкладыш объемом 250 мкл с полимерными ножками, верхний флакон с обжимом янтарного оттенка, окончательная сборка флакона для инъекций. (I) Левая, охлаждаемая центрифуга. Справа, концентратор центрифуги. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этой цифры.
| Соединение | Абсорбционная способность моляров (ε) | Растворитель | Ссылка |
| Ретинилпальмитат | 49260 | Этанол | Хаббард и др.49 |
| 13-цис-ретиналь | 35500 | Этанол | Хаббард и др.49 |
| 11-цис-ретиналь | 24935 | Этанол | Хаббард и др.49 |
| 9-цис-ретиналь | 36100 | Этанол | Robeson et al.51 |
| Полностью транс-ретиналь | 42880 | Этанол | Хаббард и др.49 |
| 11-цис-ретинол | 34890 | Этанол | Хаббард и др.49 |
| 13-цис-ретинол | 48305 | Этанол | Робсон и др.50 и Робсон и др.51 |
| Полностью транс-ретинол | 52770 | Этанол | Хаббард и др.49 |
Таблица 1: Молярная абсорбционная способность ретиноидов в этаноле. Молярные значения абсорбционной способности ретиноидов были собраны у Kane and Napoli44, Hubbard et al.46, Robeson et al.47 и Robeson et al.48. Молярная абсорбционная способность зависит от растворителя. Перечисленные здесь значения относятся к ретиноидам, растворенным в этаноле.
| Ткань | Количество забора ткани | Объем для гомогенизации |
| Кровь | 75 μл | Н/Д |
| Печень | 0,2 г | 2 мл |
| Почка | 2 Цельные почки | 2 мл |
| Кожа | 0,2 г | 1 мл – 1,5 мл |
| Селезенка | 1 Целая селезенка | 1 мл |
| Глаз | Оба Retina, группа 4 Retina | 1 мл |
| Мозг | 1 Целый мозг | 2 мл |
| Сердце | 1 Все сердце | 1 мл |
| Легкое | 0,2 г | 2 мл |
Таблица 2: Рекомендуемое количество ткани на анализ. Количество ткани на анализ и объем 50% ледяного физиологического раствора (0,9%) и 50% метанола для гомогенизации тканей, как рекомендовано Кейном и Наполи44.
| Соединение | Время хранения (мин) | Максимальное поглощение ультрафиолета (нм) |
| Ретинилпальмитат | 5.177 | 326 |
| 13-цис-ретиналь | 7.268 | 366 |
| 11-цис-ретиналь | 7.691 | 366 |
| 9-цис-ретиналь | 7.931 | 364 |
| Полностью транс-ретиналь | 8.993 | 370 |
| 11-цис-ретинол | 17.003 | 318 |
| 13-цис-ретинол | 17.83 | 328 |
| Полностью транс-ретинол | 23.933 | 326 |
Таблица 3: Время удержания и максимальные длины волн поглощения ретиноидов. Эти значения наблюдались при использовании с описанным методом и подвижной фазой, как это было обнаружено с помощью детектора с референсной диодной матрицей.
| Соединение | Время хранения (мин) | Максимальное поглощение ультрафиолета (нм) |
| Syn 11-цис-оксиметр сетчатки | 9.59 | 346 |
| Син Транс-ретинальный оксим | 10.6 | 356 |
| Syn 13-цис-оксим сетчатки | 11.3 | 352 |
| Анти-13-цис-оксим сетчатки | 13 | 356 |
| Анти-11-цис-оксим сетчатки | 15.1 | 350 |
| Анти Транс-ретинальный оксим | 19.7 | 360 |
Таблица 4: Время удержания и максимальные длины волн поглощения обработанных гидроксиламином ретинальдегидов, приводящие к образованию син и антиоксимных изомеров каждого ретинальдегида. Эти значения наблюдались при использовании с описанным методом и подвижной фазой, как это было обнаружено с помощью детектора с референсной диодной матрицей.
Обсуждение
В этом методе ВЭЖХ нормальной фазы используется для обнаружения и количественного определения соответствующих ретиноидов, включая ретиниловые эфиры, ретинальдегиды и ретинолы. Учитывая важность 11-цис-ретинала как важнейшего хромофора в активации родопсина GPCR, метод, который может обнаружить метаболиты, связанные с производством 11-цис-ретиналь, имеет решающее значение для изучения общей зрительной функции. Основное преимущество этого метода заключается в том, что все соответствующие изомеры как ретинальдегидов, так и ретинолов могут быть одновременно обнаружены и количественно определены за один прогон. Учитывая, насколько редки жизнеспособные экспериментальные ткани, этот метод позволяет эффективно использовать ткань для обнаружения ретиноидов. В то время как использование подвижных фаз на основе гексана и этилацетата было зарегистрировано при разделении ретиноидов49, добавление 1,4-диоксана и 1-октанола улучшает разрешение изомеров ретиноидов. 1,4-диоксан необходим для разрешения 13-цис-ретинола и 11-цис-ретинола50, в то время как длинноцепочечные спирты, такие как 1-октанол, дополнительно улучшают разделение изомеров ретинола 45,51,52.
Для количественного определения изомеров ретинальдегида требуется предварительное превращение в соответствующие оксимы ретинальдегида с гидроксиламином, поскольку реакционноспособная альдегидная группа склонна реагировать с другими биомолекулами, такими как белки и липиды 45,53,54. Оксимы ретинальдегида легче экстрагируются и вызывают размывание пиков ретинальдегида на более поздних этапах, тем самым предотвращая соэлюирование пика с неизвестной группой пиков и пиком ретинилпальмитата, который элюируется через ~5-8 минут для биологических тканей. Обработка ретинальдегидов гидроксиламином также предотвращает совместное элюирование ретинальдегидов с аналогичным временем элюирования45. При преобразовании в оксимы ретинальдегида образуются как син, так и антиизомеры, которые элюируются в два разных момента времени с двумя разными пиками для каждого изомера ретинальдегида. Интегрирование для обоих пиков должно быть суммировано для правильного количественного определения каждого изомера ретинальдегида. Помимо времени удержания, УФ-спектры предоставляют еще один показатель, который можно использовать для идентификации пиков. Каждый ретиноид демонстрирует немного разный максимум поглощения ультрафиолета. Если принять во внимание время удержания, эти два показателя позволяют точно определить пики (Таблица 3 и Таблица 4).
В то время как присутствие канонических изомеров ретинальдегида, таких как 11-цис-ретиналь и полностью транс-ретиналь, ожидается в глазной ткани, где 11-цис-ретиналь является критическим хромофором родопсинового лиганда, а полностью транс-ретиналь — фотоизомеризованным лигандом, другие неканонические изомеры ретинальдегида обнаруживаются с помощью этого метода. В частности, 13-цис-ретиналь был легко обнаружен в участках ВЭЖХ глазной ткани мышей во время нашего анализа (рис. 4A-D). Появление этих неканонических ретинальдегидов не является полностью неожиданным, однако, как 13-цис-ретиналь, так и 9-цис-ретиналь являются известными побочными продуктами, возникающими в результате светового воздействия на сетчатку55,56. Эти изомеры ретинальдегида не участвуют в известном каноническом каскадном пути фототрансдукции, и их метаболическая судьба остается относительно неизвестной. Тем не менее, было показано, что 9-цис-ретиналь также стабильно связывается со связывающим карманом родопсина, образуя изородопсин. Роль изородопсина еще предстоит полностью охарактеризовать, но исследования показали, что изородопсин действительно проявляет светочувствительные способности, такие же, как 11-цис-ретинальный родопсин57,58. По крайней мере, способность 9-цис-ретиналя стабильно образовывать изородопсин и фотоизомеризоваться в полностью транс-ретиналь дает разумное объяснение его отсутствию внашем анализе ВЭЖХ. С другой стороны, не было показано, что 13-цис-ретиналь участвует в каком-либо известном глазном биохимическом пути, и его накопление в глазной ткани может привести к окислительному стрессу в сетчатке 55,59,60.
Несмотря на то, что 9-цис-ретиналь обычно не обнаруживается в мышиной ткани, следует отметить, что метод, обработанный гидроксиламином, не является жизнеспособным методом для выделения и количественного определения 9-цис-ретиналь. Пики для syn 9-цис-ретиналь и syn 13-цис-ретиналь будут коэлютировать через 11,2 мин. В случаях, когда ожидается значительное количество 9-цис-ретинала, например, при его экзогенном применении, будет возможно только количественное определение комбинированных 9-цис-ретиналь и 13-цис-ретиналь. Для качественной идентификации при выполнении метода без обработки тканей гидроксиламином позволяют полностью разделить 13-цис-ретинальные и 9-цис-ретинальные пики.
Помимо глазной ткани, этот метод также может быть легко применен к системной ткани. В то время как ретинальдегиды в их различных изомерных формах обычно не обнаруживаются в системных тканях, полностью транс-ретинол, связанный с ретинол-связывающим белком 4 (голо-RBP4), является основной транспортной формой витамина А в организмах млекопитающих, и полностью транс-ретинол может быть легко обнаружен в крови с помощью этого метода. Помимо крови, полностью транс-ретинол также обычно может быть обнаружен во всех системных тканях. Следовательно, с помощью этого метода можно создать полный системный профиль ретиноидов по всей ткани с помощью этого метода.
Поскольку ретинальдегиды, особенно критический лиганд родопсина 11-цис-ретиналь, чрезвычайно чувствительны к фотоизомеризации, крайне важно принять профилактические меры для предотвращения случайного воздействия света во время любого из описанных выше этапов. Помимо очевидных источников освещения помещений и приборных панелей, мы обнаружили, что ошибочный свет от вспомогательных светодиодов в различных приборах, например, за приборами, включая саму ВЭЖХ, является основным источником случайного воздействия света (Рисунок 6). Кроме того, мы обнаружили, что специальная темная комната имеет жизненно важное значение для правильной работы с изомерами ретинальдегида и экспериментальными тканями. Помимо минимизации света, мы рекомендуем быстро и своевременно обрабатывать ткани после эвтаназии и забора, поскольку деградация изомеров ретинальдегида происходит даже в отсутствие света. В идеале забор ткани, экстракция и анализ ВЭЖХ должны быть завершены в один и тот же день.
Ткань, которая не была обработана немедленно, должна храниться в темноте при температуре -80 °C и не должна храниться более недели перед обработкой. Как уже упоминалось выше, все растворители, используемые в подвижной фазе и на этапах экстракции в описанном выше методе, являются высокотоксичными, летучими и легковоспламеняющимися. При работе с этими опасными растворителями необходимо использовать надлежащие процедуры и оборудование. Перед обращением с растворителем необходимо надеть надлежащие средства индивидуальной защиты (СИЗ), такие как бутиловые перчатки, респираторы, одобренные NIOSH, и средства защиты глаз, а все переносы растворителей должны выполняться внутри вытяжного шкафа. Имейте в виду, что 1,4-диоксан подвержен взрывному образованию перекиси при воздействии кислорода, и держите все емкости с растворителем с 1,4-диоксаном плотно закрытыми от воздуха.
Если метод ВЭЖХ в нормальной фазе нежизнеспособен из-за неадекватных материалов или оборудования, существуют более типичные методы обратной фазы с менее летучими растворителями, такими как ацетонитрил и вода, для обнаружения и количественного определения ретинальдегидов и ретинолов. Однако эти методы не способны разделять изомеры и способны обнаруживать только общие ретинальдегиды или общие ретинолы44,54.
Раскрытие информации
Авторы заявляют об отсутствии конфликта интересов.
Благодарности
Эта работа была поддержана грантами NIH-NEI (EY030889 и 3R01EY030889-03S1) и частично стартовыми фондами Университета Миннесоты для G.P.L. Мы также хотели бы поблагодарить Национальный институт глаза за предоставление нам стандарта 11-цис-сетчатки, используемого в этой рукописи.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| <сильно>реагент | |||
| 1-октанол, подходит для ВЭЖХ, ≥ 99,5% | Sigma-Aldrich, Millipore Sigma | 203-917-6 | |
| 1,4-Диоксан, подходит для ВЭЖХ, ≥ 99,5% | Sigma-Aldrich, Millipore Sigma | 204-661-8 | |
| 11-цис-ретинол | Национальный институт глаза | N/A | |
| 11-цис-ретинол | Toronto Research Chemicals | TRC-R252105 | |
| 13-цис-ретинол | Toronto Research Chemicals | TRC-R239900 | |
| 13-цис-ретинол | Toronto Research Chemicals | TRC-R252110 | |
| Полностью транс-ретинальный | Toronto Research Chemicals | TRC-R240000 | |
| полностью транс-ретинол | Toronto Research Chemicals | TRC-R252002 | |
| этилацетат, подходящий для ВЭЖХ, > 99,7% | Sigma-Aldrich, Millipore Sigma | 205-500-4 | |
| Гексан, класс ВЭЖХ | Fisher Scientific, Spectrum Chemical | 18-610-808 | |
| Метанол (ВЭЖХ) | Fisher Scienctific | A452SK-4 | |
| Ретинилпальмитат | Toronto Research Chemicals | TRC-R275450 | |
| Хлорид натрия (кристаллический/сертифицированный ACS) | Fisher Scientific | S271-500 | |
| Instruments | |||
| 1260 Аналитический коллектор фракций Infinity II | Agilent | G1364F | |
| 1260 Двоичный насос Infinity II | Agilent | G7112B | |
| 1260 Детектор диодной матрицы Infinity II | Agilent | G7115A | |
| 1260 Многоколонный термостат Infinity II Agilent | G7116A | ||
| 1260 Флаконити II Пробоотборник | Agilent | G7129A | |
| ST40R Охлаждаемая центрифуга | Thermo Scientific | TSST40R | |
| Vacufuge Plus концентратор центрифуг | Eppendorf | 22820168 | |
| Расходные материалы | |||
| 2 мл Янтарные флаконы с завинчивающейся крышкой | Agilent | 5188-6535 | |
| Обжимной колпачок с перегородками из ПТФЭ/красной резины, 11 мм | Agilent | 5183-4498 | |
| Одноразовые стеклянные конические центрифужные пробирки | Millipore Sigma | CLS9950215 | |
| Пробирка с завинчивающейся крышкой, 15 мл | Sarstedt | 62.554.502 | |
| Вкладыш для флаконов, 150 &; L, стекло с полимерными ножками | Agilent | 5183-2088 |
Ссылки
- Palczewski, K., et al. Crystal structure of rhodopsin: A G protein-coupled receptor. Science. 289 (5480), 739-745 (2000).
- Rosenbaum, D. M., Rasmussen, S. G. F., Kobilka, B. K. The structure and function of G-protein-coupled receptors. Nature. 459 (7245), 356-363 (2009).
- Alhosaini, K., Azhar, A., Alonazi, A., Al-Zoghaibi, F. GPCRs: The most promiscuous druggable receptor of the mankind. Saudi Pharm J. 29 (6), 539-551 (2021).
- Hu, G. -M., Mai, T. -L., Chen, C. -M. Visualizing the GPCR network: Classification and evolution. Sci Rep. 7 (1), 15495(2017).
- Lerea, C. L., Somers, D. E., Hurley, J. B., Klock, I. B., Bunt-Milam, A. H. Identification of specific transducin α subunits in retinal rod and cone photoreceptors. Science. 234 (4772), 77-80 (1986).
- Gao, Y., Hu, H., Ramachandran, S., Erickson, J. W., Cerione, R. A., Skiniotis, G. Structures of the rhodopsin-transducin complex: Insights into G protein activation. Mol Cell. 75 (4), 781-790.e3 (2019).
- Zhou, X. E., Melcher, K., Xu, H. E. Structure and activation of rhodopsin. Acta Pharmacol Sin. 33 (3), 291-299 (2012).
- Robinson, P. R., Cohen, G. B., Zhukovsky, E. A., Oprian, D. D. Constitutively active mutants of rhodopsin. Neuron. 9 (4), 719-725 (1992).
- Kiser, P. D., Golczak, M., Palczewski, K. Chemistry of the retinoid (visual) cycle. Chem Rev. 114 (1), 194-232 (2014).
- Sani, B. P., Hill, D. L. [3] Structural characteristics of synthetic retinoids. Methods Enzymol. 189, 43-50 (1990).
- Lobo, G. P., Amengual, J., Palczewski, G., Babino, D., von Lintig, J. Carotenoid-oxygenases: Key players for carotenoid function and homeostasis in mammalian biology. Biochim Biophys Acta. 1821 (1), 78-87 (2012).
- Amengual, J., et al. Two carotenoid oxygenases contribute to mammalian provitamin A metabolism. J Biol Chem. 288 (47), 34081-34096 (2013).
- Harrison, E. H. Mechanisms involved in the intestinal absorption of dietary vitamin A and provitamin A carotenoids. Biochim Biophys Acta. 1821 (1), 70-77 (2012).
- Leung, M., et al. The logistical backbone of photoreceptor cell function: Complementary mechanisms of dietary vitamin A receptors and rhodopsin transporters. Int J Mol Sci. 25 (8), 4278(2024).
- Martin Ask, N., Leung, M., Radhakrishnan, R., Lobo, G. P. Vitamin A transporters in visual function: A mini review on membrane receptors for dietary vitamin A uptake, storage, and transport to the eye. Nutrients. 13 (11), 3987(2021).
- Harrison, E. H. Carotenoids, β-apocarotenoids, and retinoids: The long and the short of it. Nutrients. 14 (7), 1411(2022).
- Li, Y., Wongsiriroj, N., Blaner, W. S. The multifaceted nature of retinoid transport and metabolism. Hepatobiliary Surg Nutr. 3 (3), 126-139 (2014).
- D'Ambrosio, D. N., Clugston, R. D., Blaner, W. S. Vitamin A metabolism: An update. Nutrients. 3 (1), 63-103 (2011).
- Yamamoto, Y., et al. Interactions of transthyretin (TTR) and retinol-binding protein (RBP) in the uptake of retinol by primary rat hepatocytes. Exp Cell Res. 234 (2), 373-378 (1997).
- Kawaguchi, R., et al. A membrane receptor for retinol binding protein mediates cellular uptake of vitamin A. Science. 315 (5813), 820-825 (2007).
- Kiser, P. D., Golczak, M., Maeda, A., Palczewski, K. Key enzymes of the retinoid (visual) cycle in vertebrate retina. Biochim Biophys Acta. 1821 (1), 137-151 (2012).
- Radhakrishnan, R., et al. The role of motor proteins in photoreceptor protein transport and visual function. Ophthalmic Genet. 43 (3), 285-300 (2022).
- Solanki, A. K., et al. Loss of motor protein MYO1C causes rhodopsin mislocalization and results in impaired visual function. Cells. 10 (6), 1322(2021).
- Liu, X., Udovichenko, I. P., Brown, S. D. M., Steel, K. P., Williams, D. S. Myosin VIIa participates in opsin transport through the photoreceptor cilium. J Neurosci. 19 (15), 6267-6274 (1999).
- Insinna, C., Besharse, J. C. Intraflagellar transport and the sensory outer segment of vertebrate photoreceptors. Dev Dyn. 237 (8), 1982-1992 (2008).
- Krock, B. L., Mills-Henry, I., Perkins, B. D. Retrograde intraflagellar transport by cytoplasmic dynein-2 is required for outer segment extension in vertebrate photoreceptors but not arrestin translocation. Invest Ophthalmol Vis Sci. 50 (11), 5463-5471 (2009).
- Blaner, W. S. STRA6, a cell-surface receptor for retinol-binding protein: The plot thickens. Cell Metab. 5 (3), 164-166 (2007).
- Bouillet, P., et al. Developmental expression pattern of Stra6, a retinoic acid-responsive gene encoding a new type of membrane protein. Mech Dev. 63 (2), 173-186 (1997).
- Blomhoff, R., Norum, K. R., Berg, T. Hepatic uptake of [3H]retinol bound to the serum retinol binding protein involves both parenchymal and perisinusoidal stellate cells. J Biol Chem. 260 (25), 13571-13575 (1985).
- Kelly, M., von Lintig, J. STRA6: role in cellular retinol uptake and efflux. Hepatobiliary Surg Nutr. 4 (4), 229-242 (2015).
- Quadro, L., et al. The role of extrahepatic retinol binding protein in the mobilization of retinoid stores. J. Lipid Res. 45 (11), 1975-1982 (2004).
- Alapatt, P., et al. Liver retinol transporter and receptor for serum retinol-binding protein (RBP4). J Biol Chem. 288 (2), 1250-1265 (2013).
- Chawla, A., Repa, J. J., Evans, R. M., Mangelsdorf, D. J. Nuclear receptors and lipid physiology: Opening the X-files. Science. 294 (5548), 1866-1870 (2001).
- Heyman, R. A., et al. 9-cis retinoic acid is a high affinity ligand for the retinoid X receptor. Cell. 68 (2), 397-406 (1992).
- Allenby, G., et al. Retinoic acid receptors and retinoid X receptors: interactions with endogenous retinoic acids. Proc Natl Acad Sci USA. 90 (1), 30-34 (1993).
- Das, B. C., et al. Retinoic acid signaling pathways in development and diseases. Bioorg Med Chem. 22 (2), 673-683 (2014).
- Hernandez, R. E., Putzke, A. P., Myers, J. P., Margaretha, L., Moens, C. B. Cyp26 enzymes generate the retinoic acid response pattern necessary for hindbrain development. Development. 134 (1), 177-187 (2007).
- Yashiro, K., et al. Regulation of retinoic acid distribution is required for proximodistal patterning and outgrowth of the developing mouse limb. Dev Cell. 6 (3), 411-422 (2004).
- Duester, G. Families of retinoid dehydrogenases regulating vitamin A function. Eur J Biochem. 267 (14), 4315-4324 (2000).
- Tatum, V., Chow, C. K. Rapid measurement of retinol, retinal, 13-cis-retinoic acid and all-trans-retinoic acid by high performance liquid chromatography. J Food Drug Anal. 13 (3), (2020).
- Teerlink, T., Copper, M. P., Klaassen, I., Braakhuis, B. J. M. Simultaneous analysis of retinol, all-trans- and 13-cis-retinoic acid and 13-cis-4-oxoretinoic acid in plasma by liquid chromatography using on-column concentration after single-phase fluid extraction. J Chromatogr B. Biomed Sci App. 694 (1), 83-92 (1997).
- Egberg, D. C., Heroff, J. C., Potter, R. H. Determination of all-trans and 13-cis vitamin A in food products by high-pressure liquid chromatography. J Agric Food Chem. 25 (5), 1127-1132 (1977).
- Sudo, Y., et al. A microbial rhodopsin with a unique retinal composition shows both sensory rhodopsin II and bacteriorhodopsin-like properties. J Biol Chem. 286 (8), 5967-5976 (2011).
- Kane, M. A., Napoli, J. L. Quantification of endogenous retinoids. Methods Mol Biol. 652, 1-54 (2010).
- Landers, G. M., Olson, J. A. Rapid, simultaneous determination of isomers of retinal, retinal oxime and retinol by high-performance liquid chromatography. J Chromatogr A. 438, 383-392 (1988).
- Hubbard, R., Brown, P. K., Bownds, D. [243] Methodology of vitamin A and visual pigments. Methods Enzymol. 18, 615-653 (1971).
- Robeson, C. D., et al. Chemistry of vitamin A. XXIV. The synthesis of geometric isomers of vitamin A via methyl β-methylglutaconate1. J Am Chem Soc. 77 (15), 4111-4119 (1955).
- Robeson, C. D., Blum, W. P., Dieterle, J. M., Cawley, J. D., Baxter, J. G. Chemistry of vitamin A. XXV. Geometrical isomers of vitamin A aldehyde and an isomer of its α-ionone analog1. J Am Chem Soc. 77 (15), 4120-4125 (1955).
- Hubinger, J. C. Determination of retinol, retinyl palmitate, and retinoic acid in consumer cosmetic products. J Cosmet Sci. 60 (5), 485-500 (2009).
- Bhat, P. V., Co, H. T., Lacroix, A. Effect of 2-alkanols on the separation of geometric isomers of retinol in non-aqueous high-performance liquid chromatography. J Chromatogr A. 260, 129-136 (1983).
- Stancher, B., Zonta, F. Quantitative high-performance liquid chromatographic method for determining the isomer distribution of retinol (vitamin A1) and 3-dehydroretinol (vitamin A2) in fish oils. J Chromatogr. 312, 423-434 (1984).
- Zonta, F., Stancher, B. High-performance liquid chromatography of retinals, retinols (vitamin A1) and their dehydro homologues (vitamin A2): improvements in resolution and spectroscopic characterization of the stereoisomers. J Chromatogr A. 301, 65-75 (1984).
- van Kuijk, F. J., Handelman, G. J., Dratz, E. A. Rapid analysis of the major classes of retinoids by step gradient reversed-phase high-performance liquid chromatography using retinal (O-ethyl) oxime derivatives. J Chromatogr. 348 (1), 241-251 (1985).
- Kane, M. A., Folias, A. E., Napoli, J. L. HPLC/UV quantitation of retinal, retinol, and retinyl esters in serum and tissues. Anal Biochem. 378 (1), 71-79 (2008).
- Widjaja-Adhi, M. A. K., Ramkumar, S., von Lintig, J. Protective role of carotenoids in the visual cycle. FASEB J. 32 (11), 6305-6315 (2018).
- Ramkumar, S., Jastrzebska, B., Montenegro, D., Sparrow, J. R., von Lintig, J. Unraveling the mystery of ocular retinoid turnover: Insights from albino mice and the role of STRA6. J Biol Chem. 300 (3), 105781(2024).
- de Grip, W. J., Lugtenburg, J. Isorhodopsin: An undervalued visual pigment analog. Colorants. 1 (3), 256-279 (2022).
- Fan, J., Rohrer, B., Moiseyev, G., Ma, J., Crouch, R. K. Isorhodopsin rather than rhodopsin mediates rod function in RPE65 knock-out mice. Proc Natl Acad Sci USA. 100 (23), 13662-13667 (2003).
- Sparrow, J. R. Bisretinoids of RPE lipofuscin: Trigger for complement activation in age-related macular degeneration. Adv Exp Med Biol. 703, 63-74 (2010).
- Różanowska, M., Handzel, K., Boulton, M. E., Różanowski, B. Cytotoxicity of all-trans-retinal increases upon photodegradation. Photochem Photobiol. 88 (6), 1362-1372 (2012).
Перепечатки и разрешения
Теги
