Мы представляем новое устройство для измерения скорости потребления кислорода (OCR) в культурах пигментного эпителия сетчатки (RPE). Устройство может измерять OCR в течение нескольких недель на RPE, выращенном на стандартных планшетах для клеточных культур со стандартной средой, пока планшеты находятся в стандартном инкубаторе для клеточных культур.
Методическая статья
Долгосрочный мониторинг интенсивности потребления кислорода в высокодифференцированных и поляризованных культурах пигментного эпителия сетчатки
* These authors contributed equally
В этой статье
Краткое содержание
Аннотация
Метаболизм митохондрий имеет решающее значение для нормального функционирования пигментного эпителия сетчатки (РПЭ), монослоя клеток сетчатки, важного для выживания фоторецепторов. Митохондриальная дисфункция РПЭ является отличительной чертой возрастной макулярной дегенерации (ВМД), ведущей причины необратимой слепоты в развитых странах, и пролиферативной витреоретинопатии (ПВР), ослепляющего осложнения отслойки сетчатки. Дегенеративные состояния РПЭ были хорошо смоделированы культуральными системами РПЭ, которые являются высокодифференцированными и поляризованными для имитации РПЭ in vivo . Тем не менее, мониторинг скорости потребления кислорода (OCR), показателя функции митохондрий, был затруднен в таких культуральных системах, поскольку условия, способствующие идеальной поляризации и дифференцировке RPE, не позволяют легко измерить OCR.
В данной работе мы представляем новую систему Resipher для мониторинга OCR в течение нескольких недель в хорошо дифференцированных культурах RPE при одновременном поддержании RPE на оптимальных субстратах роста и физиологических питательных средах в стандартном инкубаторе для клеточных культур. Эта система рассчитывает OCR путем измерения градиента концентрации кислорода, присутствующего в средах над клетками. Мы обсудим преимущества этой системы перед другими методами обнаружения ОРС и как настроить систему измерения ОРС в культурах СНЭ. Мы рассмотрим основные советы и рекомендации по использованию системы, предостережения при интерпретации данных и рекомендации по устранению непредвиденных результатов.
Мы также предоставляем онлайн-калькулятор для экстраполяции уровня гипоксии, нормоксии или гипероксии в культурах РПЭ на основе градиента кислорода в средах над клетками, обнаруженными системой. Наконец, мы рассмотрим два применения системы: измерение метаболического состояния клеток RPE в модели PVR и понимание того, как RPE метаболически адаптируется к гипоксии. Мы ожидаем, что использование этой системы на высокополяризованных и дифференцированных культурах РПЭ улучшит наше понимание митохондриального метаболизма РПЭ как в физиологических, так и в болезненных состояниях.
Введение
Пигментный эпителий сетчатки (РПЭ) представляет собой монослой функционально постмитотических, высокополяризованных эпителиальных клеток, которые образуют барьер между светочувствительными фоторецепторами в сетчатке и их кровообращением, капиллярное ложе, называемое хориокапиллярами. Как и нейроны, поддерживающие глию, RPE выполняет множество функций для поддержки фоторецепторов, включая фагоцитоз внешних сегментов фоторецепторов, транспорт питательных веществ и метаболическую поддержку фоторецепторов, а также секрецию основных факторов роста, которые имеют решающее значение для поддержания зрительной функции.
Дегенерация РПЭ лежит в основе нескольких распространенных дегенеративных расстройств зрения. При возрастной макулярной дегенерации (ВМД), одной из наиболее распространенных причин неизлечимой потери зрения в мире, РПЭ погибает, и поэтому вышележащие фоторецепторы страдают вторичной дегенерацией. При пролиферативной витреоретинопатии (ПВР) РПЭ вместо этого выходит из своего обычно спокойного постмитотического состояния, пролиферируя и дедифференцируя в мезенхимальное состояние (так называемый эпителиально-мезенхимальный переход [ЭМП]) с изменениями в своем метаболизме. Дедифференцировка РПЭ приводит к потере поддержки РПЭ для фоторецепторов, а также вызывает более фиброзное состояние. Это приводит как к дегенерации фоторецепторов, так и к рубцеванию, вызванному РПЭ, что приводит к потере зрения 1,2.
Основная часть поддержки фоторецепторов РПЭ является метаболической, а метаболическая дисрегуляция является критическим фактором при многочисленных заболеваниях сетчатки, включая ВМД и ПВР. РПЭ служит регуляторным барьером между фоторецепторами и их источником кислорода и питательных веществ, хориокапиллярами. Таким образом, то, что РПЭ выбирает для метаболизма, в отличие от того, через что РПЭ выбирает для прохождения от хориокапилляров к фоторецепторам, в значительной степени определяет метаболизм и выживание фоторецепторов. Многочисленные исследования показали, что РПЭ в значительной степени зависит от метаболизма митохондрий для своего нормального здоровья, и что фоторецепторы в значительной степени зависят от гликолиза3. Это привело к появлению концепции комплементарных, переплетенных метаболических состояний между фоторецепторами и РПЭ. В частности, РПЭ снижает метаболизм предпочтительных метаболических субстратов фоторецепторов и вместо этого использует побочные продукты метаболизма фоторецепторов в сочетании с метаболитами, которые фоторецепторы не потребляют. При таких заболеваниях, как ПВР и ВМД, данные убедительно свидетельствуют о том, что РПЭ становится более гликолитическим и менее зависимым от митохондриального метаболизма; этот сдвиг в сторону гликолиза RPE может лишить фоторецепторы необходимых метаболитов, вызывая дегенерацию 4,5,6. Учитывая, насколько взаимозависимы метаболизм РПЭ и фоторецепторов и насколько измененный метаболизм лежит в основе заболевания сетчатки, существует большой интерес к моделированию и манипулированию метаболизмом РПЭ в терапевтических целях.
В то время как изучение митохондриального метаболизма РПЭ in vivo является идеальным, многие аспекты митохондриального метаболизма РПЭ могут быть практически исследованы только в системе культивирования in vitro. За последние несколько десятилетий был достигнут значительный прогресс в области высокоточных культур РПЭ, вплоть до того, что наиболее тщательно ухоженные культуры РПЭ в настоящее время используются для заместительной клеточной терапии в клинических испытаниях на людях7. Для поддержания таких высокоточных культур RPE необходимо выращивать на определенных субстратах в определенных средах в течение нескольких месяцев до экспериментов. При таких условиях культуры РПЭ максимально дифференцируются и поляризуются, аппроксимируя in vivo РПЭ. К сожалению, в настоящее время не существует оборудования, которое могло бы измерить метаболизм митохондрий конкретно из РПЭ in vivo. В то время как кислородный мониторинг капиллярной сети сетчатки был достигнут in vivo с помощью оксиметрии электронного парамагнитного резонанса (ЭПР)8, это невозможно для анализа РПЭ. Различия между метаболизмом РПЭ in vivo и in vitro не очень хорошо описаны, но было показано, что культуры РПЭ обладают высокой митохондриальной активностью, аналогичной РПЭ in vivo 3,9, что позволяет предположить, что значительное понимание митохондриального метаболизма РПЭ может быть получено с помощью высокоточных культур РПЭ.
Поскольку весь митохондриальный метаболизм приводит к потреблению кислорода, измерение скорости потребления кислорода RPE (OCR) является верным показателем митохондриального метаболизма. Измерение OCR в культурах RPE было затруднено, поскольку условия, способствующие максимальной поляризации и дифференцировке RPE, часто исключают долгосрочные точные измерения OCR с помощью доступных в настоящее время методов, таких как анализатор морских коньков. В данной работе по методам представлено новое устройство, получившее название Resipher (далее именуемое «система»), которое позволяет непрерывно измерять OCR в течение нескольких недель в RPE, выращенных в условиях, максимально способствующих поляризации и дифференцировке. Легкость, с которой OCR может быть измерена этой системой в условиях культуры RPE, которые максимально способствуют дифференциации и поляризации RPE, уникальна среди существующих устройств для измерения OCR.
В этом документе содержатся советы и рекомендации по использованию системы с культурами RPE, а также демонстрация двух конкретных приложений. Во-первых, ЭМП РПЭ, имитирующий ПВР, запускается воздействием трансформирующего фактора роста-бета (TGFβ)1,10,11,12. Система используется для мониторинга того, как развивается метаболизм РПЭ в процессе ЭМП. Во-вторых, роль гипоксии в метаболизме РПЭ исследуется с помощью этой системы. Гипоксия является важным фактором патогенеза ВМД, так как хориокапилляры истончаются с возрастом 13,14 лет. Сочетание этой системы с камерами гипоксии позволяет моделировать измененный митохондриальный метаболизм RPE с тонкой гипоксией, которая сопровождает старение. Наконец, вводится онлайн-калькулятор с использованием данных Резифера, позволяющий определить, находятся ли культуры РПЭ в гипоксических, нормоксических или гипероксических условиях. Такая информация имеет решающее значение для того, чтобы сделать какие-либо выводы о метаболизме РПЭ на основе исследований культуры РПЭ in vitro.
Протокол
Протоколы для определения первичных культур человека или культуры iPSC-RPE см. в следующих ссылках 15,16,17,18. Получение и использование человеческих тканей для этих протоколов было рассмотрено и одобрено Институциональным наблюдательным советом Мичиганского университета (HUM00105486).
1. Общее применение системы к культуре СИЗД
- Пластинчатые индуцированные плюрипотентные стволовые клетки человека (ИПСК) производные РПЭ или первичные клетки РПЭ человека в системно-совместимых 96-луночных планшетах.
- Предполагая, что уже существуют зрелые культуры, выращенные на 24-луночных клеточных планшетах, промойте клетки фосфатно-солевым буфером (PBS) один раз, а затем добавьте 500 мкл 0,25% трипсина-ЭДТА (Таблица материалов). Инкубируйте в течение 10-40 минут в инкубаторе для клеточных культур, проверяя каждые 5-10 минут, пока клетки не округлятся и не будут почти готовы к отделению.
- Осторожно нанесите пипетку на клетки, чтобы отделить их от пластика клеточной культуры, после чего переместите в 3-кратный объем среды для клеточных культур (1500 μл на 24-лунку), вращая в центрифуге при 250 × г в течение 5 минут при комнатной температуре.
Примечание: Рецептура питательных сред для клеточных культур RPE подробно изложена в таблице 1 и доступна в ранее опубликованных ссылках 9,15,16,17,18. - Ресуспендируйте клетки в питательных средах для клеточных культур RPE с 15% фетальной бычьей сывороткой (FBS) и подсчитайте клетки с помощью гемоцитометра.
- Затравите 74 000 клеток в каждую лунку 96-луночного планшета (обычно 225-300 × 105 клеток/см2) после покрытия высокоспециализированными субстратами из внеклеточного матрикса (Таблица материалов) в соответствии с инструкциями производителя.
ПРИМЕЧАНИЕ: Затравочные ячейки только на совместимой с Резифером пластине (Таблица материалов) и только в лунках, соответствующих матрице зондов на чувствительной крышке (столбцы 3, 4, 9 и 10 для 32-канальной крышки; см. Таблицу материалов). Чувствительная крышка системы доступна с 4-, 32- или 96-канальными датчиками (см. расположение датчиков на рисунке 1A-D), а также совместим ряд стандартных планшетов для клеточных культур. - Поскольку краевые лунки подвержены испарению, что значительно влияет на доступность кислорода и, следовательно, на показания OCR, избегайте засева ячеек на всех краевых лунках (ряды A и H 96-луночной пластины). Кроме того, добавьте 200 мкл стерильной воды в каждую из пустых лунок 96-луночного планшета, чтобы уменьшить эффект испарения.
- Подержите тарелку на устойчивой поверхности стола в течение 10 минут, чтобы ячейки осели; Затем верните его в инкубатор. Смените среду через 24-72 ч, заменив ее на стандартные питательные среды РПЭ с 5% FBS. Культивируйте не менее 4 недель, меняя носители 2 раза в неделю.
Примечание: Клетки готовы к экспериментам, когда они пигментированы, булыжники и очень компактны (рисунок 1E).
- Настройка и получение данных с помощью системы
- Поместите чувствительную крышку на пустую 96-луночную приемную пластину, а затем поместите ее обратно в инкубатор для клеточных культур. Выровняйте и закрепите устройство на чувствительной крышке и подключите его к концентратору с помощью прилагаемого USB-кабеля. В результате получается «бутерброд » Ресифера (Рисунок 2А).
- Перейдите на веб-сайт приложения Lucid lab (https://lab.lucidsci.com/) и нажмите кнопку «Новый эксперимент » в правом верхнем углу, чтобы создать новый эксперимент.
- Назовите название эксперимента и введите любые соответствующие экспериментальные примечания для конкретного исследования (например, номер прохода используемого iPSC-RPE).
- Создание скважинных условий и групп обработки. Например, при тестировании влияния различных концентраций сыворотки в среде на OCR выберите «Сыворотка » в названии группы, затем введите концентрации сыворотки среды, которые будут использоваться, добавив дополнительные значения процента сыворотки, нажав кнопку «+ ». Назначьте, в какие лунки будет поступать определенный процент сыворотки, и выберите цветовой шаблон для этих лунок. При необходимости добавьте больше групп (например, другую экспериментальную переменную для тестирования), нажав кнопку добавления группы .
- Определите настройку пластины и выберите соответствующее устройство и стиль пластины. Нажмите кнопку «Добавить пластину » и выберите «Устройство»; Выберите тип пластины. Выберите лечение и нажмите на соответствующую лунку.
- Нажмите кнопку «Начать сейчас », чтобы начать эксперимент. Убедитесь, что индикатор на сайте и светодиод на хабе горят зеленым цветом.
- Дайте системе поработать в течение 15-60 минут, чтобы убедиться, что каждый датчик правильно откалиброван и точно обнаруживает атмосферный кислород, который должен быть в концентрации ~200 мкМ в полностью увлажненном инкубаторе для клеточных культур с 5%CO2 (Рисунок 2Bi).
ПРИМЕЧАНИЕ: Если какой-либо из датчиков отличается более чем на 20% от среднего значения других датчиков в стандартной установке инкубатора для клеточных культур, рассмотрите возможность исключения этого колодца из анализа данных, так как датчик неисправен (Рисунок 2Bii).
ПРИМЕЧАНИЕ: Если все датчики более чем на 20% отклоняются от среднего значения других датчиков и от ожидаемого атмосферногоO2 , зарегистрированного как 200 мкМ в стандартной конфигурации инкубатора для клеточных культур, то чувствительная крышка использовалась слишком много раз; замените его на новую чувствительную крышку (Рисунок 2Biii).
ПРИМЕЧАНИЕ: Получение показаний O2 в воздухе до начала эксперимента значительно улучшает поиск и устранение неисправностей впоследствии. Если после проведения эксперимента определенная скважина выглядит как выброс и в этой скважине был датчик, который не был откалиброван, проблема может быть связана с датчиком, а не с биологической репликой. - Извлеките устройство из крышки датчика (но не отсоединяйте USB-кабель от устройства). Поместите устройство в инкубатор вверх дном, чтобы двигатель на устройстве мог перезагрузиться. Не используйте Устройство повторно до тех пор, пока не прекратятся все звуки двигателя (примерно 20-30 с).
ПРИМЕЧАНИЕ: Важно постоянно держать устройство подключенным к концентратору через USB-кабель во время эксперимента, даже когда устройство снято с чувствительной крышки. Это позволяет устройству осуществлять непрерывный мониторинг и составлять отчеты о среде инкубатора для клеточных культур. - Поместите планшет с чувствительной крышкой обратно в колпак для клеточных культур вместе с 96-луночным планшетом, содержащим культуры RPE. Измените среду в планшете с культурами RPE с той же средой и одним и тем же объемом для всех скважин, чтобы получить исходные значения OCR для каждой скважины. Обязательно заполните все лунки без СИЗД стерильной водой, чтобы предотвратить испарение.
ПРИМЕЧАНИЕ: В целом, мы рекомендуем 60-100 мкл питательных сред RPE на 96-лунку, основываясь на данных, демонстрирующих, что меньшие объемы среды приводят к быстрому истощению питательных веществ, а более высокие объемы среды приводят к непреднамеренной гипоксии. - Перенесите чувствительную крышку на планшет, содержащий клеточные культуры, и стандартную (не резиферную) крышку на планшете, содержащем клеточные культуры, на пустую 96-луночную приемную пластину для поддержания стерильности стандартной крышки, которая потребуется в различные моменты эксперимента.
- Поместите планшет с клеточными культурами и чувствительную крышку обратно в инкубатор для клеточных культур. Еще раз совместите и закрепите Устройство на чувствительной крышке и подключите его к Хабу через прилагаемый USB-кабель (собрав «бутерброд»). Убедитесь, что индикаторы на интерфейсе сайта и в хабе горят зеленым цветом.
ПРИМЕЧАНИЕ: Данные о концентрацииO2 появятся сразу, в то время как данные OCR появятся только после того, как будет собрано достаточное количество данныхO2 , примерно через 1 час. - Дайте устройству измерить OCR на каждой скважине в течение не менее 12-24 часов, чтобы зафиксировать исходное OCR.
ПРИМЕЧАНИЕ: Исходное OCR будет отличаться в зависимости от многих факторов, в том числе от типа среды, наносимой на клетки. На рисунке 2C стандартные питательные среды RPE с разным количеством FBS (0%, 5%, 15%) имеют несколько отличающиеся значения OCR. Кроме того, культуры с большим количеством FBS могут дольше поддерживать митохондриальную активность после нанесения среды на клетки до того, как OCR упадет из-за истощения митохондриальных метаболитов (правая сторона кривой). - После того, как исходный уровень OCR получен, повторите шаги 1.2.8-1.2.12, но измените среду на планшете с культурами RPE в соответствии с вашими экспериментальными условиями (как правило, ± лекарственным препаратом или сравнением различных условий среды).
ПРИМЕЧАНИЕ: Рутинная смена носителей также может быть обработана таким же образом. В любое время, когда инкубатор для клеточных культур открывается, ожидайте значительных нарушений в показаниях OCR, поскольку они зависят от температуры, влажности, концентрацииCO2 и других факторов, которые временно нарушаются при открытии дверцы инкубатора. Во время любого снятия Прибора с чувствительной крышки нет необходимости приостанавливать эксперимент в режиме онлайн. После того, как дверца инкубатора для клеточных культур открыта или среда заменена на зондируемой пластине, обычно требуется 2-4 часа, чтобы восстановить градиент кислорода и начать измерение точного OCR. - После получения данных вычтите исходный уровень OCR для каждой скважины из OCR после применения экспериментального условия, чтобы определить Delta OCR , вызванный обработкой.
- После завершения эксперимента простерилизуйте и повторно используйте чувствительную крышку (которую можно использовать повторно 3-5 раз, хотя производительность ухудшается при повторном использовании). Чтобы простерилизовать чувствительную крышку, погрузите всю крышку в 70% этанол на 10 минут в колпак для клеточных культур, затем снимите с погружения и положите на зонд шкафа стороной вверх (не касайтесь тонких наконечников зонда) и дайте этанолу и воде полностью испариться, прежде чем надевать чувствительную крышку на новую 96-луночную приемную пластину.
- Делайте снимки светлого поля для нормализации значений OCR по номеру ячейки.
ПРИМЕЧАНИЕ: Накопление меланина в РПЭ способствует нормализации OCR на основе простого подсчета количества клеток в живых культурах с помощью светлопольного микроскопа.- Снимите устройство и положите его вверх дном, как в пункте 1.2.8. В колпаке для клеточных культур замените чувствительную крышку на планшете для культивирования RPE на стандартную 96-луночную крышку.
- С помощью стандартного инвертированного микроскопа сделайте светлопольные снимки каждой лунки.
ПРИМЕЧАНИЕ: Следите за тем, чтобы изображения области один были одинаковыми между лунками (относительное расположение в лунке и увеличение объектива). - В колпаке для клеточных культур замените стандартную 96-луночную крышку на планшете для культивирования РПЭ на чувствительную крышку и поместите его обратно в инкубатор для дальнейшего мониторинга.
- Подсчитайте номер ячейки в каждой лунке с помощью ImageJ или другого программного обеспечения.
- Нормализуйте OCR по номеру клеток в различных экспериментальных группах. Система сообщает OCR в единицах фмоль∙(мм2)-1∙с-1-расход на единицу площади поперечного сечения. Следовательно, чтобы нормализовать OCR для каждой клетки, разделите OCR на количество клеток на мм2 (а не на количество клеток на лунку). Аналогично, умножьте OCR, сообщаемые системой, на площадь поперечного сечения скважины (около 31мм2 для стандартной 96-луночной пластины), чтобы получить OCR в единицах fmol∙s-1∙well-1.
- Средства управления для определения биоэнергетических параметров РПЭ.
Примечание: Чтобы убедиться, что система и культуры RPE реагируют на митохондриальные манипуляции предсказуемым образом, можно протестировать определенные малые молекулы, хорошо зарекомендовавшие себя для нацеливания на определенные этапы митохондриального окислительного фосфорилирования. Эти тесты аналогичны этапам, выполняемым в митохондриальном стресс-тесте с использованием анализатора морских коньков10 , и обеспечивают биоэнергетический профиль для культур РПЭ.- Культивируйте клетки RPE в 65 мкл стандартной питательной среды RPE с 5% FBS и измеряйте OCR в течение 24 ч для установления исходного уровня.
- Аспиратируйте культивируемые среды и добавьте 65 мкл стандартных питательных сред RPE с 5% FBS и с митохондриальными разъединителями (3 мкМ карбонильцианид--трифторметоксифенилгидразон [FCCP] или 500 нМ Bam15, таблица материалов). Высиживайте в течение ночи.
ПРИМЕЧАНИЕ: Митохондриальные разъединители должны значительно увеличивать OCR. Убедитесь, что повышенное OCR не находится на уровне или близко к теоретическому максимальному OCR-ограничению диффузии, составляющему приблизительно 275 фоль∙(мм2)-1∙с-1 для 65 μл среды в стандартных условиях культивирования. Максимальное OCR для различных часто используемых объемов носителей доступно в разделе Обсуждение. - После ночной инкубации аспирируйте среду с помощью митохондриальных развязывателей и замените 65 мкл стандартной питательной среды RPE с 5% FBS. Наблюдайте за планшетом в течение еще 24 ч, чтобы определить восстановление РПЭ OCR после удаления лекарственных препаратов.
- Рассчитайте влияние разъединителей на OCR путем вычитания OCR, полученного после лечения, из OCR, полученного до обработки (рис. 3).
Примечание: Увеличение OCR с добавлением митохондриальных разъединителей означает резервную митохондриальную дыхательную способность клетки19. - Чтобы измерить другие митохондриальные параметры, обычно регистрируемые во время митохондриального стресс-теста с помощью анализатора морских коньков, выполните те же шаги, что и выше, со следующими соединениями (рис. 4).
- Используйте олигомицин в концентрации 1 мкМ для оценки АТФ-сцепленного дыхания.
- Используйте антимицин А и ротенон в концентрации 1 мкМ для оценки любого немитохондриального дыхания.
ПРИМЕЧАНИЕ: ФКХП, олигомицин, антимицин А и ротенон могут быть токсичными для СИЗД. Если они вызывают значительную гибель клеток, то измерения OCR не будут точными. Таким образом, измерения OCR должны быть получены только в тот момент времени, когда нет очевидной гибели клеток, как правило, в течение первых нескольких часов после добавления лекарств (рис. 4).
2. Измерение изменений в митохондриальном метаболизме в РПЭ при проведении ЭМП
- Следуйте тому же протоколу, который описан в разделе 1.2.
- Чтобы индуцировать ЭМП после получения исходных измерений OCR, добавьте TGF-β2 (10 нг/мл) в культуры RPE и контролируйте OCR в течение 3 недель. Обновляйте носитель свежим TGFβ2 каждые 2-3 дня (Рисунок 5).
- Не реже 2 раз в неделю получайте светлопольные изображения, как описано в разделе 1.3, чтобы убедиться, что количество клеток не меняется. Если количество меняется, нормализуйте значения OCR в соответствии с номером ячейки в каждой лунке.
Примечание: Тот же протокол может быть использован для других индукторов ЭМП для мониторинга долгосрочных изменений OCR в течение периода культивирования, пока клетки находятся в инкубаторе.
3. Измерение изменений в митохондриальном метаболизме при гипоксическом РПЭ
Применение системы в условиях гипоксии, нормоксии или гипероксии аналогично применению в разделе 1.2, за исключением хранения «бутерброда» в камере для гипоксии (Таблица материалов), помещенной в стандартный инкубатор для клеточных культур.
- Просверлите отверстие на крышке камеры гипоксии для крепления кабеля USB type-c и заклейте его силиконом или шпаклевкой (рисунок 6А).
- Соберите чувствительную крышку с планшетом для культивирования клеток в колпаке и перенесите их в камеру гипоксии.
- Установите «бутерброд» (пластину, чувствительную крышку, прибор) в камеру гипоксии. Также поместите в камеру гипоксии чашку Петри со стерильной водой, чтобы помочь поддерживать влажность. Наконец, поместите портативный датчик О2 в камеру гипоксии (Таблица материалов). Настройка показана на рисунке 6A.
- Загерметизируйте камеру и подключите ее к газовому баллону с гипоксической концентрациейО2 и стандартной концентрацией клеточной культурыСО2 (например, 1%О2 и 5%СО2).
- Медленно обменивайте воздух в камере гипоксии с воздухом 1% O2/5% CO2 в баллоне до тех пор, пока датчик кислорода не покажет желаемую концентрацию O2 , обычно где-то между 1% и 10 %.
ПРИМЕЧАНИЕ: Портативный датчик O2 требует времени для балансировки, поэтому газ из баллона следует добавлять в камеру гипоксии медленно. - Закройте входной и выходной клапаны камеры гипоксии и перенесите всю камеру в инкубатор.
- Настройте и запустите эксперимент, как описано в разделе 1.2.
Примечание: Предварительное уравновешивание среды в камере гипоксии перед добавлением в клетки может уменьшить время, необходимое для того, чтобы монослой клетки испытал истинную гипоксию (Рисунок 6B).
4. Расчет концентрацииО2 в монослое РПЭ для определения того, находятся ли клетки в гипоксических, нормоксических или гипероксических условиях
ПРИМЕЧАНИЕ: Система измеряет концентрациюO2 в диапазоне примерно от 1 до 1,5 мм над дном лунки по умолчанию при условии, что для монослойного посева используется стандартная пластина с соответствующей рекомендуемой чувствительной крышкой (см. https://lucidsci.com/docs/LucidScientific_Sensing_Lid_Selection_Guide.pdf). Хотя концентрацияО2 в монослое клетки напрямую не измеряется, данные системы могут быть использованы для оценки концентрацииО2 на уровне РПЭ. В частности, зная, что градиент кислорода существует между верхней частью столбца среды, гдеимеется О2 , и нижней частью столбца среды, где потребляетсяО2 , законы диффузии Фика могут быть объединены с измеренной скоростью ОРС для экстраполяции уровнейО2 в монослое клетки. Калькулятор для этой оценки предоставлен в Интернете: https://lucidsci.com/notes?entry=oxygen_diffusion (а в виде интерактивного блокнота с открытым исходным кодом по адресу https://observablehq.com/@lucid/oxygen-diffusion-and-flux-in-cell-culture, исходный код этого калькулятора можно найти по адресу https://github.com/lucidsci/oxygen-diffusion-calculator).
- После того, как вы получите доступ к калькулятору, введите объем носителя в микролитрах (например, 100 μл).
- Введите концентрацию насыщенного кислорода на границе раздела воздух-жидкость (в верхней части столбца среды над ячейками). Это значение составляет ~185 мкМ при стандартном атмосферном давлении с 5%O2 и влажностью 95%.
ПРИМЕЧАНИЕ: Это также можно определить по измерениямO2 с помощью системных зондов в лунках, работающих только с фильтрующим средой (без ячеек на дне скважины). - В поле Flux введите Flux/OCR, сообщаемый системой.
- На основе этих значений рассчитывается установившаяся концентрация кислорода на каждой высоте в столбце среды и отображается на графике (рис. 7). Ось x графика — это высота в мм над дном скважины. Ось y — это расчетная концентрация О2 на этой высоте (в мкМ).
- КонцентрацияO2 на дне скважины (где находятся ячейки) отображается на линии под графиком.
ПРИМЕЧАНИЕ: В целом, предполагается,что концентрация О2 в РПЭ in vivo составляет 4-9%. Каждые 10 мкМО2 при стандартных атмосферных условиях соответствуют примерно 1%О2. Таким образом, нормоксия на уровне клеток составляет примерно 40-90 мкМО2. Чем выше колонна среды, темниже будет О2 на уровне монослоя РПЭ9. Таким образом, если клетки находятся в условиях гипоксии, объем среды может быть уменьшен. Если клетки находятся в гипероксических условиях, объем среды может быть увеличен.
Результаты
Установка «сэндвича» для эксперимента с Ресифером показана на рисунке 2A. Чувствительные крышки с 32 зондами, соответствующими столбцам 3, 4, 9 и 10 на 96-луночном планшете, расположены между пластиной ячейки и устройством. После подключения к концентратору устройство активирует двигатели для перемещения чувствительной крышки вверх и вниз, измеряя концентрациюO2 в колонне среды в диапазоне высот над монослоем ячейки (обычно 1-1,5 мм). Таким образом , градиент О2 непрерывно измеряется путем регистрации концентрацийО2 на этих различных высотах над монослоем. На основе градиентных измерений и применения законов диффузии Фика устройство автоматически рассчитывает поток кислорода от диапазона высот зонда до нижнего предела, который представляет собой скорость потребления кислорода (OCR) монослоем ячейки. Чувствительная крышка обнаруживает O2 независимо от того, пуста ли лунка (только воздух), заполнена ли она фильтрующим материалом, но без ячеек (только среда) или имеет среду, покрывающую монослой ячеек (среда + элементы). Для проверки качества работы датчиков в чувствительной крышке крышку можно сначала поместить над пустой (только воздушной) 96-луночной пластиной. Если каждый датчик для каждой лунки работает, сообщаемые значенияО2 должны согласовываться друг с другом и приближаться к 200 мкМ, что близко к ожидаемомуО2 в атмосфере в стандартных условиях инкубатора для клеточных культур. На рисунке 2Bi показаны показанияO2 от восьми зондов в атмосферном воздухе (сообщаются как концентрация в μM, поскольку преобразование единиц измерения по умолчанию предполагает, что зонды находятся в жидкости при температуре 37 °C). Эти показания близки к 200 мкМ (±5%) и близки к 200 мкМ, что означает, что все восемь датчиков функционируют хорошо. На рисунке 2Bii используется та же чувствительная крышка, что и на рисунке 2Bi , но развернуто другое устройство. Здесь два неисправных датчика устройства обнаруживаются на основе кривых выбросов (выделены красным цветом). Это говорит о том, что устройство является проблемным и нуждается в замене (или скважины, соответствующие неисправным датчикам, должны быть исключены из эксперимента). На рисунке 2Biii используется то же устройство, что и на рисунке 2Bi , но используются две разные чувствительные крышки. Крышка 1 (левая сторона) имеет высокую вариабельность между зондами, что позволяет предположить, что чувствительный материал крышки деградировал, обычно из-за того, что крышка использовалась слишком много раз. Крышка 2 (правая сторона) является новой, демонстрирующей плотные показания, сгруппированные вокруг 200 μМ. Используя систему, можно проанализировать влияние приема добавок сыворотки в средах на метаболизм митохондрий РПЭ. Как видно на рисунке 2C, повышение уровня сывороточных добавок вызывало незначительное повышение уровня RPE OCR. Важно отметить, что более высокое содержание добавок в сыворотке крови также позволило поддерживать метаболизм митохондрий в течение более длительного периода. Даже без каких-либо добавок сыворотки OCR поддерживается в течение примерно 90 часов, прежде чем истощение митохондриальных метаболических субстратов вызывает снижение OCR. Таким образом, изменения среды с концентрацией 100 мкл на 96-лунку каждые 3,5 дня (два раза в неделю) достаточны, даже при использовании бессывороточных сред, чтобы избежать истощения питательных веществ в зрелых, высокодифференцированных и поляризованных культурах РПЭ.
Показатели OCR могут значительно варьироваться от скважины к лунке, даже в культурах, где все лунки, по-видимому, имеют одинаковое количество клеток и морфологию. Таким образом, чтобы определить, связано ли увеличение OCR с экспериментальными условиями или просто с базовыми различиями в OCR между скважинами, необходима нормализация. Первым шагом в нормализации является обеспечение постоянного количества клеток между лунками, как указано в разделе 1.3 протокола. Если количество клеток варьируется в зависимости от лунки, OCR для лунки необходимо нормализовать в соответствии с номером ячейки. В целом, для высокозрелых и поляризованных культур РПЭ количество клеток между лунками удивительно стабильно9. Даже в таких сценариях базовое OCR между скважинами может варьироваться, как показано на рисунке 3A. В этом случае исходное значение OCR до любой обработки изменяется на целых 100 фмоль/мм2/сек между скважинами. Измеряя OCR до начала обработки, можно затем определить Delta OCR , вызванный экспериментальной обработкой, и изолировать его от любых различий в исходном уровне OCR между скважинами. В этом случае методы лечения сравнивают два митохондриальных разъединителя (FCCP против BAM15) с контролем транспортного средства. После того, как исходный уровень OCR используется для нормализации, эффекты лечения, специфичные для размыкателей по сравнению с контрольной группой, становятся очевидными (сравните рисунок 3B с рисунком 3C). Как правило, эксперименты, которые могут изменить OCR, должны быть разделены как минимум на две фазы: начальная OCR для установления исходного уровня OCR и фаза лечения для определения Delta OCR.
Чтобы подтвердить, что культуры РПЭ ожидаемым образом реагируют на митохондриальные манипуляции, и установить биоэнергетический профиль РПЭ, с системой можно использовать классические инструменты с малыми молекулами, используемые в митохондриальном стресс-тесте на анализаторе морских коньков компании Agilent. Во-первых, резервная емкость митохондрий может быть измерена с помощью митохондриального разъединителя19. В культурах РПЭ митохондриальный разъединитель BAM15 демонстрирует гораздо более надежное и устойчивое увеличение OCR по сравнению с FCCP (рис. 3C, D), не вызывая токсичности. С помощью системы можно рассчитать и другие параметры, доступные в митохондриальном стресс-тесте анализатора морских коньков, включая базальное дыхание, дыхание, связанное с АТФ, утечку протонов и немитохондриальную дыхательную способность. В то время как анализатор морских коньков полагается на инжекционные порты для последовательной доставки токсинов, которые ингибируют определенные комплексы окислительного фосфорилирования для определения вышеуказанных параметров, Resipher не имеет такой возможности. Тем не менее, каждый митохондриальный токсин может быть добавлен в отдельные лунки, и различные респираторные параметры могут быть рассчитаны на основе изменения кратности в лунках, обработанных носителем. На рисунке 4A сравниваются различия в OCR между лунками, обработанными митохондриальным разъединителем BAM15, ингибитором АТФ-синтазы олигомицином, комплексными ингибиторами I и III антимицином/ротеноном и контролем носителя (DMSO). Поскольку эти токсины могут вызывать гибель клеток в течение более длительных периодов времени, а гибель клеток влияет на OCR, показания OCR были сняты уже через несколько часов лечения. На рисунке 4B показаны различия в OCR между транспортным средством и лунками, обработанными каждой митохондриально активной малой молекулой в виде гистограммы, экстраполированной из последних временных точек на рисунке 4A. Значения OCR на рисунке 4B могут быть затем использованы для расчета биоэнергетических параметров для культуры RPE, как показано на рисунке 4C. Каждая цветовая кодировка в биоэнергетическом профиле на рисунке 4C происходит из той же цветовой кодировки на рисунке 4B. Таким образом, с помощью системы OCR можно оценить такие параметры, как АТФ-связанное дыхание, утечка протонов, максимальная митохондриальная дыхательная способность и немитохондриальная дыхательная способность. Краткое описание механизма действия каждой митохондриально активной малой молекулы показано на рисунке 4D.
Продемонстрировав протокол этой системы на культурах РПЭ и контрольные эксперименты по анализу биоэнергетических профилей РПЭ, можно исследовать экспериментальное применение системы в биологии и патологии РПЭ. При пролиферативной витреоретинопатии (ПВР), состоянии, возникающем после отслойки сетчатки или травмы глаза, РПЭ претерпевает драматическую трансформацию, известную как эпителиально-мезенхимальный переход (ЭМП), в результате которой высокорегулярные и похожие на булыжники РПЭ теряют свои межклеточные спайки и трансдифференцируются в веретенообразные мезенхимальные клетки, которые являются сократительными и подвижными 1,2. Это вызывает тангенциальные сократительные силы на сетчатке, которые могут вызвать отслоение сетчатки. Классическими индукторами ЭМП при РПЭ являются трансформирующий фактор роста-бета (TGFβ) и фактор некроза опухоли-альфа (TNFα)10,11,12. Из трех изоформ TGFβ млекопитающих, TGFβ2 является наиболее заметным и мощным индуктором ЭМП в сетчатке1, вызывая отчетливое клеточное удлинение характерных гексагональных клеток RPE и повышенную экспрессию мезенхимальных маркеров. Ответ ЭМП, индуцированный TGFβ2 в РПЭ, сопровождается подавлением митохондриального дыхания и последующим увеличением гликолитической емкости, как это было продемонстрировано ранее на Seahorse XFe9610. В то время как Seahorse предоставляет биоэнергетические профили в режиме реального времени, он не позволяет осуществлять долгосрочный мониторинг OCR. Таким образом, при первом применении системы OCR в этом исследовании (рис. 5) митохондриальное дыхание отслеживалось в течение трех недель, поскольку EMT индуцировалась TGFβ2 в RPE, что позволило in vitro смоделировать метаболическое перепрограммирование, происходящее во время PVR. В отличие от анализа ЭМП РПЭ по одной временной точке с помощью анализатора морских коньков, метаболическое состояние СИЗОД, подвергающегося ЭМП, можно отслеживать в течение нескольких недель. Очевидно, что повторное воздействие TGFβ2 на РПЭ вызывает продолжающееся прогрессирующее снижение митохондриального метаболизма. Предыдущие данные с использованием анализатора Seahorse XF показали, что TGFβ2 значительно снижает максимальную способность дыхания через 24 часа и 72 часа, но не влияет на базальные уровни OCR10. Неизменное базальное OCR с TGFβ2 до 72 ч подтверждается системой OCR, использованной в данном исследовании (рис. 5). Тем не менее, долгосрочные данные системы OCR в этом исследовании показывают, что после 5 дней воздействия TGFβ2 базальные уровни OCR начинают снижаться, причем снижение базального OCR становится наиболее очевидным через 20 дней. Эти результаты подчеркивают долгосрочные изменения в базальном OCR, которые не были зафиксированы с предыдущими временными точками «Морского конька».
Во втором применении система может быть использована для мониторинга митохондриального метаболизма СИЗД в условиях гипоксии. Поскольку ВМД связана с истончением хориокапилляров и гипоксией13,20, понимание адаптации РПЭ к субтоксической гипоксии должно дать представление о патогенезе ВМД. Чтобы подвергнуть культуры РПЭ контролируемой гипоксии во время мониторинга митохондриального метаболизма, систему можно поместить в камеру гипоксии, которая, в свою очередь, помещается в инкубатор для клеточных культур. Чтобы облегчить эту настройку, в крышке камеры гипоксии просверливается небольшое отверстие, позволяющее USB-кабелю системы проникнуть внутрь камеры гипоксии. Отверстие заделывается шпаклевкой или силиконом (рисунок 6А). Портативный датчик O2 может быть помещен в камеру гипоксии для мониторинга уровня O2 в атмосфере и обеспечения того, чтобы уплотнение камеры гипоксии оставалось неповрежденным. Используя эту установку, можно определить скорость уравновешивания между концентрацией O2 в атмосфере и концентрацией O2 в среде. На рисунке 6B среда, уравновешенная атмосфернымO2, помещается в отдельные лунки на 96-луночном планшете без каких-либо ячеек и вводится в камеру гипоксии, содержащую всего 5%O2 (~50 μMO2). Со временем среда в каждой скважине уравновешивается с новой концентрацией в атмосфере. Чем выше высота колонны носителя (больше объем), тем дольше занимает балансировка. При концентрации 65 мкл среды в лунке 96-луночного планшета равновесие с атмосфернымO2 занимает примерно 5 ч. Однако равновесное время занимает более 10 ч при объеме среды 100-200 мкл. Эти результаты подчеркивают важность предварительного уравновешивания среды с желаемой концентрацией O2 в атмосфере перед нанесением среды на клетки во время эксперимента с гипоксией.
Для экспериментов с гипоксией важно убедиться, что уровеньО2 в камере гипоксии остается стабильным. Если одна из краевых лунок на 96-луночном планшете будет свободна от ячеек или сред, это позволит одному из датчиков чувствительной крышки непрерывно контролировать содержаниеO2 в атмосфере. На рисунке 6C такой мониторинг с одной лункой, подвергшейся воздействию воздуха, демонстрирует, что камера гипоксии имеет медленную утечку, так что через 30 часов концентрация клеток приближается к концентрации O2 в атмосфере. В качестве заключительного контроля для экспериментов с гипоксией важно определить, различается ли растворимостьO2 между «свежей» и «кондиционированной» средой. Если растворимость различается между средами, первоначально размещенными на клетках, и средами, которые находились на клетках в течение значительного периода времени, то градиентО2 в столбце сред над клетками будет отличаться в зависимости от «условий» сред со временем над клетками. Это, в свою очередь, влияет на расчет OCR. На рисунке 6D 96-луночный планшет с пустыми лунками («воздух»), лунками без клеток, но со свежими средами («новые среды») и лунками без клеток, но с средой, предварительно инкубированной над культурами РПЭ в течение 48 часов («кондиционированные среды»), был сначала помещен в атмосферуО2 для обеспечения полного равновесия. Затем планшет помещали в камеру гипоксии при примерно 3-4%O2 (30-40 мкМ) и давали ему уравновеситься. Наконец, плита снова вернулась к атмосферным концентрациямО2 . Кривые концентрации О2 для новых и кондиционированных сред идентичны, что свидетельствует о том, что растворимостьО2 между новыми и кондиционированными средами идентична, что подтверждает, что изменения в составе среды с течением времени по мере потребления питательных веществ и выделения побочных продуктов в среду не оказывают существенного влияния на растворимостьО2 и, следовательно, непреднамеренно не влияют на ОРС.
Поскольку высота столбца среды над клетками существенно влияет на доступностьО2 в монослое РПЭ9, важно определить, вызывает ли конкретный объем среды гипоксию, нормоксию или гипероксию в монослое РПЭ. Используя измерения из системы, совмещенные с онлайн-калькулятором (https://lucidsci.com/notes?entry=oxygen_diffusion (и в виде интерактивного блокнота с открытым исходным кодом на https://observablehq.com/@lucid/oxygen-diffusion-and-flux-in-cell-culture) - исходный код этого калькулятора на https://github.com/lucidsci/oxygen-diffusion-calculator) можно оценить концентрацию кислорода на монослое РПЭ. На рисунке 7 показан скриншот интерактивного калькулятора. Концентрация О2 in vivo обычно составляет 4-9%, что соответствует молярной концентрацииО2 ~40-90 мкМ.
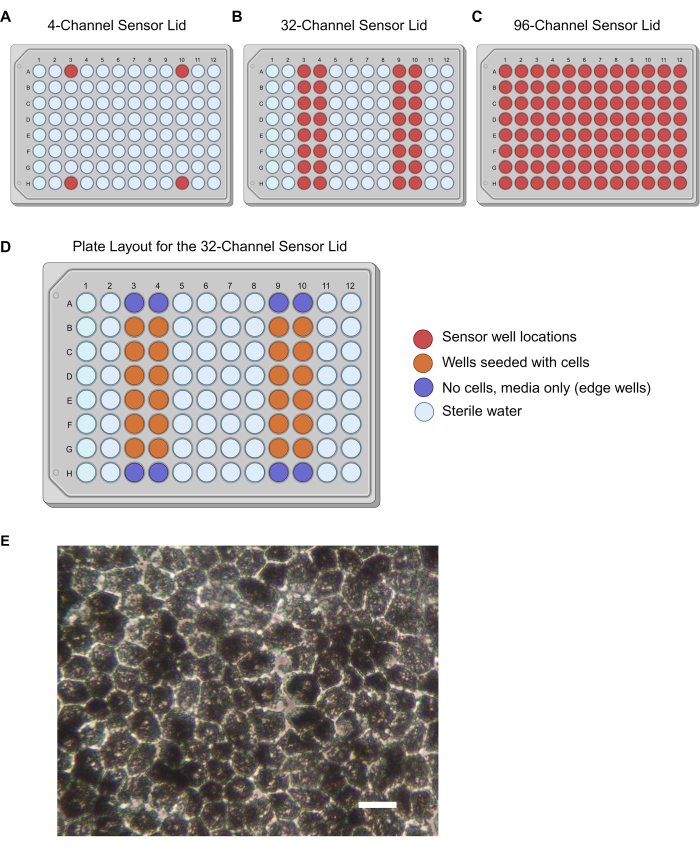
Рисунок 1: Расположение датчиков на различных чувствительных крышках, расположение пластин для 32-канальной чувствительной крышки и морфология RPE. Лунки, соответствующие расположению датчиков в различных чувствительных крышках для ( A) 4-канальной, (B) 32-канальной и (C) 96-канальной крышки. (D) Рекомендуемое расположение пластин для 32-канальной крышки датчика. Из-за краевых эффектов клетки не следует засеивать в краевые лунки, а вместо этого следует помещать среду в эти четыре лунки (фиолетового цвета). Клетки засеваются в оранжевые лунки. Остальные лунки должны быть заполнены стерильной водой (синей) для предотвращения эффектов испарения. (E) Зрелая культура РПЭ с гексагональными, плотно упакованными, пигментированными клетками. Масштабная линейка = 20 мкм. Сокращения: RPE = пигментный эпителий сетчатки. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этой цифры.

Рисунок 2: Настройка «сэндвича» системы Resipher и контроль качества. (A) Чувствительная крышка заменяет стандартную 96-луночную пластинчатую крышку, и ее зонды вставляются в соответствующие лунки. Прибор черного цвета плотно прилегает к чувствительной крышке с помощью магнитов. Изображения в левой части рисунка показывают устройство и чувствительную крышку в их правильной ориентации. Однако на фотографиях с правой стороны устройство и сенсорная крышка были повернуты в стороны, чтобы лучше отображать их нижний профиль. (B) Контроль качества чувствительных крышек и устройства. (i,ii) Одна и та же чувствительная крышка помещается в пустую 96-луночную приемную пластину (только воздушная), а два разных устройства последовательно размещаются на верхней части чувствительной крышки. (i) Первое устройство демонстрирует данные, полученные с восьми зондов с низкой вариабельностьюи показаниями О2 ~200 мкМ, ожидаемыми для атмосферногоО2. (ii) Второе устройство демонстрирует данные от восьми зондов, в которых два зонда считывают аномальные показания (красные точки). (iii) Одно устройство использовалось с пустым 96-луночным планшетом (только с воздухом), но с двумя различными чувствительными крышками, которые были последовательно протестированы. Были построены данные по 16 зондам, демонстрирующие широкую вариабельность для Lid1 (левая сторона) и низкую вариабельность для Lid2 (правая сторона). (C) Графики OCR культур RPE в средах объемом 100 мкл с различным количеством сыворотки контролировали в течение 120 ч. Клетки RPE в свободных сыворотках средах (пурпурных) имеют более низкий уровень OCR, при этом OCR снижается раньше, чем в средах с большим количеством сыворотки. Сокращения: OCR = норма потребления кислорода; RPE = пигментный эпителий сетчатки. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этой цифры.
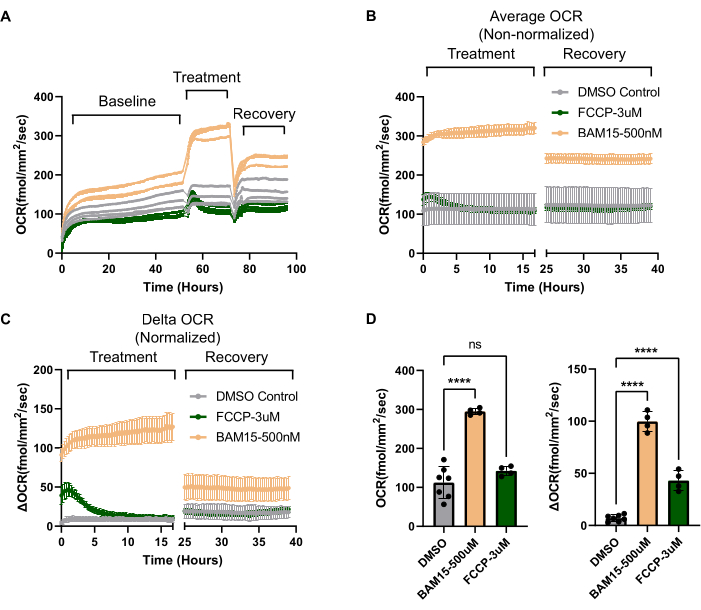
Рисунок 3: Долгосрочные эффекты митохондриальных разъединителей однозначно продемонстрированы с помощью системы OCR. (A) Необработанные данные OCR за определенный период времени (часы), выделяющие начальную OCR (установленную в течение 50 часов), фазу лечения (~20 часов после добавления лекарств) и фазу восстановления (~20 часов после вымывания препарата). РПЭ лечили двумя различными митохондриальными разъединителями, FCCP (3 мкМ, N = 4) или BAM15 (500 нМ, N = 4) и сравнивали с контролем ДМСО (0,6%, N = 7). Каждая трассировка представляет собой одну лунку. (В) Среднее значение OCR для всех скважин для каждого условия в пункте (А), построенного на графике для фаз обработки и восстановления. Без нормализации (ось Y является абсолютным OCR) трудно увидеть величину эффекта лечения с помощью FCCP. (C) Когда каждая кривая OCR вычитается из ее OCR перед обработкой, можно рассчитать дельта-OCR (нанесенную на оси Y). Это позволяет изолировать влияние обработки на OCR, несмотря на изменчивость исходного уровня OCR между скважинами. При использовании Delta OCR эффект FCCP становится очевидным. Также становится очевидным, насколько кратковременным является влияние FCCP на разъединение митохондрий по сравнению с BAM15. Наконец, становится очевидным, что по сравнению с FCCP, воздействие BAM15, даже после того, как препарат смывается, создает новое «адаптированное» состояние устойчиво более высокого OCR. (D) Графики в пунктах (B) и (C) отображаются в виде гистограммы, что позволяет напрямую сравнивать ненормализованные (левый график, из (B)) и нормализованные (Delta OCR, правый график, из (C)) данные. Сокращения: OCR = норма потребления кислорода; RPE = пигментный эпителий сетчатки; FCCP = карбонильцианид--трифторметоксифенилгидразон; ДМСО = диметилсульфоксид. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этой цифры.

Рисунок 4: Использование системы OCR для расчета параметров митохондриальной биоэнергетики. (A) Используя те же малые молекулы, которые являются частью митохондриального стресс-теста анализатора морских коньков, OCR в течение первых 2,5 часов фазы обработки изображается для культур RPE. (Левый график) Ингибитор АТФ-синтазы олигомицин (N = 3), комплексные ингибиторы I и III антимицина А/ротенон (N = 7) или носитель ДМСО 0,4% (N = 4). (Правый график) Митохондриальный разъединитель BAM15 (N = 4) или транспортное средство DMSO 0,6% (N = 4). (В) Среднее значение последних трех временных точек для каждой группы лечения (красные квадраты в пункте (А)). (C) Изображение биоэнергетического профиля, смоделированного с помощью митохондриального стресс-теста с помощью анализатора морских коньков, основанного на данных Ресайфера. Точки данных с цветовой кодировкой на смоделированном графике соответствуют столбчатым диаграммам с цветовой кодировкой на рисунке (B). Все параметры дыхания можно рассчитать с использованием данных Resipher и выбрать малые молекулы. (D) Диаграмма механизма действия реагентов, используемых на рисунке 3 и рисунке 4. Сокращения: OCR = норма потребления кислорода; RPE = пигментный эпителий сетчатки; ДМСО = диметилсульфоксид; АА = антимицин А; Гниль = Ротенон. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этой цифры.

Рисунок 5: Долгосрочный мониторинг СЦР при эпителиально-мезенхимальном переходе, стимулированном TGFβ2. Зрелые первичные культуры РПЭ человека обрабатывали 10 нг/мл TGFβ2 или контролем носителя каждые 2-3 дня. (A) Измерения OCR в режиме реального времени контролировались в течение 3 недель с (B) количественной оценкой дельта OCR с течением времени (день 19-день 6). N = 6-7 лунок на кондицию, непарный t-критерий, * P < 0,05. Сокращения: OCR = норма потребления кислорода; RPE = пигментный эпителий сетчатки; TGFβ2 = трансформирующий фактор роста бета-2. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этой цифры.
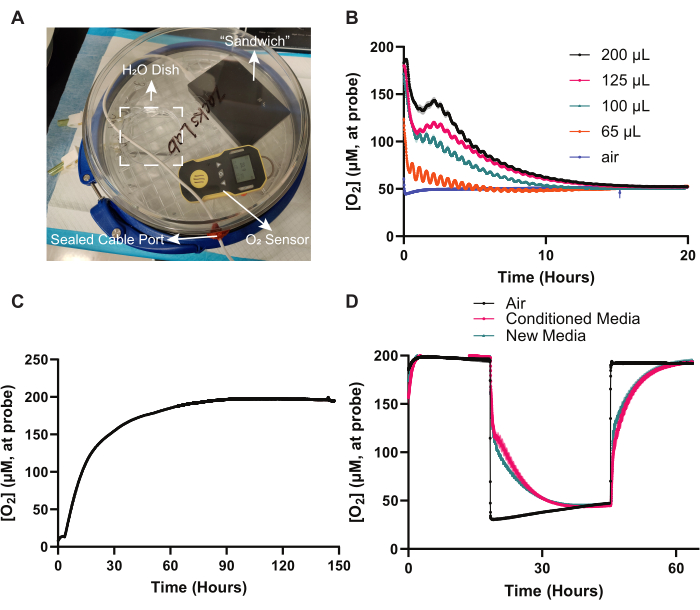
Рисунок 6: Мониторинг митохондриальной реакции RPE на гипоксию. (A) «Сэндвич» системы OCR был собран в камере гипоксии, а USB-кабель был подключен к концентратору через отверстие, просверленное в крышке и запечатанное силиконовой смазкой или шпаклевкой. Также в камере гипоксии находится чашка Петри со стерильной водой для поддержания влажности и портативныйдатчик О2. Вся система была оставлена в инкубаторе для клеточных культур после того, как атмосфера камеры гипоксии была заменена на более низкую концентрациюO2. (B) Средам требуется время, чтобы уравновеситься до концентраций O2 над границей раздела воздух-жидкость. Различные объемы среды РПЭ, уравновешенные атмосфернымО2, добавляли в пустые колодцы (без ячеек) 96-луночной пластины. Затем камеру гипоксии регулировали до 5% (50 мкМ)О2. Концентрацию О2 в среде каждой скважины контролировали в течение 20 ч. Скважины с большими объемами среды уравновешиваются до 5%O2 медленнее, чем с меньшими объемами среды. N = 8. (C) Система может быть использована для обнаружения утечек воздуха в камере гипоксии. Камера гипоксии была настроена на 1%O2, а чувствительная крышка была размещена над пустыми лунками (только воздух). Входные и выходные отверстия камеры гипоксии были оставлены открытыми, а атмосфера камеры гипоксии восстановлена до атмосферного уровняО2 в течение ~90 ч. (D) Новые среды и надосадочная жидкость («кондиционированные среды») имеют аналогичную растворимостьО2. Это устраняет опасения по поводу дифференциальной растворимости О2 в среде, поскольку ее состав меняется в культуре, что может повлиять на согласованность показаний OCR с течением времени. Тот же объем (100 мкл) свежих сред («новые среды») или сред, инкубированных в течение 48 ч над клетками («кондиционированные среды»), добавляли в лунки планшета без клеток. «Сэндвич» системы OCR сначала подвергался воздействию атмосферных уровнейО2, затем переносился в камеру гипоксии (3-5% О2 или 30-50 мкМ), а затем снова передавался на атмосферные уровниО2. Уровни О2 в воздухе контролировались с помощью зондов в пустых (только воздушных) скважинах. Изменение концентрации О2 при каждом переходе между двумя типами сред идентично, что свидетельствует о том, что растворимостьО2 между двумя типами сред одинакова. N = 6. Сокращения: OCR = норма потребления кислорода; RPE = пигментный эпителий сетчатки. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этой цифры.

Рисунок 7: КонцентрацииО2 на монослое РПЭ определены с помощью онлайн-калькулятора. Скриншот онлайн-калькулятора (https://observablehq.com/@lucid/oxygen-diffusion-and-flux-in-cell-culture). Подробнее о том, как можно использовать калькулятор для определения количества кислорода, доступного в монослое RPE, см. текст. Сокращения: RPE = пигментный эпителий сетчатки. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этой цифры.

Рисунок 8: Эксперименты по устранению неполадок: испарение, нездоровые клетки и чрезмерные колебания OCR. (А) Чрезмерное испарение. При возникновении неравномерности в трассировке OCR для скважины начните с перехода на вкладку «Среда » в онлайн-интерфейсе системы (слева). Здесь можно контролировать влажность, температуру и атмосферное давление. Открытие инкубатора для клеточных культур временно нарушит влажность (см. 2 ч и 28 ч на трассе). Однако, начиная с 30 часов, след влажности со временем постоянно снижается, даже без открытия дверцы. Это говорит о том, что лоток для воды в инкубаторе для клеточных культур сухой. Любое нарушение влажности или температуры приведет к изменению показаний OCR. (Справа) Низкая влажность усугубляет испарение. На рисунке справа лунка, подвергающаяся быстрому испарению, демонстрирует постепенно уменьшающиеся различия в концентрацииО2 между верхней и нижней частями хода зонда датчика (от 1 мм до 1,5 мм над монослоем РПЭ). Это говорит о том, что наконечник зонда находится близко к границе раздела воздух-среда. Когда показания концентрации О2 «выравниваются» на значении, близком кизвестным концентрациям О2 в атмосфере (~200 мкМ), это говорит о том, что наконечник зонда полностью находится за пределами колонны фильтрующего материала и отбирает только воздух. Показания OCR больше не действительны, и такие скважины нуждаются в немедленной замене среды. (Б) Нездоровые клетки. Построение графика O2 и кривой OCR каждой отдельной лунки позволяет идентифицировать выбросную яму, обычно вызванную нездоровыми клетками. Здесь колодец, обозначенный синим следом, вреден для здоровья. N = 6 скважин. (C) Открытие дверцы инкубатора и смена среды. Изменения атмосферной влажности, температуры, давления иCO2 во время открытия дверцы инкубатора, наряду с любыми изменениями среды, временно нарушают равновесный градиентO2 , установленный в скважине, вызывая аберрантные всплескиO2 и OCR на ранних и поздних этапах этих графиков. N = 6 скважин. Сокращения: OCR = норма потребления кислорода. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этой цифры.

Рисунок 9: Эксперименты по устранению неполадок: объем носителя и нормализация. (A) Объем носителя ограничивает максимально возможное OCR. Поскольку большие объемы фильтрующего материала приводят к более низкой доступностиO2 на монослое RPE, каждый объем фильтрующего материала в одной лунке 96-луночного планшета имеет максимальный OCR. Выше этого OCRO2 на уровне клеток составляет по существу 0% (бескислородный). Таким образом, если вы близки к максимальному теоретическому OCR для данного объема медиа, то имеет смысл уменьшить объем медиа, чтобы в ходе эксперимента не наблюдалось «потолочного эффекта» OCR. Показано максимальное теоретическое распознавание символов, достижимое при каждом объеме среды (в стандартном 96-луночном планшете). Все значения были рассчитаны с помощью онлайн-калькулятора, рассмотренного в разделе 4 протокола и показанного на рисунке 7. (B) Надлежащая нормализация. Для экспериментов, в которых интересует влияние одной переменной на способность другой переменной индуцировать митохондриальный метаболизм, идеально подходит экспериментальная установка Delta-Delta OCR . В установке на рисунке (В) проверяется способность двух различных сред стимулировать β-окисление пальмитата. Если происходит β-окисление жирной кислоты, должно наблюдаться значительное увеличение митохондриального OCR. Некоторые среды могут способствовать окислению пальмитата β лучше, чем другие. В левой части графика OCR две разные среды (Media 1 и Media 2) введены в параллельные лунки культур RPE. Получен исходный OCR. Далее пальмитат добавляется в половину лунок, содержащих каждый тип среды. При этом создаются четыре условия: Медиа 1 - пальмитат, Медиа 1 + пальмитат, Медиа 2 - пальмитат, Медиа 2 + пальмитат. Реакция OCR на каждое из этих новых условий среды записывается. Затем значения OCR после экспериментальной обработки (среднее значение красного пунктирного поля в фазе лечения) вычитаются из базовых значений OCR до обработки (среднее значение красного пунктирного поля в фазе базового уровня), создавая гистограммы Delta OCR (внизу слева). Наконец, способность среды 1 и среды 2 стимулировать β-окисление определяется с помощью гистограммы OCR Delta-Delta (внизу справа). Здесь рассчитывается разница между "Delta OCR среды 1 + пальмитат" и "Delta OCR среды 1 - пальмитат" и сравнивается с разницей между "Delta OCR среды 2 + пальмитат" и "Delta OCR среды 2 - пальмитат." Этот тип экспериментальной установки и нормализации изолирует эффекты среды 1 в сравнении со средой 2 на стимулирование окисления β; Общая структура этой нормализации применима к любому эксперименту, в котором измеряется влияние одной переменной на способность другой переменной изменять OCR. Сокращения: OCR = норма потребления кислорода; RPE = пигментный эпителий сетчатки. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этой цифры.
Таблица 1: Рецептура питательных сред для клеточных культур RPE. Пожалуйста, нажмите здесь, чтобы скачать эту таблицу.
Обсуждение
Митохондриальный метаболизм РПЭ играет решающую роль в патогенезе распространенных слепотных заболеваний сетчатки, включая ВМД и ПВР. Моделирование митохондриального метаболизма RPE in vitro позволяет изолировать его метаболическое состояние от метаболизма окружающих тканей, а также подвергать ткань различным повреждениям, имитирующим заболевание, контролируемым образом. Такое in vitro моделирование митохондриального метаболизма РПЭ было облегчено появлением высокоточных первичных культур человека и культур iPSC-RPE, которые достигают надлежащего состояния дифференцировки и полярности, необходимых для близкого приближения к RPE in vivo. В то время как мониторинг скорости потребления кислорода (OCR) в таких культурах является идеальным методом мониторинга митохондриального метаболизма, установка для мониторинга OCR часто исключает выращивание культур в условиях, необходимых для высокополяризованных и полностью дифференцированных RPE. В данной работе мы описываем Resipher как новую систему для мониторинга митохондриального метаболизма RPE посредством долгосрочной оценки OCR в режиме реального времени в высокодифференцированных и поляризованных культурах RPE.
Для мониторинга OCR в RPE использовались и другие методы. Анализатор Seahorse XF предназначен для мониторинга OCR в течение коротких периодов времени с острыми манипуляциями с функцией митохондрий. Однако для анализа морских коньков клетки должны быть выращены на специальных планшетах, которые не способствуют поддержанию высокой полярности и дифференцировки РПЭ21. Калтон, Воллрат и их коллеги адаптировали Seahorse для оценки высокодифференцированных культур RPE, выращенных на микропористых носителях, разрезав микропористую мембрану на кусочки и поместив их в планшет Seahorse, но этот метод по-прежнему работает только для краткосрочного мониторинга культур в конечных точках, поскольку клетки не имеют доступа кCO2 Во время анализа анализ может быть проведен только в нестерильных условиях, и разрезание микропористой основы вызовет смерть и дисфункцию краевой части микропористой основы с течением времени. Barofuse представляет собой безнасосную перфузионную систему, в которой полоски СИЗД, выращенные на микропористых носителях, могут быть загружены в перфузионную систему, что позволяет контролировать РПС в режиме реального времени23. Подобно модифицированной установке для Seahorse Калтона, Воллрата и коллег, основными ограничениями оценки РПЭ с помощью Barofuse являются необходимость разрезания микропористых носителей и краткосрочный характер анализа. Оксиграф также предназначен для быстрых кинетических изменений в OCR в ответ на метаболические манипуляции24. Он не использовался для культур РПЭ и будет иметь те же ограничения для оценки сильно поляризованных и дифференцированных культур РПЭ, что и морской конек и барофуз.
В отличие от этих других методов, описанная здесь система OCR позволяет проводить мониторинг OCR во время культивирования RPE в стандартных планшетах/субстратах для клеточных культур в стандартных условиях со стандартными средами RPE в стандартном инкубаторе CO2 для клеточных культур, что обеспечивает простое и удобное зондирование высокодифференцированных и поляризованных культур RPE. В дополнение к получению данных об изменениях OCR в режиме реального времени системой, те же самые клетки могут быть использованы для дополнительных анализов в конце периода мониторинга OCR. Это позволяет проводить очень гибкие эксперименты, в которых влияние вмешательства на ОКР многократно проверяется в течение нескольких недель (например, индукция ЭМП РПЭ на рисунке 5) или где можно проверить долгосрочное восстановление после вмешательства (например, восстановление после разъединения митохондрий на рисунке 3), или где можно контролировать каскадные метаболические изменения в ответ на первоначальное вмешательство (например, влияние сыворотки на ОРС после истощения питательных веществ в среде на рисунке 2). Система OCR в данной статье особенно удобна для измерения OCR в сильно поляризованных и дифференцированных культурах RPE. Такие культуры являются функционально постмитотическими, с плотной упаковкой и сильной пигментацией. Это означает, что каждая лунка содержит почти идентичные номераклеток 9, тем самым устраняя необходимость нормализовать OCR до номера клеток для большинства экспериментов. Даже когда требуется нормализация по количеству клеток, сильная пигментация RPE и хорошо отграниченные клеточные границы позволяют проводить нормализацию с помощью неинвазивного простого подсчета клеток на основе визуализации в светлом поле. Для экспериментов, связанных с недифференцированным РПЭ и пролиферацией РПЭ, таких как эксперименты с ЭМП на рисунке 5, нормализация OCR на лунку к количеству клеток становится необходимой, чтобы знать, что такое OCR «на клетку».
За пределами сетчатки система была использована для изучения клеточного дыхания и метаболической активности в различных типах клеток, включая островковые клетки поджелудочной железы25, скелетные мышцы26, рак яичников27, кардиомиоциты28 и даже целые организмы, такие как C. elegans29. Долгосрочный мониторинг OCR в режиме реального времени с использованием описанной здесь системы OCR позволил получить ключевые сведения о биоэнергетических сдвигах и митохондриальной дисфункции в этих разнообразных моделях заболеваний.
Система Resipher имеет ограничения. Метод определения OCR принципиально отличается от метода анализа морских коньков, BaroFuse или оксиграфа. Для вычисления OCR требуется установить градиент O2 , а для его создания может потребоваться несколько часов. Таким образом, быстрые кинетические эксперименты, возможные в других системах, в этой системе невозможны. Кроме того, в отличие от других систем, Resipher не имеет портов для впрыска для быстрой доставки малых молекул или сбора метаболитов. Вместо этого чувствительная крышка должна быть снята в колпаке для клеточных культур, при этом в нее должны быть введены препараты или заменена среда, а также вручную собраны метаболиты для анализа.
Для постановки эксперимента и устранения неполадок с использованием системы OCR, описанной в этом документе, рекомендуется выполнить следующие действия. Во-первых, свести к минимуму испарение. Напомним, что градиент O2 в столбце среды над монослоем RPE сильно зависит от высоты столбца9, и система рассчитывает OCR на основе градиента O2 . Таким образом, если во время эксперимента произойдет заметное понижение столбца среды из-за испарения, градиент О2 изменится, что повлияет на показания OCR. Поддержание поддона для воды для инкубатора заполненным имеет решающее значение, но также рекомендуется помещать воду во все неиспользуемые колодцы 96-луночной пластины. Кроме того, лунки на краю пластины имеют более высокую скорость испарения, поэтому эти лунки остаются пустыми от ячеек в типичных экспериментах, представленных выше. Датчик влажности в системе OCR может помочь контролировать влажность в инкубаторе. На рисунке 8А падение влажности во время эксперимента говорит о том, что поддон для воды в инкубаторе пуст. По мере того, как испарение в скважине ускоряется,показания концентрации О2 в скважине будут подниматься выше и в конечном итоге «выровняются»при концентрации О2 в атмосфере (~200 мкМ) (рис. 8А).
Во-вторых, убедитесь, что «сэндвич» системы OCR собран правильно. Металлические места контакта на нижней части устройства и в верхней части чувствительной крышки должны быть чистыми, без мусора, препятствующего полноценному контакту. Устройство и чувствительная крышка должны быть прикреплены полностью заподлицо и равномерно выровнены на 96-луночной пластине без какого-либо наклона. USB-кабель, соединяющий Устройство с Хабом, не должен находиться под напряжением, что может привести к крутящему моменту «бутерброда» и ограничению нормального движения Устройства.
В-третьих, убедитесь, что устройство и датчики крышки откалиброваны. На рисунке 2B показано, как быстро проверить правильность работы датчика в начале каждого эксперимента. В-четвертых, убедитесь, что конкретная скважина не демонстрирует выбросы OCR до начала экспериментальной манипуляции. После проверки работоспособности датчиков определение базовых значений OCR для всех лунок с ячейками может помочь определить, содержат ли определенные лунки нездоровые клетки. На рисунке 8B показано несколько скважин, проходящих базовую оценку OCR, в которых лунка синего цвета ясно демонстрирует более низкую OCR (и, следовательно, высокую концентрациюO2 ). Эта скважина является выбросом и должна быть исключена из экспериментальных манипуляций.
В-пятых, сведите к минимуму манипуляции с окружающей средой во время активных показаний OCR. ГрадиентО2 очень чувствителен к изменениям температуры, влажности, уровняCO2 в инкубаторе и атмосферного давления. Открытие дверцы инкубатора существенно влияет на эти факторы, вызывая временные сбои в показаниях OCR до тех пор, пока градиент O2 в колонке фильтрующего материала не вернется в равновесие (рис. 8C). Параметры, влияющие на OCR, можно отслеживать в онлайн-интерфейсе системы на вкладке «Среда» (Рисунок 8A).
В-шестых, определите оптимальный объем среды для проведения эксперимента. В то время как недостаточный объем среды может создавать артефакты из-за чрезмерного испарения (см. первую меру по устранению неполадок выше) или преждевременного истощения питательных веществ в среде, чрезмерный объем среды ограничивает доступностьO2 для монослоя RPE, вызывая гипоксию9. На рисунке 7 представлен скриншот доступного онлайн-калькулятора для определения влияния объема среды на концентрациюО2 на монослое РПЭ. Максимально возможное OCR для данного объема носителя показано на рисунке 9A. Если скорость OCR для данного эксперимента с использованием заданного объема приближается к скорости, показанной на рисунке 9A, то концентрацияO2 в монослое RPE приближается к аноксии (0%), и требуется меньший объем среды. В целом, эксперименты с митохондриально интенсивными процессами в культуре РПЭ должны иметь объемы среды не более 75 мкл на 96-лунку.
В-седьмых, выполните соответствующую нормализацию для выделения эффектов экспериментального вмешательства на OCR. Поскольку разные скважины могут иметь разный исходный уровень OCR, крайне важно получить исходные показания OCR для каждой скважины до начала экспериментального вмешательства. Вычтите исходный уровень OCR из OCR после экспериментального вмешательства, чтобы получить «дельта-OCR», который демонстрирует влияние экспериментального вмешательства на OCR. Метод получения "Delta OCR" показан на рисунках 3 и 9В. Если вас интересует влияние одного экспериментального вмешательства на способность другого экспериментального вмешательства вызывать OCR, необходим дополнительный этап нормализации — «Дельта-Дельта OCR». Такой пример проиллюстрирован на рисунке 9B, где способность пальмитата (одно экспериментальное вмешательство) индуцировать повышенное OCR (через индукцию β-окисления) зависит от типа среды для культуры RPE (второе экспериментальное вмешательство).
Наконец, сведите к минимуму риск заражения. Система контролирует OCR путем введения датчика кислорода в среду над ячейками. Это повышает риск заражения. Неожиданные падения OCR во время эксперимента или неожиданно низкий OCR в начале эксперимента могут быть признаками инфекции. Планшеты необходимо активно контролировать на предмет инфекции под микроскопом клеточной культуры. Перекрестное загрязнение между 96-луночными планшетами может произойти при повторном использовании чувствительной крышки. Чтобы свести к минимуму такое перекрестное загрязнение, следует погрузить всю крышку в 70% этанол на 20 минут для обеззараживания после завершения эксперимента, прежде чем повторно использовать чувствительную крышку в новом эксперименте (см. раздел протокола 1.2.15).
В заключение представлен протокол для долгосрочного мониторинга метаболизма митохондрий в культурах RPE с высокой точностью в режиме реального времени путем оценки OCR с использованием новой системы под названием Resipher. Он может быть использован для многочисленных применений на высокополяризованных и дифференцированных культурах РПЭ, в частности, для исследования физиологических метаболических свойств изолированного РПЭ, а также изменения метаболизма РПЭ в моделях заболеваний сетчатки in vitro , включая ВМД и ПВР.
Раскрытие информации
Ричард А. Брайан и Кин Ло являются сотрудниками компании Lucid Scientific, которая производит систему Resifher.
Благодарности
Мы благодарим докторов Дэниела Хасса и Джима Херли за идеютестирования растворимости О2 в новых и кондиционированных средах в качестве контроля. Мы благодарим доктора Магали Сен-Женье за редакторский вклад в рукопись. Мы благодарим Скотта Салая (Scott Szalay) из Instrument and Electronic Services Core, Kellogg Eye Center, за дооснащение камеры гипоксии с помощью USB-кабеля Resifer. Никакие федеральные средства не использовались для исследований HFT. Ядро электронных услуг поддерживается EY007003 P30 от Национального института глаза. Эта работа поддерживается неограниченным ведомственным грантом от Исследовательской организации по предотвращению слепоты (RPB). J.M.L.M. поддерживается Инициативой Джеймса Гросфельда по сухой возрастной макулярной дегенерации, Фондом Э. Матильды Зиглер для слепых, грантом глазного банка Eversight, грантом K08EY033420 от Национального института глаза, а также поддержкой Ди и Диксона Браунов, а также Фонда Дэвида и Лизы Дрюс «Открывая надежду». D.Y.S. поддерживается программой UNSW Scientia. L.A.K. поддерживается премией Iraty Award, Monte J. Wallace, Michel Plantevin, грантом R01EY027739 от Национального института глаза и Министерством обороны США по приобретению медицинских исследований VR220059.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| 0,25% Трипсин-ЭДТА | Gibco | #25-200-056 | |
| 3,3',5-трийодо-L-тиронин натриевая соль | Sigma | T5516 | |
| 32-канальный резифер крышка | Lucid Scientific | NS32-101A для Falcon | |
| Antimycin A из streptomyces sp. | Sigma | A8674-25MG | Ингибитор комплекса III электронно-транспортной цепи |
| BAM15 | Sigma | SML1760-5MG | Разобщающий агент для увеличения митохондриального дыхания |
| DMSO, клеточная культура класса | Sigma-aldrich | D4540-100ML | Средство для восстановления митохондриальных препаратов |
| Субстраты покрытия внеклеточного матрикса: Synthemax II-SC | Corning | #3535 | Внеклеточный матрикс для hfRPE |
| Субстраты покрытия внеклеточного матрикса: Vitronectin | Gibco | A14700 | Внеклеточный матрикс для iPSC-RPE |
| FCCP | Sigma | C2920-10MG | Развязывающий агент для увеличения митохондриального дыхания |
| Фетальная бычья сыворотка (Bio-Techne S11550H) | Bio-Techne | S11550H | |
| Гидрокортизон-циклодекстрин | Sigma | H0396 | |
| Камера гипоксии | Embrient Inc. | MIC-101 | |
| N1 Медиа Добавка | Sigma | N6530 | |
| Раствор заменимых аминокислот | Gibco | 11140050 | |
| датчик O2 | Технология Sensit или криминалистические детекторы | P100 или FD-90A-O2 | |
| Пенициллин-стрептомицин | Gibco | 15140-122 | |
| Рекомбинантный человеческий TGFβ 2 | Peprotech | 100-35B | Трансформирующий фактор роста бета-2 для индуцирования эпителиально-мезенхимального перехода |
| Rotenone | Sigma | R8875-1G | Ингибитор комплекса I электронно-транспортной цепи |
| Системосовместимая пластина | Corning | #353072 | |
| Taurine | Sigma | T8691 | |
| α MEM (Альфа-модификация Eagle's Media) | Corning | 15-012-CV |
Ссылки
- Shu, D. Y., Butcher, E., Saint-Geniez, M. EMT and EndMT: emerging roles in age-related macular degeneration. Int J Mol Sci. 21 (12), 4271(2020).
- Shu, D. Y., Lovicu, F. J. Myofibroblast transdifferentiation: the dark force in ocular wound healing and fibrosis. Prog Retin Eye Res. 60, 44-65 (2017).
- Hurley, J. B. Retina metabolism and metabolism in the pigmented epithelium: a busy intersection. Annu Rev Vis Sci. 7, 665-692 (2021).
- Wu, W., et al. Deficient RPE mitochondria energetics leads to subretinal fibrosis in age-related macular degeneration. Invest Ophthalmol Vis Sci. 64 (8), 2420(2023).
- Hansman, D. S., et al. Metabolic reprogramming of the retinal pigment epithelium by cytokines associated with age-related macular degeneration. Biosci Rep. 44 (4), BSR20231904BSR20231904(2024).
- Li, K. X., et al. Modulation of pyruvate kinase M2 activity as a therapy in a primary RPE cell culture model of proliferative vitreoretinopathy. Invest Ophthalmol Vis Sci. 62 (8), 2213(2021).
- Gupta, S., et al. Progress in stem cells-based replacement therapy for retinal pigment epithelium: in vitro differentiation to in vivo delivery. Stem Cells Transl Med. 12 (8), 536-552 (2023).
- Wilson, D. F., et al. Oxygen distribution and vascular injury in the mouse eye measured by phosphorescence-lifetime imaging. Appl Opt. 44 (25), 5239-5248 (2005).
- Hass, D. T., et al. Medium depth influences O2 availability and metabolism in human RPE cultures. Invest Ophthalmol Vis Sci. 64 (14), 4(2023).
- Shu, D. Y., Butcher, E. R., Saint-Geniez, M. Suppression of PGC-1α drives metabolic dysfunction in TGFβ2-Induced EMT of retinal pigment epithelial cells. Int J Mol Sci. 22 (9), 4701(2021).
- Shu, D. Y., et al. Dimethyl fumarate blocks tumor necrosis factor-alpha-driven inflammation and metabolic rewiring in the retinal pigment epithelium. Front Mol Neurosci. 15, 896786(2022).
- Ng, P. Q., Saint-Geniez, M., Kim, L. A., Shu, D. Y. Divergent metabolomic signatures of TGFβ2 and TNFα in the induction of retinal epithelial-mesenchymal transition. Metabolites. 13 (2), 213(2023).
- Kar, D., et al. Choriocapillaris impairment is associated with delayed rod-mediated dark adaptation in age-related macular degeneration. Invest Ophthalmol Vis Sci. 64 (12), 41(2023).
- Curcio, C. A., Kar, D., Owsley, C., Sloan, K. R., Ach, T. Age-related macular degeneration, a mathematically tractable disease. Invest Ophthalmol Vis Sci. 65 (3), 4(2024).
- Maminishkis, A., et al. Confluent monolayers of cultured human fetal retinal pigment epithelium exhibit morphology and physiology of native tissue. Invest Ophthalmol Vis Sci. 47 (8), 3612-3624 (2006).
- Maminishkis, A., Miller, S. S. Experimental models for study of retinal pigment epithelial physiology and pathophysiology. J Vis Exp: JoVE. (45), e2032(2010).
- Zhang, Q., et al. A platform for assessing outer segment fate in primary human fetal RPE cultures. Exp Eye Res. 178, 212-222 (2019).
- Sharma, R., Bose, D., Montford, J., Ortolan, D., Bharti, K. Triphasic developmentally guided protocol to generate retinal pigment epithelium from induced pluripotent stem cells. STAR Protoc. 3 (3), 101582(2022).
- Marchetti, P., Fovez, Q., Germain, N., Khamari, R., Kluza, J. Mitochondrial spare respiratory capacity: Mechanisms, regulation, and significance in non-transformed and cancer cells. FASEB J. 34 (10), 13106-13124 (2020).
- Rosenfeld, P. J., Trivizki, O., Gregori, G., Wang, R. K. An update on the hemodynamic model of age-related macular degeneration. Am J Ophthalmol. 235, 291-299 (2022).
- Fitch, T. C., et al. Real-time analysis of bioenergetics in primary human retinal pigment epithelial cells using high-resolution respirometry. J Vis Exp: JoVE. (192), (2023).
- Calton, M. A., Beaulieu, M. O., Benchorin, G., Vollrath, D. Method for measuring extracellular flux from intact polarized epithelial monolayers. Mol Vis. 24, 425-433 (2018).
- Grumbine, M. K., et al. Maintaining and assessing various tissue and cell types of the eye using a novel pumpless fluidics system. J Vis Exp: JoVE. (197), (2023).
- Mu, C., Shearer, J. Protocol for measuring respiratory function of mitochondria in frozen colon tissue from rats. STAR Protoc. 4 (4), 102560(2023).
- Rocha, D. S., Manucci, A. C., Bruni-Cardoso, A., Kowaltowski, A. J., Vilas-Boas, E. A. A practical and robust method to evaluate metabolic fluxes in primary pancreatic islets. Mol Metab. 83, 101922(2024).
- Kanaan, M. N., et al. Cystine/glutamate antiporter xCT controls skeletal muscle glutathione redox, bioenergetics and differentiation. Redox Biol. 73, 103213(2024).
- da Veiga Moreira, J., et al. Methylene blue metabolic therapy restrains in vivo ovarian tumor growth. Cancers. 16 (2), 355(2024).
- McNally, L. A., Altamimi, T. R., Fulghum, K., Hill, B. G. Considerations for using isolated cell systems to understand cardiac metabolism and biology. J Mol Cell Cardiol. 153, 26-41 (2021).
- Misare, K. R., et al. The consequences of tetraploidy on Caenorhabditis elegans physiology and sensitivity to chemotherapeutics. Sci Rep. 13 (1), 18125(2023).
Перепечатки и разрешения
