Здесь мы представляем протокол трансплантации клеток с высоким пространственным и временным разрешением эмбрионам и личинкам рыбок данио на любой стадии между как минимум 1 и 7 днями после оплодотворения.
Методическая статья
Трансплантация клеток высокого разрешения у эмбрионов и личинок рыбок данио рерио
В этой статье
Краткое содержание
Аннотация
Развитие и регенерация происходят в процессе генетически закодированных пространственно-временных динамических клеточных взаимодействий. Использование трансплантации клеток между животными для отслеживания судьбы клеток и выявления несоответствий в генетических, пространственных или временных свойствах донорских и родительских клеток является мощным средством изучения природы этих взаимодействий. Такие организмы, как цыплята и амфибии, внесли решающий вклад в наше понимание развития и регенерации, соответственно, в значительной степени из-за их податливости к трансплантации. Однако мощность этих моделей была ограничена низкой генетической управляемостью. Аналогичным образом, основные генетические модельные организмы имеют меньшую податливость к трансплантации.
Данио рерио является основной генетической моделью развития и регенерации, и хотя трансплантация клеток распространена у рыбок данио, она, как правило, ограничена переносом недифференцированных клеток на ранних стадиях развития бластулы и гаструлы. В этой статье мы представляем простой и надежный метод, который продлевает окно трансплантации данио-рерио до любой эмбриональной или личиночной стадии между как минимум 1 и 7 днями после оплодотворения. Точность этого подхода позволяет проводить трансплантацию всего одной клетки с почти идеальным пространственным и временным разрешением как у доноров, так и у животных-хозяев. Несмотря на то, что мы выделяем здесь трансплантацию эмбриональных и личиночных нейронов для изучения развития и регенерации нервов, соответственно, этот подход применим к широкому спектру типов клеток-предшественников и дифференцированных клеток и исследовательских вопросов.
Введение
Трансплантация клеток имеет долгую и легендарную историю как основополагающий метод в биологии развития. На рубеже20-го века подходы с использованием физических манипуляций для нарушения процесса развития, включая трансплантацию, превратили эмбриологию из наблюдательной науки вэкспериментальную. В одном из знаковых экспериментов Ганс Шпеман и Хильде Мангольд эктопически пересадили дорсальную бластопорную губу эмбриона саламандры на противоположную сторону эмбриона-хозяина, заставив близлежащую ткань сформировать вторичнуюось тела. Этот эксперимент показал, что клетки могут побуждать другие клетки принимать определенную судьбу, и впоследствии трансплантация стала мощным методом для изучения критических вопросов в биологии развития, касающихся компетентности и определения судьбы клетки, клеточной линии, индуктивной способности, пластичности и активности стволовых клеток.
Более поздние научные достижения расширили возможности трансплантационного подхода. В 1969 году открытие Николь Ле Дуарен о том, что ядрышковое окрашивание может различать виды происхождения у химер перепелов и птенцов, позволило отслеживать трансплантированные клетки и их потомство. Эта концепция была позже усилена появлением трансгенных флуоресцентных маркеров ипередовых методов визуализации5 и была использована для отслеживания судьбы клеток 6,7, идентификации стволовых клеток и их активности 8,9 и отслеживания движений клеток во время развития мозга10. Кроме того, развитие молекулярной генетики облегчило трансплантацию между хозяевами и донорами различных генотипов, способствуя точному препарированию автономных и неавтономныхфункций факторов развития.
Трансплантация также внесла важный вклад в изучение регенерации, особенно у организмов с сильными регенеративными способностями, таких как планарии и аксолотли, прояснив клеточную идентичность и взаимодействия, которые регулируют рост и структуру регенерирующих тканей. Исследования трансплантации выявили принципы потенции12, пространственного паттернинга13,14, вклада конкретных тканей15,16 и роли клеточной памяти12,17 в регенерации.
Рыбки данио являются ведущей моделью позвоночных для изучения развития и регенерации, в том числе в нервной системе, благодаря их консервативным генетическим программам, высокой генетической управляемости, внешнему оплодотворению, большому размеру кладки и оптической прозрачности 18,19,20. Рыбки данио также хорошо поддаются трансплантации на ранних стадиях развития. Наиболее распространенным подходом является трансплантация клеток от меченого донорского эмбриона к эмбриону-хозяину на стадии бластулы или гаструлы для получения мозаичных животных. Клетки, трансплантированные на стадии бластулы, будут рассеиваться и рассеиваться в начале эпиболии, создавая мозаику меченых клеток и тканей по всему эмбриону21. Трансплантаты гаструл позволяют в некоторой степени нацеливаться на трансплантированные клетки в соответствии с приблизительной картой судьбы по мере формирования щита и определения осей A-P и D-V21. Полученные мозаики оказались полезными для определения того, действуют ли гены в клетке автономно, проверки приверженности клеток и картирования движения тканей и миграции клеток на протяжении всего развития 5,11. Мозаичные рыбки данио рерио могут быть получены несколькими способами, включая электропорацию22, рекомбинацию23, а также трансгенез F024 и мутагенез25, но трансплантация обеспечивает наибольшую манипулируемость и точность в пространстве, времени, количестве и типах клеток. Современное состояние трансплантации рыбок данио в значительной степени ограничено клетками-предшественниками на ранних стадиях, за некоторыми исключениями, включая трансплантацию спинальных моторных нейронов26,27, ганглиозных клеток сетчатки28,29 и клеток нервного гребня в первые 10-30 ч после оплодотворения (ВПФ)30, а также гемопоэтических и опухолевых клеток у взрослых рыбок данио-рерио 5,31. Распространение методов трансплантации на широкий диапазон возрастов, стадий дифференцировки и типов клеток значительно усилит возможности этого подхода для понимания процессов развития и регенерации.
В этой статье мы демонстрируем гибкую и надежную технику трансплантации клеток с высоким разрешением, эффективную для эмбрионов и личинок рыбок данио-рерио в течение как минимум 7 дней после оплодотворения. Трансгенные рыбы-хозяева и доноры, экспрессирующие флуоресцентные белки в тканях-мишенях, могут быть использованы для извлечения одиночных клеток и их трансплантации с почти идеальным пространственным и временным разрешением. Оптическая прозрачность эмбрионов и личинок рыбок данио позволяет визуализировать трансплантированные клетки вживую по мере развития или регенерации животного-хозяина. Этот подход ранее использовался для изучения того, как пространственно-временная сигнальная динамика влияет на идентичность нейронов и направление аксонов у эмбриона32, а также для изучения логики, с помощью которой внутренние и внешние факторы способствуют управлению аксонами во время регенерации у личиночных рыб33. Несмотря на то, что мы сосредоточились здесь на трансплантации дифференцированных нейронов, наш метод широко применим как к недифференцированным, так и к дифференцированным типам клеток на многих стадиях и тканях для решения вопросов развития и регенерации.
Протокол
Все аспекты этой процедуры, относящиеся к работе с живыми рыбками данио, были одобрены Комитетом по уходу за животными и их использованию (IACUC) Университета Миннесоты и выполняются в соответствии с рекомендациями IACUC.
1. Однократная первичная настройка трансплантационного аппарата (Рисунок 1)
- Соберите микроскоп для трансплантации в соответствии с инструкциями производителя.
ПРИМЕЧАНИЕ: В этом протоколе используется вертикальный флуоресцентный микроскоп с 40-кратным объективом для погружения в воду. - Соберите грубые и тонкие микроманипуляторы и установите их с правой стороны микроскопа в соответствии с инструкциями производителя.
ПРИМЕЧАНИЕ: Поскольку важно, чтобы предметный столик не двигался в размере Z относительно иглы, мы используем микроскоп с неподвижным предметным столиком с микроманипуляторами, установленными на основании микроскопа. Если микроскоп с неподвижным столиком недоступен, микроманипулятор можно установить на предметный столик. - Прикрепите держатель микроэлектрода к рукоятке электрода и установите на микроманипулятор.
- Подсоедините одну сторону трехстороннего запорного крана к насосу для микрошприцев. Подсоедините другую сторону запорного крана к полиэтиленовой трубке с помощью хроматографического адаптера.
- Подсоедините противоположную сторону полиэтиленовой трубки к держателю микроэлектродов с помощью хроматографического адаптера.
- Наполните шприц емкостью 10 мл легким минеральным маслом и установите его на верхнюю сторону запорного крана.
- Наполните микрошприцевой насос и трубку (гидравлическую линию) минеральным маслом из резервуара, убедившись, что все пузырьки воздуха удалены.
ПРИМЕЧАНИЕ: После того, как аппарат будет настроен, он потребует лишь периодического обслуживания гидравлической линии. Шприц резервуара может быть снят и при необходимости снова заполнен минеральным маслом.
2. Подготовьте подталкиватели эмбрионов.
- Отрежьте кусок лески длиной 2 см и частично вставьте его в узкий конец наконечника пипетки P1000, оставив ~1,5 см открытым. Закрепите леску небольшой каплей суперклея и дайте высохнуть.
3. Приготовьте растворы.
- Для приготовления 1% агарозы с низкой температурой плавления растворяют в зародышевой среде (LMA), растворяют агарозу в кипящей зародышевой среде34. Внесите 1-2 мл аликвот в пробирки с круглым дном и храните при температуре 4 °C.
- Приготовьте раствор Рингера с пенициллин-стрептомицином и трикаином (RPT), смешав следующие ингредиенты до конечных концентраций 116 мМ NaCl, 2,9 мМ KCl, 1,8 мМ CaCl2, 5 мМ HEPES pH 7,2, 50 ед/мл пенициллина и 50 мкг/мл стрептомицина, перемешивая до растворения и пропуская через вакуумный фильтр. Хранить при комнатной температуре. Добавляйте трикаин непосредственно перед применением до концентрации 0,02%.
4. Подготовка донорских и принимающих животных к трансплантации.
- Выращивание животных-хозяев и доноров с соответствующими генотипами и с флуоресцентно мечеными клетками до желаемого возраста.
ПРИМЕЧАНИЕ: Для этих трансплантаций мы использовали Tg(isl1:EGFPCAAX)fh474 животных-доноров32 и Tg(isl1:mRFP)fh1 животных-хозяев35 , а также трансплантировали нейроны от донора к моторным ядрам блуждающего нерва хозяина в 3dpf. - Подготовьте предметные стекла для трансплантации, нанеся прямоугольный контур прозрачного лака для ногтей на каждое стеклостекло (рисунок 2A). Лак для ногтей создает гидрофобный барьер для удержания RPT, добавленного в шаге 4.8. Дайте полностью высохнуть перед использованием.
ПРИМЕЧАНИЕ: Слайды могут быть подготовлены заранее и храниться неограниченное время. - Расплавьте одну аликвоту LMA, поместив пробирку с LMA в стакан объемом 50 мл, содержащий 40 мл воды, и разогрейте в микроволновой печи в течение 1 минуты при мощности 50% или до тех пор, пока он не растает. Поддерживайте LMA на уровне 40 °C в сухом нагревателе для ванны.
- Дехорионатируйте животных-хозяев и доноров с помощью щипцов (если применимо) и обезболите их, поместив в маленькие чашки Петри, наполненные RPT комнатной температуры. Подождите 5 минут, пока животные полностью не будут обезболены, прежде чем продолжить.
- Установка отдельных доноров и животных-хозяев: с помощью пипетки Пастера и дозатора переведите животных из RPT в LMA, а затем перенесите животных в небольших каплях LMA на предметные стекла в контуре лака для ногтей. Сведите к минимуму количество RPT, переносимого в LMA, чтобы LMA не разбавлялся. Прежде чем LMA затвердеет, используйте толкатель эмбрионов для ориентации животных, следя за тем, чтобы каждое животное было установлено так, чтобы предполагаемое место введения иглы было правым, а все животные были выровнены вертикально (Рисунок 2B); Дайте агарозе полностью застыть (~5 минут), прежде чем продолжить.
Примечание: Поскольку у каждого животного-донора может быть взято много клеток, более эффективно установить 2-4 животных-хозяев с одним донором на каждом предметном стекле. - С помощью скальпеля разрежьте прямой вертикальный срез через все капли агарозы справа от установленных животных (Рисунок 2C). Удалите рыхлую агарозу со предметного стекла лабораторными салфетками.
- С помощью скальпеля вырежьте клинья из агарозы, чтобы обнажить место введения иглы (Рисунок 2C). Удалите рыхлую агарозу со предметного стекла лабораторными салфетками.
- Наносите RPT на предметное стекло до тех пор, пока агарозные капли не будут полностью погружены в воду (Рисунок 2D).
- Закрепите подготовленное предметное стекло на микроскопе для трансплантации. Сфокусируйтесь на животном-доноре в соответствии с целью 40x. Для этого опустите объектив до тех пор, пока он не разорвет поверхность носителя, затем поднимите объектив в нужную фокальную плоскость.
ПРИМЕЧАНИЕ: Контакт с жидкостью с мишенью должен сохраняться до тех пор, пока трансплантация не будет завершена (Рисунок 3C). - Сфокусируйтесь на флуоресцентно меченых донорских клетках, представляющих интерес; Затем сдвиньте ступень влево, чтобы подготовиться к нахождению иглы для трансплантации.
ПРИМЕЧАНИЕ: На этом этапе не настраивайте микроскоп по осям Y или Z, чтобы убедиться, что вы сможете легко найти животное-донора в разделе 5.
5. Подготовьте иглу для пересадки.
- Вставьте микропипетку в съемник микропипетки и потяните иглу для микроинъекций.
ПРИМЕЧАНИЕ: Форма иглы должна быть аналогична той, которая используется для инъекций эмбрионов данио-рерио на 1-клеточной стадии или зажима пластыря. Мы используем съемник микропипеток со следующей программой: ДАВЛЕНИЕ = 500, ТЕПЛО = нарастание + 80, ВЫТЯГИВАНИЕ = 90, СКОРОСТЬ = 70, ВРЕМЯ = 250 (см. Таблицу материалов), хотя правильные настройки для каждого съемника, вероятно, потребуется определить опытным путем. - Совместите кончик иглы с делениями микрометра предметного стекла под рассекающим эндоскопом. Используя микрометр в качестве ориентира для измерения, используйте заточенную пару щипцов, чтобы сломать иглу до размера отверстия, который немного больше диаметра интересующих клеток (рисунок 3A). Следите за тем, чтобы излом был максимально чистым, так как неровные края могут способствовать засорению иглой. ПРИМЕЧАНИЕ: Для блуждающих двигательных нейронов (диаметр 5-7 мкм) иглы должны быть сломаны до внутреннего диаметра 10 мкм, что соответствует внешнему диаметру 20 мкм. При необходимости размер, форма и/или угол наклона кончика иглы могут быть уточнены с помощью микрокузницы или микрошлифовального станка36.
- С помощью шприца объемом 50 мл, наполненного легким минеральным маслом и снабженного наполнителем для пипетки, полностью заполните иглу минеральным маслом (рисунок 3В). Следите за тем, чтобы не было пузырьков воздуха. Отложите заполненную иглу в сторону до готовности к монтажу.
ПРИМЕЧАНИЕ: Чтобы убедиться в отсутствии пузырьков воздуха, вставьте наполнитель пипетки до упора в иглу и выпустите масло, медленно вытягивая наполнитель из иглы. - На аппарате для трансплантации поверните трехсторонний запорный кран так, чтобы его длинная рука была обращена к насосу микрошприца, и нажмите на поршень шприца-резервуара, чтобы выдуть все пузырьки воздуха из гидравлической магистрали. Поддерживайте легкое давление на поршень (чтобы предотвратить обратный поток воздуха в линию) и поверните трехсторонний запорный кран так, чтобы его длинная рука была обращена к шприцу резервуара.
- Вставьте иглу в держатель, стараясь не допустить попадания пузырьков воздуха. Отрегулируйте угол наклона иглы так, чтобы она была направлена прямо влево под углом 10-15° от горизонтали (рисунок 3C).
- С помощью грубых и тонких микроманипуляторов маневрируйте кончиком иглы под объективом микроскопа и сфокусируйте его (Рисунок 3D).
ПРИМЕЧАНИЕ: Грубое позиционирование иглы в плоскостях X и Y может быть выполнено путем непосредственного наблюдения за областью под объективом во время маневрирования иглой, так как игла будет отражать проходящий световой луч, когда она находится под объективом. Окуляры микроскопа затем можно использовать для точного позиционирования. Не регулируйте положение предметного столика или фокусировку микроскопа во время этого шага. С помощью микроманипуляторов нужно привести кончик иглы в исходное положение. - Если жидкость поступает внутрь иглы или выходит из него, отрегулируйте давление с помощью шприцевого насоса до тех пор, пока не будет наблюдаться стабильный мениск между минеральным маслом и раствором Рингера (Рисунок 3D).
ПРИМЕЧАНИЕ: Если масляный пузырь остается на кончике иглы после стабилизации, его можно удалить с помощью регулировки плоскости X на грубом микроманипуляторе, чтобы переместить иглу вправо до тех пор, пока ее кончик не будет извлечен из RPT, а затем обратно влево до тех пор, пока она не будет перемещена под объектив.
6. Трансплантация
ПРИМЕЧАНИЕ: Все движения иглой должны выполняться с помощью тонкого микроманипулятора для этого участка.
- Перемещайте ступень вправо до тех пор, пока донорское животное не будет возвращено в поле зрения, соблюдая осторожность, чтобы избежать случайного проникновения иглой.
- Перецентрируйте и сосредоточьтесь на клетках, подлежащих трансплантации, и выровняйте иглу с клетками, находящимися непосредственно за животным (рисунок 4A).
ПРИМЕЧАНИЕ: Возможно, вам придется часто переключаться между светлым полем и флуоресценцией, чтобы обеспечить правильное выравнивание. Использование фильтра нейтральной плотности может помочь в одновременной визуализации и того, и другого. - Введите иглу в донорское животное.
ПРИМЕЧАНИЕ: Повторяющиеся движения иглой внутрь и наружу могут помочь в проникновении в кожу. - Немедленно стабилизируйте масляный мениск на кончике иглы с помощью микрошприцевого насоса, как описано в шаге 5.7.
- Прижмите кончик иглы к интересующим клеткам и осторожно отсосите с помощью микрошприцевого насоса (Рисунок 4B).
ПРИМЕЧАНИЕ: Мягкие движения внутрь и наружу во время отсасывания могут помочь ослабить клетки. - Когда будет взято достаточное количество клеток, извлеките иглу у донора и немедленно восстановите масляный мениск на кончике иглы с помощью микрошприцевого насоса.
- Соблюдая осторожность, чтобы не соприкасаться с животными или агарозой с иглой, переместите сцену так, чтобы в поле зрения попало первое животное-хозяин.
- Центрируйте и сосредоточьтесь на области, в которой должны быть размещены клетки, и выровняйте иглу с этой областью, находящейся непосредственно за животным (рисунок 4C).
- Введите иглу в животное-хозяина и немедленно восстановите масляный мениск на кончике иглы с помощью микрошприцевого насоса.
- Расположите кончик иглы в месте осаждения и слегка надавите на него с помощью микрошприцевого насоса до тех пор, пока из иглы не будет высвобождено нужное количество донорских клеток (Рисунок 4D).
Примечание: Если донорские и хозяйские клетки помечены разными флуорофорами, многополосный фильтр для одновременной визуализации может быть очень полезен на этом этапе. - Извлеките иглу из хозяина и немедленно восстановите масляный мениск на кончике иглы с помощью микрошприцевого насоса.
- Повторите шаги 6.7-6.11 для всех оставшихся узлов сети.
7. Восстановление животного-хозяина
- Поднимите объектив 40x и с помощью грубого микроманипулятора переместите иглу обратно в положение загрузки.
ПРИМЕЧАНИЕ: Иглу можно повторно использовать для нескольких слайдов. - Снимите предметное стекло с трансплантологического микроскопа и поместите его под микроскоп для препарирования.
- Снимите животных-хозяев, осторожно сняв их с капли LMA с помощью щипцов. С помощью стеклянной пастеровской пипетки переложите животных-хозяев в чашку со свежим раствором Рингера с пенициллином/стрептомицином. Убедитесь, что животные восстанавливаются после анестезии, и поддерживайте их в инкубаторе для эмбрионов до тех пор, пока они не будут готовы к визуализации. Усыпляйте животных-доноров в соответствии с утвержденными протоколами.
ПРИМЕЧАНИЕ: Наш метод эвтаназии заключается в погружении животных в ледяную ванну не менее чем на 1 час с последующим погружением в гипохлорит натрия 500 мг/л.
Результаты
Результаты экспериментов по трансплантации непосредственно наблюдаются путем визуализации флуоресцентно меченых донорских клеток у животных-хозяев в соответствующие моменты времени после трансплантации с помощью флуоресцентного микроскопа. Здесь мы пересадили отдельные передние нейроны блуждающего нерва с частотой 3 dpf. Затем животных-хозяев инкубировали в течение 12 или 48 часов, обезболивали, установили в LMA на стеклянную покровную крышку и визуализировали с помощью конфокального микроскопа (рис. 5). Через 12 ч после трансплантации (ГПТ) мы наблюдаем успешно пересаженный донорский нейрон (Рисунок 5A). Мы можем подтвердить правильное позиционирование клетки, так как она расположена среди блуждающих нейронов хозяина в передней области моторного ядра блуждающего нерва хозяина; клетка также выглядит неповрежденной и здоровой, на что указывает расширение нескольких коротких нейритовых выступов (рисунок 5A). Через 2 дня после трансплантации (dpt) мы снова можем подтвердить, что один нейрон был успешно пересажен в правильное положение ядра хозяина (рисунок 5B). На этом этапе мы видим, что нейрон расширил новый аксон до 4-й дуги глотки (рисунок 5B). Непосредственное наблюдение также показывает, когда процедура не увенчалась успехом. В этом примере мы наблюдаем хозяин с 2 dpt, в котором нет донорского нейрона; скорее, видно небольшое зеленое пятнышко, вероятно, фрагмент донорского нейрона, который погиб после трансплантации (рисунок 5C). Несмотря на то, что показатели успешности трансплантации варьируются в зависимости от пользовательского опыта, а также количества и типа трансплантированных клеток, мы наблюдаем вероятность успеха (определяемую как наличие выжившего нейрона, который удлинил аксон в организме хозяина на 2-3 dpt) в 66% (n = 453 трансплантации) для трансплантации блуждающих двигательных нейронов, выполненной при 3-4 dpf33.
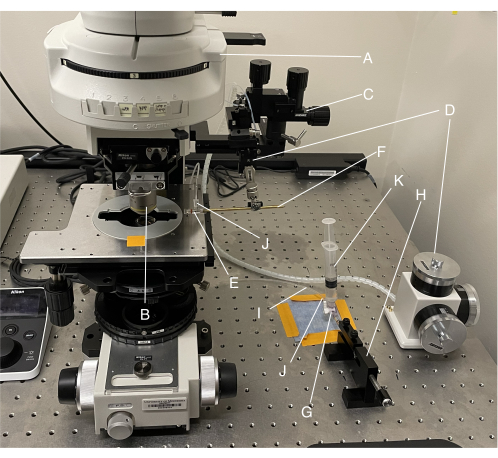
Рисунок 1: Обзор аппарата для трансплантации. (A) Вертикальный флуоресцентный микроскоп; (B) 40-кратное погружение в воду; (В) грубый микроманипулятор; (D) тонкий микроманипулятор; (E) держатель микроэлектродов; (F) рукоятка электрода; (G) трехсторонний запорный кран; (H) микрошприцевой насос; (I) полиэтиленовые трубки; (J) адаптеры для хроматографии; (K) Шприц с резервуаром объемом 10 мл. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этой цифры.
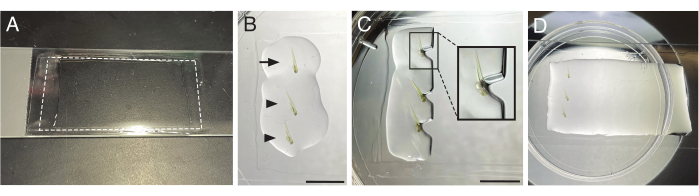
Рисунок 2: Монтаж животных для трансплантации. (A) Предметное стекло размером 3 x 1 дюйм с прозрачным лаком для ногтей, нанесенным прямоугольным контуром (пунктирной линией). (В) Донорские (стрела) и хозяева (стрелоголовые) животные, установленные в каплях агарозы, вертикально выровненные по целевому участку трансплантации (заднему мозгу) и ориентированные вправо. (C) Агароза с вырезанным правым краем и клиньями, чтобы обнажить целевой участок трансплантации. Вставка: масштабирование прямоугольной области. (D) Предметное стекло трансплантата, залитое раствором Рингера с пенициллин-стрептомицином и трикаином. Масштабные линейки = 5 мм. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
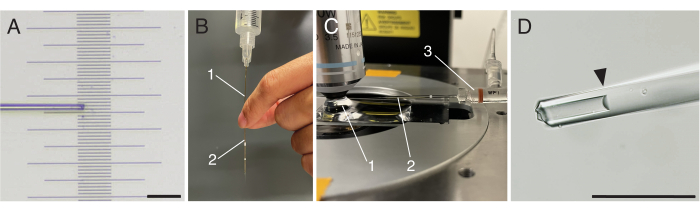
Рисунок 3: Подготовка иглы для трансплантации. (A) Сломанная игла для трансплантации на вершине ступенчатого микрометра. (B) Наполнитель для пипетки (1) вводится в иглу для трансплантации (2) для заполнения иглы минеральным маслом. (В) Подготовленное предметное стекло для трансплантата и игла на месте на трансплантологическом микроскопе. 1: Водяной мениск между объективом для погружения 40x и затопленным предметным стеклом 2: Игла для трансплантации 3: Держатель микроэлектродов. (D) Кончик сломанной иглы для трансплантации со стабильным масляным мениском (стрелкой), рассматриваемый в микроскоп для трансплантации при 40-кратном увеличении. Масштабные линейки = 100 μм Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
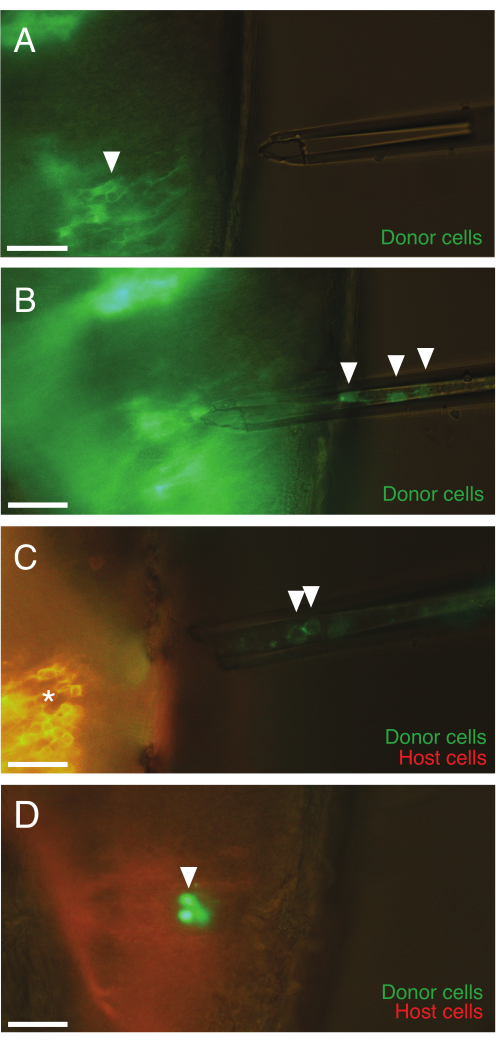
Рисунок 4: Процесс трансплантации под микроскопом. (А) Игла, расположенная снаружи донорского животного, направленная на блуждающие двигательные нейроны (зеленая, стрелка). (B) Игла помещается внутрь донорского животного после забора флуоресцентно помеченных донорских нейронов (стрелок). (C) Игла, содержащая несколько донорских нейронов (наконечников стрелок), расположенных снаружи животного-хозяина, направленная на передние блуждающие моторные нейроны хозяина (красная, звездочка). (D) Животное-хозяин после трансплантации с извлечением иглы. Кластер трансплантированных донорских нейронов, экспрессирующих GFP (стреловидный наконечник), был изгнан в организм хозяина. Масштабные линейки = 30 μм Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
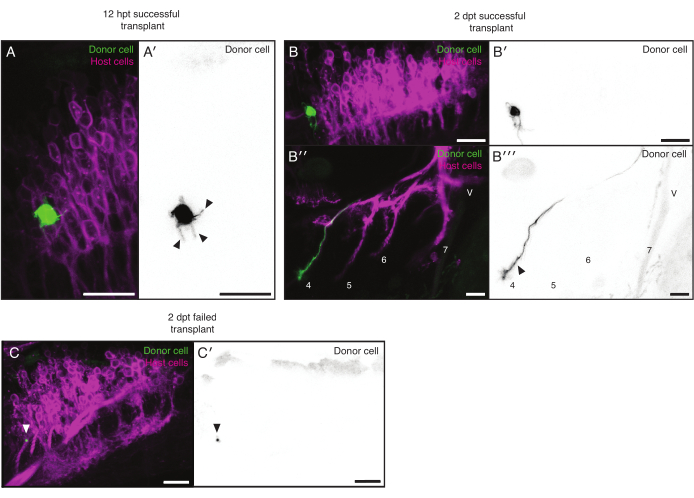
Рисунок 5: Репрезентативные результаты. (А,Б) Успешные пересадки. (A) Передняя область блуждающего моторного ядра хозяина мощностью 12 hpt (пурпурного), содержащего донорский нейрон (зеленый, черный в A'). Донорский нейрон имеет протяжение на несколько нейритов (стрелки в A'). (B) Блуждающее моторное ядро (B-B') и ветви аксонов глотки (B''-B''', меченые ветви аксонов) хозяина 2 dpt (пурпурный), содержащий донорский нейрон (зеленый, черный в B', B'''). Донорский нейрон удлинил новый аксон до ветви 4 (стреловидные наконечники). На рисунках 5А, В представлены различные животные. (В) Неудачная трансплантация. Блуждающее моторное ядро хозяина с концентрацией 2 dpt (пурпурный). Донорский нейрон отсутствует; скорее, присутствует небольшое пятнышко (зеленое, черное в C'), вероятно, представляющее собой фрагмент мертвого донорского нейрона (стреловидный наконечник). Масштабные линейки = 20 μм. Сокращения: dpt = дней после трансплантации; HPT = часы после трансплантации. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этой цифры.
Обсуждение
Биология развития и регенеративная биология уже более ста лет опирается на эксперименты по трансплантации для изучения принципов клеточной сигнализации и определения клеточной судьбы. Модель рыбок данио уже представляет собой мощное слияние генетического и трансплантационного подходов. Трансплантация на стадиях бластулы и гаструлы для получения мозаичных животных распространена, но ограничена в том, какие вопросы она может решить. Трансплантация на более поздних стадиях встречается редко, хотя сообщалось о методах трансплантации эмбриональных спинномозговых двигательных нейронов и ганглиозных клеток сетчатки при 16-18 HPF и 30-33 HPF соответственно 26,27,28. Черпая вдохновение из этих предыдущих усилий, эта работа еще больше расширяет возможности трансплантации рыбок данио, описывая подход, который применим к поздним эмбриональным и личиночным стадиям, открывая дверь для его использования в исследованиях регенерации, и который интегрирует современные флуоресцентные трансгенные подходы для улучшения мечения, переноса и долгосрочного отслеживания клеток.
Этот протокол предоставляет новые возможности для трансплантации клеток с различными стадиями дифференцировки и возрастами, в том числе в регенеративном контексте. Например, трансплантация дифференцированных нейронов была использована для изучения того, как сигнальная динамика влияет на идентичность нейронов, изменяя пространственные и временные контексты, вкоторых развиваются нейроны; изучить сроки детерминации нейронов26; в качестве средства для травмирования аксонов и отслеживания их повторного роста с разрешением одиночных клеток33; изучить клеточно-автономную роль рецептора во время регенерации аксонов с помощью трансплантатов от мутантного к дикому типу33; и изучить роль целевой памяти в регенеративном управлении аксонами33. Хотя до сих пор мы сосредоточились на трансплантации нейронов, мы не знаем ни одной характеристики нейронов, которые сделали бы их уникально подходящими для этого подхода; Скорее, мы считаем, что этот подход применим ко многим типам клеток. Мы надеемся и ожидаем, что исследователи найдут творческие способы изучения динамики развития и регенерации во многих контекстах с помощью этой техники.
Важнейшие соображения в этом протоколе включают выбор клеточных меток, пригодность клеток для трансплантации и доступность тканей. Яркая, стабильная, постоянная флуоресцентная метка для донорских клеток важна для облегчения как трансплантации, так и последующего отслеживания. Могут использоваться как инъецируемые красители, так и трансгены, хотя трансгены могут быть более постоянными и более специфичными для интересующих клеток. Устойчивость к фотообесцвечиванию также продлевает время, затрачиваемое на проведение трансплантации. Донорские клетки должны быть достаточно слабо адгезивными и иметь соответствующую форму , чтобы их можно было втянуть в иглу из окружающей ткани/внеклеточного матрикса без чрезмерного повреждения. Модификации для различных типов ячеек включают регулировку размера отверстия иглы, который должен быть немного больше диаметра интересующей клетки; правильная ориентация животного во время монтажа для облегчения доступа к интересующим клеткам; и оптимизация уровня всасывания или физического разрушения, необходимого для ослабления и подтягивания клеток. По мере взросления животных некоторые ткани могут стать визуально и/или физически недоступными, хотя мы не знаем о каких-либо конкретных возрастных ограничениях. Например, череп, скорее всего, в конечном итоге ограничит доступ к нейронам. Модификации могут включать использование непигментированных животных для более легкой визуализации внутренних тканей или выполнение предварительных небольших разрезов, корректировку толщины микрокапиллярной трубки или форму вытянутой иглы для облегчения введения иглы.
Ограничения этого протокола включают в себя неспособность клеток определенных типов и возраста к трансплантации, как описано выше, а также сложность поддержания структур на уровне тканей во время трансплантации. Поскольку эта процедура требует, чтобы отдельные клетки были отделены от окружающей среды во время удаления, межклеточные взаимодействия и структуры более высокого порядка будут потеряны. Врожденная иммунная система, которая начинает функционировать во время эмбриогенеза, может реагировать на повреждение тканей или наличие мертвых клеток и мусора в месте трансплантации, что может повлиять на выживаемость донорских клеток37,38. На более поздних стадиях донорские клетки также могут быть отторгнуты адаптивной иммунной системой, которая начинает функционировать через 3-6 недель после оплодотворения39,40. Этой проблемы можно избежать путем трансплантации хозяевам с недостаточным адаптивным или врожденным иммунитетом 41,42,43,44.
Потенциальные трудности с протоколом, которые могут потребовать устранения неполадок, включают следующее: во-первых, материал внутри иглы должен двигаться плавно и быстро во время всасывания и давления. Скачкообразное и непоследовательное движение, вероятно, вызвано наличием пузырьков воздуха в гидравлической магистрали или частичным засорением иглы; Поэтому следует соблюдать осторожность при удалении всех пузырьков воздуха из иглы и гидравлической магистрали во время настройки. При обнаружении пузырьков воздуха верните иглу в загрузочное положение с помощью грубого микроманипулятора, извлеките иглу из держателя, а перед повторной сборкой промойте иглу и промойте ее минеральным маслом. Засорение игл можно уменьшить, избегая неровных переломов игл. Иногда засоры можно устранить, выдавливая минеральное масло из кончика иглы, чтобы вытолкнуть засор, или полностью втягивая и затем снова вставляя иглу в RPT; В противном случае следует использовать новую иглу. Во-вторых, могут возникнуть трудности с разрыхлением клеток во время удаления. Перелом кончика иглы под углом для придания скошенной формы, перемещение иглы вперед и назад во время всасывания и регулировка силы всасывания могут помочь ослабить клетки для отслоения от ткани. Микрошлифовальная машина также может быть использована для подготовки скошенных игл с определенным размером отверстия и углом36. Наконец, во время удаления могут быть повреждены клетки. Сильно поврежденные клетки могут терять свою определенную форму и проявляться в виде небольших фрагментов или аморфных флуоресцентных капель в игле для инъекций. Неспособность клеток выжить после трансплантации также может быть признаком повреждения и может быть легко проанализирована по отсутствию флуоресцентно маркированных клеток в организме хозяина. Поиск и устранение неисправностей при повторном повреждении ячеек может включать в себя увеличение размера отверстия иглы и ограничение величины всасывания, применяемого для уменьшения силы сдвига. Частично забитая игла также может увеличить усилия сдвига, что приведет к повреждению.
Раскрытие информации
У авторов нет конфликта интересов, который можно было бы раскрыть.
Благодарности
Мы благодарим Сесилию Моэнс за обучение по трансплантации рыбок данио; Марк Тай за отличный уход за рыбами; и Эмме Карлсон за отзывы о рукописи. Эта работа была поддержана грантом NIH NS121595 A.J.I.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| 10 мл "резервуарный шприц" | Fisher Scientific | 14-955-459 | |
| 150 мл одноразовый вакуумный фильтр, .2 & микро; m, PES | Corning | 431153 | |
| нагревательный блок 20 x 12 мм | Corning | 480122 | |
| 3-х ходовой запорный кран | Braun Medical Inc. | ||
| 3 x 1 Предметное стекло с матовым стеклом | VWR | 48312-004 | |
| 40-кратный объектив для погружения в воду | Nikon | MRD07420 | |
| Дигидрат хлорида кальция | Sigma-Aldrich | C3306 | |
| Грубый манипулятор | Narishige | MN-4 | |
| Пользовательский микрошприцевой насос | Университет Орегона | Н/Д | Изготовлен в механическом цехе Орегонского университета (tsa.uoregon@gmail.com). Коммерчески доступная альтернатива перечислена ниже. |
| Dumont #5 Щипцы | Fine Science Tools | 1129500 | |
| Eclipse FN1 "Микроскоп для трансплантации" | Nikon N/A | ||
| Электродная ручка | World Precision Instruments | 5444 | |
| Перьевое стерильное хирургическое лезвие, #11 | VWR | 21899-530 | |
| Тонкий микроманипулятор, трехосевой масляный гидравлический | Narishige | MMO-203 | |
| HEPES pH 7,2 | Sigma-Aldrich | H3375-100G | |
| Высокая точность #3 Стиль Ручка скальпеля | Fisher Scientific | 12-000-163 | |
| Kimble Одноразовая боросиликатная пипетка Пастера, широкий наконечник, 5,75 в | DWK Life Sciences | 63A53WT | |
| KIMBLE Адаптер для хроматографии | DWK Life Sciences | 420408-0000 | |
| Kimwipes | Kimberly-Clark Professional | 34120 | |
| Легкое минеральное масло | Sigma-Aldrich | M3516-1L | |
| LSE цифровой обогреватель для сухой ванны, 1 блок, 120 В | Corning | 6875SB | |
| Ручной микрошприцевой насос | World Precision Instruments | MMP | Коммерческая альтернатива заказному микрошприцевому насосу |
| Держатель микроэлектродов | World Precision Instruments | MPH310 | |
| Наполнитель для пипеток MicroFil | World Precision Instruments | MF28G67-5 | |
| Лак для ногтей | Электронная микроскопия Sciences | 72180 | |
| Вода без нуклеазы | VWR | 82007-334 | |
| P-97 Пылающий/коричневый тип Пуллер для микропипеток | Sutter Instruments | P-97 | |
| Пенициллин-стрептомицин | Sigma-Aldrich | p4458-100ML | 5,000 единиц пенициллина и 5 мг стрептомицина/мл |
| Дозатор 10 мл | Bel-Art | 37898-0000 | |
| Хлорид калия | Sigma-Aldrich | P3911 | |
| Профессиональный суперклей | Локтит | LOC1365882 | |
| полистирольные пробирки | с круглым дномFalcon | 352054 | |
| Хлорид натрия | Sigma-Aldrich | S9888 | |
| Stage micrometer | Meiji Techno America | MA285 | |
| Шприцы без иглы, 50 мл | BD Медицинский | 309635 | |
| Трикаин Метаносульфонат | Syndel США | SYNCMGAUS03 | |
| Трилен XL гладкий кастинг Леска | Berkley | XLFS6-15 | |
| Трубка, полиэтилен No205 | BD Medical | 427445 | |
| UltraPure с низкой температурой плавления Agarose | Invitrogen | 16520050 | |
| калиброванными микропипетками Wiretrol II | Drummond | 50002010 |
Ссылки
- Solini, G. E., Dong, C., Saha, M. Embryonic transplantation experiments: Past, present, and future. Trends Dev Biol. 10, 13-30 (2017).
- Gilbert, S. F. A Conceptual History of Modern Embryology. , Springer. New York, NY. (1991).
- Spemann, H., Mangold, H. Induction of embryonic primordia by implantation of organizers from a different species. 1923. Int J Dev Biol. 45 (1), 13-38 (2001).
- Kretzschmar, K., Watt, F. M. Lineage Tracing. Cell. 148 (1), 33-45 (2012).
- Gansner, J. M., Dang, M., Ammerman, M., Zon, L. I. Chapter 22 - Transplantation in zebrafish. Methods in Cell Biol. 138, 629-647 (2017).
- Le Douarin, N. Details of the interphase nucleus in Japanese quail (Coturnix coturnix japonica). Bull Biol Fr Belg. 103 (3), 435-452 (1969).
- Ho, R. K. Cell movements and cell fate during zebrafish gastrulation. Dev Suppl. , 65-73 (1992).
- Le Douarin, N. M. Developmental patterning deciphered in avian chimeras. Development, Growth & Differentiation. 50, S11-S28 (2008).
- Wagner, D. E., Wang, I. E., Reddien, P. W. Clonogenic neoblasts are pluripotent adult stem cells that underlie planarian regeneration. Science. 332 (6031), 811-816 (2011).
- Balaban, E., Teillet, M. A., Le Douarin, N. Application of the quail-chick chimera system to the study of brain development and behavior. Science. 241 (4871), 1339-1342 (1988).
- Carmany-Rampey, A., Moens, C. B. Modern mosaic analysis in the zebrafish. Methods. 39 (3), 228-238 (2006).
- Kragl, M., et al. Cells keep a memory of their tissue origin during axolotl limb regeneration. Nature. 460 (7251), 60-65 (2009).
- Rojo-Laguna, J. I., Garcia-Cabot, S., Saló, E. Tissue transplantation in planarians: A useful tool for molecular analysis of pattern formation. Semin Cell Dev Biol. 87, 116-124 (2019).
- Tanaka, E. M. The molecular and cellular choreography of appendage regeneration. Cell. 165 (7), 1598-1608 (2016).
- Hu, Y., et al. Muscles are barely required for the patterning and cell dynamics in axolotl limb regeneration. Front Genet. 13, 1036641(2022).
- Wells, K. M., Kelley, K., Baumel, M., Vieira, W. A., McCusker, C. D. Neural control of growth and size in the axolotl limb regenerate. Elife. 10, e68584(2021).
- Otsuki, L., Tanaka, E. M. Positional memory in vertebrate regeneration: a century's insights from the salamander limb. Cold Spring Harb Perspect Biol. 14 (6), e040899(2022).
- de Abreu, M. S., et al. Zebrafish as a model of neurodevelopmental disorders. Neuroscience. 445, 3-11 (2020).
- Alper, S. R., Dorsky, R. I. Unique advantages of zebrafish larvae as a model for spinal cord regeneration. Front Mol Neurosci. 15, 983336(2022).
- Blader, P., Strähle, U. Zebrafish developmental genetics and central nervous system development. Hum Mol Genet. 9 (6), 945-951 (2000).
- Kemp, H. A., Carmany-Rampey, A., Moens, C. Generating chimeric zebrafish embryos by transplantation. J Vis Exp. (29), e1394(2009).
- Boulanger-Weill, J., et al. Functional interactions between newborn and mature neurons leading to integration into established neuronal circuits. Curr Biol. 27 (12), 1707-1720 (2017).
- Dong, J., Stuart, G. W. Transgene manipulation in zebrafish by using recombinases. Methods Cell Biol. 77, 363-379 (2004).
- Kawakami, K., Shima, A., Kawakami, N. Identification of a functional transposase of the Tol2 element, an Ac-like element from the Japanese medaka fish, and its transposition in the zebrafish germ lineage. Proc Natl Acad Sci U S A. 97 (21), 11403-11408 (2000).
- Hwang, W. Y., et al. Efficient genome editing in zebrafish using a CRISPR-Cas system. Nat Biotechnol. 31 (3), 227-229 (2013).
- Elsen, J. S. Determination of primary motoneuron identity in developing zebrafish embryos. Science. 252 (5005), 569-572 (1991).
- Elsen, J. Chapter 5 - Cellular methods: detailed procedure for transplanting single cells. The Zebrafish Book. , (2000).
- Poulain, F. E., Gaynes, J. A., Stacher Hörndli, C., Law, M. -Y., Chien, C. -B. Analyzing retinal axon guidance in zebrafish. Methods Cell Biol. 100, 3-26 (2010).
- Masai, I., et al. N-cadherin mediates retinal lamination, maintenance of forebrain compartments and patterning of retinal neurites. Development. 130 (11), 2479-2494 (2003).
- Raible, D. W., Elsen, J. S. Regulative interactions in zebrafish neural crest. Development. 122 (2), 501-507 (1996).
- White, R. M., et al. Transparent adult zebrafish as a tool for in vivo transplantation analysis. Cell Stem Cell. 2 (2), 183-189 (2008).
- Barsh, G. R., Isabella, A. J., Moens, C. B. Vagus motor neuron topographic map determined by parallel mechanisms of hox5 expression and time of axon initiation. Curr Biol. 27 (24), 3812-3825 (2017).
- Isabella, A. J., Stonick, J. A., Dubrulle, J., Moens, C. B. Intrinsic positional memory guides target-specific axon regeneration in the zebrafish vagus nerve. Development. 148 (18), 199706(2021).
- Westerfield, M. Chapter 1: General methods for zebrafish care. The Zebrafish Book. , (2000).
- Grant, P. K., Moens, C. B. The neuroepithelial basement membrane serves as a boundary and a substrate for neuron migration in the zebrafish hindbrain. Neural Dev. 5 (1), 9(2010).
- Konantz, J., Antos, C. L. Reverse genetic morpholino approach using cardiac ventricular injection to transfect multiple difficult-to-target tissues in the zebrafish larva. J Vis Exp. (88), e51595(2014).
- Novoa, B., Figueras, A. Zebrafish: model for the study of inflammation and the innate immune response to infectious diseases. Adv Exp Med Biol. 946, 253-275 (2012).
- Speirs, Z. C., et al. What can we learn about fish neutrophil and macrophage response to immune challenge from studies in zebrafish. Fish Shellfish Immunol. 148, 109490(2024).
- Trede, N. S., Langenau, D. M., Traver, D., Look, A. T., Zon, L. I. The use of zebrafish to understand immunity. Immunity. 20 (4), 367-379 (2004).
- Lam, S. H., Chua, H. L., Gong, Z., Lam, T. J., Sin, Y. M. Development and maturation of the immune system in zebrafish, Danio rerio: a gene expression profiling, in situ hybridization and immunological study. Dev Comp Immunol. 28 (1), 9-28 (2004).
- Wienholds, E., Schulte-Merker, S., Walderich, B., Plasterk, R. H. A. Target-selected inactivation of the zebrafish rag1 gene. Science. 297 (5578), 99-102 (2002).
- Petrie-Hanson, L., Hohn, C., Hanson, L. Characterization of rag1 mutant zebrafish leukocytes. BMC Immunol. 10, 8(2009).
- Roh-Johnson, M., et al. Macrophage-dependent cytoplasmic transfer during melanoma invasion in vivo. Dev Cell. 43 (5), 549-562 (2017).
- Bukrinsky, A., Griffin, K. J. P., Zhao, Y., Lin, S., Banerjee, U. Essential role of spi-1-like (spi-1l) in zebrafish myeloid cell differentiation. Blood. 113 (9), 2038-2046 (2009).
Перепечатки и разрешения
Теги
