В этом протоколе подробно описывается приготовление Zn2+-ограниченных сред, ростовых сосудов и посевных культур для производства Zn2+-ограниченных рибосом у микобактерий. Следы Zn2+ приводят к Zn2+-ограничивающему росту, и описаны морфогенные признаки, используемые в качестве биоиндикаторов для верификации ограничения Zn2+ in vitro у модельной бактерии Mycobacterium smegmatis и возбудителя человека M. tuberculosis.
Для просмотра этого контента требуется подписка на JoVE. Войдите или начните свой бесплатный пробный период.
Методическая статья
Использование Mycobacterium smegmatis в качестве биоиндикатора условий роста, ограниченных цинком у микобактерий
* These authors contributed equally
В этой статье
Краткое содержание
Аннотация
Многие бактерии строят альтернативные рибосомы в условиях Zn2+, ограничивающих рост, заменяя Zn2+-связывающие рибосомальные белки на Zn2+-независимые паралоги. Определение системы для изучения этих альтернативных рибосом оказалось сложным, потому что загрязнение Zn2+ в лаборатории является обычным явлением. Чтобы решить эту проблему, в питательные среды иногда добавляют хелатирующие агенты, но такой подход закручивает биологическую реакцию на постепенное ограничение Zn2+ и связан с гибернацией рибосом. Здесь изложена подробная инструкция по подготовке сред и посеву культур для Zn2+-ограниченного роста без добавления хелаторов. Следуя этому методу, модельная бактерия, Mycobacterium smegmatis, подвергается морфогенезу, который зависит от альтернативных рибосом. Поскольку морфогенез поддается лечению и происходит только в условиях, ограничивающих Zn2+, M. smegmatis может быть использован в качестве биоиндикатора для проверки биологически значимых условий роста. Описаны три биоиндикаторных фенотипа (плотность клеток, длина клеток и флуоресценция коэнзима F420), указывающих на ограничение Zn2+ у дикого типа, и описаны изменения в этих биоиндикаторах для делеционного мутанта, который не может строить альтернативные рибосомы. Поскольку загрязнение следовыми следами Zn2+ трудно контролировать для каждой партии среды, а точное количественное определение Zn2+ в каждом препарате среды является чрезмерно обременительным, следование фенотипу этого биоиндикатора является доступным способом валидации приготовления питательных сред с ограничением Zn2+. Чтобы помочь определить надлежащие условия для Zn2+-ограничивающего роста и альтернативной продукции рибосом, изменения в фенотипах биоиндикаторов были профилированы для Zn2+ загрязненных или сильно истощенных Zn2+ препаратов Zn2+ сред с ограниченным Zn 2+. Представлены дополнительные сведения о достижении Zn2+-ограничивающего роста и альтернативной продукции рибосом у M. tuberculosis, а также о связанном с ним фенотипе биоиндикатора. В целом, описанные здесь подробные инструкции и фенотипы биоиндикаторов помогут стандартизировать выработку трансляционно активных альтернативных рибосом у микобактерий.
Введение
Ион цинка (Zn2+) является важным микроэлементом и стандартным компонентом микробиологических сред. Тем не менее, многие бактерии выдерживают ограничение Zn2+ в окружающей среде, поскольку условия ограничения Zn2+ широко распространены; soil1, marine2, а ниши внутри host3 часто ограничены Zn2+. Таким образом, большинство бактерий развили механизмы для преодоления ограничения Zn2+ и сохранения клеточной функции4. Системы, участвующие в поддержании гомеостаза Zn2+, находятся под жестким транскрипционным контролем5 и участвуют в очистке Zn2+ с помощью высокоаффинных систем импорта Zn2+, мобилизации клеточных резервов Zn2+ и замене определенных Zn2+-связывающих белков альтернативными Zn2+-независимыми paralogs6. Примером последнего являются Zn2+-независимые рибосомальные белки (РБ), которые являются общей чертой Zn2+-чувствительных регулонов в классе бактерий4. Эти сильно расходящиеся Zn2+-независимые RP отличаются от их Zn2+-связывающих паралогов нарушением Zn2+-связывающего CXXC мотива 7. Более половины секвенированных прокариотических геномов содержат по крайней мере одну пару дуплицированных RP, где во многих из них один RP связывается с Zn2+, в то время как его paralog not8. В то время как нотация C+/C- (указывающая на наличие/отсутствие богатого цистеином Zn2+-связывающего мотива) обычно используется по отношению к этим паралогичным парам RP 7, Zn2+-независимые RP также описываются как альтернативные (Alt) версии первичных (Prim), Zn2+-связывающих паралогов RP, поскольку AltRP служат альтернативными RP для биогенеза рибосом в Zn2+-ограниченное состояние у некоторых бактерий и это ключевое слово с лучшей поисковой доступностью9,10,11.
Поскольку экспрессия AltRP жестко регулируется Zn2+, логично предположить, что экспрессия AltRP обеспечивает функциональную избыточность для Zn2+-зависимых рибосомальных белков в условиях ограничения Zn2+. Действительно, эта особенность AltRPs была продемонстрирована на модельной почвенной бактерии Bacillus subtilis, рост которой спасается во время ограничения Zn2+ высвобождением поверхности PrimRP L31 и заменой на AltRP L3112,13. Тем не менее, некоторые AltRP паралогичны по отношению к основным PrimRP, например, S14, что означает, что их включение требуется во время биогенеза рибосом12,13. Восстановление рибосомы с помощью AltRPs — это целенаправленная, энергоемкая программа. В то время как эти основные AltRP могут служить для высвобождения Zn2+ из рибосомы, также возможно, что некоторые AltRP развили дополнительную функцию в среде, ограниченной Zn2+. Это подтверждается наблюдением, что AltRP отличаются от своих паралогичных PrimRP; гомология последовательности генов AltRP часто выше среди гомологов у разных видов, чем у Zn2+-связывающей последовательности гена PrimRP в пределах одного и того же вида7,10. Поскольку гены, кодирующие сильно дивергентные AltRP, находятся под Zn2+-зависимым транскрипционным контролем, они удаляются из-под селективного давления, оказываемого на жестко регулируемые и высококонсервативные рибосомальные суперопероны14. Разъединенное селективное давление на генетическую информацию, кодирующую рибосомный механизм и AltRP, подвергает эти RP другим эволюционным траекториям, чем гомологичные PrimRP, и может позволить провести специфичную для линии эволюцию одного и того же AltRP у разных бактерийsup class="xref">15. Широкое распространение AltRPs у бактерий и несвязанная генетическая регуляция этих уникальных RP поднимают интересный вопрос о том, придает ли включение AltRPs в бактериальные рибосомы особое свойство AltRP-содержащим рибосомам (Alt-рибосомам).
Микобактерии - идеальная группа бактерий для исследования механистических свойств альтернативных рибосом. Во-первых, микобактерии обладают высококонсервативным опероном altRP, содержащим четыре гена, которые кодируют AltRPs: S14-2, S18-2, L28-2 и L33-28,9. AltRP микобактерий значительно отличаются от паралогов PrimRP; во всех четырех парах PrimRP/AltRP данный ген AltRP более похож у всех видов микобактерий, чем к гену PrimRP у того же вида10. Линейно-специфичная эволюция AltRP также очевидна в микобактериях, о чем свидетельствуют AltRPs S18-2 и L28-2 у Mycobacterium tuberculosis и M. bovis, которые содержат уникальные последовательности на С-конце, которые отсутствуют у других микобактерий10. Во-вторых, эта группа высокородственных бактерий содержит непатогенных и патогенных членов, которые обитают в различных средах от почвы (например, M. smegmatis) до множества хозяев: человека (например, M. tuberculosis), крупного рогатого скота (например, M. bovis), водных (например, M. marinum) и птиц (например, M. avium), и это лишь некоторые из них. Высококонсервативная природа оперона altRP у микобактерий, специфичная для линии эволюция специфических генов AltRP и совершенно различные среды, в которых существуют члены этой группы, предоставляют уникальную возможность проанализировать консервативную и специфичную для линии эволюцию функции AltRP и механистических свойств Alt-рибосом. Несмотря на обилие AltRP в геномах прокариот, роль AltRP и Alt-рибосомов была исследована только у нескольких бактерий9,10,11,12,13,16,17,18,19. Создание стандартизированной системы со специфическими метриками для валидации условий роста Zn2+, ограничивающих рост микобактерий, улучшило бы результаты экспериментов и углубило бы понимание Alt-рибосом в области исследований рибосом.
Zn2+ является микроэлементом, поэтому следы загрязнения Zn2+ в химикатах и воде способствуют биодоступности Zn2+, даже если они отсутствуют в средстве. Следовые количества Zn2+, присутствующие в воде или химических веществах, могут сильно различаться в разных лабораториях, тем самым влияя на результат Zn2+-ограничивающего рост. Эмпирическое количественное определение [Zn2+] в каждом независимом препарате среды является чрезмерно обременительным для большинства лабораторий, проводящих рутинные анализы роста, но механизм, исключающий возможность загрязнения Zn2+ в питательных средах, был бы само по себе ценным. С этой целью здесь представлен подробный метод получения химически определенной Zn2+-ограниченной среды (ZLM), ростовых сосудов и посевных культур для Zn2+-ограничивающего рост и продукции Alt-рибосомы у M. smegmatis и M. tuberculosis. Ключевые морфогенные характеристики (плотность клеток, измеренная по OD600, длина клетки и флуоресценция коэнзима F420) после роста в ZLM используются для подтверждения того, что было достигнуто ограничение Zn2+. Коэнзим F420 является кофактором деазафлавина, который играет важную роль в катаболизме и защите от окислительного стресса в метаногенах и микобактериях20,21. Важно отметить, что микобактерии автофлуоресцентны при возбуждении на длине волны 420 нм из-за обилия этого кофактора22. Молекулярная связь между [Zn2+] и флуоресценцией F420 остается невыясненной, но наблюдение за флуоресценцией F420 в культурах является управляемым и надежным биоиндикатором.
У M. smegmatis фенотипы биоиндикаторов встречаются у бактерий дикого типа, но делеционный мутант, лишенный оперона altRP, не проходит ту же морфогенную программу и может быть использован в качестве дифференциального биоиндикатора10. Хотя M. tuberculosis не следует той же морфогенной программе, что и M. smegmatis во время ограничения Zn2+, M. tuberculosis имеет устойчивый и глобальный ответ на Znограничение 2+ и ключевой фенотип биоиндикатора в соответствии с этим методом23. Таким образом, описанная здесь система позволяет генерировать Prim- и Alt-рибосомы при одинаковых условиях роста (т.е. при ограничении Zn2+), облегчая механистическое препарирование функции Alt-рибосом и ее роли в формировании физиологии бактерий. Этот метод роста был использован для определения структуры активных альт-рибосом и демонстрации их трансляционной активности в классе M. smegmatis24. Кроме того, этот метод роста и фенотип биоиндикатора подчеркивают биологическую функциональность AltRPs во время ограничения Zn2+, экспрессия AltRP необходима для Zn2+-зависимого морфогенеза и оказывает глубокое влияние на транскриптом и протеом Zn2+-ограниченного M. smegmatis10,25. Тот же метод, с незначительными изменениями в количестве инокулюма и времени инкубации, используется для получения Zn2+-ограниченных культур M. tuberculosis9,23. Здесь подробно описаны протоколы и фенотипы биоиндикаторов для достижения Zn2+-ограничивающего роста как у M. smegmatis, так и у M. tuberculosis, с акцентом на M. smegmatis, поскольку эта бактерия более чувствительна к контаминации Zn2+ в среде и более широко доступна, чем медленно растущий патоген.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Протокол
ПРИМЕЧАНИЕ: Штаммы, использованные в данном исследовании, — это дикий тип M. smegmatis mc2 155 (предоставлен доктором Робертом Хассоном, Детская больница Бостона) и делеционный штамм ΔaltRP (получен из лаборатории Prisic10). Их можно культивировать в лаборатории с уровнем биобезопасности 1 (BSL1) или BSL2, в зависимости от местных правил биобезопасности и имеющихся ресурсов. В данном случае протокол написан для лаборатории BSL2. При работе в лаборатории BSL1 использование асептической техники с горелкой Бунзена может заменить бокс биологической безопасности. Кроме того, исследователям, желающим включить другие штаммы или условия, потребуется рассчитать объем необходимой среды в зависимости от общего количества анализируемых культур. Манипуляции с патогенным штаммом M. tuberculosis H37Rv (Mtb-H37Rv; предоставлен доктором Робертом Хассоном, Детская больница Бостона) следует проводить в лаборатории BSL3 с использованием респиратора (например, PAPR или N95). Не используйте колбы повторно при культивировании высоковирулентных микобактерий, таких как Mtb-H37Rv. Ауксотрофный штамм M. tuberculosis mc26206 (Mtb-Aux) является аттенуированным, и работа с ним может проводиться в лаборатории BSL2 (предоставлен доктором Уильямом Р. Джейкобсом-младшим, Медицинский колледж Альберта Эйнштейна).
1. Подготовка колб
ПРИМЕЧАНИЕ: Условия роста с ограничением по Zn2+ достигаются в многоразовых (автоклавируемых) поликарбонатных колбах Эрленмейера объемом 250 mL. Не используйте стеклянные колбы для культивирования в условиях ограничения по Zn2+ и не пытайтесь изучать или сравнивать строгие процедуры промывки кислотой с результатами, представленными в данном протоколе19. Совершенно новых колб достаточно для создания условий роста с ограничением по Zn2+, однако никогда не смешивайте новые и старые колбы в одном эксперименте. Утилизируйте колбы с признаками износа (обычно по швам) или те, что использовались более 20 раз. Регулярно проверяйте фильтры крышек на предмет износа и утилизируйте их в случае повреждения. Если они имеются, удалите навинчивающиеся верхние крышки, которые закрывают фильтры. В данном методе описаны меры предосторожности по очистке колб и их подготовке к повторному использованию.
- Нанесите на колбы постоянную маркировку, чтобы данный набор использовался только для условий с ограничением по Zn2+. Отметьте другой набор колб для роста в условиях избытка Zn2+. Использование разных цветов при маркировке поможет избежать смешивания колб.
- Не допускайте высыхания остатков культуры в колбах. Сразу после декантирования культуры добавьте в колбу воду (например, 100 mL). Если по окончании роста сбор культуры не производится, опорожните колбы, вылив всю культуру в емкость для жидких отходов с конечной концентрацией отбеливателя 10% после регистрации фенотипов биоиндикаторов, как описано в данном протоколе.
- Автоклавируйте колбы в режиме для жидкостей (не менее 121 °C при 15 psi) в течение 20 min с водой внутри и закрытыми крышками.
- После автоклавирования вымойте колбы неионогенным низкопенным моющим средством и тщательно протрите мягкой щеткой. Выделите отдельную щетку исключительно для мытья колб, использовавшихся для роста с ограничением по Zn2+. Убедитесь, что колбы чистые, без остатков веществ или загрязнений. Не трите крышки щеткой и не используйте для них мыло, аккуратно промойте их деионизированной водой.
- Тщательно промойте колбы водопроводной водой, затем трижды промойте деионизированной водой (типа II или III) и еще как минимум один раз — ультрачистой водой (типа I) (18.2 MΩ-cm при 25 °C и ≤ 5 ppb общего органического углерода).
- Поставьте колбы вертикально вверх дном, чтобы вода не скапливалась на дне. Не используйте стандартные настенные лабораторные сушилки, так как они удерживают колбы под наклоном, что приводит к образованию небольших лужиц воды. Подойдут стандартные подставки для посуды. Дайте колбам и крышкам полностью высохнуть.
- После высыхания закрутите крышки на колбах и оберните их алюминиевой фольгой. Прикрепите к фольге кусочек индикаторной ленты для автоклавирования, чтобы подтвердить стерильность и защитить фильтры крышек от пыли.
- Автоклавируйте очищенные колбы (не менее 121 °C при 15 psi) в течение 20 min, после чего выполните вакуумирование в конце цикла для просушки содержимого (если автоклав оснащен данной функцией). Храните колбы в сухом месте, защищенном от пыли.
2. Приготовление среды с ограниченным содержанием Zn2+ (ZLM)
ПРИМЕЧАНИЕ: Для приготовления сред используйте только пластиковые стаканы, мерные цилиндры и другие расходные материалы. Выделите набор лабораторной посуды, используемой исключительно для приготовления сред с ограниченным содержанием Zn2+. Тщательно промывайте всю лабораторную посуду ультрачистой (типа I) водой до и после использования. Используйте химические реактивы высокой степени чистоты и, по возможности, закупайте их у одних и тех же поставщиков.
- Приготовьте среду Сотона с ограниченным содержанием Zn2+ без добавления солей Zn2+26, смешав следующие химические вещества с ~950 mL ультрачистой воды в пластиковом стакане объемом 1 L с магнитным перемешивателем:
0.5 g KH2PO4 (0.05%; MW: 136.09)
0.5 g MgSO4 x 7H2O (0.05%; MW: 246.48)
2 g лимонной кислоты, безводной (0.2%; MW: 192.12)
4 g L-аспарагина, 99% (0.4%; MW: 132.12)
60 mL глицерина (6%)
189 µL 1 M цитрата аммония-железа (0.005%; MW: 265)- Добавьте глицерин, используя одноразовую пластиковую серологическую пипетку объемом 50 mL. Тщательно промойте пипетку, совершив около 10 циклов всасывания и вытеснения жидкости в среде, пока в ней не останется глицерина.
ПРИМЕЧАНИЕ: Глицерин обладает высокой вязкостью, и его сложно отмерить. В качестве альтернативы глицерин можно налить в мерный цилиндр и несколько раз промыть его примерно 30 mL ультрачистой воды, которую затем добавят в среду. При использовании этого метода начинайте с меньшего объема (~600 mL), чтобы итоговый объем после добавления глицерина и промывных вод из мерного цилиндра в среду не превышал ~950 mL.
- Добавьте глицерин, используя одноразовую пластиковую серологическую пипетку объемом 50 mL. Тщательно промойте пипетку, совершив около 10 циклов всасывания и вытеснения жидкости в среде, пока в ней не останется глицерина.
- Доведите объем среды примерно до 950 mL и тщательно перемешайте. L-аспарагину требуется несколько минут для растворения; подождите до полного исчезновения белых хлопьев, прежде чем продолжить.
ПРИМЕЧАНИЕ: Раствор цитрата аммония-железа придает среде светло-желтый цвет. - Приготовьте 15 mL свежего раствора NaOH (~10% масс./об.) с использованием ультрачистой воды в пластиковом контейнере (например, в конической пробирке объемом 15 mL).
- Перед использованием тщательно промойте pH-метр ультрачистой водой и погрузите в среду только электрод pH-метра. Оставьте pH-метр в среде при осторожном перемешивании во время регулировки pH. С помощью одноразовой пластиковой пипетки-дозатора добавляйте свежеприготовленный NaOH до достижения конечного значения pH 7.4.
ПРИМЕЧАНИЕ: Исходный pH среды сильно кислый. Для доведения pH до нейтрального диапазона требуется большой объем раствора NaOH. Сначала добавьте 4-6 mL раствора NaOH; как только pH достигнет значения около 6.5, добавляйте раствор NaOH по каплям. Не превышайте целевое значение pH 7.4. Если это произошло, не пытайтесь скорректировать pH с помощью HCl или других кислот — утилизируйте среду. Рекомендуется использовать отдельный pH-метр для приготовления ZLM и не использовать его для измерения pH других сред и буферов, чтобы избежать загрязнения электрода. - Перенесите среду в мерный цилиндр и доведите ее до конечного объема 1 L ультрачистой водой. Стерилизуйте среду путем фильтрации через одноразовую фильтровальную колбу с порами 0.2 µm.
- В асептических условиях добавьте 2.5 mL стерилизованного фильтрацией 20% раствора Tween-80 (конечная концентрация 0.05%). Храните при 4 °C в защищенном от света месте до 6 месяцев.
3. Рост M. smegmatis в условиях ограничения Zn2+
ПРИМЕЧАНИЕ: Из-за вариаций содержания Zn2+ в разных партиях среды ZLM крайне важно использовать одну и ту же партию среды или несколько партий, которые были тщательно перемешаны, для всех культур в рамках одного эксперимента. Помимо среды, необходимой для постановки культур, требуется примерно 100 mL дополнительного объема для промывки и нормализации инокуляционных культур.
- Выполняйте все этапы в боксе биологической безопасности. Подготовьте инокуляты за 18 ч до начала эксперимента по культивированию. Не используйте переросшие или склонные к слипанию культуры. Для каждого штамма достаточно одного инокулята.
- Асептически внесите 5 мл среды 7H9-ADC (бульон Middlebrook 7H9 с 0,05% Tween 80 и 10% обогатителя ADC [конечная концентрация: 0,5% бычьего сывороточного альбумина, 0,2% декстрозы, 0,085% NaCl и, опционально, 0,0003% каталазы]) в пробирку для биореактора объемом 50 мл.
- Асептически внесите 10 µL размороженных клеток из глицеринового стока (подготовленного согласно26) непосредственно в среду. Закрутите крышку пробирки.
- Плотно закрепите пробирки в шейкере-инкубаторе под углом примерно 45°, чтобы при встряхивании жидкость заполняла пробирку примерно наполовину.
- Инкубируйте пробирки при 37 °C с встряхиванием при 120 rpm в течение примерно 18 ч.
- Проверьте ночные культуры, чтобы убедиться, что культура равномерно мутная и не имеет значительного слипания. Оптическая плотность при 600 нм (OD600) ночной культуры в идеале должна составлять около 0,5-0,8.
- Осадите ночные культуры в пробирках для биореактора, использованных для роста, путем центрифугирования при 3 000 x g в течение 5 мин при комнатной температуре.
- Слейте или аспирируйте супернатант и ресуспендируйте осадок в 5 мл ZLM. Повторите этапы центрифугирования и ресуспендирования 2 раза (всего три промывки).
- Во время этапов центрифугирования заполните кювету 70% этанолом до перелива для стерилизации. Оставьте заполненную кювету в боксе биологической безопасности на 10 мин, затем трижды тщательно промойте её ZLM с помощью пипетки.
ПРИМЕЧАНИЕ: Процесс нормирования клеток требует времени и практики для достижения эффективности. Нормирование клеток непосредственно в стерилизованной этанолом кювете значительно ускоряет этот процесс. - Подготовьте количество кювет, соответствующее числу штаммов, включенных в исследование; например, для данного протокола требуются две стерилизованные кюветы: одна для дикого типа и одна для мутанта ΔaltRP.
- Во время этапов центрифугирования заполните кювету 70% этанолом до перелива для стерилизации. Оставьте заполненную кювету в боксе биологической безопасности на 10 мин, затем трижды тщательно промойте её ZLM с помощью пипетки.
- После трех промывок с ZLM ресуспендируйте каждый клеточный осадок в 2 мл ZLM.
- Обнулите спектрофотометр, используя кювету с 600 µL ZLM. Эту кювету стерилизовать не нужно. Отставьте кювету в сторону и используйте её для обнуления спектрофотометра перед нормированием каждой культуры (т. е. штамма).
- Работая с одним штаммом за раз, перенесите 600 µL промытых клеток из этапа 3.5 в стерилизованную кювету, подготовленную на этапе 3.4.1, и измерьте исходную OD600. Если OD600 выше 1, переходите к этапу 3.8. Если OD600 ниже 1, выполните подэтапы 3.7.1 и 3.7.2.
- Если исходное значение OD600 из этапа 3.7 ниже 1, соберите всю культуру из кюветы, добавьте её обратно к оставшимся промытым инокулятным клеткам в центрифужной пробирке и снова центрифугируйте культуру, как в этапе 3.3. Ресуспендируйте культуру в объеме меньшем, чем использовался в этапе 3.5 (например, 1 мл), чтобы достичь более высокой плотности клеток, и повторите этап 3.7.
- Если после этапа 3.7.1 OD600 всё еще ниже 1, значит, культура недостаточно плотная; начните процедуру заново с этапа 3.1. Инкубируйте культуры дольше или увеличьте количество инокулята при постановке ночных культур так, чтобы конечная плотность ночной культуры была около OD600 = 0,5-0,8, как описано в этапе 3.2.
- Рассчитайте объем ZLM, который необходимо добавить к 600 µL промытых клеток в кювете для получения OD600 = 1, используя следующее уравнение и значение OD600, измеренное на этапе 3.7:
Объем ZLM (μL) = (исходная OD600 - 1) × 600 μL - Добавьте объем ZLM, рассчитанный в этапе 3.8, в кювету, подготовленную в этапе 3.7, тщательно перемешайте пипетированием 5-10 раз и повторно измерьте OD600.
- Доведите OD600 до значения в пределах 5% от OD600 = 1, следуя подэтапам, перечисленным ниже. Используйте две пипетки, одна из которых (размера P1000) предназначена только для перемешивания культуры, чтобы избежать чрезмерного расхода наконечников при каждой корректировке.
- Если OD600 выше 1, добавляйте ZLM по каплям (~50 µL за раз), тщательно перемешивайте, всасывая и вытесняя жидкость пипеткой 5-10 раз, и измеряйте OD600. Повторяйте этот процесс до тех пор, пока культура не окажется в пределах 5% от OD600 = 1.
- Если в процессе нормирования OD600 опускается ниже 1, добавьте больше промытых клеток (~20 µL для начала) из этапа 3.5, тщательно перемешайте пипетированием 5-10 раз и измерьте OD600. Повторяйте этот процесс по мере необходимости (или добавляйте больше ZLM, как описано в этапе 3.10.1, если OD600 превысит 1), пока культура не окажется в пределах 5% от OD600 = 1.
- Следите за тем, чтобы объем в кювете во время нормирования клеток не превышал ~1,5 мл, чтобы избежать проливания культуры в спектрофотометр. При разведении, если это необходимо, удаляйте часть культуры из кюветы. Также убедитесь, что объем культуры в кювете превышает минимум, необходимый для точного измерения OD600 на данном спектрофотометре. Большинству спектрофотометров требуется не менее 600 µL.
- Повторите этапы нормирования клеток (3.6 - 3.10) для всех штаммов и условий, включенных в исследование.
- Подготовьте общее количество колб, необходимых для эксперимента, асептически внеся по 50 мл ZLM в пластиковые колбы Эрленмейера объемом 250 мл, подготовленные согласно описанию в этапе 1.
- Инокулируйте колбы, асептически внося 50 µL нормированной культуры с OD600 = 1 непосредственно из кюветы до конечного значения OD600 = 0,001 (разведение нормированного инокулята 1:1000).
- Для культур, выращиваемых без ограничения по Zn2+ (т. е. в среде с достаточным содержанием Zn2+, ZRM), добавьте 30 µL стерильного 10 mM ZnSO4 (свежеприготовленного из стерильного стокового раствора 1M) непосредственно в колбы с культурой до конечной концентрации 6 µM ZnSO4.
- Инкубируйте колбы при 37 °C с встряхиванием при 100 rpm в течение 3 дней до достижения стационарной фазы (День 0 — день инокуляции).
- Каждый день роста используйте микропланшетный ридер с монохроматором или на основе фильтров для измерения следующих показателей роста, используя 200 µL культуры в 96-луночном микропланшете с плоским дном. Проводите считывание планшета сразу после распределения клеток, чтобы они не успели осесть.
ПРИМЕЧАНИЕ: Предварительный нагрев ридера не требуется, так как абсолютные значения флуоресценции менее информативны, чем соотношения и сканы флуоресценции, а малый измеряемый объем быстро уравновешивается с температурой комнаты во время установки планшета. Флуоресценцию можно измерять сверху или снизу планшета, если на крышке образуется конденсат, хотя при считывании снизу значения интенсивности флуоресценции в целом ниже.- Плотность клеток (т. е. OD600): чтобы привести значение OD600, полученное на микропланшетном ридере, к стандартному оптическому пути 1 см, постройте калибровочную кривую для пересчета показаний с учетом длины пути в микропланшете при заданном объеме (например, 200 µL).
- Флуоресценция кофактора F420 (возбуждение 420 нм/эмиссия 475 нм): для фильтровых микропланшетных ридеров используйте ближайший набор фильтров (например, возб. 430 нм/эм. 488 нм) и черные 96-луночные микропланшеты.
- Измерьте фоновую флуоресценцию при 375 нм (возб. 375 нм/эм. 475 нм).
- При использовании монохроматора выполните скан интенсивности флуоресценции в диапазоне возбуждения 230 - 440 нм с шагом 5 нм и фиксированной эмиссией 475 нм.
- При использовании монохроматора рассчитайте процент интенсивности флуоресценции при 375 нм по отношению к 420 нм по формуле:
F375/420 (%) = (F375/F420) x 100
4. Запись и измерение длины клеток
- На 3-й день визуализируйте и зафиксируйте длину клеток. Очистите предметное и покровное стекла салфеткой без ворса. Пипеткой нанесите каплю культуры объемом 10 µL на предметное стекло и поместите покровное стекло непосредственно поверх культуры. Осторожно нажмите на покровное стекло, чтобы культура распределилась и почти полностью заполнила область под стеклом. Подготовьте препараты и приступите к визуализации немедленно, чтобы предотвратить высыхание.
ПРИМЕЧАНИЕ: Если культура распределяется плохо или присутствуют частицы мусора, препятствующие плотному контакту, движение воды помешает захватить клетки в фокусе. В этом случае подготовьте новый препарат. - Используя сложный микроскоп (или DIC, см. ниже) с масляным иммерсионным объективом 100x и окуляром 10x (общее увеличение 1000x) и камерой, визуализируйте подготовленный препарат.
ПРИМЕЧАНИЕ: Клетки гораздо легче увидеть благодаря контрасту, который обеспечивает дифференциально-интерференционный контраст (DIC) микроскопия10. По возможности используйте этот тип микроскопа для получения высококачественных изображений. Для рутинного анализа и проверки статуса роста при ограничении Zn2+ достаточно стандартного сложного светового микроскопа. - Сделайте снимки участков предметного стекла, где находятся несколько клеток, которые находятся в фокусе, лежат в одной плоскости (т. е. видна вся длина клетки) и не двигаются. Сделайте достаточное количество снимков различных областей стекла (или нескольких стекол с одной и той же культурой), чтобы было измерено не менее 100 клеток.
- Используя тот же микроскоп и объектив, снимите калибровочный предметный предмет.
- В программе Fiji27 с помощью инструмента «прямая линия» (straight-line tool) проведите линию по всей длине калибровочного стекла. Выберите Analyze > Set scale и введите известное расстояние и единицу измерения шкалы. Выберите Global, чтобы применить этот масштаб ко всем последующим изображениям и измерениям.
- Откройте микрофотографию. С помощью инструмента «прямая линия» проведите линию по длине клетки и нажмите клавишу M на клавиатуре, чтобы измерить клетку. Измерьте не менее 100 клеток каждой культуры.
- Скопируйте данные о длине, сгенерированные в появившемся окне Fiji, в программу для работы с электронными таблицами или сохраните их в виде файла со значениями, разделенными запятыми (.csv), для последующего статистического анализа.
5. Модификации для выращивания Zn2+ограниченный M. tuberculosis (Mtb)
ПРИМЕЧАНИЕ: В отличие от Mtb-H37Rv, штамм Mtb-Aux не способен синтезировать L-лейцин и D-пантотенат, поэтому данные добавки вводятся в питательные среды28Добавление добавок для Mtb-Aux не влияет на Zn2+ ограничение, и оба штамма демонстрируют схожие фенотипы в ZLM23Данный протокол представляет собой модифицированную версию ранее опубликованного протокола.23основное различие заключается в том, что культуры выращивают в течение 8 дней вместо 10, чтобы уменьшить агрегацию и обеспечить обогащение одиночными клетками, что необходимо для последующих этапов, таких как инфицирование макрофагов. Для ознакомления с другими незначительными различиями, пожалуйста, обратитесь к оригинальной публикации23Метод инокуляции отличается от M. smegmatis в связи с необходимостью использования значительно большего количества инокулята для инициирования роста M. tuberculosis.
- Для Mtb-Aux во все среды добавьте дополнительные добавки: 50 µg/mL L-леуцина и 48 µg/mL D-пантотената. Стерилизуйте путем фильтрации через фильтр 0.2 µm 1000-кратные стоковые растворы L-леуцина (50 mg/mL) и пантотената кальция (48 mg/mL), затем добавьте их в стерилизованные среды.
- В асептических условиях добавьте 1 mL размороженного глицеринового стока клеток в 4 mL среды 7H9-ADC в пробирку с круглым дном и зажимной крышкой объемом 14 mL (для Mtb-Aux) или в трубку биореактора объемом 50 mL (для Mtb-H37Rv).
- Инкубируйте при 37 °C без встряхивания до достижения культурой OD600 ~1. Это займет около 1 недели. Аэрируйте культуру один раз в день, открывая пробирку в боксе биологической безопасности и несколько раз перемешивая культуру с помощью пипетирования.
- Инокулируйте 1 mL стационарной культуры в 50 mL среды 7H9-ADC в вентилируемую пластиковую колбу объемом 250 mL. Одной 50 mL культуры в 7H9-ADC достаточно для проведения биологических трипликатов для каждого штамма и условия (например, дикого типа в ZLM и ZRM). Чтобы избежать появления крупных комков (т. е. крупных клеточных агрегатов), дайте культуре отстояться в течение 5-10 мин перед инокуляцией, чтобы комки осели на дно пробирки, и берите культуру из верхнего слоя.
ПРИМЕЧАНИЕ: Инокуляция с крупными комками приводит к образованию комковатых культур, что влияет на нормализацию и воспроизводимость культуры. - Инкубируйте при 37 °C с встряхиванием при 100 rpm до достижения культурой OD600 0.5-0.8 (средняя логарифмическая фаза). Это займет 3-5 дней.
- Перенесите культуру в коническую пробирку объемом 50 mL и осадите клетки центрифугированием при 3,000 x g в течение 10 мин при комнатной температуре. Удалите супернатант, аспирировав 40 mL серологическим пипеточником и удалив оставшийся супернатант микропипеткой P1000.
ПРИМЕЧАНИЕ: Этот этап критически важен для минимизации переноса Zn2+ из среды 7H9-ADC. - Ресуспендируйте осадок в 5 mL среды ZLM и доведите общий объем культуры в конической пробирке до 50 mL с помощью ZLM.
- Повторите центрифугирование при 3,000 x g в течение 10 мин при комнатной температуре для осаждения клеток. Удалите супернатант. Ресуспендируйте клеточный осадок до конечного объема 50 mL, как описано в пункте 5.7.
- Измерьте OD600 промытых посевных клеток и рассчитайте объем, необходимый для получения начальной OD600 0.05 (для Mtb-H37Rv) или 0.08 (для Mtb-Aux) в 50 mL, используя следующее уравнение:
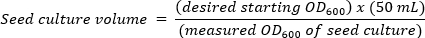
ПРИМЕЧАНИЕ: Рост Mtb-Aux при начальной OD600 0.05 нестабилен; поэтому для обеспечения стабильного роста используется более высокая OD600 0.08. - Перенесите рассчитанный в пункте 5.9 объем посевной культуры в новую коническую пробирку объемом 50 mL и доведите объем до 50 mL средой ZLM. Перелейте промытую и нормализованную культуру из конической пробирки в пластиковые колбы Эрленмейера, подготовленные согласно описанию в пункте 1. Повторите процедуру, используя ту же коническую пробирку для всех биологических повторностей каждого штамма и условия.
- Для культур, выращиваемых без ограничения по Zn2+ (т. е. в средах с достаточным содержанием Zn2+, ZRM), добавьте 30 µL стерильного 10 mM ZnSO4 непосредственно в колбы с культурой до конечной концентрации 6 µM ZnSO4.
- Инкубируйте колбы с культурой при 37 °C с встряхиванием при 100 rpm в течение 8 дней. Измеряйте OD600 и флуоресценцию F420 на протяжении всего роста, как описано в пункте 3. Утилизируйте культуры, если они стали комковатыми в первые несколько дней роста (т. е. культура не выглядит мутной, и по всему объему видны комки).
ПРИМЕЧАНИЕ: В идеале в первые несколько дней роста культуры должны быть преимущественно планктонными (т. е. без крупных комков, видимых невооруженным глазом). Культуры Mtb, особенно в среде ZLM, становятся всё более комковатыми по мере роста; появление хлопьев комков на поверхности среды ожидаемо к поздней логарифмической фазе23.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Результаты
Фенотипы-биоиндикаторы M. smegmatis
Дикий тип M. smegmatis культуры, выращенные в среде ZLM, которые достигают Zn2+—ограничении роста имеют три основных биоиндикаторных фенотипа по сравнению с клетками, выращенными в условиях содержания Zn2+-условия избытка питательных веществ: [1] снижение оптической плотности (OD)600, [2] удлиненные клетки и [3] снижение пика флуоресценции при 420 нм. Мутант с отсутствием AltRP (ΔaltRP) не...
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Обсуждение
Существенным вкладом в пробел в знаниях о механистической основе альт-рибосом является сложность достижения Zn2+-ограничивающих условий in vitro. Загрязнение следами Zn2+ в лабораторных условиях является распространенным явлением; таким образом, достижение воспроизводимых условий роста, ограниченных Zn2+, является сложной задачей. Загрязнение Zn2+ может происходить из нескольких источников, хотя наиболее значительным и распространенным источником загрязнения и изменчив...
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Раскрытие информации
У авторов нет конфликта интересов.
Благодарности
Это исследование финансировалось Национальным научным фондом (NSF) CAREER Award 1844854, Американской ассоциацией легких Innovation Award IA -937538 и Национальным институтом здравоохранения (NIH) NIAID R21 AI109293 to S.P. Текущий адрес Allexa D. Burger - Тихоокеанский исследовательский центр биологических наук, Гавайский университет в Маноа, Гонолулу, Гавайи, США.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Системы вакуумной фильтрации объемом 1000 мл, стандартная линейка | VWR | 10040-440 | |
| 125 мл колбы шейкера | Greiner Bio-One | 679501 | |
| 14 мл пробирки для культивирования, пластиковые, с двухпозиционными колпачками | VWR | 60818-725 | |
| 250 мл колбы шейкера Erlenmeyer | Greiner Bio-One | 679502 | |
| 40X-1000X Лабораторный бинокулярный биологический состав Микроскоп | Omax | M82EZ | |
| 50 мл Биореакционные пробирки, стерильные | VWR | 76211-286 | |
| 50 мл Высокопроизводительные центрифуги с флажками | VWR | 89039-656 | |
| Alcojet Низкопенящееся порошковое моющее средство | Alconox | 1404 | |
| Аммоний-железо (III) цитрат, коричневый | Thermo Scientific | AAA1119930 | MW: 265 г/моль, для 1М раствора добавить 1,325 г на 5 мл ультрачистой воды; хранить в защищенном от света месте при температуре 4 °C |
| Бычий сывороточный альбумин | Thermo Scientific | J10857-A1 | |
| Кальций D-пантотенат | Thermo Scientific | AC243300050 | |
| Каталаза | Sigma-Aldrich | C1345-10G | |
| Лимонная кислота безводная, кристаллическая | Fisher Scientific | BP339-500 | |
| Декстроза безводная | Fisher Scientific | D14-500 | |
| Difco Middlebrook 7H9 Broth | BD Diagnostics | 271310 | |
| DiluPhotometer OD600 для определения плотности клеток и анализов Брэдфорда | Implen | OD600-10 | |
| GENios FL Считыватель микропланшетов | Tecan | снят с производства | |
| Глицерин | Fisher Scientific | G33-4 | |
| Infinite M200 PRO Многомодовый микропланшетный ридер | Tecan | LGE140213-20BL | |
| L-аспарагин | Thermo Scientific | AAB2147336 | |
| L-Leucine | Thermo Scientific | A1231122 | |
| Macrofire SP CCD камера | Оптроника | Для использования с микроскопом Olympus | |
| Сульфат магния гептагидрат | VWR | 97062-134 | |
| Milli-Q Direct 8 Система очистки воды | Millipore | C85358 | |
| Moticam X3 | Motic | Снят с производства, заменен на Moticam X5 Plus; для использования с составным микроскопом | |
| Олеиновая кислота | Thermo Scientific | 031997-14 | |
| Olympus BX51 вертикальный микроскоп | Olympus | Снят с производства, заменен на BX53M | |
| Фосфат калия, одноосновной | Fisher Scientific | BP362-500 | |
| Полумикро двухсторонние одноразовые пластиковые кюветы | VWR | 97000-590 | |
| Хлорид натрия, кристалл | VWR | VW1494-01 | |
| гидроксид натрия | Fisher Scientific | S318-500 | |
| Tween 80 | MP Biomedicals | 103170 | |
| Гептагидрат сульфида цинка, кристаллический/ACS | MP Biomedicals | 219145290 |
Ссылки
- Alloway, B. Soil factors associated with zinc deficiency in crops and humans. Environ Geochem Health. 31 (5), 537-548 (2009).
- Middag, R., de Baar, H. J. W., Bruland, K. W. The relationships between dissolved zinc and major nutrients phosphate and silicate along the GEOTRACES GA02 transect in the west Atlantic ocean. Global Biogeochem Cycles. 33 (1), 63-84 (2019).
- Corbin, B. D., et al. Metal chelation and inhibition of bacterial growth in tissue abscesses. Science. 319 (5865), 962-965 (2008).
- Panina, E. M., Mironov, A. A., Gelfand, M. S. Comparative genomics of bacterial zinc regulons: Enhanced ion transport, pathogenesis, and rearrangement of ribosomal proteins. Proc Natl Acad Sci. 100 (17), 9912-9917 (2003).
- Outten, C. E., O’Halloran, T. V. Femtomolar sensitivity of metalloregulatory proteins controlling zinc homeostasis. Science. 292 (5526), 2488-2492 (2001).
- Merchant, S. S., Helmann, J. D. Elemental economy: microbial strategies for optimizing growth in the face of nutrient limitation. Adv Micro Physiol. 60, 91-210 (2012).
- Makarova, K. S., Ponomarev, V. A., Koonin, E. V. Two C or not two C: recurrent disruption of Zn-ribbons, gene duplication, lineage-specific gene loss, and horizontal gene transfer in evolution of bacterial ribosomal proteins. Genom Biol. 2 (9), RESEARCH 0033(2001).
- Yutin, N., Puigbò, P., Koonin, E. V., Wolf, Y. I. Phylogenomics of prokaryotic ribosomal proteins. PLoS One. 7 (5), e36972(2012).
- Prisic, S., et al. Zinc regulates a switch between primary and alternative S18 ribosomal proteins in Mycobacterium tuberculosis. Mol Microbiol. 97 (2), 263-280 (2015).
- Dow, A., Prisic, S. Alternative ribosomal proteins are required for growth and morphogenesis of Mycobacterium smegmatis under zinc limiting conditions. PLoS One. 13 (4), e0196300(2018).
- Chen, Y. X., et al. Selective translation by alternative bacterial ribosomes. Proc Natl Acad Sci. 117 (32), 19487-19496 (2020).
- Natori, Y., et al. A fail-safe system for the ribosome under zinc-limiting conditions in Bacillus subtilis. Mol Microbiol. 63 (1), 294-307 (2007).
- Gabriel, S. E., Helmann, J. D. Contributions of Zur-controlled ribosomal proteins to growth under zinc starvation conditions. J Bacteriol. 191 (19), 6116-6122 (2009).
- Wolf, Y. I., Rogozin, I. B., Kondrashov, A. S., Koonin, E. V. Genome alignment, evolution of prokaryotic genome organization, and prediction of gene function using genomic context. Genom Res. 11 (3), 356-372 (2001).
- Akanuma, G., et al. Evolution of ribosomal protein S14 demonstrated by the reconstruction of chimeric ribosomes in Bacillus subtilis. J Bacteriol. 203 (10), e00599(2021).
- Owen, G. A., Pascoe, B., Kallifidas, D., Paget, M. S. B. Zinc-responsive regulation of alternative ribosomal protein genes in Streptomyces coelicolor involves Zur and σR. J Bacteriol. 189 (11), 4078-4086 (2007).
- Li, Y., et al. Zinc depletion induces ribosome hibernation in mycobacteria. Proc Natl Acad Sci. 115 (32), 8191-8196 (2018).
- Li, Y., Corro, J. H., Palmer, C. D., Ojha, A. K. Progression from remodeling to hibernation of ribosomes in zinc-starved mycobacteria. Proc Natl Acad Sci. 117 (32), 19528-19537 (2020).
- Graham, A. I., et al. Severe zinc depletion of Escherichia coli. J Biol Chem. 284 (27), 18377-18389 (2009).
- Greening, C., et al. Physiology, biochemistry, and applications of F420- and Fo-dependent redox reactions. Microbiol Mol Biol Rev. 80 (2), 451-493 (2016).
- Gurumurthy, M., et al. A novel F 420 -dependent anti-oxidant mechanism protects Mycobacterium tuberculosis against oxidative stress and bactericidal agents. Mol Microbiol. 87 (4), 744-755 (2013).
- Patino, S., et al. Autofluorescence of mycobacteria as a tool for detection of Mycobacterium tuberculosis. J Clin Microbiol. 46 (10), 3296-3302 (2008).
- Dow, A., et al. Zinc limitation triggers anticipatory adaptations in Mycobacterium tuberculosis. PLoS Pathogens. 17 (5), e1009570(2021).
- Tobiasson, V., Dow, A., Prisic, S., Amunts, A. Zinc depletion does not necessarily induce ribosome hibernation in mycobacteria. Proc Natl Acad Sci. 116 (7), 2395-2397 (2019).
- Dow, A., Burger, A., Marcantonio, E., Prisic, S. Multi-omics profiling specifies involvement of alternative ribosomal proteins in response to zinc limitation in Mycobacterium smegmatis. Front Microbiol. 13, 811774(2022).
- Singh, A. K., Reyrat, J. Laboratory maintenance of Mycobacterium smegmatis. Curr Protoc Microbiol. Chapter 10, Unit10C.1(2009).
- Schindelin, J., et al. Fiji: an open-source platform for biological-image analysis. Nat Meth. 9 (7), 676-682 (2012).
- Sampson, S. L., et al. Protection elicited by a double Leucine and Pantothenate auxotroph of Mycobacterium tuberculosis in Guinea pigs. Infect Immunity. 72 (5), 3031-3037 (2004).
- Cheeseman, P., Toms-Wood, A., Wolfe, R. S. Isolation and properties of a fluorescent compound factor420, from Methanobacterium strain M.o.H. J Bacteriol. 112 (1), 527-531 (1972).
- Wayne, L. G., Hayes, L. G. An in vitro model for sequential study of shiftdown of Mycobacterium tuberculosis through two stages of nonreplicating persistence. Infect Immunity. 64 (6), 2062-2069 (1996).
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Перепечатки и разрешения
