В этой статье рассматриваются процедуры индуцирования стрессовых реакций с использованием физического сдерживающего стресса у мышей и крыс. Обсуждаются дополнительные соображения, которые следует учитывать при выборе и использовании удерживающего напряжения в моделях грызунов.
Методическая статья
Сдержанность для вызова стресса у мышей и крыс
В этой статье
Краткое содержание
Аннотация
У всех видов животных воздействие стрессовых условий вызывает стрессовые реакции. Одним из методов изучения эффектов напряжения с использованием моделей грызунов является процедура сдерживающего напряжения. Сдерживающий стресс использовался на протяжении десятилетий для исследования изменений в физиологии, генетике, нейробиологии, иммунологии и других системах, подверженных воздействию стресса. Из-за простоты выполнения процедуры, низкой стоимости и многочисленных модификаций масштаба интенсивности и продолжительности воздействия стресса, в обширной литературе исследований использовался сдерживающий стресс на мышах и крысах. В качестве одного из примеров в этом исследовании представлены ранее опубликованные данные, показывающие влияние сдерживающего стресса у трансгенных мышей на уровень кортикостерона в плазме крови и высвобождение норадреналина, вызванное оптогенетически. Острый удерживающий стресс повышал уровень кортикостерона в плазме крови, но этот эффект был притуплен у мышей после повторного сдерживающего стресса. Однако стимулированное высвобождение норадреналина в ядре ложа терминальной полосы было увеличено только в группе повторного ограничительного стресса. Эти данные подчеркивают важные соображения относительно параметров ограничения зависимых измерений. Дополнительные описания удерживающего напряжения у крыс также включены для сравнения. Наконец, обсуждается влияние параметров ограничения (например, острый или хронический) и характеристик животных (штамм, пол, возраст).
Введение
В связи с универсальным опытом работы со стрессом, изучение механизмов измененных реакций после воздействия стресса является постоянной областью исследований в течениенескольких десятилетий. Эти исследования начали разбирать аспекты стресса, которые могут быть полезны для повышения адаптивности и реакции на острые стрессоры от стрессовых переживаний, которые вызывают дезадаптивные изменения физиологических и поведенческих функций, часто возникающие в результате длительного воздействия повторяющихся и/или непредсказуемых стрессоров. Многие из этих реакций на стрессоры влияют на функцию мозга, гипоталамо-гипофизарно-надпочечниковую ось (HPA), симпатическую и парасимпатическую ветви вегетативной нервной системы, а также иммунную систему. Воздействие стрессоров инициирует повышенное высвобождение кортикотропин-рилизинг-фактора (CRF) для повышения адренокортикотропного гормона (АКТГ) и глюкокортикоидных гормонов, таких как кортизол у приматов и многих других млекопитающих и кортикостерон у грызунов2. Кроме того, адреналин и норадреналин высвобождаются по всей периферии и мозгу какчасть реакции симпатической нервной системы. Эти химические сигналы затем взаимодействуют с рядом физиологических систем, таких как иммунная функция, обмен веществ, репродуктивнаяфункция и реактивность нейронов.
Стрессовые переживания связаны с множеством состояний, включая усиление тревоги и депрессии, изменения в обучении и памяти, нарушения в принятии решений и исполнительных функциях, а также восприимчивость к расстройствам, связанным с употреблением психоактивных веществ, и другие. Каждый из этих эффектов зависит как от параметров стрессора, так и от характеристикчеловека, испытывающего стресс. Характер стрессора, как острого или хронического, контролируемого или непредсказуемого, существенно изменяет наблюдаемые результаты. Эти аспекты стресса согласуются между человеческим опытом и животными моделями. Таким образом, для моделирования стресса в исследованиях на животных необходимо тщательно выбирать параметры воздействия стресса, соответствующие виду, полу и состоянию.
Несмотря на то, что для исследований на грызунах доступен ряд стрессоров (включая психосоциальные стрессоры, такие как стресс социальной изоляции или социального поражения, фармакологические стрессоры, такие как введение кортизола или йохимбина, физические стрессоры, такие как шок ногами и сдержанность, а также мультимодальные стрессоры, которые комбинируют или чередуются между состояниями), основное внимание в этой рукописи будет уделено использованию сдерживающего стресса у мышей и крыс. Удерживающий стресс может быть выбран по сравнению с другими стрессорами, потому что он прост в исполнении, недорог, адаптируется к различным размерам грызунов, масштабируется как на острый, так и на долгосрочный периоды и редко приводит к неблагоприятному вредудля субъекта. Несмотря на то, что в данной рукописи основное внимание уделяется долгосрочным изменениям, вызванным воздействием стресса ограничения, в некоторых исследованиях используется ограничение у грызунов для изучения механизмов и поведения, происходящих во время ограничения, включая активное совладающее поведение, связанное с уходом от стрессора 6,7,8,9. Целью данной рукописи является предоставление методологических соображений для оценки влияния удерживающего стресса на мышей или крыс.
Протокол
Эксперименты и протоколы были одобрены Институциональным комитетом по уходу за животными и их использованию (IACUC) в Университете Северной Каролины в Чапел-Хилл (мыши) и Университете Фэрфилда (крысы) и соответствуют рекомендациям NIH10.
1. Удерживающее напряжение у мышей
Мыши: Мыши имеют ряд преимуществ при изучении влияния стресса на физиологию и нейронные системы. С преобладанием трансгенных линий мышей механистические исследования взаимодействия между генами и воздействием стресса вполне возможны. Независимо от того, используете ли вы трансгенных мышей или мышей дикого типа, рекомендуется учитывать фоновую деформацию. Кроме того, благодаря своему размеру и социальному жилью, мыши дают преимущество в использовании пространства по сравнению с другими видами.
- Воздействие удерживающего напряжения
- Случайным образом распределите мышей по группам управления домашней клеткой, острому стрессу от ограничения свободы или к группам хронического стресса от ограничения.
- Определите продолжительность воздействия стресса. При острых стрессорах используйте один сеанс продолжительностью от 5 минут до 12 часов в удерживающем аппарате. Для хронических стрессоров убедитесь, что сеанс соответствует продолжительности острого стрессора, но повторяется ежедневно в течение от 3 дней до 21 дня.
ПРИМЕЧАНИЕ: Поскольку мыши будут лишены доступа к пище и воде во время содержания в условиях ограничения, подумайте, должны ли животные, контролирующие домашние клетки, также не иметь доступа к пище и воде. - Модифицируйте конические трубки объемом 50 мл, добавив вентиляционные отверстия.
- Используйте дрель с битой 1/8 дюйма, чтобы равномерно распределить отверстия вокруг каждой конической трубы, чтобы обеспечить воздушный поток во всех областях трубы.
- Разместите эти отверстия, чтобы обеспечить доступ мыши к воздуху независимо от того, в какую сторону она смотрит в трубке. Убедитесь, что после модификации не осталось острых краев.
ПРИМЕЧАНИЕ: Эти модифицированные конические трубки должны быть эффективны для большинства взрослых мышей (~20-40 г), но не могут сдерживать мелких/молодых мышей или более крупные штаммы.
- В испытательной комнате, отдельно от содержания животных и поведенческих тестов, поместите животное, которому назначено удерживающее устройство, в модифицированную коническую трубку с прикрепленным колпачком, чтобы удерживать мышь в трубке на заданную продолжительность удерживания.
ПРИМЕЧАНИЕ: Специфика дизайна испытательной комнаты может варьироваться в зависимости от имеющегося пространства на объекте; Помещение может включать в себя вытяжные шкафы и другое лабораторное оборудование и/или лабораторные столы/стенды или быть пустым процедурным кабинетом. Однако, независимо от конфигурации помещения, обстановка в удерживающем помещении должна оставаться неизменной при повторном воздействии средств усмирения, чтобы избежать изменений в реакциях на стресс, вызванных контекстом11. - Поместите удерживающую трубку горизонтально на ровную поверхность. При необходимости закрепите пробирку лабораторной лентой или тазом для пипетки/резервуаром для реагентов, чтобы она не скатывалась вместе с мышью внутри.
Примечание: В условиях стресса мыши издают ультразвуковые звуки. Рассмотрите, требуется ли для дизайна исследования звукоизоляция от других неподвижных субъектов12. Кортикостерон и другие маркеры реакций на стресс следуют циркадным ритмам. Таким образом, следует учитывать условия освещения и время воздействия стрессора. В стрессовых группах сдержанность должна происходить в одно и то же время суток, предпочтительно в начале светового цикла 13,14,15. В исследовании, представленном здесь, мышей удерживали примерно на 3 часа после включения света. - Следите за каждым животным во время удерживающего напряжения не реже одного раза в 20 минут. Визуально определите, проявляет ли животное необычные реакции (замедленное дыхание, недостаток движения). При обнаружении извлеките мышь из удерживающей трубки, обратитесь к ветеринару и исключите мышь из исследования.
- Верните мышь в домашнюю клетку и обеспечьте доступ к еде и воде.
2. Удерживающий стресс у крыс
Как и более крупные грызуны, крысы имеют преимущества, которые следует учитывать при исследовании последствий стресса. Как и у мышей, у крыс есть различные штаммы с дифференциальной реакцией на воздействие стресса16,17. Кроме того, увеличенный размер крыс облегчает использование крыс с определенными поведенческими мерами, например, самостоятельным приемом лекарств.
- Воздействие удерживающего напряжения
- Случайным образом распределите крысу по группам контроля домашней клетки, острому стрессу от ограничения свободы или к группе стресса от хронического ограничения.
- Определите продолжительность воздействия стресса. При острых стрессорах используйте один сеанс продолжительностью от 5 минут до 12 часов в удерживающем аппарате. Для хронических стрессоров убедитесь, что сеанс соответствует продолжительности острого стрессора, но повторяется ежедневно в течение от 3 дней до 21 дня.
ПРИМЕЧАНИЕ: Поскольку крысы будут лишены доступа к пище и воде во время содержания в условиях усмирения, подумайте, должны ли животные, контролирующие домашние клетки, также не иметь доступа к пище и воде. - Для получения имеющейся в продаже удерживающей трубки выполните действия, описанные ниже.
ПРИМЕЧАНИЕ: Имеются в продаже удерживающие трубки для крыс. Эти устройства имеют различные конструкции, включая металлическую проволоку, контейнеры и трубки из пластика / плексигласа с закругленным и плоским дном. Каждый вариант прост в использовании.- Вставьте крысу в устройство, затем вставьте вилку, отрегулированную по размеру объекта, и зафиксируйте ее на месте. При помещении в удерживающую трубку убедитесь, что крыса плотно прилегает, чтобы предотвратить повороты головой к хвосту, но при этом может легко дышать.
ПРИМЕЧАНИЕ: Эти устройства предназначены для сдерживания крыс и не нуждаются в модификации для дыхания. В этом исследовании используется ограничитель хвостовых жил (Table of Materials), который включает в себя присоски на платформе под трубкой для фиксации устройства. Дополнительным преимуществом этого устройства является то, что хвост доступен снаружи устройства для контроля объекта во время введения и извлечения из трубки или забора крови из хвостовой вены во время фиксации.
- Вставьте крысу в устройство, затем вставьте вилку, отрегулированную по размеру объекта, и зафиксируйте ее на месте. При помещении в удерживающую трубку убедитесь, что крыса плотно прилегает, чтобы предотвратить повороты головой к хвосту, но при этом может легко дышать.
- В испытательной комнате, отдельной от содержания животных и поведенческого тестирования, поместите анимы, назначенные для фиксации, в удерживающую трубку на указанную продолжительность удерживания. Поместите удерживающую трубку горизонтально на ровную поверхность.
Примечание: В условиях стресса крысы также издают ультразвуковые звуки. Подумайте, требует ли дизайн исследования звукоизоляции от других неподвижных субъектов. - Следите за каждым животным во время удерживающего напряжения не реже одного раза в 20 минут. Визуально определите, проявляет ли животное необычные реакции (замедленное дыхание, недостаток движения). При обнаружении извлеките крысу из удерживающей трубки, обратитесь к ветеринару и исключите крысу из исследования.
- Верните крысу в домашнюю клетку и обеспечьте доступ к еде и воде.
3. Оценка стресса
- Измерение активации HPA
- При необходимости, после воздействия удерживающего напряжения или извлечения из домашней клетки, быстро обезглавьте субъектов, чтобы собрать кровь из туловища в гепаринизированные пробирки.
- Изолируйте плазму с помощью центрифугирования и храните образцы плазмы при температуре -80 °C. Проанализируйте кортикостерон крови с помощью набора иммуноферментного анализа (ИФА).
ПРИМЕЧАНИЕ: Хотя кортикостерон часто используется для определения тяжести воздействия стресса, особенно острого стресса, уровни кортикостерона не всегда коррелируют с вызванными стрессомизменениями в поведении. Кроме того, реакция оси HPA, регулирующая высвобождение кортикостерона, привыкает к повторному воздействию одного и того же стрессора18. В качестве альтернативы, адренокортикотропный гормон (АКТГ) может быть более надежным показателем интенсивности острого стрессора4. Он остается повышенным в течение примерно часа после прекращения воздействия стрессора, но сильный и продолжительный (примерно > 2 ч) стресс может привести к его выработке.
- Поведенческие эффекты
- Если это уместно, после сдерживания, стресса или удаления из домашней клетки, оцените поведенческие характеристики грызуна с помощью соответствующей поведенческой задачи.
ПРИМЕЧАНИЕ: Дополнительную информацию о влиянии сдержанности на различные поведенческие модели можно найти в разделе обсуждения.
- Если это уместно, после сдерживания, стресса или удаления из домашней клетки, оцените поведенческие характеристики грызуна с помощью соответствующей поведенческой задачи.
- Нейробиология
- В качестве альтернативы или дополнительно оценивайте нейробиологическую функцию после ограничения стресса, воздействия или контроля. Широкий спектр анализов позволяет исследовать влияние удерживающего напряжения на клеточные, синаптические и схемные системы. В зависимости от анализа имплантируйте измерительное устройство in vivo или соберите мозговую ткань для выполнения выбранного анализа.
Примечание: Влияние стресса на специфические для типа клеток изменения в синтезе белка и эпигенетические модификации было тщательно изучено Макьюэноми его коллегами. Эти генетические и белковые модификации вызывают пластичность для изменения синаптических связей и схем. Для проведения этих исследований необходимо собрать ткани мозга после воздействия стресса и выполнить геномный, протеомный, ex vivo физиологический и другие анализы. Кроме того, можно оценить нейробиологические изменения с помощью измерений in vivo, таких как микродиализ, циклическая вольтамперометрия с быстрым сканированием (FSCV), волоконная фотометрия и другие. Эти подходы регистрируют нейрохимическое высвобождение и активацию нейронов как после воздействия удерживающего напряжения 2,19, так и в настоящее время во время ограничения 8,9,20. Набор инструментов для оценки нейробиологических механизмов, лежащих в основе эффектов удерживающего стресса, быстро расширяется, что позволяет по-новому взглянуть на сложности стресса.
- В качестве альтернативы или дополнительно оценивайте нейробиологическую функцию после ограничения стресса, воздействия или контроля. Широкий спектр анализов позволяет исследовать влияние удерживающего напряжения на клеточные, синаптические и схемные системы. В зависимости от анализа имплантируйте измерительное устройство in vivo или соберите мозговую ткань для выполнения выбранного анализа.
Результаты
В ранее опубликованном исследовании21 процедуры сдерживающего стресса, описанные в этой рукописи, были использованы для оценки влияния сдерживающего стресса на регуляцию кортизола и норадреналина, попадая в широкие возможности изменений в нейробиологии, индуцированных стрессом, упомянутые в протоколе 3.3. В этом исследовании мы использовали описанный выше протокол для ограничения мышей. Дополнительные детали, выходящие за рамки специализации этой статьи, например, обоснование области мозга, параметры оптогенетической стимуляции или FSCV, можно найти в рукописи, на которую сделана ссылка.
Мы использовали самцов и самок трансгенных мышей (DBH:Cre+/-::Ai32+/-), селективно экспрессирующих каналродопсин в норадренергических нейронах, и измеряли стимулированное высвобождение норадреналина в ядре ложа терминальной полосы (BNST) с помощью ex vivo FSCV21. Мышей удерживали, как описано в протоколе 1, остро (2 ч) и хронически (2 ч/день в течение 5 дней) или в домашних условиях. После контакта у некоторых субъектов была взята кровь для анализа кортикостерона, как описано в протоколе 3.1. Сразу после острого удерживающего стресса у мышей наблюдался повышенный уровень кортикостерона, но реакция притуплялась после повторного стресса (см. Рисунок 1). Дополнительные мыши были использованы для оценки влияния удерживающего напряжения на высвобождение норадреналина. Через 24 часа после окончательного воздействия стресса ткань мозга была быстро собрана и разрезана для регистрации выброса норадреналина в BNST. Интересно, что острое ограничение не влияло на стимулированное высвобождение норадреналина, но повторное воздействие стресса вызывало значительное увеличение стимулированного высвобождения норадреналина по всем параметрам стимуляции (см. Рисунок 2). Эти результаты согласуются с предыдущими исследованиями влияния удерживающего стресса на высвобождение норадреналина у крыс с использованием подходов, описанных в протоколе 217,22.

Рисунок 1: Кортикостерон в плазме домашних клеток (наивных) и после острого (однократного) и хронического (повторяющегося) удерживающего стресса. После одного 2-часового сеанса острого удерживающего стресса уровни кортикостерона в плазме крови были повышены по сравнению с пациентами с наивным и повторным стрессом. Результаты выражаются в виде среднего значения ± SEM. N = 5-6 мышей в группе. **p < 0,05, ***p < 0,005. Этот рисунок был изменен с разрешения Schmidt et al.21. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этой цифры.
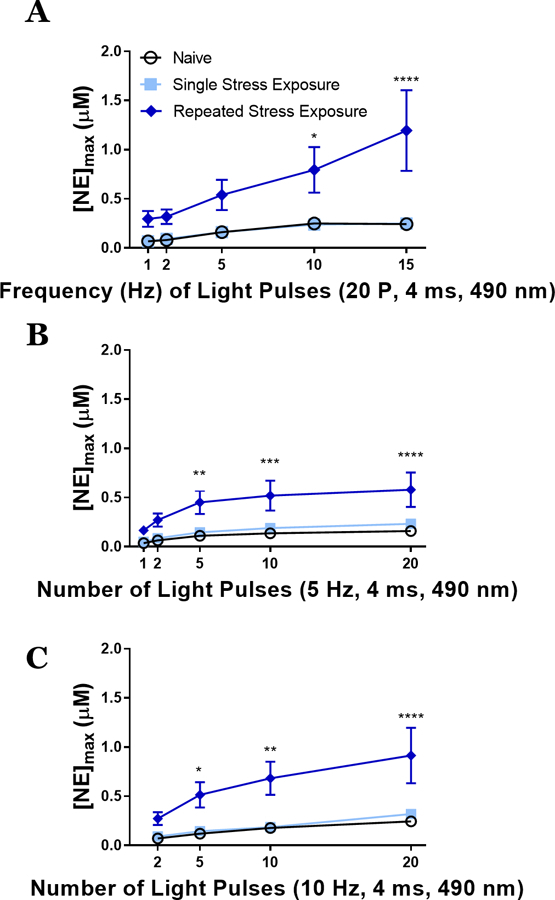
Рисунок 2: Оптогенетически стимулированное высвобождение норадреналина увеличивается после хронического (повторяющегося) удерживающего стресса. На следующий день после окончательного воздействия стресса была проведена циклическая вольтамперометрия ex vivo с быстрым сканированием для измерения оптогенетически стимулированного высвобождения норадреналина в ядре ложа терминальной полосы мышей. (А) Изменения частоты (Гц) 20 импульсов (20 Р) стимуляции высвобождали больше норадреналина в группе повторного стресса. (В, В) Вариации числа импульсов (2-20) при частоте стимуляции 5 Гц (В) или 10 Гц (С) указывали на большее высвобождение норадреналина в группе повторного стресса. Среднее значение ± SEM; n = 5−6 мышей на группу, дающих 7−8 срезов на группу. *p < 0,05, **p < 0,05, ***p < 0,005 и ****p < 0,0001. Этот рисунок был изменен с разрешения Schmidt et al.21. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этой цифры.
Обсуждение
Чтобы исследовать влияние стресса на физиологические, нейробиологические и поведенческие функции в моделях грызунов, необходимо использовать условия, которые вызывают стресс у грызунов. К числу этих соображений относятся условия, которые вызывают стрессовые реакции у субъекта. Сдерживание является валидированной процедурой для создания физиологических и поведенческих реакций у грызунов, соответствующих стрессовым эффектам у людей. Используя методологию, аналогичную данному протоколу, сдержанность была использована для оценки ряда молекулярных, клеточных, эндокринных и физиологических реакций, связанных с моделями психических расстройств, включая тревогу, депрессию, боль и расстройство, связанное с употреблением психоактивных веществ. Здесь данные одного опубликованного исследования представлены в качестве примера сдержанности у грызунов, но эффекты сдержанности выходят за рамки этого конкретного примера и распространяются на широкий спектр зависимых мер. Ограничитель может быть выбран для использования в качестве стрессора, потому что его легко применять на мышах и крысах, он недорог в установке и адаптируется для вызова различных уровней стрессовых реакций в зависимости от используемых параметров.
По сравнению с другими подходами, вызывающими напряжение, ограничение имеет некоторые ограничения, которые необходимо учитывать при планировании исследования 4,23. Примечательно, что сдерживающий стресс не всегда вызывает изменения в поведении, наблюдаемые при использовании других физических стрессоров, таких как прерывистый удар ногой24. Эти несоответствия могут быть результатом преимущества ограничения, заключающегося в том, что он может возникать в различных условиях, в то время как удар ногой больше ограничен испытательной камерой, оснащенной полами с ударной решеткой. Стрессовые контексты оказывают значительное влияние на результирующие эффекты11. Кроме того, удержание внутри традиционной удерживающей трубки или устройства является недостатком, поскольку оно ограничивает доступ к объекту во время удерживания. Были разработаны новые удерживающие устройства, например, "REcording Signal TRansients ACCessible IN a Tube (RESTRAINT)", чтобы преодолеть это ограничение и обеспечить привязку для сбора нейробиологических данных во время сеансов фиксации 8,9,20. Другой подход к устранению этого препятствия использует иммобилизационный стресс как технику, аналогичную сдерживанию - часто иммобилизация и удерживание используются как синонимы, но сважными различиями. Иммобилизационный стресс включает в себя закрепление рук, ног и головы животного на поверхности, в то время как удерживающий фактор включает в себя помещение внутрь ограничительного устройства. Таким образом, иммобилизационный стресс ограничивает движение, обеспечивая при этом доступ к объекту для сбора крови, спинномозговой жидкости, зрачковых реакций или других физиологических эффектов, которые могут представлять интерес для исследований стресса. Дополнительные стрессоры, которые были использованы для индуцирования стресса у грызунов, включают холодовой стресс окружающей среды, введение фармакологических агентов, таких как кортикостерон или йохимбин, этологически значимый опыт социального поражения или воздействия запаха хищника, а также мультимодальный стресс, такой как хронический непредсказуемый стресс (CUS). Эти альтернативные модальности напряжения выбраны для использования из-за их преимуществ при моделировании конкретных аспектов напряжения. Например, несмотря на то, что ограничение является одним из аспектов моделей КУС у мышей и крыс26, эффекты КУС могут отличаться от эффектов, вызванных эквивалентным воздействием хронического удерживающего стресса27,28. Предсказуемость повторного ограничения снижает реакцию на будущие эпизоды ограничения, что ограничивает эффективность гомотипического напряжения ограничения. В качестве альтернативы, CUS и другие гетеротипические модели стресса чередуют стрессоры или контексты для минимизации привыкания11,18. Эти непредсказуемые модели стресса могут лучше моделировать аспекты психических состояний человека, чтобы полностью инкапсулировать потерю контроля и ожиданий. Еще одним недостатком сдержанности, с которым лучше справляются другие методы борьбы со стрессом, является социальный вклад в восприимчивость к стрессу и буферизацию стресса 29,30,31. Грызуны и люди являются социальными животными с конспецифическими отношениями и иерархией. Хотя стресс ограничения не включает в себя социализацию, психосоциальные стрессоры, такие как стресс социального поражения, являются этологически значимым стрессором для грызунов 32,33,34.
При использовании удерживающего напряжения интенсивность и повторяемость введения являются параметром, которым можно манипулировать5. Для создания более прочного удерживающего напряжения для разработки исследования может потребоваться более длительное время нахождения в удерживающем устройстве. От 5 минут до 12 часов возможны параметры как для острых, так и для длительных сеансов фиксации, соответственно35,36. После того, как определена продолжительность удерживающего воздействия, повторение стрессора также может быть фактором, вызывающим различные уровни напряжения35,37. Следует отметить, что повторяющиеся удерживающие напряжения не обязательно означают усиление наблюдаемых эффектов. Часто повторяющиеся удерживающие напряжения привыкают или иным образом снижают реакцию на стресс18. В представленных здесь данных мы наблюдали привыкание с реакцией кортикостерона на повторное удерживающее напряжение, в то же время мы измеряли различия в стимулированном высвобождении норадреналина только в группе повторного воздействия стресса. Таким образом, последствия повторного ограничения должны быть тщательно исследованы, прежде чемопределять эффекты привыкания.
Кроме того, необходимо учитывать последствия жилищных условий, использованных в исследованиях с использованием удерживающего напряжения. Взаимодействие со стрессовыми сородичами влияет на стрессовые реакции у грызунов 30,38,39. Таким образом, для поддержания согласованной реакции между экспериментальными группами, испытуемые должны содержаться либо индивидуально, либо в группе, где все соседи по клетке должны испытывать одно и тоже стрессовое состояние. Важно отметить, что недостатком такого подхода к социальной изоляции всех субъектов является то, что жилье с социальной изоляцией также является стрессором40,41. Однако, независимо от жилищных условий, воздействие стресса должно происходить изолированно, если это возможно, чтобы предотвратить социальную буферизацию стресса, влияющуюна исходные показатели. Наряду с этими жилищными условиями, следует учитывать время воздействия напряжений по отношению к световым циклам окружающей среды14,15. Какотмечается в некоторых исследованиях, уровни кортикостероидов соответствуют циркадным ритмам, поэтому введение стрессоров в разное время светового цикла может привести к непоследовательным эффектам. Таким образом, установление и поддержание равномерного времени начала схватки имеет важное значение. Например, в одной статье, посвященной изучению влияния стресса при физической нагрузке на циркадный контроль кортикостерона, показано, что у контрольных мышей кортикостерон достигает пика в конце светового цикла, но у стрессовых мышей кортикостерон остается повышенным без стабильного пика13. В свете этих выводов, рекомендуется подвергать грызунов стрессу на ранних этапах светового цикла, чтобы получить наибольший эффект.
Помимо параметров удерживающих условий, характеристики животного также важно учитывать в исследованиях с использованием ограничивающих стрессоров. Например, в многочисленных исследованиях сообщалось о половых различиях с использованием удерживающего стресса 12,35,37,42,43,44. Понимание механизмов, лежащих в основе этих различий, заслуживает изучения и может привести к лучшим результатам справедливого лечения, когда люди испытывают стресс. Возможно, женщины и мужчины по-разному переживают и обрабатывают стрессоры, что приводит к росту тревожности и депрессии у женщин44. Например, сдерживающий стресс снижает успеваемость у мужчин, но повышает успеваемость у женщин45. Исторически сложилось так, что исследования сдерживающего стресса у грызунов ограничивали их объектами самцами, но в дальнейшем мы должны планировать эксперименты с участием представителей обоих полов. Еще одной характеристикой объекта, которую следует учитывать при планировании экспериментов с использованием ограничительных (и других) стрессоров у мышей или крыс, является штамм 46,47,48,49,50,51. Деформационные эффекты наблюдались в ряде парадигм, при этом некоторые деформации демонстрировали усиленную реакцию на ограничивающий стресс. Наконец, при использовании удерживающего напряжения следует учитывать возраст субъекта. От пренатального воздействия стресса при сдерживании беременной матери до сдержанности в пожилом возрасте, сдерживающий стресс может быть адаптирован к любому моменту времени. Различия в реакции на стресс были показаны на протяжении всей жизни 45,52,53,54,55,56. В дополнение к требованию различных удерживающих устройств для адаптации к изменениям размера тела по мере старения, при использовании удерживающих стрессоров следует учитывать возрастные переживания стресса.
Выбор подходящего критерия исхода, будь то поведенческая задача, описанная в 3.2, или нейробиологическая переменная, описанная в 3.3, требует рассмотрения. Во-первых, было показано, что острое, умеренное воздействие стресса повышает производительность в некоторых учебных задачах, но интенсивное или хроническое воздействие стресса ухудшает производительностьв задачах обучения и памяти. Считается, что эти сдвиги в когнитивных способностях регулируются нарушением регуляции цепей между префронтальной корой, миндалевидным телом и гиппокампом. Тем не менее, влияние ограничительного стресса на когнитивную гибкость более смешано с противоречивыми результатами, препятствующими четкой картине того, как различные параметры ограничения влияют на обратное обучение или сдвигмножества. Что касается поведенческих эффектов наркотиков, было показано, что стресс сдержанности, как и другие стрессоры, увеличивает поведение, связанное с расстройством, связанным с употреблением психоактивных веществ, вряде классов наркотиков. Тем не менее, эти эффекты в некоторой степени избирательны в том смысле, что сдерживающий стресс не приводит к поиску наркотиков в моделях рецидива, основанных на оперантном обусловливании, но увеличивает ассоциативное обучение эффектам наркотиков, измеряемых условными заданиями на предпочтение места, включая восстановление60. Считается, что это расхождение возникает из-за того, что удерживающие устройства создают другой контекст, чем камеры оперантного кондиционирования, в то время как ударное напряжение ногой может возникать в оперантной среде. Чтобы преодолеть это ограничение, сочетание воздействия стресса с сигналами, которые могут быть представлены во время сеансов оперантного самовведения, продемонстрировало вызванное стрессом увеличение приема наркотикови поиска наркотиков. Влияние хронического ограничения на поведение, связанное с наркотиками, менее хорошо изучено. Рассматривая модели аффективных расстройств, таких как тревога и депрессия, как у людей, так и на животных, воздействие стресса увеличивает показатели тревоги. У грызунов оценка тревожности при сдерживающем стрессе включает в себя реакции тигмотаксиса в аппарате открытого поля, измеряемые путем отслеживания локомоторной реакции животного вдоль стен на арене по сравнению с центром. Животные, проявляющие тревожное поведение после сдерживания, будут проводить больше времени вблизи бортов и иметь меньше центральных переходов. Еще один подход к измерению тревожности — лабиринт с повышенным плюсом. Для выполнения этой задачи используется аппарат в форме креста, приподнятый примерно на 3 фута над полом. Два плеча аппарата включают в себя стеновые барьеры; Два рычага имеют открытые стороны. Животные, проявляющие тревожное поведение, будут проводить больше времени в закрытых объятиях, чем в раскрытых объятиях62,63. Поведение, подобное депрессии, оценивается с помощью задания на принудительное плавание, в котором грызунов помещают в цилиндр с водой и измеряют на предмет реакции борьбы по сравнениюс плавающими реакциями. Вопрос отом, является ли прекращение борьбы за бегство действительно депрессивным поведением, был поставлен под сомнение, однако эта задача показала свою полезность в качестве скрининга для приема антидепрессантов. Депрессивное поведение также может быть оценено по вызванному стрессомснижению предпочтения сахарозы. Эти изменения в потреблении сладкой жидкости принимаются за оценку ангедонических аспектов клинической депрессии.
Подводя итог, можно сказать, что сдерживание у мышей и крыс является валидированной процедурой для создания реакций на стресс и тревогу в исследованиях физиологии, генетики, иммунологии и нейробиологии. По сравнению с другими стресс-индуцированными подходами, сдержанность недорога, проста в исполнении, полезна для моделирования аспектов человеческих расстройств, включая тревогу, депрессию, расстройство, связанное с употреблением психоактивных веществ, и посттравматическое стрессовое расстройство, и может быть адаптирована с широким спектром параметров. По этим причинам удерживающее напряжение продолжает оставаться полезным методом определения влияния стресса на грызунов.
Раскрытие информации
Нет конфликтов интересов, о которых можно было бы сообщить.
Благодарности
Я ценю редакционные отзывы, предоставленные Холли Рахураху и Сэмом Шаффером.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| 50 мл Универсальный завинчивающийся колпачок Коническая трубка | Глобус Scientific | 6288 | |
| Одноразовая пипетка Бассейн | Fisher Scientific | 13-681-500 | |
| ИФА Набор для кортикостерона | Беседка Анализы | K014-H | |
| Tailveiner Ограничитель Трубка | Braintree Scientific | RTV |
Ссылки
- McEwen, B. S., et al. Mechanisms of stress in the brain. Nat Neurosci. 18 (10), 1353-1363 (2015).
- Snyder, A. E., Silberman, Y. Corticotropin releasing factor and norepinephrine related circuitry changes in the bed nucleus of the stria terminalis in stress and alcohol and substance use disorders. Neuropharmacology. 201, 108814(2021).
- Morilak, D. A., et al. Role of brain norepinephrine in the behavioral response to stress. Prog Neuropsychopharmacol Biol Psychiatry. 29 (8), 1214-1224 (2005).
- Bali, A., Jaggi, A. S. Preclinical experimental stress studies: protocols, assessment and comparison. Eur J Pharmacol. 746, 282-292 (2015).
- Buynitsky, T., Mostofsky, D. I. Restraint stress in biobehavioral research: Recent developments. Neurosci Biobehavior Rev. 33 (7), 1089-1098 (2009).
- Grissom, N., Kerr, W., Bhatnagar, S. Struggling behavior during restraint is regulated by stress experience. Behav Brain Res. 191 (2), 219-226 (2008).
- Patel, S., Roelke, C. T., Rademacher, D. J., Hillard, C. J. Inhibition of restraint stress-induced neural and behavioural activation by endogenous cannabinoid signalling. Eur J Neurosci. 21 (4), 1057-1069 (2005).
- Luchsinger, J. R., et al. Delineation of an insula-BNST circuit engaged by struggling behavior that regulates avoidance in mice. Nat Commun. 12 (1), 3561(2021).
- Joffe, M. E., et al. Acute restraint stress redirects prefrontal cortex circuit function through mGlu5 receptor plasticity on somatostatin-expressing interneurons. Neuron. 110 (6), 1068-1083.e5 (2022).
- National Research Council (US) Committee for the Update of the Guide for the Care and Use of Laboratory Animals. Guide for the Care and Use of Laboratory Animals. , National Academies Press. Washington, DC. (2011).
- Grissom, N., Iyer, V., Vining, C., Bhatnagar, S. The physical context of previous stress exposure modifies hypothalamic-pituitary-adrenal responses to a subsequent homotypic stress. Horm Behav. 51 (1), 95-103 (2007).
- Fetterly, T. L., et al. α2A-Adrenergic receptor activation decreases parabrachial nucleus excitatory drive onto BNST CRF neurons and reduces their activity in vivo. J Neurosci. 39 (3), 472-484 (2019).
- Barriga, C., Martín, M. I., Tabla, R., Ortega, E., Rodríguez, A. B. Circadian rhythm of melatonin, corticosterone and phagocytosis: effect of stress. J Pineal Res. 30 (3), 180-187 (2001).
- Rybkin, I. I., Zhou, Y., Volaufova, J., Smagin, G. N., Ryan, D. H., Harris, R. B. S. Effect of restraint stress on food intake and body weight is determined by time of day. Am J Physiol. 273 (5), R1612-R1622 (1997).
- Bartlang, M. S., et al. Time matters: pathological effects of repeated psychosocial stress during the active, but not inactive, phase of male mice. J Endocrinol. 215 (3), 425-437 (2012).
- McElligott, Z. A., et al. Noradrenergic synaptic function in the bed nucleus of the stria terminalis varies in animal models of anxiety and addiction. Neuropsychopharmacology. 38 (9), 1665-1673 (2013).
- Pardon, M. -C., et al. Stress reactivity of the brain noradrenergic system in three rat strains differing in their neuroendocrine and behavioral responses to stress: implications for susceptibility to stress-related neuropsychiatric disorders. Neuroscience. 115 (1), 229-242 (2002).
- Grissom, N., Bhatnagar, S. Habituation to repeated stress: Get used to it. Neurobiol Learn Mem. 92 (2), 215-224 (2009).
- Ma, M., Chang, X., Wu, H. Animal models of stress and stress-related neurocircuits: A comprehensive review. Stress Brain. 1 (2), 108-127 (2021).
- Williford, K. M., et al. BNST PKCδ neurons are activated by specific aversive conditions to promote anxiety-like behavior. Neuropsychopharmacology. 48 (7), 1031-1041 (2023).
- Schmidt, K. T., et al. Stress-induced alterations of norepinephrine release in the bed nucleus of the stria terminalis of mice. ACS Chem Neurosci. 10 (4), 1908-1914 (2019).
- Cecchi, M., Khoshbouei, H., Javors, M., Morilak, D. A. Modulatory effects of norepinephrine in the lateral bed nucleus of the stria terminalis on behavioral and neuroendocrine responses to acute stress. Neuroscience. 112 (1), 13-21 (2002).
- López-Moraga, A., Beckers, T., Luyten, L. The effects of stress on avoidance in rodents: An unresolved matter. Front Behav Neurosci. 16, 983026(2022).
- Mantsch, J. R., Baker, D. A., Funk, D., Lê, A. D., Shaham, Y. Stress-induced reinstatement of drug seeking: 20 years of progress. Neuropsychopharmacology. 41 (1), 335-356 (2016).
- Molina, P., Andero, R., Armario, A. Restraint or immobilization: A comparison of methodologies for restricting free movement in rodents and their potential impact on physiology and behavior. Neurosci Biobehav Rev. 151, 105224(2023).
- Burstein, O., Doron, R. The unpredictable chronic mild stress protocol for inducing anhedonia in mice. J Vis Exp. (140), e58184(2018).
- Haile, C. N., GrandPre, T., Kosten, T. A. Chronic unpredictable stress, but not chronic predictable stress, enhances the sensitivity to the behavioral effects of cocaine in rats. Psychopharmacology. 154 (2), 213-220 (2001).
- Marin, M. T., Cruz, F. C., Planeta, C. S. Chronic restraint or variable stresses differently affect the behavior, corticosterone secretion and body weight in rats. Physiol Behav. 90 (1), 29-35 (2007).
- Kikusui, T., Winslow, J. T., Mori, Y. Social buffering: relief from stress and anxiety. Philos Trans R Soc Lond B Biol Sci. 361 (1476), 2215-2228 (2006).
- Watanabe, S. Social factors modulate restraint stress induced hyperthermia in mice. Brain Res. 1624, 134-139 (2015).
- DeVries, A. C., Glasper, E. R., Detillion, C. E. Social modulation of stress responses. Physiol Behav. 79 (3), 399-407 (2003).
- Martinez, M., Calvo-Torrent, A., Pico-Alfonso, M. A. Social defeat and subordination as models of social stress in laboratory rodents: A review. Aggr Behav. 24 (4), 241-256 (1998).
- Golden, S. A., Covington, H. E., Berton, O., Russo, S. J. A standardized protocol for repeated social defeat stress in mice. Nat Protoc. 6 (8), 1183-1191 (2011).
- Koolhaas, J. M., De Boer, S. F., Buwalda, B., Meerlo, P. Social stress models in rodents: Towards enhanced validity. Neurobiol Stress. 6, 104-112 (2017).
- Albonetti, M. E., Farabollini, F. Behavioural responses to single and repeated restraint in male and female rats. Behav Processes. 28 (1-2), 97-109 (1992).
- Glaser, R., Kiecolt-Glaser, J. K. Stress-induced immune dysfunction: implications for health. Nat Rev Immunol. 5 (3), 243-251 (2005).
- Olave, F. A., et al. Chronic restraint stress produces sex-specific behavioral and molecular outcomes in the dorsal and ventral rat hippocampus. Neurobiol Stress. 17, 100440(2022).
- Zalaquett, C., Thiessen, D. The effects of odors from stressed mice on conspecific behavior. Physiol Behav. 50 (1), 221-227 (1991).
- Sterley, T. -L., et al. Social transmission and buffering of synaptic changes after stress. Nat Neurosci. 21 (3), 393-403 (2018).
- Bartolomucci, A., et al. Individual housing induces altered immuno-endocrine responses to psychological stress in male mice. Psychoneuroendocrinology. 28 (4), 540-558 (2003).
- Krohn, T., Sørensen, D., Ottesen, J., Hansen, A. The effects of individual housing on mice and rats: a review. Anim Welf. 15 (4), 343-352 (2006).
- Chadda, R., Devaud, L. L. Differential effects of mild repeated restraint stress on behaviors and GABAA receptors in male and female rats. Pharmacol Biochem Behav. 81 (4), 854-863 (2005).
- Perrot-Sinal, T. S., Gregus, A., Boudreau, D., Kalynchuk, L. E. Sex and repeated restraint stress interact to affect cat odor-induced defensive behavior in adult rats. Brain Res. 1027 (1-2), 161-172 (2004).
- Ter Horst, G. J., Wichmann, R., Gerrits, M., Westenbroek, C., Lin, Y. Sex differences in stress responses: Focus on ovarian hormones. Physiol Behav. 97 (2), 239-249 (2009).
- Bowman, R. E. Stress-induced changes in spatial memory are sexually differentiated and vary across the lifespan. J Neuroendocrinol. 17 (8), 526-535 (2005).
- Beery, A. K., Holmes, M. M., Lee, W., Curley, J. P. Stress in groups: Lessons from non-traditional rodent species and housing models. Neurosci Biobehav Rev. 113, 354-372 (2020).
- Armario, A., et al. Differential hypothalamic-pituitary-adrenal response to stress among rat strains: Methodological considerations and relevance for neuropsychiatric research. Curr Neuropharmacol. 21 (9), 1906-1923 (2023).
- O'Mahony, C. M., Clarke, G., Gibney, S., Dinan, T. G., Cryan, J. F. Strain differences in the neurochemical response to chronic restraint stress in the rat: Relevance to depression. Pharmacol Biochem Behav. 97 (4), 690-699 (2011).
- O'Mahony, C. M., Sweeney, F. F., Daly, E., Dinan, T. G., Cryan, J. F. Restraint stress-induced brain activation patterns in two strains of mice differing in their anxiety behaviour. Behav Brain Res. 213 (2), 148-154 (2010).
- Mozhui, K., et al. Strain differences in stress responsivity are associated with divergent amygdala gene expression and glutamate-mediated neuronal excitability. J Neurosci. 30 (15), 5357-5367 (2010).
- Fox, M. E., Studebaker, R. I., Swofford, N. J., Wightman, R. M. Stress and drug dependence differentially modulate norepinephrine signaling in animals with varied HPA axis function. Neuropsychopharmacology. 40 (7), 1752-1761 (2015).
- Novais, A., Monteiro, S., Roque, S., Correia-Neves, M., Sousa, N. How age, sex and genotype shape the stress response. Neurobiol Stress. 6, 44-56 (2017).
- McEwen, B. S., Morrison, J. H. The brain on stress: Vulnerability and plasticity of the prefrontal cortex over the life course. Neuron. 79 (1), 16-29 (2013).
- Sadler, A. M., Bailey, S. J. Repeated daily restraint stress induces adaptive behavioural changes in both adult and juvenile mice. Physiol Behavi. 167, 313-323 (2016).
- Doremus-Fitzwater, T. L., Varlinskaya, E. I., Spear, L. P. Social and non-social anxiety in adolescent and adult rats after repeated restraint. Physiol Behav. 97 (3-4), 484-494 (2009).
- Brown, G. R., Spencer, K. A. Steroid hormones, stress and the adolescent brain: A comparative perspective. Neuroscience. 249, 115-128 (2013).
- Arnsten, A. F. T. Stress signalling pathways that impair prefrontal cortex structure and function. Nat Rev Neurosci. 10 (6), 410-422 (2009).
- Hurtubise, J. L., Howland, J. G. Effects of stress on behavioral flexibility in rodents. Neuroscience. 345, 176-192 (2017).
- Giovanniello, J., Bravo-Rivera, C., Rosenkranz, A., Matthew Lattal, K. Stress, associative learning, and decision-making. Neurobiol Learn Mem. 204, 107812(2023).
- Sinha, R., Shaham, Y., Heilig, M. Translational and reverse translational research on the role of stress in drug craving and relapse. Psychopharmacology. 218 (1), 69-82 (2011).
- Carter, J. S., et al. Long-term impact of acute restraint stress on heroin self-administration, reinstatement, and stress reactivity. Psychopharmacology. 237 (6), 1709-1721 (2020).
- Cecchi, M., Khoshbouei, H., Morilak, D. A. Modulatory effects of norepinephrine, acting on alpha 1 receptors in the central nucleus of the amygdala, on behavioral and neuroendocrine responses to acute immobilization stress. Neuropharmacology. 43 (7), 1139-1147 (2002).
- Khoshbouei, H., Cecchi, M., Morilak, D. A. Modulatory effects of galanin in the lateral bed nucleus of the stria terminalis on behavioral and neuroendocrine responses to acute stress. Neuropsychopharmacology. 27 (1), 25-34 (2002).
- Yankelevitch-Yahav, R., Franko, M., Huly, A., Doron, R. The forced swim test as a model of depressive-like behavior. J Vis Experiments. (97), e52587(2015).
- Molendijk, M. L., De Kloet, E. R. Immobility in the forced swim test is adaptive and does not reflect depression. Psychoneuroendocrinology. 62, 389-391 (2015).
- Mao, Y., Xu, Y., Yuan, X. Validity of chronic restraint stress for modeling anhedonic-like behavior in rodents: a systematic review and meta-analysis. J Int Med Res. 50 (2), 03000605221075816(2022).
Перепечатки и разрешения
