Злоупотребление алкоголем ухудшает иммунитет альвеолярных макрофагов (АМ) из-за угнетения митохондриального дыхания и биоэнергетики. Недавно мы продемонстрировали, что воздействие этанола (EtOH) увеличивает зависимость от глутамина для митохондриального дыхания при АМ. В данной работе представлены методы определения использования глутамина для митохондриального дыхания в АМ, обработанных EtOH, с использованием биоанализатора внеклеточного потока.
Методическая статья
Оценка глутамина в качестве источника топлива для альвеолярных макрофагов, подвергшихся воздействию хронического этанола, с помощью биоанализатора внеклеточного потока
В этой статье
Краткое содержание
Аннотация
Альвеолярные макрофаги (АМ) являются первой линией клеточной защиты нижних дыхательных путей от патогенов. Тем не менее, хроническое и чрезмерное употребление алкоголя ухудшает способность АМ фагоцитировать и выводить патогены из альвеолярного пространства, отчасти из-за нарушения регуляции топливного метаболизма и биоэнергетики. Наша предыдущая работа показала, что хроническое потребление этанола (EtOH) ухудшает митохондриальную биоэнергетику и повышает уровень лактата в АМ. Кроме того, недавно мы продемонстрировали, что EtOH увеличивает зависимость от глютамина и глютамин-зависимое максимальное дыхание при одновременном снижении гибкости, переходя от пируват-зависимого дыхания к глутамин-зависимому дыханию. Глутаминолиз является важным компенсаторным путем для митохондриального дыхания, когда пируват используется для производства молочной кислоты или когда других источников топлива недостаточно. Используя мышиную линию АМ-клеток, MH-S клетки, подвергшиеся воздействию либо отсутствия EtOH, либо EtOH (0,08%) в течение 72 ч, мы определили зависимость митохондриального дыхания и биоэнергетики от глутамина в качестве источника топлива с помощью биоанализатора внеклеточного потока. Измерения в режиме реального времени проводили в ответ на бис-2-(5-фенилацетамидо-1,3,4-тиадиазол-2-ил) этилсульфид (BPTES), ингибитор глутаминазы 1, который предотвращает ферментативное превращение глутамина в глутамат, в носителе среды или в ответ только на носитель, с последующим тестированием митохондриального стресса. Пошаговый протокол, представленный в настоящем документе, описывает наши методы и расчеты для анализа средних уровней глутамин-зависимого базального митохондриального дыхания, митохондриального АТФ-связанного дыхания, максимального митохондриального дыхания и митохондриальной резервной дыхательной способности в нескольких биологических и экспериментальных репликациях.
Введение
Расстройство, связанное с употреблением алкоголя (AUD), затрагивает более 28 миллионов человек в Соединенных Штатах1. У людей с AUD вероятность развития респираторных инфекций в 2-4 раза выше2,3, что повышает риск преждевременной заболеваемости и смертности 3,4,5. Злоупотребление алкоголем повышает восприимчивость к респираторным инфекциям, отчасти за счет подавления иммунной функции легких. Альвеолярные макрофаги (АМ) являются первой линией клеточной защиты от патогенов в нижних отделах легких, где они фагоцитируют и выводят вдыхаемые микробы. Тем не менее, хроническое употребление алкоголя ухудшает способность аддитивных средств поглощать и убивать патогенные микроорганизмы 6,7.
Иммунные функции АМ, такие как фагоцитоз, являются энергоемкими процессами, требующими метаболически активных путей, необходимых для образования высокого уровня аденозинтрифосфата (АТФ). Митохондриальное окислительное фосфорилирование является наиболее эффективным клеточным процессом для производства АТФ, но хроническое воздействие этанола (EtOH) увеличивает окислительный стресс митохондриального происхождения, что может привести к митохондриальной дисфункции в AMs 8,9,10. Митохондриальное дыхание, измеренное с помощью клеточной скорости потребления кислорода (OCR), может быть количественно определено с помощью биоанализатора внеклеточного потока в режиме реального времени. Для определения митохондриальной биоэнергетики используются профили митохондриального дыхания, оцененные в ответ на олигомицин (ингибитор АТФ-синтазы), карбонильцианид--трифторметоксифенилгидразон (FCCP, развязка протонов) и ротенон/антимицин А (r/a, ингибиторы митохондриального комплекса I и III соответственно). Хронический EtOH снижает митохондриальную биоэнергетику в АМ, о чем свидетельствует снижение митохондриального базального дыхания, АТФ-связанного дыхания, максимального дыхания и резервной дыхательной способности10.
Клетки имеют различные уровни зависимости от источников топлива, таких как пируват, глутамин или жирные кислоты, для производства АТФ. Они также обладают уровнем гибкости, благодаря которому они могут переключать использование топлива для регулирования клеточной биоэнергетики. Глутаминолиз является ключевым путем для митохондриального дыхания, особенно когда пируват шунтируется в направлении производства молочной кислоты или когда жирных кислот недостаточно. Наше недавнее исследование показало, что хроническое воздействие этиона увеличивает зависимость АМ от глутамина и снижает гибкость АМ при использовании глутамина и других источников топлива для митохондриальногодыхания. Эти результаты, наряду с данными, свидетельствующими о том, что обработка MH-S клеток, подвергшихся воздействию EtOH, ингибитором окисления пирувата UK5099 не изменяла митохондриальную биоэнергетику по сравнению с MH-S клетками, подвергшимися воздействию контрольной среды, обработанными UK5099, свидетельствуют о переходе от пируват-зависимого дыхания к глутамин-зависимому дыханию в клетках MH-S с EtOH. Однако этого сдвига недостаточно для удовлетворения биоэнергетических потребностей АД11. В данной работе мы описываем методы оценки глутамина в качестве источника топлива для митохондриального дыхания в АМ, подвергшихся воздействию хронического этиленоксида, с использованием биоанализатора внеклеточного потока. Этот протокол был создан и оптимизирован для формата 96 лунок (площадь 11,04мм2 ) и должен быть скорректирован для больших размеров лунок клеточных культур. Зависимость глутамина от митохондриальной биоэнергетики определена с помощью бис-2-(5-фенилацетамидо-1,3,4-тиадиазол-2-ил) этилсульфида (BPTES, ингибитор глутаминазы 1) для селективного ингибирования ферментативного превращения глутамина в глутамат. Данные, представленные в этом исследовании, представляют собой дополнительные биологические репликации для контрольных и обработанных BPTES экспериментальных групп необработанной контрольной и хронической линии мышиных AM-клеток, MH-S, подвергшихся воздействию EtOH, которые опубликованы в Crotty et al.11.
Протокол
1. Хроническое воздействие этиона in vitro
- Культивирование MH-S клеток, линии альвеолярных макрофагов мыши, в полной среде, содержащей RPMI-1640 с 10% фетальной бычьей сыворотки, 1% пенициллин/стрептомицина, 11,9 мМ бикарбоната натрия, 40 мг/мл гентамицина и 50 мкМ 2-меркаптоэтанола при 37°C с 5%CO2 в увлажненном инкубаторе.
- Культивируемые MH-S клетки с EtOH или без него (0,8 мг/мл или 0,08%) в течение 72 ч, при этом EtOH следует менять каждые 24 ч. Инкубировать MH-S клетки, обработанные EtOH, при 37 °C с 5% CO2 в отдельном увлажненном инкубаторе, содержащем 0,08% EtOH в воде инкубатора.
2. Гальванизация MH-S клеток для оценки глутамина в качестве источника топлива с помощью биоанализатора внеклеточного потока
- Убедитесь, что необработанные контрольные (Con)- и хронические MH-S клетки, обработанные EtOH, выращиваются по крайней мере до 50% конфлюенции (идеально 70%-90% конфлюенции) в колбах T-75 для прохождения в 96-луночный микрокультуральный планшет для внеклеточного потока. Подготовьте карту планшетов для 5-6 технических реплик на каждую биологическую реплику Con и EtOH в экспериментальных условиях и контрольных сред для каждой из них для сравнения с инъекциями BPTES (всего четыре группы для биологических n= 1).
- Промойте клетки с помощью среды или фосфатно-солевого буфера.
- Добавьте в колбу 6 мл среды, содержащей сыворотку.
- Соскабливайте ячейки до тех пор, пока они не отсоединится и дно пластины не станет чистым. Трипсин не требуется для отслойки MH-S клеток, но может быть полезен при других типах клеток.
- Разделите клетки с помощью серологической пипетки или пипетки объемом 1 мл.
- Перенесите взвешенные элементы в коническую пробирку объемом 15 мл и центрифугируйте их при температуре 200 x g в течение 6 минут.
- Аспирируйте надосадочную жидкость.
- Добавьте 1 мл среды и тщательно суспендируйте клетки.
- Переложите 10 μL в микроцентрифужную пробирку и добавьте 10 μL трипанового синего. Хорошо перемешайте.
- Перенесите 10 μL смеси клеточно-трипанового синего на одну сторону гемоцитометра или счетчика клеток.
- Подсчитайте количество клеток с помощью светового микроскопа или счетчика клеток.
- Рассчитайте плотность клеток как среднее количество живых клеток на миллилитр.
- Произведите расчеты для разведений, которые необходимы:
Количество необходимых скважин x 10000-15000 ячеек = общее количество необходимых ячеек.
Количество необходимых лунок x 80 мкл = общий объем необходимых ресуспендированных элементов. - Нанесите 80 мкл клеток в необходимые лунки 96-луночного микрокультурального планшета для внеклеточного потока.
- Оставьте угловые лунки полностью лишенными каких-либо ячеек или сред. Эти скважины будут использоваться для фоновых измерений.
- Инкубируйте клетки в увлажнённом инкубаторе с температурой 37 °C с 5%CO2 в течение ночи, чтобы позволить клеткам прилипнуть и уравновеситься в микрокультуральной пластине для внеклеточного потока.
- Обрабатывайте MH-S клетки в 96-луночном микрокультуральном планшете для внеклеточного потока в течение 72 ч, используя шаг 1.
- Не менее чем за 4 ч и до 24 ч перед проведением эксперимента с биоанализатором внеклеточного потока увлажните 96-луночный картридж с внеклеточным флюсом.
- Снимите верхнюю часть внеклеточного флюсового пака и положите щупнутую часть флюсового пака лицевой стороной вверх на скамейку. Нанесите 200 мкл внеклеточного раствора флюсового калибра на каждую лунку в нижней части картриджа с внеклеточным флюсом.
- Соедините срезы вместе и оберните картридж с внеклеточным флюсом в парапленку. Поместите его в увлажнённый инкубатор с температурой 37 °C без CO2 или ванну с шариками при температуре 37 °C.
- Включите компьютер с дизайном анализа и откройте программное обеспечение для запуска/анализа, прикрепленное к прибору биоанализатора внеклеточного потока, чтобы дать ему нагреться не менее чем за 4 часа до проведения эксперимента.
3. Использование биоанализатора внеклеточного потока для оценки глутамина в качестве источника топлива для митохондриального дыхания в MH-S клетках
ПРИМЕЧАНИЕ: Общий обзор этой процедуры показан на рисунке 1.
- Проверьте обработанные Con- и EtOH культивируемые MH-S клетки под световым микроскопом и убедитесь, что клетки здоровы и прилегают к лункам в виде монослоя. Убедитесь, что клетки слиты не менее чем на 70% (идеально 90% конфлюенции) для надежного выполнения анализа.
- Приготовьте внеклеточную флюсовую базовую среду со следующими добавками:
- Аликвоту 35 мл внеклеточного флюсового основного средства в пробирку объемом 50 мл.
- Добавьте 350 мкл 100 мМ пирувата натрия (конечная концентрация 1 мМ), 350 мкл D-глюкозы (конечная концентрация 10 мМ) и 350 мкл GlutaMAX, который более устойчив при хранении по сравнению с L-глютамином (конечная концентрация 2 мМ).
ПРИМЕЧАНИЕ: Свежий L-глютамин также можно использовать в той же концентрации. - Нагрейте раствор до 37 °C и убедитесь, что pH составляет 7,4 ± 0,05 при 37 °C.
- Аккуратно отсасывайте питательную среду из планшета для внеклеточной микрокультуры. Оставляйте как можно меньше сред без отсасывания клеток снизу. Один раз промойте не более чем 50 мкл внеклеточной базовой среды с добавлением флюса.
- Добавьте 180 мкл внеклеточного флюса в каждую лунку и инкубируйте планшет для внеклеточной микрокультуры в увлажнённом инкубаторе без CO2 при температуре 37 °C в течение от 30 минут до 1 часа для обеспечения равновесия.
- Растворяемые реагенты для тестирования окисления глютамина:
- В пробирку BPTES добавьте 700 мкл внеклеточной базовой среды с добавлением флюса, чтобы получить 120 мМ исходный раствор. Делайте пипеткой вверх и вниз 10 раз, чтобы правильно растворить соединение.
ВНИМАНИЕ: BPTES вызывает раздражение кожи и глаз и может вызвать раздражение дыхательных путей. При работе с ними надевайте защитные перчатки, средства защиты глаз и лица. Утилизируйте содержимое и контейнеры в утвержденном пункте утилизации отходов. - В олигомициновую пробирку добавьте 630 мкл внеклеточного флюса основной среды, чтобы получить 100 мМ исходный раствор. Делайте пипеткой вверх и вниз 10 раз, чтобы правильно растворить соединение.
- В пробирку FCCP добавьте 720 мкл внеклеточной базовой среды с добавлением флюса, чтобы получить 100 мМ исходный раствор. Делайте пипеткой вверх и вниз 10 раз, чтобы правильно растворить соединение.
ВНИМАНИЕ: FCCP вреден при проглатывании, вызывает серьезные ожоги кожи и повреждение глаз, может вызвать аллергическую реакцию кожи и может вызвать долгосрочные вредные последствия для водных организмов. При обращении надевайте защитные перчатки, защитную одежду, средства защиты глаз и лица. Утилизируйте содержимое и контейнеры в утвержденном пункте утилизации отходов. - В R/A пробирку добавьте 540 мкл внеклеточной базовой среды с добавлением флюса, чтобы получить исходный раствор с массой 50 мМ. Делайте пипеткой вверх и вниз 10 раз, чтобы правильно растворить соединение.
ВНИМАНИЕ: Ротенон смертелен при проглатывании или вдыхании, вызывает раздражение кожи, вызывает серьезное раздражение глаз, может вызвать раздражение дыхательных путей и очень токсичен для водной флоры и фауны с долгосрочными последствиями. Надевайте защитные перчатки, средства защиты глаз, лица и органов дыхания. Утилизируйте содержимое и контейнеры в утвержденном пункте утилизации отходов. Антимицин А смертелен при проглатывании и очень токсичен для водных организмов с длительными последствиями. Утилизируйте содержимое и контейнеры в утвержденном пункте утилизации отходов.
- В пробирку BPTES добавьте 700 мкл внеклеточной базовой среды с добавлением флюса, чтобы получить 120 мМ исходный раствор. Делайте пипеткой вверх и вниз 10 раз, чтобы правильно растворить соединение.
- Приготовьте рабочие концентрации реагентов для окисления субстрата и митохондриального стресс-теста:
- Для BPTES смешайте 1500 мкл внеклеточной флюсовой основной среды с 500 мкл 120 мМ стокового раствора BPTES с получением рабочего раствора 30 мкМ BPTES.
- Для олигомицина смешивают 2520 мкл внеклеточного флюса с добавлением основной среды с 480 мкл 100 мМ олигомицина с получением рабочего раствора олигомицина с концентрацией 16 мМ.
- Для FCCP смешайте 2865 мкл внеклеточной флюсовой основной среды с 135 мкл 100 мМ FCCP с получением рабочего раствора 4,5 мМ FCCP.
- Для R/A смешайте 2700 мкл внеклеточной флюсовой основной среды с 300 мкл 50 мМ R/A с получением рабочего раствора с концентрацией 5 мМ R/A.
- Зарядите порты верхней части картриджа с внеклеточным флюсом следующим:
- Загрузите в фоновые лунки и контрольные лунки среды 20 мкл внеклеточной флюсовой основной среды в порт А, 22 мкл олигомицина в порт В, 25 мкл FCCP в порт С и 27 мкл R/A в порт D.
- Загрузите в лунки, содержащие клетки, 20 мкл контрольной среды или BPTES в порт A (конечная концентрация 3 мкМ для BPTES), 22 мкл олигомицина в порт B (конечная концентрация 2 мкМ для олигомицина), 25 мкл FCCP в порт C (конечная концентрация 0,5 мкМ для FCCP) и 27 мкл R/A (конечная концентрация 0,5 мкМ для R/A) в порт D.
- Проведите эксперимент с биоанализатором внеклеточного потока с использованием компьютерной программы для разработки и анализа анализов, которая прилагается к прибору, используя следующую стратегию выбора времени и инъекции:
- Для впрыска с портом A для BPTES установите количество измерений равным 6. Установите время смешивания на 3 минуты с временем ожидания 0 минут и временем измерения 3 минуты.
- Для инъекции с портом В для олигомицина установите количество измерений равным 3. Установите время смешивания на 3 минуты с временем ожидания 0 минут и временем измерения 3 минуты.
- Для впрыска с портом C для FCCP установите количество измерений равным 3. Установите время смешивания на 3 минуты с 6-минутным временем ожидания и 3-минутным временем измерения.
- Для впрыска с портом D для R/A установите количество измерений равным 3. Установите время смешивания на 3 минуты с временем ожидания 0 минут и временем измерения 3 минуты.
- Просмотрите все заданные фоны, контрольные среды и экспериментальные групповые скважины. Сохраните и запустите анализ. Во-первых, загрузите внеклеточный флюсовый пак с помощью A-D инъекций. Калибровка будет выполняться до тех пор, пока пластина ячейки не будет готова к загрузке.
- Удалите клеточную пластину сразу же по окончании анализа. Сохраните результаты для последующего анализа на другом устройстве.
- Проверьте, прилипли ли клетки к клеткам с помощью светового микроскопа. Промойте 1 раз фосфатно-солевым буфером и лизируйте клетки предпочтительным буфером для лизиса клеток. Хранить при температуре -80 °C или немедленно провести анализ на концентрацию белка.
4. Анализ результатов для оценки глутамина как источника топлива для митохондриального дыхания в MH-S клетках
- Извлеките белок из клеток в каждой лунке, чтобы нормализовать скорость потребления кислорода (OCR) по отношению к белку:
- Рассчитайте концентрацию белка (нанограммы/микролитры [нг/л]) в лунке.
- Рассчитайте среднюю концентрацию белка (нг/мкл) для всего микрокультурального планшета с внеклеточным потоком.
- Разделите концентрацию белка в каждой лунке на среднюю концентрацию белка в планшете, чтобы получить коэффициент нормализации.
- Примените коэффициент нормализации к интересующему файлу данных с помощью компьютерного программного обеспечения для разработки и анализа анализов.
- Убедитесь, что значения OCR для всех фоновых скважин близки к 0.
- Отмените выбор всех ячеек, где OCR составляет < 10 на исходном уровне. Данные не будут удалены, но выделенные скважины отобразятся в экспортированном файле данных.
- Экспортируйте данные из компьютерной программы для разработки и анализа анализов в компьютерную программу для работы с электронными таблицами.
- Откройте файл в компьютерной программе для работы с электронными таблицами и отсортируйте все данные, уменьшив значения OCR. Удалите фоновые скважины, скважины, которые ранее были исключены (и не были удалены), любые скважины с низкой жизнеспособностью клеток, скважины с низкой флюенсацией клеток, скважины без полного завершения стратегии закачки, скважины с неточными показаниями концентрации белка, скважины с исходным уровнем OCR < 10 и любые другие заранее определенные критерии.
- Отсортируйте все оставшиеся данные по измерениям, затем по группам, а затем по OCR.
- Усредните технические репликации каждого биологического N независимо путем измерения. Убедитесь, что существует как минимум 18 различных значений (3 исходных, 3 после среды/BPTES, 3 после олигомицина, 3 после FCCP и 6 после ротенона/антимицина А) для каждой экспериментальной группы для каждого биологического N после усреднения технических репликатов. Делайте это для каждого биологического N отдельно, чтобы стандартное отклонение или стандартная ошибка среднего могли быть рассчитаны позже для анализируемых данных.
- Скопируйте все усредненные значения в новую таблицу, разделив их по экспериментальным группам.
- Усреднить значения OCR по стратегии инъекции в каждой экспериментальной группе.
- Рассчитайте параметры митохондриальной биоэнергетики на основе потребления кислорода:
- Рассчитать базальное дыхание:
- Рассчитайте базальное митохондриальное дыхание следующим образом:
Базальное митохондриальное дыхание (потребляется pmol O2 ) = ([Измерения AVG OCR #1, 2, 3 - Средние измерения OCR #16, 17, 18] x [Время #3 - Время #1])
ПРИМЕЧАНИЕ: Базальное дыхание должно быть одинаковым между контрольной средой и группами BPTES, потому что это происходит до введения ингибитора. - Рассчитайте базальное митохондриальное дыхание, не зависящее от глутамина, следующим образом:
Базальное митохондриальное дыхание не зависит от глутамина (потребляется pmol O2 ) = ([Измерения AVG OCR #4, 5, 6, 7, 8, 9 - Измерения AVG OCR #16, 17, 18] x [Время #9 - Время #4])
Базальное митохондриальное дыхание, не зависящее от глутамина, должно быть меньше, чем базальное митохондриальное дыхание, если только клетки не сильно зависят от глутамина. - Рассчитайте базальное митохондриальное дыхание в зависимости от глютамина следующим образом:
Базальное митохондриальное дыхание зависит от глутамина (потребляется pmol O2 ) = ([Измерения AVG OCR #1, 2, 3 - Измерения AVG OCR #4, 5, 6, 7, 8, 9] x [Время #9 - Время #4])
ПРИМЕЧАНИЕ: Общее базальное митохондриальное дыхание не следует вычитать из базального митохондриального дыхания, и оно не должно зависеть от глутамина, поскольку они рассчитываются в разные моменты времени.
- Рассчитайте базальное митохондриальное дыхание следующим образом:
- Рассчитайте дыхание, связанное с АТФ, следующим образом:
- Рассчитайте общее митохондриальное дыхание, связанное с АТФ, от всех видов топлива следующим образом:
Общее митохондриальное дыхание, связанное с АТФ, от всех видов топлива (pmol O2 потребляется) = ([Измерения AVG OCR #1, 2, 3 - Измерения AVG OCR #10, 11, 12] x [Время #12 - Время #10])
ПРИМЕЧАНИЕ: Среднее значение OCR для измерений #10, 11 и 12 должно быть одинаковым между контрольной средой и группами BPTES, поскольку олигомицин должен сильно ингибировать АТФ-синтазу, а ингибирование одного топливного пути не должно изменять общее АТФ-связанное дыхание. - Рассчитайте АТФ-сцепленное митохондриальное дыхание, не зависящее от глутамина, следующим образом:
АТФ-связанное митохондриальное дыхание не зависит от глутамина (потребляется pmol O2 ) = ([Измерения AVG OCR #4, 5, 6, 7, 8, 9 - Измерения AVG OCR #10, 11, 12] x [Время #12 - Время #10])
ПРИМЕЧАНИЕ: АТФ-сцепленное митохондриальное дыхание, не зависящее от глутамина, должно быть меньше, чем АТФ-сцепленное митохондриальное дыхание, если клетки не сильно зависят от глутамина. - Рассчитайте АТФ-сцепленное митохондриальное дыхание в зависимости от глутамина следующим образом:
АТФ-связанное митохондриальное дыхание зависит от глутамина (потребляется pmol O2 ) = Общее АТФ-связанное митохондриальное дыхание от всех видов топлива - АТФ-связанное митохондриальное дыхание не зависит от глутамина
- Рассчитайте общее митохондриальное дыхание, связанное с АТФ, от всех видов топлива следующим образом:
- Рассчитайте максимальное дыхание следующим образом:
- Рассчитайте общее максимальное митохондриальное дыхание следующим образом:
Общее максимальное митохондриальное дыхание (потреблено pmol O2 ) = ([Измерения AVG OCR #13, 14, 15 - Измерения AVG OCR #16, 17, 18] x [Время #15 - Время #13]) - Рассчитайте максимальное митохондриальное дыхание, не зависящее от глютамина, следующим образом:
Максимальное митохондриальное дыхание не зависит от глутамина (потребляется pmol O2 ) = ([Измерения AVG OCR #13, 14, 15 групп BPTES - Измерения AVG OCR #16, 17, 18 групп BPTES] x [Время #15 - #Time 13]) - Рассчитайте максимальное митохондриальное дыхание в зависимости от глютамина следующим образом:
Максимальное митохондриальное дыхание зависит от глутамина (потребляется pmol O2 ) = Общее максимальное митохондриальное дыхание от всех видов топлива - Максимальное митохондриальное дыхание не зависит от глутамина
ПРИМЕЧАНИЕ: Этот расчет может быть использован для определения зависимости ячейки от резервной емкости глютамина по сравнению с другими видами топлива. Чем больше максимальное митохондриальное дыхание, тем больше зависимость от глутамина, которая может быть выражена в группах BPTES - контрольных группах, показывающих потерю максимального митохондриального дыхания или в процентах от общего дыхания.
- Рассчитайте общее максимальное митохондриальное дыхание следующим образом:
- Рассчитать запасную дыхательную способность можно следующим образом:
- Рассчитайте общую резервную дыхательную способность следующим образом:
Общая запасная дыхательная способность (израсходовано pmol O2 ) = ([Измерения AVG OCR #13, 14, 15 - Измерения AVG OCR #1, 2, 3] x [Время #15 - Время #13]) - Рассчитать запасную дыхательную способность не зависящую от глутамина можно следующим образом:
Резервная дыхательная способность не зависит от глутамина (потребляется pmol O2 ) = ([Измерения AVG OCR #13, 14, 15 групп BPTES - Измерения AVG OCR #1, 2, 3 групп BPTES] x [Время #15 - Время #13]) - Рассчитайте запасную дыхательную способность в зависимости от глутамина следующим образом:
Резервная дыхательная способность зависит от глутамина (потребляется pmol O2 ) = Общая резервная дыхательная способность от всех видов топлива - Резервная дыхательная способность не зависит от глутамина
ПРИМЕЧАНИЕ: Этот расчет отражает гибкость клеток, зависящих от глютамина, и то, могут ли они достичь лучшего дыхания без глютамина, когда это необходимо.
- Рассчитайте общую резервную дыхательную способность следующим образом:
- Рассчитать базальное дыхание:
- Вычтите контрольную среду по группам ингибиторов и при желании нормализуйте потребляемый pmolO2 по отношению к контрольной группе.
- Создание графиков биоэнергетических профилей OCR (pmol O2/min), базального дыхания (pmol O2), АТФ-связанного дыхания (pmol O2), максимального дыхания (pmol O2) и резервной дыхательной способности (pmol O2) в зависимости от глутамина.
- Отображайте значения митохондриальных биоэнергетических конечных точек на гистограммах или выражайте как средства групп ингибиторов по отношению к контрольным группам среды. Если каждый биологический N вычисляется отдельно, то вычисляется стандартное отклонение или стандартная ошибка среднего значения для анализируемых данных по всем биологическим N.
5. Статистический анализ
- Выполняйте все статистические анализы с использованием соответствующего программного обеспечения для анализа данных.
- Для линейных точек биоэнергетических профилей OCR выполните двусторонний ANOVA с последующим апостериорным анализом Тьюки для сравнения данных из этих четырех экспериментальных групп с двумя факторами (стратегия лечения и инъекции): Con + среда, Con + BPTES, EtOH + среда и EtOH + BPTES.
- Для получения гистограмм базального дыхания, АТФ-связанного дыхания, максимального дыхания и резервной дыхательной способности, зависящей от глутамина, проведите анализ t-критерия Стьюдента для сравнения данных двух экспериментальных групп: Con + BPTES и EtOH + BPTES.
- Представление данных в виде средств ± стандартной погрешности среднего значения (SEM). Рассмотрим p < 0,05 статистически значимыми.
Результаты
Хроническое воздействие EtOH снижает зависимость от глутамина в MH-S клетках.
Глутаминолиз является важнейшим путем для митохондриального дыхания, поддерживая глутамин в качестве важного источника топлива для клеточной биоэнергетики. Чтобы определить, изменяет ли хроническое воздействие EtOH зависимость MH-S клеток от глутамина в качестве источника топлива для митохондриального дыхания, MH-S клетки обрабатывали без контроля EtOH (Con) или EtOH, а OCR измеряли с течением времени в ответ на серийные инъекции реагентов, связанных с митохондриальным дыханием. Биоэнергетические профили OCR в ответ на последовательные инъекции олигомицина (ингибитора АТФ-синтазы), FCCP (развязки протонов) и R/A (ингибиторы митохондриального комплекса I и комплекса III соответственно) используются для расчета других параметров митохондриальной биоэнергетики, таких как АТФ-связанное дыхание, максимальное дыхание и резервная дыхательная способность. Все представленные данные представляют собой дополнительные биологические репликации экспериментальных групп клеток MH-S Con + media, Con + BPTES + среды, EtOH + BPTES, которые были опубликованы в Crotty et al.11. Как показано на рисунке 2A, олигомицин снижал OCR из-за ингибирования комплекса V, FCCP увеличивал OCR из-за митохондриального разобщения мембранного потенциала и митохондриально-зависимого поколенияАТФ 12, а R/A эффективно отключал митохондриально-зависимое OCR. Эти профили биоэнергетических реакций OCR на серийные инъекции согласуются с руководством пользователя по оценке митохондриального стресса с использованием биоанализатора внеклеточного потока13,14.
После измерения базального OCR в MH-S-клетках, обработанных Con- и EtOH, была введена инъекция контрольной среды или BPTES, ингибитора глутаминазы 1. MH-S клетки Con + media в сравнении с Con + BPTES и EtOH + media в сравнении с MH-S клетками EtOH + BPTES не продемонстрировали различий в биоэнергетических профилях OCR (рис. 2A). EtOH + BPTES MH-S клетки показали снижение глутамин-зависимого базального дыхания по сравнению с Con + BPTES (измерение #4 по сравнению с измерением #3 на Рисунке 2A и Рисунке 2B), что позволяет предположить, что EtOH снижает базальное окисление глутамина MH-S клеток, способствуя митохондриальному дыханию. В MH-S клетках EtOH + BPTES наблюдалась потеря глутамин-зависимого АТФ-связанного митохондриального дыхания по сравнению с Con + BPTES (рис. 2C). Несмотря на то, что EtOH + BPTES MH-S клетки продемонстрировали притупленную потерю глутамин-зависимого максимального дыхания по сравнению с Con + BPTES (рис. 2D), EtOH + BPTES MH-S клетки показали снижение глутамин-зависимой резервной дыхательной способности по сравнению с Con + BPTES (рис. 2E). Эти результаты свидетельствуют о том, что клетки EtOH MH-S обладают способностью быть более зависимыми от глутамина для дыхания, как при стрессе при FCCP, но они могут быть не в состоянии сделать это из-за увеличения спроса на глютамин, которое перевешивается снижением биодоступности глутамина.
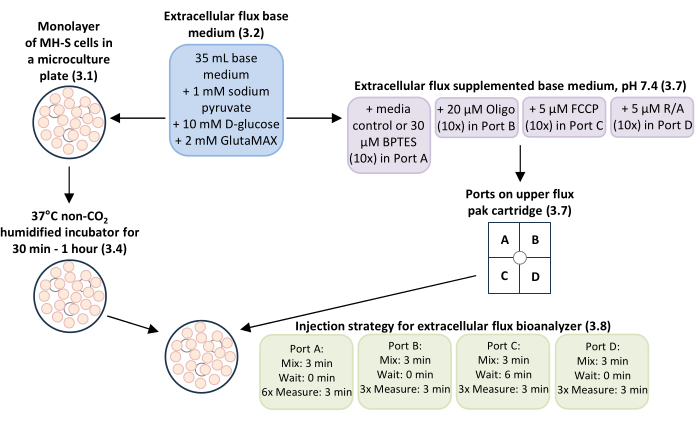
Рисунок 1: Общий обзор рабочего процесса измерения глутамин-зависимого митохондриального дыхания и биоэнергетики в клетках MH-S, линии альвеолярных макрофагов мыши. Монослои MH-S клеток, культивируемых в лунках микрокультуральных планшетов с внеклеточным потоком (стадия 3.1), инкубировали с основной средой внеклеточного потока с добавлением добавок (стадия 3.2) при 37°C в увлажненном инкубаторе без содержания CO2 в течение 30 мин-1 ч (стадия 3.4). Внеклеточную флюсовую основную среду с добавлением добавок (стадия 3.2) использовали в качестве контроля среды и разбавляли рабочие концентрации ингибитора окисления глутамина BPTES до конечной концентрации 3 мкМ, ингибитора митохондриального комплекса V олигомицина (Oligo) до конечной концентрации 0,5 мкМ, митохондриального разъединителя карбонилцианида--трифторметоксифенилгидразона (FCCP) до конечной концентрации 0,5 мкМ, а ингибиторов митохондриального комплекса I и комплекса III ротенон/антимицин А (Р/А) до 0,5 мкМ конечная концентрация для загрузочных отверстий A-D в верхнем внеклеточном флюсовом картридже (шаг 3.7). Стратегия инъекции смешивания, ожидания и времени измерения для экспериментального прогона с использованием биоанализатора внеклеточного потока была следующей: время смешивания 3 минуты, время ожидания 0 минут и 6 измерений по 3 минуты время измерения для порта А (контроль среды или BPTES); Время смешивания 3 минуты, время ожидания 0 минут и 3 измерения времени измерения по 3 минуты для порта B (олиго); Время смешивания 3 минуты, время ожидания 6 минут и 3 измерения времени измерения по 3 минуты для порта C (FCCP); и 3 минуты времени смешивания, 0 минут времени ожидания и 3 измерения по 3 минуты для порта D (R/A). Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этой цифры.
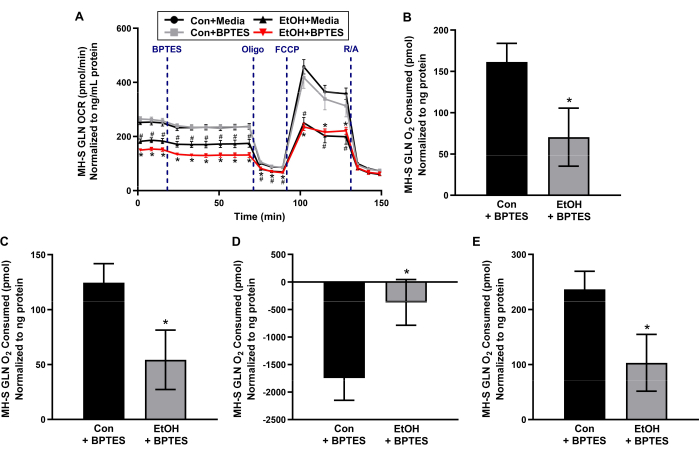
Хронический этанол (EtOH) снижает глутамин-зависимое митохондриальное дыхание в MH-S клетках, линии альвеолярных макрофагов мыши. MH-S клетки не обрабатывали (Con) или обрабатывали EtOH (0,08%, 72 ч), а скорость потребления кислорода (OCR) с течением времени измеряли с помощью биоанализатора внеклеточного потока до и после инъекции с контролем среды или ингибитора окисления глутамина (GLN) (3 мкМ BPTES) с последующими последовательными инъекциями ингибитора митохондриального комплекса V (0,5 мкМ олигомицина, Олиго), митохондриальный разъединитель (0,5 мкМ карбонильцианид--трифторметоксифенилгидразона, FCCP) и ингибиторы митохондриального комплекса I и комплекса III (0,5 мкМ ротенона/0,5 мкМ антимицина А, Р/А). (A) Биоэнергетические профили OCR использовались для расчета глутамин-зависимого (B) базального дыхания, (C) АТФ-связанного дыхания, (D) максимального дыхания и (E) запасной дыхательной способности. Линейные точки представляют средние значения ± SEM (n = 4, #p < 0,05 против Con + медиа и *p < 0,05 против Con + BPTES, односторонний ANOVA с пост-хоком Тьюки). Столбцы представляют средние значения ± SEM (n = 4, *p < 0,05 против Con + BPTES, t-критерий Стьюдента). Представленные данные представляют собой дополнительные биологические репликации для контрольных и обработанных BPTES экспериментальных групп необработанных контрольных и хронических клеток MH-S, подвергшихся воздействию EtOH, которые опубликованы в Crotty et al.11. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этой цифры.
Обсуждение
Представленные здесь данные представляют собой дополнительные биологические репликации для необработанных и хронически подверженных воздействию EtOH MH-S клеток, обработанных контролем среды или BPTES, которые опубликованы в Crotty et al.11. Описанный протокол используется для оценки зависимости MH-S-клеток, подвергшихся воздействию EtOH, от глутамина в качестве источника топлива для митохондриального дыхания и биоэнергетики с помощью биоанализатора внеклеточного потока. В протоколе есть несколько важных этапов. Во-первых, важно образование MH-S клеток и конфлюенция. MH-S клетки первоначально культивируются во внеклеточных микрокультуральных лунках потока при низкой конфлюенции и используются, когда клетки находятся в монослое при окончательной конфлюенции 90%. Поскольку экспозиция EtOH в клетках MH-S составляла 72 ч, конечная конфлюенция 90% была достигнута до экспериментального прогона на биоанализаторе внеклеточного потока. Это согласуется с другими сообщениями об образовании монослоя клеток и 90%-100% слиянии до проведения этих экспериментов 15,16,17. Во-вторых, нормализация показателей митохондриального дыхания к белку в каждом образце имеет решающее значение. Некоторые исследования нормализуют биоэнергетику митохондрий до номеровклеток 18,19,20. Тем не менее, стратегия последовательной инъекции в этом анализе предназначена для последовательного стресса митохондрий. В клетках, которые в основном полагаются на окислительное фосфорилирование, таких как АМ, это может привести к гибели клеток во время экспериментального запуска на биоанализаторе внеклеточного потока. Таким образом, количество клеток может быть непостоянным с начала эксперимента до конца экспериментального прогона, а нормализация значений митохондриального дыхания к белку является оптимальной21,22. Здесь предлагается коэффициент нормализации белка с использованием среднего белка по всем лункам, чтобы получить более точные профили OCR, специфичные для клеток. В-третьих, ключевым моментом является анализ результатов по всем биологическим репликам. Иногда репрезентативные изображения митохондриальных биоэнергетических профилей представлены22,23, а не среднее митохондриальное дыхание у нескольких биологических реплик 10,11,24. Однако эти репрезентативные изображения не дают полной картины различий между экспериментами. При расчете каждой биологической реплики по отдельности стандартная ошибка среднего значения может показать изменение средних значений митохондриального дыхания по всем биологическим репликам и быть использована для расчета статистических различий между митохондриальными биоэнергетическими профилями.
Перед проведением анализа на биоанализаторе внеклеточного потока необходимо было определить оптимальную клеточную плотность MH-S клеток для культивирования в микрокультуральной пластине внеклеточного потока для получения монослоя клеток в каждой лунке. Поскольку также необходимо было установить соответствующие концентрации Oligo и FCCP для MH-S клеток, были проведены тесты различной плотности MH-S клеток с последовательными разведениями Oligo и FCCP21,25. Первоначальное культивирование 10 000-15 000 MH-S клеток привело к образованию монослоя клеток с 90% конфлюенсацией после 72 часов воздействия с EtOH10 и без него. На основании этих экспериментов по оптимизации было определено, что 2 мкМ олиго и 0,5 мкМ FCCP являются минимальными концентрациями этих реагентов, вызывающих изменения в митохондриальномдыхании10.
Измерения митохондриального дыхания в реальном времени на исходном уровне и после лечения BPTES, ингибитором глутаминазы 1, который предотвращает ферментативное превращение глутамина в глутамат, используется для определения зависимости глутамина от базального дыхания в MH-S-клетках, подверженных воздействию Con- и EtOH. Ограничением данных, представленных в этом исследовании, является то, что роль коротко- и среднецепочечных жирных кислот в качестве источников топлива для митохондриального дыхания и биоэнергетики, в дополнение к глутамину в MH-S-клетках, подверженных воздействию EtOH, не была исследована. Результаты предыдущего исследования Crotty et al.11 показали, что клетки EtOH MH-S демонстрируют переход от пируват-зависимого дыхания к глутамин-зависимому дыханию без полной компенсации потери общего митохондриального дыхания. Кроме того, проведя тот же эксперимент с комбинированной инъекцией UK5099 (ингибитора окисления пирувата) и этомоксира (ингибитора окисления длинноцепочечных жирных кислот), можно было определить вклад глутамина в отсутствие пирувата и жирных кислот в качестве источников топлива для митохондриального дыхания в MH-S-клетках, подверженных воздействию EtOH.
Митохондриальное дыхание измеряется с помощью электрода Кларка уже почти семьдесятлет26, и существуют также пластинчатые флуоресцентные анализы для измерения митохондриальногодыхания. Однако эти методы значительно более трудоемки и/или не обладают чувствительностью измерений, которая может быть достигнута с помощью биоанализатора внеклеточного потока. Преимущество использования биоанализатора внеклеточного потока для оценки глутамина в качестве источника топлива для митохондриального дыхания и биоэнергетики заключается в том, что эксперименты с несколькими биологическими репликами могут проводиться одновременно. Кроме того, биоанализатор внеклеточного потока позволяет проводить эксперименты на изолированных митохондриях или интактных клетках. Для клеток, которые не имеют высокой концентрации митохондрий, таких как гладкомышечные клетки легочной артерии, выделение достаточного количества митохондрий из ограниченных образцов является сложной задачей. С помощью биоанализатора внеклеточного потока можно измерить митохондриальное дыхание в гладкомышечных клетках интактной легочной артерии28 или первичных мышиных АМ10,11. Протокол, использованный в этом исследовании, может быть использован для оценки глутамина в качестве источника топлива для митохондриального дыхания и биоэнергетики других образцов с ограниченным размером выборки, таких как первичные человеческие АМ. Ранее мы показали, что вызванный EtOH митохондриальный окислительный стресс и нарушения в MH-S клетках демонстрируют сходный профиль митохондриальной дисрегуляции в первичных мышиных АМ и человеческих АМ 6,7,11,28,29,30. В целом, исследования поддерживают использование этого метода оценки глутамина в качестве источника топлива для митохондриального дыхания и биоэнергетики у АМ в патологических состояниях, которые характеризуются окислительным стрессом митохондриального происхождения.
Раскрытие информации
У всех авторов нет соответствующих финансовых конфликтов интересов, о которых можно было бы сообщить.
Благодарности
Мы выражаем признательность Саре С. Чанг, бакалавру наук, за ее вклад в создание начальной клеточной культуры и подготовку MH-S клеток к экспериментам. Эта работа была поддержана NIAAA R01-AA026086 для SMY (ORCID: 0000-0001-9309-0233), NIAAA F31-F31AA029938 для KMC и NIGMS T32-GM008602 для Рэнди Холла, факультет фармакологии и химической биологии, Университет Эмори. Содержание настоящего доклада не отражает точку зрения Департамента по делам ветеранов или правительства США.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Коническая трубка 15 мл | VWR International, Inc. | 21008-670 | Используется для получения исходных концентраций реагентов, связанных с митохондриями. |
| 2-меркаптоэтанол | Сигма Олдрич Ко. | M6250 | Используется для культивирования клеток MH-S. |
| Скребок для клеток | Dot Scientific, Inc. | 70-1180 | Используется для выскабливания ячеек MH-S из колб Т-75. |
| Графиня 3 FL Прибор: счетчик клеток | Fisher Scientific Company | AMQAF2000 | Используется для подсчета количества MH-S клеток для пластин для экспериментов. |
| D-глюкоза | Сигма Олдрич Ко. | G8270 | Используется для внеклеточной флюсовой базовой среды. |
| Этанол Научной компании Фишера | 4355720 | экспериментальное лечение MH-S клеток. | |
| Фетальная бычья сыворотка | Sciencell Research Laboratories | 500 | Используется для культивирования MH-S клеток. |
| Гентамицин | Сигма Олдрич Ко. | G1397 | Используется для культивирования MH-S клеток. |
| GlutaMAX | Thermo Fisher Scientific | 35050061 | Используется для внеклеточной флюсовой основной среды. |
| GraphPad Prism 10.2.3 | Программное обеспечение GraphPad | Н/Д | Программное обеспечение для статистического анализа. Можно скачать после покупки в https://www.graphpad.com/features. |
| MH-S клетки | American Type Culture Collection | CRL-2019 | Линия альвеолярных макрофагов мыши. |
| Микроцентрифужная пробирка | США Сайентикал, Инк. | 4036-3212 | Используется для получения рабочих концентраций реагентов, связанных с митохондриями. |
| Microsoft 365 Excel: компьютерная программа для работы с электронными таблицами | Microsoft | N/A | Программное обеспечение для организации данных и расчетов митохондриальной биоэнергетики. Можно скачать после покупки в https://www.microsoft.com/en-us/microsoft-365/excel. |
| Пенициллин/стрептомицин | Научной компании Фишера | 15140122 | Используется для культивирования MH-S клеток. |
| Фосфатно-солевой буфер | VWR International, Inc. | 45000-446 | Используется для промывки элементов MH-S. |
| RPMI-1640 | VWR International, Inc. | 45000-396 | Используется для культивирования MH-S клеток. |
| Seahorse Wave Pro Software: компьютерная программа для разработки и анализа анализов | Agilent Technologies, Inc. | Н/Д | Компьютер подключен к анализатору Seahorse XF Pro. Скачать с https://www.agilent.com/en/product/cell-analysis/real-time-cell-metabolic-analysis/xf-software/software-download-for-seahorse-wave-pro-software?productURL=https%3A%2F%2Fwww.agilent.com%2Fen%2Fproduct%2Fcell-analysis%2Freal-time-cell-metabolic-analysis%2Fxf-software%2Fseahorse-wave-pro-software-2007523. |
| Seahorse XF Base Medium: внеклеточная флюсовая базовая среда, pH 7,4 | Agilent Technologies, Inc. | 103334-100 | Используется для получения исходных и рабочих концентраций реагентов, связанных с митохондриями, и культивирования MH-S клеток перед экспериментальными прогонами. |
| Набор для стресс-тестов на окисление глютамина Seahorse XF | Agilent Technologies, Inc. | 103674-100 | Содержит исходный BPTES, олигомицин, FCCP и ротенон/антимицин А. |
| Seahorse XF Pro Analyzer: биоанализатор внеклеточного потока | Agilent Technologies, Inc. | Н/Д | Биоанализатор внеклеточного потока. |
| Seahorse XFe96 FluxPak: 96-луночные картриджи с внеклеточным флюсом, 96-луночные планшеты для микрокультур внеклеточного флюса и калибровочное решение | Agilent Technologies, Inc. | 102416-100 | Используется для подготовки MH-S клеток к анализу с помощью биоанализатора внеклеточного потока. |
| Серологическая пипетка | Санта Круз Биотехнология, Инк. | sc-550678 | Используется для удаления сред из элементов MH-S. |
| Бикарбонат натрия | Sigma Aldrich Co. | S6014 | Используется для культивирования MH-S клеток. |
| Пируват натрия | Сигма Олдрич Ко. | P4562 | Используется для внеклеточной флюсовой основной среды. |
| Фляги Т-75 компании | Santa Cruz Biotechnology, Inc. | sc-200263 | Используется для культивирования MH-S клеток. |
Ссылки
- 2021 National Survey on Drug Use and Health (NSDUH). Table 5.6A - Alcohol Use Disorder in Past Year: Among People Aged 12 or Older; by Age Group and Demographic Characteristics, Numbers in Thousands, 2021. , Substance Abuse and Mental Health Services Administration (SAMHSA). At https://www.samhsa.gov/data/sites/default/files/reports/rpt39441/NSDUHDetailedTabs2021/NSDUHDetailedTabs2021/NSDUHDetTabsSect5pe2021.htm (2021).
- Everts, R. J., et al. Nosocomial pneumonia in adult general medical and surgical patients at Christchurch Hospital. N Z Med J. 113 (1111), 221-224 (2000).
- de Roux, A., et al. Impact of alcohol abuse in the etiology and severity of community-acquired pneumonia. Chest. 129 (5), 1219-1225 (2006).
- Moss, M. Epidemiology of sepsis: race, sex, and chronic alcohol abuse. Clin Infect Dis. 41 (Suppl 7), S490-S497 (2005).
- Fernandez-Sola, J., et al. High alcohol intake as a risk and prognostic factor for community-acquired pneumonia. Arch Intern Med. 155 (15), 1649-1654 (1995).
- Yeligar, S. M., Harris, F. L., Hart, C. M., Brown, L. A. Glutathione attenuates ethanol-induced alveolar macrophage oxidative stress and dysfunction by downregulating NADPH oxidases. Am J Physiol Lung Cell Mol Physiol. 306 (5), L429-L441 (2014).
- Yeligar, S. M., Mehta, A. J., Harris, F. L., Brown, L. A., Hart, C. M. Peroxisome proliferator-activated receptor gamma regulates chronic alcohol-induced alveolar macrophage dysfunction. Am J Respir Cell Mol Biol. 55 (1), 35-46 (2016).
- Liang, Y., Harris, F. L., Brown, L. A. Alcohol induced mitochondrial oxidative stress and alveolar macrophage dysfunction. Biomed Res Int. 2014, 371593(2014).
- Liang, Y., Harris, F. L., Jones, D. P., Brown, L. A. Alcohol induces mitochondrial redox imbalance in alveolar macrophages. Free Radic Biol Med. 65, 1427-1434 (2013).
- Morris, N. L., Harris, F. L., Brown, L. A. S., Yeligar, S. M. Alcohol induces mitochondrial derangements in alveolar macrophages by upregulating NADPH oxidase 4. Alcohol. 90, 27-38 (2021).
- Crotty, K. M., Kabir, S. A., Chang, S. S., Mehta, A. J., Yeligar, S. M. Pioglitazone reverses alcohol-induced alterations in alveolar macrophage mitochondrial phenotype. Alcohol Clin Exp Res (Hoboken). 48 (5), 810-826 (2024).
- Demine, S., Renard, P., Arnould, T. Mitochondrial uncoupling: A key controller of biological processes in physiology and diseases. Cells. 8 (8), 795(2019).
- Hill, B. G., et al. Integration of cellular bioenergetics with mitochondrial quality control and autophagy. Biol Chem. 393 (12), 1485-1512 (2012).
- Chacko, B. K., et al. The Bioenergetic Health Index: a new concept in mitochondrial translational research. Clin Sci (Lond). 127 (6), 367-373 (2014).
- Fan, Y., et al. Analyzing mitochondrial respiration of human induced pluripotent stem cell-derived myeloid progenitors using Seahorse technology. STAR Protoc. 4 (1), 102073(2023).
- Gu, X., Ma, Y., Liu, Y., Wan, Q. Measurement of mitochondrial respiration in adherent cells by Seahorse XF96 Cell Mito Stress Test. STAR Protoc. 2 (1), 100245(2021).
- Plitzko, B., Loesgen, S. Measurement of oxygen consumption rate (OCR) and extracellular acidification rate (ECAR) in culture cells for assessment of the energy metabolism. Bio Protoc. 8 (10), e2850(2018).
- Winnica, D., et al. Bioenergetic differences in the airway epithelium of lean versus obese asthmatics are driven by nitric oxide and reflected in circulating platelets. Antioxid Redox Signal. 31 (10), 673-686 (2019).
- Nickens, K. P., Wikstrom, J. D., Shirihai, O. S., Patierno, S. R., Ceryak, S. A bioenergetic profile of non-transformed fibroblasts uncovers a link between death-resistance and enhanced spare respiratory capacity. Mitochondrion. 13 (6), 662-667 (2013).
- Mdaki, K. S., Larsen, T. D., Weaver, L. J., Baack, M. L. Age related bioenergetics profiles in isolated rat cardiomyocytes using extracellular flux analyses. PLoS One. 11 (2), e0149002(2016).
- Dranka, B. P., et al. Assessing bioenergetic function in response to oxidative stress by metabolic profiling. Free Radic Biol Med. 51 (9), 1621-1635 (2011).
- Chacko, B. K., et al. Methods for defining distinct bioenergetic profiles in platelets, lymphocytes, monocytes, and neutrophils, and the oxidative burst from human blood. Lab Invest. 93 (6), 690-700 (2013).
- Tyrrell, D. J., Bharadwaj, M. S., Jorgensen, M. J., Register, T. C., Molina, A. J. Blood cell respirometry is associated with skeletal and cardiac muscle bioenergetics: Implications for a minimally invasive biomarker of mitochondrial health. Redox Biol. 10, 65-77 (2016).
- Shah-Simpson, S., Pereira, C. F., Dumoulin, P. C., Caradonna, K. L., Burleigh, B. A. Bioenergetic profiling of Trypanosoma cruzi life stages using Seahorse extracellular flux technology. Mol Biochem Parasitol. 208 (2), 91-95 (2016).
- Nicholls, D. G., et al. Bioenergetic profile experiment using C2C12 myoblast cells. J Vis Exp. 46, e2511(2010).
- Chance, B., Williams, G. R. Respiratory enzymes in oxidative phosphorylation. I. Kinetics of oxygen utilization. J Biol Chem. 217 (1), 383-393 (1955).
- Gerencser, A. A., et al. Quantitative microplate-based respirometry with correction for oxygen diffusion. Anal Chem. 81 (16), 6868-6878 (2009).
- Yeligar, S. M., et al. PPARgamma regulates mitochondrial structure and function and human pulmonary artery smooth muscle cell proliferation. Am J Respir Cell Mol Biol. 58 (5), 648-657 (2018).
- Yeligar, S., Tsukamoto, H., Kalra, V. K. Ethanol-induced expression of ET-1 and ET-BR in liver sinusoidal endothelial cells and human endothelial cells involves hypoxia-inducible factor-1alpha and microrNA-199. J Immunol. 183 (8), 5232-5243 (2009).
- Yeligar, S. M., Harris, F. L., Brown, L. A. S., Hart, C. M. Pharmacological reversal of post-transcriptional alterations implicated in alcohol-induced alveolar macrophage dysfunction. Alcohol. 106, 30-43 (2023).
Перепечатки и разрешения
