Клеточные линии полезны в исследованиях внутриклеточных организмов, которые не могут быть культивированы вне клеток-хозяев. Несмотря на то, что линии, инфицированные Wolbachia, позволили сделать много открытий, гетерогенность внутри этих линий может привести к различным экспериментальным результатам. Представлен протокол получения клонов одиночных клеток и непрерывных культур из инфицированных Wolbachia клеток JW18.
Методическая статья
Получение моноклональных культур из инфицированной Wolbachia клеточной линии Drosophila melanogaster JW18
В этой статье
Краткое содержание
Аннотация
Клеточные линии являются широко используемыми моделями в биологических исследованиях. Они особенно полезны в исследованиях внутриклеточных бактерий, которые не могут быть эффективно распространены вне организмов-хозяев. Wolbachia, внутриклеточный симбионт многих беспозвоночных, вызывает сильные репродуктивные и противовирусные эффекты у своих насекомых-хозяев. Клетки насекомых, инфицированных Wolbachia, широко используются для изучения фенотипов Wolbachia . Тем не менее, эти клеточные линии часто состоят из смешанных популяций клеток с потенциально варьирующимися фенотипами и реакциями на экспериментальное лечение. В частности, сообщалось, что клеточные линии с Wolbachia демонстрируют переменные темпы роста и вариабельную распространенность инфекции Wolbachia от одного пассажа к другому. Чтобы исправить эту проблему, мы создали моноклональные клеточные линии из инфицированной Wolbachia клеточной линии JW18, полученной из Drosophila melanogaster. Эти клональные линии были установлены в разные моменты времени и демонстрируют разные статусы инфекции Wolbachia . Эта изменчивость предполагает, что любое лечение, примененное к родительской популяции JW18, может привести к отбору субпопуляций, а не влиять на физиологию всей культуры. В этой статье мы представляем протокол для создания клонов одиночных клеток и непрерывных клональных культур из клеток насекомых, инфицированных Wolbachia, что позволяет проводить более контролируемые и воспроизводимые эксперименты.
Введение
Клетки Drosophila melanogaster широко используются в генетических исследованиях, исследованиях болезней и в качестве платформы для высокопроизводительного скрининга лекарственных препаратов1. Они также полезны в изучении одного из самых распространенных внутриклеточных микробов на планете: Wolbachia. Wolbachia – грамотрицательная облигатная внутриклеточная бактерия, обнаруженная у 40-70% видов насекомых 2,3,4, где она распространяется по материнской линии и индуцирует репродуктивные манипуляции 5,6,7,8. Wolbachia также может обеспечить инфицированных хозяев противовирусную защиту 9,10,11,12,13,14,15, которая вместе с репродуктивными манипуляциями используется для контроля передачи арбовируса от комаров к человеку16,17. Было показано, что в различных системах Wolbachia контролирует апоптоз18, поставляет необходимые питательные вещества19 и изменяет экспрессию генов и белков 20,21,22,23,24,25.
Клеточные линии стали моделью для изучения Wolbachia из-за их простой биологии, удобства и способности размножаться в больших количествах. Клеточные линии оказались полезными для предварительной адаптации Wolbachia к симбиозу с новыми хозяевами26 и позволили Wolbachia накапливать мутации27,28. Они были использованы для скрининга соединений против Wolbachia, которые могут быть полезны при лечении филяриальных заболеваний29 и изучении взаимодействия Wolbachia и трансляции хозяина30. Несмотря на то, что клеточные линии незаменимы в исследованиях Wolbachia symbioses 29,30,31, механизмы, лежащие в основе большинства фенотипов Wolbachia, остаются неизвестными. Это говорит о том, что модельная система клеточных культур все еще может быть улучшена.
Клеточные линии насекомых, инфицированных Wolbachia, получают из эмбрионов и личинок насекомых. Aa23, полученный из эмбрионов Aedes albopictus, был первой стабильной линией32, инфицированной Wolbachia, впоследствии использованной для многих исследований Wolbachia symbiosis 33,34,35. Клеточная линия JW18 была одной из первых естественно инфицированных Wolbachia, полученных из D. melanogaster29,36. Эта линия, полученная из эмбрионов от 1 до 15 ч у мух, инфицированных Mel, также послужила источником Wolbachia для других клеточных линий дрозофилы: 1182-4H и S2R+37. Поскольку эмбрионы имеют высокую долю плюрипотентных клеток, адаптируясь к выращиванию в пластике, они могут приобретать новые характеристики, иногда отличающиеся для отдельных клеточных линий. Это может объяснить гетерогенность клеточной морфологии и частоту инфекции Wolbachia, наблюдаемую в этих клетках в любой момент времени и на протяжениипоколений.
Клеточное разнообразие в культуре JW18 вызывает обеспокоенность, поскольку исследования клеточных линий комаров, таких как Aag2, показали, что моноклональные и родительские клеточные линии могут по-разному реагировать на лечение из-за вариацийв клеточных характеристиках. Следовательно, применение лечения в популяции смешанных клеток может привести к вводящим в заблуждение результатам. Для изучения реакции гомогенной клеточной популяции на лечение (а не отбора по отдельным типам клеток) мы создали моноклональные культуры из родительской клеточной линии JW18. Ранее не предпринималось никаких попыток получения моноклональных культур из этих клеток. Протокол предполагает выделение одиночных клеток из родительской клеточной линии JW18 с последующим их поддержанием и переносом в колбы для создания непрерывных клональных культур. Мы проверили инфекционный статус Wolbachia отдельных линий, показав, что они различаются по этому ключевому признаку. Гомогенные клеточные культуры имеют решающее значение для обеспечения точности и воспроизводимости будущих экспериментов.
Протокол
ПРИМЕЧАНИЕ: Все работы с живыми клетками и их средами должны выполняться в шкафу биологической безопасности во избежание загрязнения.
1. Подготовка СМИ
- Приготовьте свежую питательную среду, дополнив среду Shield and Sang Insect 10% фетальной бычьей сывороткой (FBS).
- Отработанные и кондиционированные среды
- Выращивайте клетки JW18 в колбе 25 см2 со свежей средой Shield и Sang Insect с добавлением 10% FBS при температуре 25 °C. Инкубируйте до тех пор, пока клетки не достигнут слияния (~1 неделя).
- Отфильтруйте отработанную питательную среду возрастом 1 неделю, использованную для выращивания клеток, чтобы удалить вольбахию, клеточный мусор и другие загрязнения: используйте стерильный фильтр 5 мкм, а затем стерильный фильтр 0,2 мкм, установленный на шприце объемом 50 мл.
- Приготовьте кондиционированную среду, добавив в свежую среду 20% отработанной среды. Подготовить достаточно кондиционированной среды для одного 96-луночного планшета (~30 мл); С помощью серологической пипетки смешайте 6 мл отфильтрованной отработанной среды с 24 мл свежей среды Shield и Sang Insect с добавлением 10% FBS.
2. Подготовка 96-луночного планшета
- Приготовление клеточной суспензии JW18
- Соскребите клетки из сливающейся колбы возрастом 1 неделя с помощью скребка для клеток и повторно суспендируйте их с помощью серологической пипетки.
- Подсчитайте клетки с помощью камеры Нейбауэра и разбавьте их кондиционированной средой для достижения конечной концентрации 2 x 10³ клеток/мл.
- Добавление кондиционированной среды в пластину
- Переложите подготовленную кондиционированную среду в резервуар с реагентом.
- С помощью многоканальной пипетки добавьте по 100 мкл кондиционированной среды в каждую лунку 96-луночного планшета, за исключением лунки А1.
- Серийное разведение клеточной суспензии
- Добавьте 200 мкл клеточной суспензии в лунку А1.
- С помощью одноканальной пипетки переведите 100 мкл из лунки A1 в лунку B1 и аккуратно перемешайте (избегайте образования пузырьков), как показано на рисунке 1A.
- Повторите серийное разбавление вниз по столбцу 1, отбросив последние 100 мкл из последней лунки.
- Разбавление по тарелке
- Добавьте по 100 мкл кондиционированной среды в каждую лунку в первой колонне, общий объем составит 200 мкл. Аккуратно перемешайте.
- С помощью многоканальной пипетки переведите 100 мкл из первой колонки во вторую. Аккуратно перемешайте.
- Повторите этот процесс для всех столбцов (1-12) на пластине (рисунок 1A).
- После повторного суспензирования выбросьте 100 мкл из последней колонки. На этом этапе каждая лунка содержит 100 мкл клеточной суспензии.
- Добавьте еще 100 мкл питательной среды во все лунки, доведя конечный объем в каждой лунке до 200 мкл.
3. Идентификация одиночных клеток
- Накройте пластину, запечатайте ее парапленкой и наклейте соответствующую этикетку.
- Понаблюдайте за планшетом под микроскопом, тщательно проверяя каждую лунку на наличие отдельных клеток (рисунок 1B). Обязательно тщательно просканируйте лунки и края, чтобы подтвердить наличие только одной ячейки.
ПРИМЕЧАНИЕ: Это один из самых важных шагов в протоколе. - Запишите количество одиночных ячеек на 96-луночной планшетной карте (на бумаге).
ПРИМЕЧАНИЕ: Одиночные ячейки с большей вероятностью могут быть обнаружены в лунках справа и внизу пластины. - После идентификации и маркировки отдельных клеток храните планшет в инкубаторе при температуре 25 °C. Следите за клетками каждые 2 дня.
4. Обслуживание и перенос ячеек
- Мониторинг ячеек
Примечание: Клеткам JW18 обычно требуется 3 дня, чтобы начать деление из одной клетки, и клональные популяции могут расти с разной скоростью (Рисунок 2).- Каждые 2-3 дня следите за лунками на предмет бактериального загрязнения и следите за тем, чтобы среда не пересыхала. Если лунки высыхают, долите в них свежую среду по мере необходимости.
- Расширение ячеек
- Как только клетки достигнут слияния в 96-луночном планшете, перенесите их на 24-луночный планшет (рис. 1D).
- Затем переложите ячейки в 6-луночный планшет и, наконец, в колбу (рис. 1E, F).
Примечание: Это ступенчатое расширение увеличивает вероятность создания непрерывной клональной клеточной линии.
- Замораживание клеток
- После того, как клональная культура создана, заморозьте часть клеток для использования в будущем.
- Соскребите клетки из колбы с помощью скребка для клеток и переложите их в центрифужную пробирку объемом 15 мл. Центрифуга при 250 x g в течение 5 мин при 4 °C.
- Приготовьте 2x замораживающую среду (Shield and Sang Insect Medium с добавлением 20% FBS и 10% DMSO).
- После центрифугирования выбросьте часть надосадочной жидкости, оставив половину от конечного желаемого объема. Добавьте равный объем 2-кратного замораживающего средства к оставшемуся надосадочной жидкости и аккуратно суспендируйте гранулу с помощью пипетки.
- Внесите 1 мл суспензии в каждую по 1,5 мл криовиала и поместите флаконы на лед. Храните флаконы при температуре −80 °C в течение ночи, затем на следующий день переложите их в резервуар с жидким азотом для длительного хранения.
- После того, как клональная культура создана, заморозьте часть клеток для использования в будущем.
5. ПЦР для подтверждения статуса Wolbachia
- Извлечь ДНК из образцов моноклональной культуры фенол-хлороформным методом39.
- Поместите 1 мл конфлюентных соскобленных и ресуспендированных клеток в среду в микроцентрифужную пробирку объемом 1,5 мл и центрифугируйте клетки при температуре 290 x g в течение 5 минут при 4 °C. Выбросьте надосадочную жидкость (среду для культивирования клеток) и поместите пробирку на лед.
- Добавьте 250 мкл раствора А, который состоит из 0,1 М Tris HCl (pH 9,0), 0,1 М ЭДТА и 1% SDS. Ресуспендируйте клетки и инкубируйте при температуре 70 °C в течение 30 минут в нагревательном блоке.
- После инкубации добавьте 35 мкл 8 М ацетата калия, осторожно встряхните пробирку (не допуская завихрения) и инкубируйте на льду еще 30 минут.
- Вращайте со скоростью 13 000 об/мин в течение 15 минут при 4 °C, перенесите надосадочную жидкость в новую пробирку и добавьте равное количество фенол-хлороформа. Хорошенько встряхните и снова встряхните, повторив этот шаг один раз.
- Перенесите надосадочную жидкость в новую пробирку, затем добавьте 150 μл изопропанола, встряхните и вращайте со скоростью 10 000 об/мин в течение 5 минут. Осторожно удалите надосадочную жидкость, промойте гранулу 1 мл 70% этанола и отжмите со скоростью 13 000 об/мин.
- После сушки гранулы в течение 10 минут при комнатной температуре повторно суспендируйте ее в 100 μл TE-буфера. Количественно оцените ДНК и храните при температуре -20 °C.
- Проведите обычную ПЦР с ДНК, выделенной из образцов моноклональной культуры, чтобы обнаружить Wolbachia с использованием мастер-микса DreamTaq Green PCR. Используйте праймеры wsp 81F и wsp 691Rдля Wolbachia и Drosophila rpl32 праймеры41 для контроля качества ДНК.
- Добавьте 7,5 мкл мастер-смеси, 0,5 мкл каждого праймера в концентрации 10 мкМ, 1 мкл ДНК, разбавленной в соотношении 1:50, и 5,5 мкл молекулярной воды, чтобы получить 15 мкл реакционной смеси.
- Используйте следующую программу ПЦР: 94 °C в течение 4 мин, 30 циклов x (94 °C в течение 40 сек, 55 °C в течение 40 сек, 72 °C в течение 30 сек), 72 °C в течение 10 мин. После ПЦР сохраните образцы при температуре 4 °C.
- Электрофорез в агарозном геле в 2% агарозном геле в буфере ТАЭ при напряжении 90 В с полученными продуктами ПЦР проводят для визуализации полос. Добавьте рядом лестницу ДНК, чтобы определить полосы для wsp (632.о.) и rpl32 (194.о.).
6. Окрашивание FISH для визуализации инфекции Wolbachia в клеточных линиях
- Выполните флуоресцентную гибридизацию in situ (FISH), как описано в протоколе Stellaris FISH, для окрашивания адгезивных клеток Wolbachia с помощью набора зондов 16s rRNA FISH, меченного Quasar 670. Окрасьте нуклеиновые кислоты препаратом Hoechst 33342.
ПРИМЕЧАНИЕ: Этот набор зондов был разработан на основе последовательности рДНК wMel 16S и соответствует набору зондов, опубликованному в Schneider et al.42 (см . Дополнительную таблицу S1).- Приготовьте реагенты (буфер для фиксации, буфер для гибридизации, буфер для промывки А и В, восстановленный набор зондов) в соответствии с инструкциями производителя43.
- Адгезивные клетки выращивают на стерилизованном 70% этанолом круглом покровном стекле толщиной 18 мм в 24-луночном культуральном планшете. Как только клетки достигнут желаемого слияния, аспирируйте питательную среду и промойте 1 мл 1x PBS. Добавьте 1 мл фиксирующего буфера и инкубируйте при комнатной температуре в течение 10 минут. Дважды промойте ячейки 1 мл 1x PBS.
- Пермеабилизировать путем погружения покровного стекла с клетками в 1 мл 70% этанола и инкубировать в течение ночи при 4 °C; Храните образцы в этаноле при этой температуре до 1 недели до гибридизации. Отсадите этанол и добавьте 1 мл промывочного буфера А; Выдерживать при комнатной температуре 2-5 мин.
- Подготовьте увлажненную камеру, поместив пропитанное водой бумажное полотенце и слой парапленки в 150-миллиметровую чашку для культуры. Пипетка 100 мкл гибридизационного буфера, содержащего 1 мкл 12,5 мкМ зонда, нанесите на парапленку. Аккуратно переверните покровное стекло, положив ячейки вниз на каплю гибридизационного буфера. Накройте и запечатайте камеру парапленкой, затем выдерживайте в темноте при температуре 37 °C не менее 4 часов (при необходимости до 16 часов).
- После гибридизации осторожно перенесите ячейки покровного стекла вверх в свежую лунку, содержащую 1 мл буфера для промывки, и инкубируйте при 37 °C в течение 30 минут. Отсадите буфер и добавьте 0,5 мкл 20 мМ материала Hoechst к 700 мкл промывочного буфера А; Выдерживать при температуре 37 °C в течение 30 минут в темноте.
- Удалите раствор Hoechst и добавьте 1 мл буфера для стирки B; Выдерживать при комнатной температуре 2-5 мин. Наконец, поместите небольшую каплю (10 мкл) монтажного материала на предметное стекло микроскопа и установите ячейки защитного стекла на каплю стороной вниз. Аккуратно отведите излишки монтажного носителя и заклейте периметр покровного стекла прозрачным лаком для ногтей.
- Храните предметные стекла при температуре 4 °C и как можно скорее приступайте к визуализации.
- Обработайте изображения с помощью ImageJ44. Разделите каналы и измените цветовую палитру по мере необходимости.
Результаты
Мы визуализировали процесс создания моноклональных культур с помощью световой микроскопии от дня приготовления суспензии и осаждения одиночных клеток (день 0) до создания непрерывных клеточных линий (день 45 или 77, рис. 2). Первые признаки деления клеток наблюдались на 3-й день (через 4 дня после осаждения, так как осаждение проводилось на 0-й день), когда в лунке уже было четыре клетки (рис. 2). На 14-й день клоны выросли либо в виде монослоя (JW18-B9, C7 и E5), либо в виде сферы (JW18-G4), которая была разрушена во время прохода. На 28-й день различия в росте между клеточными линиями были наиболее очевидными. Культура JW18-C7 была слита на 45-й день, в то время как остальные клональные культуры были сформированы только на 77-й день. Мы также визуализировали четыре различные культуры через 30 пассажей после укоренения, чтобы зафиксировать различия в морфологии клеток (рис. 3).
Для определения инфекционного статуса Wolbachia моноклональных культур проводили ПЦР (рис. 4) и FISH (рис. 5). Мы заметили, что все клоны, кроме одного (JW18-C7), продуцировали полосу для гена wsp , что указывает на инфекцию Wolbachia . FISH подтвердил результаты ПЦР: клоны JW18-B9, JW18-E5 и JW18-G4 сохранили инфекцию Wolbachia , в то время как клон JW18-C7 не имел Wolbachia. В целом, из смешанной популяции клеток JW18 нам удалось создать четыре клональные культуры, три из которых сохранили исходную инфекцию Wolbachia . Доступ к необработанным данным можно получить по адресу Figshare: https://figshare.com/s/15fde47ca7338f31dda9.
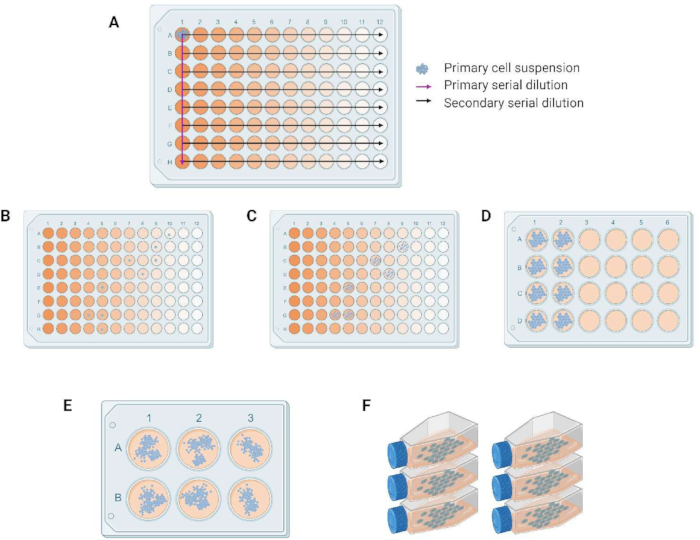
Рисунок 1: Рабочий процесс для получения моноклональных культур. (A) Первичные и вторичные разведения в 96-луночном планшете. (B) Одиночные клетки после серийного разведения. (К-Е) Прогрессирование в размножении ячеек и перенос с 96-луночного на 24- и 6-луночный планшеты соответственно. (F) Непрерывные культуры в колбах с клеточными культурами размером 25 см2 . Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этой цифры.
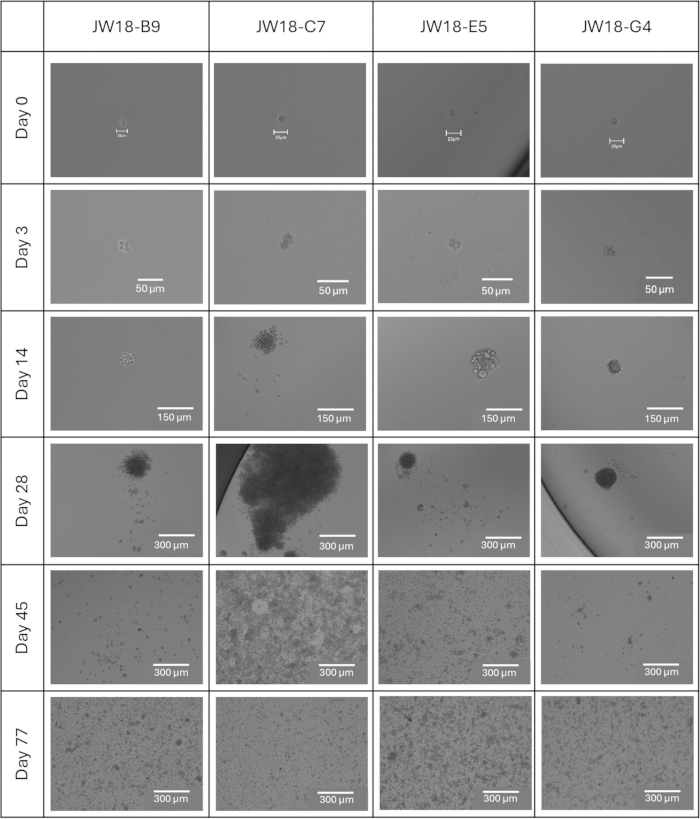
Рисунок 2: Прогрессия клональных линий JW18 от одноклеточной к многоклеточной культуре. Светлопольные изображения клональных линий с 0-го дня (день осаждения) до 77-го дня, когда все линии были успешно установлены в колбе для клеточных культур размером 25см2 . Масштабные линейки = 25 μм (день 0), 50 μм (день 3), 150 μм (день 14), 300 μм (дни 28, 45, 77). Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этой цифры.
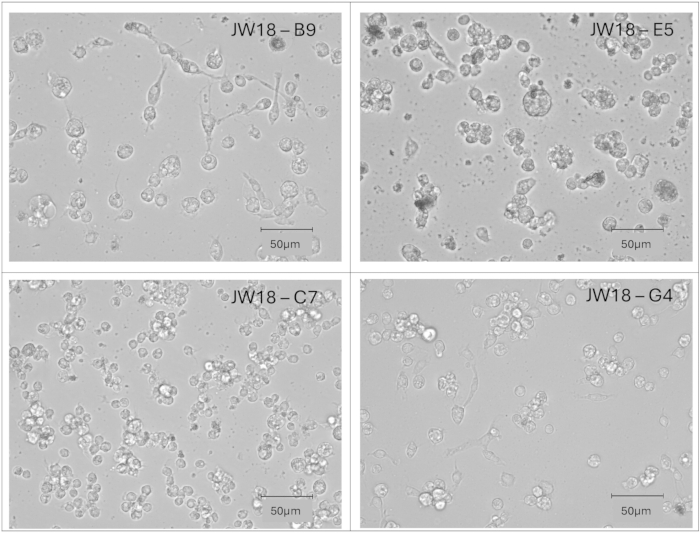
Рисунок 3: Морфология отдельных клональных линий JW18. Светлые изображения клональных линий, показывающие морфологию клеток на 30-м пассаже после установления. Масштабные линейки = 50 μм. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
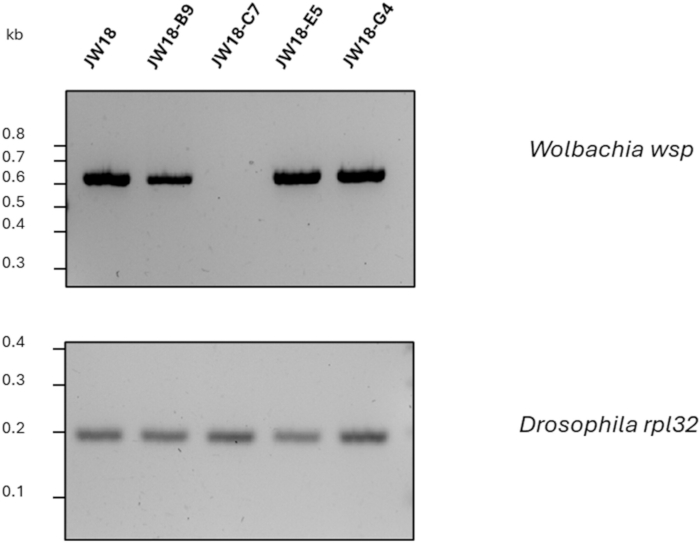
Рисунок 4: Статус Wolbachia клональных культур, исследованных методом ПЦР. ПЦР на Wolbachia в родительской клеточной линии JW18 и клональных линиях JW18-B9, JW18-C7, JW18-E5 и JW18-G4 в пассаже 11 после установления. Полоса Wolbachiawsp подтверждает наличие Wolbachia, в то время как полоса Drosophilarpl32 является ПЦР для контроля качества ДНК. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этой цифры.
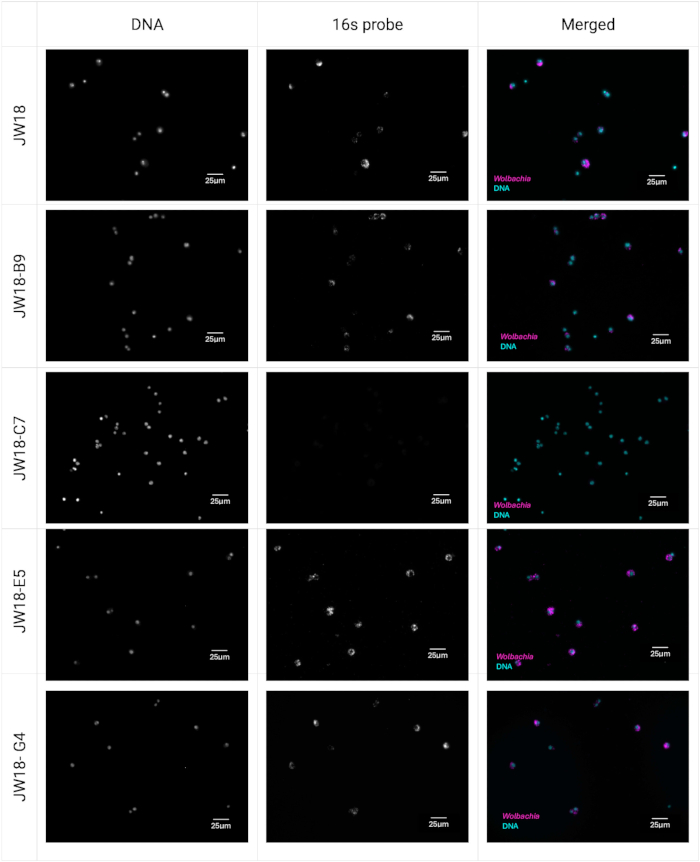
Рисунок 5: Статус Wolbachia в клональных культурах, изученных с помощью FISH. Родительская клеточная линия JW18 и клоны JW18-B9, JW18-C7, JW18-E5, JW18-G4 визуализированы с помощью окрашивания FISH в пассаже 13 после укоренения. Wolbachia окрашена зондом 16s rRNA Stellaris FISH, помеченным Quasar 670, в пурпурный цвет, а нуклеиновые кислоты окрашены Hoechst 33342 в голубой цвет. Масштабные линейки = 25 μм. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
Дополнительная таблица S1: Олигонуклеотидные зонды, разработанные против Wolbachia wMel 16S рДНК и их сравнение со зондами, опубликованными Schneider et al.42. Пожалуйста, нажмите здесь, чтобы скачать эту таблицу.
Обсуждение
В этой статье мы опишем стандартизированный метод получения клонов одиночных клеток из клеточной линии JW18 D.melanogaster, который может быть применен к другим клеточным линиям дрозофил и насекомых. Протокол включает в себя последовательное разведение подготовленной клеточной суспензии на 96-луночной пластине для выделения отдельных клеток. Затем эти клетки инкубируются в оптимальных условиях для создания непрерывных культур. Протокол также включает добавление 20% кондиционированных сред для стимулирования выживания клеток и деления одиночных клеток 45,46.
Важнейшим этапом протокола является проверка наличия одной ячейки в каждой скважине после серийного разведения. Этот шаг требует тщательного внимания, так как он имеет важное значение для успеха всего протокола. Чтобы облегчить последующее подтверждение происхождения одиночных ячеек, рекомендуется делать снимки выбранных скважин с разных ракурсов.
Еще одним ключевым этапом является перенос клеток между чашками для культивирования. Чтобы обеспечить успешное создание непрерывной культуры, клетки следует переносить только после того, как они достигнут слияния. Если рост клеток застаивается более двух недель, обновление среды может способствовать дальнейшему росту. Преждевременный перенос клеток до слияния может привести к гибели клеток.
Несмотря на то, что этот протокол является более трудоемким и трудоемким по сравнению с другими широко используемыми методами, такими как сортировка флуоресцентно-активируемых клеток (FACS)38,46, он имеет ряд преимуществ. К ним относятся экономичность, минимальный риск повреждения клеток, отсутствие необходимости в флуоресцентных маркерах, дорогостоящее оборудование и время оптимизации. В целом, этот протокол хорошо подходит для создания однородных клеточных популяций насекомых из непрерывных клеточных линий.
Свойства моноклональных культур
Наши результаты показывают, что моноклональные культуры различаются по скорости их приживаемости и инфекционному статусу Wolbachia (рис. 2, рис. 4 и рис. 5). Клон JW18-C7, свободный от волбахии, был самым быстрым из тех, кто достиг слияния в нашем протоколе выделения одиночных клеток. Wolbachia могла либо всегда отсутствовать в этой клеточной линии, либо быть утраченной из-за неспособности идти в ногу со скоростью деления клетки-хозяина. Он также мог быть утерян из-за изначальной низкой плотности клеток в нашем протоколе клонирования. Однако, поскольку этого не произошло с другими клональными клеточными линиями, мы считаем это маловероятным. Экспериментальное заражение JW18-C7 Wolbachia (наряду с другими клонами, обработанными тетрациклином) может ответить на вопрос, является ли эта линия допустимой для симбионта.
Клеточная гетерогенность не уникальна для клеточной линии JW18 и ранее была описана для других инфицированных Wolbachia клеточных линий 32,47,48,49,50,51,52. Предыдущая попытка его улучшения включала перенос Wolbachia из яиц D. simulans или клеток Aa23 в клетку C7-10 A. albopictus 53. C7-10 был клонирован за много лет до переноса Wolbachia 54,55, и эти переносы не представляют собой естественную инфекцию, которую мы намерены изучать.
Разница в инфекционном статусе Wolbachia и времени создания моноклональной культуры (указывающая на различия в скорости деления клеток) для отдельных клонов JW18 может иметь глубокие последствия для предыдущих исследований, связывающих титр Wolbachia и скорость роста клеток насекомых в ответ на специфические методы лечения. Изменение количества клеток, плотность симбионтов или изменения в экспрессии генов после лечения могут быть результатом отбора типов клеток со специфическими свойствами, а не изменений в состоянии всех клеток в смешанной популяции. Таким образом, применение лечения в популяции смешанных клеток с вариабельностью ключевых характеристик может привести к предвзятым, невоспроизводимым результатам.
Раскрытие информации
У авторов нет конфликта интересов, который можно было бы раскрыть.
Благодарности
Благодарим Уильяма Салливана (Калифорнийский университет, Санта-Круз, США), Лауру Сербус (Международный университет Флориды, США) и Луиса Тейшейру (Католический университет Португалии, Лиссабон, Португалия) за клеточную линию JW18 и полезные советы по работе с ней. Мы благодарны Нидхи Кришне Шриваставе (Ягеллонский университет, Краков, Польша) за полезные предложения по протоколу. Выражаем благодарность Юлии Чикуновой (Ягеллонский университет, Краков, Польша) за корректуру рукописи.
Рисунок 1 был создан с помощью BioRender (Chrostek, E. (2024) https://BioRender.com/o69b306).
Эта работа поддерживается стартовым грантом ERC (ID соглашения о гранте: 101040311), присужденным EC, и докторской стипендией от Докторской школы точных и естественных наук (Ягеллонский университет), присужденной NF. Тем не менее, выраженные взгляды и мнения принадлежат только авторам и не обязательно отражают точку зрения Европейского Союза или Исполнительного агентства Европейского исследовательского совета. Ни Европейский Союз, ни орган, предоставляющий грант, не могут нести за них ответственность.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| 0,22 & микро; m шприц fliter | ТЭС | 99722 | Стерильный |
| 10x Фосфатно-солевой буфер (PBS) | ThermoFisher Scientific | 70011044 | Стерильный |
| Круглое защитное стекло 12 или 18 мм | Любой бренд | ||
| Пробирки Falcon 15 мл | Генопласт | 601052 | Стерильный |
| 24-луночный планшет | CytoOne | СС7682-7524 | Обработанная культура тканей |
| 5 и микро; Шприцевой фильтр М | Ватман | 10462000 | Стерильный |
| 6-луночный планшет | CytoOne | СС7682-7506 | Обработанная культура тканей |
| 96-луночный планшет | CytoOne | СС7682-7596 | Обработанная культура тканей |
| Агароза | ThermoFisher Scientific | Дж66501.30 | |
| Колба для клеточных культур, 25 см<суп>2 | Greiner Bio-one | 391-3103 | Стерильный |
| Скребки для ячеек | Greiner Bio-one | 391-3010 | Стерильный |
| Прозрачный лак для ногтей | Любой бренд | ||
| Флаконы CryoPure | Сарштедт | 72.379 | Стерильный |
| ДМСО, сорт клеточной культуры | Мерк | D2650-100МЛ | Стерильный |
| Мастер-микс DreamTaq PCR | ThermoFisher Scientific | К1081 | |
| ЭДТА | Мерк | 324503-100ГМ | Стерильный |
| Источник питания для электрофореза | Мерк | ПС 251-2 | |
| Eppendorf Концентратор Плюс | Мерк | EP5305000509 | Вместо него можно использовать вакуумный концентратор любой марки. |
| Этанол | Мерк | 1009861000 | |
| Система визуализации EVOS M5000 | ThermoFisher Scientific | AMF5000 | Для контроля за прогрессией клонирования можно использовать инвертированный микроскоп любой марки. Для визуализации FISH необходим флуоресцентный микроскоп. |
| Фетальная бычья сыворотка | Мерк | Ф9665 | Термоинактивированный |
| Формальдегид | ThermoFisher Scientific | 047377.9Л | |
| Формамид | Мерк | Ф7503-100МЛ | |
| Емкости для гель-электрофореза | Наука о тесаке | МСМИДИ | |
| Гелевый имиджер | БиоРад | 12009077 | Система визуализации GelDoc Go Gel |
| Лестница для ДНК GeneRuler 100.о. | ThermoFisher Scientific | СМ0243 | |
| Нагревательный блок | ThermoFisher Scientific | 88870005 | |
| Herasafe 2025 Класс II Шкаф биологической безопасности | ThermoFisher Scientific | 51033314 | Шкаф биологической безопасности любой марки может быть использован при условии, что он поддерживает стерильную среду внутри. |
| Hoechst 33342 Раствор (20 мМ) 5 мл | ThermoFisher Scientific | 62249 | Хранить в темное время суток. |
| Соляная кислота | Мерк | 258148-2,5 л | |
| Integra Biosciences Corp PIPETBOY acu 2 Пипетка Aid | Научный центр Фишера | NC0085686 | Можно использовать серологический пипеточный аппарат любой марки. |
| Изопропанол | Мерк | И9516-1Л | |
| Лабораторная морозильная камера | Liebherr | LGUex 1500 MediLine | Подойдет любая морозильная камера, способная поддерживать постоянную температуру. |
| Бак для жидкого азота | ThermoFisher Scientific | CY50985 | |
| Предметные стекла для микроскопа | Мерк | CLS294875X25-72 шт. | |
| Молекулярная вода | |||
| Многоканальный пипетка | Эппендорф | 3125000036 | |
| Нанокапли | Пеклаб | НД-1000 | |
| Гемоцитометр Нейбауэра | Мерк | BR717810-1 шт. | |
| Парафильм M Уплотнительная пленка | Мерк | HS234526B-1 шт. | |
| Инкубатор с охлаждением Пельтье | Меммерт | IPP55plus | Любой инкубатор способен поддерживать постоянные 25? С подходит. Для клеточной линии JW18 или ее клонов не требуется контроль CO2. |
| Фенол/хлороформ/изоамиловый спирт (25:24:1) | ThermoFisher Scientific | 327115000 | |
| Набор пипеток | Эппендорф | EP2231300008 | |
| Ацетат калия | Мерк | П1190-500Г | Стерильный |
| Квазар 670-помеченный 16s зонд rRNA FISH набор | Биопоисковые технологии | Изготовленные на заказ, последовательности зондов можно найти в Таблице 1. | |
| Охлаждаемая микроцентрифуга | Лабнет | С2500-Р | |
| rpl32 капсюль форвард 5'-CCGCTTCAAGGGACAGTATC-3' | Геномика Eurofins | Изготовлено на заказ на основе ссылки, приведенной в статье | |
| rpl32 капсюль обратный 5'-CAATCTCCTTGCGCTTCTTG-3' | Геномика Eurofins | Изготовлено на заказ на основе ссылки, приведенной в статье | |
| Паспорт безопасности | ThermoFisher Scientific | АМ9823 | Стерильный |
| Серологические пипетки | Корнинг | 357771 | |
| Щиты и санг M3 Insect Medium | Мерк | С8398 | Стерильный |
| Буфер для гибридизации Stellaris RNA FISH | Биопоисковые технологии | СМФ-НВ1-10 | Стерильный |
| Stellaris RNA FISH Буфер для промывки A | Биопоисковые технологии | SMF-WA1-60 | Стерильный |
| Stellaris RNA FISH Буфер для промывки B | Биопоисковые технологии | СМФ-ВБ1-20 | Стерильный |
| Резервуары для стерильных реагентов | ThermoFisher Scientific | 8094 | Стерильный |
| Буфер TAE | Мерк | 1061741000 | 1х |
| TE буфер | Мерк | 93283 | Стерильный |
| Термоамплификатор | Компания «Синген Биотех» | Термоблок 96 | Вместо него можно использовать термоамплификатор любой марки. |
| База Tris | Мерк | 10708976001 | Стерильный |
| Сверхнизкотемпературная морозильная камера | Корпорация PHC | МДФ-DU502VH-ПЭ | Любая лабораторная морозильная камера, способная поддерживать температуру -80 ? Можно использовать C. |
| Vectashield Монтажный средний | Лаборатория «Вектор» | Н-1000-10 | |
| wsp праймер форвард 5'-TGGTCCAATAAGTGATGAAGAAAC-3' | Геномика Eurofins | Изготовлено на заказ на основе ссылки, приведенной в статье | |
| wsp грунтовка обратная 5'-AAAAATTAAAACGCTACTCCA-3' | Геномика Eurofins | Изготовлено на заказ на основе ссылки, приведенной в статье |
Ссылки
- Luhur, A., Klueg, K. M., Zelhof, A. C. Generating and working with Drosophila cell cultures: current challenges and opportunities. Wiley Interdiscip Rev Dev Biol. 8 (3), e339(2019).
- Hilgenboecker, K., Hammerstein, P., Schlattmann, P., Telschow, A., Werren, J. H. How many species are infected with Wolbachia? A statistical analysis of current data. FEMS Microbiol Lett. 281 (2), 215-220 (2008).
- Zug, R., Hammerstein, P. Still a host of hosts for Wolbachia: analysis of recent data suggests that 40% of terrestrial arthropod species are infected. PLoS One. 7 (6), e38544(2012).
- Weinert, L. A., Araujo-Jnr, E. V., Ahmed, M. Z., Welch, J. J. The incidence of bacterial endosymbionts in terrestrial arthropods. Proc R Soc B. 282 (1807), 20150249(2015).
- Hoffmann, A. A., Turelli, M. Unidirectional incompatibility in Drosophila simulans: inheritance, geographic variation and fitness effects. Genetics. 119 (2), 435-444 (1988).
- O'Neill, S. L., Giordano, R., Colbert, A. M., Karr, T. L., Robertson, H. M. 16S rRNA phylogenetic analysis of the bacterial endosymbionts associated with cytoplasmic incompatibility in insects. Proc Natl Acad Sci U S A. 89 (7), 2699-2702 (1992).
- Stouthamer, R., Breeuwer, J. A. J., Luck, R. F., Werren, J. H. Molecular identification of microorganisms associated with parthenogenesis. Nature. 361 (6407), 66-68 (1993).
- Rousset, F., Bouchon, D., Pintureau, B., Juchault, P., Solignac, M. Wolbachia endosymbionts responsible for various alterations of sexuality in arthropods. Proc R Soc Lond B Biol Sci. 250 (1328), 91-98 (1992).
- Hedges, L. M., Brownlie, J. C., O'Neill, S. L., Johnson, K. N. Wolbachia and virus protection in insects. Science. 322 (5902), 702(2008).
- Teixeira, L., Ferreira, Á, Ashburner, M. The bacterial symbiont Wolbachia induces resistance to RNA viral infections in Drosophila melanogaster. PLoS Biol. 6 (12), e1000002(2008).
- Glaser, R. L., Meola, M. A. The native Wolbachia endosymbionts of Drosophila melanogaster and Culex quinquefasciatus increase host resistance to West Nile virus infection. PLoS One. 5 (8), e11977(2010).
- van den Hurk, A. F., et al. Impact of Wolbachia on infection with chikungunya and yellow fever viruses in the mosquito vector Aedes aegypti. PLoS Negl Trop Dis. 6 (11), e1892(2012).
- Aliota, M. T., et al. The wMel strain of Wolbachia reduces transmission of chikungunya virus in Aedes aegypti. PLoS Negl Trop Dis. 10 (4), e0004677(2016).
- Kean, J., et al. Fighting arbovirus transmission: natural and engineered control of vector competence in Aedes mosquitoes. Insects. 6 (1), 236-278 (2015).
- Joubert, D. A., et al. Establishment of a Wolbachia superinfection in Aedes aegypti mosquitoes as a potential approach for future resistance management. PLoS Pathog. 12 (2), e1005434(2016).
- Ross, P. A. Designing effective Wolbachia release programs for mosquito and arbovirus control. Acta Trop. 222, 106045(2021).
- Flores, H. A., O'Neill, S. L. Controlling vector-borne diseases by releasing modified mosquitoes. Nat Rev Microbiol. 16 (8), 508-518 (2018).
- Pannebakker, B. A., Loppin, B., Elemans, C. P. H., Humblot, L., Vavre, F. Parasitic inhibition of cell death facilitates symbiosis. Proc Natl Acad Sci U S A. 104 (1), 213-215 (2007).
- Hosokawa, T., Koga, R., Kikuchi, Y., Meng, X. -Y., Fukatsu, T. Wolbachia as a bacteriocyte-associated nutritional mutualist. Proc Natl Acad Sci U S A. 107 (2), 769-774 (2010).
- Zheng, Y., et al. Differentially expressed profiles in the larval testes of Wolbachia-infected and uninfected Drosophila. BMC Genomics. 12 (1), 595(2011).
- Xi, Z., Gavotte, L., Xie, Y., Dobson, S. L. Genome-wide analysis of the interaction between the endosymbiotic bacterium Wolbachia and its Drosophila host. BMC Genomics. 9 (1), 1(2008).
- Lindsey, A. R. I., Bhattacharya, T., Hardy, R. W., Newton, I. L. G. Wolbachia and virus alter the host transcriptome at the interface of nucleotide metabolism pathways. mBio. 12 (1), e03472-e03520 (2021).
- Detcharoen, M., Schilling, M. P., Arthofer, W., Schlick-Steiner, B. C., Steiner, F. M. Differential gene expression in Drosophila melanogaster and D. nigrosparsa infected with the same Wolbachia strain. Sci Rep. 11 (1), 11336(2021).
- Gruntenko, N. E., et al. Drosophila melanogaster transcriptome response to different Wolbachia strains. Int J Mol Sci. 24 (24), 17411(2023).
- Frantz, S. I., Small, C. M., Cresko, W. A., Singh, N. D. Ovarian transcriptional response to Wolbachia infection in D. melanogaster in the context of between-genotype variation in gene expression. G3 (Bethesda). 13 (5), jkad047(2023).
- McMeniman, C. J., et al. Host adaptation of a Wolbachia strain after long-term serial passage in mosquito cell lines. Appl Environ Microbiol. 74 (22), 6963-6969 (2008).
- Woolfit, M., et al. Genomic evolution of the pathogenic Wolbachia strain, wMelPop. Genome Biol Evol. 5 (11), 2189-2204 (2013).
- Martinez, J., Sinkins, S. P. Rapid evolution of Wolbachia genomes in mosquito cell culture. bioRxiv. , (2023).
- Serbus, L. R., et al. A cell-based screen reveals that the albendazole metabolite, albendazole sulfone, targets Wolbachia. PLoS Pathog. 8 (9), e1002922(2012).
- Grobler, Y., et al. Whole genome screen reveals a novel relationship between Wolbachia levels and Drosophila host translation. PLoS Pathog. 14 (11), e1007445(2018).
- Rainey, S. M., et al. Wolbachia blocks viral genome replication early in infection without a transcriptional response by the endosymbiont or host small RNA pathways. PLoS Pathog. 12 (4), e1005536(2016).
- O'Neill, S. L., et al. In vitro cultivation of Wolbachia pipientis in an Aedes albopictus cell line. Insect Mol Biol. 6 (1), 33-39 (1997).
- Fenollar, F., Maurin, M., Raoult, D. Wolbachia pipientis growth kinetics and susceptibilities to 13 antibiotics determined by immunofluorescence staining and real-time PCR. Antimicrob Agents Chemother. 47 (5), 1665-1671 (2003).
- Fallon, A. M., Witthuhn, B. A. Proteasome activity in a naïve mosquito cell line infected with Wolbachia pipientis wAlbB. In Vitro Cell Dev Biol Anim. 45 (8), 460-466 (2009).
- Molloy, J. C., Sommer, U., Viant, M. R., Sinkins, S. P. Wolbachia modulates lipid metabolism in Aedes albopictus mosquito cells. Appl Environ Microbiol. 82 (10), 3109-3120 (2016).
- Andrianov, B. V., Goriacheva, I. I., Alexandrov, I. D., Gorelova, T. V. Establishment of a new continuous cell line of Drosophila melanogaster strain infected by the intracellular endosymbiotic bacterium Wolbachia pipientis under natural conditions. Russ J Genet. 46 (1), 9-12 (2010).
- Fattouh, N., Cazevieille, C., Landmann, F. Wolbachia endosymbionts subvert the endoplasmic reticulum to acquire host membranes without triggering ER stress. PLoS Negl Trop Dis. 13 (3), e0007218(2019).
- Fredericks, A. C., et al. Aedes aegypti (Aag2)-derived clonal mosquito cell lines reveal the effects of pre-existing persistent infection with the insect-specific bunyavirus Phasi Charoen-like virus on arbovirus replication. PLoS Negl Trop Dis. 13 (11), e0007346(2019).
- Kirby, K. S. A new method for the isolation of ribonucleic acids from mammalian tissues. Biochem J. 64 (3), 405-408 (1956).
- Zhou, W., Rousset, F., O'Neill, S. Phylogeny and PCR–based classification of Wolbachia strains using wsp gene sequences. Proc R Soc Lond B Biol Sci. 265 (1395), 509-515 (1998).
- Chrostek, E., et al. Wolbachia variants induce differential protection to viruses in Drosophila melanogaster: a phenotypic and phylogenomic analysis. PLoS Genet. 9 (12), e1003896(2013).
- Schneider, D. I., Parker, A. G., Abd-alla, A. M., Miller, W. J. High-sensitivity detection of cryptic Wolbachia in the African tsetse fly (Glossina spp). BMC Microbiol. 18 (S1), 140(2018).
- Stellaris RNAFISH protocol for adherent cells. , LGC Biosearch Technologies. https://biosearchassets.biosearchtech.com/assetsv6/bti_stellaris_protocol_adherent_cell.pdf (2021).
- Schneider, C. A., Rasband, W. S., Eliceiri, K. W. NIH Image to ImageJ: 25 years of image analysis. Nat Methods. 9 (7), 671-675 (2012).
- Freshney, I. Cloning and selection. Culture of Animal Cells: a Manual of Basic Technique. , 207(2010).
- Housden, B. E., et al. Identification of potential drug targets for tuberous sclerosis complex by synthetic screens combining CRISPR-based knockouts with RNAi. Sci Signal. 8 (393), (2015).
- Fenollar, F., et al. Culture and phenotypic characterization of a Wolbachia pipientis isolate. J Clin Microbiol. 41 (12), 5434-5441 (2003).
- Dobson, S. L., Marsland, E. J., Veneti, Z., Bourtzis, K., O'Neill, S. L. Characterization of Wolbachia host cell range via the in vitro establishment of infections. Appl Environ Microbiol. 68 (2), 656-660 (2002).
- Frentiu, F. D., Robinson, J., Young, P. R., McGraw, E. A., O'Neill, S. L. Wolbachia-mediated resistance to dengue virus infection and death at the cellular level. PLoS One. 5 (10), e13398(2010).
- Voronin, D. A., Bochernikov, A. M., Baricheva, E. M., Zakharov, I. K., Kiseleva, E. V. Influence of Drosophila melanogaster genotype on biological effects of endosymbiont Wolbachia (stamm wMelPop). Tsitologiia. 51 (4), 335-345 (2009).
- Venard, C. M. -P., Crain, P. R., Dobson, S. L. SYTO11 staining vs FISH staining: a comparison of two methods to stain Wolbachia pipientis in cell cultures. Lett Appl Microbiol. 52 (2), 168-176 (2011).
- Casper-Lindley, C., et al. Rapid fluorescence-based screening for Wolbachia endosymbionts in Drosophila germ line and somatic tissues. Appl Environ Microbiol. 77 (14), 4788-4794 (2011).
- Khoo, C. C. H., Venard, C. M. P., Fu, Y., Mercer, D. R., Dobson, S. L. Infection, growth and maintenance of Wolbachia pipientis in clonal and non-clonal Aedes albopictus cell cultures. Bull Entomol Res. 103 (3), 251-260 (2013).
- Singh, K. R. P. Cell cultures derived from larvae of Aedes albopictus (Skuse) and Aedes aegypti (L.). Curr Sci. 36 (19), 506-508 (1967).
- Nouri, N., Fallon, A. M. Pleiotropic changes in cycloheximide-resistant insect cell clones. In Vitro Cell Dev Biol. 23 (3), 175-180 (1987).
Перепечатки и разрешения
