Запор является распространенным продромальным признаком болезни Паркинсона (БП), который часто проявляется за годы до постановки диагноза. В этом исследовании был валидирован предложенный метод измерения запоров у Drosophila melanogaster, и был подтвержден дефицит в различных моделях моногенной болезни Паркинсона.
Методическая статья
Дефекты кишечного транзита у дрозофил на моделях моногенной болезни Паркинсона с использованием анализа на запор
В этой статье
Краткое содержание
Аннотация
Болезнь Паркинсона (БП) является распространенным нейродегенеративным двигательным расстройством и часто сопровождается несколькими немоторными симптомами. Среди последних проблемы с желудочно-кишечным трактом, в том числе запоры, часто возникают за годы до проявления трудностей передвижения и до установления диагноза БП. В недавнем исследовании был предложен метод измерения запора на модели мухи БП, которая экспрессирует человеческий альфа-синуклеин дикого типа. В этом исследовании мы рассмотрели осуществимость этого метода и проверили, приводят ли другие генетические модели болезни Паркинсона мухи в равной степени к запорам. Доступные линии мух были использованы для измерения уровня запоров в аутосомно-доминантных и рецессивных моделях БП, включая три различные мутантные линии дрозофилы человека, экспрессирующие альфа-синуклеин, и мух с дефицитом Pink1 и Parkin. Эти мухи и соответствующие контрольные группы были помещены на пищу синего цвета за день до эксперимента, чтобы вызвать появление синих фекальных пятен. В день эксперимента этих мух пересадили на стандартную кукурузную муку. Процентное соотношение синих фекальных пятен к общему количеству фекальных пятен регистрировалось и рассчитывалось каждые 90 минут. Различные модели БП мух показывают более медленное или неполное вытеснение пищи синего цвета по сравнению с соответствующими контрольными мухами. Таким образом, ранее предложенный метод измерения запоров был валидирован и применен к различным моделям мух с различными формами генетической болезни Паркинсона.
Введение
Болезнь Паркинсона (БП) — это нейродегенеративное заболевание, характеризующееся в первую очередь двигательной дисфункцией, включая основные диагностические признаки брадикинезии, ригидность и тремор. Несмотря на то, что болезнь Паркинсона наиболее известна своими моторными признаками, немоторные симптомы являются распространенными, включая депрессию, боль, нарушения сна и запоры 1,2. Часто эти немоторные симптомы проявляются на ранних стадиях заболевания и могут предшествовать моторным симптомам нанесколько лет. Распознавание этих немоторных особенностей на начальной стадии заболевания может иметь решающее значение для ранней диагностики БП, потенциально способствуя более своевременному вмешательству и лечению заболевания.
Запоры и изменения моторики кишечника обычно являются немоторными симптомами при БП и часто присутствуют задолго до появления двигательных симптомов 3,4. Кроме того, их тяжесть и частота увеличиваются при прогрессировании БП5. Тем не менее, наше понимание закономерностей и механизмов запоров остается ограниченным. Следовательно, раннее выявление запоров, связанных с болезнью Паркинсона, может помочь в диагностике болезни Паркинсона на стадии, когда терапевтические вмешательства могут быть более эффективными в замедлении прогрессирования заболевания. Несмотря на его значимость, понимание основных механизмов, вызывающих запор при БП, остается ограниченным, отчасти из-за отсутствия соответствующих экспериментальных моделей и дизайна. Последние достижения в изучении запоров у Drosophila melanogaster с использованием сверхэкспрессии альфа-синуклеина дикого типа человека представляют собой ценный инструмент для исследования механизмов, лежащих в основе этого раннего немоторного симптома.
SNCA, кодирующий альфа-синуклеин, представляет собой первую идентифицированную причину PD7. Как размножение генов (дупликация и трипликация), так и точечные мутации в SNCA приводят к аутосомно-доминантному наследованию PD8. Примечательно, что запоры поражают до 90% пациентов, являющихся носителями мутаций SNCA 5. Кроме того, было идентифицировано несколько других генов, вызывающих БП при мутации, в том числе VPS35, который также вызывает аутосомно-доминантные формы PD8. Другие гены, такие как PINK1 и Parkin, вызывают аутосомно-рецессивную болезнь Паркина при мутации9. Немоторные симптомы также возникают при этих других генетических формах БП; Тем не менее, представленные данные скудны и, следовательно, затрудняют вывод или исследование основных механизмов10,11.
Для лечения болезни Паркинсона было создано несколько животных моделей, в том числе у Drosophila melanogaster12. Хотя дрозофила не содержит гена SNCA , сверхэкспрессия дикого типа и мутантных форм гена индуцирует паркинсонические фенотипы, включая моторные симптомы13. Кроме того, PD-сцепленные мутантные мухи vps35, pink1 и parkin являются хорошо зарекомендовавшими себя моделями для изучения влияния соответствующих мутантных генов в отношении PD12. Кроме того, возможность измерения запоров в различных моделях БП у дрозофил, включая доминантные и рецессивные формы, позволяет проводить более глубокий анализ дисфункции желудочно-кишечного тракта и, следовательно, лучше понимать пути, участвующие в запорах, связанных с болезнью Паркинсона.
В данной работе была оценена и проверена осуществимость недавно предложенного метода измерения запоров6 с использованием различных генетических моделей БП. Расширяя применение этого метода на другие генетические модели БП и внося коррективы, мы подтверждаем целесообразность этого метода в качестве общего анализа для измерения запоров или измененной моторики кишечника и одобряем возможность проведения скрининга модификаторов для получения представления о молекулярных механизмах, лежащих в основе запоров при БП.
Протокол
В этом анализе использовались десятидневные самцы мух. Для сверхэкспрессии SNCA использовался вездесущий драйвер DaughterlessGal4 .
Мухи, используемые в этом анализе:
w1118;; SNCA p.A53T/DaGal4 и управление им w1118;; SNCA p.A53T
w1118;; SNCA p.A30P/DaGal4 и управление им w1118;; SNCA p.A30P
w1118;; SNCA p.V15A/DaGal4 и управление им w1118;; SNCA p.V15A
w1118;; Vps35D650N/DaGal4 и управление им w1118;; vps35D650N
w розовый1B9; и их контроль w pink1RV;;
w1118;; паркD1/D21 и их управление w1118; паркдля автофургонов
SNCA p.A53T, SNCA p.A30P, w*;; P(EP)park1, w*;; паркΔ21, Vps35,D650N и DaGal4 были получены коммерчески (см. таблицу материалов). Нуль-мутанты w pink1B9 и контрольная группа (w pink1RV) любезно предоставлены Jeehye Park и Jongkyeong Chung (Корейский институт передовых наук и технологий)14. Ранее было создано 15 мух SNCA p.V.V15A. Реагенты и оборудование, использованные в данном исследовании, перечислены в Таблице материалов.
1. Приготовление голубого корма
- Приготовьте свежую стандартную кукурузную муку и храните ее в тепле и жидкости.
ПРИМЕЧАНИЕ: Можно использовать заранее подготовленную среду для мух, но ее необходимо нагреть, чтобы сделать среду жидкой. Стандартная кукурузная мука состоит из 50 г кукурузной муки, 7 г дрожжей, 7 г агара, 13,5 г декстрозы, 10 мл этанола (100%), 1,1 г метола-4-гидроксибензоата, 55 г патоки и 4,8 мл пропионовой кислоты на 1 л муховой среды. - Смешайте синий пищевой краситель с дистиллированной водой в соотношении 1:1 (v/v).
- Добавьте синюю пищевую смесь в стандартную среду из кукурузной муки, чтобы насытить ее синей пищей и получить равномерный синий цвет.
ПРИМЕЧАНИЕ: В этом исследовании использовалось соотношение 1:100. - Разложите синий корм по большим флаконам с пищевыми продуктами с помощью пастеровской пипетки так, чтобы дно было покрыто, и дайте им высохнуть на воздухе для застывания.
- Сделайте такое же количество пищевых флаконов со стандартной средой из кукурузной муки.
- Во время сушки накрывайте флаконы с едой тонким бумажным полотенцем, чтобы предотвратить накопление влаги и загрязнение.
2. Подготовка пробирного анализа
- Положите влажный ватман в пустые флаконы из-под еды.
ПРИМЕЧАНИЕ: Обязательно пропитайте ватман, чтобы он прилип ко дну, когда мухи перейдут на флаконы с синей средой. - Добавьте по 15-20 мушек в каждый флакон и оставьте их на 1 час.
ПРИМЕЧАНИЕ: Обезболивание мух позволило отобрать мух с правильным генотипом. Впоследствии мух смахивали во флакон с помощью щетки и выдерживали в течение десяти дней. Перенос мух осуществляется путем осторожного переворачивания мух из одного флакона в другой и использования пробок для предотвращения побега мух. - Переложите мух во флаконы, содержащие синюю среду, и оставьте их на ночь в инкубаторе при температуре 25 °C.
3. Проведение анализа на запор
- На следующее утро переложите мух во флаконы со стандартной средой для кукурузной муки и поместите их обратно в инкубатор на 90 минут.
ПРИМЕЧАНИЕ: Можно проверить, являются ли животы всех мух в флаконах синими, поместив их под микроскоп. - Через 90 минут подсчитайте количество синих и бесцветных непрозрачных точек, отметьте их цветным маркером, запишите в журнал и поместите мух обратно в инкубатор (рисунок 1).
ПРИМЕЧАНИЕ: Маркировка уже подсчитанных точек позволяет избежать повторного подсчета. Кроме того, точки на еде или пробке флакона игнорировались. - Повторите шаг 4.2 еще четыре раза с теми же мухами, чтобы получить временной ход каловых точек. Каждый раз использовался маркер другого цвета, чтобы избежать повторного подсчета предыдущих раундов.
4. Анализ
- Рассчитайте процентное соотношение синих точек к общему количеству точек (синих и непрозрачных точек) для каждой временной точки.
- Отобразите данные на графике, используя процентное соотношение синих точек в различных временных точках, и с помощью анализа «площадь под кривой» в GraphPad будет рассчитана и нанесена на график площадь под кривой.
- Проанализируйте данные в GraphPad Prism для выполнения непарного t-критерия с поправкой Уэлча16.
Примечание: Поправка Уэлча была включена, поскольку равные стандартные отклонения не могли быть проверены во всех популяциях.
Результаты
Были внесены незначительные коррективы в ранее представленный метод измерения запоров у мух7 и проверки функции кишечника на различных генетических моделях мух, связанных с болезнью Паркинсона. Ночная инкубация мух на среде синего цвета привела к тому, что брюшки мух выглядели синими (Рисунок 2) и фекальные массы, которые оставили синие пятна на флаконе с пищей мухи (Рисунок 2). Со временем синие животы вернулись к нормальному желтовато-коричневому цвету живота (Рисунок 2). Кроме того, синие фекальные пятна уменьшились, и наблюдалось увеличение желтых, непрозрачных пятен (рис. 2). Этот переход от синих к желтым пятнам дает представление об уровне перистальтики кишечника или запоров. У контрольных мух переход был завершен через 7 ч 30 мин, в то время как у мух, связанных с болезнью Паркинсона, это удаление синей среды происходило более медленными темпами (рис. 2).
Ранее отсроченный клиренс синей среды был описан у 10-дневных мух, экспрессирующих альфа-синуклеиндикого типа 7, что свидетельствует об уровне запора или задержке клиренса из-за изменений в моторике кишечника, присутствующих у этих мух по сравнению с контрольными мухами. В дополнение к дупликациям или трипликациям SNCA, в SNCA , связанных с БП, было выявлено несколько патогенных миссенс-вариантов, и мы протестировали три распространенных патогенных миссенс-варианта в SNCA. Экспрессия мутантного альфа-синуклеина (p.A30P, p.A53T и p.V15A) приводила к неполному клиренсу синей среды в течение 7 ч 30 мин, что свидетельствует о наличии запоров у этих мух по сравнению с контрольными мухами (рис. 3).
Альфа-синуклеин связан с аутосомно-доминантными формами БП. Интересно, что экспрессия альфа-синуклеина снижает уровень белка VPS3517. VPS35 является субъединицей ретромера и при мутации вызывает PD 9,18,19. Повышенное количество запоров наблюдалось у мутантных мух, экспрессирующих vps35, по сравнению с контрольными мухами (Рисунок 4).
Мухи с недостатком Pink1 и Parkin демонстрируют замедленный клиренс синей среды; однако через 7 ч 30 мин у этих мутантных мух больше не было обнаружено синих фекальных пятен (Рисунок 5).
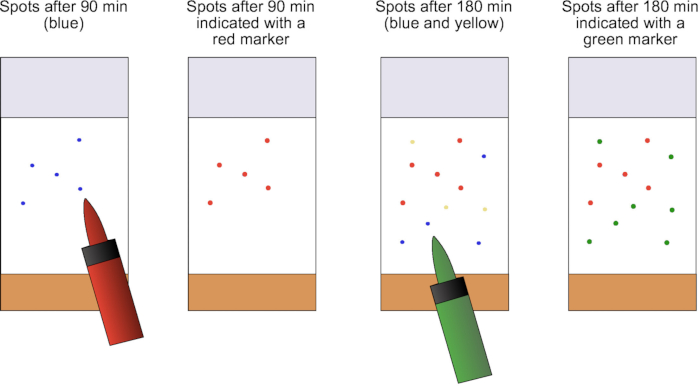
Рисунок 1: Схематическое изображение процесса подсчета цветными маркерами. Через 90 минут фекальные пятна подсчитывались и отмечались цветным маркером, чтобы предотвратить их повторный подсчет в следующем раунде. Другой цвет использовался для обозначения дополнительных фекальных пятен во время следующего раунда подсчета. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этой цифры.
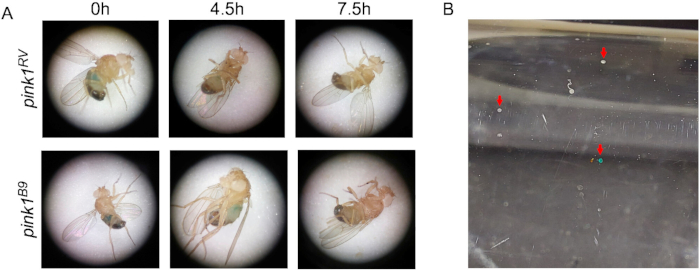
Рисунок 2: Синяя среда приводит к синему животу и синим фекальным пятнам. (A) Изображения брюшек контрольных мух (pink1RV) и розовых1-мутантных мух в моменты времени 0 ч, 4 ч 30 мин и 7 ч 30 мин показывают выцветание синего цвета. (Б) Синие и желтые, непрозрачные фекальные пятна на флаконе с пищей от мухи обозначены красными стрелками. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этой цифры.
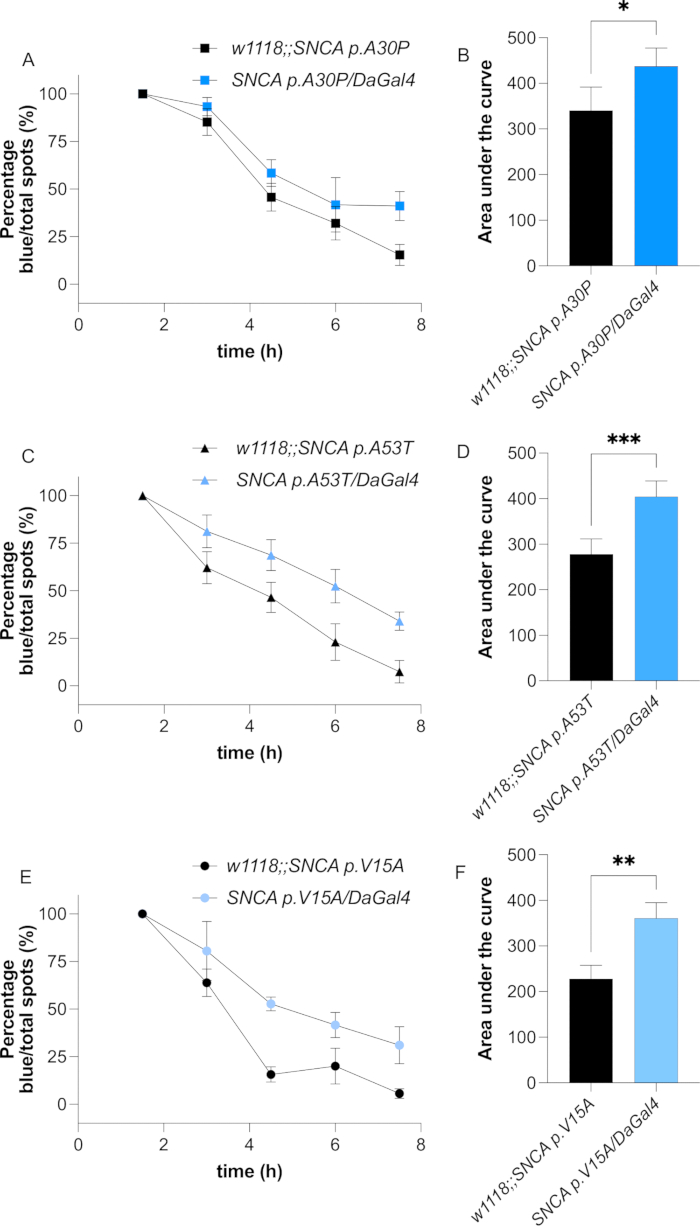
Рисунок 3: Экспрессия мутантного альфа-синуклеина приводит к запорам. Процент синих фекальных пятен с течением времени у мух с гиперэкспрессией SNCA p.A30P (A), SNCA p.A53T (C) и SNCA p.V15A (E) и их соответствующих контрольных групп. Представлена связанная площадь под кривой (B,D,F). Данные представляют собой среднее значение и стандартное отклонение. n ≥ 3 флакона по 15-20 мух в флаконе. Был проведен Т-критерий Уэлча; *: p < 0,05; **: p < 0,01; : p < 0,001. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этой цифры.
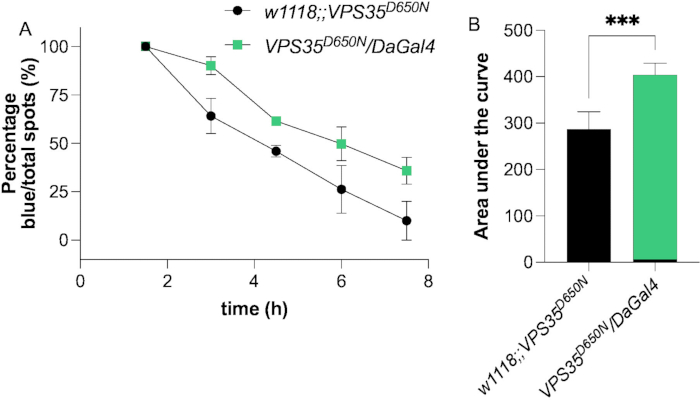
Рисунок 4: Экспрессия мутантного vps35 приводит к запорам. (A) Процент синих фекальных пятен с течением времени у мух с гиперэкспрессией PD-сцепленного мутанта vps35D650N и его контроля. (B) Отображается площадь под кривой. Данные представляют собой среднее и стандартное отклонение. n = 3 флакона по 15-20 мух в флаконе. Был проведен Т-критерий Уэлча; : p < 0,001. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этой цифры.
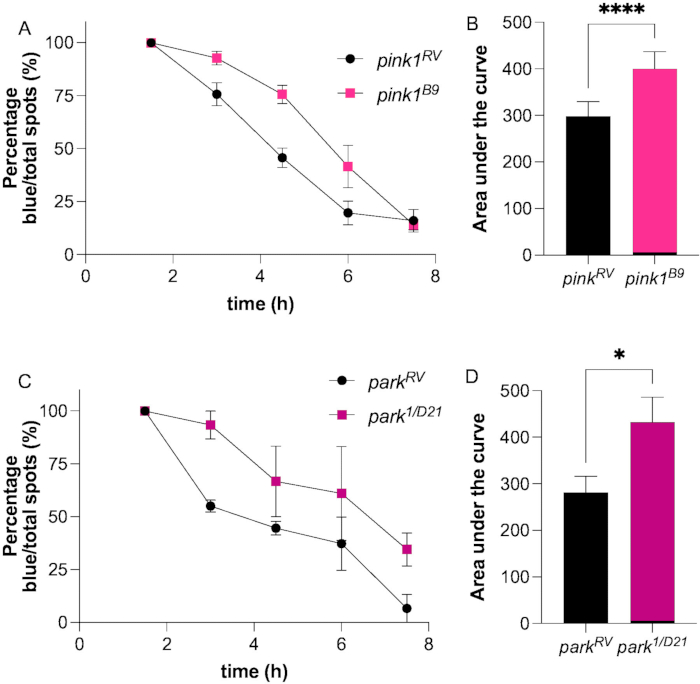
Рисунок 5: Дефицит Pink1 и Parkin вызывает задержку выведения кала.Процент синих фекальных пятен с течением времени у розовых 1- (А) и паркин-дефицитных (С) мух и их соответствующих контрольных мух. Представлена соответствующая область под кривой (B,D). Данные — это среднее значение со стандартным отклонением. n ≥ 3 флакона по 15-20 мух в флаконе. Был проведен Т-критерий Уэлча; *: p < 0,05; : p < 0,0001. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этой цифры.
Обсуждение
Недавно был предложен метод измерения запоров у Drosophila melanogaster . При применении этого метода наблюдались запоры или изменение моторики кишечника у мух, экспрессирующих альфа-синуклеиндикого типа 7. Этот метод был валидирован с несколькими изменениями, и был выявлен запор во всех протестированных генетических моделях БП.
По сравнению с первоначальным описанием метода, в него было внесено несколько изменений для повышения осуществимости и надежности. Чтобы избежать изменений в насыщенности синей среды, готовили одну партию синей среды и делили на необходимое количество пищевых флаконов. Кроме того, перед добавлением мух в голубую среду, они были ненадолго лишены пищи, обеспечивая только доступ к воде. Этот шаг был добавлен для стимуляции поглощения синей среды. Без этого дополнительного шага не у всех мух было ясное голубое брюхо, что является важной отправной точкой для получения репрезентативных результатов. Наконец, несколько моделей мух PD показывают уровень чувствительности к взрыву 13,14,20. Следовательно, мухи не переносились на каждом этапе подсчета, чтобы избежать влияния этой чувствительности на выход фекалий. Тем не менее, для обозначения пятен использовались разноцветные маркеры, чтобы избежать двойного учета.
Как и в первоначальном описании, было также замечено, что мухи реже испражняются во второй половине дня. Тем не менее, поскольку это имеет место как для контрольных, так и для мутантных мух, это не привело к аномалиям в регистрации пятен. Кроме того, наличие достаточного количества фекальных пятен для подсчета в каждый момент времени является ключом к получению надежных результатов. Следовательно, рекомендуется минимум пятнадцать мух на флакон7.
В оригинальной рукописи запор наблюдался у 10-дневных мух, но не у 1-дневных мух. Таким образом, в этом анализе анализ на запор проводился у десятидневных мух, а запор или измененная моторика кишечника наблюдались у всех протестированных моделей мух БП. Более ранние исследования локомоции показали, что запор предшествует двигательной дисфункции у мух, экспрессирующих альфа-синуклеин, при этом нарушения полета становятся очевидными только в возрасте трех недель в возрасте16 лет. Эта временная последовательность симптомов отражает прогрессирование, наблюдаемое у пациентов с болезнью Паркинсона, где проблемы с желудочно-кишечным трактом часто проявляются до двигательного дефицита. В отличие от моделей альфа-синуклеина, розовые 1- или паркин-мутантные мухи проявляют нарушения уже в первый день после эклозии21. Таким образом, изучение того, проявляются ли дефекты кишечного транзита в этот ранний момент времени, даст ценную информацию о прогрессировании немоторных симптомов в этих генетических моделях. Следовательно, необходимо проводить более глубокие эксперименты, чтобы лучше понять лежащую в основе биологию.
Описанный здесь анализ облегчает количественную оценку перистальтики желудочно-кишечного тракта и фенотипов запоров, но не может оценить такие параметры, как консистенция кала, содержание, окраска или морфология. Ранее измерялся выход фекалий, в котором цвет и морфология оценивались с использованием установленных методологий в моделях дрозофил 22,23,24. Тем не менее, для этого анализа требуется специализированное оборудование (например, сканеры прозрачности) и специальное аналитическое программное обеспечение, что требует особых технических и ресурсных соображений по сравнению с описанным здесь протоколом. Тем не менее, этот анализ показывает желудочно-кишечные дефекты у мух с дефицитом Pink122,23.
Желудочно-кишечные дисфункции признаны коморбидными проявлениями при множественных неврологических и нейродегенеративных расстройствах, включая расстройство аутистического спектра, болезнь Альцгеймера и рассеянный склероз 25,26,27,28, для которых Drosophila melanogaster служит податливым модельным организмом для исследования механистических основ. Методологическая основа, созданная для изучения моторики кишечника и запоров у дрозофил, может быть экстраполирована на эти заболевания.
В заключение, это исследование подтвердило осуществимый и надежный метод, представленный ранее для измерения запоров у мух. Этот анализ показывает, что запор присутствует в нескольких генетических моделях БП дрозофилы , которые особенно хорошо подходят для изучения запоров, поскольку они дают возможность изучить генетически определенных мух из группы риска до появления проявления двигательных особенностей. Кроме того, с его помощью можно оценить другие модели заболевания дрозофил, которые проявляют нарушения моторики кишечника, а также скрининг на наркотики.
Раскрытие информации
К. К. работал консультантом в компаниях Centogene, Takeda, Biogen и Фонде Лундбека, получал гонорары докладчиков от Bial, а финансирование исследований — от DFG, MJFF и ASAP.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Bacto Agar | Becton, Dickinson and company | 214010 | |
| Ceapran plugs | Greiner Bio-One | 330070 | |
| Cornmeal | Dr. Oetker GmbH | ||
| Dextrose | Sigma-Aldrich | D9434-1KG | |
| Контейнер для дрозофил | Greiner Bio-One | 217101 | |
| этанол (100%) | J.T. Baker | BAK8025 2500 | |
| Фильтр-папье целлюлоза, ватман (класс 3) | Sigma-Aldrich | WHA1003185 | |
| GraphPad Prism | GraphPad | ||
| метил-4-гидроксибензоат | Sigma-Aldrich | H5501-100G | |
| Патока | Rapunzel Naturkost GmbH | ||
| перманнет цветной маркер | Stadtler | 11-348 | |
| Пропионовая кислота | Thermo Fisher Scientific Inc. | ||
| Royal Blue Azul реальный цвет глазури | Wilton Lebensmittelfarben | ||
| Стереомикроскоп | Nikon | ||
| Yeast | Algist Bruggeman | 1278 | |
| Drosophila stocks | |||
| DaGal4 | Bloomington Stock Center | 95282 | |
| park< sup>D1/D21 | Jeehye Park и Jongkyeong Chung | ||
| parkRV | Jeehye Park и Jongkyeong Chung | ||
| SNCA p.A53T | Bloomington Stock Center | 8148 | |
| SNCA p.A30P | Bloomington Stock Center | 8147 | |
| SNCA p.V15A | ранее созданные в лаборатории | ||
| Vps35D650N | Bloomington Stock Center | 91646 | |
| w pink1B9 | Jeehye Park и Jongkyeong Chung | ||
| w pink1RV | Jeehye Park и Jongkyeong Chung | ||
| w1118 | Bloomington Stock Center | 3605 |
Ссылки
- Fanciulli, A., et al. Diagnosis and treatment of autonomic failure, pain and sleep disturbances in Parkinson's disease: Guideline "Parkinson's disease" of the German Society of Neurology. J Neurol. 272 (1), 1-32 (2025).
- Kasten, M., Marras, C., Klein, C. Nonmotor signs in genetic forms of Parkinson's disease. Int Rev Neurobiol. 133, 129-178 (2017).
- Bloem, B. R., Okun, M. S., Klein, C. Parkinson's disease. Lancet. 397 (10291), 2284-2303 (2021).
- Higinbotham, A. S., Kilbane, C. W. The gastrointestinal tract and Parkinson's disease. Front Cell Infect Microbiol. 13, 1158986(2023).
- Yuan, X. Y., Chen, Y. S., Liu, Z. Relationship among Parkinson's disease, constipation, microbes, and microbiological therapy. World J Gastroenterol. 30 (3), 225-237 (2024).
- Sodders, M. J., Shen, M., Olsen, A. L. Measuring constipation in a Drosophila model of Parkinson's disease. J Vis Exp. (199), e65966(2023).
- Spillantini, M. G., et al. Alpha-synuclein in Lewy bodies. Nature. 388 (6645), 839-840 (1997).
- Trinh, J., et al. Genotype-phenotype relations for the Parkinson's disease genes SNCA, LRRK2, VPS35: MDSGene systematic review. Mov Disord. 33 (12), 1857-1870 (2018).
- Kasten, M., et al. Genotype-phenotype relations for the Parkinson's disease genes Parkin, PINK1, DJ1: MDSGene systematic review. Mov Disord. 33 (5), 733-741 (2018).
- Deutschländer, A., Ross, O. A., Wszolek, Z. K. VPS35-related Parkinson disease. GeneReviews. , https://www.ncbi.nlm.nih.gov/books/NBK447258/ (2023).
- Wasner, K., Grünewald, A., Klein, C. Parkin-linked Parkinson's disease: From clinical insights to pathogenic mechanisms and novel therapeutic approaches. Neurosci Res. 159, 34-39 (2020).
- Vos, M., Klein, C. The importance of Drosophila melanogaster research to uncover cellular pathways underlying Parkinson's disease. Cells. 10 (3), 579(2021).
- Feany, M. B., Bender, W. W. A Drosophila model of Parkinson's disease. Nature. 404 (6776), 394-398 (2000).
- Park, J., et al. Mitochondrial dysfunction in Drosophila PINK1 mutants is complemented by parkin. Nature. 441 (7097), 1157-1161 (2006).
- Diaw, S. H., et al. Characterization of the pathogenic α-synuclein variant V15A in Parkinson's disease. NPJ Parkinsons Dis. 9 (1), 148(2023).
- Ruxton, G. D. The unequal variance t-test is an underused alternative to Student's t-test and the Mann-Whitney U test. Behav Ecol. 17 (4), 688-690 (2006).
- Lin, G., et al. Phospholipase PLA2G6, a Parkinsonism-associated gene, affects Vps26 and Vps35, retromer function, and ceramide levels, similar to α-synuclein gain. Cell Metab. 28 (4), 605-618.e6 (2018).
- Mandik, F., Vos, M. Neurodegenerative disorders: Spotlight on sphingolipids. Int J Mol Sci. 5 (21), ijms222111998(2021).
- Vos, M., Klein, C., Hicks, A. A. Role of ceramides and sphingolipids in Parkinson's disease. J Mol Biol. 435 (12), 168000(2023).
- Clark, I. E., et al. Drosophila pink1 is required for mitochondrial function and interacts genetically with parkin. Nature. 441 (7097), 1162-1166 (2006).
- Vos, M., et al. Vitamin K2 is a mitochondrial electron carrier that rescues pink1 deficiency. Science. 336, 1306-1310 (2012).
- Fedele, G., et al. Suppression of intestinal dysfunction in a Drosophila model of Parkinson's disease is neuroprotective. Nat Aging. 2 (4), 317-331 (2022).
- Popovic, R., et al. Blocking dPerk in the intestine suppresses neurodegeneration in a Drosophila model of Parkinson's disease. Cell Death Dis. 14 (3), 1-9 (2023).
- Wayland, M. T., et al. Spotting the differences: Probing host/microbiota interactions with a dedicated software tool for the analysis of faecal outputs in Drosophila. J Insect Physiol. 69, 126-135 (2014).
- Heston, M. B., et al. Gut inflammation associated with age and Alzheimer's disease pathology: A human cohort study. Sci Rep. 13 (1), 1-12 (2023).
- Levinthal, D. J., et al. Adding to the burden: Gastrointestinal symptoms and syndromes in multiple sclerosis. Mult Scler Int. 2013, 319201(2013).
- Sorboni, S. G., et al. A comprehensive review on the role of the gut microbiome in human neurological disorders. Clin Microbiol Rev. 35 (1), e0033820(2022).
- Salim, S., et al. The gut-microbiota-brain axis in autism: What Drosophila models can offer. J Neurodev Disord. 13 (1), 37(2021).
Перепечатки и разрешения
Эта статья была опубликована
Видео скоро будет доступно