В данной статье представлена модель ко-культивирования клеток теки и гранулезы крупного рогатого скота. Этот метод может служить надежной основой для анализов, направленных на изучение паракринной коммуникации и транспорта субстрата между соматическими клетками внутри фолликула.
Методическая статья
Модифицированная система совместного культивирования для понимания взаимодействий гранулезных клеток в яичниках крупного рогатого скота
В этой статье
Краткое содержание
Аннотация
Надежная кокультура гранулезных клеток (ГК) и тековых клеток (ТК) может способствовать более полному пониманию взаимодействий, сигнальных путей и субстратного обмена между обоими клеточными компартментами в фолликуле яичников крупного рогатого скота. С использованием коммерчески доступных вставок для клеточных культур была создана воспроизводимая модель совместного культивирования ГК и ТК крупного рогатого скота. Было замечено, что первичным клеткам теки и гранулезы требуется значительно больше времени для прикрепления к мембране вкладыша по сравнению с клеточными линиями. Первоначально ТК засеивались на перевернутую мембрану-вкладыш, при этом усеченная трубка служила контейнером для инокуляции для предотвращения утечки среды. После 72-часового инкубационного периода вкладыш был инвертирован, что позволило культивировать GC на противоположной стороне мембраны. Затем эту совместную культуру подвергали дополнительной 6-дневной инкубации при 37 °C и 5%CO2, с обменом средой через день. Экспрессия маркерных генов указывала на специфичные для типа клеток паттерны, при этом CYP17A1 были в большом изобилии в ТК и не экспрессировались в ГК. И наоборот, CYP19A1 показали высокие уровни в ГК и только низкие уровни в ТК. Анализ гормонов подтвердил наличие физиологической системы ко-культивирования, о чем свидетельствует синтез эстрадиола. Эта модифицированная модель кокультуры поддерживает воспроизводимые исследования паракринной сигнализации и транспорта субстрата между соматическими клетками фолликула.
Введение
Во время фолликулогенеза всплеск лютеинизирующего гормона (ЛГ) запускает каскад физиологических изменений в яичнике, что в конечном итоге приводит к высвобождению зрелого ооцита во время овуляции 1,2. Этот процесс жестко регулируется фолликулярными соматическими клетками, которые обеспечивают необходимую поддержку созреванию ооцитов и правильную овуляторную функцию3. Фолликул состоит из двух типов стероидогенных соматических клеток: внутреннего слоя гранулезных клеток (ГК) и внешнего слоя тековых клеток (ТК). Среди них ГК претерпевают наиболее выраженные морфологические и функциональные изменения после всплеска ЛГ, что подчеркивает их критическую роль в организации заключительных стадий развития фолликулов4. Следовательно, ГК представляют значительный интерес для анализа факторов, которые могут влиять на фолликулогенез, овуляцию и лютеинизацию.
Ранее была создана модель клеточной культуры ГК крупного рогатого скота, имитирующих эстрадиол-активный статус 5,6,7,8,9,10,11. Эта модель бессывороточной культуры позволяет провести надежный анализ физиологии GC и анализ возможных эффекторов в сигнальных путях, регуляции генов и синтезе гормонов 12,13,14. Тем не менее, структура фолликула намного сложнее, как подчеркивается в гипотезе 2-клеток-2-гонадотропина15. Это подчеркивает зависимость и взаимосвязанный характер типов клеток в контексте синтеза стероидов, которые разделены между двумя слоями.
В ряде исследований описаны модели культур ТС, которые аналогичны ранее созданным монокультуральным системам ГК 16,17,18. Тем не менее, сообщалось о системе совместного культивирования свиных клеток теки и гранулезы, в которой обе клеточные популяции культивируются в одной чашке в соотношении 4:1 ГК к ТК 19,20,21. В этой модели можно показать, что существует функциональная система и взаимодействие между гранулезой и клетками тека, что выявляет большее количество эстрадиола в системе совместного культивирования, чем в монокультуре. Однако следует отметить, что эта модель не способна адекватно анализировать взаимодействие и субстратный обмен между гранулезными и тековыми клетками, поскольку оба типа клеток могут быть по-разному затронуты. Таким образом, анализ на молекулярных уровнях ГК и ТК независимо друг от друга практически невозможен без сложной процедуры сортировки, которая сама по себе может повлиять на физиологию клетки. Кроме того, важно учитывать, что данная модель может не точно воспроизводить ситуацию до всплеска ЛГ, когда ГК и ТЦ разделены базальной мембраной3. У крупного рогатого скота была предложена система клеточных культур на основе мембраны, в которой оба типа клеток культивируются по обе стороны коллагеновой мембраны, тем самым более точно отражая ситуацию in vivo 22,23,24,25,26.
Адаптируя первоначальную концепцию мембранной системы, этот метод был направлен на создание модели совместного культивирования ГК и ТК крупного рогатого скота со вставками клеточных культур, чтобы обеспечить будущие исследования паракринной передачи сигналов между обоими клеточными компартментами. В представленном методе используются коммерчески доступные вставки для висячих клеточных культур вместо специализированной мембранной системы, что обеспечивает такие преимущества, как более высокая воспроизводимость, стандартизированное качество и улучшенная стабильность продукта. Такой подход обеспечивает согласованность между экспериментами, что делает его ценным инструментом для исследователей, изучающих взаимодействия фолликулярных клеток. Процедура культивирования включает первоначальный посев 1,7-1,8 x 10⁵ текических клеток на нижнюю сторону вкладыша, за которым следует примерно 1,0 x 10⁵ гранулезных клеток на верхней поверхности после инверсии и 72-часовую предварительную инкубацию. Культуры выдерживают в определенной среде в стандартных условиях (37 °C, 5%CO2) с заменой сред через день. Для обеспечения паракринного обмена между компартментами использовали 0,4 мкм вставки для клеточных культур, изготовленные из полиэстера, такого как полиэтилентерефталат (ПЭТ) (коммерчески доступны). Мембраны с таким размером пор обеспечивают диффузию растворимых макромолекул, таких как гормоны, факторы роста и белки, предотвращая при этом миграцию клеток27,28.
Обеспечивая пространственное разделение при сохранении паракринной коммуникации, эта система совместного культивирования обеспечивает физиологически значимую среду для исследования взаимодействий гранулезно-тековых клеток, сигнальных путей и субстратного обмена. Модель особенно подходит для исследований, требующих контролируемых условий, таких как гормональная регуляция, анализ экспрессии генов или тестирование на наркотики. Исследователи, интересующиеся динамикой фолликулов, репродуктивной физиологией или заболеваниями яичников, могут найти этот метод применимым в своих исследованиях. Кроме того, использование стандартизированных вкладышей позволяет легко адаптироваться к различным экспериментальным потребностям, включая изменения продолжительности культивирования, типов клеток или условий лечения.
Протокол
Бычьи завязи были получены на местной коммерческой скотобойне. В этой экспериментальной установке подготовка яичников выполняется в течение 2 ч после приема. В соответствии с законодательством Германии сбор побочных продуктов скотобоен не требует этического одобрения.
ПРИМЕЧАНИЕ: Выделение и криоконсервация ГХ крупного рогатого скота уже были описаны и показаны в предыдущем отчете по методу6 и могут быть выполнены соответственно.
1. Подготовка реагентов и подготовка к диссекции фолликулов яичников
- Приготовьте 1x PBS (pH 7,4) с добавлением 100 МЕ пенициллина, 0,1 мг/мл стрептомицина и 0,5 мкг/мл амфотерицина для транспортировки яичников. Раствор можно хранить при температуре 4 °C до 4 недель.
- Приготовьте раствор для дифражирования, содержащий 10-кратный солевой буфер Ганкса с добавлением 25 мМ HEPES, 100 МЕ пенициллина, 0,1 мг/мл стрептомицина и 0,5 мкг/мл амфотерицина. Раствор для сбраживания можно хранить при температуре 4 °C в течение 2-3 недель.
- Залейте 1 мл раствора для разложения в 1,5 мл пробирок для каждого планируемого рассеченного фолликула и предварительно подогрейте раствор до 37 °С.
- Добавьте 10 μL коллагеназы NB8 для достижения концентрации 0,1% раствора для разложения незадолго до приготовления.
- Подготовьте следующие блюда для приготовления, изоляции и процедур мытья.
- Стеклянная посуда с минимальным диаметром 3 см для размещения яичников для вскрытия.
- Планшет на 6 лунок с 1 мл 1x PBS (с добавлением антибиотиков) для промывания.
- Чашка на 12 лунок с примерно 10 μл раствора для сбраживания.
- Для криоконсервации приготовьте замораживающий раствор, состоящий из 80% фетальной сыворотки теленка (FCS) и 20% ДМСО.
ПРИМЕЧАНИЕ: Конечная концентрация ДМСО для криоконсервации составит 10%.
2. Диссекция фолликулов с последующим перевариванием клеток теки крупного рогатого скота
- Выполняйте процедуры клеточного расщепления, а также работу с клеточными культурами под стендом ламинарного потока.
- Промойте яичники 2-3 раза в 1x PBS (с добавлением антибиотиков, см. шаг 1.1), чтобы удалить кровь и другие остатки с поверхности. Поместите яичники в стакан, наполните его 1x PBS так, чтобы яичники были покрыты, и после этого выбросьте раствор. Повторите этот шаг 3-4 раза, пока яичники не станут чистыми.
- Поместите один яичник в стеклянную посуду и выберите фолликулы размером 5-11 мм, измеренные линейкой, для вскрытия.
- Аспирируйте фолликулярную жидкость с помощью шприца объемом 3 мл и иглы 18 г, проколов один выбранный фолликул. Откажитесь от фолликулярной жидкости.
- Разрежьте фолликул ножницами, начиная с места, куда была введена игла во время аспирации. Используйте бинокль для точной резки.
- Используйте пинцет на режущем крае фолликула, чтобы захватить самый внутренний слой, внутреннюю теку.
- Попробуйте отшелушить внутреннюю теку с внутренней стороны открытой стенки фолликула.
ПРИМЕЧАНИЕ: В зависимости от возраста или стадии фолликула, слой клеток теки может быть более легко отшелушен, в результате чего слой теки остается неповрежденным.
- Поместите слой клеток теки в чашку, наполненную 1x PBS (с добавлением антибиотиков, см. шаг 1.1.), чтобы удалить оставшиеся гранулезные клетки.
- Аккуратно соскребите клетки гранулезы с внутренней стороны мембраны с помощью скальпеля. Ячейки должны легко отделяться в большие скопления.
- Поместите слой клеток теки в новую посуду, наполненную 1x PBS, чтобы вымыть ее.
- Тщательно промойте мембрану, взболтав в свежем 1x PBS, чтобы удалить любые рыхлые клетки.
ПРИМЕЧАНИЕ: Начиная со следующего шага, работайте под камерой ламинарного потока.
- Переложите theca interna в приготовленный раствор для разложения 12-луночной пластины (см. шаг 1.2 и 1.3.3) и разрежьте его на мелкие кусочки, предположительно 1-3 мм, с помощью скальпеля.
ПРИМЕЧАНИЕ: Рекомендуется переваривать клетки из разных фолликулов независимо друг от друга, чтобы предотвратить закупорку тканей разного происхождения. - Переложите фрагменты теки в подготовленную реакционную пробирку объемом 1,5 мл (см. шаги 1.2.1 и 1.2.2). Инкубировать теку в термос-инкубаторе при 800 об/мин при 37 °C в течение 45-50 минут.
- После встряхивания в течение 30 минут начните прокручивание реакционных пробирок в течение 3-5 с и поместите их обратно в инкубатор для встряхивания.
- Повторите этот шаг 3-4 раза в оставшееся время инкубации.
- После инкубации переваренные клетки ресуспендируют с помощью пипетки.
- Удалите непереваренную ткань путем фильтрации с помощью клеточного фильтра 100 мкм, помещенного в пробирку объемом 50 мл, и немедленно приступайте к подсчету и криоконсервации клеток для удаления среды для разложения.
3. Подсчет и криоконсервация ТК
- Чтобы подсчитать количество жизнеспособных клеток, приготовьте пробирку с 1,5 мкл 0,25% раствора трипанового синего. Живые клетки останутся неокрашенными, в то время как мертвые клетки будут казаться синими из-за доступа трипанового синего через разрушенные клеточные барьеры.
- Добавьте 15 μл расваренной клеточной суспензии в раствор трипанового синего и аккуратно перемешайте.
- Поместите по 10 мкл смеси в обе камеры гемоцитометра. Подсчитайте количество живых (= бесцветных) клеток в одном большом квадрате в каждой камере.
- Определите количество живых клеток со средним значением квадратов обеих камер, следуя стандартным рекомендациям. Обратите внимание, что пропорция живых клеток может отличаться между яичниками.
- Заморозьте непереваренные части суспензии клеток теки (см. шаг 2.9) для предполагаемого сравнения в качестве некультивируемого контроля и для оценки потенциальной перекрестной контаминации ГК (как показано на рисунке 2).
- Перенесите непереваренную ткань каждой рассеченной внутренней ткани, оставшуюся в клеточном фильтре размером 100 мкм (см. шаг 2.10), в пробирку с меткой.
- Шоковую заморозку пробирки в жидком азоте перед хранением при температуре -80 °C.
- Выполнение криоконсервации выделенных клеток теки с целью улучшения планирования клеточных культур, уделяя особое внимание необходимому количеству клеток.
- Центрифугируйте расщепленную клеточную суспензию при давлении 500 х г в течение 5 мин при комнатной температуре (в среднем 20 °С). Выбросьте надосадочную жидкость.
- Тщательно растворите клеточную гранулу в 1 мл 100% FCS. Добавьте 1 мл замораживающей среды (см. шаг 1.4) в раствор клетки. Конечная концентрация ДМСО для криоконсервации составляет 10%. Перелейте смесь в указанные 2 мл криофлаконы.
- Поместите флаконы в более прохладное устройство для контролируемого снижения температуры. В этой конфигурации был использован специальный контейнер для заморозки, который гарантирует скорость замораживания -1 °C/мин при размещении не менее 4 часов при температуре -80 °C. После этого флаконы можно хранить в системах хранения жидкого азота.
4. Подготовка к работе с клеточными культурами
- Срежьте крышку с реакционной пробирки объемом 1,5 мл. Затем разрежьте реакционную трубку примерно в 1 см от отверстия с помощью скальпеля (желательно подогретого) или соответствующего резака для шланга. После этого откройте отрезанные трубки и крышки в автоклаве. Крышки могут потребоваться для последующих процедур культивирования клеток (см. шаг 5.5).
ПРИМЕЧАНИЕ: Убедитесь, что пробирки объемом 1,5 мл плотно прилегают к выбранному вкладышу. - Обязательно покройте вкладыши 0,02% коллагеном R для прикрепления GC и TC в культуре.
ПРИМЕЧАНИЕ: Выполняйте процедуру нанесения покрытия под стерильный ламинарный вытяжной колпак.- Используйте очищенную воду (подходит для клеточной культуры) для приготовления 0,02% раствора коллагена R. Приготовьте 80 мкл этого раствора для каждой необходимой вставки для клеточной культуры.
- Поместите вкладыш вверх дном в крышку 24-луночной пластины. Аккуратно добавьте 40 мкл раствора коллагена R в мембрану вставки, следя за тем, чтобы она оставалась на месте. Оставьте раствор коллагена R высыхать на 4-5 часов под ламинарным колпаком.
- Поверните вкладыш и повесьте его в лунки 24-луночного планшета, чтобы снова покрыть вторую сторону 40 μL раствором коллагена R. Дайте раствору снова высохнуть в течение 4-5 часов.
- Облучайте вкладыши ультрафиолетовым излучением в течение 10-15 минут, чтобы уменьшить загрязнение.
- Вкладыши следует хранить в 24-луночной тарелке (предпочтительно в стерильном пакете для доставки) и в холодильнике при температуре 4 °C и могут использоваться до 4 недель.
- Подготавливаем среду 8,10 следующим образом:
ПРИМЕЧАНИЕ: Процедуру подготовки среды проводят под стерильным ламинарным проточным колпаком.- Дополните α-минимальную незаменимую среду (α-MEM) 2 мМ L-глутамином, 0,084% бикарбоната натрия, 0,1% BSA, 20 мМ HEPES, 4 нг/мл селенита натрия, 5 мкг/мл трансферрина, 10 нг/мл инсулина и 1 мМ заменимых аминокислот.
ПРИМЕЧАНИЕ: Для обеспечения согласованности рекомендуется заранее подготовить достаточное количество среды для всего эксперимента. Подготовленную среду можно хранить при температуре 4 °C. Для описанной конфигурации используйте 750 мкл на каждую лунку для клеточной культуры. - Далее в приготовленную среду добавляют 100 МЕ пенициллина, 0,1 мг/мл стрептомицина и 0,5 мкг/мл амфотерицина.
- Предварительно подогрейте среду при температуре 37 °C на водяной бане.
ПРИМЕЧАНИЕ: После предварительного нагрева среды антибиотики стабильны в течение примерно 48 часов. Поэтому выделяйте только нужное количество средств для утепления. - Кроме того, добавляйте в α-MEM 20 нг/мл фолликулостимулирующего гормона (ФСГ), 50 нг/мл R3 IGF-1 и 2 мкМ андростендиона для физиологической клеточной среды 7,8,10,11.
ПРИМЕЧАНИЕ: Добавьте эти компоненты незадолго до начала культурного или медиаобмена. Чтобы предотвратить нарушение активности, крайне важно избегать повторных циклов замораживания-размораживания исходных растворов ФСГ и ИФР-1.
- Дополните α-минимальную незаменимую среду (α-MEM) 2 мМ L-глутамином, 0,084% бикарбоната натрия, 0,1% BSA, 20 мМ HEPES, 4 нг/мл селенита натрия, 5 мкг/мл трансферрина, 10 нг/мл инсулина и 1 мМ заменимых аминокислот.
5. Сокультура ТК и ГК
- Подготовьте камеру для посева клеток теки (рисунок 1А).
- Поместите вкладыш с покрытием вверх дном в большую пластину (например, 12-луночную пластину).
- Поместите разрезанную и автоклавную трубу на перевернутую вставку (см. шаг 4.1). Убедитесь, что трубка плотно прилегает к вкладышу, чтобы предотвратить утечку среды.
- Криоконсервированные клетки теки быстро разморозить на водяной бане при температуре 37 °C в течение 3-5 мин и сразу после размораживания перенести клеточную суспензию в предварительно подогретую среду.
- Центрифугируйте суспензию клеток теки при давлении 500 х г в течение 3 мин при комнатной температуре (в среднем 20 °С) и выбросьте надосадочную жидкость. Добавьте дополненный α-МЕМ и осторожно ресуспендируйте клетки.
- Затравка 1,7-1,8 х 10 по5 клеток на вставку в камеру посева в конечном объеме 200 μл среды. Включите не менее трех технических реплик для каждого условия.
- Чтобы закрыть чашку для клеточных культур крышкой, может потребоваться увеличить расстояние между чашкой и крышкой при использовании камеры для инокуляции.
- Используйте разрезанные и автоклавированные колпачки из реакционных пробирок объемом 1,5 мл (см. шаг 4.1) и поместите их в каждый угол планшетов для клеточных культур. Колпачки будут действовать как опоры для небольшого приподнятия крышки планшета, обеспечивая достаточно места для камеры инокуляции, но при этом адекватно покрывая чашку для культивирования.
- Осторожно закройте пластину лунки, следя за тем, чтобы она оставалась устойчивой и не касалась мембраны или камеры.
- Аккуратно перенесите планшет в увлажняемый инкубатор для клеточных культур.
- Инкубируйте клетки теки в течение 3 дней при 37 °C с 5%CO2 , чтобы обеспечить прикрепление клеток к мембране.
- Переверните вкладыш через 3 дня после посева культуры, чтобы подготовиться к посеву GC (Рисунок 1B).
- Подготовьте планшет на 24 лунки и заполните 500 мкл среды в каждой из желаемых лунок.
- С помощью пипетки удалите всю среду из камеры для посева. Осторожно извлеките камеру для инокуляции из вкладыша с помощью пинцета.
- Поместите вкладыш с прикрепленными тека-кюветами в подготовленную 24-луночную пластину, следя за тем, чтобы ТК были обращены вниз (подробнее см. Рисунок 1B ).
- Чтобы засеять гранулезные клетки методом криоконсервации, выполните шаги 5.2 и 5.3.
- Затравите примерно 1,0 x 10⁵ клеток на вкладыш в конечный объем 250 мкл среды, которая помещается внутрь вкладыша.
- Затем инкубируйте совместную культуру при 37 °C с 5%CO2 в течение еще шести дней.
- Проводите замену сред каждые 48 ч после посева GC, когда заменяется только две трети питательных сред. Это должно снизить стресс от процедуры и помочь адаптироваться к вновь добавляемым средам.
6. Последующий анализ культивируемых клеток теки и гранулезы
- Проведите морфологическую оценку клеток теки и гранулезы по всей клеточной культуре с помощью фазово-контрастного микроскопа для мониторинга прикрепления и распространения обоих типов клеток (см. Рисунок 3).
- Для анализа на стероидные гормоны соберите среду и заморозьте при -20 °C. Используйте соответствующий метод для анализа концентраций желаемых стероидных гормонов (например, в этом рабочем процессе эстрадиол был проанализирован с помощью RIA 5,29).
ПРИМЕЧАНИЕ: Анализ на стероидные гормоны помогает оценить физиологическое состояние культуры7. - Чтобы проанализировать экспрессию генов, сначала выделите РНК с помощью соответствующего метода (например, с помощью набора).
ПРИМЕЧАНИЕ: Имейте в виду, что во время процедуры изоляции оба типа клеток подготавливаются независимо друг от друга.- Диссоциируйте клетки с обеих сторон мембраны с помощью соответствующего реагента (например, трипсина или аккутазы). Диссоциирующую среду поместите как во вставку (например, 200 мкл аккутазы), так и в лунки планшета (например, 500 мкл аккутазы) так, чтобы мембрана была полностью окружена диссоциативной средой.
- Соберите гранулезные клетки из вкладыша, в то время как отделенные клетки теки можно собрать из лунки. Перенесите каждый тип клеток в пробирку объемом 1,5 мл.
- Центрифугируйте клетки при давлении 500 x g в течение 3 минут и выбросьте надосадочную жидкость.
- Лизируйте клетки, выделите РНК и затем измерьте концентрацию РНК.
ПРИМЕЧАНИЕ: Протокол может быть остановлен после лизиса клеток для большинства процедур изоляции, чтобы образцы могли храниться при температуре -20 °C в течение короткого времени. Для более длительного хранения лизированные клетки можно хранить при температуре -80 °C. - Впоследствии синтезировать кДНК для измерения обилия интересующих транскриптов с помощью количественной ПЦР. Для синтеза кДНК используется 100 нг РНК со случайным гексамером и олиго-dT праймерами. Для количественной ПЦР использовали ген-специфические праймеры, как описано ранее 5,30. Вкратце условия цикла были следующими: предварительная инкубация при 95 °C в течение 5 минут, 40 циклов денатурации при 95 °C в течение 20 с, отжиг при 60 °C в течение 15 с, удлинение при 72 °C в течение 15 с и одноточечный флуоресцентный сбор данных в течение 10 с. Внешний стандарт пяти различных концентраций (5x10-12-5x10-16 г ДНК/реакция) был соамплифицирован. Для нормализации распространенности транскриптов рассчитывали среднее геометрическое RPLP0 и TBP.
- Чтобы устранить потенциальную перекрестную контаминацию, оцените чистоту препаратов клеток теки и гранулезы путем анализа экспрессии генов специфических для клеток маркеров CYP17A1 и CYP19A1 из свежевыделенных клеточных препаратов ТК и ГК (рис. 2).
Примечание: Статистическая оценка должна включать как минимум три репликации различных клеточных культур. В этой экспериментальной установке t-критерий или односторонний ANOVA был выполнен после проверки на нормальность и дисперсию.
Результаты
Несмотря на то, что ТК и ГК были выделены с использованием хорошо зарекомендовавших себя методов механической сепарации, основанных на фолликулярной компартментализации, экспрессия генов, специфичных для клеточного типа, CYP17A1 и CYP19A1 оценивалась для устранения риска перекрестной контаминации. CYP17A1 экспрессировался исключительно в недавно выделенных ТК, в то время как CYP19A1 преимущественно экспрессировался в недавно выделенных ГК (рис. 2).
Система совместного культивирования позволяет компартментализировать клетки теки и гранулезы крупного рогатого скота на противоположных сторонах мембранной вставки, тем самым имитируя пространственную организацию in vivo. После трех дней культивирования ТК продемонстрировали уплощенную и удлиненную морфологию по мере их распространения по поверхности мембраны вставки, покрытой коллагеном, что указывает на успешное прикрепление (рис. 3A). При культивировании в одиночку в течение всего 9-дневного периода ТК продолжали размножаться и достигли слияния к 9-му дню (рисунок 3B). Напротив, у ГК, культивируемых отдельно в течение 6 дней на мембране вставки, покрытой коллагеном, развился фибробластоподобный фенотип, который характерен для ГК in vitro (рис. 3C). Кроме того, как было описано ранее, ГК имеют тенденцию образовывать кластеры, что является типичной особенностью этих клеток в культуре 5,7,31,32. В системе ко-культивирования не наблюдалось никаких видимых морфологических различий ни у ТК, ни у ГК по сравнению с их соответствующими по времени монокультурами (рис. 3D), что указывает на то, что среда, основанная на вставках, поддерживает нормальное клеточное поведение. Тем не менее, из-за технических ограничений микроскопическая оценка ко-культуры остается сложной задачей, особенно в том, что касается дифференциации и оценки морфологии TC независимо от других клеток. Чтобы преодолеть эти ограничения, в настоящее время рассматривается оптимизированный протокол фиксации клеток в соответствии с изучением альтернативных стратегий идентификации клеток в отсутствие клеточно-специфических антител для иммуноокрашивания.
Функциональность системы ко-культивирования оценивали путем анализа продукции гормонов и экспрессии ключевых маркерных генов для ТК и ГК 33,34, подтверждая специфичную для клеток стероидогенную роль. Сравнение монокультуры ГК и модели ко-культуры выявило сходные уровни эстрадиола (Е2), продуцируемого in vitro. Однако, как и ожидалось, монокультура ТС продуцировала лишь незначительное количество Е2, что согласуется с гипотезой 2-клеток-2-гонадотропина (рис. 4А)15, которая гласит, что клетки ТС не обладают способностью синтезировать Е2 самостоятельно.
Для дальнейшей оценки физиологической значимости условий культивирования была изучена экспрессия ключевых маркерных генов33 . В соответствии с гипотезой 2-клеточного 2-гонадотропина, CYP19A1 преимущественно экспрессировался в ГК, тогда как CYP17A1 в основном обнаруживался в ТК, что наблюдается как в моно-, так и в условиях совместного культивирования (рис. 4B, C). Примечательно, что распространенность CYP19A1 в транскриптах была выше в ГК в системе ко-культуры по сравнению с монокультурой ГК, несмотря на отсутствие наблюдаемых различий в концентрациях эстрадиола.
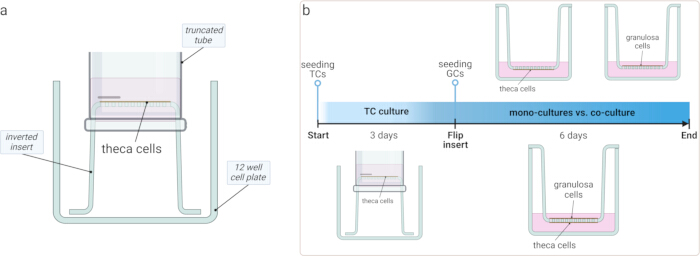
Рисунок 1: Схематическое изображение установки клеточной культуры. (A) Схема, иллюстрирующая специально изготовленную камеру для инокуляции, в которой используется усеченная трубка на перевернутой вставке для предотвращения утечки среды в течение начального периода культивирования. (B) График экспериментальной процедуры: ТК культивировали на перевернутой вставке в течение трех дней для присоединения. Вкладыш переворачивали, и GC высевали на противоположной стороне, после чего нужно было еще шесть дней культивирования. В исследовании сравнивались ТК и ГХ, культивируемые отдельно, с системой совместной культуры ТС-ГХ. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этой цифры.
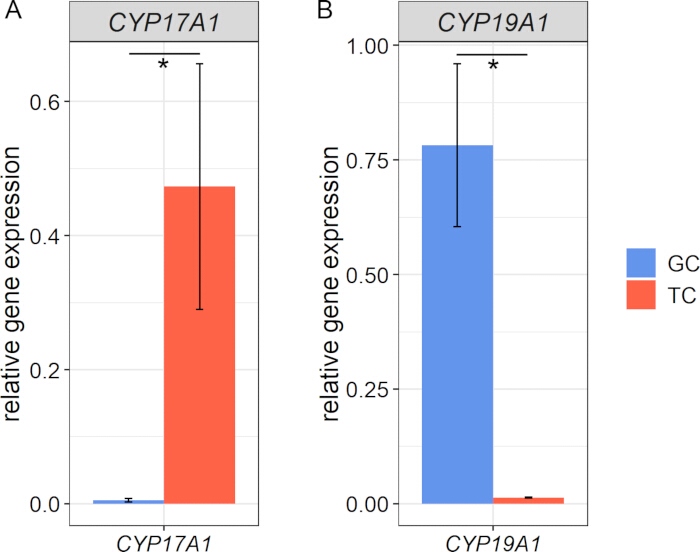
Рисунок 2: Экспрессия генов маркеров, специфичных для клеточного типа, в свежевыделенных гранулезных и тековых клетках. (A) CYP17A1 экспрессировался исключительно в TC, в то время как (B) CYP19A1 преимущественно обнаруживался в GC, подтверждая специфичность и первоначальную чистоту выделенных клеточных популяций до культивирования. Данные представлены в виде относительной экспрессии, нормированной к среднему геометрическому референсных генов RPLP0 и TBP. Показаны средние и стандартная погрешность средних, данные проверены на нормальность и дисперсию, звездочками обозначены значимые различия (n=3, t-критерий). Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этой цифры.
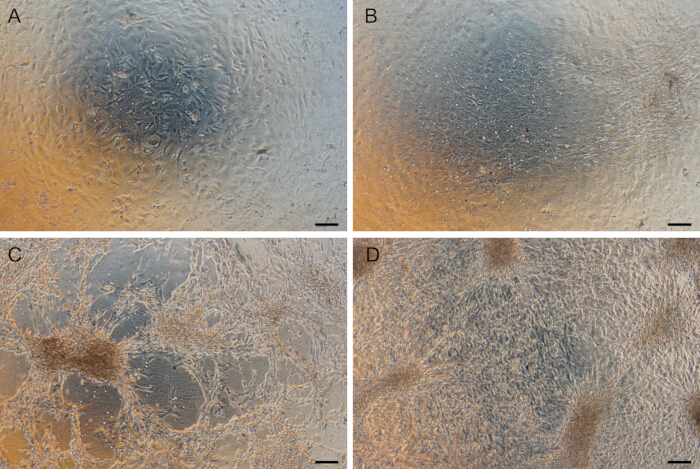
Рисунок 3: Морфология клеток теки и гранулезы в культуре. (А) ТС, культивируемые в течение 3 дней, прикрепляли к мембране, покрытой коллагеном. (Б) ТК срослись до слияния после всего 9-дневного периода в монокультуре. (C) ГК демонстрируют типичный фибробластоподобный фенотип через 6 дней в культуре. (D) Кокультура ТК и ГК не показывает видимой морфологической разницы по сравнению с соответствующими монокультурами, подобранными по времени. Этот снимок был сделан через 6 дней культивирования ГК и 9 дней культивирования ТС (в конечной точке эксперимента по сокультуре). Масштабные линейки 100 мкм. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
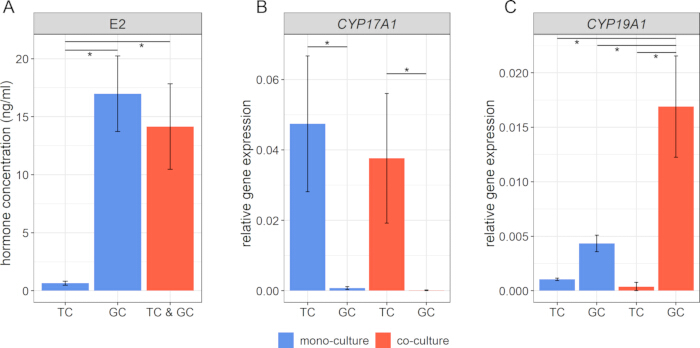
Рисунок 4: Анализ функциональных маркеров в системе ко-культивирования. (A) Гормональные концентрации эстрадиола (E2) подтверждают физиологическую функциональность системы клеточных культур. (В, В) Анализ экспрессии генов CYP17A1 маркера TC и CYP19A1 маркера GC демонстрирует идентичность и функциональное состояние обеих клеточных популяций. Для расчета относительной экспрессии использовали среднее геометрическое референсных генов RPLP0 и TBP . Показаны средние значения и стандартная погрешность средних, данные проверены на нормальность и дисперсию, звездочками обозначены значимые различия (n=3, односторонний ANOVA). Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этой цифры.
Обсуждение
Предпосылкой для выполнения этой модели совместного культивирования является хорошо выполненная изоляция обоих типов клеток для предотвращения любого перекрестного загрязнения. Чистоту обоих клеточных препаратов оценивали по экспрессии генов TC-специфичного маркера CYP17A1 и GC-специфичного маркера CYP19A1. Как было показано ранее, метод выделения GC и TC не показал значимого перекрестного загрязнения30.
Эта модель совместного культивирования позволяет одновременно культивировать клетки теки и гранулезы на противоположных сторонах мембраны, имитируя их пространственную организацию в фолликуле и поддерживая физиологическое состояние обеих клеточныхпопуляций. Валидность модели подкрепляется профилем выработки гормонов и паттернами экспрессии генов, которые согласуются с гипотезой 2-клеток-2-гонадотропина15. Как и ожидалось, низкие уровни эстрадиола в монокультуре ТС подтверждают, что клетки ТЕКА сами по себе не способны синтезировать эстрадиол, что подтверждает установленные знания о фолликулярном стероидогенезе. Несмотря на более высокую экспрессию CYP19A1 в ко-культивируемых GC, уровни эстрадиола оставались сопоставимыми с монокультурой GC, что свидетельствует о влиянии регуляторных механизмов, таких как доступность субстрата, ингибирование обратной связи или различия в активности ферментов. Дальнейшее изучение сигнальных путей и лежащих в их основе механизмов является предметом для будущих исследований. Тем не менее, создание функциональной системы совместного культивирования бычьих ТК и ГК является императивом, как показано в данном исследовании. В настоящем исследовании основное внимание уделялось продукции эстрадиола и уровням экспрессии мРНК CYP17A1 и CYP19A1 как ключевым показателям функциональности модели ко-культуры. Оба представляют собой чувствительные маркеры гранулезы и функции тековых клеток 4,8,36 и напрямую согласуются с гипотезой 2-клеток-2-гонадотропина15. Признавая важность экспрессии белка, отсутствие надежных антител не позволяло точно оценить его; Таким образом, всесторонний анализ уровней белка выходил за рамки этого первоначального исследования.
В целом, данная модель является дальнейшим развитием традиционной 2D модели культуры, которая частично имитирует структуру фолликула яичника3. Полученные результаты подтверждают физиологическое состояние обоих клеточных компартментов, выявленное экспрессией чувствительных маркеров для физиологии GC и TC.
Преимущество по сравнению с традиционными 2D-моделями культур заключается в облегчении паракринных взаимодействий между клетками теки и гранулезы, сохраняя при этом их пространственное разделение, лучше имитируя фолликулярную структуру in vivo. В отличие от этого, в системах совместной культуры на тарелке, где ТК и ГК смешиваются в одной лунке, отсутствует такая структурная организация. В исследованиях с использованием таких систем обычно применялось соотношение GC:TC 4:1 19,20,21, но этот подход не отражает компартментализации, обнаруженной in vivo, и, следовательно, может быть нецелесообразным для анализа субстратного обмена. Кроме того, изменения, обнаруженные на клеточном уровне, не могут быть легко обнаружены, когда эту смесь GC-TC необходимо тщательно сортировать.
Трехмерные модели ко-культур для гранулезных и тековых клеток остаются редкими, но ранние попытки показали многообещающие результаты. Группа Kotsuji 22,23,24,37 ранее описала взаимодействие гранулезных и тековых клеток в культуре с использованием коллагеновой мембраны в качестве физического сепаратора. Тем не менее, эта система опиралась на специально изготовленную коллагеновую мембрану, что затрудняло воспроизводимость и стандартизацию. В отличие от этого, представленная модель кокультуры выигрывает от коммерчески доступных вставок для подвешенных культур, которые повышают воспроизводимость, стандартизацию и качество продукции, обеспечивая более широкое применение в лабораториях. Несмотря на то, что представленная здесь модель привела к более высокому образованию эстрадиола по сравнению с предыдущими моделями, сравнение этих моделей затруднено, поскольку в ней отсутствует единство добавок клеточных культур, особенно используемые концентрации26 или дополнительное использование ИФР-1 22,23,24,37.
Одним из наиболее важных этапов процедуры является культивирование ТЦ в камере посева. Обеспечение надежного закрепления камеры на перевернутой вставке имеет важное значение для предотвращения утечки среды, которая в противном случае может поставить под угрозу крепление TC и его выживание. Поэтому рекомендуется с помощью пинцета плотно прижать камеру для посева к перевернутой вставке и визуально осмотреть место расположения камеры для посева. Кроме того, для снятия камеры модифицирования и переворачивания вкладыша через три дня требуется техническая точность. Для выполнения этого шага без нарушения и/или повреждения прикрепленных клеток может потребоваться некоторая тренировка навыков. Более высокая плотность клеток, превышающая оптимальные уровни 1,0 x 10⁵ клеток на вставку, может привести к дифференцировке GC, потенциально влияя на выработку стероидов. Кроме того, представленный метод криоконсервации показал урожайность после размораживания на 80-90% для обоих типов клеток.
Несмотря на то, что описанная модель предлагает физиологическую и воспроизводимую систему для изучения взаимодействий гранулезных и тековых клеток, следует учитывать некоторые ограничения. Метод может быть адаптирован и к другим видам; Тем не менее, видоспецифичные различия могут потребовать оптимизации параметров клеточных культур, таких как плотность клеток, время или состав среды. Масштабируемость этой модели ограничена доступностью вставок для клеточных культур, но она может быть достаточной для большинства исследований эффекторов. Наконец, эта модель совместного культивирования является еще одним шагом на пути к имитации ситуации с фолликулом in vivo , но все еще не имеет всей сложности фолликула яичника.
В заключение следует отметить, что представленная модель может быть легко модифицирована для удовлетворения различных экспериментальных потребностей, таких как продление периода культивирования, корректировка количества или соотношения клеток или включение дополнительных факторов. С дальнейшим развитием эта система представляет собой ценный инструмент для изучения фолликулярной функции, стероидогенеза и клеточной сигнализации между обоими клеточными компартментами. Кроме того, он обладает потенциалом для применения в репродуктивной токсикологии, обеспечивая контролируемую платформу для оценки воздействия различных соединений на фолликулярные клетки.
Раскрытие информации
Все авторы заявляют, что у них нет конфликта интересов.
Благодарности
Мы хотели бы выразить нашу признательность Веронике Шрайтер, Марен Андерс и Оливье Зайделю за их прекрасную техническую помощь. Кроме того, мы хотели бы выразить признательность коммерческой скотобойне "DANISH CROWN Teterower Fleisch GmbH" (Германия), у которой мы получили завязи для этого исследования.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| 10x Сбалансированный солевой раствор Хэнка HBSS (с мг/Ca, фенол красный) | Биография и Продавать | БС. Л201-10 | растворить в сверхчистой воде; отрегулировать pH до 7,4 раствора для сбраживания (HBSS и HEPES) и выполнить стерильную фильтрацию перед использованием |
| Игла 18 G, 40 мм, диаметр 1,2 мм | Рот | 281Т.1 | игла одноразовая, короткий срез |
| Шприц 3 мл (Omnifix Luer) | Рот | LY22.1 | |
| Аккутаза | Мерк | А6964 | филиал компании: Sigma-Aldrich |
| амфотерицин B (250 &; г/мл) | Биография и Продавать | БС. АБ17.01050 | |
| андростендион | Мерк | 46033 | используем стоковый раствор 10 мМ, разведенный в 100% этаноле; Филиал компании: Supelco |
| бинокль Carl Zeiss Technival2 | Carl Zeiss Йена | Не применимо | используется совместно с падающим светом Schott KL 1600 LED |
| БСА (5%) | Мерк | А3311 | филиал компании: Sigma-Aldrich |
| Клеточный фильтр (100 & микро; м размер пор) | Сарштедт | 83.3945.100 | Подходит для центрифуговых пробирок объемом 50 мл |
| коллаген R (0,2 %) | Серва | 47254 | |
| Коллагеназа NB8 (10%) | Нордмарк | S1745601 | |
| Контейнер для заморозки CoolCell LX | Мерк | CLS432002 | продукт от Corning |
| флаконы для криоконсервации (2 мл) | ТТП «Фауст» | TPP89020 | |
| тарелка для культуры, 12-луночная, плоское дно | ТТП «Фауст» | TPP92112 | |
| чашка для культуры, 24-луночная, плоское дно | ТТП «Фауст» | TPP92424 | |
| посуда для культивирования, 6-луночная, плоское дно | ТТП «Фауст» | TPP92006 | |
| ДМСО | Рот | 4720.1 | |
| DPBS без Ca2+, Mg2+ | Биография и Продавать | БС. Л182-10 | Перед применением растворить в ультрачистой воде и автоклаве |
| эстрадиол, 17b-[2,4,6,7-3H] | Hartmann Analytik | ART1555 | |
| Фетальная сыворотка для теленка (FBS Superior stabil) | Биография и Продавать | ФПС. С0615 | |
| ФСГ (~7 000 МЕ/мг; из гипофиза человека) | Мерк | Ф4021 | Мы предпочитаем использовать стоковый раствор 2&микро; г/мл, разведенный в 0,9 % NaCl; филиал компании: Sigma-Aldrich |
| вкладыши для подвешенных клеточных культур (0,4 &; м размер пор) | cellQART | 9320412 | при заказе учитывайте различные свойства вкладышей; мы предпочитаем прозрачную ПЭТ-мембрану для фазово-контрастной микроскопии |
| ГЕПЕС (1 М) | Рот | 9105.2 | отрегулировать pH до 7,4 раствора для сбраживания (HBSS и HEPES) и выполнить стерильную фильтрацию перед использованием |
| Голотрансферрин (крупный рогатый скот) | Мерк | Т1283 | растворить в стерильной воде; филиал компании: Sigma-Aldrich |
| Мини-набор innuPREP RNA 2.0 | IST innuscreen | 845-КС-2040250 | |
| инсулин (10 мг/мл; из поджелудочной железы крупного рогатого скота) | Мерк | И0516 | раствориться в 1x PBS; филиал компании: Sigma-Aldrich |
| L-глутамин (200 мМ) | Биография и Продавать | БС. К0283 | |
| ЛР3-ИФР-1 | Мерк | И1146 | Мы используем стоковый раствор 200 & микро; г/мл, растворенный в 10 мМ HCl и 1x PBS с 1 мг/мл BSA; филиал компании: Sigma-Aldrich |
| Спектрофотометр NanoDrop 1000 | ТермоСайентиал | Не применимо | Измерение концентрации РНК |
| NEA (100 крат) | Биография и Продавать | БС. К0293 | |
| пенициллин/стрептомицин (10 000 МЕ/10 мг/мл) | Биография и Продавать | БС. А2213 | |
| Очищенная вода, пригодная для культивирования клеток | Мерк | Ш3500 | филиал компании: Sigma-Aldrich |
| Набор для синтеза кДНК SensiFAST | Биолайн | БИО-65054 | поставляется через партнера по сбыту BioCat |
| бикарбонат натрия (7,5%) | Биография и Продавать | БС. Л1713 | |
| селенит натрия | Мерк | С9133 | растворить в стерильной воде; филиал компании: Sigma-Aldrich |
| термошейкер TS-100C | Научный Фишер | 12357627 | используется вместе с блоком HC18 (кат.-No 12337627) |
| α-MEM | Биография и Продавать | БС. Ф0915 |
Ссылки
- Adams, G. P., Jaiswal, R., Singh, J., Malhi, P. Progress in understanding ovarian follicular dynamics in cattle. Theriogenology. 69 (1), 72-80 (2008).
- Forde, N., et al. Oestrous cycles in Bos taurus cattle. Anim Reprod Sci. 124 (3-4), 163-169 (2011).
- Hennet, M. L., Combelles, C. M. The antral follicle: A microenvironment for oocyte differentiation. Int J Dev Biol. 56 (10-12), 819-831 (2012).
- Christenson, L. K., et al. Research resource: Preovulatory LH surge effects on follicular theca and granulosa transcriptomes. Mol Endocrinol. 27 (7), 1153-1171 (2013).
- Baufeld, A., Vanselow, J. Increasing cell plating density mimics an early post-LH stage in cultured bovine granulosa cells. Cell Tissue Res. 354, 869-880 (2013).
- Baufeld, A., Vanselow, J. A Tissue culture model of estrogen-producing primary bovine granulosa cells. J Vis Exp. (139), e58208(2018).
- Gutierrez, C. G., Campbell, B. K., Webb, R. Development of a long-term bovine granulosa cell culture system: Induction and maintenance of estradiol production, response to follicle- stimulating hormone, and morphological characteristics. Biol Reprod. 56 (3), 608-616 (1997).
- Hamel, M., Vanselow, J., Nicola, E. S., Price, C. A. Androstenedione increases cytochrome P450 aromatase messenger ribonucleic acid transcripts in non-luteinizing bovine granulosa cells. Mol Reprod Dev. 70, 175-183 (2005).
- Chandrasekher, Y. A., Fortune, J. E. Effects of oxytocin on steroidogenesis by bovine theca and granulosa cells. Endocrinology. 127 (2), 926-933 (1990).
- Silva, J. M., Price, C. A. Effect of follicle-stimulating hormone on steroid secretion and messenger ribonucleic acids encoding cytochromes P450 aromatase and cholesterol side-chain cleavage in bovine granulosa cells in vitro. Biol Reprod. 62 (1), 186-191 (2000).
- Gong, J. G., McBride, D., Bramley, T. A., Webb, R. Effects of recombinant bovine somatotrophin, insulin-like growth factor-I and insulin on bovine granulosa cell steroidogenesis in vitro. J Endocrinol. 143 (1), 157-164 (1994).
- Baufeld, A., Koczan, D., Vanselow, J. L-lactate induces specific genome-wide alterations of gene expression in cultured bovine granulosa cells. BMC Genomics. 20 (1), 273(2019).
- Baddela, V. S., Sharma, A., Plinski, C., Vanselow, J. Palmitic acid protects granulosa cells from oleic acid induced steatosis and rescues progesterone production via cAMP dependent mechanism. Biochim Biophys Acta Mol Cell Biol Lipids. 1867 (8), 159159(2022).
- Sharma, A., et al. Elevated free fatty acids affect bovine granulosa cell function: a molecular cue for compromised reproduction during negative energy balance. Endocr Connect. 8 (5), 493-505 (2019).
- Hillier, S. G., Whitelaw, P. F., Smyth, C. D. Follicular oestrogen synthesis - The two-cell, two- gonadotrophin model revisited. Mol Cell Endocrinol. 100, 51-54 (1994).
- Campen, K. A., Lavallee, M., Combelles, C. M. H. The impact of bisphenol S on bovine granulosa and theca cells. Reprod Domest Anim. 53 (2), 450-457 (2018).
- Glister, C., Richards, S. L., Knight, P. G. Bone morphogenetic proteins (BMP) -4, -6, and -7 potently suppress basal and luteinizing hormone-induced androgen production by bovine theca interna cells in primary culture: could ovarian hyperandrogenic dysfunction be caused by a defect in thecal BMP signaling. Endocrinology. 146 (4), 1883-1892 (2005).
- Wrathall, J. H., Knight, P. G. Effects of inhibin-related peptides and oestradiol on androstenedione and progesterone secretion by bovine theca cells in vitro. J Endocrinol. 145 (3), 491-500 (1995).
- Shores, E. M., Picton, H. M., Hunter, M. G. Differential regulation of pig theca cell steroidogenesis by LH, insulin-like growth factor I and granulosa cells in serum-free culture. J Reprod Fertil. 118 (2), 211-219 (2000).
- Gregoraszczuk, E. L., Ptak, A., Karniewska, M., Ropstad, E. Action of defined mixtures of PCBs, p,p'-DDT and its metabolite p,p'-DDE, on co-culture of porcine theca and granulosa cells: steroid secretion, cell proliferation and apoptosis. Reprod Toxicol. 26 (2), 170-174 (2008).
- Rak, A., Drwal, E., Wróbel, A., Gregoraszczuk, E. Resistin is a survival factor for porcine ovarian follicular cells. Reproduction. 150 (4), 343-355 (2015).
- Kotsuji, F., Tominaga, T. The role of granulosa and theca cell interactions in ovarian structure and function. Microsc Res Tech. 27 (2), 97-107 (1994).
- Orisaka, M., et al. Effects of ovarian theca cells on granulosa cell differentiation during gonadotropin-independent follicular growth in cattle. Mol Reprod Dev. 73 (6), 737-744 (2006).
- Tajima, K., et al. Role of granulosa and theca cell interactions in ovarian follicular maturation. Microsc Res Tech. 69 (6), 450-458 (2006).
- Tajima, K., et al. Effects of ovarian theca cells on apoptosis and proliferation of granulosa cells: changes during bovine follicular maturation. Biol Reprod. 66 (6), 1635-1639 (2002).
- Allegrucci, C., Hunter, M. G., Webb, R., Luck, M. R. Interaction of bovine granulosa and theca cells in a novel serum-free co-culture system. Reproduction. 126 (4), 527-538 (2003).
- Santaguida, S., et al. Side by side comparison between dynamic versus static models of blood-brain barrier in vitro: A permeability study. Brain Res. 1109 (1), 1-13 (2006).
- Pardridge, W. M. The Isolated Brain Microvessel: A Versatile Experimental Model of the Blood-Brain Barrier. Front Physiol. 11, 398(2020).
- Schneider, F., Brüssow, K. P. Effects of a preovulatory administered depot gonadotrophin-releasing hormone agonist on reproductive hormone levels and pregnancy outcome in gilts. Reprod Fertil Dev. 18 (8), 857-866 (2006).
- Nimz, M., Spitschak, M., Schneider, F., Fürbass, R., Vanselow, J. Down-regulation of genes encoding steroidogenic enzymes and hormone receptors in late preovulatory follicles of the cow coincides with an accumulation of intrafollicular steroids. Domest Anim Endocrinol. 37, 45-54 (2009).
- Amsterdam, A., May, J. V., Schomberg, D. W. Synergistic effect of insulin and follicle-stimulating hormone on biochemical and morphological differentiation of porcine granulosa cells in vitro. Biol Reprod. 39 (2), 379-390 (1988).
- Monga, R., Sharma, I., Datta, T. K., Singh, D. Characterization of serum-free buffalo granulosa cell culture and analysis of genes involved in terminal differentiation from FSH- to LH-responsive phenotype. Domest Anim Endocrinol. 41 (4), 195-206 (2011).
- Bao, B., Garverick, H. A. Expression of steroidogenic enzyme and gonadotropin receptor genes in bovine follicles during ovarian follicular waves: A review. J Anim Sci. 76 (7), 1903-1921 (1998).
- Bao, B., et al. Changes in messenger ribonucleic acid encoding luteinizing hormone receptor, cytochrome P450 side chain cleavage, and aromatase are associated with recruitment and selection of bovine ovarian follicles. Biol Reprod. 56 (5), 1158-1168 (1997).
- Orisaka, M., Tajima, K., Tsang, B. K., Kotsuji, F. Oocyte-granulosa-theca cell interactions during preantral follicular development. J. Ovarian. Res. 2 (1), 9(2009).
- Gilbert, I., Robert, C., Dieleman, S., Blondin, P., Sirard, M. A. Transcriptional effect of the LH surge in bovine granulosa cells during the peri-ovulation period. Reproduction. 141 (2), 193-205 (2011).
- Kotsuji, F., Kamitani, N., Goto, K., Tominaga, T. Bovine theca and granulosa cell interactions modulate their growth, morphology, and function. Biol Reprod. 43 (5), 726-732 (1990).
Перепечатки и разрешения
