Стабильная амплификация in vitro первичных герминогенных клеток (PGCLCs), суррогатная модель эмбриональных первичных зародышевых клеток, полученная из плюрипотентных стволовых клеток, столкнулась с техническими проблемами. Этот протокол поддерживает долгосрочную экспансию PGCLC в условиях in vitro без клеток сыворотки или фидерного слоя.
Методическая статья
Долгосрочное культивирование первичных герминогенных клеток человека
В этой статье
Краткое содержание
Аннотация
Первичные зародышевые клетки (ПГК) являются общими предшественниками всех мужских и женских клеток зародышевой линии. ПГК возникают в периимплантационных эмбрионах млекопитающих и становятся гендерно-специфичными предшественниками половых клеток при половой дифференцировке гонадного анлажа. Модель in vitro , широко известная как PGC-подобные клетки (PGCLCs), созданная из плюрипотентных стволовых клеток человека, является полезным суррогатом человеческих эмбриональных PGC, предоставляя уникальную возможность исследовать гаметогенез человека in vitro. Представленный здесь протокол поддерживает долгосрочную экспансию ПГКЛК человека in vitro . Свежевыделенные ПГКЛК сначала поддерживаются на слое питателя Служащих Другим, а затем расширяются в состоянии без питателя на экстракте базальной мембраны. Долговременные культуральные PGCLC (LTC-PGCLCs) могут быть обогащены методом сортировки клеток, активируемых флуоресценцией (FACS), как CD38-положительные клетки и легко амплифицируются до десятков миллионов клеток в виде чистой, монотонной культуры без питательных веществ и сыворотки без видимых ограничений, таких как старение. Практически возможно получить чистую популяцию из более чем 1 миллиона человеческих ПГКЛК из нескольких тысяч недавно выделенных ПГКЛК. Культура клеток LTC-PGCLC человека является полезной и удобной моделью in vitro для изучения биологии герминогенных клеток человека и дифференцировки в нижележащие клетки зародышевой линии.
Введение
Первичные зародышевые клетки (ПГК) являются самыми ранними предшественниками всех клеток зародышевой линии. ПГК человека появляются из заднего эпибласта - предположительно незафиксированных амниотических клеток-предшественников - в раннем постимплантационном желудочном состоянии эмбрионов на 2-3 неделе гестации 1,2,3,4,5,6,7. Для спецификации ПГК как человека, так и мыши сигнальные пути, активируемые костными морфогенетическими белками (BMP) и WNT3, играют решающую роль 3,6. В то время как индукция трех транскрипционных факторов, BLIMP1, PRDM14 и TFAP2C, необходима для спецификации ПГК мышей, в спецификации ПГК человека роль PRDM14 уменьшается. SOX17, который не подходит для спецификации ПГК у мышей, но незаменим для спецификации ПГК у человека, индуцируется сигнализацией BMP способом, зависящим исключительно от EOMES или от EOMES и TBXT 7,8,9. ПГК человека мигрируют из заднего эпибласта в сторону гонадного анлагена в генитальных гребнях через дорсальную брыжейку на 5-6 неделе беременности 10,11,12,13,14,15,16. Миграция человека PGC может быть вызвана хемотаксисом, хотя она и ожидает экспериментального подтверждения. Транскриптомные профили мигрирующих ПГК человека не идентичны таковым у мышиных ПГК на той же стадии17,18. Например, человеческие PGC экспрессируют DAZL еще до их расселения в гонадном анлагене, в то время как мышиные PGC экспрессируют DAZL только после их заселения в гонадах9. После инициации специфичной для пола дифференцировки гонадных соматических клеток, ПГК также подвергаются дифференцировке в просперматогонии (также известные как гоноциты) или оогонию.
Поскольку доступ к человеческим эмбриональным ПГК чрезвычайно затруднен из-за технических и этических барьеров, использование ПГК-подобных клеток (ПГКЛК), полученных из плюрипотентных стволовых клеток, становитсявсе более популярным3. ПГКЛК мышей напоминают постмиграционную стадию ПГК, характеризующуюся усовершенствованным глобальным деметилированием геномной ДНК (гДНК), и они способны генерировать сперматозоиды и ооциты, компетентные в оплодотворении 19,20,21. Напротив, человеческие ПГКЛК напоминают более ранние стадии эмбриональных ПГК с ограниченным глобальным деметилированием гДНК 7,22,23,24. Накапливаются данные о том, что человеческие PGCLCs, несмотря на их относительно незрелый статус, способны к дифференцировке in vitro до более поздних стадий половых клеток, напоминающих oogonia25,26 или prospermatogonia27.
С тех пор как в 2015 году Irie et al. опубликовали первое поколение PGCLC из плюрипотентных стволовых клетокчеловека7, ряд лабораторий опубликовали различные протоколы производства PGCLC человека. Ранние, стандартные протоколы включают образование плюрипотентных клеточных агрегатов, которые часто называют эмбриоидными тельцами 7,22,24,26,28,29. ПГКЛК человека могут быть получены с использованием различных протоколов на основе агрегирования, которые имеют сопоставимые транскриптомные профили, все из которых сильно экспрессируют ключевые гены маркеров ПГК, такие как PRDM1, SOX17, TFAP2C, POU5F1 и NANOS3, в то время как экспрессия маркера плюрипотентности SOX2 или маркера поздней стадии ПГК DDX4 обычно подавляется24. Сообщалось также об успешных попытках получения человеческих PGCLC из монослойных клеточных культур для улучшения масштабируемости и удобства30. Несмотря на то, что выход PGCLC относительно невелик, успешное производство PGCLC человека из плюрипотентных стволовых клеток, полученных in vitro эмбрионов на стадии гаструляции, в значительной степени способствует выяснению механизмов спецификации зародышевой линии и развития PGC на ранних стадиях 31,32,33,34,35,36.
Несмотря на то, что выход и качество человеческих PGCLC, полученных с использованием различных методов клеточного культивирования, улучшаются, технические трудности в расширении клеточных культур человеческих PGCLC представляют собой значительное препятствие для их применения в экспериментах, требующих большого количества однородных клеточных популяций, таких как химический или генетический скрининг, а также для производства на поздних стадиях клеток зародышевой линии26. Gell et al. сообщили о поддержании человеческих PGCLC в течение 21 дня на кормушках STO в среде на основе FR10, содержащей фактор стволовых клеток (SCF), и 2,5% фетальной сыворотки теленка (FCS); однако PGCLC имеют тенденцию отклоняться от PGC-подобной идентичности к другим типам клеток, которые могут не иметь отношения к развитию клеток зародышевой линии37. Muraze et al. неоднократно устраняли такие нежелательные клетки из культуры с помощью FACS при каждом прохождении и показали, что человеческие PGCLC способны сохранять свой потенциал пролиферации в долгосрочной перспективе in vitro38. Позже Murase et al. сообщили об успешной амплификации PGCLC человека в среде, содержащей 2,5% FCS39, но для их метода требуются клетки фидерного слоя m220-5, которые представляют собой спонтанно возникшие MMC-резистентные субклоны эмбриональных клеток мыши m220, экспрессирующие мембранно-связанную форму мышиного SCF из экзогенного вектора40. На сегодняшний день ячейки m220-5 еще не были помещены в общедоступное хранилище. Таким образом, основной проблемой остается экспансия культуры PGCLC человека in vitro на большое количество гомогенных клеток, сохраняя их PGC-подобные характеристики в простых условиях, не требующих нестандартного клеточного ресурса и свободных от реагентов животного происхождения, эффективность которых может варьироваться в разных партиях.
Для преодоления вышеуказанного технического препятствиябыл разработан метод, который позволяет осуществлять долгосрочную экспансию in vitro ПГКЛК человека в качестве гомогенной клеточной популяции, сохраняя ПГХ-подобные характеристики в состоянии, свободном от клеток сывороточного или фидерного слоя. Поскольку человеческие PGCLC экспрессируют теломеразу, эти клетки амплифицируются с постоянной скоростью без признаков старения или отклонения от других типов клеток в течение как минимум 150 дней. Долговременные культуральные PGCLC (LTC-PGCLCs) сохраняют свои транскриптомные характеристики, подобные человеческим PGC, хотя их глобальная гДНК умеренно деметилируется при повторных пассажах. LTC-PGCLS легко превращаются в плюрипотентные эмбриональные зародышевые клетки, подобные клеткам (EGCLCs), восстанавливая iPSC-подобный транскриптом и метилом гДНК, хотя импринтированная аллельная рестрикция экспрессии РНК H19 теряется. LTC-PGCLCs также способны дифференцироваться в DAZL-экспрессирующие клетки, напоминающие просперматогонию в культуре ксенобиотичных органоидов xrTestis27. Таким образом, модель LTC-PGCLC человека представляет собой новый тип стабильно поддерживаемого, значимого для плюрипотентности ресурса клеточной культуры, который постоянно сохраняет биологические характеристики PGCLC и легко расширяется in vitro в качестве стабильной клеточной линии.
В данной статье описан метод адаптации свежевыделенной, обогащенной FACS чистой популяции ПГКЛК человека к бессывороточной, длительной поддерживающей культуре путем временной поддержки стандартными клетками фидерного слоя STO, а затем в безпитательном состоянии на экстракте базальной мембраны (BME). Этот метод поддерживает in vitro экспансию человеческих PGCLC, полученных с использованием эмбриоидного телезависимого протокола, как описано ранее 24,41,42 или описано Sasaki et al22, а также метод монослойного культивирования, описанный Overeem et al 30. При применении к человеческим PGCLC, полученным в соответствии с описанием41, первоначальная популяция в 10 000 клеток может быть увеличена почти до 1 x 10⁹ клеток за 1,5 - 2 месяца с 4 - 4,5 днями времени удвоения популяции41. Также ожидается применимость этого метода к человеческим PGCLC, полученным другими методами.
Протокол
1. Приготовление питательных сред для клеточных культур
- Приготовьте среду, как описано в Таблице 1, Таблице 2, Таблице 3 и Таблице 4. Хранить аликвоты этих носителей можно в замороженном виде.
- Приготовьте базальную среду PGCLC, как описано в таблице 1. Внесите 40 мл аликвот и храните при температуре -20 °C в течение 6 месяцев. Приготовьте среду STO 1, как описано в таблице 2. Хранить 50 мл аликвот в центрифужных пробирках по 50 мл при температуре 4 °C в течение 1 месяца.
- Приготовьте среду STO 2, как описано в таблице 3. Используйте немедленно. Приготовьте среду для хранения обработанных митомицином-С клеток STO (MMC-STO), как описано в таблице 4. Хранить 10 мл аликвот при температуре -20 °C в течение 6 месяцев.
ВНИМАНИЕ: Поскольку диметилсульфоксид считается опасным (горючая жидкость), его следует хранить вдали от источников тепла, искр, открытого огня или горячих поверхностей. Следуйте местному нормативному протоколу по его утилизации.
2. Препарирование STO-клеток, обработанных ММК
ПРИМЕЧАНИЕ: Лечение STO клеток ММК инактивирует их пролиферативную активность без существенного ущерба для их жизнеспособности. Клетки MMC-STO используются в качестве клеток питающего слоя во время начального культивирования человеческих PGCLC (стадия 4), а также в качестве источника бесклеточной кондиционированной среды (стадия 3).
- Выращивайте STO-клетки в среде STO 1 в четырех чашках P15 до почти полного слияния. Меняйте STO medium от 1 до 23 мл/чашка. Добавьте 23 μл/чашку с концентрацией 10 мг/мл MMC непосредственно в среду до конечной концентрации 10 мкг/мл.
- Хорошо перемешайте и инкубируйте при температуре 37 °C в инкубаторе сCO2 в течение 4 часов.
ВНИМАНИЕ: ММК приводит к летальному исходу при проглатывании большого количества, и это подозреваемый канцероген. Обращение с этим соединением и его утилизация должны осуществляться в соответствии с местными нормативными протоколами. - Мойте ячейки 20 мл/чашку PBS Dulbecco's PBS (Ca/Mg-free) 2 раза при комнатной температуре.
- Диссоциировать клетки с помощью 4 мл/чашка TrypLE Express в инкубаторе сСО2 в течение 2 мин. Суспензируйте клетки в одноклеточную суспензию с помощью щадящего пипетирования.
- Перенесите две чашки клеточной суспензии (8 мл) в центрифужную пробирку объемом 50 мл, содержащую 30 мл ледяной среды STO-1. Повторите то же самое для двух других блюд, чтобы сделать две пробирки с 38 мл клеточной суспензии.
- Подсчитайте клетки в присутствии 0,2% трипанового синего для оценки жизнеспособности клеток с помощью гемоцитометра или автоматизированного счетчика клеток.
- Центрифугируйте ячейки при давлении 300 x g в течение 5 мин при 4 °C. Выбросьте надосадочную жидкость. Ресуспендируйте клеточные гранулы в ледяной среде для хранения замороженных клеток до 5 x 10⁶ клеток/мл.
- Приготовьте 1 мл аликвот обработанных MMC STO клеток в криогенных флаконах. Медленно заморозьте ячейки в пенополистироловой коробке или устройстве для медленной заморозки и храните при температуре -80 °C до 12 месяцев.
3. Приготовление STO-кондиционированной среды (S-CM)
ПРИМЕЧАНИЕ: Бесклеточная кондиционированная среда клеток MMC-STO (полученная на этапе 2) поддерживает выживание и пролиферацию PGCLC человека, подавляя их отклонение в сторону клеток, теряющих PGC-подобные характеристики.
- День 1: Разморозьте обработанные MMC STO клетки из замороженных запасов и инокулируйте 5 x 10⁶ клеток в покрытую желатином чашку P10 с концентрацией 10 мл/чашка STO-medium 2. Типичный размер партии состоит из 4-8 тарелок P10. Инкубируйте клетки при температуре 37 °C в инкубаторе сСО2 в течение ночи.
- Чтобы покрыть лунки желатином, добавьте 1 мл на лунку 0,1% желатина и выдерживайте при комнатной температуре не менее 20 минут. Отсадите излишки желатинового раствора и оставьте лунки открытыми в шкафу биобезопасности до полного высыхания. Хранить пластиковую посуду с желатиновым покрытием при комнатной температуре в течение 2 недель или при температуре 4 °C в течение 3 месяцев.
- Разморозьте аликвоты базальной среды PGCLC при 4 °C в течение ночи.
ПРИМЕЧАНИЕ: Не рекомендуется размораживать эту среду быстрее при более высокой температуре. Не храните базальную среду PGCLC при температуре 4 °C более 1 недели. - День 2: Извлеките и выбросьте STO-medium 2. Вымойте ячейки теплой DPBS (~10 мл/чашка), а затем промывка теплой базальной средой PGCLC (2 мл/чашка). Добавьте теплую базальную среду PGCLC (12 мл на чашку) и инкубируйте клетки при температуре 37 °C в инкубаторе сCO2 на ночь.
- День 3: Соберите всю кондиционированную среду в центрифужную пробирку объемом 50 мл. Повторите PGCLC Basal Medium (12 мл/чашка) и инкубацию для сбора кондиционированной среды на следующий день из той же культуры клеток STO. Кондиционированную среду, собранную при 300 x g , центрифугируют в течение 5 мин при 4 °C. Внесите 10 мл аликвот надосадочной жидкости (S-CM) в центрифужные пробирки объемом 15 мл. Не принимайте последние 3 мл среды, оставшейся на дне пробирок объемом 50 мл, чтобы избежать контаминации клеток MMC-STO в S-CM. Хранить аликвоты при температуре -80 °C до 6 месяцев.
- День 4: Собирайте урожай S-CM, повторяя шаг 3.4 каждый день до тех пор, пока монослойная культура MMC-STO не испортится после 5-6 дней культивирования в базальной среде PGCLC. Прекращайте сбор урожая, когда от чашки отделяется 25% или более клеток.
4. Адаптация ПГКЛК человека к долговременной культуре
- Культивирование свежевыделенных человеческих PGCLC на слое питателя MMC-STO. Получение человеческих ПГКЛК с использованием ранее опубликованного метода (Mitsunaga et al.24; Kobayashi et al.41). Также опубликованы подробные протоколы индукции PGCLC человека42,43.
- После первоначальной амплификации в течение 28 дней сохраняйте PGCLC в качестве LTC-PGCLC на BME в качестве культуры, не содержащей питательных веществ. На протяжении этих двух этапов культивирования PGCLC используют среду, кондиционированную STO (S-CM, полученную на этапе 3) с добавлением SCF, но без добавления FCS. Ингибитор ROCK необходим только сразу после пассирования.
ПРИМЕЧАНИЕ: В качестве BME в нашей лаборатории использовался матригель класса ESC. Другие коммерческие продукты не поддерживали долгосрочное расширение LTC-hPGCLC. - День 1: Инокулируйте обработанные MMC клетки питающего слоя STO в покрытые желатином 6-луночные планшеты до 8 x 10⁴ клеток/см2 с концентрацией 3 мл/лунка STO-medium 2. Инкубируйте слой кормушки при температуре 37 °C в инкубаторе сCO2 на ночь.
- День 2: Выбросьте STO-среду из культуры и промойте клетки теплым МЕМ Дульбекко (без сыворотки), 3 мл/лунка. Добавьте 3 мл/лунку S-CM с добавлением 0,1 мМ 2-меркаптоэтанола, 50 мкг/мл аскорбиновой кислоты, 100 нг/мл человеческого рекомбинантного SCF и 10 мкМ Y-27632. Инокулируйте 500 - 2 000 свежевыделенных человеческих PGCLC в подающий слой STO в каждой лунке. Инкубируйте клетки при температуре 37 °C в инкубаторе сСО2 в течение ночи.
ПРИМЕЧАНИЕ: Присутствие сыворотки, даже в низких концентрациях, имеет тенденцию вызывать появление нежелательных типов клеток из человеческих PGCLCs41. Рост ПГКЛК человека строго зависит от SCF41. Y-27632 поддерживает выживание одноклеточных PGCLC человека во время инокуляции, но не является необходимым во время поддерживающего культивирования. Добавьте 2-меркаптоэтанол, аскорбиновую кислоту, SCF и Y-27632 в свежем виде в среду. В типичном эксперименте PGCLC инокулируют во все лунки 6-луночного планшета. Если в качестве исходного материала доступно большее количество PGCLC, приемлема более высокая плотность до 10 000 PGCLC на лунку. - День 3: Замените половину среды (1,5 мл/лунку) на теплый S-CM с добавлением 0,1 мМ 2-меркаптоэтанола, 50 мкг/мл аскорбиновой кислоты, 100 нг/мл человеческого рекомбинантного SCF, но без Y-27632. Не беспокойте PGCLC, которые могут отделяться от подающего слоя сильным потоком среды.
- Дни 5 - 28: Повторяйте шаг 4.5 через день. Поскольку PGCLC обычно размножаются через 4,5 дня после удвоения популяции41, небольшие кластеры PGCLC появляются на 6-7 день или позже (рисунок 1A-D). Кластеры станут более заметными к 14-15 дню (Рисунок 1E, F). При появлении нежелательных типов клеточных кластеров с аномальными морфологическими характеристиками, отклоняющимися от правильных PGCLC, отбраковывайте лунки, содержащие такие кластеры, или попытайтесь устранить аномальные клетки с помощью метода дифференциальной адгезии, описанного далее в шаге 4.9.
- Когда PGCLC расширяются с образованием кластеров, которые покрывают более 20% площади культивирования (~День 28), диссоциируйте клетки с помощью раствора для отслойки клеток (CDS). Удалите S-CM из лунок культуры PGCLC и добавьте предварительно подогретый CDS в дозе 1 мл/лунку без промывки клеток. Инкубируйте клетки при 37 °C в инкубаторе сCO2 в течение 5 мин до тех пор, пока PGCLC не отделятся от лунок.
ПРИМЕЧАНИЕ: Аккутаза рекомендуется в виде CDS при легкой диссоциации. Не нагревайте CDS при 37 °C более 5 мин. Отделение PGCLC может быть облегчено аккуратным пипетированием, но PGCLC не нужно полностью диссоциировать до одноклеточной суспензии. Небольшие агрегаты PGCLC могут повысить жизнеспособность. Если нежелательные типы клеток появляются и быстро растут, отрегулируйте время инкубации в CDS во время отслойки клеток для селективного сбора PGCLC, которые имеют тенденцию отделяться раньше, чем фидерные клетки и большинство типов нежелательных клеток. Если стойкое появление нежелательных типов клеток нарушает экспансию PGCLC, попытайтесь удалить нежелательные клетки, используя их более быструю адгезию к лункам, покрытым желатином, как описано в шаге 4.9. Поскольку обогащение PGCLC с помощью FACS имеет тенденцию к потере значительной части живых PGCLC, соответственно уменьшите размер площади фидерного слоя. - Чтобы остановить отслоение клеток с помощью CDS, разбавьте клеточную суспензию 10-кратным объемом теплой базальной среды PGCLC и центрифугируйте при 300 x g в течение 5 минут при 4 °C. Следует отметить, что ферментативная активность некоторых СДУ, таких как Аккутаза, не подавляется ингибиторами сыворотки или трипсина. Удалите надосадочную жидкость и ресуспендируйте клетки в 3 мл теплого S-CM с добавлением 0,1 мМ 2-меркаптоэтанола, 50 мкг/мл аскорбиновой кислоты, 100 нг/мл человеческого рекомбинантного SCF и 10 мкМ Y-27632.
- Ввести клеточную суспензию в лунки из 6-луночных планшетов, покрытых 0,1% желатином, и инкубировать при 37 °С в инкубаторе сСО2 в течение 30 мин для удаления клеток MMC-STO (и нежелательных типов клеток), которые быстро прилипают к лункам, покрытым желатином.
Рекомендуется осматривать клетки с помощью фазово-контрастной микроскопии на 20-й минуте инкубации, а также на 30-минутной минуте для оценки адгезии питающих клеток. Может потребоваться увеличить время инкубации до 45 минут. Использование FACS или MACS для уничтожения фидерных клеток, как правило, не является необходимым, поскольку обработанные MMC STO-клетки не могут пролиферировать и разрушаться в S-CM. - Перенос PGCLC, истощенных аномальными типами клеток, в лунки с матричным покрытием базальной мембраны, чтобы начать долгосрочное культивирование PGCLC человека без питательных веществ. Для одной лунки в 6-луночном планшете рекомендуется инокуляция 1 x 10⁵ жизнеспособных PGCLC.
ПРИМЕЧАНИЕ: Как правило, необходимо объединить hPGCLC из 6 лунок, чтобы собрать 1 x 10⁵ жизнеспособных (трипановый синий окрашивающий отрицательный) PGCLC и засеять их в одну лунку для увеличения плотности инокулюмных клеток. Если количество собранных PGCLC не достигает 1 x 10⁵, используйте лунку меньшего размера, например, 12-луночный или 24-луночный планшет, чтобы получить относительно высокую плотность PGCLC. Ко времени появления первой субкультуры большинство клеток фидерного слоя MMC-STO разрушаются, и они не переживают процедуру пассирования. Небольшое количество жизнеспособных ячеек MMC-STO эффективно удаляется методом дифференциальной адгезии. Даже если несколько клеток MMC-STO будут загрязнены в лунках с BME-покрытием, они исчезнут из культуры при многократном прохождении. - Человеческие PGCLC растут как высокодисперсная клеточная популяция без существенных признаков прямого физического контакта между отдельными клетками (Рисунок 1). Если появляются кластеры клеток, демонстрирующие тесные межклеточные взаимодействия (рисунок 2А), проведите бактериологическое исследование с использованием метода, описанного в шаге 4.7. Как правило, достаточно одного раза в неделю (1:4).
ПРИМЕЧАНИЕ: Обогащение FACS человеческими PGCLC, как правило, не требуется. Однако, если нежелательные аномальные клетки не могут быть эффективно удалены после повторного метода дифференциальной адгезии, описанного в шаге 4.11, несколько циклов обогащения FACS человеческих PGCLC в виде CD38-положительных клеток42,43 способствуют созданию чистой популяции LTC-hPGCLCs. Примеры аномальных клеток, полученных из PGCLC, растущих на чашках, покрытых BME, в отсутствие питающего слоя показаны на рисунке 3. Важно поддерживать относительно высокую плотность клеточной культуры PGCLC для снижения риска индуцирования нежелательных типов клеток.- Готовьте блюда с покрытием BME, как описано ранее 42,43. Разморозьте БМЭ на льду в холодильнике или холодном помещении на ночь. Не размораживайте замороженный BME при комнатной температуре и не используйте теплую водяную баню.
- Аликвота БМЭ (~200 μл; объем аликвоты определяется производителем для каждой партии и указывается на этикетке флакона) в стерильные и предварительно охлажденные центрифужные пробирки с низким уровнем связывания или пробирки для криоконсервации клеток на льду. Важно держать BME ледяным во время дозирования, чтобы избежать застывания. Хранить аликвоты при температуре -80 °C.
- Разведите одну аликвоту BME с 25 мл ледяного DMEM/F12 и распределите по трем 10-сантиметровым тарелкам (~8 мл на чашку) или четырем 6-луночным тарелкам (всего 24 лунки, 1 мл на лунку). Инкубируйте посуду при комнатной температуре не менее 1 ч. После нанесения покрытия посуду можно запечатать прозрачной пленкой и хранить при комнатной температуре до 1 недели.
- Отбирайте среду из посуды непосредственно перед употреблением. Мыть посуду с покрытием не нужно.
- Поддерживайте относительно высокую плотность культуры LTC-PGCLC на БМЭ для подавления появления нежелательных типов клеток. Пассаж PGCLC рекомендуется, когда конфлюенция клеток превышает 25%. Половину среды (1,5 мл/лунку) следует заменить на теплый S-CM с добавлением 0,1 мМ-2-меркаптоэтанола, 50 мкг/мл аскорбиновой кислоты и 100 нг/мл человеческого рекомбинантного SCF.
ПРИМЕЧАНИЕ: Инокуляция PGCLC с более низкой плотностью увеличивает риск образования нежелательных клеток. Поскольку время удвоения популяции PGCLC человека составляет примерно 4,5 дня41, рутинный еженедельный пассирование, как правило, достаточен для поддержания долгосрочного культивирования. Включение ингибитора ROCK (Y-27632) необходимо только после пассирования для улучшения жизнеспособности PGCLC. - Не беспокойте PGCLC, которые могут отделяться от подающего слоя сильным потоком среды.
Примечание: Поскольку человеческие PGCLC экспрессируют теломеразу, они размножаются без видимых признаков старения, таких как укорочение теломер или экспрессия связанной со старением β-галактозидазы41. - Когда человеческие PGCLC достигли стабильной пролиферации без образования значительного количества нежелательных типов клеток, изучите их PGC-подобные характеристики путем экспрессии маркерных генов.
ПРИМЕЧАНИЕ: Аналитические подходы, подходящие для характеристики каждой отдельной клетки (такие как иммунофлуоресценция, FACS или РНК-секвенирование одиночной клетки), рекомендуются для оценки возможной контаминации нежелательных типов клеток. Если результаты таких анализов подтверждают PGC-подобную природу PGCLC, то установление культуры LTC-hPGCLC подтверждается. - Храните LTC-PGCLCs в замороженном виде в среде для замораживания клеток (1 x 10⁶ клеток/мл на криогенный флакон). Начиная с 10 000 человеческих PGCLC в качестве исходного материала, общий выход 1 x 10⁶ PGCLC может быть достигнут за 6 недель. Поместите бумажную или пластиковую коробку с криогенными флаконами в плотно закрывающуюся коробку из пенополистирола. Поместите герметичную коробку в морозильную камеру при температуре -80 °C на ночь для медленной заморозки. Затем поместите флаконы в морозильную камеру при температуре -80 °C или резервуар с жидким азотом.
- Чтобы инициировать культивирование из флакона с замороженными клетками, выполните действия, описанные ниже.
- Быстро разморозьте ячейки на водяной бане при температуре 37 °C с ручным встряхиванием, удерживая дно флакона в воде. Когда >80% содержимого оттает во флаконе, высушите флакон безворсовыми салфетками или эквивалентной лабораторной бумагой и протрите крышку спиртовым тампоном.
- Перенесите ячейки в центрифужную пробирку объемом 15 мл, содержащую предварительно нагретую (37 °C) базальную среду PGCLC. Если во флаконе остались небольшие замороженные клетки, восстановите их с помощью базальной среды PGCLC методом пипетирования.
- Центрифугируйте ячейки сразу при 300 х г в течение 5 мин при комнатной температуре и удалите надосадочную жидкость.
- Ресуспендируйте клеточную гранулу 9 мл предварительно подогретого S-CM с добавлением 0,1 мМ 2-меркаптоэтанола, 50 мкг/мл аскорбиновой кислоты, 100 нг/мл человеческого рекомбинантного SCF и 10 мкМ Y-27632. Аккуратно суспензируйте клетки с помощью наконечников для пипеток объемом 1 000 мл.
- Инокулируйте 3 мл/лунку в 3 лунки планшета с BME-покрытием для начала посева. Аккуратно встряхните пластины по вертикали и горизонтали для равномерного распределения ячеек. Избегайте кругового движения встряхиванием, так как такое движение приведет к смещению ячеек к центру лунок. Жизнеспособность клеток сразу после извлечения из замороженного запаса обычно превышает 80%.
Результаты
Репрезентативные результаты - PGCLC обычно образуют видимые кластеры на слое питателя MMC-STO в течение 2 недель после инокуляции (рисунок 1A-D). Требуется примерно 3-4 недели, прежде чем PGCLC будут готовы к выращиванию без корма. Поскольку PGCLC проявляют сильную цитокинетическую активность, их межклеточное взаимодействие слабо, когда они образуют кластеры на питающем слое (рис. 1E, F). Часто наблюдаются PGCLC, выходящие из кластеров (рис. 1F, красные стрелки). Без питающего слоя LTC-PGCLC растут как рассеянные клетки с небольшими признаками межклеточной адгезии, даже при высокой плотности клеток (рис. 3). Каждый LTC-PGCLC сохраняет исходную морфологию только что выделенного человеческого PGCLC, проявляя признаки активного цитокинеза. Когда появляются клетки, отклоняющиеся от морфологических характеристик, подобных PGC (рис. 2), обогащение PGCLC методом повторной дифференциальной адгезии часто улучшает качество культуры. Если аномальные клетки сохраняются, может помочь периодическое обогащение FACS PGCLC в виде CD38-постивных клеток.
В предыдущей публикации человеческие PGCLC были идентифицированы как PRDM1-положительные, TFAP2C-положительные, но SOX2-отрицательные клетки41. Они также экспрессируют POU5F1, но их предшественники иПСК также экспрессируют этот маркер плюрипотентности41. Настоятельно рекомендуется как можно скорее подтвердить профили выхода и экспрессии маркеров расширяющихся PGCLC человека на уровне отдельных клеток с использованием генетически индуцируемых маркеров, иммунофлуоресценции, FAC или секвенирования РНК одиночных клеток. Однако без такого подтверждающего анализа выход и качество ПГКЛК человека в присутствии или отсутствии питающих клеток можно удобно оценить с помощью стандартной фазово-контрастной микроскопии, как показано на рисунках 1, 2 и 3.
В течение длительного времени культивирования LTC-PGCLC поддерживают однородную клеточную популяцию, содержащую активно пролиферирующую субпопуляцию, как показали более ранние данные секвенирования РНК одной клетки41. Транскриптомный профиль исходных PGCLC в значительной степени сохраняется, за исключением того, что экспрессия маркеров PGCLC GATA2 и GATA3 на ранних стадиях быстро теряется41. Глобальный уровень метилирования ДНК в ИПСК человека составляет примерно 73%, а в свежепроизведенных ПГКЛК он снижается примерно до 64%. Глобальный уровень метилирования ДНК в LTC-PGCLC дополнительно снижается примерно до 54% после 12 недель экспансии in vitro 41. Большинство транскриптомных и эпигенетических характеристик LTC-PGCLC человека полностью инвертируются на характеристики исходных iPSCs при преобразовании в плюрипотентные эмбриональные зародышевые клетки, за исключением того, что аллель-специфичные эпигенетические метки в нескольких контрольных областях импринтинга стираются в PGCLC и никогда не возвращаютсяк 41.
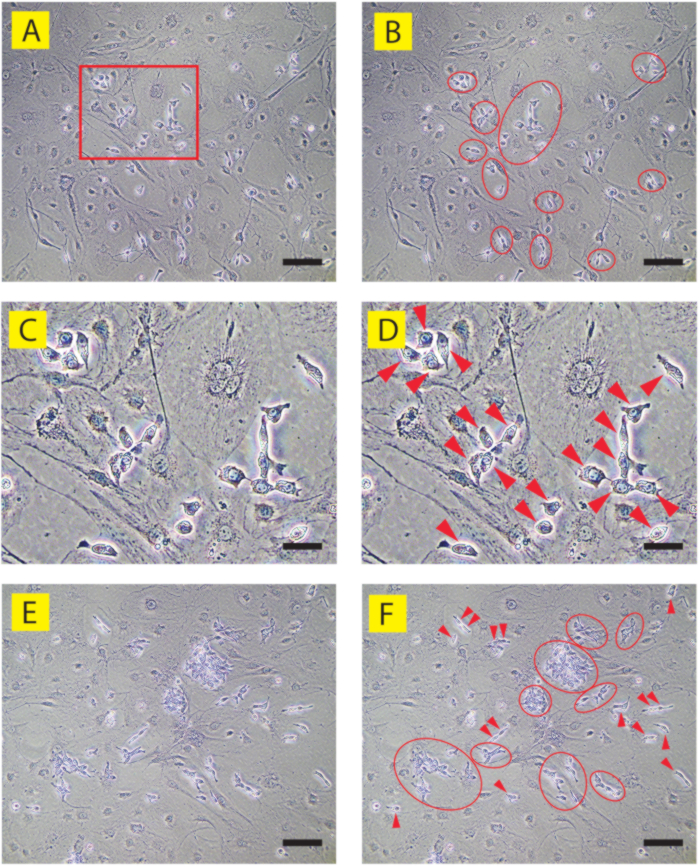
Рисунок 1: Фазово-контрастные изображения правильных ПГКЛК человека на слое фидера STO (клон iPSC человека 9A13). (A, C, E) аннотированы в (B, D, F) соответственно. (А-Г) День 6 культура. Часть (A), показанная красным прямоугольником, увеличивается в (C, D). Большинство PGCLC наблюдаются в виде дисперсных клеток, которые часто образуют свободные кластеры (красные овалы). Отдельные PGCLC (красные стрелки) не образуют тесного контакта друг с другом и легко идентифицируются при фазово-контрастной микроскопии как клетки, выступающие из разрушающихся, плоских и широко распространяющихся STO фидерных клеток. (Е, Ж) День 15 культура. Множественные кластеры PGCLC легко идентифицируются (красные овалы), в то время как межклеточный контакт все еще свободен. Некоторые PGCLC обнаруживаются за пределами кластеров, часто в виде дубликатов (красных стрелочек), отражающих их активное пролиферацию во время случайной миграции на сильно поврежденный фидерный слой и между ним. Масштабные линейки = 50 μм (A, B, E, F) или 15 μм (C, D). Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этой цифры.
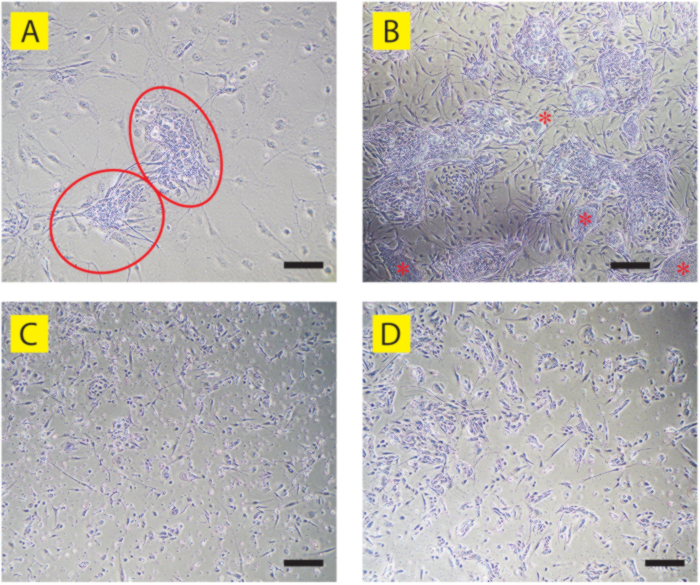
Рисунок 2: Фазово-контрастные изображения человеческих PGCLC, которые отклоняются от характеристик, подобных PGC. (A) Два аномальных кластера PGCLC (красные овалы) появились в культуре 9-го дня 9A13 PGCLC на слое корма STO. В отличие от правильных кластеров PGCLC (см. Рисунок 1A-D), клетки демонстрируют сильный межклеточный контакт, который скрывает границы каждой отдельной клетки. (B) Культура PGCLC человека на 18-й день показана на рисунке (A). Наблюдаются множественные аномальные кластеры PGCLC, некоторые из которых демонстрируют плотные колонии, напоминающие предшественники человеческих iPSC (красные звездочки). Обратите внимание, что большинство фибробластоподобных удлиненных клеток, обнаруженных между кластерами, также являются аномальными клетками, полученными из PGCLC, в то время как большинство фидерных клеток STO повреждены и смещены. (C) LTC-hPGCLCs (клон B6 iPSC человека), демонстрирующие массовую гибель клеток и аномальную морфологию на посудах с BME-покрытием и без кормушек. (D) LTC-hPGCLC, которые в значительной степени отклоняются к клеткам с аномальной морфологией на покрытых BME чашках без питателей (клон iPSC человека T548). Сравните эти аномальные LTC-hPGCLC с правильными LTC-hPGCLC, показанными на рисунке 3B. Масштабные линейки = 50 μм (A, B) или 100 μм (C, D). Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этой цифры.
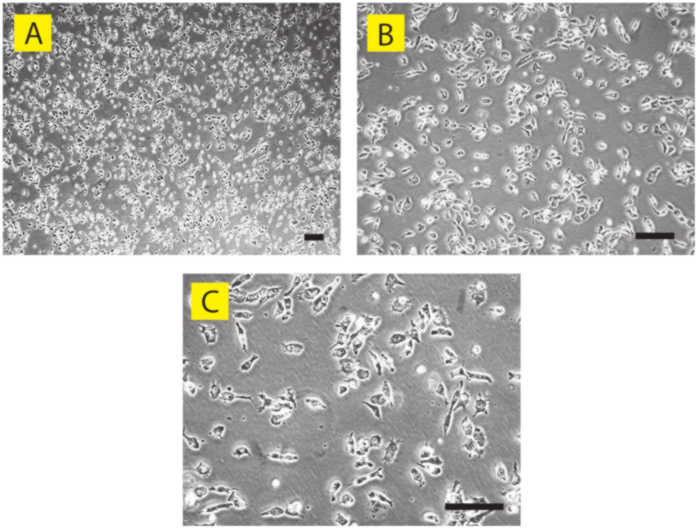
Рисунок 3: Фазово-контрастные изображения правильных ПГКЛК человека в виде культуры, не содержащей питательных веществ (клон ИПСК человека А4). Культура LTC-PGCLC без кормушки на 56-й день на чашках с покрытием BME показана в (A) низком, (B) среднем и (C) высоком увеличении. Несмотря на относительно высокую плотность клеток, каждая особь PGCLC не образует тесных межклеточных контактов, за исключением клеток, которые недавно завершили деление. Из-за активного цитокинеза некоторые PGCLC имеют удлиненную морфологию, в то время как другие имеют округлую форму. Масштабные линейки = 50 μм. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
| PGCLC Базальная среда | |
| Ингредиенты | Том |
| MEM в Глазго | 500 мл |
| Замена нокаутирующей сыворотки (KSR) | 75 мл |
| MEM NEAA (100X) | 6 мл |
| Пируват натрия (100X) | 6 мл |
| Пенициллин-стрептомицин (100Х) | 6 мл |
Таблица 1: Базальная среда PGCLC. Состав базальной среды PGCLC (593 мл).
| СТО средний 1 | |
| Ингредиенты | Volume |
| MEM от Dulbecco | 445 мл |
| Фетальная сыворотка для теленка | 50 мл |
| Пенициллин-стрептомицин (100Х) | 5 мл |
Таблица 2: Служащая Другим среда 1. Состав СТО среды 1 (500 мл).
| СТО средний 2 | |
| Ингредиенты | Том |
| MEM от Dulbecco | 47 мл |
| Фетальная сыворотка для теленка | 2,5 мл |
| Пенициллин-стрептомицин (100Х) | 0,5 мл |
| FGF2 (200 мкг/мл) | 2,5 мкл |
Таблица 3: Служащая Другим среда 2. В состав входит среда STO 2, которая дополнена FGF2 для усиленного роста клеток STO (50 мл).
| Носитель информации MMC-STO | |
| Ингредиенты | Том |
| MEM от Dulbecco | 42,5 мл |
| Фетальная сыворотка для теленка | 5 мл |
| Диметилсульфоксид | 2,5 мл |
Таблица 4: Носитель информации MMC-STO. Состав среды хранения MMC-STO, которая используется для подготовки замороженных масс обработанных MMC фидерных ячеек STO (50 мл).
Обсуждение
Описанный в данной статье метод обслуживания человека с помощью PGCLC относительно прост и не требует каких-либо специфических приспособлений или нестандартных материалов. Ранее опубликованные методы поддержания PGCLC человека требуют частой сортировки FACS из-за значительного отклонения клеток от PGCLC-подобного статуса38. Эти методы также требуют нестандартной клеточной линии фидерного слоя (m220-5), которая не всегда доступна через общедоступные и международные репозитории 39,40. Включение ССК в свои среды вносит неопределенность из-за зависимости от производительности конкретной партии сыворотки. В отличие от этого, представленный в настоящее время способ позволяет легко получить многие миллионы человеческих PGCLC, которые могут храниться в замороженном виде с сохранением высокой (> 90%) жизнеспособности, не требуя сыворотки или других реагентов животного происхождения. Для протокола требуется стандартная клеточная линия фидерного слоя STO, которая обычно доступна во многих публичных репозиториях. Этот метод обеспечивает беспрецедентный уровень удобства работы с человеческими PGCLC, как если бы они были обычными клеточными линиями. Неограниченное предложение человеческих ПГКЛХ, достигнутое с помощью этого метода, расширит область применения ПГКЛХ человека в таких областях, как экспериментальное производство человеческих половых клеток и/или гамет, оценка заболеваний герминогенных клеток человека, таких как бесплодие (включая попытки гаметогенеза in vitro) или герминогенные опухоли, а также токсикологические оценки перспективных токсикантов зародышевых клеток.
Метод исключает FCS в S-CM для минимизации появления нежелательных типов клеток из PGCLC человека41. Некоторые клоны iPSC имели тенденцию продуцировать нежелательные типы клеток во время фидер-зависимой стадии или после нее, и некоторые из них должны были пройти через два или три раунда FACS-очистки PGCLC. Однако, как только культура LTC-PGCLC укореняется с конфлюенцией более 50%, потребность в очистке FACS, как правило, уменьшается. Рост ПГКЛК человека in vitro строго зависит от наличия SCF41. Если скорость роста LTC-PGCLC снижается, рекомендуется протестировать различные партии или реагенты SCF производителей. Поскольку ПГКЛК человека экспрессируют теломеразу, они не испытывают старения при длительной экспансии in vitro41. Он был успешно использован для создания LTC-PGCLC, полученных из мужских и женских человеческих ИПСК с различным этническим происхождением41. Примерами успешного применения представленного в настоящее время метода являются мужские человеческие клоны iPSC A4 и A5 (новорожденные европеоидного происхождения), PGP1 (взрослые европеоиды) и 9A13 (взрослые японцы), а также женские клоны iPSC ATCC-BXS0116 (европеоиды) и ATCC-BXS0115/ACS-1029 (латиноамериканцы). Общая применимость этого метода и маркеров прогнозирования должна быть установлена в будущих исследованиях.
Необходимость периодической FACS-очистки человеческих PGCLC зависит от клона-предшественника iPSC. В то время как некоторые клоны iPSC никогда не нуждались в обогащении FACS после первоначального выделения PGCLC в качестве CD38-положительных клеток, некоторые PGCLC должны были быть обогащены как CD38-положительные клетки до трех раз с помощью FACS в течение фидер-зависимой фазы. Обогащенные FACS PGCLC инокулировали в свежеприготовленные питатели MMC-STO. Обогащение FACS обычно не требуется при каждом прохождении после того, как PGCLC начинают стабильную амплификацию на BME без питателя.
Подробные данные о доле клеток, сохраняющих PGC-подобные характеристики, по сравнению с клетками, отклоняющимися к нежелательным типам клеток для отдельного iPSC-клона при каждом пассировании, в настоящее время недоступны. В целом, культура LTC-hPGCLC стабилизируется через 2-4 недели посева с повторным пассированием. Когда человеческие PGCLC имеют тенденцию генерировать нежелательные типы клеток, метод дифференциальной адгезии может эффективно обогащать PGCLC, поскольку большинство нежелательных клеток имеют тенденцию прилипать к чашке для культуры сильнее, чем PGCLC. Если повторные попытки дифференциальной адгезии не способствуют обогащению PGCLC, FACS-обогащение человеческих PGCLC в виде CD38-положительных клеток часто устраняет нежелательные клетки, и впоследствии чистый LTC-hPGCLC может быть поддержан только с помощью метода дифференциальной адгезии. Создание долгосрочной культуры человеческих PGCLC, полученных с помощью двухмерного метода, описанного Overeem et al., иногда было сложной задачей. Тем не менее, те же самые человеческие PGCLCs, которые получили устойчивость к апоптозу через CRISPR нокаут проапоптотических генов, были легко расширены до LTC-hPGCLC. Детали совместимости этого метода с каждым отдельным человеческим iPSCs и PGCLC должны быть изучены в будущих исследованиях.
В то время как обработанные MMC клетки STO-слоя первоначально поддерживают выживание и пролиферацию свежевыделенных PGCLC человека, быстро пролиферирующие PGCLC расширяются in vitro без питающего слоя до тех пор, пока они поддерживаются кондиционированной средой STO и BME-покрытием посуды. Уникальным преимуществом представленного в настоящее время метода по сравнению с другими подходами является возможность создания LTC-hPGCLC в качестве культуры, не содержащей питательных веществ. Клетки питающего слоя MMC-STO демонстрируют начальные признаки ухудшения состояния среды S-CM через 5-6 дней культивирования. К 6-7 дню (Рисунок 1A-D) питающий слой демонстрирует умеренные повреждения, которые становятся более заметными к 14-15 дню (Рисунок 1E, F). В отсутствие фидерных клеток выживаемость свежевыделенных человеческих PGCLC обычно низкая, по-видимому, из-за их низкой эффективности в прилипании ко дну чашек для клеточных культур. Предполагается, что белки внеклеточного матрикса, депонируемые клетками MMC-STO, способствуют адгезии и выживанию PGCLC даже после разрушения клеток MMC-STO. Как только количество человеческих PGCLC становится достаточно большим, чтобы образовывать видимые кластеры к 14-15-му дню, внеклеточный матрикс, откладываемый самими PGCLC, может быть достаточным для поддержания их дальнейшего выживания и пролиферации. Подтверждая это предположение, инокуляция свежевыделенных человеческих PGCLC с высокой плотностью (например, 100 000 клеток в лунке 12-луночного планшета) в лунки без питателей, покрытые BME, часто инициирует успешную экспансию культуры LTC-hPGCLC. С другой стороны, использование кондиционированной среды MMC-STO абсолютно необходимо во всей культуре PGCLC человека, что подчеркивает важность непрерывного кондиционирования клетками MMC-STO.
Важно поддерживать относительно высокую плотность культуры LTC-PGCLC на БМЭ для подавления появления нежелательных типов клеток. Рекомендуется проходить PGCLC при конфлюенции более 25%. Инокуляция PGCLC с более низкой плотностью увеличивает риск образования нежелательных клеток. Поскольку время удвоения популяции PGCLC человека составляет примерно 4,5 дня41, рутинный еженедельный пассирование, как правило, достаточен для поддержания долгосрочного культивирования. Если большая часть PGCLC отклоняется от своих PGC-подобных характеристик и если метод дифференциальной адгезии или FACS недостаточен для удаления нежелательных клеток, рассмотрите возможность инокуляции питательного слоя MMC-STO в лунки с BME-покрытием вместо желатинового покрытия и/или удлините культуру клеток MMC-STO за 3 или 4 дня до инокуляции PGCLC.
Морфологические характеристики и характеристики экспрессии маркеров среди нежелательных типов клеток значительно различаются, хотя они могут быть легко идентифицированы с помощью стандартной фазово-контрастной микроскопии (рис. 2). Клетки с агрегированными характеристиками роста или уплощенным внешним видом отклоняются от характеристик, подобных PGC. Экспрессия стандартных маркеров PGC, таких как PRDM1 или TFAP2C, обычно снижена в таких нежелательных клетках, хотя в настоящее время не существует четких критериев, позволяющих отличить нежелательную клеточную популяцию от убедительно PGC-подобной клеточной популяции, что может быть подтверждено иммунофлуоресцентным окрашиванием, FACS или секвенированием РНК одиночных клеток. На сегодняшний день идентичность или актуальность типов клеток, не относящихся к PGC, которые появляются во время экспансии LTC-hPGCLC, неизвестны.
Несмотря на то, что в представленном в данной статье методе используются ячейки питающего слоя STO, ячейки SNL 76/7 также могут быть использованы для производства кондиционированной среды и питающего слоя. Некоторые культуры PGCLC смогли адаптироваться к долгосрочной культуре без прохождения через фидер-зависимую культуру, особенно при инициировании культуры с большим размером инокулюма (>100 000 клеток). С другой стороны, создание культуры LTC-PGCLC может быть сложной задачей, когда исходный размер меньше 10 000 клеток. Несмотря на то, что ключевые компоненты кондиционированной среды STO были описаны ранее, компоненты, поддерживающие долгосрочное расширение PGCLC, еще не идентифицированы44.
Раскрытие информации
У авторов нет конфликта интересов, который можно было бы раскрыть.
Благодарности
Эта работа была поддержана грантами NIH R01ES035401, R21ES034468, R21HD110839, R21DA059789 и R21CA290650 TS. TS также является обладателем гранта Фонда Джона Темплтона 63299 (PI, Джон МакКерри, Техасский университет, Сан-Антонио). Часть представленного исследования также была поддержана Фондом Джеймса Патрика Стоу (PI, Philip Saylor, Massachusetts General Hospital).
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| 6-луночные планшеты для культивирования клеток | Корнинг | 3506 | |
| Аккутаза | Инновационные клеточные технологии | АТ104 | Хранить при -20 °deg; C на 6 месяцев. |
| Обработанные клеточными культурами пластиковые чашки 10 см (чашки P10) | Корнинг | 353003 | |
| Обработанные клеточными культурами пластиковые чашки 15 см (чашки P15) | Корнинг | 353025 | |
| Криогенный флакон | Миллипор-Сигма | CLS431417 | |
| КриоСтор CS10 | Технологии стволовых клеток | 7930 | Хранить при температуре 4 °C. |
| Диметилсульфоксид | Научный центр Фишера | БП231-1 | Хранить при комнатной температуре. Сорт клеточной культуры. |
| Дульбекко; s Фосфатно-солевой буфер (без Ca/Mg) (DPBS) | Gibco | 14190144 | Хранить при комнатной температуре. Сорт клеточной культуры. |
| Минимальная необходимая среда Дульбекко (MEM Дульбекко) | Корнинг | 10-013-СМ | Хранить при температуре 4°C. Используйте среду, содержащую 4,5 г/л глюкозы, 1X L-глутамина и 1X пируват натрия. |
| Фетальная сыворотка для теленка | Сыворотка CPS | ФБС-500 | Хранить при -20 °deg; C на 12 месяцев. |
| Желатин | Технологии стволовых клеток | 7903 | 0,1% в воде. Стерильный. |
| Miminum Essential Medium от Glasgow (MEM) от Glasgow) | Gibco | 11710-035 | Хранить при температуре 4 °C. |
| Фактор роста рекомбинантных фибробластов человека 2 (FGF2) | ПепроТех | 100-18В | Хранить при -80 °deg; C на 3 месяца. |
| Человеческий рекомбинантный фактор стволовых клеток (SCF) | ПепроТех | 300-07 | Восстановите в воде в соответствии с инструкциями производителя. Хранить при -80 °deg; С в течение 3 месяцев. |
| Замена нокаутирующей сывороткиq | Gibco | 10828-028 | Хранить при -20 °deg; C на 6 месяцев. |
| Матригель (квалифицированные эмбриональные стволовые клетки человека) | Корнинг | 354277 | |
| Минимальное содержание заменимых аминокислот в среде (MEM NEAA) | Gibco | 11140-050 | Хранить при температуре 4 °C. |
| Митомицин-С (10 мМ в воде) | Миллипор-Сигма | М5353 | Митомицин-С (ММЦ) растворить в воде и фильтр-стерильный (размер пор 0,22 мМ). Хранить 100 мл аликвот при температуре -20 °°С; C в течение 6 месяцев. Чтобы разморозить замороженные ММЦ, разморозьте фиолетовые кристаллы в водяной бане (>60 градусов; В) до темно-фиолетового раствора. |
| Пенициллин-стрептомицин (100Х) | Gibco | 15140-122 | Хранить при температуре 4 °C. |
| Пластиковые центрифужные пробирки (15 мл) | Корнинг | 352196 | |
| Пластиковые центрифужные пробирки (50 мл) | Корнинг | 352070 | |
| Пируват натрия (100X) | Gibco | 11360-070 | Хранить при температуре 4 °C. |
| Эмбриональные фибробласты мышей STO | АТКС | ЦРЛ-1503 | |
| Трипан синий (0.4%) | Научный центр Фишера | Т10282 | Хранить при комнатной температуре. |
| ТрипLE Экспресс | Gibco | 12604-013 | Хранить при комнатной температуре. |
| Y-27632 (10 мМ в воде) | Токрис | 1254 | Растворить Y-27362, который является ингибитором ROCK, в воде до 10 мМ и фильтр-стерильно (размер пор 0,22 мМ). Хранить 100 мл аликвот при температуре -20 °°С; C в течение 6 месяцев. |
Ссылки
- Lee, S. M., Smela, M. P., Surani, M. A. The role of KLF4 in human primordial germ cell development. Open Biol. 15 (1), 240214(2025).
- Castillo-Venzor, A., et al. Origin and segregation of the human germline. Life Sci Alliance. 6 (8), e202201706(2023).
- Saitou, M. Mammalian germ cell development: From mechanism to in vitro reconstitution. Stem Cell Rep. 16 (4), 669-680 (2021).
- Boroviak, T., et al. Single cell transcriptome analysis of human, marmoset and mouse embryos reveals common and divergent features of preimplantation development. Development. 145 (21), dec167833(2018).
- Kobayashi, T., et al. Principles of early human development and germ cell program from conserved model systems. Nature. 546 (7658), 416-420 (2017).
- Tang, W. W., Kobayashi, T., Irie, N., Dietmann, S., Surani, M. A. Specification and epigenetic programming of the human germ line. Nat Rev Genet. 17 (10), 585-600 (2016).
- Irie, N., et al. Sox17 is a critical specifier of human primordial germ cell fate. Cell. 160 (1-2), 253-268 (2015).
- Kojima, Y., et al. Evolutionarily distinctive transcriptional and signaling programs drive human germ cell lineage specification from pluripotent stem cells. Cell Stem Cell. 21 (4), 517-532.e5 (2017).
- Alves-Lopes, J. P., et al. Specification of human germ cell fate with enhanced progression capability supported by hindgut organoids. Cell Rep. 42 (1), 111907(2023).
- Chitnis, M. S., Gao, X., Marlena, J., Holle, A. W. The mechanical journey of primordial germ cells. Am J Physiol Cell Physiol. 327 (6), C1532-C1545 (2024).
- Barton, L. J., Roa-De La Cruz, L., Lehmann, R., Lin, B. The journey of a generation: Advances and promises in the study of primordial germ cell migration. Development. 151 (7), dev201102(2024).
- Grimaldi, C., Raz, E. Germ cell migration-evolutionary issues and current understanding. Semin Cell Dev Biol. 100, 152-159 (2020).
- Hen, G., Sela-Donenfeld, D. "A narrow bridge home": The dorsal mesentery in primordial germ cell migration. Semin Cell Dev Biol. 92, 97-104 (2019).
- Cantu, A. V., Laird, D. J. A pilgrim's progress: Seeking meaning in primordial germ cell migration. Stem Cell Res. 24, 181-187 (2017).
- Molyneaux, K. A., et al. The chemokine SDF1/CXCL12 and its receptor CXCR4 regulate mouse germ cell migration and survival. Development. 130 (18), 4279-4286 (2003).
- Sasaki, K., et al. The germ cell fate of cynomolgus monkeys is specified in the nascent amnion. Dev Cell. 39 (2), 169-185 (2016).
- Li, L., et al. Single-cell RNA-seq analysis maps development of human germline cells and gonadal niche interactions. Cell Stem Cell. 20 (6), 891-892 (2017).
- Gomes Fernandes, M., Bialecka, M., Salvatori, D. C. F., Chuva De Sousa Lopes, S. M. Characterization of migratory primordial germ cells in the aorta-gonad-mesonephros of a 4.5-week-old human embryo: A toolbox to evaluate in vitro early gametogenesis. Mol Hum Reprod. 24 (5), 233-243 (2018).
- Hayashi, K., et al. Offspring from oocytes derived from in vitro primordial germ cell-like cells in mice. Science. 338 (6109), 971-975 (2012).
- Ishikura, Y., et al. In vitro reconstitution of the whole male germ-cell development from mouse pluripotent stem cells. Cell Stem Cell. 28 (12), 2167-2179.e9 (2021).
- Miyoshi, N., et al. Erasure of DNA methylation, genomic imprints, and epimutations in a primordial germ-cell model derived from mouse pluripotent stem cells. Proc Natl Acad Sci U S A. 113 (34), 9545-9550 (2016).
- Sasaki, K., et al. Robust in vitro induction of human germ cell fate from pluripotent stem cells. Cell Stem Cell. 17 (2), 178-194 (2015).
- Tang, W. W., et al. A unique gene regulatory network resets the human germline epigenome for development. Cell. 161 (6), 1453-1467 (2015).
- Mitsunaga, S., et al. Relevance of ipsc-derived human pgc-like cells at the surface of embryoid bodies to prechemotaxis migrating pgcs. Proc Natl Acad Sci U S A. 114 (46), E9913-E9922 (2017).
- Yamashiro, C., et al. Generation of human oogonia from induced pluripotent stem cells in vitro. Science. 362 (6412), 356-360 (2018).
- Pierson Smela, M., et al. Rapid human oogonia-like cell specification via transcription factor-directed differentiation. EMBO Rep. 26 (4), 1114-1143 (2025).
- Hwang, Y. S., et al. Reconstitution of prospermatogonial specification in vitro from human induced pluripotent stem cells. Nat Commun. 11 (1), 5656(2020).
- Von Meyenn, F., et al. Comparative principles of DNA methylation reprogramming during human and mouse in vitro primordial germ cell specification. Dev Cell. 39 (1), 104-115 (2016).
- Alves-Lopes, J. P., Wong, F. C. K., Surani, M. A. Human primordial germ cell-like cells specified from resetting precursors develop in human hindgut organoids. Nat Protoc. 19 (4), 1149-1182 (2024).
- Overeem, A. W., et al. Efficient and scalable generation of primordial germ cells in 2d culture using basement membrane extract overlay. Cell Rep Methods. 3 (6), 100488(2023).
- Esfahani, S. N., et al. Derivation of human primordial germ cell-like cells in an embryonic-like culture. Nat Commun. 15 (1), 167(2024).
- Neupane, J., et al. The emergence of human primordial germ cell-like cells in stem cell-derived gastruloids. Sci Adv. 11 (13), eado1350(2025).
- Rodriguez-Polo, I., Moris, N. Using embryo models to understand the development and progression of embryonic lineages: A focus on primordial germ cell development. Cells Tissues Organs. 213 (6), 503-522 (2024).
- Chen, D., et al. Human primordial germ cells are specified from lineage-primed progenitors. Cell Rep. 29 (13), 4568-4582.e5 (2019).
- Zheng, Y., et al. Controlled modelling of human epiblast and amnion development using stem cells. Nature. 573 (7774), 421-425 (2019).
- Zheng, Y., et al. Single-cell analysis of embryoids reveals lineage diversification roadmaps of early human development. Cell Stem Cell. 29 (9), 1402-1419.e8 (2022).
- Gell, J. J., et al. An extended culture system that supports human primordial germ cell-like cell survival and initiation of DNA methylation erasure. Stem Cell Reports. 14 (3), 433-446 (2020).
- Murase, Y., et al. Long-term expansion with germline potential of human primordial germ cell-like cells in vitro. EMBO J. 39 (21), e104929(2020).
- Murase, Y., et al. In vitro reconstitution of epigenetic reprogramming in the human germ line. Nature. 631 (8019), 170-178 (2024).
- Ishikura, Y., Ohta, H., Nagano, M., Saitou, M. Optimized protocol to derive germline stem-cell-like cells from mouse pluripotent stem cells. STAR Protoc. 3 (3), 101544(2022).
- Kobayashi, M., et al. Expanding homogeneous culture of human primordial germ cell-like cells maintaining germline features without serum or feeder layers. Stem Cell Rep. 17 (3), 507-521 (2022).
- Mitsunaga, S., Shioda, K., Isselbacher, K. J., Hanna, J. H., Shioda, T. Generation of human primordial germ cell-like cells at the surface of embryoid bodies from primed-pluripotency induced pluripotent stem cells. J Vis Exp. (143), e58297(2019).
- Mitsunaga, S., Shioda, K., Hanna, J. H., Isselbacher, K. J., Shioda, T. Production and analysis of human primordial germ cell-like cells. Methods Mol Biol. 2195, 125-145 (2021).
- Talbot, N. C., Sparks, W. O., Powell, A. M., Kahl, S., Caperna, T. J. Quantitative and semiquantitative immunoassay of growth factors and cytokines in the conditioned medium of STO and CF-1 mouse feeder cells. In Vitro Cell Dev Biol Anim. 48 (1), 1-11 (2012).
Перепечатки и разрешения
Эта статья была опубликована
Видео скоро будет доступно