В этой статье мы опишем простую и быструю процедуру обнаружения ДНК пчелиных патогенов, таких как Lotmaria passim и Nosema ceranae, с использованием готового к амплификации лизиса клеток, амплификации рекомбиназной полимеразы и анализов CRISPR/Cas12a.
Методическая статья
Обнаружение ДНК паразитов трипаносоматид и Nosema ceranae на месте с помощью щелочного лизиса в сочетании с системой RPA/CRISPR/Cas12a
В этой статье
Уведомление об исправлении
Important: There has been an erratum issued for this article. View Erratum Notice
Краткое содержание
Аннотация
Раннее обнаружение микроскопических патогенов на месте имеет важное значение для эффективного управления и здоровья семей медоносных пчел. В настоящее время золотым стандартом молекулярного обнаружения патогенов пчел является кПЦР или ОТ-кПЦР. В этой статье мы представляем быструю, чувствительную и экономичную альтернативу для обнаружения ДНК-патогенов в полевых условиях. Этот метод сочетает в себе прямой, готовый к амплификации лизис клеток брюшной полости рабочих пчел с амплификацией рекомбиназной полимеразы (RPA), CRISPR/Cas12a-опосредованным транс-расщеплением репортерных зондов и детектированием с помощью анализа бокового потока. Мы успешно валидировали этот протокол на медоносных пчелах, инфицированных Nosema ceranae и Lotmaria passim. Описанный протокол может быть выполнен с использованием простого теплового блока или при комнатной температуре и потенциально применим к любому патогену на основе ДНК или микробиоте кишечника медоносной пчелы. Весь процесс занимает около 180 минут и достигает чувствительности, сравнимой с количественной ПЦР, обнаруживая всего 96 копий паразитов/мкл. В заключение следует отметить, что этот подход предлагает многообещающий инструмент для надежной и быстрой диагностики инфекций медоносных пчел в полевых условиях без необходимости использования сложного лабораторного оборудования, что делает его идеальным для наблюдения за колониями на местах.
Введение
Пчелы являются ключевыми видами, участвующими в опылении растений, и имеют важное значение для воспроизводства растений, биоразнообразия и продовольственной безопасности1. Их услуги по опылению приносят пользу широкому спектру культур с высокой экономической ценностью, внося примерно 235–577 миллиардов долларов США в год в мировое сельское хозяйство. Тем не менее, сокращение популяции пчел во всем мире вызывает серьезную обеспокоенность из-за его потенциальных последствий для экологической стабильности и продуктивности сельскохозяйственных культур, что привело к потерям вбедных странах с высокой задолженностью в размере 4,8–16,3 млрд долларов США. Массовое исчезновение пчел включает в себя множество взаимодействий между несколькими факторами: применение пестицидов, потеря среды обитания, изменение климата и заражение патогенами, включая вирусы, бактерии, грибки и простейшие.
Среди этих микроорганизмов в колониях медоносных пчелпо всему миру широко распространены Nosema spp., микроспоридный грибок, нарушающий функционирование кишечника, и паразиты трипаносоматиды, в частности Lotmaria passim. Последние результаты показывают, что инфекции L. passim, даже при бессимптомном протекании, могут подавлять иммунные гены и изменять энергетический метаболизм у медоносных пчел, потенциально ставя под угрозу их устойчивость при дополнительном стрессе. Аналогичным образом, инфекции Nosema spp. снижают продолжительность жизни пчел, подавляют иммунную функцию и нарушают динамику кормления в колонии, что приводит к снижению производства меда и увеличению смертности колонии. Кроме того, коинфекции с участием Nosema spp. и трипаносоматид могут иметь синергетические эффекты, усугубляя физиологический стресс и ослабляя защитные силы организма. Эти результаты подчеркивают важность одновременного мониторинга нескольких патогенов.
Борьба с этими угрозами требует разработки быстрых и точных диагностических инструментов, которые, в свою очередь, зависят от более глубокого понимания биологии, передачи и стратегий выживания этих патогенов6. Обнаружение этих патогенов с помощью традиционных методов, включая световую микроскопию и молекулярную амплификацию, остается надежным, но сталкивается с определенными ограничениями. Примеры количественной ПЦР, ОТкПЦР (требуется циклическое переведение при разных температурах) и изотермических методов, таких как петлевая опосредованная амплификация (LAMP, работает при постоянной температуре), были разработаны для грибковых, вирусных, бактериальных или простейших паразитов 6,7,8,9,10. Однако для реализации этих методов требуется специализированное оборудование, обученный персонал и хорошо оборудованные лабораторные помещения, что ограничивает их практичность для применения в полевых условиях и широкомасштабного мониторинга. Для решения этих проблем были разработаны новые молекулярные методы — амплификация мишеней ДНК с помощью амплификации рекомбиназной полимеразы (RPA) вместе с детектированием на основе CRISPR/Cas12a — быстрый, специфичный и чувствительный подход. Метод работает изотермически и дает визуальные результаты, которые делают его пригодным для диагностики на месте или в месте оказания медицинской помощи, согласно Shao et al.11 и Xiao et al.12.
RPA — это простой и быстрый метод амплификации ДНК, который работает при постоянной температуре, обычно от 37 °C до 42 °C. Он основан на ферментах рекомбиназы, одноцепочечных ДНК-связывающих белках и полимеразе, вытесняющей цепь, для амплификации ДНК без необходимости термоциклирования. RPA особенно подходит для испытаний на месте и диагностики в полевых условиях благодаря своей скорости, минимальным требованиям к оборудованию и совместимости с образцами сырой нефти 11,12,13. Для повышения специфичности продукт RPA может быть обнаружен с помощью эндонуклеазы Cas12a, которая также функционирует в том же температурном диапазоне. Cas12a связывается с CRISPR-направляющей РНК (гРНК), короткой РНК, которая направляет Cas12a к амплифицированной последовательности-мишени и связывается с комплементарной последовательностью в ДНК. После связывания Cas12a активируется и проявляет активность коллатерального (транс)расщепления, в частности, против одноцепочечной ДНК (ssDNA). Это позволяет использовать репортерные молекулы одноцепочной ДНК, меченные флуорофорами или биотином, которые могут генерировать флуоресцентные или визуальные сигналы, включая считывание полосок бокового потока. Вместе RPA и CRISPR/Cas12a образуют мощную молекулярную диагностическую платформу, которая является быстрой, чувствительной и подходит для использования в полевых условиях или условиях ограниченных ресурсов12.
Чтобы еще больше повысить практичность этого подхода к молекулярной диагностике, мы также внедрили упрощенный метод лизиса клеток, готовый к амплификации (ARCL), основанный на лизисе гидроксида натрия (NaOH) пчелиного брюшка11,14, что устраняет необходимость в обширной подготовке образцов и лабораторных реагентах. Этот метод быстрой экстракции нуклеиновых кислот в сочетании с изотермической амплификацией и системой обнаружения CRISPR/Cas12a обеспечивает по-настоящему пригодный для развертывания рабочий процесс, который значительно сокращает время и затраты. Важно отметить, что анализ поддерживает качество, высокую чувствительность и специфичность, сравнимые с количественной ПЦР, текущим золотым стандартом обнаружения патогенов у пчел.
В данной работе мы успешно применили эту методологию для обнаружения Nosema ceranae и L. passim у медоносных пчел (рис. 1). Мы сравнили этот метод со стандартными анализами количественной ПЦР и проверили его эффективность с использованием естественно инфицированных образцов. Наши результаты показывают, что этот подход является практичной и надежной альтернативой полевым мониторингу здоровья медоносных пчел с большим потенциалом для широкомасштабного надзора и раннего вмешательства в пчеловодстве.
Протокол
Все процедуры проводились в соответствии с институциональными и национальными рекомендациями по работе с беспозвоночными и с использованием наименьшего количества пчел, необходимого для подтверждения концепции. Медоносных пчел перевозили в специализированных ульевых боксах с вентиляцией и соответствующей температурой и хранили в лаборатории при температуре -20 °C до проведения анализа.
1. Лизис щелочных клеток HotSHOT
- Приготовление раствора
- HotSHOT Lysis буфер-препарат 100 мл
- Взвесьте 99,993 мг NaOH и 8,32 мг ЭДТА, добавьте 90 мл дистиллированной воды и перемешайте. Отрегулируйте pH до 12 и объем до 100 мл; автоклав.
- 40 мМ Tris-HCl, pH 5
- К 484,544 мг Триса добавьте 90 мл деионизированной воды, отрегулируйте pH до 5 с помощью HCl и доведите объем до 100 мл.
- HotSHOT Lysis буфер-препарат 100 мл
- Протокол лизиса
- Рассеките брюшную полость пчелы с помощью стерильного скальпеля и перенесите рассеченную ткань в микроцентрифужную пробирку объемом 1,5 мл.
ПРИМЕЧАНИЕ: Для обнаружения патогена использовались только брюшные полости, а остальные части тела были отброшены. - Добавьте 400 μл буфера HotSHOT, размачерните ткань с помощью одноразового пестика и далее гомогенизируйте ее путем вортексирования.
ПРИМЕЧАНИЕ: Пестик можно использовать повторно, если его обеззаразить путем инкубации материала в течение ночи в 0,1 Н растворе NaOH, затем промыть двойной деионизированной водой, после чего следует один цикл автоклава и последующая сушка в инкубаторе. - Инкубируйте гомогенат при температуре 95 °C в течение 10 минут для лизирования клеток. После инкубации сразу же поместите трубку на лед для остывания.
- Чтобы нейтрализовать реакцию, добавьте равный объем (400 μл) 40 мМ Tris-HCl, в результате чего конечная концентрация Tris-HCl в растворе составит 20 мМ.
ПРИМЕЧАНИЕ: Эта процедура лизиса проиллюстрирована на рисунке 2.
- Рассеките брюшную полость пчелы с помощью стерильного скальпеля и перенесите рассеченную ткань в микроцентрифужную пробирку объемом 1,5 мл.
2. Изотермическая амплификация с помощью RPA
ПРИМЕЧАНИЕ: Дизайн грунтовок был разработан с помощью программного инструмента eprimer3 (https://www.bioinformatics.nl/cgi-bin/emboss/eprimer3), хотя можно было использовать и другие инструменты для проектирования грунтов.
- Приготовление рабочих растворов
- Решения для грунтовки RPA
- Готовьте стоковые растворы в концентрации 100 мкМ согласно инструкции производителя. Например, восстановите 10,0 нмоль лиофилизированного праймера в 100 мкл воды, обработанной диэтилпирокарбонатом (DEPC), и храните при -20 °C. Готовьте рабочие растворы в концентрации 10 мкМ путем разбавления материала 1:10; смешать 90 мкл воды, обработанной DEPC, с 10 мкл 100 мкМ исходного раствора в пробирке объемом 0,2 мкл. Храните эти растворы при температуре -20 °C.
- Решения для грунтовки RPA
- Протокол RPA
- Приготовьте мастер-смесь в соответствии с количеством реакций, которые необходимо выполнить. Включают как отрицательный контроль (замена ARCL водой, обработанной DEPC), так и положительный контроль с использованием ДНК патогена (в данном примере ДНК из промастиготов клеточной культуры L. passim и пчел положительно на Nosema spp. (споры обнаружены с помощью микроскопии) (Таблица 1).
ПРИМЕЧАНИЕ: Всегда готовьте основную смесь RPA на льду и используйте фильтрующие наконечники, чтобы избежать загрязнения. - Переложите аликвоту 46,5 мкл мастер-смеси в каждую пробирку объемом 0,2 мл.
- Добавьте ацетат магния (MgOAc) и матричную ДНК в колпачки пробирок, следуя объемам, указанным в таблице 2. Кратковременно центрифугируйте пробирки, чтобы перемешать содержимое и запустить реакцию RPA.
ПРИМЕЧАНИЕ: Для лучшей воспроизводимости кратко оберните и центрифугируйте все компоненты перед использованием. Положительный и отрицательный контроль должны быть включены в каждую партию для валидации реакции. - Инкубируйте образцы при 39 °C в течение 40 минут для реакции амплификации RPA.
ПРИМЕЧАНИЕ: После инкубации реакции RPA могут быть непосредственно использованы для последующего детектирования (например, анализы на основе CRISPR/Cas12a), описанные в разделе 3.
- Приготовьте мастер-смесь в соответствии с количеством реакций, которые необходимо выполнить. Включают как отрицательный контроль (замена ARCL водой, обработанной DEPC), так и положительный контроль с использованием ДНК патогена (в данном примере ДНК из промастиготов клеточной культуры L. passim и пчел положительно на Nosema spp. (споры обнаружены с помощью микроскопии) (Таблица 1).
3. Обнаружение ДНК патогена с помощью CRISPR/Cas12a
ПРИМЕЧАНИЕ: Обнаружение после RPA может быть выполнено разными способами. В этом протоколе мы подробно расскажем об обнаружении с помощью флуоресценции (FAM-TTTTTTTT-MGB) и иммунохроматографических полосок (Biotin-TTTTTTTT-FITC).
Выполняйте все процедуры в чистом, свободном от ДНК месте (например, в выделенном месте для ПЦР). Очистите рабочие поверхности и пипетки 0,5% отбеливателем, а затем 70% этанолом. Всегда используйте фильтрующие наконечники и надевайте перчатки. Обрабатывайте ДНК или амплифицированный материал в отдельной зоне от зоны подготовки реагентов. Разморозьте все реагенты на льду и поддерживайте холодные условия на протяжении всей подготовки.
- Приготовление рабочих растворов
- крРНК
ПРИМЕЧАНИЕ: Конструирование Nosema ceranae и Lotmaria passim crRNA было выполнено с использованием инструмента Eukaryotic Pathogen CRISPR guide RNA/DNA Design Tool (EuPaGDT) http://grna.ctegd.uga.edu/. Для индивидуального проектирования crRNA можно использовать другое программное обеспечение, такое как GPP sgRNA Designer (https://portals.broadinstitute.org/gpp/public/analysis-tools/sgrna-design) или CHOPCHOP (https://chopchop.cbu.uib.no/).- Чтобы получить стоковый раствор крРНК массой 100 мкМ, восстановите 10 нмоль каждой лиофилизированной кРНК со 100 мкл воды, обработанной DEPC, и храните при -20 °C. Для приготовления рабочего раствора в концентрации 1 мкМ необходимо провести разведение в соотношении 1:100, смешав 1 мкл 100 мкМ исходного раствора с 99 мкл воды, обработанной методом DEPC, в пробирке объемом 0,2 мл (рис. 3).
ПРИМЕЧАНИЕ: Оба раствора следует хранить при температуре -20 °C.
- Чтобы получить стоковый раствор крРНК массой 100 мкМ, восстановите 10 нмоль каждой лиофилизированной кРНК со 100 мкл воды, обработанной DEPC, и храните при -20 °C. Для приготовления рабочего раствора в концентрации 1 мкМ необходимо провести разведение в соотношении 1:100, смешав 1 мкл 100 мкМ исходного раствора с 99 мкл воды, обработанной методом DEPC, в пробирке объемом 0,2 мл (рис. 3).
- Подготовка Cas12a
ПРИМЕЧАНИЕ: Cas12a может поставляться в концентрациях 1 мкМ или 100 мкМ.- Если он поставляется в концентрации 100 мкМ, перед применением разбавьте его до рабочего раствора 1 мкМ, смешав 1 мкл фермента Cas12a 100 мкМ с 99 мкл разбавителя, входящего в комплект (разведение 1:100, рис. 3).
ПРИМЕЧАНИЕ: Концентрацию фермента Cas12a можно регулировать в зависимости от типа образца. Поскольку фермент хранится в разбавителе на основе глицерина, важно следить за тем, чтобы объем добавляемого фермента не превышал 20% от общего объема реакции, чтобы избежать потенциальных ингибирующих эффектов.
- Если он поставляется в концентрации 100 мкМ, перед применением разбавьте его до рабочего раствора 1 мкМ, смешав 1 мкл фермента Cas12a 100 мкМ с 99 мкл разбавителя, входящего в комплект (разведение 1:100, рис. 3).
- Приготовление растворов зондов FAM и Biotin
ПРИМЕЧАНИЕ: Зонд FAM предоставляется в лиофилизированной форме.- Чтобы приготовить стоковый раствор в массе 100 мкМ, повторно суспендируйте зонд, добавив 1 мкл воды, обработанной DEPC, на 1 нмоль зонда (например, для 102 нмоль добавьте 102 мкл воды, обработанной DEPC). Храните исходный раствор при температуре -20 °C. Для использования в мастер-смеси для детектирования разбавьте исходный раствор 1:10 (90 мкл воды, обработанной DEPC, с 10 мкл 100 мкМ FAM) до получения рабочего раствора 10 мкМ (рис. 3).
- крРНК
- Протокол обнаружения CRISPR/Cas12a
- Флуоресцентное детектирование (FAM зонд)
- В микроцентрифужной пробирке объемом 1,5 мл приготовьте реакционную смесь, как описано в таблице 3, за исключением ампликонов.
- Тщательно перемешайте с помощью вихря и распределите смесь по ПЦР-пробиркам.
- Затем добавьте 4 мкл ампликона RPA (описанного в шаге 2.2) в каждую пробирку.
- Инкубируйте реакции при температуре 37 °C в течение 120 минут в амплификаторе с функцией считывания флуоресценции, регистрируя флуоресценцию каждую минуту.
- Дополнительно: В конце инкубации перенесите реакции в пробирки объемом 0,2 мл и визуализируйте их с помощью системы документирования геля для визуализации.
- Обнаружение с помощью зонда биотина в тесте на боковой поток
- В микроцентрифужную пробирку объемом 1,5 мл добавьте компоненты, показанные в таблице 4.
- Приготовьте смесь, как описано в разделе 3.2.1, перемешайте и распределите ее в планшете для ПЦР. Наконец, добавьте 4 мкл ампликона в соответствующие лунки.
- Инкубировать в течение 120 мин в термоамплификаторе (без показаний флуоресценции) или термоблоке при температуре 37 °C.
- Перенесите образцы в пробирки объемом 0,2 мл и проведите детектирование с помощью иммунополосок. Для этого добавьте в каждую пробирку 50 мкл проточного буфера и 10 мкл реакционной смеси и вставьте полоску непосредственно в пробирку. Инкубируйте в течение 15 минут при комнатной температуре и считайте результаты после 10 минут погружения, как показано на рисунке 3.
- Флуоресцентное детектирование (FAM зонд)
Результаты
В данной работе мы описали быстрый метод на месте с использованием щелочного лизиса брюшков рабочих пчел в сочетании с амплификацией RPA и детектированием на основе CRISPR/Cas12a с помощью подходов флуоресценции и/или бокового потока. Схема полного рабочего процесса представлена на рисунке 3, а схема щелочного лизиса HotSHOT брюшков рабочих пчел — на рисунке 4. Репрезентативные результаты анализа RPA/CRISPR/Cas12a показаны на рисунке 5. Для обнаружения L. passim и N. ceranae использовали термоамплификатор для количественной оценки относительных единиц флуоресценции (RFU) с помощью зонда, меченного FAM (рис. 4A). Реакции RPA проводили с использованием 10 нг ДНК, а данные флуоресценции были нанесены на график (рис. 4B). На заключительном этапе анализа образцы в конических пробирках были сфотографированы с помощью системы визуализации геля (рис. 4C). Для обнаружения с помощью зонда, меченного биотином, образцы инкубировали в термоблоке (рис. 4A); детектирующий раствор готовили в соответствии с инструкциями производителя и наносили на полоску бокового потока (рис. 4В, В). Метод привел к успешному обнаружению обоих патогенов медоносных пчел.
Для определения эффективности реакций RPA мы сравнили этот метод со стандартной количественной ПЦР с использованием ДНК, выделенной у медоносных пчел с использованием указанного набора (см. Таблицу материалов). В общей сложности 32 образца пчел были протестированы с праймерами, нацеленными на ген β-тубулина L. passim для обоих методов, а затем обнаружены с помощью транс-расщепления флуоресцентных зондов CRISPR/Cas12a. Примечательно, что в результате 12 образцов были признаны положительными с помощью количественной ПЦР, в то время как RPA/CRISPR/Cas12a обнаружил L. passim в 16 образцах (рис. 5A). Это указывает на то, что реакция RPA более чувствительна, чем ПЦР, как метод амплификации ДНК золотого стандарта.
Аналогичным образом, мы определили предел обнаружения (LOD) для количественной ПЦР и RPA в сочетании с детектированием CRISPR/Cas12a для ДНК L. passim в качестве модели патогена с использованием серийных разведений ДНК L. passim в диапазоне от 66 нг до 6 фг. количественной ПЦР обнаруживает всего 6 пг, что соответствует примерно 96 паразитам (рисунок 5B). Для сравнения, LOD для RPA соответствовал 96 паразитам (рис. 5C, D).
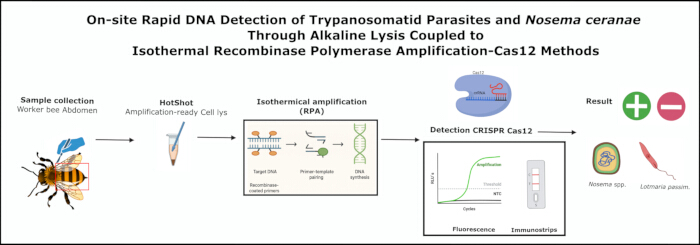
Рисунок 1: Общий рабочий процесс щелочного лизиса HotSHOT в сочетании с амплификацией RPA и методами обнаружения Cas12 у медоносных пчел. Сокращения: RPA = амплификация рекомбиназной полимеразы; CRISPR = сгруппированные регулярно чередующиеся короткие палиндромные повторы; Cas = CRISPR-ассоциированный белок. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этой цифры.
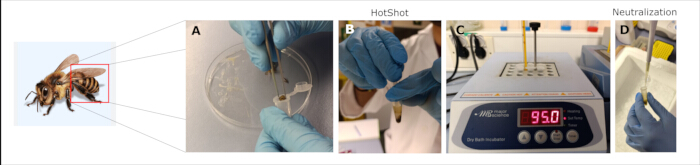
Рисунок 2: Обработка готового к амплификации лизиса клеток с помощью буфера HotSHOT. (А) Разрежьте брюшко медоносной пчелы скальпелем и поместите его в центрифужную пробирку; (В) с помощью пестика сделать мацерацию с 400 μл HotShot; С) инкубировать на термоблоке при 95°С в течение 10 мин; и (D) нейтрализовать 400 мкл 40 мМ Tris-HCl. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этой цифры.
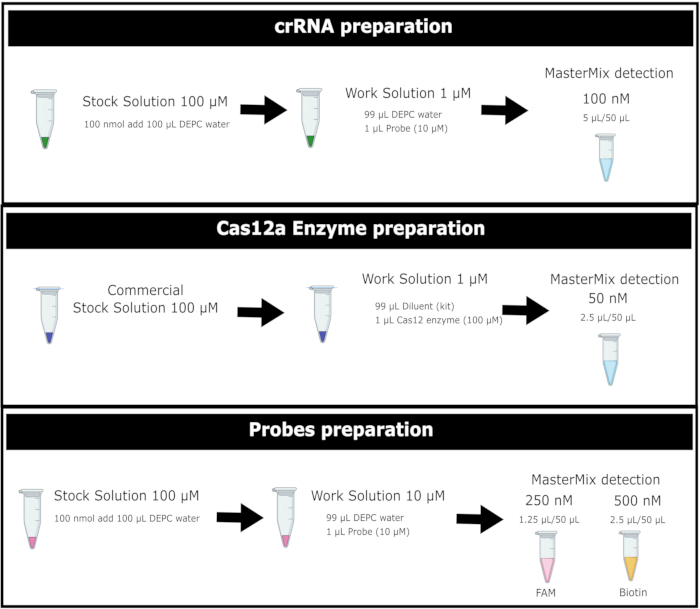
Рисунок 3: Общий рабочий процесс приготовления фермента Cas12a и репортерных зондовых растворов, меченных FAM и Biotin. Сокращения: DEPC-вода = вода, обработанная диэтилпирокарбонатом; crRNA= РНК CRISPR; Cas12 = тип белка, связанного с CRISPR. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этой цифры.
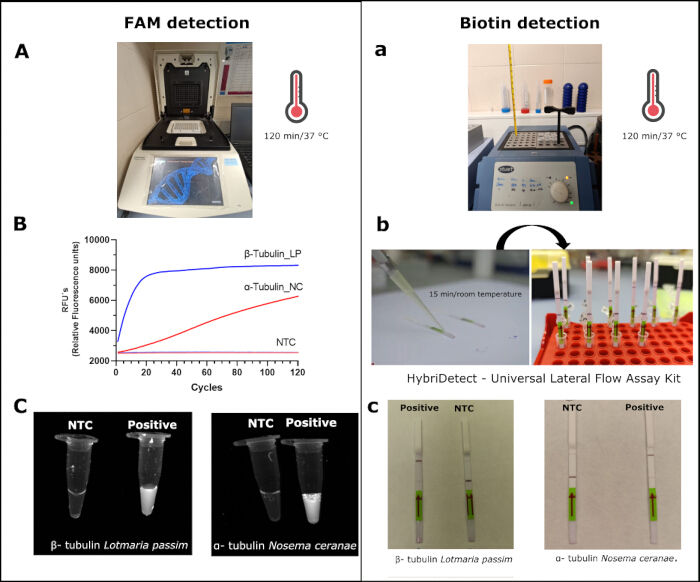
Рисунок 4: Обнаружение Lotmaria passim и Nosema ceranae. методом CRISPR/Cas12a с помощью зондов FAM и биотина. Для обнаружения FAM (А) образцы инкубируют в термоциклере; (B) единицы относительной флуоресценции (RFU) L. passim и N.ceranae; (В) визуализация одних и тех же образцов в рамках системы фотодокументации. В биотиновых тестах: (а) образец, инкубированный в термоблоке; (b) образцы были добавлены в иммунополоску из набора (см. Таблицу материалов); (в) результаты после инкубации. Сокращения: LP = Lotmaria passim; NC = Nosema ceranae; NTC= нет управления шаблонами; RFU: относительные единицы флуоресценции Нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
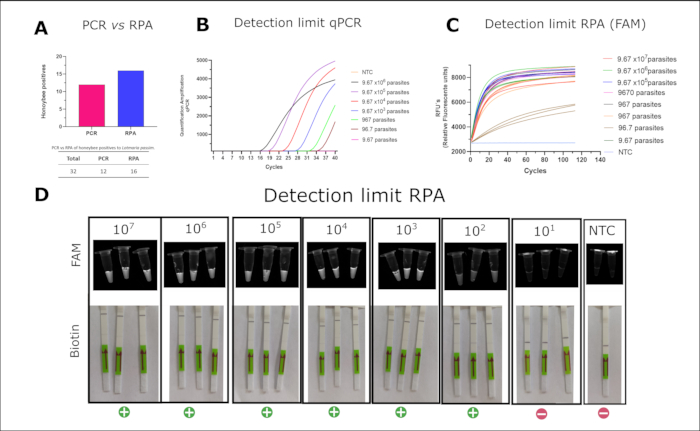
Рисунок 5: Сравнение между количественной ПЦР и РПА, а также предел обнаружения Lotmaria passim. (А) Обнаружение L. passim в образцах медоносных пчел с использованием обычных количественных ПЦР и РПА. (B) Предел обнаружения L. passim в количественной ПЦР с помощью SsoFast EvaGreen. (C) Предел обнаружения L. passim с помощью CRISPR/Cas12a с зондом, меченным FAM; (D) визуализация того же обнаружения CRISPR/Cas12a (из C) в системе визуализации геля (верхний ряд) и соответствующие результаты бокового потока с использованием CRISPR/Cas12a с зондом, меченным биотином (нижний ряд). Сокращения: RPA = амплификация рекомбиназной полимеразы; qPCR = количественная полимеразная цепная реакция. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этой цифры.
| Реагент | Окончательная концентрация | 10 μл | 50 μл |
| 2x Реакционный буфер | 1x | 5 μл | 25 мкл |
| dNTP (10 мМ) | 1,8 мМ | 1,8 мкл | 9 μл |
| 10x Basic E-Mix | 1x | 1 μл | 5 μл |
| Прямой праймер (10 μM) | 480 нм | 0,5 мкл | 2,4 мкл |
| Обратный праймер (10 μM) | 480 нм | 0,5 мкл | 2,4 мкл |
| 20x Основная реакционная смесь | 1x | 0,5 мкл | 2,5 мкл |
| DEPC Вода | -- | 0,7 мкл | 3,7 мкл |
Таблица 1: Компоненты Mastermix для RPA с конечными объемами 10 мкл и 50 мкл и соответствующими рабочими концентрациями:
| Реагент | Конечная концентрация | Реакция 10 мкл | Реакция 50 мкл |
| 280 мМ MgOAc | 1,8 мМ | 0,5 мкл | 2,5 мкл |
| ДНК | 10-0,1 нг | 1 μл | 2 мкл |
Таблица 2: Объем реагентов, добавляемых на пробу в реакцию RPA
| Реагент | [сток] | [Финал] | 1x (μл) |
| Фермент Cas12a | 1 мкМ | 50 нМ | 2.5 |
| кРНК | 1 мкМ | 100 нМ | 5 |
| Зонд FAM | 10 μМ | 250 нМ | 1.25 |
| Буфер NEB 10x | В 10 раз | 1x | 5 |
| Ампликон РПА | - | - | 4 |
| Вода | - | - | 32.25 |
| Итог | 50 |
Таблица 3: Концентрации реагентов для определения смеси FAM методом CRISPR/Cas 12a.
| Реагент | [сток] | [Финал] | 1x (μл) |
| Фермент Cas12a | 1 мкМ | 50 нМ | 2.5 |
| кРНК | 1 мкМ | 100 нМ | 5 |
| Биотиновый зонд | 10 μМ | 500 нм | 2.5 |
| Буфер NEB 10x | В 10 раз | В 1 раз | 5 |
| Ампликон РПА | - | - | 4 |
| Вода | - | - | 31 |
| Итог | 50 |
Таблица 4: Концентрации реагентов для определения смеси биотина методом CRISPR/Cas 12a.
Обсуждение
В этом исследовании мы разработали и валидировали практический протокол молекулярной диагностики для обнаружения патогенов медоносных пчел. Рабочий процесс включает в себя готовый к амплификации лизис клеток, изотермическую амплификацию с использованием RPA и высокоспецифичное обнаружение с помощью CRISPR/Cas12a. Среди оцененных методов химической экстракции ДНК протокол щелочного лизиса HotSHOT предлагает значительные преимущества в стоимости, скорости и простоте. Он эффективно производит лизаты, готовые к амплификации, без необходимости использования коммерческих наборов. Этот метод доказал свою надежность в различных приложениях, включая обнаружение патогенов у медоносных пчел 14,15,16,17,18. Высокотемпературные щелочные условия разрушают клеточные мембраны и водородные связи между нитями ДНК, высвобождая одноцепочечную ДНК, пригодную для последующей амплификации. Хотя потенциальные ограничения включают присутствие ингибиторов ПЦР или неоптимальную нейтрализацию, было показано, что щелочной лизис эффективно работает в различных организмах, таких как археи19, бактерии20 и грибы14, и совместим с ПЦР, количественной ПЦР и изотермическими методами, такими как LAMP21 и RPA12.
В наших руках система RPA/CRISPR/Cas12a показала сильную специфичность и удовлетворительную чувствительность. Использование кРНК, нацеленных на консервативные области в каждом патогене, позволило провести точную идентификацию без перекрестной реактивности с ДНК хозяина или неродственными микроорганизмами. При предыдущем применении этой системы у медоносных пчел достигались пределы обнаружения примерно 6,5 × 10² и 6,2 × 101 копий/мкл для вирусов деформированного крыла типов А и В 8,12. Однако эти анализы не были оптимизированы для полевых условий с быстрой экстракцией РНК и/или ДНК. В этой работе мы адаптировали метод специально для патогенов ДНК — N. ceranae и L. passim, что позволило проводить полевое совместимое обнаружение.
Наши результаты показывают, что RPA/CRISPR/Cas12a превзошел обычную ПЦР в идентификации положительных образцов (16 против 12), вероятно, из-за улучшенного сигнала с использованием активности коллатерального расщепления CRISPR/Cas12a, которая остается эффективной даже в сырых лизатах. Ранее сообщалось об улучшении чувствительности по сравнению с методами, основанными на ПЦР, в различных моделях патогенов, таких как Yersinia enterocolitica22, Diaporthe aspalathi23 или Vibrio vulnificus24. Кроме того, количественный анализ показал эквивалентный предел обнаружения RPA/CRISPR/Cas12a и количественной ПЦР в лабораторных условиях (~96 копий паразита/мкл). Это подразумевает хорошую производительность метода с сопоставимой специфичностью с TaqMan qPCR, благодаря дополнительному распознаванию последовательностей, обеспечиваемому crRNA. Кроме того, анализ требует минимального оборудования, не зависит от термоамплификатора или флуоресцентного ридера и может быть визуализирован с использованием полосок бокового потока, как это было ранее разработано для других патогенов25,26. Это упрощает интерпретацию и делает тест более доступным для полевых техников и пчеловодов.
Текущий протокол дает надежные результаты, но возможны дальнейшие улучшения. Адаптация анализа для нацеливания на другие патогены пчел на основе ДНК потребует только изменения дизайна праймеров RPA и crRNA. Для РНК-вирусов протокол может быть расширен за счет включения стадии обратной транскрипции (RT-RPA), как это было ранее продемонстрировано для нескольких вирусных инфекционных заболеваний 26,27,28, включая DWV-A и DWV-B у медоносных пчел 15. Кроме того, общее время анализа — в настоящее время около 180 минут — вероятно, может быть сокращено за счет оптимизации протокола для уменьшения времени каждого этапа. Другой альтернативой может быть однокамерный RPA/CRISPR/Cas12a, который сочетает в себе все реагенты RPA/CRISPR/Cas12a в одной реакции. Эта методология «все в одном» успешно применяется для обнаружения широкого спектра вирусных и бактериальных патогенов 25,26,29. Кроме того, несмотря на то, что зонды одноцепочечной ДНК были расширены и популяризированы для обнаружения Cas12a, в некоторых исследованиях сообщалось о способности Cas12a зондов двухцепочечной ДНК (dsDNA) с транс-расщеплением, которые могут быть полезны для тестирования из-за стабильности dsDNA30. Это приведет к тому, что время получения результата составит менее 30 минут, что еще больше повысит применимость в полевых условиях. Лиофилизация реагентов RPA и CRISPR также улучшит стабильность реагентов и устранит необходимость в холодовой цепи, повышая пригодность для удаленных сред или сред с ограниченными ресурсами. Успешно определена успешная эффективность RPA/CRISPR/Cas12a с использованием лиофилизированных реагентов для выявления вирусов Actinobacillus pleuropneumonia31 и респираторных инфекционных вирусов28,32, включая SARS-Cov226.
Таким образом, это исследование представляет собой полностью полевую, экономичную и портативную молекулярную диагностическую платформу для обнаружения патогенов медоносных пчел. Эта методология в ее нынешнем виде будет длиться около 180 минут, но ее общее время все еще может быть подвергнуто дальнейшим улучшениям. Несмотря на то, что мы сосредоточились на L. passim и Nosema spp. в качестве экспериментальных мишеней, система является модульной и адаптируется к широкому спектру патогенов пчел на основе ДНК (например, личинок Paenibacillus или Melisococcus plutonious), а также для мониторинга интересующих нас комменсальных симбионтов. Такой подход расширяет доступ к молекулярной диагностике за пределы традиционных лабораторных условий и поддерживает стратегии раннего вмешательства в пчеловодстве. В более широком смысле, наши результаты демонстрируют жизнеспособность технологий на основе CRISPR в диагностических приложениях, готовых к эксплуатации.
Раскрытие информации
У авторов нет конфликта интересов, который можно было бы раскрыть.
Благодарности
Эта работа была поддержана грантом «Новые молекулярные инструменты для быстрого мониторинга болезней медоносных пчел на пасеках в провинции Гранада» (GOPG-GR-23-0002) в рамках конкурса «Помощь оперативным группам Европейской инновационной ассоциации (AEI) в области сельскохозяйственной производительности и устойчивости правительства Андалусии». Мы также выражаем признательность за поддержку со стороны Испанской программы по генерированию знаний и научно-техническому укреплению системы R+D+I, грант PID2021-126938OB-I00, финансируемый MCIN/AEI/10.13039/501100011033 и «ЕФРР/ЕС». Мы высоко ценим помощь и ресурсы, предоставленные пчеловодами из Asociación de Pequeños Apicultores de Granada (APAG) и Cooperativas Agroalimentarias de Granada (FAECA). Исследование является частью кандидатской диссертации Д. Педро Гарсиа Ольмедо. Докторская программа по фундаментальной и системной биологии (Университет Гранады, UGR).
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| 0,2 мл пробирок Eppendorf без ДНКазы и РНКазы | Аксиген | ВТС-02-С | |
| 1,5 мл пробирок Eppendorf без ДНКазы и РНКазы | Аксиген | ВТС-150-С | |
| 10 μ L фильтрованные наконечники с низким удержанием | Лабораторные клиники | 5-063-П5-0 | |
| 100 μ L фильтрованные наконечники с низким удержанием | Лабораторные клиники | 5-120-П5-0 | |
| 1000 μ L фильтрованные наконечники с низким удержанием | Лабораторные клиники | 5-203-П4-0 | |
| Нагреватель сухих блоков BH-200 серии Stuart | Коул-Пармер | EW-36610-00 | |
| Вода, прошедшая очистку от DEPC | Амбикон | АМ9906 | |
| ЭДТА | Сигма-Олдрич | 798681 | |
| EnGen Lba Cas12a (Cpf1) | Биолаборатории Новой Англии | М0653Т | |
| Сигма-Олдрич | Сигма-Олдрич | 64-17-5 | |
| Список совместимого оборудования | Сигма-Олдрич | 7647-01-0 | |
| Пестики из микротрубок | Фишербранд | 12141364 | |
| Milenia GenLine HybriDetect | Миления | MGHD 1 | |
| НаОХ | Сигма-Олдрич | 221465 | |
| Комплект RPA TwistAmp Liquid Basic | ТвистАмп | TALQBAS01 | |
| Лезвия скальпеля | Свон-Мортон | 201 | |
| Одиночный канал Pipetman P1000L Микропипетка Металлический выброс | Гилсон | F144059M | |
| Одноканальная пипетка PIPETMAN P100L Микропипетка с выбросом металла | Гилсон | F144057M | |
| Одноканальная пипетка PIPETMAN P10L Микропипетка с выбросом металла | Гилсон | F144055M | |
| Гипохлорит натрия | |||
| Сенсорная система обнаружения ПЦР в реальном времени | БиоРад | КФХ96 | |
| Трис-HCl | Сигма-Олдрич | Т1503 | |
| ТвистAmp Жидкий Базовый | Скручивать | TALQBAS01 |
Ссылки
- Goulson, D., Nicholls, E., Botías, C., Rotheray, E. L. Bee declines driven by combined stress from parasites, pesticides, and lack of flowers. Science. 347 (6229), 1255957(2015).
- Murphy, J. T., Breeze, T. D., Willcox, B., Kavanagh, S., Stout, J. C. Globalisation and pollinators: pollinator declines are an economic threat to global food systems. People and Nature. 4 (3), 773-785 (2022).
- Zattara, E. E., Aizen, M. A. Worldwide occurrence records suggest a global decline in bee species richness. One Earth. 4 (1), 114-123 (2021).
- Carreira de Paula, J., et al. Promastigote EPS secretion and haptomonad biofilm formation as evolutionary adaptations of trypanosomatid parasites for colonizing honeybee hosts. NPJ Biofilms Microbiomes. 10 (1), 27(2024).
- Requier, F., et al. First large-scale study reveals important losses of managed honeybee and stingless bee colonies inLatin America. Sci Rep. 14 (1), 10079(2024).
- Babin, A., Schurr, F., Rivière, M. P., Chauzat, M. P., Dubois, E. Specific detection and quantification of three microsporidia infecting bees, Nosema apis, Nosema ceranae, and Nosema bombi, using probe-based real-time PCR. Eur J Protistol. 86, 125935(2022).
- Cameron, T. C., Wiles, D., Beddoe, T. Current status of loop-mediated isothermal amplification technologies for the detection of honeybee pathogens. Front Vet Sci. 8, 659683(2021).
- Schurr, F., et al. Validation of quantitative real-time RT-PCR assays for the detection of six honeybee viruses. J Virol Methods. 270, 70-78 (2019).
- Xu, G., et al. Triplex real-time PCR for detection of Crithidia mellificae and Lotmaria passim in honeybees. Parasitol Res. 117 (2), 623-628 (2018).
- D'Alvise, P., Seeburger, V., Gihring, K., Kieboom, M., Hasselmann, M. Seasonal dynamics and co-occurrence patterns of honeybee pathogens revealed by high-throughput RT-qPCR analysis. Ecol Evol. 9 (18), 10241-10252 (2019).
- Shao, G., Zhu, X., Hua, R., Chen, Y., Yang, G. Development of a copro-RPA-CRISPR/Cas12a assay to detect Echinococcus granulosus nucleic acids isolated from canine feces using NaOH-based DNA extraction method. PLoS Negl Trop Dis. 18 (12), e0012753(2024).
- Xiao, Y., Fei, D., Li, M., Ma, Y., Ma, M. Establishment and application of CRISPR-Cas12a-based recombinase polymerase amplification and a lateral flow dipstick and fluorescence for the detection and distinction of deformed wing virus types A and B. Viruses. 15 (10), 2041(2023).
- Li, Z., et al. Cas-OPRAD: a one-pot RPA/PCR CRISPR/Cas12 assay for on-site Phytophthora root rot detection. Front Microbiol. 15, 1390422(2024).
- Osmundson, T. W., Eyre, C. A., Hayden, K. M., Dhillon, J., Garbelotto, M. M. Back to basics: an evaluation of NaOH and alternative rapid DNA extraction protocols for DNA barcoding, genotyping, and disease diagnostics from fungal and oomycete samples. Mol Ecol Resour. 13 (1), 66-74 (2013).
- Truett, G. E., et al. Preparation of PCR-quality mouse genomic DNA with hot sodium hydroxide and Tris (HotSHOT). BioTechniques. 29 (1), 52-54 (2000).
- Klintschar, M., Neuhuber, F. Evaluation of an alkaline lysis method for the extraction of DNA from whole blood and forensic stains for STR analysis. J Forensic Sci. 45 (3), 669-673 (2000).
- Galanis, A., et al. Bee foraging preferences, microbiota and pathogens revealed by direct shotgun metagenomics of honey. Mol Ecol Resour. 22 (7), 2506-2523 (2022).
- Xiang, Z., et al. A simple alkali lysis method for Plasmodium falciparum DNA extraction from filter paper blood samples. Mol Biochem Parasitol. , 254(2023).
- Shwani, A., Zuo, B., Alrubaye, A., Zhao, J., Rhoads, D. D. A simple, inexpensive alkaline method for bacterial DNA extraction from environmental samples for PCR surveillance and microbiome analyses. Appl Sci. 14 (1), 141(2024).
- Fowler, E. V., et al. Development of a cost-effective, morphology-preserving method for DNA isolation from bulk invertebrate trap catches: tephritid fruit flies as an exemplar. PLoS One. 18 (2), e0281759(2023).
- Yuan, J., et al. CRISPR-Cas12a-mediated hue-recognition lateral flow assay for point-of-need detection of Salmonella. Anal Chem. 96 (1), 220-228 (2024).
- Xiao, Y., et al. Ultra-sensitive and rapid detection of pathogenic Yersinia enterocolitica based on the CRISPR/Cas12a nucleic acid identification platform. Foods. 11 (14), 2160(2022).
- Dong, J., et al. Comparative evaluation of PCR-based, LAMP and RPA-CRISPR/Cas12a assays for the rapid detection of Diaporthe aspalathi. Int J Mol Sci. 25 (11), 5773(2024).
- Zhang, X., et al. CRISPR/Cas12a combined with recombinase polymerase amplification for rapid and sensitive detection of Vibrio vulnificus in one tube. Acta Biochim Biophys Sin. 55 (2), 322-326 (2023).
- Li, P. R., et al. An RPA-assisted CRISPR/Cas12a assay combining fluorescence and lateral flow strips for the rapid detection of enterotoxigenic Bacillus cereus. J Agric Food Chem. 72 (24), 14000-14010 (2024).
- Sun, Y., et al. One-tube SARS-CoV-2 detection platform based on RT-RPA and CRISPR/Cas12a. J Transl Med. 19 (1), 74(2021).
- Aman, R., et al. iSCAN-V2: a one-pot RT-RPA-CRISPR/Cas12b assay for point-of-care SARS-CoV-2 detection. Front Bioeng Biotechnol. 9, 800104(2022).
- Peng, R., Lu, Z., Liu, M., Hu, F. RT-RPA-assisted CRISPR/Cas12a for rapid and multiplex detection of respiratory infectious viruses based on centrifugal microfluidics. Sens Actuators B Chem. 399, 134838(2024).
- Liu, Y., et al. One-tube RPA-CRISPR Cas12a/Cas13a rapid detection of methicillin-resistant Staphylococcus aureus. Anal Chim Acta. 1278, 341757(2023).
- Nguyen, L. T., Smith, B. M., Jain, P. K. Enhancement of trans-cleavage activity of Cas12a with engineered crRNA enables amplified nucleic acid detection. Biochemistry. 59 (17), 1474-1481 (2020).
- Hao, J., et al. Application of a lyophilized CRISPR/Cas12a and RPA assay for rapid detection of Actinobacillus pleuropneumoniae. Microchem J. 206, 111443(2024).
- Lin, C., et al. A universal all-in-one RPA-Cas12a strategy with de novo autodesigner and its application in on-site ultrasensitive detection of DNA and RNA viruses. Biosens Bioelectron. 239, 115609(2023).
Перепечатки и разрешения
Исправление
Formal Correction: Erratum: On-site DNA Detection of Trypanosomatid Parasites and Nosema ceranae Through Alkaline Lysis Coupled to RPA/CRISPR/Cas12a System
Posted by JoVE Editors on 8/14/2025. Citeable Link.
This corrects the article 10.3791/68874
