В этой статье демонстрируется геномная инженерия, опосредованная CRISPR-Cas9, у Steinernema hermaphroditum — энтомопатогенном (EPN: насекомо-паразитический) нематоде и новой генетической модели. Описанная технология полезна для создания мутантов, позволяя выяснить функции генов в биологии нематод, релевантные для мутуалистического и паразитического симбиоза.
Методическая статья
Мутагенез на основе CRISPR-Cas9 у энтомопатогенного нематода Steinernema hermaphroditum и поддержание мутантных линий
В этой статье
Краткое содержание
Аннотация
Энтомопатогенные нематоды (ЭПН) родов Steinernema и Heterorhabditis поддерживают взаимовыгодные взаимодействия с симбиотическими бактериями Xenorhabdus и Photorhabdus соответственно. Вместе эти пары нематод-бактерий заражают и убивают насекомых-хозяев, которые в основном являются личинками отрядов чешуекрылых и жешкокрылых, образуя управляемую трёхчастную систему для анализа молекулярной основы мутуализма и паразитизма. Ключевым шагом к полному использованию этой модели является разработка стабильных и транспоколенческих генетических инструментов в ЭПН. Здесь мы демонстрируем надёжную платформу редактирования генома CRISPR–Cas9 в новой модели Steinernema hermaphroditum — виде, который легко поддерживается in vivo и in vitro, а также очень поддаётся гонадной микроинъекции. Важно, что его гермафродитное размножение значительно упрощает генерацию и поддержание гомозиготных мутантных линий. Мы предлагаем подробный протокол эффективного, целевого разрушения генов с использованием микроинъекции комплексов рибонуклеопротеинов Cas9. В качестве доказательства концепции мы модифицировали сохранённый ген, ассоциированный с мышцами, unc-22, что сформировало характерный фенотип подёргивания, подтверждающий целевой мутогенез в этой системе. Эта платформа CRISPR–Cas9 открывает путь к стабильной генетической манипуляции в S. hermaphroditum, такой как экспрессия трансгенов, и предоставляет рамки, которые могут быть расширены на дополнительные виды EPN сельскохозяйственного и экологического значения.
Введение
Энтомопатогенные нематоды (ЭПН) — это паразиты, убивающие насекомых, которые формируют видоспецифические взаимовыгодные партнёрства со своими бактериальнымисимбионтами 1. EPN состоят из двух семейств: Steinermatidae и Heterorhabditidae, которые ассоциируются с грамотрицательными бактериями Photorhabdus и Xenorhabdus spp, соответственно 2,3. Во время свободно живущей инфекционной ювенильной стадии (IJ) нематод Steinernema бактерии Xenorhabdus размещаются в кишечном кармане нематоды, известном как контейнер, и при проникновении насекомого в гемокоэль бактерии высвобождаются, после чего размножаются и убивают насекомое с помощьюсепсисемии 3,4. В этих взаимовыгодных отношениях бактерии вырабатывают антимикробные и инсектицидные соединения, которые защищают от иммунного ответа хозяина и обеспечивают питательную поддержкунематоде 5. Взамен бактерии получают выгоду от защиты, обеспечиваемой хозяином нематоды от микробов окружающей среды, и способствуют их распространению среди новых насекомых 6,7.
За последние несколько десятилетий партнёрство Steinernema-Xenorhabdus было установлено как мощная экспериментальная система для изучения различных аспектов паразитических и взаимовыгодных взаимодействий, таких как поведение насекомых по поискухозяев 3, колонизация бактерий в нематодномхозяине 8 и адаптивное поведение симбиотических бактерий, способствующее их переходам между нематодами и насекомыми хозяевами9. EPN также являются важными видами для устойчивости почвы и используются как органические средства для борьбы с вредителями для повышения сельскохозяйственнойпродуктивности 10,11.
Несмотря на быстрое развитие генетических инструментов у симбиотических бактерий Xenorhabdus и Photorhabdus12, устойчивые генетические инструменты в ЭПН остаются редкими. Гонадальная микроинъекция успешно установлена как у нематод Heterorhabditis, так и у нематод Steinernema 13,14. Ранее гонадная микроинъекция в Heterorhabditis bacteriophora использовалась для постоянного доставки двухцепочечной РНК с целью устранения генов у первого поколенияпотомков 13,15. Недавно была разработана редактирование генома CRISPR-Cas9 в Steinernema, осуществляемое с помощью гонадных микроинъекций, что привело к точным, стабильным и наследственныммутациям 14.
Один вид Steinernema, S. hermaphroditum, доказал свою высокую способность к лечению и обладает большим потенциалом как новый генетический модельный организм 4,14.Изначально изолированный из почвы вИндонезии 16 и повторно изолированный вИндии 17, S. hermaphroditum последовательно гермафродит, с небольшим числом самцов в каждом поколении, что облегчает адаптацию генетических инструментов классической модели нематоды C. elegans4. Кроме того, геном S. hermaphroditum был секвенирован и собран в хромосомы, что упростило задачу выявления потенциальных целевых участков Cas9 и разработкупраймеров 18.
Во время микроинъекции ЭПН инъекционная смесь, содержащая соответствующие реагенты, такие как дсРНК, белок Cas9 или направляющие РНК, подаётся в синцитиальную нематоду-гонаду с помощью иглы, взятой из кварцевого капилляра. Подходящий объём и давление при инъекции обеспечивают видимый «поток» жидкости по всей гонадной руке. Поскольку у этих нематод есть пара синцитиальных гонад, состоящих из ядер зародышевой линии, которые имеют один и тот жецитозоль 19, такой микроинъекциальный подход позволяет получить доступ к нескольким зародышным клеткам для редактирования до наступления цитокинеза, разделяя ядра зародышевой линии на развивающиесяяйцеклетки 20. Хотя гонадная микроинъекция служит последовательным методом генетической модуляции у нескольких видов нематодов, не относящихся к моделям(14,21,22,23,24,25), крайне важно адаптировать методы инъекции к соответствующим структурам гонад, жизненной стадии и физиологическому состоянию каждого вида нематод, чтобы обеспечить успех и высокую эффективность доставки. Методы восстановления после инъекций и поддержание мутантных линий важны для экономической эффективности этой техники.
В этом исследовании демонстрируется протокол редактирования генома CRISPR-Cas9 у Steinernema hermaphroditum. Гонадная микроинъекция описывается у молодого взрослого человека — стадии, устойчивой к микроинъекции высокого давления и восприимчивой к редактированиюгенов 14. Кроме того, приведены подробные методы, описывающие поддержание наследственных и стабильных мутантных линий как через криоконсервацию, так и через размножение через насекомых.
Протокол
Реагенты и используемое оборудование перечислены в Таблице материалов.
1. Подготовка нематоды перед микроинъекцией
- Подготовьте тарелки для роста среды нематод (NGM), засеянные бактериями Xenorhabdus griffiniae и Comamonas aquaticus.
ПРИМЕЧАНИЕ: Выращивать нематоды S. hermaphroditum на их родной симбиотической бактерии Xenorhabdus griffiniae перед микроинъекцией для максимизации роста нематод, а также восстановить инъекционных животных на бактерии Comamonas aquaticus для повышения выживаемости послеинъекции 14.- Полосы бактерии X. griffiniae на пластинках LB-пируватов агарных пластин (2,5 г экстракта дрожжей, 5 г триптона, 2,5 г хлорида натрия, 0,5 г пирувата натрия, 7,5 г агар в воде 500 мл) и инкубируется ночью при 30 °C.
- Разведите бактерию C. aquaticus на пластинах ЛБ агаров и инкубируют на ночь при 37 °C.
- Выберите одну колонию бактерий для инокуляции тёмной жидкой среды LB (5 г экстракта дрожжей, 10 г триптона, 5 г хлорида натрия в 1 л воды). Выращивайте бактериальную культуру за ночь (максимум 16 часов) с аэрацией (X. griffiniae при 30 °C и C. aquaticus при 37 °C).
- Приготовьте NGM агар: (3 г NaCl, 2,5 г пептона и 20 г агара, добавленных в 975 мл воды, с 1 мл холестерина, 1 мл 1 м CaCl2, 1 мл 1 М MgSO4, 25 мл 1 M KPO 4 добавлено после автоклавирования) 10 мл на 60 мм x 15 мм чашки Петри.
- Семенные бактерии: Добавьте несколько капель ночной бактериальной культуры на каждую пластину НГМ-агара, аккуратно встряхните, чтобы распределить бактериальные капли в участок.
- Инкубировать NGM-пластины с бактериальными семенами при комнатной температуре, чтобы агар высох и бактерии могли расти.
ПРИМЕЧАНИЕ: пластины с семенами X. griffiniae следует использовать как можно скорее; Пластины C. aquaticus можно хранить при комнатной температуре в течение 1-2 недель.
- Стадия нематод
ПРИМЕЧАНИЕ: Выберите стадию J3 гермафродита накануне инъекции, а молодых взрослых — в день инъекции.- Собрать или нарезать нематод S. hermaphroditum на подготовленные пластины NGM, засеянные X. griffiniae. Инкубировать при температуре 25-28 °C для оптимального роста.
- Накануне микроинъекции выберите стадию J3 гермафродитов на NGM-агар, засеянный X. griffiniae. Как показано на рисунке 1A, стадия J3 оценивается по размеру нематоды и морфологии гонад и вульвы.
- В день микроинъекции выбирайте молодых взрослых гермафродитов (рисунок 1B).
2. Подготовка CRISPR-Cas9 для микроинъекции
- Выбор crРНК CRISPR и хранения реагентов
- Извлеките целевую последовательность гена из эталонного генома Steinernema hermaphroditum с помощью BlastP, PRJNA982879.
- Выберите раннюю последовательность кодирования экзонов, если возможно, желательно первой, и введите её в CRISPRScan с настройкамипо умолчанию 26 для генерации списка возможных РНК (crRNA).
- Сбросьте верхние crРНК с геномом S. hermaphroditum , чтобы выбирать только уникальные crРНК.
ПРИМЕЧАНИЕ: Необязательно: подтвердить последовательность целевой области генома с помощью ПЦР-амплификации и секвенирования Сэнгера перед проектированием crРНК, чтобы обеспечить эффективное связывание crRNA. - Храните РНК CRISPR (crRNAs) и универсальные трансактивирующие РНК CRISPR (тракрРНК) при 100 мкм каждая в дуплексном буфере при -80 °C.
- Храните белок Cas9 при 10 мг/мл при -20 °C или -80 °C. Храните 1 млн KCl при 4 °C.
- Изготовление 2% агарозной прокладки для инъекций (адаптировано из Berkowitz et al.27)
- Растопите 2% агарозы в воде с помощью микроволновой печи.
- Перенесите 50 мкл расплавленной агарозы на стекло с крышкой (48 x 60 мм No1). Немедленно накройте агарозную каплю ещё одним стеклом.
- Дайте агарозе высохнуть при комнатной температуре 20 минут. Снимите стекло с верхней крышки. Пометьте переднюю сторону агрозного подушечника.
ПРИМЕЧАНИЕ: По желанию: запекайте агрозную подушечку при 37 °C на ночь, чтобы дополнительно её высохнуть. - Храните 2% агарозные прокладки при комнатной температуре в течение нескольких месяцев или лет.
- Подготовка иглы
- Изготавливать кварцевые иглы с использованием следующих параметров на лазерном вытягивателе нити. С использованием игольного вытягивателя в этом исследовании рекомендуемая программа выглядит следующим образом: Тепло: 700, Филамент: 4, Скорость: 60, Задержка: 145, Натяжение: 175.
- Вытащите кварцевые иглы (OD: 1,0 мм, ID: 0,7 мм) непосредственно перед инъекцией или заранее и храните их в ящике для пипетки.
ПРИМЕЧАНИЕ: Альтернативно, нам также удаётся успешно вводить боросиликатные иглы (OD: 1,2 мм, ID: 0,68 мм). Обратите внимание, что разные размеры игл будут совпадать с разными размерами держателей для игл.
3. Микроинъекция CRISPR-Cas9 и восстановление нематод после микроинъекции
- Приготовьте микроинъекционную смесь CRISPR-Cas9 (адаптированную из Wang et al.28)
- Подготовьте свежие дуплексы направляющей РНК, смешивая выбранные crРНК и универсальные тракрРНК в соотношении 1:1, то есть от общего crRNA к тракрРНК в ПЦР-трубке:
crRNA #1 (100 мкм) - 1,5 мкл
crRNA #2 (100 мкм) - 1,5 мкл
тракрРНК (100 мкм) - 3,0 мкл
ПРИМЕЧАНИЕ: При использовании co-CRISPR crRNA #1 нацелена на ген маркера unc-22 , а crRNA #2 может быть заменена другой последовательностью, направленной на второй интересующий ген. - Инкубировать ПЦР-трубку в термоциклере при 94 °C в течение 2 минут, а затем охладить до комнатной температуры.
- Соберите инъекционную смесь, смешав следующее, затем инкубуйте 5 минут при комнатной температуре:
Cas9 (10 мг/мл) — 2 мкл
1M KCl — 0,58 мкл
гРНК-дуплексы (начиная с шага 3.1.1) — 2.7 мкл - Перемешайте три раза, щёлкая ПЦР-трубкой, затем короткое вращение (10-15 секунд) в мини-центрифуге, чтобы собрать содержимое трубки. После финального смешивания прокрутите вниз дольше, до 1 минуты.
- Подготовьте свежие дуплексы направляющей РНК, смешивая выбранные crРНК и универсальные тракрРНК в соотношении 1:1, то есть от общего crRNA к тракрРНК в ПЦР-трубке:
- Загрузите и сломайте иглу
- Загрузите иглу 1-2 мкл инъекционной смеси с помощью наконечника микрозагрузчика.
- Соберите иглу к держателю пипетки (иглы), затем разломите кончик, проведя иглой по кусочку двусторонней ленты, покрытой галоуглеродным маслом. Проверьте открытие иглы с помощью функции CLEAN микроинжектора.
- Микроинъекция в синцитиальные гонады молодого взрослого нематода
- Перенесите небольшую каплю галоуглеродного масла на 2% агарозную площадку.
- Под расщепляющим стереоскопом используйте тонкую (мягкую) платиновую проволоку, чтобы поднять молодого взрослого гермафродитного нематода и промыть его в буфере M9 (на литр: 3 г KH2PO4, 11,3 г Na2HPO 4, 5 г NaCl, с добавлением 1 мл 1 MMgSO 4 после автоклава) для удаления бактерий (см. молодой взрослый нематод на рисунке 1).
- Переложите промытый нематод на агарозную подушечку и поместите её в каплю галоуглеродного масла. Используйте мягкую платиновую проволоку, чтобы аккуратно провести по нематоде, пока животное не обездвижится.
- Аккуратно положите агарозную подушечку на стадию микроинъекции. Ориентация гонадального синцития должна быть направлена на иглу примерно под углом 45°. Начните с увеличения 5x, затем переходите на 20x и 40x для инъекций.
- Убедитесь, что игла проникает в синцитий, затем используйте функцию CLEAN микроинжектора, чтобы вводить инъекционную смесь примерно при давлении 99 psi, пока не будет зафиксирован чистый гонадный поток жидкости, чтобы реагенты проникли в зародышевые клетки в гонадном синцитии.
- Если доступна вторая гонадная рука, переместите ступень, чтобы иглу для введения во вторую руку.
- Восстановление нематод после инъекции
- Сразу после инъекции введённое животное снова суспензируется в 1-2 мкл буфера M9 на агарозной подушечке.
- Используя тонкую платиновую проволоку, снимите введённую нематоду с агарозной подушки и смойте масло с помощью буфера M9.
- Извлечение нематод на пластинах NGM с помощью газона из бактерий C. aquatica (подготовка пластин NGM: см. шаг 1.1), что увеличивает выживаемость нематод послеинъекции 14. Инкубировать при 25 °C ночью.
- На следующий день изолируйте каждую введённую нематоду (P0) на отдельную пластину NGM, засеянную X. griffiniae. Позвольте животным P0 произвести потомство F1 за ночь (либо откладывая яйца, либо упаковывая в пакеты) для фенотипирования и генотипирования (см. шаг 4).
4. Скрининг для подтверждения нокаутов с помощью CRISPR-Cas9
- Никотиновый (CAUTION) скрининг F1 на подёргивающийся фенотип при использовании unc-22 в качестве маркера co-CRISPR
- Перенесите потомство F1 от инъекционных животных P0 в участок с раствором никотина 2%.
- Выберите отдельное дергающееся животное из никотинового пятна и сразу же поднимите его на NGM агаре, посеянном X. griffiniae. Изолируйте каждую дергающуюся F1 на отдельной пластине и дайте ей получить F2-животных для генотипирования (см. шаг 4.2).
- Генотипирование
- Выберите восемь потомков F2 или F3 из каждой линии Twitching F1 для генотипирования. К таким животным, вероятно, относятся как +/mut гетерозиготные, так и мут/ мут гомозиготные животные.
- Подготовьте свежий буфер для экстракции ДНК, добавив 20 мкл протеиназы K (10 мг/мл) в 180 мкл буфера лизиса червя (50 мМ KCl, 10 мМ Tris pH 8,0, 2,5 мМ MgCl2, 0,45% NP-40, 0,45% Tween 20, 0,01% желатина).
- Добавьте нематод в 10 мкл буфера экстракции ДНК в ПЦР-пробирках. Инкубировать при 65 °C в течение 10 минут, затем при 95 °C в течение 15 минут для извлечения геномной ДНК.
- Генотипизуйте нематод путём PCR-амплификации целевой области Cas9 согласно инструкциям производителя, используя 1-2 мкл лизата из шага 4.2.2. Важно предусмотреть достаточно пространства, если возможно (не менее 300 ударных пунктов), между участками разреза Cas9 и сайтами связывания праймера на случай значительных делеций.
ПРИМЕЧАНИЕ: Агарозный гель электрофорез может быть использован для подтверждения успешного усиления перед секвенированием. - Очищайте ПЦР-продукт с указаниями производителя, чтобы обеспечить точный анализ следов секвенирования Сэнгера.
- Секвенируйте ПЦР-ампликоны, полученные на шаге 4.2.4, с помощью секвенирования Сэнгера, и проанализируйте хроматограммы с помощью программыICE 29.
- Если мутантные аллели подтверждены на шаге 4.2.6, вернитесь к исходной дергающейся пластине F1 и изолируйте как минимум восемь гермафродитов на отдельных пластинках. Дайте каждой отдельной нематоде дать потомство, затем массуйте генотипирование потомства для подтверждения гомозиготности. Гомозиготные линии можно поддерживать в лаборатории, как описано на шаге 5.
5. Обслуживание линии CRISPR
ПРИМЕЧАНИЕ: Существует три основных метода обслуживания линии. К ним относятся криоконсервация на основе трегалозы-ДМСО (шаг 5.1), проход in vivo через восковых червей (шаг 5.2) и in vitro поддержание на пластинах NGM (шаг 5.3).
- Трегалозно-DMSO-криосохранение диких и мутантных линий
ПРИМЕЧАНИЕ: Используя метод криоконсервации трегалозы-DMSO4, S. hermaphroditum можно стабильно хранить длительное время при -80 °C и восстанавливать на среде NGM. Нематоды замораживаются в криогенных флаконах объёмом 2 мл. Оптимальное замораживание достигается постепенным охлаждением с использованием контейнера из пенополистирола.- Выращивать S. hermaphroditum на NGM, посеянном X. griffiniae (см. шаг 1.1), пока большинство популяции не станет J1 или гермафродитами для мешков.
ПРИМЕЧАНИЕ: Избегайте стадий инфекционного подростка (IJ), так как они плохо замораживаются при этом методе. - Смойте нематодных червей с агарных пластин NGM в буфере M9 и соберите их в конических трубках объёмом 15 мл до отметки до 5 мл. Концентрируйте центрифугой (достаточно 1372 x g на 1-2:30 минуты).
- Удалите супернатант и промывайте раз в 5 мл буфера замораживания трегалозы-DMSO с помощью центрифуга, следуя параметрам, указанным на шаге 5.1.2.
- Восстановите червей в буфере заморозки трегалозы и DMSO комнатной температуры 5 мл. Инкубировать при комнатной температуре в течение 30 минут, держа трубку на боку. Это увеличивает уровень выживания.
- Раздайте 1 мл на пробирку в 4 криогенных флаконах.
- Поместите флаконы в коробки из пенополистирола в морозильнике при температуре -80 °C.
- Через неделю — тест-разморозка одного из флаконов.
- Переложите остальные флаконы в морозильные ящики при температуре -80°C и храните их постоянно.
- Тестовое оттаивание или восстановление S. hermaphroditum из замороженных запасов
- Достаньте флакон из морозилки и дайте ему полностью разморозиться при комнатной температуре.
- Вылейте жидкое содержимое на свежую тарелку NGM. Обратите внимание, что добавление симбиотической бактерии не обязательно, так как замороженный запас обычно содержит достаточно симбиотических бактерий. Глисты должны начать восстанавливаться в течение нескольких минут или нескольких часов.
- Наблюдайте движение и размножение нематоды. Через день-два перенесите несколько нематод на новые пластины NGM, посеянные X. griffiniae.
- Выращивать S. hermaphroditum на NGM, посеянном X. griffiniae (см. шаг 1.1), пока большинство популяции не станет J1 или гермафродитами для мешков.
- Обслуживание in vivo через Galleria mellonella
ПРИМЕЧАНИЕ: Для роста in vivo размножайте мутантные линии S. hermaphroditum через личинки5-го возраста Galleria mellonella (воскового червя). Этот метод особенно полезен для линий, которые не становятся жизнеспособными после криоконсервации. Подробный и похожий протокол естественного распространения энтомопатогенных нематод через насекомых и другие среды для роста ЭПН можно найти в (McMullen и др.30). Вкратце:- Позвольте нематодам голодать и превращаться в IJ на NGM-пластинах.
- Используйте буфер M9 для удаления IJ с пластин NGM.
- Перенесите IJ для заражения насекомых Galleria с помощью белой ловушки.
- Для in vitro обслуживания пластин NGM следуйте следующим шагам:
- Семенные NGM-пластины с примерно 100 мкл свежей жидкой культуры симбионта S. hermaphroditum , X. griffiniae.
- Дайте бактериальному участку полностью высохнуть, прежде чем переносить нематод на пластину.
- Храните тарелки при 25 °C и перемещайте нематоды на свежесеянные тарелки примерно раз в месяц.
Результаты
Были разработаны две РНК CRISPR (идентифицированные по номеру сайта Pam 3 и Pam 5), направленные на гомолог S. hermaphroditum UNC-22 на ранее опубликованных участкахPam 14 (рисунок 2A). Каждая crРНК комплексировала с тракрРНК, образуя одну направляющую РНК (sgRNA) и была включена в Cas9 для формирования рибонуклеопротеина, описанного на шаге 3.1. В этом протоколе две crRNA были разработаны для нацеливания на один и тот же ген; однако, если использовать метод co-CRISPR, разработанный для C. elegans31, crRNA #2 может быть заменён интересующим геном crRNA. В качестве альтернативы к двум crRNA unc-22 можно добавить к двум генам, направленным на интересующий ген, сохраняя соотношение 1:1 между общим crRNA и tracrRNA.
За день до микроинъекций хорошо сытные ранние нематоды J3 с видимыми гонадами (рисунок 1A) были собраны на свежую пластину, засеянную симбиотической бактерией Xenorhabdus griffiniae , и позволили вырасти в молодых взрослых за ночь при комнатной температуре (рисунок 1B). В день инъекций молодые взрослые (рисунок 1B), имевшие мало или вовсе не имевших оплодотворённых эмбрионов, были выделены на новую чашку Петри для инъекций. Согласно наблюдениям, у молодых нематод кутикула была относительно более проникаемой; однако после инъекции они выздоравливались реже. Игла была изготовлена (см. шаг 2.3), загружена инъекционной смесью и разбита, как описано в шаге 3.2. Нематода была промыта в буфере M9 и обездвижена каплей галоуглеродного масла на агарозной площадке (шаг 2.2). В месте инъекции (рисунок 1C) внешнее давление от микроинжектора использовалось для создания видимого потока жидкости в гонадальных синцитиях, обеспечивая погружение ядра зародышевой линии в инъекционную смесь (шаг 3.3). По возможности обе гонады вводились для увеличения вероятности получения отредактированного потомства F1.
Введённый нематод (P0) был быстро извлечен путём промывания в буфере M9 и инкубирован на ночь на пластинах NGM, засеянных бактериями Comamonas aquaticus , для ночного восстановления (шаг 3.4). Примерно 40%–90% инъекционных животных P0 выздоравливали вскоре после инъекции, а 20%–90% введённых нематод P0 выжили ночью на C. aquatica. (Таблица 1). Выживших животных P0 затем изолировали на NGM-петри-чашки, засеянные X. griffiniae , с коэффициентом переноса 20%–90%. Скрининг никотина на фенотип делеции unc-22 проводился на животных с категориями F1, F2 и F3 для определения наследственности делеции (шаг 4.1). Нематоды S. hermaphroditum с делецией гена unc-22 дергаются при воздействии 2% никотина, тогда как нематоды дикого типа парализованы, что позволяет проводить скрининг и отбор животных с предполагаемымиделециями 28. В этом эксперименте до 64% нематод F1, выделенных из введённого P0, образуют постоянно дергающиеся потомки F2 (Таблица 1). Для удобства скрининга инъекций co-CRISPR отдельные подёргивающиеся нематод можно отслеживать и количественно оценивать с помощью систем визуализации и отслеживания, один из примеров приведён на рисунке 2B.
Для подтверждения генотипа дергающегося потомства из нематод F3 была извлечена геномная ДНК для генотипирования локуса unc-22 (шаг 4.2). Путём ПЦР-амплификации геномной области вокруг целевых участков были обнаружены несколько слабых полос, указывающих на малые и крупные вставки и делеции (инделы) (рисунок 2C,D), некоторые из которых были подтверждены секвенирующим анализом (рисунок 2E). Эти данные свидетельствуют о том, что CRISPR-Cas9 создавал двухцепочечные разрывы на геномных целевых участках, которые восстанавливались с помощью негомологичного соединения концов (NHEJ). Для подтверждения специфической модификации генома на нуклеотидном уровне были проанализированы продукты с помощью ПЦР-амплифицированных из целевых участков с помощью секвенирования Сэнгера: выравнивание хроматограмм как дергающихся, так и диких нематод позволило выявить вставки или делеции в целевых участках (рисунок 2E). После подтверждения с помощью фенотипирования и генотипирования мутантные линии CRISPR можно поддерживать в лаборатории, проходя через насекомое Galleria mellonella (воскового червя) или сохранять с помощью криоконсервации (шаг 5). Если unc-22 используется как маркер ко-CRISPR, см. рисунок 3 для иллюстрации предложенной стратегии выделения потомков F2 и F3, несущих мутации в гене-мишени.
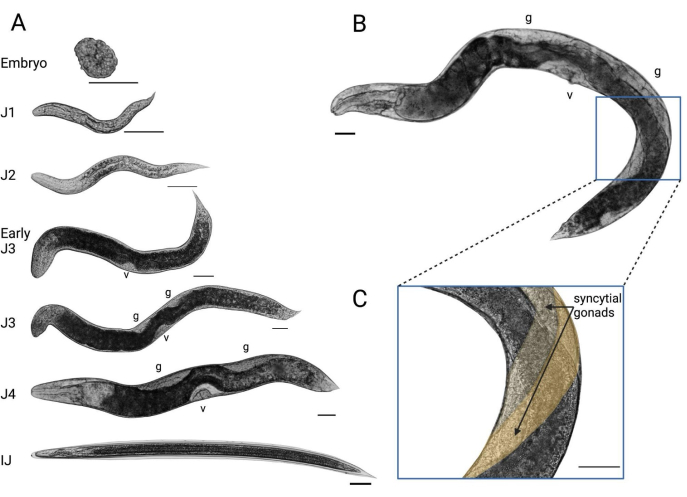
Рисунок 1: Развитие S. hermaphroditum в лабораторных условиях. (A) Оценка стадий развития гермафродитов, выращиваемых на НГМ-агаре, питающихся симбиотической бактерией X. griffiniae. Шкала = 50 мкм. v = вульва; g = гонада. (B) Молодой взрослый гермафродит на соответствующей стадии развития для микроинъекции в гонады. Синяя коробка: место гонадального укола. (C) Синцитиальная гонада гермафродита, предназначенная для микроинъекции. Обе гонады окрашены в разные оттенки жёлтого для облегчения визуализации. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
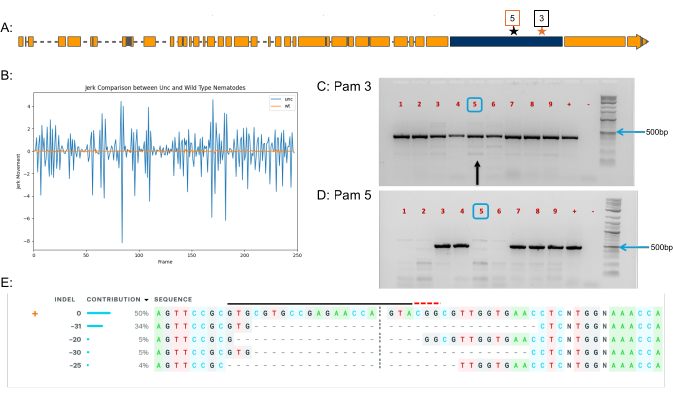
Рисунок 2: Репрезентативные результаты редактирования генома CRISPR-Cas9 у S. hermaphroditum. (A) Структура гена гомолога S. hermaphroditum unc-22 . Синяя коробка: целевой экзон. Чёрная звезда: целевой пункт Pam 3. Красная звезда: Целевой пункт Pam 5. (B) Фенотипический анализ репрезентативного дергающегося потомства на основе рывочного движения при обработке 2% никотина. Блю: вздрагивающий взрослый человек из линии мутантов unc-22 . Оранжевый: взрослая особня, парализованная 2% никотина. (C,D) Генотипирование девяти независимых подёргивающихся линий F3 (1-9) от двух инъекционных животных P0. Каждый образец содержит четыре потомка F3 из одной линии F1. Праймеры использовались для усиления геномной области вокруг Pam 3 (C) и Pam 5 (D). '+': управление диким типом; "-": отрицательный контроль без загруженной ДНК. Синие коробки: пример подтверждённого гетерозиготного ампликона на агарозном геле. Чёрная стрелка в (C), ампликон, проанализированный в (E). (E) Анализ ICE мутанта UNC-22 в Pam 3. ПЦР-образец 5 из (C) (чёрная стрелка) был секвенирован и проанализирован с помощью ДВС, показав, что 50% аллелей были дикого типа, а различные мутации делеции (от 20 до 31..) были обнаружены в геномной ДНК. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
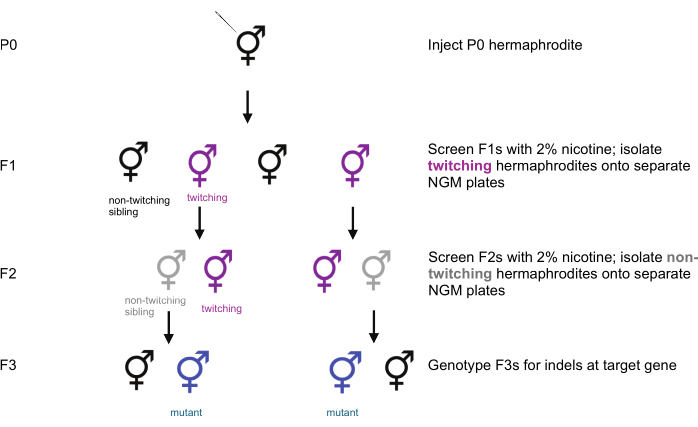
Рисунок 3: Рабочий процесс скрининга Co-CRISPR для выделения мутантов в целевом гене. При использовании unc-22 в качестве маркера co-CRISPR нематоды F1 скринингуются с 2% никотина, а подёргивающиеся F1 выделены на отдельные NGM-пластины, засеянные симбиотической бактерией X. griffiniae. Затем потомки дергающихся F1 F2 проходят скрининг, а не дергающиеся F2 изолируют на отдельных пластинах. После того как F2 могут производить потомство, F3 генотипизируются, чтобы определить, был ли выведен целевой ген. Недергающиеся братья и сестры дергающихся нематод также могут иметь инделы в интересующих генах и должны быть включены в генотипирование. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
| Воспроизведение | Нет. вводится P0 | Нет. P0, переживший инъекции* | Нет. P0, который прожил ночь | Нет. P0 перенесён на X. griffiniae нашивки | Нет. P0 с подёргиваниями F2 | % инъекции P0, вызывающего подёргивание F2 |
| 1 | 8 | 4 | 4 | 3 | 0 | 0 |
| 2 | 9 | 4 | 4 | 4 | 3 | 33.33 |
| 3 | 11 | 10 | 10 | 10 | 7 | 63.64 |
| 4 | 9 | 4 | 2 | 2 | 2 | 22.22 |
Таблица 1: Репрезентативные результаты модификации гомолога S. hermaphroditum unc-22 посредством микроинъекции и скорость успеха, что подтверждается подёргиваниями потомков . *Выживаемость определялась движением глоточного насоса примерно через 30 минут после микроинъекции.
Обсуждение
Нетрадиционные генетические модели животных предоставляют ценные возможности для изучения функции эукариотических генов в экологическом и физиологическом контексте, где эти признаки естественно встречаются, например, в присутствии паразитического хозяина или его родного микробиома. В энтомопатогенных нематодах (ЭПН) генетическая манипуляция опиралась на некоторые случаи РНК-основанныхподходов 13,32. Хотя РНКи позволяет проводить функциональные генетические исследования у некоторых видов, она ограничена временным характером дсРНК, и заглушание генов может быть ненадёжно наследственным. Эти ограничения подчёркивают необходимость в стабильных транспоколенческих генетическихинструментах 33,34. В данной работе описывается первый протокол точного редактирования генома у стейнернематид, одной из двух семейств EPN в порядке Rhabditida, как показано в Cao (2023)14.
Успешный мутагенез CRISPR–Cas9 с использованием этого протокола зависит от тщательного обращения с нематодами. Плохо кормленные особи часто имеют схлопнувшиеся гонады, которые трудно пробить иглой. Объём инъекции необходимо регулировать, либо немного увеличив отверстие иглы, либо тонко настроив давление инъекции, чтобы гонада была правильно промыта с инъекционной смесью. Быстрый перенос инъекционных животных из агарозной площадки на пластину восстановления C. aquatica необходим для выживания после инъекции, а скорость исполнения значительно улучшается с опытом. После инъекции важно, чтобы раненые нематоды не подвергались воздействию симбиотической бактерии, так как выздоровление у X. griffiniae составляетнизкий уровень 14.
Засор иглы — распространённая техническая проблема, с которой сталкивается при микроинъекциях. Засоры иногда можно удалить, аккуратно проведя иглой по двусторонней ленте, погруженной в галоуглеродное масло. Тщательное промывание нематод в M9 перед микроинъекцией также предотвращает проникновение симбиотических бактерий и засор иглы. Если закупорка сохраняется, аккуратное расширение отверстия кончика иглы может восстановить поток, хотя чрезмерное удаление может привести к неконтролируемому удалению инъекционной смеси. Переход отборосиликат-14 к кварцевым капиллярам для изготовления игл значительно улучшил эффективность впрыскивания. Кварцевые иглы дают более острые кончики, что способствует успешным инъекциям немного пожилым людям с более толстой кутикулой, тем самым увеличивая выживаемость.
Текущим ограничением этого протокола является то, что вставка трансгенов на основе CRISPR остаётся сложной и требует дальнейшей оптимизации. Гомологично-ориентированное восстановление (HDR) двухцепочечных разрывов, индуцированных Cas9, было труднодостижимым у S. hermaphroditum с помощью коротких доноровssDNA 14,35. Точная вставка трансгенов является ключевой возможностью в любой генетической модели, позволяющей осуществлять высокоточные модификации, такие как замены отдельных аминокислот или транскрипционныерепортеры 36. Таким образом, разработка надёжного протокола knock-in, опосредованного CRISPR-Cas9, значительно продвинует генетический набор инструментов для ЭПН и принесёт пользу более широким исследовательским сообществам в области паразитологии, микробного симбиоза и других исследований.
Раскрытие информации
Авторы заявляют, что конфликта интересов нет.
Благодарности
Мы благодарим Маргарет МакФолл-Нгай и Эдварда Руби за использование их конфокального микроскопа. Благодарим Алексиса (Коди) Харгадона и Гришу Чен за обучение конфокальной микроскопии, а также Карли Р. Майерс за помощь в получении фотографий и анализе видео с подёргиваниями. Мы также благодарим Стефани Хэмптон за выделение средств на покупку системы микроинъекций. Институт науки Карнеги поддержал эту работу.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Агар (сетка 80-100) | Fisher Scientific | BP26411 | Также используется в пластинах LB пирувата |
| Агарозе | Fisher Scientific | 16500500 | Также используется в генотипировании |
| Alt-R CRISPR-Cas9 тракрРНК | IDT | 1072532 | |
| Alt-R S.p. Cas9 Nuclease V3 | IDT | 1081058 | |
| Боросиликатные иглы | World Precision Instrument | 1B120F-4 | |
| Хлорид кальция (CaCl2) | Сигма Олдрич | C4901 | |
| Холестерин | VWR | 433 | 5 мг/мл этанола |
| Comamonas aquatica (DA1877) | |||
| Крышное стекло для агарозного прокладки | Лаборатории исследований мозга | #4860-1D | 48 x 60 мм толщина No1 |
| CRISPRScan | https://www.crisprscan.org/ | ||
| Диметилсульфоксид (DMSO) | Сигма-Олдрич | 472301 | 0,5 м |
| ДНК-чистка и концентратор-5 | Zymo Research | D4014 | |
| FemtoJet 4x Microinjector с набором головок Grip, 4 размера 0 держателя для иглы | Эппендорф/Калибр | 5253000017 | |
| Личинки 5-го возраста Galleria melonella | GrubCo | https://www.grubco.com/index.cfm | |
| Гелевая система визуализации | Azure400 | AZI400-01 | |
| Гель-нагрузочный краситель | Термо Фишер Сайентифик | B72 | |
| Желатин (2%) | Сигма Олдрич | G1393 | |
| GelRed | Биотиум | #41003 | |
| Праймеры для генотипирования: олиго ДНК, 25 нмоль | IDT | Н/Д | |
| Gibco Bacto Peptone | Fisher Scientific | DF0118-17-0 | |
| Gibco Bacto Tryptone | Fisher Scientific | DF0123-17-3 | Также используется в тёмных LB, LB пируватных пластинах и nbsp; |
| Экстракт дрожжей Gibco Bacto | Fisher Scientific | DF0127-17-9 | Также используется в тёмных LB, LB пируватных пластинах и nbsp; |
| Комплект головки рукоятки 4 размера 1 держателя для иглы | Калибр | EPE-5196083008 | (в паре с боросиликатной иглой 1B120F-4) |
| Галоуглеродное масло 700 | Сигма Олдрич | H8898 | |
| Жёсткий платиновый фильтр для проволочного червя для ежедневного обслуживания | Tritech Research | PT-9901 | |
| Вывод правок CRISPR (ICE) | Synthego | Н/Д | Программное обеспечение, используемое для анализа последовательностей Сэнгера с целью идентификации инделов |
| KCl | Сигма Олдрич | P9541 | |
| Лазерный игольчатый вытягиватель P-2000 | Саттер | P-2000G | |
| Хлорид магния (MgCl2) | Сигма Олдрич | M8266 | |
| Сульфат магния (MgSO4) | Сигма Олдрич | M7506 | Для буфера M9, также используется в NGM |
| Кончик микрозагрузчика 2x96ST | Калибр | 930001007 | |
| Адаптер крепления микроманипулятора для Zeiss Axio Observer и Axiovert 200 | Tritech Research | NZ-19-2 | |
| Микроскоп | Tritech | SMT1 | |
| Никотин | Сигма Олдрич | N3876 | |
| NP-40 | Термо Фишер Сайентифик | 85124 | |
| Дуплексный буфер без нуклеазы | IDT | 11-01-03-01 | |
| OneTaq MasterMix | NEB | M0486 | |
| Ящик для хранения пипеток | Инструменты Саттера | BX10 | |
| Хлорид калия (KCl) | Сигма Олдрич | 793590 | |
| Калийфосфат, дибазичный (K2HPO4) | Сигма Олдрич | P3786 | KOH для NGM |
| Калийфосфат, монобазический (KH2PO4) | Сигма Олдрич | P5655 | Для буфера M9, также используется в NGM |
| Протеиназа K | Сигма Олдрич | P6556 | |
| Кварцевые иглы | Инструменты Саттера | QF100-70-10 | |
| S. hermaphroditium геном | NCBI | https://www.ncbi.nlm.nih.gov/datasets/genome/GCA_030435675.1/ | |
| sh-unc-22 Alt-R CRISPR-Cas9 crRNA | IDT | Н/Д | |
| Хлорид натрия (NaCl) | VWR | SS0430 | Также используется в пластинах M9, Dark LB, LB пирувата |
| Фосфат натрия, дибазический (Na2HPO4.7H20) | Сигма Олдрич | S9390 | Для буфера M9 |
| Пируват натрия | Сигма Олдрич | P2256 | Также используется в пластинах LB Pyruvate |
| Мягкий платиновый медиатор с проволочным червям для микроинъекции | Surepure Chemetals | 6824 | Платина 90%, иридиум, 10% сплавная проволока, диаметр 0,002 дюйма и длина 5 футов |
| Стандартный держатель для иглы | Tritech Research | HI-7 | |
| Steinernema hermaphroditum | |||
| Стереомикроскоп | Leica | Inveta 3 | |
| Трегалоза | Коул-Пармер | EW-88195-99 | 0,08 м |
| Tris | Fisher Scientific | AM9855G | pH 8.0 |
| Tween 20 | Сигма Олдрич | P1379 | |
| Вертикальный адаптер крепления микроманипулятора | Tritech Research | NR2 | |
| Xenorhabdus griffiniae (HGB2511) |
Ссылки
- Stock, S., Blair, H. G. Entomopathogenic nematodes and their bacterial symbionts: The inside out of a mutualistic association. Symbiosis. 46, 65-75 (2008).
- Murfin, K. E., et al. Nematode-bacterium symbioses--cooperation and conflict revealed in the "omics" age. Biological Bull. 223 (1), 85-102 (2012).
- Dillman, A. R., et al. An entomopathogenic nematode by any other name. PLoS Pathog. 8 (3), e1002527(2012).
- Cao, M., Schwartz, H. T., Tan, C. -H., Sternberg, P. W. The entomopathogenic nematode Steinernema hermaphroditum is a self-fertilizing hermaphrodite and a genetically tractable system for the study of parasitic and mutualistic symbiosis. Genetics. 220 (1), iyab170(2022).
- Sergeant, M., et al. Identification, typing, and insecticidal activity of Xenorhabdus isolates from entomopathogenic nematodes in United Kingdom soil and characterization of the xpt toxin loci. Appl Environ Microbiol. 72 (9), 5895-5907 (2006).
- Walsh, K. T., Webster, J. M. Interaction of microbial populations in Steinernema (Steinernematidae, Nematoda) infected Galleria mellonella larvae. J Invertebr Pathol. 83 (2), 118-126 (2003).
- Herbert, E. E., Goodrich-Blair, H. Friend and foe: The two faces of Xenorhabdus nematophila. Nat Rev Microbiol. 5 (8), 634-646 (2007).
- Flores-Lara, Y., Renneckar, D., Forst, S., Goodrich-Blair, H., Stock, P. Influence of nematode age and culture conditions on morphological and physiological parameters in the bacterial vesicle of Steinernema carpocapsae (Nematoda: Steinernematidae). J Invertebr Pathol. 95 (2), 110-118 (2007).
- Cao, M., Goodrich-Blair, H. Ready or Not: Microbial adaptive responses in dynamic symbiosis environments. J Bacteriol. 199 (15), e00883-e00916 (2017).
- Lacey, L. A., et al. Insect pathogens as biological control agents: Back to the future. J Invertebr Pathol. 132 (C), 1-41 (2015).
- Campos-Herrera, R., et al. Intraspecific virulence of entomopathogenic nematodes against the pests Frankliniella occidentalis (Thysanoptera: Thripidae) and Tuta absoluta (Lepidoptera: Gelechiidae). J Nematol. 53 (1), 1-14 (2021).
- Rill, A., Zhao, L., Bode, H. B. Genetic toolbox for Photorhabdus and Xenorhabdus: pSEVA based heterologous expression systems and CRISPR/Cpf1 based genome editing for rapid natural product profiling. Microb Cell Fact. 23 (1), 98(2024).
- Ratnappan, R., et al. RNAi-mediated gene knockdown by microinjection in the model entomopathogenic nematode Heterorhabditis bacteriophora. Parasit Vectors. 9 (1), 160(2016).
- Cao, M. CRISPR-Cas9 genome editing in Steinernema entomopathogenic nematodes. bioRxiv. , (2023).
- Heryanto, C., Ratnappan, R., O'Halloran, D. M., Hawdon, J. M., Eleftherianos, I. Culturing and genetically manipulating entomopathogenic nematodes. J Vis Exp. (181), e63885(2022).
- Stock, S. P., Griffin, C. T., Chaerani, R. Morphological and molecular characterisation of Steinernema hermaphroditum n. sp. (Nematoda: Steinernematidae), an entomopathogenic nematode from Indonesia, and its phylogenetic relationships with other members of the genus. Nematology. 6 (3), 401-412 (2004).
- Bhat, A. H., Chaubey, A. K., Shokoohi, E., William Mashela, P. Study of Steinernema hermaphroditum (Nematoda, Rhabditida), from West Uttar Pradesh, India. Acta Parasitol. 64 (4), 720-737 (2019).
- Schwarz, E. M., et al. Genomes of the entomopathogenic nematode Steinernema hermaphroditum and its associated bacteria. bioRxiv. , (2025).
- Haglund, K., Nezis, I. P., Stenmark, H. Structure and functions of stable intercellular bridges formed by incomplete cytokinesis during development. Commun Integr Biol. 4 (1), 1-9 (2011).
- Ghanta, K. S., Ishidate, T., Mello, C. C. Microinjection for precision genome editing in Caenorhabditis elegans. STAR Protoc. 2 (3), 100748(2021).
- Gang, S. S., et al. Targeted mutagenesis in a human-parasitic nematode. PLoS Pathog. 13 (10), e1006675(2017).
- Adams, S., Pathak, P., Shao, H., Lok, J. B., Pires-daSilva, A. Liposome-based transfection enhances RNAi and CRISPR-mediated mutagenesis in non-model nematode systems. Sci Rep. 9 (1), 483(2019).
- Culp, E., et al. Genome editing in the nematode Caenorhabditis briggsae using the CRISPR/Cas9 system. Biol Methods Protoc. 5 (1), bpaa003(2020).
- Hellekes, V., et al. CRISPR/Cas9 mediated gene editing in non-model nematode Panagrolaimus sp. PS1159. Front Genome Ed. 5, 1078359(2023).
- Patel, R., et al. The generation of stable transgenic lines in the human-infective nematode Strongyloides stercoralis. G3 (Bethesda). 14 (8), jkae122(2024).
- Moreno-Mateos, M. A., et al. CRISPRscan: Designing highly efficient sgRNAs for CRISPR-Cas9 targeting in vivo. Nat Methods. 12 (10), 982-988 (2015).
- Berkowitz, L. A., Knight, A. L., Caldwell, G. A., Caldwell, K. A. Generation of stable transgenic C. elegans using microinjection. J Vis Exp. (18), e833(2008).
- Wang, H., Park, H., Liu, J., Sternberg, P. W. An efficient genome editing strategy to generate putative null mutants in Caenorhabditis elegans using CRISPR/Cas9. G3 (Bethesda). 8 (11), 3607-3616 (2018).
- Conant, D., et al. Inference of CRISPR Edits from Sanger Trace Data. CRISPR J. 5 (1), 123-130 (2022).
- McMullen, J. G. 2nd, Stock, S. P. In vivo and in vitro rearing of entomopathogenic nematodes (Steinernematidae and Heterorhabditidae). J Vis Exp. (91), e52096(2014).
- Kim, H., et al. A co-CRISPR strategy for efficient genome editing in Caenorhabditis elegans. Genetics. 197 (4), 1069-1080 (2014).
- Ciche, T. A., Sternberg, P. W. Postembryonic RNAi in Heterorhabditis bacteriophora: A nematode insect parasite and host for insect pathogenic symbionts. BMC Dev Biol. 7 (1), 101(2007).
- Du, X., McManus, D. P., French, J. D., Jones, M. K., You, H. CRISPR/Cas9: A new tool for the study and control of helminth parasites. Bioessays. 43 (1), e2000185(2021).
- Quinzo, M. J., Perteguer, M. J., Brindley, P. J., Loukas, A., Sotillo, J. Transgenesis in parasitic helminths: A brief history and prospects for the future. Parasit Vectors. 15 (1), 110(2022).
- Schwartz, H. T., Tan, C. -H., Peraza, J., Raymundo, K. L. T., Sternberg, P. W. Molecular identification of a peroxidase gene controlling body size in the entomopathogenic nematode Steinernema hermaphroditum. Genetics. 226 (2), (2024).
- Dokshin, G. A., Ghanta, K. S., Piscopo, K. M., Mello, C. C. Robust genome editing with short single-stranded and long, partially single-stranded DNA donors in Caenorhabditis elegans. Genetics. 210 (3), 781-787 (2018).
Перепечатки и разрешения
