Здесь мы описываем протокол in vitro для моделирования повреждения гипоксии/реоксигенации в высокометаболических проксимальных трубчатых эпителиальных клетках. Эта модель предназначена для индуцирования метаболического стрессового повреждения, которое можно измерить с помощью экспрессии маркеров повреждения проксимальных канальцов и оценки функции дыхания митохондрий.
Методическая статья
Моделирование гипоксии/реоксигенационного повреждения в проксимальных трубчатых эпителиальных клетках
В этой статье
Краткое содержание
Аннотация
Трансплантация почки составляет примерно 60%–65% всех трансплантированных твёрдых органов. Большинство донорских почек получают от умерших, требующих длительного сохранения при холоде, что является известным фактором неблагоприятных результатов трансплантации. Несмотря на текущие стратегии сохранения, ишемии-реперфузионное повреждение (ИРТ) остаётся неизбежным следствием временного прерывания кровотока, приводящего к нехватке кислорода и питательных веществ. Внутри нефрана проксимальные трубчатые эпителиальные клетки (PTEC) сегмента S3 особенно восприимчивы к IRI из-за высокой метаболической нагрузки и зависимости от окислительного фосфорилирования митохондриями. На молекулярном уровне IRI нарушает метаболизм митохондрий и снижает выработку АТФ, снижая энергетические потребности проксимальных трубчатых эпителиальных клеток (PTEC) и способствуя апоптозу и некрозу. Для изучения этих механизмов и оценки потенциальных терапевтических стратегий необходимы надёжные и воспроизводимые in vitro модели почечной ИРС, которые точно воспроизводят метаболическую уязвимость ПТЭК. Здесь мы описываем протокол индукции и оценки гипоксии/реоксигенационного (H/R) повреждения у мышиных ПТЭК (IM-PTEC). Протокол включает подробную информацию о составе среды и условиях культуры, необходимых для поддержания этих клеток, после чего следует индукция повреждения Г/Р через контролируемые фазы гипоксии и реоксигенации, которые близко имитируют ишемию и реперфузию в пересаженных почках. Эта модель предоставляет ценную платформу для оценки влияния различных вмешательств на эпителиальные клетки почек, подвергшиеся повреждениям, вызванным Г/Р. Влияние этих методов лечения можно оценить через анализ экспрессии маркеров, связанных с повреждением ПТ, а также через оценку функции дыхания митохондрий. Вместе эти показатели дают механистические представления об эффективности соединений и процессах восстановления клеток, поддерживая разработку таргетных терапий для почечной ИРС.
Введение
По данным Глобальной обсерватории по донорству и трансплантации, трансплантация почки составляет примерно 60%–65% всех трансплантаций твёрдых органов в мире, при этом количество процедур, проведённых в 2023 году, почти в три раза больше, чем при пересадке печени, причём последняя является вторым по распространённости типом. В 61% пересадок почек, проведённых в том году, орган был получен от умершихдоноров 1, что требует более длительного сохранения по сравнению с трансплантацией от живых доноров, где время ожидания значительнокороче 2. В этот период сохранения почки обычно сохраняются с помощью статического холодного хранения для замедления клеточного метаболизма, что снижает потребность в кислороде и энергии и, следовательно, ограничивает ишемическиеповреждения 3. Однако статическое холодное хранение обеспечивает лишь частичную защиту, так как не может полностью поддерживать клеточный метаболизм или доставку кислорода, что приводит к прогрессирующей метаболической дисфункции во времясохранения 4,5. Альтернативно, экс виво нормотермическое сохранение стало жизнеспособной стратегией поддержания органа при температуре, близкой к физиологической температуре, тем самым поддерживая клеточный метаболизм и оксигенацию, а значит, снижая ишемии-реперфузионное повреждение (ИРС)6.
Однако при пересадке почки острая почечная травма (ОПП) из-за ИРИ является неизбежным следствием. ИРИ возникает из-за прерывания кровотока через орган, что приводит к дисбалансу между спросом и спросом на кислород и питательныевещества 7. Этот процесс напрямую влияет на функцию пересаженной почки и увеличивает риск острого отторжения и снижает долгосрочную функцию трансплантата 8,9.
ПТЭК — особенно часто встречающиеся в коре почки — особенно уязвимы к ИРС. Эти клетки составляют примерно 60%–70% трубчатого эпителия и отвечают за реабсорбцию большей части клубочкового фильтрата, включая воду, ионы, глюкозу иаминокислоты 10. Их высокая метаболическая активность поддерживается обширной митохондриальной сетью для удовлетворения потребностей транспорта, зависящего отАТФ. В результате они чрезвычайно чувствительны к метаболическим нарушениям, таким как дефицит кислорода и нарушение митохондрий, которые являются центральными характеристиками IRI12.
Во время IRI недостаток кислорода нарушает окислительное фосфорилирование митохондрий, что приводит к истощению АТФ и ухудшению функции реабсорбции 13,14. Это запускает метаболический переход от окисления жирных кислот (ФАО) к анаэробному гликолизу, а также активации пути пентозофосфата, который, хотя и временно защищает, недостаточен для полного удовлетворения энергетических и окислительных потребностей этихклеток 15. Если подавление ФАО сохраняется во время фазы восстановления, происходит накоплениелипидов 16 и липотоксичность17, что дополнительно повреждает клетки и снижает их регенеративнуюспособность 18. Это неадаптивное метаболическое состояние в конечном итоге может привести к атрофии труб, интерстициальному фиброзу и прогрессированию хронической болезнипочек 19.
Это метаболическое нарушение, вызванное дефектом ФАО, затрудняет способность удовлетворять высокие энергетические нагрузки почечногоканальца 17,19. В результате истощение АТФ и накопление липидов способствуют дисфункции митохондрий и образованию реактивных форм кислорода, которые активируют провоспалительную сигнализацию и инфильтрациюлейкоцитов 20,21,22. Постоянное воспаление и окисляющее повреждение дестабилизируют целостность митохондрий, усиливая энергетическую недостатку и в конечном итоге вызывая апоптотическую и некротическую гибельклеток 23,24. Во время этой фазы острого повреждения специфические биомаркеры, такие как молекула повреждения почек 1 (KIM-1) и липокалин, ассоциированный с нейтрофил-желатиназой (NGAL), повышаются, служа чувствительными индикаторами повреждения проксимальных труб и раннегоОПП-25.
После острого повреждения механизмы дезадаптивного восстановления способствуют чрезмерному внеклеточному отложению матрикса, что является характерной чертой фиброзапочек 26. Среди компонентов внеклеточного матрикса коллаген, особенно коллаген типа I (кодируемый геном Col1a1), накапливается в межклетвенном пространстве, способствуя атрофии труб и потере функциональнойпаренхимы 27. Эта фиброзная ремоделирование в значительной степени обусловлена трубчатым старением и частичным переходом эпителия в мезенхиму (pEMT) в трубчатых эпителиальных клетках, что в конечном итоге приводит к снижению функционалапочек 28,29,30. Начало почечной пЭМТ и фиброза способствует прогрессированию от ОПП к хронической болезни почек (ХБП), что приводит к необратимой потере функции почек и снижению выживаемоститрансплантата 31,32.
В этом протоколе мы описываем in vitro модель повреждения от H/R с использованием проксимальных трубчатых эпителиальных клеток мышей (IM-PTEC), подвергшихся контролируемым условиям H/R. Большинство доклинических исследований ИРС почек традиционно опирались на животные модели, которые воспроизводят сложные сосудистые и иммунные ответы почек, но требуют более высоких затрат, этических соображений и значительно более высокой биологическойвариабельности 33,34. Эти ограничения замедлили развитие комплементарных клеточных систем, подходящих для детальных механистических и высокопроизводительных исследований. Такая экспериментальная система позволяет воспроизводимо моделировать дефицит кислорода и восстановление, имитируя ключевые особенности ИРС, наблюдаемые в трансплантированных почках. Модель служит ценным инструментом для изучения клеточных и молекулярных механизмов, лежащих в основе повреждения труб, экспрессии биомаркеров и фиброзных ответов в контролируемой среде. Кроме того, он предоставляет релевантную платформу для скрининга и оценки потенциальных терапевтических стратегий, направленных на предотвращение или смягчение ишемических повреждений и улучшение результатов после трансплантации.
Протокол
Клетки, использованные в этом протоколе, не были выделены в рамках этого исследования. Ранее они были выделены и предоставлены другимиисследователями 35. Поэтому новых экспериментов на животных не проводилось, и этическое одобрение для текущей работы не требовалось.
1. Культура IM-PTEC
- Подготовьте среду L3, как описано в таблице 1.
- Разморозьте флакон IM-PTEC. Культивировать примерно 1 x 10⁶ ячеек при 33 °C в увлажнённом инкубаторе при стандартных условиях (5%CO2, атмосферныйO2) до 80% слияния (обычно достигается через 3 дня).
ПРИМЕЧАНИЕ: IM-PTEC изолированы от мышей Имморто. Для подробного протокола изоляции IM-PTEC, пожалуйста, обратитеськ статье 35. - Субкультивируйте клетки 2 раза в неделю примерно в соотношении расщепления 1:10. Для передачи отсоедините прилипший монослой с помощью 0,05% трипсина-EDTA на 2-3 минуты при 33 °C, нейтрализируйте с помощью полной формы для роста и пересеяйте в колбы для свежей культуры.
| Компонент | Концентрация количества/итоговых медиа |
| DMEM/F12 | 500 мл |
| Сыворотка для плода телята (FCS) | 10% |
| Пенициллин | 10 000 U/mL |
| Стрептомицин | 10 000 мкг/мл |
| L-глутамин | 0,02 мкм |
| Инсулин | 5 мкг/мл |
| Трансферрин | 5 мкг/мл |
| Селенит натрия | 5 мкг/мл |
| Трийодтиронина | 40 пг/мл |
| Гидрокортизон | 36 нг/мл |
| Эпидермальный фактор роста | 20 нг/мл |
| Интерферон γ (IFN-γ) | 10 нг/мл |
Таблица 1: Композиция среднего уровня L3.
2. Ограничительная культура IM-PTEC
- Субкультура, как описано в шаге 1.3, и перенесение всей клетки из одной термофляжки IM-PTEC T-25 в колбу T-75 с примерно 10 мл среды L3 без интерферона-γ (IFN-γ). Культура при 37 °C при стандартных условиях до 80% слияния (обычно достигается через 3 дня).
- Субкультура, как описано в шаге 1.3, и переносит всю суспензию клетки из одной колбы T-75 в две колбы T-175 с примерно 20 мл среды L3 без IFN-γ. Культура при 37 °C при стандартных условиях до 80% слияния (обычно достигается через 3 дня).
- Пластинчатые IM-PTEC для экспериментов путём отделения клеток от соядущих культур с использованием 0,05% трипсина-ЭДТА, повторного суспензия в полной среде и засева с нужной плотностью (примерно 1 x 10⁵). Используйте пластины с 6 лунками для анализа экспрессии молекулярных маркеров или микропластины с 96-лучной культурой, подходящие для исследований митохондриального дыхания.
ПРИМЕЧАНИЕ: Для других экспериментов используйте подходящий формат культуры.- При покрытии клеток в микропластине с 96-луночной культурой для исследований митохондриального дыхания оставляйте четыре ямы в углах пустыми, чтобы использовать их в качестве фоновой коррекции. Оставьте микропластину на 1 час при комнатной температуре, прежде чем поместить её в инкубатор, чтобы клетки оселились.
3. Процедура гипоксии/реоксигенации (рисунок 1)
- Обновите IM-PTEC, удаляя культурные слои и добавляя свежую среду L3 без IFN-γ (0,1 мл/скважина для пластин с 96 лунками или 2 мл/скважина для пластин с 6 колодцами). Поместить клетки в инкубатор гипоксии при 1%O2, 5%CO2, при 37 °C в течение 48 часов.
- Удалите клетки из инкубатора гипоксии и обновите их средой L3 без IFN-γ. Поместить клетки в инкубатор для культуры клеток при стандартных условияхO2 и 5%CO2 при 37 °C в течение 24 часов.
ПРИМЕЧАНИЕ: Гипоксические условия можно достичь либо с помощью инкубатора гипоксии, либо модульной камеры гипоксии, подключённой к контролируемому газоподаче.
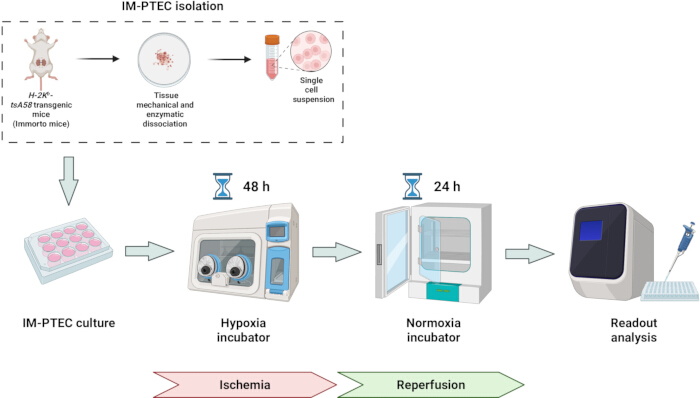
Рисунок 1: Схематическое представление модели in vitro H/R в увековеченных проксимальных трубчатых эпителиальных клетках (IM-PTEC). IM-PTEC, полученные из трансгенных мышей H-2Kb-tsA58 (Immorto), культивировались в нормоксических условиях, подвергались гипоксии (1%O2, 48 ч), а затем реоксигенированы (стандартные условияO2, 24 часа) для анализа на считывании. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
4. Анализ экспрессии молекулярных маркеров
- Изоляция РНК
- Добавьте 800 мкл реагента для изоляции РНК в каждую скважину пластины с 6 лунками. Инкубировать 5 минут при комнатной температуре. Перенесите образцы в микроцентрифугные пробирки объемом 1,5 мл, свободные от РНК.
- Добавьте 200 мкл хлороформ и хорошо перемешайте 15 секунд с помощью пипетирования. Инкубировать при комнатной температуре 2-3 минуты.
- Центрифуга при 12 000 x g при 4 °C в течение 12 минут. Перенесите водную верхнюю фазу в микроцентрифугу без РНК объемом 1,5 мл.
- Добавьте 500 мкл изопропанола. Инкубировать при комнатной температуре 10 минут. Центрифуга при 12 000 x g при 4 °C в течение 10 минут.
- Сбросьте супернатант и промой гранулу с 1 мл этанола 70%. Центрифуга при 5 000 x g при 4 °C в течение 5 минут. Отбросьте супернатант.
- Сушите пеллеты на воздухе. Растворить гранулу в 12 мкл воды, свободной от РНК.
- Нагрейте образец при 56 °C в течение 15 минут. Измерьте концентрацию РНК в микрообъёмном УФ-Vis спектрофотометре.
ПРИМЕЧАНИЕ: Всегда держите образцы на льду между этапами инкубации, чтобы избежать деградации РНК.
- Обратная транскрипция
- На льду добавьте следующие компоненты реакции в микроцентрифугную трубку без РНК объемом 0,2 мл: 10 мкл мастер-смеси (2x), 2 мкл ферментной смеси, 1-5 мкг РНК и до 20 мкл безнуклеазногоH2O.
- Аккуратно перемешайте и инкубуйте при 25 °C в течение 10 минут, затем инкубировать при 50-55 °C в течение 10 минут.
- Инактивируйте реакцию, нагревая при 85 °C в течение 5 минут и охлаждая на льду. Разбавлять кДНК при 1:5 или 1:10.
- Количественная ПЦР в реальном времени (RT-qPCR)
- Подготовьте наборы праймеров, смешивая их с конечной концентрацией 10 мкм (Таблица 2).
- Для каждого гена для измерения подготовьте смесь qPCR в реальном времени (RT), содержащая следующие реагенты на колодцу: 5 мкл RT-qPCR Master Mix; 0,4 мкл прямого праймера 10 мкм, 0,4 мкл обратного праймера 10 мкм и 2,2 мкл безнуклеазного H2O.
- Добавьте 8 мкл смеси RT-qPCR в каждую скважину 384-луночной ПЦР-пластины. Добавьте 2 мкл образца кДНК в каждую скважину, оставив каплю на краю скважины.
- После добавления всех образцов аккуратно постучите по тарелке, пока все капли не попадут в колодцы. Плотно запечатайте пластину её мембраной. Прокрутите пластину ПЦР с 384 лунками.
- Измерьте в RT qPCR системе со следующей программой: 98 °C в течение 30 с, 40 циклов по 98 °C в течение 10 секунд, затем 60 °C в течение 30 секунд и кривая плавления при 95 °C.
| Ген | Последовательности праймеров |
| Ким-1 | Ф: 5' - TGGTTGCCCCCCGTGTCTCT |
| Р: 5' - TCAGCTCGGGAATGCACAA | |
| Нгал | Ф: 5' - ATGTCACCTCCATCCTGGGGTCAG |
| R: 5' - GCCACTTGCACATTGTAGCTCTG | |
| Acta2 | Ф: 5' - GCCATCTTTTTCATTGGGGATGGA |
| R: 5' - CCCCTGACAGGACGTTGTGTTA | |
| Col1a1 | Ф: 5' - CCTCAGGGTGTGCTGGACAAC |
| Р: 5' - CAGAAGGACCTTTTTTTTTTGGCCAGG |
Таблица 2: Праймерные последовательности, используемые для RT-qPCR.
5. Оценка дыхательной функции митохондрий
- День до анализа
- Включите анализатор скорости потребления кислорода (OCR)/скорости внеклеточного закисления (ECAR) и дайте ему нагреться как минимум за 5 часов до начала эксперимента.
- Гидратировать сенсорный картридж при 37 °C в инкубаторе безCO2 на ночь.
- День анализа
- Подготовьте пробирную среду для одной микропластины с 96-луночной клеточной культурой, содержащей: 33,4 мл среды DMEM pH 7,4; 0,875 мл глюкозы 1 М (конечная концентрация 25 мМ); 0,35 мл пирувата 100 мМ (конечная концентрация 1 мМ); и 0,35 мл глутамина, 200 мМ (конечная концентрация 2 мМ).
- Подготовьте растворы ингибиторов согласно таблице 3.
- Выньте собранный сенсорный картридж из инкубатора. Загрузите 25 мкл каждого ингибитора в соответствующий порт с помощью многоканальной пипетки и направляющего для загрузки.
- Удалите культурную среду для роста клетки из микропластины клеточной культуры. Добавьте в каждую скважину 175 мкл предварительно нагретого (37 °C) пробирального материала с помощью многоканальной пипетки.
- Поместите микропластину клеточной культуры в инкубатор сне-CO2 при температуре 37 °C на 45-60 минут перед анализом.
- Поместите калибровочную пластину вместе с заряженным сенсорным картриджем в OCR/ECAR анализатор для калибровки.
- Поместите микропластинку для клеточной культуры в прибор для измерения.
- После запуска сохраняйте микропластинку клеточной культуры для количественной оценки общего белка с целью нормализации данных.
| [Патрон] (мкм) | [Пробный медиум] (мкм) | Порт А | Порт B | Порт C | |
| Олигомицин | 12 | 1.5 | 8,4 мкл | ||
| FCCP | 9 | 1 | 6,3 мкл | ||
| Антимицин А | 25 | 2.5 | 17,5 мкл | ||
| Ротеноне | 12.5 | 1.25 | 8,75 мкл | ||
| Пробирная среда | 3,5 мл | 3,5 мл |
Таблица 3: Ингибиторные растворы для оценки митохондриального дыхания.
Результаты
Сначала была проведена валидация временного курса для определения оптимальных условий гипоксии/реоксигенации (H/R) для воспроизведения ишемического повреждения в IM-PTEC. Активация каспазы-3, отличительная черта ишемии-реперфузии почек как in vivo, так и in vitro, использовалась как индикатор точности модели36,37. Мы обнаружили, что 48 часов гипоксии, а затем 24 часа реоксигенации, приводили к наибольшему увеличению активности каспазы-3. Жизнеспособность клеток, оценённая с помощью МТТ-анализа, оставалась сопоставимой с нормоксической контрольной системой в этих условиях, что указывает на то, что при начале апоптотической сигнализации клетки оставались жизнеспособными для последующего фармакологического тестирования (Дополнительный рисунок 1). Этот валидированный протокол затем использовался для индуцирования повреждений от Г/Р через контролируемую гипоксию/реоксигенацию IM-PTEC.
После ишемического повреждения был проведён RT-qPCR для определения экспрессии нескольких маркеров повреждения почек (рисунок 2). RT-qPCR показало, что в контексте IRI экспрессия Kim-1 38,39 и Ngal40,41, известных маркеров острой почечной травмы, значительно увеличилась. Кроме того, экспрессия Acta2 42,43 и Col1a1 44,45,46, маркеров почечного pEMT/фиброза, также была повышена. Помимо того, что экспрессия Col1a1 является маркером pEMT/фиброза почек, она может коррелировать с тяжестьюХБП 47. /p>
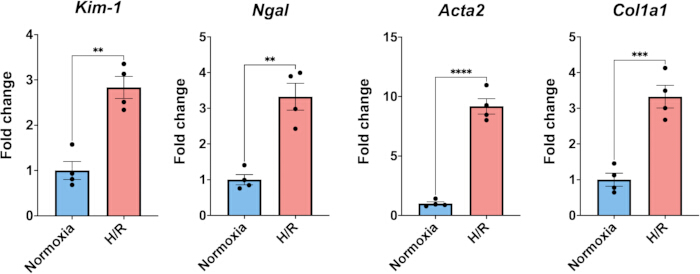
Рисунок 2: Молекулярная экспрессия маркеров повреждения почек при нормоксии или гипоксии/реоксигенации (H/R). После Г/Р экспрессия молекулярных маркеров повреждения почек Kim-1, Ngal, Acta2 и Col1a1 значительно повышается в IM-PTEC. Данные представлены как среднее ± стандартной ошибке среднего значения (SEM) из четырёх биологических репликат на каждое условие. Статистическая значимость оценивалась с помощью непарного двухстороннего теста Student's t-test. Уровни значимости указываются следующим образом: p < 0,05 (*), p < 0,01 (**), p < 0,001 (***), и p < 0,0001 (****). Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
Также были проведены исследования митохондриального дыхания для определения емкости митохондрий после дихательной емкости (рисунок 3). Измеряя скорость потребления кислорода (OCR), мы определили, что после ишемического испытания все параметры митохондриального дыхания (базальное дыхание, выработка АТФ, утечка протона, максимальное дыхание и запасная ёмкость) были снижены, что указывает на затрудненный метаболизм митохондрий.
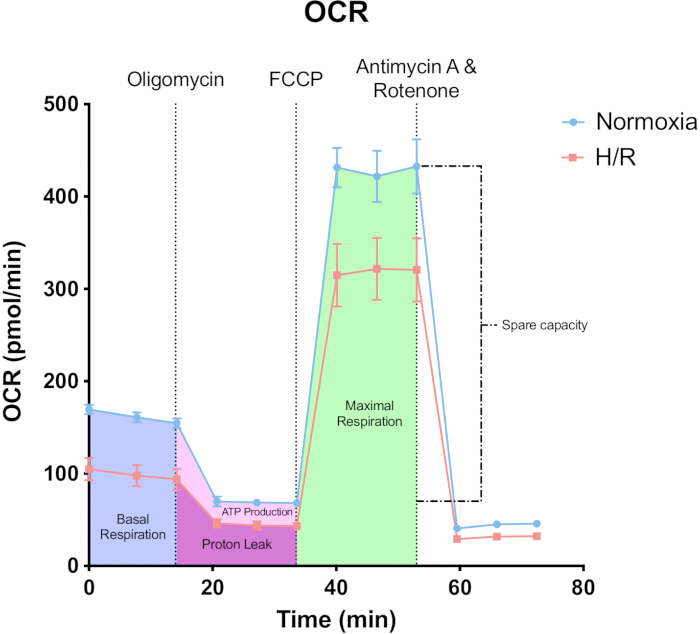
Рисунок 3: OCR (скорость потребления кислорода) в IM-PTEC в нормоксических или гипоксических условиях. После гипоксии/реоксигенации (H/R) IM-PTEC показывают снижение митохондриальной дыхательной функции. Митохондриальное дыхание оценивалось последовательно с добавлением ингибиторов цепи транспорта электронов: олигомицина, FCCP (карбонилцианид-p-трифторметоксифенилгидразона), антимицина A и ротенона. Данные представлены как среднее ± стандартной ошибке среднего значения (SEM) из четырёх биологических репликат на каждое условие. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
Эти результаты подтверждают, что протокол H/R эффективно вызывает молекулярные и метаболические изменения, соответствующие ишемическому повреждению почек вIM-PTECs 48,49. Таким образом, этот протокол предоставляет полезную основу для воспроизведения почечной ишемии-реперфузии состояний in vitro.
Дополнительный рисунок 1. Жизнеспособность клеток и активность каспазы-3 в условиях нормоксии и гипоксии/реоксигенации (H/R). (A) Жизнеспособность клетки. Жизнеспособность клеток оценивалась с помощью МТТ-анализа после воздействия нормоксии или гипоксии/реоксигенации (H/R). Результаты выражаются в виде относительной жизнеспособности (%), нормализованной для нормоксических контролей. (B) Расщепленная каспаза-3. Активность расщепленной каспазы-3 (белка нмоль/мин/мг) была количественно измерена в клетках, подвергшихся разной продолжительности нормоксии (N), гипоксии (H) и реперфузии (R). Данные представлены в виде среднего ± SEM, и каждая точка представляет отдельную биологическую реплику. Пожалуйста, нажмите здесь, чтобы скачать эту фигурку.
Обсуждение
Большинство доклинических данных о ОПП, вызванном ИРС в почках, получается с помощью моделей in vivo 50, 51, 52, 53, из-за отсутствия установленных моделей in vitro. Это, в сочетании с ограниченной доступностью хорошо охарактеризованных мышиных увековеченных проксимальных трубчатых эпителиальных клеточных линий, ограничивает исследования in vitro, делая разработку этого протокола ценным активом. Этот метод предоставляет более доступную и воспроизводимую платформу для изучения механизмов повреждений почечного H/R в контролируемых условиях, одновременно снижая потребность в использовании животных.
Кроме того, этот протокол преимущественно использует стандартное лабораторное оборудование, что облегчает его реализацию без необходимости специализированных и дорогостоящих приборов. Единственное исключение — необходимость в инкубаторе гипоксии, который обычно доступен в лабораториях онкологических исследований для воссоздания микроокружений гипоксическихопухолей 54,55,56. Такая доступность способствует более широкому внедрению и способствует воспроизводимости в различных лабораториях.
Важным аспектом в этом протоколе является правильная культура IM-PTEC. Клетки необходимо культивировать при 33 °C и дополнять IFN-γ, чтобы избежать снижения активности SV40. Перед экспериментальными процедурами IM-PTEC перемещают в ограничительные условия на 7 дней перед началом экспериментов. Рестриктивная культура достигается путем повышения температуры до 37 °C и удаления интерферон-гаммы (IFN-γ) из среды в течение 1 недели, что снижает экспрессию крупного антигена Т-антигена SV40 — вирусного белка, кодируемого вирусом Simian 40, используемого для увековеченияклеток 35,57, вызывающего потерю статуса бессмертных клеток и способствующего более дифференцированному и физиологически значимому фенотипу58. Примечательно, что IM-PTEC могут развивать заметные цитоплазматические вакуоли уже через несколько дней в культуре; Если происходит вакуолация, гидроксикортизон следует исключить из культурной среды, чтобы предотвратить или обратить это изменение.
Хотя использование увековеченных PTEC даёт преимущество стабильности и простоты обслуживания, исследователи также могут рассмотреть возможность использования первичных проксимальных трубчатых эпителиальных клеток для повышения физиологической значимости. Однако первичные PTEC мышей обладают большей вариабельностью междудонорами — 59,60 и ограниченной пролиферативнойспособностью — 61,62, что делает их менее подходящими для высокопроизводительных или долгосрочных экспериментов. Их использование может быть более уместным для валидационных исследований или при изучении конкретных ответов, полученных пациентами
Этот протокол предоставляет ценную платформу для изучения молекулярных механизмов, лежащих в основе повреждения H/R, выявления и оценки потенциальных терапевтических подходов, а также для изучения клеточных ответов, таких как воспаление, окислительный стресс и пути гибели клеток в контролируемойсреде 63,64.
Тем не менее, важным ограничением этой модели является то, что она не воспроизводит определённые признаки ишемии, наблюдаемые при трансплантации почки, такие как гипотермия и нехватка питательных веществ во время холодногохранения 9. Эти состояния существенно влияют на клеточный метаболизм и паттерны повреждений, и их отсутствие может ограничить перенос результатов в клиническуюсреду 65,66.
В заключение, эта модель in vitro H/R в IM-PTEC предоставляет воспроизводимый, доступный и этически благоприятный подход к изучению ишемии-реперфузии почек при контролируемых условиях. Хотя он не полностью воспроизводит сложность in vivo ишемии, он представляет собой ценный дополнительный инструмент для разъяснения клеточных механизмов, скрининга терапевтических кандидатов и снижения зависимости от экспериментов на животных в исследованиях почек.
Раскрытие информации
Авторы заявляют, что у них нет конфликтов интересов с этой работой для раскрытия
Благодарности
Мариано Марин-Бласкес состоит в «Программе докторских наук по здоровью» Католического университета Мурсии (UCAM). Работа в группе Рубена Рабадан-Рос и Рубена Сапата-Переса поддерживается грантом Министерства наук, Innovación y Universidades - проектов Generación de Conocimiento 2023 (PID2023-147560OA-I00). Рубен Рабадан-Рос получает поддержку гранта от Fundación Séneca - Agencia de Ciencia y Tecnología de la Región de Murcia (22524/JLI/24, Ayudas a Proyectos para la Generación de Nuevo Liderazgo Científico Jóvenes Líderes en Investigación 2024). AT финансируется совместным грантом NWO-FAPESP на Healthy Ageing, реализуемым Zonmw (No 457002002), а также грантом Junior Talent от Nierstichting.
Авторы с благодарностью выражают признательность Университету Мурсии (UM) и Католическому университету Мурсии (UCAM) за предоставление доступа к их объектам, где записывались видеозаписи.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| 384-колодчатая qPCR-пластина | Прикладные биосистемы | 4309849 | |
| Центрифуга | Ортоалреса | Biocen22R | |
| Хлороформ | VWR | 0757-500МЛ | |
| DMEM/F12 | Gibco | 21331020 | |
| Эпидермальный фактор роста | Сигма-Олдрич | E9644 | |
| Этанол | PanReac AppliChem | 141086.1214 | |
| FCS | Biowest | S181B-500 | |
| Нагревательный блок | Эппендорф | ThermoMixer C | |
| Гидрокортизон | Сигма-Олдрич | H0135 | |
| Инкубатор гипоксии | Меммерт | ICO 50med | |
| IFN-и гамма; | ProspecBIo | CYT-358 | |
| Инкубатор | Меммерт | ICO 105 | |
| Изопропанол | VWR | 0918-1L | |
| ITSe | Gibco | 41400045 | |
| L-глутамин | Gibco | 25030081 | |
| Многоканальная пипетка | Эппендорф | 3125000052 | |
| Инкубатор без CO2 | |||
| ПЦР-праймеры | Геномика Eurofins | ||
| Пенициллин — стрептомицин | Gibco | 15140-122 | |
| qPCR Мастер-микс | NZYTech | MB22303 | |
| Система qPCR в реальном времени | Прикладные биосистемы | QuantStudio 5 | |
| Мастер-микс с обратной транскрипцией | NZYTech | MB12502 | Содержит смесь ферментов |
| Вода без РНК | HyClone | SH3053802 | |
| Набор для стресс-теста Seahorse XF Cell Mito | Agilent | 103015-100 | Содержит олигомицин, FCCP, антимицин А и ротенон |
| Средний Seahorse XF DMEM | Agilent | 103575-100 | |
| Глюкоза Seahorse XF | Agilent | 03577-100 | |
| Глутамин Seahorse XF | Agilent | 103579-100 | |
| Seahorse XF Пируват | Agilent | 103578-100 | |
| Анализатор Seahorse XFe96 | Agilent | S7800BR | |
| Seahorse XFe96 FluxPak | Agilent | 103792-100 | Содержит микропластину для клеточной культуры XFe96 и картридж сенсора XFe96 |
| Термический циклер | BIO-RAD | Термоциклер T100 | |
| Трийодотиронин | Сигма-Олдрич | T5516 | |
| Тризол | Инвитроген | 15596026 | |
| UV-Vis спектрофотометр | DeNovix | DS-11 |
Ссылки
- Use of the data/quoting data. GODT. , Global Observatory on Donation and Transplantation. https://www.transplant-observatory.org/uses-of-dataquoting-data (2016).
- van de Laar, S. C., Lafranca, J. A., Minnee, R. C., Papalois, V., Dor, F. J. M. F. The Impact of Cold Ischaemia Time on Outcomes of Living Donor Kidney Transplantation: A Systematic Review and Meta-Analysis. J Clin Med. 11 (6), 1620(2022).
- Tingle, S. J., et al. Machine perfusion preservation versus static cold storage for deceased donor kidney transplantation. Cochrane Database Syst Rev. 3 (3), CD011671(2019).
- Jing, L., Yao, L., Zhao, M., Peng, L., Liu, M. Organ preservation: from the past to the future. Acta Pharmacol Sin. 39 (5), 845-857 (2018).
- Smith, T. B., Nicholson, M. L., Hosgood, S. A. Advances in Hypothermic and Normothermic Perfusion in Kidney Transplantation. Transplantology. 2 (4), 460-477 (2021).
- Montagud-Marrahi, E., et al. Ex vivo normothermic preservation of a kidney graft from uncontrolled donation after circulatory death over 73 hours. Front Bioeng Biotechnol. 11, 1330043(2023).
- Malek, M., Nematbakhsh, M. Renal ischemia/reperfusion injury; from pathophysiology to treatment. J Renal Inj Prev. 4 (2), 20-27 (2015).
- Ditonno, P., et al. Effects of ischemia-reperfusion injury in kidney transplantation: risk factors and early and long-term outcomes in a single center. Transplant Proc. 45 (7), 2641-2644 (2013).
- Salvadori, M., Rosso, G., Bertoni, E. Update on ischemia-reperfusion injury in kidney transplantation: Pathogenesis and treatment. World J Transplant. 5 (2), 52-67 (2015).
- Park, J., et al. Single-cell transcriptomics of the mouse kidney reveals potential cellular targets of kidney disease. Science. 360 (6390), 758-763 (2018).
- Curthoys, N. P., Moe, O. W. Proximal Tubule Function and Response to Acidosis. Clin J Am Soc Nephrol. 9 (9), 1627-1638 (2014).
- Bhargava, P., Schnellmann, R. G. Mitochondrial energetics in the kidney. Nat Rev Nephrol. 13 (10), 629-646 (2017).
- Erpicum, P., Rowart, P., Defraigne, J. O., Krzesinski, J. M., Jouret, F. What we need to know about lipid-associated injury in case of renal ischemia-reperfusion. Am J Physiol Renal Physiol. 315 (6), F1714-F1719 (2018).
- Vasko, R. Peroxisomes and Kidney Injury. Antioxid Redox Signal. 25 (4), 217-231 (2016).
- Lan, R., et al. Mitochondrial Pathology and Glycolytic Shift during Proximal Tubule Atrophy after Ischemic AKI. J Am Soc Nephrol. 27 (11), 3356-3367 (2016).
- Lipke, K., Kubis-Kubiak, A., Piwowar, A. Molecular Mechanism of Lipotoxicity as an Interesting Aspect in the Development of Pathological States-Current View of Knowledge. Cells. 11 (5), 844(2022).
- Jang, H. S., Noh, M. R., Kim, J., Padanilam, B. J. Defective Mitochondrial Fatty Acid Oxidation and Lipotoxicity in Kidney Diseases. Front. Med. 7, 65(2020).
- Rinaldi, A., et al. Impaired fatty acid metabolism perpetuates lipotoxicity along the transition to chronic kidney injury. JCI Insight. 7 (18), e161783(2022).
- Kang, H. M., et al. Defective fatty acid oxidation in renal tubular epithelial cells has a key role in kidney fibrosis development. Nat Med. 21 (1), 37-46 (2015).
- Chen, Y., et al. Mitochondrial metabolism and targeted treatment strategies in ischemic-induced acute kidney injury. Cell Death Discov. 10 (1), 69(2024).
- Bhatia, D., Capili, A., Choi, M. E. Mitochondrial dysfunction in kidney injury, inflammation, and disease: potential therapeutic approaches. Kidney Res Clin Pract. 39 (3), 244-258 (2020).
- Zhao, L., et al. Energy metabolic reprogramming regulates programmed cell death of renal tubular epithelial cells and might serve as a new therapeutic target for acute kidney injury. Front Cell Dev Biol. 11, 1276217(2023).
- Fontecha-Barriuso, M., et al. Tubular Mitochondrial Dysfunction, Oxidative Stress, and Progression of Chronic Kidney Disease. Antioxidants. 11 (7), 1356(2022).
- Wang, H., Zhang, S., Guo, J. Lipotoxic Proximal Tubular Injury: A Primary Event in Diabetic Kidney Disease. Front Med (Lausanne). 8, 751529(2021).
- Bhosale, S. J., Kulkarni, A. P. Biomarkers in Acute Kidney Injury. Indian J Crit Care Med. 24 (Suppl 3), S90-S93 (2020).
- van der Rijt, S., Leemans, J. C., Florquin, S., Houtkooper, R. H., Tammaro, A. Immunometabolic rewiring of tubular epithelial cells in kidney disease. Nat Rev Nephrol. 18 (9), 588-603 (2022).
- Liu, Y. Cellular and molecular mechanisms of renal fibrosis. Nat Rev Nephrol. 7 (12), 684-696 (2011).
- Lovisa, S., et al. Epithelial-to-mesenchymal transition induces cell cycle arrest and parenchymal damage in renal fibrosis. Nat Med. 21 (9), 998-1009 (2015).
- Luo, C., et al. Wnt9a Promotes Renal Fibrosis by Accelerating Cellular Senescence in Tubular Epithelial Cells. J Am Soc Nephrol. 29 (4), 1238-1256 (2018).
- Mylonas, K. J., et al. Cellular senescence inhibits renal regeneration after injury in mice, with senolytic treatment promoting repair. Sci Transl Med. 13 (594), eabb0203(2021).
- Mimura, I., Nangaku, M. The suffocating kidney: tubulointerstitial hypoxia in end-stage renal disease. Nat Rev Nephrol. 6 (11), 667-678 (2010).
- Fine, L. G., Norman, J. T. Chronic hypoxia as a mechanism of progression of chronic kidney diseases: from hypothesis to novel therapeutics. Kidney International. 74 (7), 867-872 (2008).
- Lerink, L. J. S., et al. Preclinical models versus clinical renal ischemia reperfusion injury: A systematic review based on metabolic signatures. American Journal of Transplantation. 22 (2), 344-370 (2022).
- Harwood, R., et al. Murine models of renal ischemia reperfusion injury: An opportunity for refinement using noninvasive monitoring methods. Physiol Rep. 10 (5), e15211(2022).
- Leemans, J. C., et al. Renal-associated TLR2 mediates ischemia/reperfusion injury in the kidney. J Clin Invest. 115 (10), 2894-2903 (2005).
- Havasi, A., Borkan, S. C. Apoptosis and acute kidney injury. Kidney Int. 80 (1), 29-40 (2011).
- Wang, X., Wang, W., Wang, J. Z., Yang, C., Liang, C. -Z. Effect of apigenin on apoptosis induced by renal ischemia/reperfusion injury in vivo and in vitro. Ren Fail. 40 (1), 498-505 (2018).
- Bonventre, J. V. Kidney injury molecule-1: a translational journey. Trans Am Clin Climatol Assoc. 125, discussion 299 293-299 (2014).
- Ichimura, T., et al. Kidney injury molecule-1 (KIM-1), a putative epithelial cell adhesion molecule containing a novel immunoglobulin domain, is up-regulated in renal cells after injury. J Biol Chem. 273 (7), 4135-4142 (1998).
- Clerico, A., Galli, C., Fortunato, A., Ronco, C. Neutrophil gelatinase-associated lipocalin (NGAL) as biomarker of acute kidney injury: a review of the laboratory characteristics and clinical evidences. Clin Chem Lab Med. 50 (9), 1505-1517 (2012).
- Xu, C., Lin, S., Mao, L., Li, Z. Neutrophil gelatinase-associated lipocalin as predictor of acute kidney injury requiring renal replacement therapy: A systematic review and meta-analysis. Front Med (Lausanne). 9, 859318(2022).
- Huang, R., Fu, P., Ma, L. Kidney fibrosis: from mechanisms to therapeutic medicines. Sig Transduct Target Ther. 8 (1), 1-20 (2023).
- Schreibing, F., Anslinger, T. M., Kramann, R. Fibrosis in Pathology of Heart and Kidney: From Deep RNA-Sequencing to Novel Molecular Targets. Circ Res. 132 (8), 1013-1033 (2023).
- Wang, Q., et al. CircCSPP1 Functions as a ceRNA to Promote Colorectal Carcinoma Cell EMT and Liver Metastasis by Upregulating COL1A1. Front Oncol. 10, 850(2020).
- Zhu, X., Luo, X., Jiang, S., Wang, H. Bone Morphogenetic Protein 1 Targeting COL1A1 and COL1A2 to Regulate the Epithelial-Mesenchymal Transition Process of Colon Cancer SW620 Cells. J Nanosci Nanotechnol. 20 (3), 1366-1374 (2020).
- Salimian, N., Peymani, M., Ghaedi, K., Hashemi, M., Rahimi, E. Collagen 1A1 (COL1A1) and Collagen11A1(COL11A1) as diagnostic biomarkers in Breast, colorectal and gastric cancers. Gene. 892, 147867(2024).
- Mavrogeorgis, E., et al. Collagen-Derived Peptides in CKD: A Link to Fibrosis. Toxins. 14 (1), 10(2022).
- Kurian, G. A., Pemaih, B. Standardization of in vitro Cell-based Model for Renal Ischemia and Reperfusion Injury. Indian J Pharm Sci. 76 (4), 348-353 (2014).
- Strazdauskas, A., et al. In Vitro Hypoxia/Reoxygenation Induces Mitochondrial Cardiolipin Remodeling in Human Kidney Cells. Int J Mol Sci. 25 (11), 6223(2024).
- Wang, H. J., Varner, A., AbouShwareb, T., Atala, A., Yoo, J. J. Ischemia/reperfusion-induced renal failure in rats as a model for evaluating cell therapies. Ren Fail. 34 (10), 1324-1332 (2012).
- Greite, R., et al. Renal ischemia-reperfusion injury causes hypertension and renal perfusion impairment in the CD1 mice which promotes progressive renal fibrosis. Am J Physiol Renal Physiol. 314 (5), F881-F892 (2018).
- Skrypnyk, N. I., Harris, R. C., de Caestecker, M. P. Ischemia-reperfusion Model of Acute Kidney Injury and Post Injury Fibrosis in Mice. J Vis Exp. (78), e50495(2013).
- Le Clef, N., Verhulst, A., D'Haese, P. C., Vervaet, B. A. Unilateral Renal Ischemia-Reperfusion as a Robust Model for Acute to Chronic Kidney Injury in Mice. PLoS One. 11 (3), e0152153(2016).
- Ma, R., He, X., Wang, H., Jia, W., Zeng, X. Hypoxic microenvironment promotes proliferation and invasion of non-small cell lung cancer A549 Cells through Wnt/β-catenin signaling pathway. Biomed Res. 29 (2), 268-273 (2018).
- Metsälä, O., et al. Transportable system enabling multiple irradiation studies under simultaneous hypoxia in vitro. Radiat Oncol. 13, 220(2018).
- Nushtaeva, A. A., et al. Establishment of primary human breast cancer cell lines using "pulsed hypoxia" method and development of metastatic tumor model in immunodeficient mice. Cancer Cell Int. 19 (1), 46(2019).
- Stokman, G., et al. Stem Cell Factor Expression after Renal Ischemia Promotes Tubular Epithelial Survival. PLoS One. 5 (12), e14386(2010).
- Stokman, G., et al. Epac-Rap signaling reduces cellular stress and ischemia-induced kidney failure. J Am Soc Nephrol. 22 (5), 859-872 (2011).
- Bejoy, J., Qian, E. S., Woodard, L. E. Tissue Culture Models of AKI: From Tubule Cells to Human Kidney Organoids. J Am Soc Nephrol. 33 (3), 487-501 (2022).
- Li, Y., et al. An in vitro method for the prediction of renal proximal tubular toxicity in humans. Toxicol Res. 2 (5), 352-365 (2013).
- Wilmer, M. J., et al. Novel conditionally immortalized human proximal tubule cell line expressing functional influx and efflux transporters. Cell Tissue Res. 339 (2), 449-457 (2010).
- Terryn, S., et al. A primary culture of mouse proximal tubular cells, established on collagen-coated membranes. Am J Physiol Renal Physiol. 293 (2), F476-F485 (2007).
- Zapata-Pérez, R., et al. Reduced nicotinamide mononucleotide is a new and potent NAD+ precursor in mammalian cells and mice. FASEB J. 35 (4), e21456(2021).
- Tammaro, A., et al. HDAC1/2 inhibitor therapy improves multiple organ systems in aged mice. iScience. 27 (1), 108681(2024).
- Verstraeten, L., Den abt, R., Ghesquière, B., Jochmans, I. Current Insights into the Metabolome during Hypothermic Kidney Perfusion-A Scoping Review. J Clin Med. 12 (11), 3613(2023).
- Turkmen, K., et al. Apoptosis and Autophagy in Cold Preservation Ischemia. Transplantation. 91 (11), 1192(2011).
Перепечатки и разрешения
