Этот протокол описывает количественный анализ дефекации у молодых мутантов Caenorhabditis elegans с RAC1/CED-10, предоставляя простую модель для изучения стадий продромальной болезни Паркинсона. Он преодолевает ограничения других животных моделей и способствует тестированию терапевтических стратегий, направленных на раннюю патологию паркинсона.
Методическая статья
Оценка моторики желудочно-кишечного тракта у мутантов Caenorhabditis elegans RAC1/CED-10 как инструмент для изучения ранней болезни Паркинсона
В этой статье
Краткое содержание
Аннотация
Болезнь Паркинсона (БП) является одним из самых распространённых нейродегенеративных заболеваний и диагностируется на основе моторных симптомов, возникающих после значительной потери дофаминергических нейронов. Немоторные симптомы, такие как запор, являются наиболее частыми и часто проявляются раньше, что указывает на начало заболевания. Многие животные модели используются для изучения нейродегенеративных заболеваний, однако большинство из них сосредоточены на поздних стадиях. Поскольку трудно точно определить начало нейродегенерации, ни одна одна модель не отражает полный ход заболевания. Модели млекопитающих особенно трудоёмки и дорогие из-за длительного жизненного цикла. В отличие от этого, Caenorhabditis elegans (C. elegans), прозрачный нематода диаметром 1 мм с коротким жизненным и репродуктивным циклом (~3 недели и 3 дня), позволяет проводить более быстрые и экономически эффективные эксперименты благодаря быстрой смене поколений. Моторная программа дефекации у C. elegans состоит из ритмических циклов, регулируемых сложной генетической сетью, в которой участвуют Rho/rac GTPases, и RAC1 (CED-10 у C. elegans) относится к ним. Мы показали, что мутанты RAC1/CED-10 демонстрируют нарушенную морфологию и функцию ГАМКергической системы, что приводит к нарушению циклов дефекации. Здесь мы представляем экспериментальный протокол измерения запора у RAC1/CED-10 C. elegans на ранних стадиях. Помимо того, что этот протокол служит предиктивным инструментом для изучения ранних симптомов БП до нейродегенерации, он также может использоваться как ранняя конечная точка для оценки эффективности фармакологического вмешательства. Поскольку эти изменения не зависят от конкретного заболевания, мы считаем, что эта модель предоставляет ценный инструмент для изучения изменений, возникающих на ранних этапах других заболеваний.
Введение
Болезнь Паркинсона (БП) является вторым по распространённости нейродегенеративным заболеванием и одной из ведущих причин неврологическойинвалидности 1,2. Его патологические признаки включают тела Леви и нейриты Леви, в основном состоящие из α-синуклеина, а также потерю нейронов в черной субстанции и других областяхмозга 3.
Клинически БП классифицируется как двигательное расстройство, но также характеризуется широким спектром немоторных симптомов. Моторные нарушения возникают из-за дегенерации дофаминергических нейронов в черной субстанции и истощения дофамина в стриате. Однако немоторные симптомы — такие как запор, тревожность и расстройство REM во сне— часто появляются на несколько лет раньше, в продромальной фазе, когда нейродегенерация поражает экстранигральные структуры (например, ствол мозга, обонятельную систему и автономные пути)5.
Основной проблемой в исследованиях БП является задержка клинического начала: моторные симптомы обычно появляются только после потери 60%–80% дофаминергическихнейронов 3, к этому моменту терапевтическое вмешательство становится менее эффективным. Ранние немоторные симптомы (например, вегетативная дисфункция) могут служить биомаркерами продромальногоПД 6, но их неспецифичность усложняет окончательную диагностику. Учитывая эти ограничения, модели на животных необходимы для изучения ранних стадий БП, стандартизации характеристик симптомов и разработки нейропротекторных терапий — которых в настоящее время нет — которые могут замедлить или предотвратить нейродегенерацию.
RAC1/CED-10 Мутанты C. elegans перечисляют ключевые ранние и поздние признакиПД 6. Ранее мы показали, что активность RAC1 критически важна для выживания и функции дофаминергических нейронов, защищая от токсичности, вызванной αсинуклеином 7. Кроме того, мутанты RAC1/CED-10 демонстрируют фенотипические изменения, напоминающие ранний PD, включая нарушение липидного метаболизма и ГАМКергическую дисфункцию, последние отражаются в нарушенных циклахдефекации 6. Эти результаты закрепляют мутантов RAC1/CED-10 как удобную модель для изучения патофизиологии предегенеративной ПД.
Здесь мы описываем оптимизированный анализ дефекации для мутантов RAC1/CED-10, который количественно фиксирует дисмоторность кишечника, что позволяет систематически изучать особенности желудочно-кишечного тракта в продромальной фазе ПД.
Протокол
ПРИМЕЧАНИЕ: Дикий тип: N2 Bristol использовался. Модель раннего PD RAC1/CED-10: Штамм BR3579 генотипируется как ced-10(n3246) и здесь называется RAC1/CED-10. Это был щедрый подарок доктора Ральфа Баумайстера (Университет Альберта Людвига, Фрайбург/Брайсгау, Германия). Этот вариант ced-10(n3246) является сильным аллелем. Мутация ced-10(n3246) — это переход G-к A, в результате чего глицин-60 CED-10 превращается в аргинин (G60R), что приводит к ненулевой измене функции 8,9. Тяжесть этого аллеля сильнее по сравнению с другими аллелями ced-10 10. Гермафродиты использовались на протяжении всего исследования.
1. Уход за червями
- Налейте 25 мл среды для роста нематод (NGM) в чашки Петри диаметром 150 мм и дайте агару затвердеть. Засейте каждую пластину 500 мкл культуры Escherichia coli OP50, равномерно распределяя суспензию по поверхности агара. Инкубировать пластины при 30 °C на ночь, чтобы дать возможность росту бактерий. Подготовьте тарелки за 24 часа до использования.
2. Получение червей, синхронизированных на 4-й стадии развития личинок (L4)
- Проведите измерения моторики кишечника с помощью червей, синхронизированных на стадии развития личинок L4. Для получения червей на этой стадии развития следует описанному ниже протоколу отбеливания (адаптированному из 11) с небольшими изменениями, связанными с фенотипом RAC1/CED-1011.
- Добавьте 10 взрослых особей гравидов в тарелки NGM с Escherichia coli OP50, приготовленные в первом этапе, чтобы отложить яйца и дать червям расти в течение 3 дней. В качестве альтернативы перенесите кусок агара с NGM-пластины, содержащей смешанную популяцию, на новую NGM-пластину. В этом случае контроль жизненного цикла менее точный, чем при использовании 10 взрослых особей. После 80 лет была зафиксирована смешанная популяция гермафродитов C elegans с тяжёлыми взрослыми особями в случае диких типов. Мутанты RAC1/CED-10 показали задержку развития6 часов, поэтому тяжёлые взрослые появились на 86 часах.
ПРИМЕЧАНИЕ: Взрослые особи идентифицируются по тому, что внутри них яйца. - Промывайте пластины с 10 мл M9 для извлечения тяжёлых взрослых особей в трубках по 15 мл (маркированных соответствующим генотипом).
- Гранулируйте червей, центрифугируя 2 минуты при 2000 x g (~1500 об/мин на стандартной настольной центрифуга) при комнатной температуре, сбросьте супернатант и добавьте 10 мл свежего буфера M9.
ПРИМЕЧАНИЕ: Хотя он работает при комнатной температуре, мы получили лучшие результаты при центрифугировании при 10 °C. - Выполните шаг 2.4 три раза или пока буфер не освободится от бактерий (прозрачный супернатант). Наличие бактерий можно предположить по тому, что супернатант выглядит слегка желтоватым и мутным.
- Добавьте буфер M9 к общему объёму 3,5 мл.
ПРИМЕЧАНИЕ: По нашему опыту, стерильная дистиллированная вода — или даже водопроводная вода — может использоваться на этом этапе без загрязнения, так как последующий процесс отбеливания устраняет любые микробы. Однако мы рекомендуем использовать буферную или стерильную воду M9 для обеспечения воспроизводимости в лабораториях. - Смешайте 0,5 мл 5M NaOH с 1 мл отбеливателя, чтобы подготовить раствор отбеливателя. Сделайте этот раствор свежим непосредственно перед использованием. Добавьте 1,5 мл смеси в центрифугу с червями.
- Активно перемешивайте трубки во время отбеливания, наблюдая за разрушением взрослой ткани под микроскопом. Прекратите реакцию, как только останутся только следы взрослых.
ПРИМЕЧАНИЕ: Отбеливающее средство обезвреживает взрослых червей и личинок, в то время как эмбрионы остаются жизнеспособными, потому что их скорлупа яичной скорлупы защищает их от отбеливателя. Этот шаг критически важен для получения выживших. Избыток времени может убить всех червей. Настоятельно рекомендуется использовать вихрь, но затем проверяйте разрушение кутикулы каждые 3 минуты. Мутанты RAC1/CED-10 более чувствительны к отбеливателю. Следите за распадом взрослой ткани каждые 2 минуты и никогда не превышайте 8 минут. - Остановить реакцию, добавив буфер M9 для заполнения трубки (~15 мл). Быстро центрифугуйте (так как лечение может быть активным) на 1 минуту при дозе 2000 г и выбросьте супернатант.
- Промыйте гранулы три раза, заполнив трубку буфером M9 и центрифугая, как описано выше. После финальной промывки аккуратно удалите супернатант, пока не останется примерно 0,1 мл.
- Добавьте эти яйца в новую трубку на 15 мл и добавьте от M9 до 5 мл. Инкубировать при комнатной температуре с плавным вращением. Необходимо обеспечить правильную аэрацию.
ПРИМЕЧАНИЕ: Мы получили хорошие результаты синхронизации, используя водопроводную воду вместо M9, на всех этапах, кроме шага 2.9. - Через 24 часа остановить вращение и гранулировать червей, центрифугая при 2000 x g в течение 1 минуты при 10 °C.
- Пластинка 30-50 мкл гранулированных червей соответствующих генотипов в пластинах NGM диаметром 150 см, засеянных OP50 и маркированных соответствующим генотипом. Несколько червей RAC1/CED-10 оказались мёртвыми, что является внутренним свойством генотипа RAC1/CED-10 (личное наблюдение). Соответственно, удвоить объём этих мутантов и наблюдать за ними на следующий день.
ПРИМЕЧАНИЕ: Объём покрытых червей зависит от выхода протокола отбеливания. Никогда не превышайте количество червей в 250 на тарелке, так как пища закончится быстрее, а черви могут умереть от голода. Разницу во времени проявления можно было бы разумно использовать, чтобы иметь время на запись первых циклов дефекации дикого типа, а затем червей RAC1/CED-10 (см. следующий раздел). - Проверьте наличие диких червей на стадии развития личинок L4 через 34 часа инкубации. Тот же этап развития червей RAC1/CED-10 будет достигнут за 40часов 6 часов. Различайте червей L4 от L3 и молодых взрослых, измеряя их размер (~650 мкм) и проверяя структуру вульвы, похожейна луну, 12.
3. Запись моторики кишечника
- Промыйте пластины 3 мл M9, чтобы извлечь червей L4 в две центрифугные трубки по 1,5 мл.
- Центрифугу при 2000 x g в течение 1 минуты (рисунок 1A), сбросьте супернатант и добавьте 1 мл свежего буфера M9. Повторите шаг три раза.
- Поместите этих промытых червей в пластину NGM без OP50 (рисунок 1B). С помощью этих этапов мытья и финальной обработки устраните избыточные бактерии.
- Пересадите червей по отдельности на пластины с 12 лунками с посеянными 5 мкл бактерий OP50 (рисунок 1C). Дайте червям адаптироваться в течение 1 часа при 20 °C.
ПРИМЕЧАНИЕ: Эти тарелки были засеяны и оставлены высохнуть перед добавлением червей. Лучше не готовить эти пластины заранее, так как чрезмерный рост бактерий может затруднить визуализацию цикла дефекации. - Поместите пластины с червями на 12 лунок под микроскоп, локализируйте одного червя и начните запись. Зафиксируйте циклы дефекации на 15 минут (15 циклов; Рисунок 1D). Используйте объектив 5x для съёмки камеры с разрешением 12 бит и частотой кадров 60 кадров в секунду (fps). Выполняйте видеозапись с помощью инструмента Snipping в Windows. Начинайте запись, когда обнаружите первый цикл дефекации.
ПРИМЕЧАНИЕ: Если микроскоп подключён к компьютеру, вы можете записывать экран напрямую с помощью инструмента для нарезки. Мы настоятельно рекомендуем использовать компьютерный хронометр для мониторинга цикла дефекации. Нажимайте кнопку «Круги» каждый раз в конце цикла дефекации.
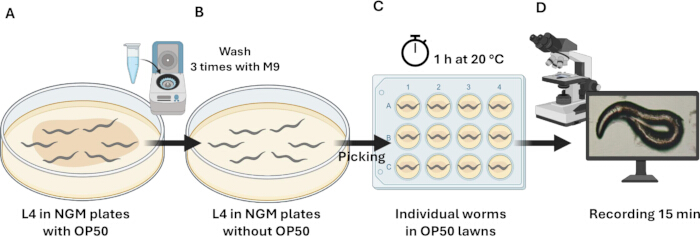
Рисунок 1: Схематическая схема экспериментального протокола измерения подвижности кишечника. (A) Синхронизированные черви на стадии L4 развития. Эти черви были собраны и промыты три раза M9. (B) Промытые черви были покрыты пластинами NGM без OP50. (C) Червей собирали по отдельности в 12-луночной пластине с OP50 и позволяли им ползти 1 час при 20 °C. В это время черви адаптируются к новой среде и расслабляются после стресса переноса. (D) Отдельные черви фиксировались в течение 15 минут для анализа подвижности кишечника. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
4. Анализ цикла дефекации
ПРИМЕЧАНИЕ: У C. elegans моторная программа дефекации состоит из ритмических циклов, координируемых сложной генетической сетью. Эта программа состоит из трёх последовательных различных мышечных сокращений, каждое из которых легко обнаруживается под микроскопом вскрытия. Первый этап включает сокращение задних мышц стенки тела (pBoc), за которым следует сокращение передней стенки тела (aBoc), а затем сокращения кишечных мышц (EMC), что приводит к выталкиванию содержимого кишечника (Exp)13 (Рисунок 2).
- Проводите эксперименты при 20 °C. Когда все видео записаны, начинайте анализ данных.
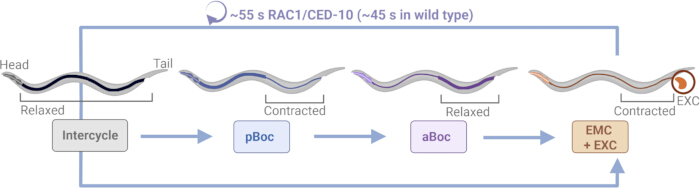
Рисунок 2: Цикл дефекации у мутантов C. elegans RAC1/CED-10. Диаграммативное представление цикла дефекации C. elegans у мутантных нематод RAC1/CED-10. pBoc обозначает сокращение мускулатуры задней стенки тела; aBoc обозначает сокращение мускулатуры передней стенки тела, а EMC + EXC соответствует выбросу содержимого кишечника. У диких животных с нетронутым питанием эта моторная программа начинается каждые 45 секунд с очень высокойрегулярностью 18 секунд. Черви ориентированы так, чтобы голова была обращена влево, а хвост — вправо. Выделение (EXC) выделено оранжевым цветом. Эта цифра была изменена с6. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
5. Видеоанализ
- Откройте одно видео с помощью видеоплеера.
ПРИМЕЧАНИЕ: Мы использовали Windows Media Player Legacy версии 12. Можно использовать и другие видеоплееры. - Подготовьте файл таблицы. Откройте предоставленный шаблонный файл (Дополнительная таблица 1). Введите имя видеофайла и размер червя (по желанию) в назначенных полях, затем запустите воспроизведение видео.
- Определите и запишите первый выдел. Определите время ноль как начало записи момента, когда черви помещаются под микроскоп. Осмотрите область ануса червя и определите первое событие выделения. Запишите время (в s) этого события в ячейке с пометкой First Excretion в таблице.
ПРИМЕЧАНИЕ: Время первой экскреции будет варьироваться у разных червей (например, червь 1 = 5 с, червь 2 = 26 с, червь 3 = 34 с), поскольку время последней экскреции перед записью неизвестно. - Записывайте последующие события выделения: Продолжайте воспроизведение и документируйте каждое последующее выделение последовательно (Excretion 2, Excretion 3 и т.д.), пока не будет введено всего 16 выделений.
- Вычисление интервалов циклов: шаблон автоматически определяет интервал между последовательными выделениями (например, Экскреция 2 - Выделение 1; Выделение 3 - Выделение 2; ...). Используйте эти интервалы как длину цикла.
- Определите общее время цикла: После записи 16 событий шаблон вычисляет время, необходимое червью для завершения 15 циклов. Это значение отображается в ячейке с пометкой Total Time в таблице. Повторяйте этот процесс для каждого червя.
ПРИМЕЧАНИЕ: В настоящее время ни одно автоматизированное программное обеспечение надежно не обнаруживает циклы дефекации у C. elegans. Хотя такие платформы, как WMicrotracker, эффективны для количественной оценки параметров движения (скорость, пройденное расстояние, количество червя или размертела 14,15), они не обеспечивают необходимого разрешения для мониторинга области ануса и выявления событий сокращения или выделения. Поэтому необходима ручная оценка, аналогично ограничению, наблюдаемому в анализах глотковогонасоса 16.
6. Измерения длины циклов
- Длительность цикла балла — это время между двумя последовательными выделениями. Вычислите, вычитая время окончания одного цикла от времени окончания следующего, как объяснено в таблице 1 и уравнении 1.
Длина цикла (n) (в секундах) = Временная экскреция (n+1) - Временная экскреция (n) Уравнение 1
Длина цикла (1ст) = 66 с ((временная экскреция 2 = 71 с) - (временная экскреция 1 = 5 с)) - Для каждого набора данных вычислите средний период цикла дефекации, стандартное отклонение (SD) и стандартную ошибку среднего значения (SEM) с помощью программного обеспечения для статистического анализа.
7. Ритмичность или регулярность цикла дефекации
- Коэффициент вариации (CV) используется для описания относительной изменчивости и объясняет, как данные распределены по сравнению со средним значением. Ранее он использовался как индикатор регулярности цикла дефекации у C.elegans 6. Вычислите CV для каждого червя, применяя уравнение 2.
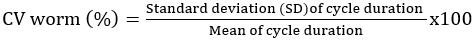 Уравнение 2
- Для каждого деформации C. elegans вычислите среднее CV, стандартное отклонение (SD) и стандартную ошибку среднего значения (SEM) с помощью программного обеспечения для статистического анализа.
8. Статистический анализ
- Проведите эксперименты в трёх независимых репликах, при этом по пять червей анализируются по каждому состоянию. Оценивайте нормальность данных с помощью теста Шапиро-Уилка (α=0,05), который рекомендуется для n < 50.
- Поскольку измерения длины цикла не следовали нормальному распределению, анализ проводился с помощью непараметрического теста Манна–Уитни, который хорошо подходит для выявления различий в медианах при небольших размерах выборки. Напротив, данные CV (%) обычно распределяются; проанализировать их с помощью непарного t-теста с коррекцией Уэлча для учёта неравных дисперсий.
- Проводите все статистические анализы с помощью программного обеспечения для статистического анализа. Для экспериментов с более чем двумя штаммами применяют альтернативный тест, например односторонний ANOVA, с непрерывной проверкой распределения образцов.
Результаты
Описанный видеоанализ был реализован в модели C. elegans RAC1/CED-10 ранней ПД для количественной оценки моторики кишечника. Учитывая задержку развития мутантов RAC1/CED-10, синхронизированные популяции были скорректированы для обеспечения сравнений по стадии с дикими контрольными группами. Отдельные черви были зарегистрированы на стадии L4, а также проанализировано 15 последовательных циклов дефекации для определения длительности и регулярности цикла. Такой подход позволяет точно и высокоразрешающе измерять моторную функцию кишечника и позволяет выявлять тонкие немоторные изменения, связанные с ранними фенотипами ПД у C. elegans.
Задержка развития у животных с RAC1/CED-10 для синхронизированных экспериментов
Учитывая задержку развития, наблюдаемую у мутанта C. elegans RAC1/CED-10 6, синхронизационные эксперименты, проводимые параллельно с дикими животными, требуют временной корректировки. Для учёта этой задержки и обеспечения сравнения по этапам во время видеозаписи, животные RAC1/CED-10 были покрыты на 6 часов раньше, чем дикие контроли в тот же день.
Черви RAC1/CED-10 для изучения изменений дефекации, связанных с болезнью Паркинсона
Запор можно обнаружить уже за два десятилетия до постановки диагноза моторной ПД, что делает его одним из первых узнаваемых признаков начала заболевания17. Ранее мы уже показывали, что модель RAC1/CED-10 демонстрирует немоторные изменения на стадии развития L4, до началанейродегенерации 6, и измененная моторика кишечника — одна из них. Как описано в протоколе, отдельные черви регистрировались на стадии L4. На рисунке 3 показан представительный червь RAC1/CED-10.
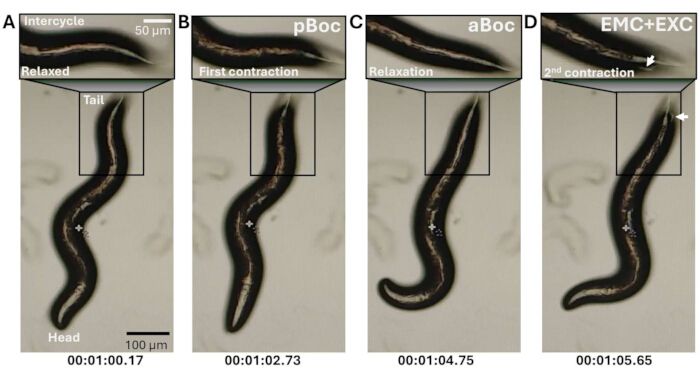
Рисунок 3: Цикл дефекации C. elegans на изображениях у мутантных животных RAC1/CED-10. Цикл дефекации у мутантов RAC1/CED-10 на изображениях. Черви ориентированы головой вниз. Области хвоста, выделенные в горизонтальных рамках, показывают последовательность моторных шагов дефекации, описанную нарисунке 6 и схематичное на рисунке 2: (A) расслабленный передний тракт, (B) сокращение заднего тела (pBoc), (C) сокращение переднего тела (aBoc) и (D) сокращение кишечных мышц с выталкиванием (EMC+EXC). Продолжительность цикла указана ниже. Стрелы отмечают выброшенный материал. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
Два параметра, используемых для анализа подвижности кишечника, — это длина цикла и регулярностьцикла 13. Сначала мы измерили 15 циклов каждого червя, показанных на рисунке 4.
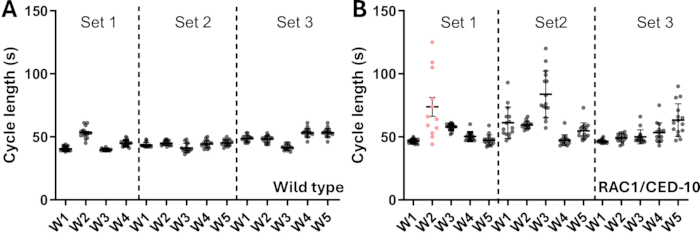
Рисунок 4: Длительность цикла у особей диких типов (A) и RAC1/CED-10 (B). Множества 1, 2 и 3 указывают на независимые реплики. Каждая точка символизирует один цикл дефекации, и в каждом червячке 15 циклов. Розовая W2 в B была отброшена для дальнейшего анализа, так как не прошла 15 циклов. W = червь. Статистический анализ на этом рисунке не проводился. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
Отдельные черви имели обозначение W (W1, W2 и др.) в различных экспериментальных репликах (Set = 1, 2, 3). Для каждого червя (W) было проведено 15 измерений в течение 15 минут. В первом наборе экспериментов с дикими животными (рисунок 4A, Набор 1) один червь был исключён, так как это был молодой взрослый, а не L4. В случае RAC1/CED-10 один червь был отброшен, потому что после обработки данных он не прошёл 15 циклов за 15 минут. Поэтому мы рекомендуем использовать тактовое приложение для определения количества циклов, так как черви RAC1/CED-10 были довольно нерегулярными.
На основе этих индивидуальных значений рассчитывалось среднее и стандартное отклонение длины цикла для диких червей и мутантов RAC1/CED-10 (Таблица 1 и Рисунок 5). Как было опубликованоранее, 6-й статья, черви RAC1/CED-10 имеют более длинные и менее регулярные циклы, чем дикие черви. Дикие черви имеют более короткие циклы (46 с ± 5 с), чем мутанты RAC1/CED-10 (55 с ± 12 с).
Таблица 1: Репрезентативный набор данных по измерениям цикла выделения для отдельных червей.Таблица суммирует репрезентативные данные, собранные от трёх животных. Для каждого червя набор данных включает идентификатор видеофайла, размер тела (μm), временные точки (в s), соответствующие отдельным событиям экскреции, рассчитанные длины циклов за 15 последовательных циклов и общую продолжительность записи. Длина цикла получалась путём вычитания последовательных точек времени выделения (например, для червячного VID_154028 длина первого цикла составляла 66 с, рассчитанных как 71-5 с). Оставшиеся записи иллюстрируют аналогичные измерения для двух дополнительных червей, предоставляя примеры типичной изменчивости в наборе данных. Пожалуйста, нажмите здесь, чтобы скачать эту таблицу.
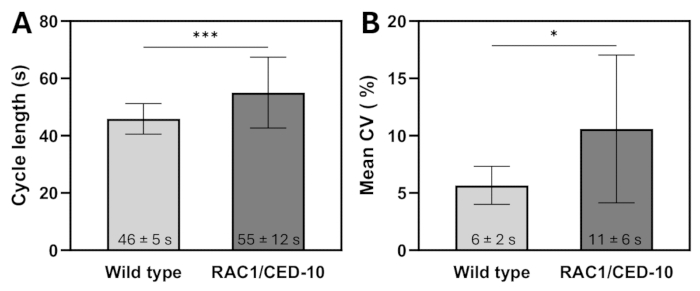
Рисунок 5: Параметры цикла дефекации. (A) Длина цикла дефекации и (B) Средняя CV у диких типов и червей RAC1/CED-10. Данные представляют среднее ± SD. N=3 n=5. Для длительности цикла дефекации применялся непараметрический тест Манна-Уитни. Для средних данных CV применялся непарный t-тест с коррекцией Уэлча. p < 0,001 * p < 0,05. См. шаг 8 для получения информации о статистическом анализе. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
Регулярность цикла рассчитывается с использованием среднего коэффициента вариации (CV), который является средним коэффициентом вариации для каждого червя вэксперименте 18. Рисунок 5B показывает большую вариабельность у мутантов RAC1/CED-10 по сравнению с животными дикого типа. Средний показатель CV составляет 6% ± 2% у диких типов, по сравнению с 11% ± 6% у мутантов с RAC1/CED-10.
Дополнительная таблица 1:Шаблон для расчёта длины цикла дефекации у Caenorhabditis elegans. Пользователи должны вводить имя каждого файла червя в первом столбце и, по желанию, записывать длину тела червя. Время (в s), соответствующее каждому событию выведения (Экскреция 1-16), затем вводится последовательно, как определяется по воспроизведению видео. Шаблон автоматически вычисляет интервал между последовательными выделениями (Time excretion N - Time excretion N-1), отражая длину цикла дефекации. После ввода 16 событий экскреции общее время, необходимое для завершения пятнадцати полных циклов, автоматически рассчитывается и отображается в ячейке Total Time (mm:ss). Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Обсуждение
C. elegans как мощная модель для изучения продромальной ПД
Хотя большинство моделей нейродегенеративных заболеваний сосредоточены на поздних стадияхпатологии 19, изучение раннего начала заболевания остаётся технически сложным. Традиционные модели млекопитающих, такие как мыши, крысы или приматы, ограничены длительным жизненным циклом и высокими затратами. Микроскопический нематода C. elegans преодолевает эти ограничения благодаря своей трёхнедельной продолжительности жизни, трёхдневному репродуктивному циклу и генетической управляемости — что делает её идеальной системой для эффективных и масштабных исследованийнейродегенерации 6.
Мутант C. elegans RAC1/CED-10 обладает тремя ключевыми преимуществами для изучения раннего патогенеза ПД. Во-первых, его точное временное разрешение позволяет отслеживать нейродегенеративные события на чётко определённых стадияхразвития 6. Во-вторых, модель предлагает исключительную экспериментальную универсальность благодаря генетической обработчивости, низким требованиям к обслуживанию и высокой пропускной способностисовместимости 6,7. В-третьих, поскольку у C. elegans отсутствует эндогенный гомолог α-синуклеина, включая модель RAC-1/CED-10, это даёт ценное преимущество. Исследователи могут исследовать доклинические механизмы БП без интерференции α-синуклеина, что отмечает более поздниестадии 6. Это позиционирует модель как отличный инструмент для изучения начальных патогенных событий и для последующего интегрирования экспрессии α-синуклеина для изучения продвинутой патогенезы. Наконец, эволюционная консервация гомологии CED-10 с человеческим RAC1 обеспечивает прямую трансляционнуюрелевантность 10,20.
Модель C. elegans, описанная здесь, хорошо подходит для фармакологических тестов17,21. Поскольку мутанты RAC-1/CED-10 демонстрируют задержку развития, ослепление невозможно на начальном этапе, так как их идентичность нельзя скрыть относительно дикой природы. Однако для фармакологических скринингов смещение можно минимизировать путём использования двойного слепого дизайна, при котором экспериментатор, собирающий данные, и человек, анализирующий их, остаются неосведомленными о всех экспериментальных переменных.
Запор поражает почти всех пациентов с БП в продромальной фазе, часто предшествуя моторнымсимптомам 5. C. elegans предлагает уникальные преимущества для изучения этой ранней дисфункции желудочно-кишечного тракта. В отличие от моделей у млекопитающих, требующих инвазивных вмешательств, прозрачность и простота нематоды позволяют неинвазивно в реальном времени наблюдать его сильно стереотипную моторную программу дефекации — особенность, критичную для количественной оценки дефектов моторики кишечника. Короткий жизненный цикл и точная ритмичность дефекации C. elegans позволяют быстро и воспроизводимо анализировать функциональные нарушения. У мутантов с RAC1/CED-10 отклонения во времени дефекации отражают фенотипы, похожие на запоры, наблюдаемые в продромальнымPD 6. Эти результаты служат основой для последующего валидирования у сложных млекопитающих (например, мышей, приматов), одновременно напрямую связывая сигнализацию RAC1 с дисфункцией кишечника.
Помимо механистической значимости, модель RAC1/CED-10 также обладает трансляционными возможностями. Анализ дефекации прост, воспроизводимый и масштабируемый, что делает его подходящим для ранних стадий скрининга на наркотики. Соединения, нормализующие время или регулярность цикла, можно быстро приоритизировать для тестирования на млекопитающих, обеспечивая экономичный фильтр для терапевтических кандидатов. Поскольку желудочно-кишечная дисфункция часто встречается при нескольких нейродегенеративныхсостояниях 4, этот анализ может применяться и за пределами ПД, служа как инструментом открытия и трансляционным мостом к доклиническим исследованиям.
Критические шаги в протоколе
Мы представляем усовершенствованную методологию для изучения кишечной дисмоториальности у мутантов RAC1/CED-10 — ключевого немоторного фенотипа, характерного для продромального БП. Хотя протокол основан на проверенных тестахдефекации 18,22, этот протокол решает уникальные задачи, связанные с мутантами RAC1/CED-10, чтобы обеспечить надёжные и воспроизводимые результаты.
Ключевые адаптации для мутантов RAC1/CED-10 следующие:
Корректировки синхронизации: мутанты RAC1/CED-10 демонстрируют более низкую плодовитость по сравнению с дикими штаммами (личное наблюдение). Чтобы компенсировать меньший урожай потомства, при синхронизации применяйте следующие корректировки: метод пластинчатого чанка — использовать более крупный инокулюм, примерно в 2 раза больше объёма, чем у диких сортов, чтобы учесть повышенную вариабельность развития. Метод Gravid Adult — пересадка 15-20 взрослых (против стандартных 10), чтобы обеспечить достаточное количество эмбрионов для последующих экспериментов.
Чувствительность к отбеливателю: эмбрионы мутантов RAC1/CED-10 демонстрируют повышенную чувствительность к лечению гипохлоритом. Чтобы минимизировать повреждения, сократите время воздействия отбеливателя на 20%–30% по сравнению с дикими протоколами и проверьте целостность эмбриона микроскопически после обработки.
Факторы задержки развития: мутанты RAC1/CED-10 созревают медленнее, чем дикиечерви 10. Для достижения правильной синхронизации записей начинайте видеоанализ с помощью диких червей для установления временной отсылки и записи мутантов на соответствующих морфологических стадиях (например, морфология вульвы), а не по хронологическому возрасту.
Обоснование рабочего процесса: проведение первоначальных экспериментов с диким типом C. elegans контролирует изменчивость окружающей среды и предоставляет ориентир для нормальных ритмов дефекации. Из-за задержек в развитии у мутантов RAC1/CED-10-10 графики записи следует адаптировать с учетом приоритета сравнений по стадиям (а не строго по возрасту).
Временные соображения, специфичные для штамма: Задержки развития у мутантов требуют гибкого экспериментального расписания, с акцентом на сопоставление стадий развития между генотипами, а не только на хронологическом возрасте.
Ограничения модели нематод
Хотя C. elegans не обладает анатомической сложностью и избыточностью путей, характерных для млекопитающих систем — что является ограничением для некоторых трансляционных исследований — его простота выгодна для изучения отдельных биологических функций. Фокус на моторике кишечника использует эту силу, поскольку упрощённая физиология нематоды позволяет точно анализировать конкретные функциональные параметры. Хотя для терапевтической валидации необходимы дополнительные исследования млекопитающих, C. elegans предоставляет исключительную платформу для механистического изучения консервативных биологическихпроцессов 21,23.
В нашей модели также отсутствует эндогенный α-синуклеин, что полезно для изучения ранней доклинической ПД (болезни Паркинсона), стадии, когда запор может проявиться как продромальныйсимптом 3. Продолжительность цикла дефекации обеспечивает объективную, высокопроизводительную меру, но отражает только один аспект желудочно-кишечной дисфункции и не является специфическим для заболевания.
Хотя этот анализ не отражает прогрессирующую агрегацию α-синуклеина, сложную нейродегенерацию или возрастную системную патологию, наблюдаемую у PD5 человека, мы наблюдаем изменённую дофаминергическую и ГАМКергическую функции и нарушенную сигнализациюRac1 6, что подчёркивает механистическую значимость этой модели. Поэтому он остаётся ценным для анализа ранних нейро-гастроинтестинальных механизмов, связанных с ПП, и сохранения путей.
Раскрытие информации
Авторам нечего раскрывать.
Благодарности
A.M.J. признаёт стипендию Ph.D. (FPU18/05190) в рамках программы Ph.D. по биотехнологиям в Автономном университете Барселоны. AL и AMJ подтверждают финансирование PID2021-122645OB-100 и PID2024-1576370B-100 от MCIN/AEI//10.13039/501100011033/FEDER «Una manera de hacer Europa»; Программа «Северо Очоа» для центров передового опыта в области научно-исследовательских проектов CEX2019-000917-S (FUNFUTURE), CEX2023-001263-S (MATRANS42), Generalitat de Catalunya 2021S00446, а также исследовательскую и инновационную программу Европейского союза Horizon Europe по грантовому соглашению No 101057527 (NextGEM). EDC признаёт поддержку гранта APR-2024 (PMI24006), финансируемого Фондом высших исследований наук (FESS) и Фондом исследований и инноваций в науках Каталонии (IRIS-CC).
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| 12-колодцевые мульти-колодцевые плиты, обработанные, стерильные | Labbox | CCPP-012-100 | |
| Agar | VWR | AAA10752-0E | Для подготовки пластин NGM |
| Бактопептон | VWR | 90000-264 | Для подготовки пластин NGM |
| Отбеливатель | В любом доме | Для процесса отбеливания | |
| CaCl2 | Labkem | CACH-02P-1K0 | Для подготовки пластин NGM |
| Центрифуга Sorvall ST8 | Сорвалл | 15194923 | |
| Холестерин | Сигма-Олдрич | C8667-25G | Для подготовки пластин NGM |
| Часы | Windows | v 11.2503.4.0 | |
| E. coli OP50 | CGC | OP50 | |
| Этанол | Panreac | 131086.1214 | Для подготовки пластин NGM |
| Инкубатор 20 градусов; C | Ecogen | CIR180 | |
| KH2PO4 | Сигма-Олдрич | P0662 | Для подготовки буфера M9 |
| KPO4 | Сигма-Олдрич | P5655 + P3786 | KH2PO4 + K2HPO4; Для подготовки пластин NGM |
| MgSO4 | Сигма-Олдрич | M7506 | Подготовить пластины NGM; Для подготовки буфера M9 |
| Микроскоп | Олимп | Olympus BX51 | |
| Na2HPO4 | Сигма-Олдрич | S9763 | Для подготовки буфера M9 |
| Na2HPO4 | Сигма Олдрич | 7558-79-4 | Для подготовки буфера M9 |
| NaCl | Сигма-Олдрич | S5886 | Подготовить пластины NGM; Подготовить буфер M9; LB |
| NaOH | Сигма-Олдрич | 567530 | Для процесса отбеливания; LB |
| Инструмент для нарезки в Windows | Windows | v 11.2504.42.0 | |
| Триптон | CONDA | 1612 | LB |
| Экстракт дрожжей | CONDA | 1702 | LB |
Ссылки
- Cooper, J. F., Van Raamsdonk, J. M. Modeling Parkinson's Disease in C. elegans. J Parkinsons Dis. 8 (1), 17-32 (2018).
- Feigin, V. L., et al. Global, regional, and national burden of neurological disorders, 1990–2016: a systematic analysis for the Global Burden of Disease Study 2016. Lancet Neurol. 18 (5), 459-480 (2019).
- Gaig, C., Tolosa, E. When does Parkinson’s disease begin. Movement Disord. 24 (S2), S656-S664 (2009).
- Camerucci, E., et al. Lifelong constipation in Parkinson’s disease and other clinically defined alpha-synucleinopathies: A population-based study in Southeast Minnesota. Parkinsonism Relat Disord. 107, 105244(2023).
- Tolosa, E., Garrido, A., Scholz, S. W., Poewe, W. Challenges in the diagnosis of Parkinson’s disease. Lancet Neurol. 20 (5), 385-397 (2021).
- Muñoz-Juan, A., et al. Caenorhabditis elegans RAC1/ced-10 mutants as a new animal model to study very early stages of Parkinson’s disease. Prog Neurobiol. 234, 102572(2024).
- Kim, H., et al. The Small GTPase RAC1/CED-10 Is Essential in Maintaining Dopaminergic Neuron Function and Survival Against α-Synuclein-Induced Toxicity. Mol Neurobiol. 55 (9), 7533-7552 (2018).
- Reddien, P. W., Horvitz, H. R. CED-2/CrkII and CED-10/Rac control phagocytosis and cell migration in Caenorhabditis elegans. Nat Cell Biol. 2 (3), 131-136 (2000).
- Shakir, M. A., Gill, J. S., Lundquist, E. A. Interactions of UNC-34 Enabled With Rac GTPases and the NIK Kinase MIG-15 in Caenorhabditis elegans Axon Pathfinding and Neuronal Migration. Genetics. 172 (2), 893-913 (2006).
- Kinchen, J. M., et al. Two pathways converge at CED-10 to mediate actin rearrangement and corpse removal in C. elegans. Nature. 434 (7029), 93-99 (2005).
- Porta-de-la-Riva, M., Fontrodona, L., Villanueva, A., Cerón, J. Basic Caenorhabditis elegans Methods: Synchronization and Observation. J Vis Exp. (64), e4019(2012).
- Herman, T., Hartwieg, E., Horvitz, H. R. sqv mutants of Caenorhabditis elegans are defective in vulval epithelial invagination. Proc Natl Acad Sci. 96 (3), 968-973 (1999).
- Branicky, R., Hekimi, S. What keeps C. elegans regular: the genetics of defecation. Trends Genet. 22 (10), 571-579 (2006).
- Risi, G., et al. Caenorhabditis elegans Infrared-Based Motility Assay Identified New Hits for Nematicide Drug Development. Vet Sci. 6 (1), 29(2019).
- Taki, A. C., Byrne, J. J., Boag, P. R., Jabbar, A., Gasser, R. B. Practical High-Throughput Method to Screen Compounds for Anthelmintic Activity against Caenorhabditis elegans. Molecules. 26 (14), 4156(2021).
- Hahnel, S. R., Roberts, W. M., Heisler, I., Kulke, D., Weeks, J. C. Comparison of electrophysiological and motility assays to study anthelmintic effects in Caenorhabditis elegans. Int J Parasitol Drugs Drug Resist. 16, 174-187 (2021).
- Yu, Q. J., et al. Parkinson disease with constipation: clinical features and relevant factors. Sci Rep. 8 (1), 567(2018).
- Kwan, C. S., Vázquez-Manrique, R. P., Ly, S., Goyal, K., Baylis, H. A. TRPM channels are required for rhythmicity in the ultradian defecation rhythm of C. elegans. BMC Physiol. 8 (1), 11(2008).
- Dawson, T. M., Golde, T. E., Lagier-Tourenne, C. Animal models of neurodegenerative diseases. Nat Neurosci. 21 (10), 1370-1379 (2018).
- Cabello, J., et al. PDR-1/hParkin negatively regulates the phagocytosis of apoptotic cell corpses in Caenorhabditis elegans. Cell Death Dis. 5 (3), e1120(2014).
- Sofela, S., Sahloul, S., Song, Y. A. Biophysical analysis of drug efficacy on C. elegans models for neurodegenerative and neuromuscular diseases. PLoS One. 16 (6), e0246496(2021).
- Thomas, J. H. Genetic analysis of defecation in Caenorhabditis elegans. Genetics. 124 (4), 855-872 (1990).
- Kobet, R. A., et al. Caenorhabditis elegans: A Model System for Anti-Cancer Drug Discovery and Therapeutic Target Identification. Biomol Ther (Seoul). 22 (5), 371-383 (2014).
Перепечатки и разрешения
