В данном исследовании представлен протокол оценки влияния куркумина на поведение клеток ретинобластомы посредством модуляции пути Wnt/β-катенина и экспрессии miR-22.
Для просмотра этого контента требуется подписка на JoVE. Войдите или начните свой бесплатный пробный период.
Исследовательская статья
miR-22-опосредованная регуляция Wnt/β-катениновой сигнализации куркумином при ретинобластоме
* These authors contributed equally
В этой статье
Краткое содержание
Аннотация
Ретинобластома (РБ) является распространенной внутриглазной злокачественной опухолью, поражающей младенцев и детей, однако ее точная этиология и патогенез остаются до конца неизученными. Куркумин, биоактивный полифенол, ингибирует прогрессирование опухоли посредством микроРНК-опосредованной модуляции сигнального каскада Wnt/β-катенина. Это исследование было направлено на выяснение того, как куркумин опосредует свои противоопухолевые эффекты при RB, изучая его регуляцию экспрессии микроРНК-22 (miR-22) и изучая лежащие в ее основе молекулярные механизмы. Две валидированные модели ретинобластомы (SO-RB50/WERI-Rb-1) лечили куркумином в различных концентрациях. Чтобы определить регуляцию передачи сигналов Wnt/β-катенина в miR-22, клетки-мишени трансдуцировали либо лентивирусом, имитирующим miR-22, либо лентивирусом с нефункциональным контролем. Модели опухолей ксенотрансплантата были созданы у мышей с использованием RB-клеток человека для наблюдения за влиянием куркумина in vivo на размер опухоли, экспрессию miR-22 и уровни белка Wnt/β-катенина. Клеточную пролиферацию, инвазию и апоптоз оценивали с помощью анализа двойного окрашивания CCK-8, Transwell и Annexin V-APC-PI соответственно. Уровни miR-22 количественно определяли с помощью ОТ-ПЦР, а профили экспрессии Wnt1 и β-катенина определяли с помощью вестерн-блоттинга. Лечение куркумином привело к снижению пролиферации и инвазивности в RB-клетках, одновременно усиливая апоптоз и повышая экспрессию miR-22. Ингибирование miR-22 уменьшало влияние куркумина на сигнальный путь Wnt/β-катенина. В исследованиях ксенотрансплантатов куркумин значительно уменьшал размер опухоли и усиливал экспрессию miR-22 в опухолях, эффективно подавляя передачу сигналов Wnt/β-катенина. Эти результаты показывают, что куркумин ингибирует пролиферацию и инвазивность RB-клеток, способствуя апоптозу, в первую очередь опосредованному за счет повышения регуляции miR-22 и последующего ингибирования пути Wnt/β-катенина.
Введение
Ретинобластома (РБ) – злокачественное новообразование у детей с высокой агрессивностью, возникающей в тканях сетчатки, представляет существенную угрозу для здоровья, особенно для детей в возрасте до пяти лет. Генетические мутации, особенно те, которые влияют на ген RB1, тесно связаны с развитием этого заболевания1. Учитывая значительную распространенность ретинобластомы (РБ) среди младенцев и детей, а также тот факт, что ежегодно регистрируется около 9000 новых случаев, преимущественно в странах с низким уровнем дохода и развивающихся странах, всестороннее понимание механизмов заболевания является обязательным для разработки эффективных терапевтических стратегий и улучшения результатов лечения пациентов2. На протяжении многих лет исследования RB в основном были сосредоточены на геномных изменениях, в частности, на экспрессии микроРНК3. Безусловно, miR-34a и miR-22 оказались жизненно важными игроками в онкогенезе RB 4,5. Среди этих микроРНК miR-22 продемонстрировала свое участие в онкогенезе при различных видах рака 6,7,8, влияя на пролиферацию, инвазию и миграцию 6,9. Более того, предыдущие исследования показали снижение экспрессии miR-22 как в мышиных, так и в человеческих RB-клеточных линиях, что еще больше подчеркивает его потенциальную роль вэтом заболевании.
Куркумин, основной биологически активный куркуминоид в корневищах Curcuma longa, является основным ингредиентом традиционной медицины и азиатской кухни11. Его богатый фармакологический профиль, охватывающий противоопухолевое, противомикробное, противовоспалительное, антиоксидантное и нейропротекторное действие, привлек значительное внимание в биомедицинских исследованиях 12,13,14. Многочисленные исследования изучали его противоопухолевую роль при RB, подчеркивая его влияние на различные сигнальные пути, включая NF-κB15, JAK/STAT16 и MRP117. По сравнению с этими ранее изученными путями, ось куркумин-miR-22/Wnt/β-катенин может предложить более целенаправленный и специфичный подход, потенциально улучшая терапевтическую эффективность и уменьшая побочные эффекты.
Предыдущие исследования показали, что куркумин достигает противоопухолевых эффектов за счет модуляции оси сигнального пути TET1/Wnt/β-катенина в клетках гепатоцеллюлярной карциномы18 и раковых клеток толстой кишки19. Тем не менее, может ли куркумин подавлять прогрессию опухоли в RB-клетках, влияя на сигнальный путь Wnt/β-катенина, остается неизвестным. В недавних исследованиях сообщалось о снижении экспрессии miR-22 в клетках ретинобластомы и плоскоклеточного рака полости рта, связанном с изменениями активности сигнального пути Wnt/β-катенина20,21. Учитывая практическую применимость, куркумин проявляет эффективную противоопухолевую активность в определенном диапазоне концентраций (10-40 мкМ in vitro)15,22 и может быть введен in vivo с управляемыми фармакокинетическими свойствами, что облегчает трансляционные исследования. Таким образом, данное исследование направлено на создание модели RB для изучения того, повышает ли куркумин уровни miR-22 и впоследствии снижает сигнальную активность Wnt/β-катенина, обеспечивая потенциально более эффективную и клинически значимую терапевтическую стратегию по сравнению с традиционными подходами модуляции NF-κB, JAK/STAT или MRP1.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Протокол
Все процедуры, связанные с животными, были рассмотрены и одобрены Комитетом по этике и благополучию животных (AEWC) Тяньцзиньской офтальмологической больницы (Approval No. NKYY-DWLL-2023-054). Используемые реагенты и оборудование приведены в Таблице материалов.
1. Культура клеток
Клетки линий ретинобластомы человека WERI-Rb-1 и SO-RB50 культивировали в модифицированной среде Dulbecco Eagle с высоким содержанием глюкозы с добавлением 10% эмбриональной бычьей сыворотки и 1% пенициллин-стрептомицина. Клетки высевали при соответствующей плотности в колбах для культур и поддерживали при температуре 37 °С во влажной атмосфере, содержащей %CO2. Среду заменяли каждые 2-3 дня, а клетки пропускали при 70%-80% конфлюенции с использованием стандартной трипсинизации.
2. Эксперименты на животных
В общей сложности было использовано 48 голых мышей Balb/c без специфических патогенов (возрастом 4 недели, 16-18 г). Животных содержали в стерильных, индивидуально вентилируемых клетках под ламинарным потоком воздуха с контролируемыми условиями окружающей среды 26-28 °C и относительной влажностью 40%-60%. Корм, вода и подстилка были стерилизованы перед использованием. Мышам был предоставлен свободный доступ к пище и воде, и они были акклиматизированы в течение недели перед экспериментами.
3. Группировка и лечение животных
Для инокуляции опухоли использовали клетки WERI-Rb-1 и SO-RB50, стабильно трансфицированные либо мимикой miR-22, либо отрицательной контрольной последовательностью. Клетки в логарифмической фазе роста собирали, ресуспендировали в стерильном фосфатно-солевом буфере и доводили до плотности 5 × 10⁷ клеток/мл. Каждой мыши подкожно вводили 0,1 мл суспензии в правую переднюю конечность. Мыши были случайным образом разделены на шесть групп (n = 6 в группе): модельная группа, группа куркумина, группа мимики miR-22, группа miR-22 имитация + куркумин, группа отрицательного контроля miR-22 и группа отрицательного контроля miR-22 + группа куркумина. В группах, получавших куркумин, мышам вводили внутрибрюшинные инъекции 15 мг/кг куркумина один раз в сутки, начиная сразу после инокуляции опухолевых клеток. Остальные группы получали равные объемы ДМСО в качестве управления транспортным средством.
4. Измерение массы и объема опухоли
Частота изъятия опухоли составила примерно 80-90% у ксенотрансплантатированных голых мышей. Размер опухоли измеряли еженедельно с помощью цифрового штангенциркуля, при этом самый длинный диаметр записывался как длина (L), а самый короткий диаметр — как ширина (W). Объем опухоли рассчитывали по формуле V = (L × W2)/2. Мышей регулярно контролировали рост опухоли и состояние здоровья, а гуманные конечные точки применяли, если опухолевые опухоли превышали 1500мм3 или если у животных проявлялись признаки дистресса или потери веса. В конце 4-й недели мышей усыпляли путем ингаляцииCO2 с последующим вывихом шейки матки, чтобы обеспечить смерть. Опухоли препарировали и взвешивали сразу после удаления.
5. Трансфекция микроРНК
Для трансфекции использовали синтетические олигонуклеотиды, в том числе miR-22, отрицательный контроль, анти-miR-22 (20-метокси-модифицированный), анти-miR негативный контроль, Wnt1-специфичные миРНК и контрольные миРНК. Клетки при 70%-80% конфлюенции засеивали в 6-луночные планшеты за сутки до трансфекции. Трансфекцию проводили с использованием реагента на основе липидов в соответствии с инструкцией производителя. Для каждой лунки нуклеиновые кислоты разводили в бессывороточной среде и соединяли с реагентом для трансфекции в рекомендуемом соотношении с образованием комплексов, которые инкубировали в течение 15-20 мин при комнатной температуре, а затем добавляли по каплям в клетки в полной среде. Итоговый объем на лунку составил 2 мл. После 6 ч инкубации при 37 °C с 5%CO2 среду заменяли свежей полной средой. Клетки поддерживали в течение 48 ч перед последующими анализами. Эффективность трансфекции оценивали с помощью количественной ПЦР в реальном времени. Три различные миРНК, нацеленные на Wnt1 (si-Wnt1-1: 5'-CCAAGAGTCTGCAACTGGTACTCGA-3'; si-Wnt1-2: 5'-CGAGAAACGGCGTTTATCTTCGCTA-3'; si-Wnt1-3: 5'-GCTTCCTCATGAACCTTCACAACAA-3') использовали по отдельности или в виде эквимолярной смеси для минимизации побочных эффектов.
6. Набор для подсчета клеток Kit-8 (CCK-8)
Клетки засеивали в 96-луночные планшеты с плотностью 5 × 10³ ячейки на лунку в 100 мкл полной среды и давали прилипнуть в течение ночи. После обработки указанными концентрациями куркумина в течение указанного времени непосредственно в каждую лунку добавляли 10 мкл рабочего раствора CCK-8. Лунки, содержащие только среду, служили пустыми контрольными отверстиями. Планшеты инкубировали при 37 °C с 5%CO2 в течение 4 ч, после чего измеряли поглощение при 490 нм с помощью считывателя микропланшетов. Жизнеспособность клеток рассчитывалась следующим образом:
Жизнеспособность (%) = 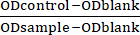 x 100
Были построены кривые «доза-реакция», и соответственно была определена полумаксимальная ингибиторная концентрация (IC50) куркумина.
7. Трансвелл-анализ
Для проведения миграционного анализа клетки суспендировали в бессывороточной среде и засеивали в верхние камеры вкладышей Transwell (размер пор 8 мкм) со скоростью 3 × 10⁵ клеток по 200 мкл на вставку. Нижние камеры заполняли 600 мкл готовой среды, содержащей 10% фетальной бычьей сыворотки в качестве хемоаттрактанта. Планшеты инкубировали при 37 °C с 5%CO2 в течение 24 ч. После инкубации немигрирующие клетки на верхней поверхности мембраны аккуратно удаляли стерильным ватным тампоном. Вкладыши дважды промывали фосфатно-соевым буфером, фиксированным в 5% глутаральдегиде при 4 °C в течение 30 минут, снова промывали и окрашивали 0,1% кристаллического фиолетового в течение 30 минут при комнатной температуре. Излишки красителя удаляли промывкой в PBS. Мембранам дали высохнуть на воздухе, а мигрировавшие клетки визуализировали под инвертированным микроскопом при увеличении 400×. Для количественной оценки были отображены три случайных поля на каждую вставку, а также рассчитано среднее количество ячеек.
8. Аннексин V-APC-PI анализ
Клетки из каждой группы собирали, дважды промывали предварительно охлажденным фосфатно-солевым буфером (PBS) и центрифугировали при 300 × г в течение 5 мин при 4 °C. Гранулу ресуспендировали в 300 мкл 1× связывающего буфера при плотности примерно 1 × 10⁶ клеток/мл. Добавляли аннексин V-APC (5 мкл) и инкубировали образцы в течение 15 мин при комнатной температуре в темноте. Непосредственно перед проточной цитометрией к 200 мкл клеточной суспензии добавляли 5 мкл йодида пропидия и инкубировали в течение 5 мин при комнатной температуре. Образцы анализировали на проточном цитометре с использованием соответствующих каналов (APC и PI), а данные обрабатывали с помощью стандартных стратегий гейтирования для различения живых, ранних апоптотических, поздних апоптотических и некротических клеток.
9. Профилирование qRT-PCR
Общую РНК экстрагировали фенол-хлороформным методом, а концентрацию и чистоту определяли методом ультрафиолетовой спектрофотометрии. Для обратной транскрипции использовали 1 мкг общей РНК в реакции объемом 20 мкл с мастер-смесью обратной транскрипции в соответствии с протоколом производителя. Количественную ПЦР проводили в 20 мкл реакциях, содержащих 2 мкл кДНК, 10 мкл мастер-смеси SYBR Green и 0,4 мкМ каждого праймера. Реакции проводили на ПЦР-системе в реальном времени со следующей циклической программой: 95 °C в течение 1 мин, затем 40 циклов при 95 °C в течение 15 с и 63 °C в течение 25 с, с получением флуоресценции в конце каждого цикла. Для проверки специфичности продукта был проведен анализ кривой плавления при температуре от 55 °C до 95 °C. Каждый образец анализировали в трех экземплярах, а относительную экспрессию количественно определяли с помощью метода 2-ΔΔCt. U6 служил референсным геном для количественного определения микроРНК, а β-актин использовался для нормализации мРНК.
Последовательности праймеров были следующими: U6: вперед 5'-CTCGCTTCGGCAGCACACA-3', обратный 5'-AACGCTTCACGAATTGCGT-3'; miR-22: вперед 5'-GCCTGAAGCTGCCAGTTGA-3', задний 5'-GTGCAGGGTCGAGGT-3'; Wnt1: вперед 5'-CGATGGTGGGGTGTGAAC-3', задний 5'-CCGGATTGGCGTATCAGAC-3'; β-актин: вперед 5'-AGTGTGACGTGGACATCCGCAAAG-3', обратный 5'-ATCCACATCTGCTGGAAGGTGGAC-3'. Данные амплификации обрабатывались с помощью программного обеспечения системы. Все грунтовки были получены от коммерческого поставщика.
10. Вестерн-блот
Белки экстрагировали из культивируемых клеток или тканей с помощью буфера для лизиса, содержащего ингибиторы протеазы, а концентрации белков определяли методом бицинхониновой кислоты. Равное количество белка (40 мкг на полосу) разделяли 10% SDS-PAGE при постоянном напряжении (80 В для стекирующего геля и 120 В для разрешающего геля) и переносили на мембраны из поливинилидендифторида с помощью мокрой системы переноса при напряжении 100 В в течение 90 мин. Мембраны блокировали в 5 % обезжиренном молоке, приготовленном в трис-буферном физрастворе с 0,1 % Tween-20 (TBST) в течение 1 ч при комнатной температуре. Первичные антитела против Wnt1, β-катенина и β-актина разводили в соотношении 1:1000 в TBST, содержащем 1% обезжиренного молока, и инкубировали с мембранами в течение ночи при 4 °C. После трехкратной промывки TBST (по 10 мин) мембраны инкубировали с пероксидазой-конъюгированным с хреном вторичным антителом (разведение 1:5000) в течение 1 ч при комнатной температуре. После еще трех промывок с помощью TBST белковые полосы были визуализированы с помощью реагента для обнаружения хемилюминесценции, а сигналы были захвачены с помощью цифровой системы визуализации. Интенсивность полос была количественно определена с помощью программного обеспечения ImageJ.
11. Анализ люциферазы
Была сконструирована репортерная плазмида дикого типа (Wnt1-WT), содержащая 3'UTR Wnt1 с предсказанными сайтами связывания miR-22, и мутантный репортер (Wnt1-MUT) с нарушенными сайтами связывания. Клетки ретинобластомы человека засеивали в 24-луночные планшеты с плотностью от 1 × 10до 5 клеток на лунку и ко-трансфицировали репортерными плазмидами Wnt1-WT или Wnt1-MUT вместе с мимикой miR-22 или отрицательным контролем с использованием реагента для трансфекции на основе липидов. Для каждой лунки использовали 500 нг репортерной плазмиды и 50 нМ микроРНК, имитирующей или контрольную. После 48 ч инкубации при 37 °C с 5 %CO2 клетки лизировали в 100 мкл буфера пассивного лизиса. Активность люциферазы Firefly и Renilla измеряли последовательно с помощью системы двойного репортерного анализа люциферазы в соответствии с протоколом производителя. Активность люциферазы светлячков нормализовали до активности люциферазы Renilla для контроля эффективности трансфекции. Каждое условие было проверено в тройных лунках и повторено в трех независимых биологических репликах.
12. Статистический анализ
Все данные представлены в виде среднего ± стандартного отклонения (SD) по меньшей мере от трех независимых биологических репликатов. Статистический анализ проводился с использованием статистического программного обеспечения. Сравнения между несколькими группами проводились с помощью одностороннего дисперсионного анализа (ANOVA) с последующим апостериорным тестом Тьюки. p-значение <0,05 считалось статистически значимым.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Результаты
Дозозависимые антипролиферативные и антиинвазивные эффекты куркумина на клетки ретинобластомы человека, сопровождающиеся деактивацией пути Wnt/β-катенина
RB-клетки человека обрабатывали различными дозами куркумина в течение 24 часов. Полученные данные выявили дозозависимое снижение жизнеспособности и инвазии клеток в сочетании с увеличением апоптоза. В частности, по мере увеличения концентрации куркумина с 10 до 50 мкМ, пролиферация клеток постепенно снижалась как в клеточных линиях SO-Rb50, так и в W...
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Обсуждение
Куркумин, полифенол, получаемый из корневищ Curcuma longa, известен своими противовоспалительными, антиангиогенными, антипролиферативными и антиоксидантными свойствами23,24. Кроме того, он обладает противоопухолевыми свойствами, в частности, способностью индуцировать апоптоз в злокачественныхклетках. Несмотря на то, что в предыдущих исследованиях подчеркивалось подавляющее рост действие куркумина на RB-кле...
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Раскрытие информации
У авторов нет конфликта интересов, о котором можно было бы заявить.
Благодарности
Национальный фонд естественных наук Китая (82271218); Научный фонд Тяньцзиньской глазной больницы (общий проект ykyb1908).
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Annexin V-APC/PI набор для двойного окрашивания | Соларбио | КА1020 | количественно оценить апоптоз в RB-клетках с помощью проточной цитометрии |
| Набор для анализа CCK-8 | Бейотим | С0038 | Измерьте поглощение при длине волны 490 нм для оценки пролиферативной способности клеток |
| CO2 инкубатор | Эппендорф | поддерживать оптимальные условия культивирования (37°; C, 5% CO2 и насыщенная влажность) для размножения RB-клеток | |
| Куркумин | Сигма | С1386 г. | Исследование противоопухолевого действия куркумина на ретинобластому (РБ) |
| Хемилюминесцентная подложка ECL | Биосс | С05-07004 | визуализируйте белковые полосы в вестерн-блоттинге |
| Фетальная бычья сыворотка (FBS) | ВиваСелл | К04001-500 К04002-500 | Клеточная культура |
| Проточная цитометрия | Бекман Коултер | Галлиос | количественно проанализировать скорость апоптоза клеток |
| Программное обеспечение ImageJ | Национальные институты здравоохранения | версия 6 | Анализ полос вестерн-блоттинга, оценка уровня экспрессии белка |
| Инвертированный микроскоп | Олимп | СКХ53 | наблюдать и подсчитывать инвазивные клетки в 400 раз; увеличение в пробе Transwell |
| Липофектамин 3000 | Инвитроген | L3000015 | Клеточная трансфекция |
| Считыватель микропланшетов | Термо | К3 | Количественное определение иммуноферментного анализа (ИФА) |
| miR-22 имитирует лентивирус | Ханьхэн Биотехнология | хас-миР-22 | Создание стабильно трансфицированной клеточной линии для экспериментов на животных |
| Мультиплексная система ПЦР в реальном времени | Био-Рад | КФХ384 | проведение количественной ОТ-ПЦР (qRT-PCR) для точного анализа экспрессии генов |
| Пенициллин-стрептомицин (PS) | Аббкин | BMC1030 | Добавляется в среды для культивирования клеток для предотвращения бактериального загрязнения |
| Набор для экстракции белка | Соларбио | БК3640-50Т | выделение белка из клеточных и тканевых образцов |
| Вектор psiCHECK-2 | ПРОМЕГА | JR20110328 | построить репортерные плазмиды Wnt1-WT (дикого типа) и Wnt1-MUT (мутантные) для исследования взаимодействия между miR-22 и Wnt1 3'UTR |
| Мембрана из ПВДФ | Мерк | ISEQ00010 | протеиновый блоттинг |
| Вторичное антитело IgG кролика | Технологии клеточной сигнализации | 14708 | Обнаружение вестерн-блоттинга путем связывания с первичным антителом |
| Статистическое программное обеспечение SPSS | IBM | Версия SPSS 20.0 | проводить статистический анализ экспериментальных данных |
| SuperScript III Набор SuperMix для синтеза первой нити | Инвитроген | 11752-050 | обратная транскрипция РНК в кДНК для последующего анализа ОТ-ПЦР |
| Набор премиксов SYBR Ex Taq II | Биография TaKaRa | РР820А | Для количественного обнаружения ОТ-ПЦР экспрессии Wnt1, β-актина и других генов-мишеней |
| Реагент ТРИзол | Инвитроген | 12183-555 | Экстракция РНК как из клеточных, так и из тканевых образцов |
| УФ-спектрофотометр | Бэкмен | ДУ800 | определить концентрацию и чистоту образцов РНК |
| Антитела Wnt1 | Абкам | АБ15251 | Вестерн-блоттинг для определения экспрессии белка Wnt1 |
| β-актиновое антитело | Абкам | АБ8227 | используется в качестве внутреннего эталона для нормализации белковой нагрузки в вестерн-блоттинге |
| β-катенин антитела | Технологии клеточной сигнализации | 37447 | Вестерн-блоттинг для определения экспрессии белка β-катенина |
Ссылки
- Dimaras, H., et al. Retinoblastoma. Nat Rev Dis Primers. 1, 15021(2015).
- Pandey, A. N. Retinoblastoma: An overview. Saudi J Ophthalmol. 28 (4), 310-315 (2014).
- Rushlow, D., et al. Detection of mosaic RB1 mutations in families with retinoblastoma. Hum Mutat. 30 (5), 842-851 (2009).
- Yin, W., Gao, F., Zhang, S. MicroRNA-34a inhibits the proliferation and promotes the chemosensitivity of retinoblastoma cells by downregulating Notch1 expression. Mol Med Rep. 22 (2), 1613-1620 (2020).
- Liu, M., Wang, S. M., Jiang, Z. X., Lauren, H., Tao, L. M. Effects of miR-22 on viability, migration, invasion and apoptosis in retinoblastoma Y79 cells by targeting high-mobility group box 1. Int J Ophthalmol. 11 (10), 1600-1607 (2018).
- Guo, S., et al. miR-22 inhibits osteosarcoma cell proliferation and migration by targeting HMGB1 and inhibiting HMGB1-mediated autophagy. Tumour Biol. 35 (7), 7025-7034 (2014).
- Poliseno, L., et al. Identification of the miR-106b~25 microRNA cluster as a proto-oncogenic PTEN-targeting intron that cooperates with its host gene MCM7 in transformation. Sci Signal. 3 (117), ra29(2010).
- Zhang, J., et al. microRNA-22, downregulated in hepatocellular carcinoma and correlated with prognosis, suppresses cell proliferation and tumourigenicity. Br J Cancer. 103 (8), 1215-1220 (2010).
- Chen, H., et al. miR-22 inhibits the proliferation, motility, and invasion of human glioblastoma cells by directly targeting SIRT1. Tumour Biol. 37 (5), 6761-6768 (2016).
- Martin, J., et al. Differentially expressed miRNAs in retinoblastoma. Gene. 512 (2), 294-299 (2013).
- Hewlings, S. J., Kalman, D. S. Curcumin: A review of its effects on human health. Foods. 6 (10), 92(2017).
- He, Y., et al. Curcumin, inflammation, and chronic diseases: how are they linked. Molecules. 20 (5), 9183-9213 (2015).
- Anand, P., Sundaram, C., Jhurani, S., Kunnumakkara, A. B., Aggarwal, B. B. Curcumin and cancer: an "old-age" disease with an "age-old" solution. Cancer Lett. 267 (1), 133-164 (2008).
- Khadrawy, Y. A., Hosny, E. N., Eldein Mohamed, H. S. Assessment of the neuroprotective effect of green synthesized iron oxide nanoparticles capped with curcumin against a rat model of Parkinson's disease. Iran J Basic Med Sci. 27 (1), 81-89 (2024).
- Mu, Y. T., et al. Curcumin suppressed proliferation and migration of human retinoblastoma cells through modulating NF-κB pathway. Int Ophthalmol. 40 (10), 2435-2440 (2020).
- Li, Y., Sun, W., Han, N., Zou, Y., Yin, D. Curcumin inhibits proliferation, migration, invasion and promotes apoptosis of retinoblastoma cell lines through modulation of miR-99a and JAK/STAT pathway. BMC Cancer. 18 (1), 1230(2018).
- Sreenivasan, S., Ravichandran, S., Vetrivel, U., Krishnakumar, S. In vitro and in silico studies on inhibitory effects of curcumin on multi drug resistance associated protein (MRP1) in retinoblastoma cells. Bioinformation. 8 (1), 13-19 (2012).
- Zhu, J., Qu, J., Fan, Y., Zhang, R., Wang, X. Curcumin inhibits invasion and epithelial-mesenchymal transition in hepatocellular carcinoma cells by regulating TET1/Wnt/β-catenin signal axis. Bull Exp Biol Med. 173 (6), 770-774 (2022).
- Lu, Y., Zhang, R., Zhang, X., Zhang, B., Yao, Q. Curcumin may reverse 5-fluorouracil resistance on colonic cancer cells by regulating TET1-NKD-Wnt signal pathway to inhibit the EMT progress. Biomed Pharmacother. 129, 110381(2020).
- Sreenivasan, S., Thirumalai, K., Danda, R., Krishnakumar, S. Effect of curcumin on miRNA expression in human Y79 retinoblastoma cells. Curr Eye Res. 37 (5), 421-428 (2012).
- Yuan, S., et al. miR-22 promotes stem cell traits via activating Wnt/β-catenin signaling in cutaneous squamous cell carcinoma. Oncogene. 40 (39), 5799-5813 (2021).
- Sreenivasan, S., Thirumalai, K., Krishnakumar, S. Expression profile of genes regulated by curcumin in Y79 retinoblastoma cells. Nutr Cancer. 64 (4), 607-616 (2012).
- Park, W., Amin, A. R., Chen, Z. G., Shin, D. M. New perspectives of curcumin in cancer prevention. Cancer Prev Res (Phila). 6 (5), 387-400 (2013).
- Gupta, S. C., Patchva, S., Aggarwal, B. B. Therapeutic roles of curcumin: Lessons learned from clinical trials. AAPS J. 15 (1), 195-218 (2013).
- Reuter, S., Eifes, S., Dicato, M., Aggarwal, B. B., Diederich, M. Modulation of anti-apoptotic and survival pathways by curcumin as a strategy to induce apoptosis in cancer cells. Biochem Pharmacol. 76 (11), 1340-1351 (2008).
- Yu, X., et al. Curcumin exerts antitumor effects in retinoblastoma cells by regulating the JNK and p38 MAPK pathways. Int J Mol Med. 38 (3), 861-868 (2016).
- Sreenivasan, S., Krishnakumar, S. Synergistic effect of curcumin in combination with anticancer agents in human retinoblastoma cancer cell lines. Curr Eye Res. 40 (11), 1153-1165 (2015).
- Jiao, D. M., et al. Exploration of inhibitory mechanisms of curcumin in lung cancer metastasis using a miRNA-transcription factor-target gene network. PLoS One. 12 (2), e0172470(2017).
- Lu, Y., et al. Curcumin increases the sensitivity of Paclitaxel-resistant NSCLC cells to Paclitaxel through microRNA-30c-mediated MTA1 reduction. Tumour Biol. 39 (4), 1010428317698353(2017).
- Suresh, R., Ali, S., Ahmad, A., Philip, P. A., Sarkar, F. H. The role of cancer stem cells in recurrent and drug-resistant lung cancer. Adv Exp Med Biol. 890, 57-74 (2016).
- Yang, Z., et al. Retinoblastoma-binding protein 5 regulates H3K4 methylation modification to inhibit the proliferation of melanoma cells by inactivating the Wnt/β-catenin and epithelial-mesenchymal transition pathways. J Oncol. 2023, 5093941(2023).
- Bai, S., Shao, J., Bi, C., Li, F. β-asarone attenuates the proliferation, migration and enhances apoptosis of retinoblastoma through Wnt/β-catenin signaling pathway. Int Ophthalmol. 43 (5), 1687-1699 (2023).
- Yang, M., Li, Y., Wei, W. MicroRNA-188-5p promotes epithelial-mesenchymal transition by targeting ID4 through Wnt/β-catenin signaling in retinoblastoma. Onco Targets Ther. 12, 10251-10262 (2019).
- Shang, S., Hua, F., Hu, Z. W. The regulation of β-catenin activity and function in cancer: Therapeutic opportunities. Oncotarget. 8 (20), 33972-33989 (2017).
- Lu, Y., Wei, C., Xi, Z. Curcumin suppresses proliferation and invasion in non-small cell lung cancer by modulation of MTA1-mediated Wnt/β-catenin pathway. In Vitro Cell Dev Biol Anim. 50 (9), 840-850 (2014).
- Hao, J., et al. Curcumin suppresses colorectal tumorigenesis via the Wnt/β-catenin signaling pathway by downregulating Axin2. Oncol Lett. 21 (3), 186(2021).
- Shao, J., et al. LincROR mediates the suppressive effects of curcumin on hepatocellular carcinoma through inactivating Wnt/β-catenin signaling. Front Pharmacol. 11, 847(2020).
- Gao, M., Cui, Z., Zhao, D., Zhang, S., Cai, Q. MicroRNA-9 inhibits proliferation and progression in retinoblastoma cells by targeting PTEN. Genes Genomics. 43 (9), 1023-1033 (2021).
- Xu, L., Zhu, S., Tang, A., Liu, W. LncRNA MBLN1-AS1 inhibits the progression of retinoblastoma through targeting miR-338-5p-Wnt/β-catenin signaling pathway. Inflamm Res. 70 (2), 217-227 (2021).
- Fu, C., Wang, S., Jin, L., Zhang, M., Li, M. CircTET1 inhibits retinoblastoma progression via targeting miR-492 and miR-494-3p through Wnt/β-catenin signaling pathway. Curr Eye Res. 46 (7), 978-987 (2021).
- Bi, L. L., Han, F., Zhang, X. M., Li, Y. Y. LncRNA MT1JP acts as a tumor inhibitor via reciprocally regulating Wnt/β-catenin pathway in retinoblastoma. Eur Rev Med Pharmacol Sci. 22 (13), 4204-4214 (2018).
- Lyv, X., et al. Long noncoding RNA ZFPM2-AS1 knockdown restrains the development of retinoblastoma by modulating the MicroRNA-515/HOXA1/Wnt/β-catenin axis. Invest Ophthalmol Vis Sci. 61 (6), 41(2020).
- He, H., Qin, M. Long non-coding RNA LEF1-AS1 is involved in the progression of retinoblastoma through regulating the Wnt/β-catenin pathway. Clin Exp Pharmacol Physiol. 47 (5), 886-891 (2020).
- Yu, F., Pang, G., Zhao, G. RETRACTED: ANRIL acts as onco-lncRNA by regulation of microRNA-24/c-Myc, MEK/ERK and Wnt/β-catenin pathway in retinoblastoma. Int J Biol Macromol. 128, 583-592 (2019).
- Cruickshank, B. M., et al. LncRNA PART1 promotes proliferation and migration, is associated with cancer stem cells, and alters the miRNA landscape in triple-negative breast cancer. Cancers (Basel). 13 (11), 2644(2021).
- Rysz, J., Konecki, T., Franczyk, B., Ławiński, J., Gluba-Brzózka, A. The role of long noncoding RNA (lncRNAs) biomarkers in renal cell carcinoma. Int J Mol Sci. 24 (1), 643(2022).
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.