Этот протокол описывает масштабируемый метод расширения продуктов Adoptive Cell Therapy (ACT), а именно клеток химерных антигенных рецепторов (CAR)-T-клеток и цитокин-индуцированных киллеров (CIK), с использованием газопропускных устройств быстрого расширения (G-Rex), демонстрируя эффективный и устойчивый рост в клинически значимых условиях.
Методическая статья
Эффективная и быстрая генерация CAR-T и цитокин-индуцированных киллер-клеток в устройствах, масштабируемых по GMP
* These authors contributed equally
В этой статье
Краткое содержание
Аннотация
Адоптивные клеточные терапии (ACT) быстро развиваются в последние годы, играя ключевую роль в иммунотерапии рака и существенно влияя на результаты лечения. Ключевым этапом в разработке клеточной терапии как на доклинических, так и на клинических этапах является производственный процесс. Традиционные методы статической культуры требуют частых манипуляций с клетками и часто ограничены снижением газообмена и питательных веществ, что может ухудшить урожайность и фенотип клеток. Здесь мы представляем пошаговый, воспроизводимый и масштабируемый протокол экс-виво расширения двух продуктов ACT, а именно клеток химерных антигенных рецепторов (CAR)-T и цитокин-индуцированных киллеров (CIK), с использованием устройств с газопроницаемым быстрым расширением (G-Rex). Устройства G-Rex специально разработаны для улучшения обмена питательными веществами и поддержки высокоплотных культур с минимальным вмешательством пользователей. Среди различных подходов ACT клетки CAR-T-клетки продемонстрировали выдающиеся успехи в лечении гематологических злокачественных опухолей, способствуя быстрому продвижению от экспериментальных исследований к клиническим применениям. Помимо клеток CAR-T, клетки CIK также широко применялись в клинических испытаниях благодаря их характерному фенотипу и отсутствию побочных эффектов, связанных с лечением, а также заболевания трансплантата против хозяина (GvHD). Этот протокол описывает ключевые технические этапы для обоих типов клеток, начиная с выделения и засевания периферических мононуклеарных клеток (PBMCs). Кратко, PBMC стимулируются антителами против CD3/CD28, затем лентивирусной трансдукцией для расширения CAR-T-клеток или интерферон-γ (IFN-γ), антитела к CD3 и интерлейкином 2 (IL-2) для получения CIK-клеток. Для мониторинга жизнеспособности и фенотипа клеток используется проточная цитометрия, а функциональные анализы проводятся для подтверждения терапевтического потенциала продукта клетки и проверки масштабируемости подхода. В целом, этот протокол предоставляет практическое решение для получения большого количества эффекторных клеток в доклинических условиях, облегчая клиническое применение в нескольких популяциях иммунных клеток. Наконец, она предлагает масштабируемое решение для производства эффекторных ячеек с высокой выходностью.
Введение
Адоптивная клеточная терапия (ACT) стала важным столпом передовых методов лечения рака. Этот подход основан на введении экс виво расширенных клеточных продуктов для достижения противоопухолевой эффективности1. На сегодняшний день в ACT использовалось множество типов клеток: от антиген-аспецифических подходов, например, естественного киллера (NK)2, цитокин-индуцированного киллера (CIK)3,4, естественного киллера T (NKT)5 или γδT-клеток 6, до высокоспецифических и персонализированных, таких как опухоло-инфильтрирующие лимфоциты (TILs)7 и инженерные терапии на основе клеток, например, химерный антигенный рецептор (CAR)1, 8 и Т-клеточных рецепторов (TCR)клеток 9,10.
CAR-T-клетки — это генетически модифицированные Т-клетки, образующиеся экс-виво вирусной трансдукцией для экспрессии синтетического иммунного рецептора, предназначенного для распознавания конкретной молекулярной цели. Структура CAR состоит из антиген-специфического одноцепочечного переменного фрагмента (scFv) антитела, объединённого с внутриклеточными сигнальными доменами, включая цепь TCRζ и костимуляторные молекулы. После взаимодействия антигена внутриклеточный домен подает сигналы активации, способствующие пролиферации Т-клеток и противоопухолевойактивности 11.
CIK-клетки — это гетерогенная популяция активированных Т-лимфоцитов, которые экспрессируются CD56 во время экспансии ex vivo из периферических мононуклеарных клеток крови (PBMC) или пуповинной крови (UCB)12. Это расширение включает стимуляцию интерфероном-γ (IFN-γ), моноклональными антителами против CD3 и интерлейкином-2 (IL-2), после чего следует посева в IL-2 в течение 14 дней. Клетки CIK функционально похожи как на NK, так и на Т-клетки, проявляя противоопухолевую активность через как независимые от основных гистосовместимостных комплексов (MHC), так и зависимыемеханизмы 13,14,15,16. Эти свойства позволяют использовать CIK-клетки как в аллогенической, так и в аутологичной терапии с минимальным риском заболевания трансплантат против хозяина (GvHD) 17.
В клинической практике как CAR-T, так и CIK клеточная терапия требует введения большого количества клеток. CAR-T-клетки вводятся в дозах 50-200 миллионов доз на одногопациента 18. Аналогично, CIK-клетки обычно вводят в дозах до 10 миллиардов клеток за инфузию, при этом пациентам часто приходится несколько инфузий в зависимости от протоколалечения 19. Традиционные методы выращивания клеток с использованием колб или пластин неэффективны, занимают много времени и требуют частого распространения, что делает масштабное расширение невозможным и увеличивает риск загрязнения. Автоматизированные или полуавтоматизированные системы с использованием мешковых культур или биореакторов позволяют масштабно расширяться, но имеют ограничения, например, сдвиговое напряжение или необходимость корректировки плотности и частых перемещений среды20,21, а также обработку одной партии за раз, что приводит к высоким затратам как в академическом, так и в промышленном контексте. В этой сложной ситуации альтернативой является газопроницаемое устройство быстрого расширения (G-Rex) — метод статической культуры с кремниевой мембраной на дне скважины, который обеспечивает эффективный обмен кислородом и увеличение высоты сосудов, обеспечивая ёмкость сред большого объема. Таким образом, система поддерживает рост клеток без замены среды или корректировки плотности22,23. Системы G-Rex-M продемонстрировали масштабируемость до 5000 мл и совместимы с автоматизированными системами сбора, обеспечивая безопасную от загрязнения и закрытую платформу культуры, которую легко переводить из академических в клинические условия для разработки передовых терапевтических лекарств (ATMP)24.
В описанной процедуре мы использовали преимущества и характеристики устройств G-Rex для оптимизации протокола расширения как CAR-T, так и CIK ячеек. Мы показали, что оба типа клеток можно эффективно расширять и масштабировать, сохраняя единый фенотип и функциональный профиль в различных системах культуры. Схематический обзор протокола расширения для ячеек CIK и CAR-T показан на рисунке 1.
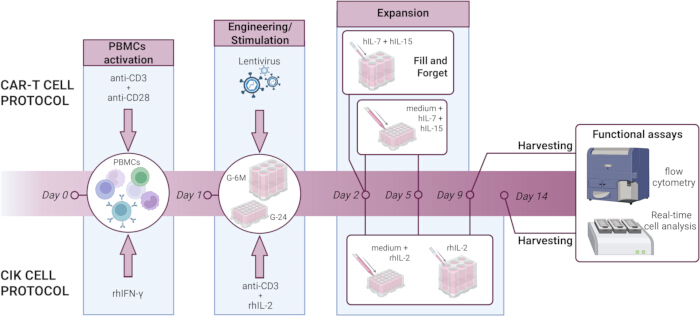
Рисунок 1: Обзор протоколов расширения ячеек CAR-T и CIK с использованием культурных устройств G-24 или G-6M. Клетки CAR-T и CIK расширяются из изолированных PBMC начиная с 0-го дня. Для расширения CAR-T-клеток PBMC стимулируются в первый день антителами против CD3 и анти-CD28, генетически модифицируются во второй день, а затем культивируются с помощью добавок hIL-7 и hIL-15 каждые 3-4 дня, с окончательным сбором для функциональных тестов на 9-й день. В формате G-6M прием цитокинов ограничен вторым днём, при этом дополнительное питание цитокином не требуется на протяжении всего периода культуры. Для расширения клеток CIK PBMC стимулируются в первый день rhIFN-γ, а во второй день — антителами против CD3 и rhIL-2, которые затем вводятся каждые 3-4 дня. В G-24 требуется среднее изменение одновременно с цитокиновой добавкой. Клетки CIK собираются на 14-й день для дальнейших функциональных анализов. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
Протокол
Анонимизированные баффи от здоровых доноров, ранее проверенных на отсутствие патогенного загрязнения (например, ВИЧ, HCV, HBV, сифилис), были получены в Кровяном банке больницы Падуи до получения письменного информированного согласия. Образцы крови были обработаны в сертифицированных шкафах для биобезопасности, а персонал носил соответствующие средства индивидуальной защиты (СИЗ).
ПРИМЕЧАНИЕ: Все процедуры, связанные с лентивирусными векторами, проводились в условиях уровня биобезопасности 2 (BSL-2) в соответствии с институциональными рекомендациями. Обращение с лентивирусными векторами требует дополнительных мер предосторожности, включая двойную рукавицу. Биологически опасные отходы (включая вирусные материалы, трансдуцированные клетки и образцы, полученные человеком) автоклавались перед утилизацией, тогда как химические отходы (включая флуоресцентные красители и реагенты) требовали отделения согласно институциональным протоколам по опасным отходам. Обратите внимание, что конкретные требования к биобезопасности могут различаться между учреждениями и должны быть проверены до внедрения протокола.
1. Изоляция PBMC
- Изолировать PBMC из здоровых донорских оболочек или образцов периферической крови с помощью центрифугации по градиенту плотности. Разведите шерсть баффи равным объёмом стерильного 1x фосфатного буферного физиологического раствора (PBS) и аккуратно нанесите разбавленную кровь поверх того же объёма лимфопрепа в конической трубке объёмом 50 мл. Разбавление 1x PBS не требуется для периферической клетки. Центрифуга при 400 x g в течение 20 минут при комнатной температуре без тормозов.
- После центрифугирования соберите слой PBMC на границе плазмы и лимфофрепа и промывайте его стерильным 1x PBS. Центрифуга и ресуспендирование ПБК в гемопоэтической клеточной культурной среде (КМ) с добавлением 1% пенициллина/стрептомицина (далее cCM). Оцените количество клеток и жизнеспособность с помощью теста исключения Trypan Blue.
2. Расширение клеток CAR-T из PBMC в сосудах для культуры G-24
- Активация PBMC (День 0)
- Ресуспензировать 2 x 10⁶ свежеизолированных PBMC в 2 мл cCM, дополненных 5% плодовой бычьей сывороткой (FBS) (далее cCM-F), что даёт окончательную плотность посева 1 x 10⁶ PBMC/см2/мл, и перенесите в колодец с 24-колодцевым сосудом G-Rex (G-24). Засевайте столько колодцев, сколько разных условий трансдукции нужно выполнять на первый день (шаг 2.2 — день 1).
- Добавьте 4 мкл анти-CD3 (чистофункциональный класс, конечная концентрация: 0,2 мкг/мл) и 20 мкл анти-CD28 (чистофункциональный класс, конечная концентрация: 1 мкг/мл) непосредственно в каждую яму, чтобы активировать Т-клетки. Культивировать клетки в увлажнённом инкубаторе при температуре 37 °C, 5%CO2.
- Трансдукция Т-клеток с лентивирусными векторами (День 1)
- После ночной стимуляции собрать и подсчитать активированные Т-клетки с помощью теста исключения Trypan Blue для оценки жизнеспособности. Рассчитайте 1 x 10⁶ жизнеспособных активированных ячеек для каждой ямы G-24 (площадь скважины 2см²), что соответствует плотности посева 0,5 x 10⁶ клеток/см². Перенесите клетки в трубку и центрифугите при 300 г в течение 5 минут.
- Подготовьте трансдукционную среду для каждой скважины, комбинируя соответствующий объём лентивирусного вектора на основе концентрации (TU/mL) лентивирусного препарата (здесь CD19-CAR-BBζ лентивирус, полученный из Детской исследовательской больницыСвятого Иуда 25; мультиплицитность инфекции (MOI) 20), с 5 мкл усилителя трансдукции протаминсульфата (8 мг/мл стандартного раствора получается растворением сульфата протамина в 1x PBS и стерильно фильтруется с помощью фильтра 0,2 мкм; окончательная концентрация). 50 мкг/мл). Используйте среду для CM, дополненную 5% FBS без добавления пенициллина/стрептомицина, чтобы довести итоговый объём 0,8 мл/скважина (0,4 мл/см²). Для нетрансдуцированного (UTD) контроля подготовьте описанную трансдукционную среду, избегая добавления лентивирусного вектора.
- Ресуспензировать гранулированные клетки (шаг 2.2.1) в 0,8 мл/скважину трансдукционной среды и поместить их в новую скважину G-24. Инкубировать ночью при 37 °C, 5%CO2.
ПРИМЕЧАНИЕ: Если планируется трансдукция нескольких колодц с одним и тем же лентивирусным вектором, подготовьте мастер-смесь трансдукционной среды, содержащей вирус и сульфат протамина, в нужной концентрации. Тщательно перемешайте для обеспечения равномерности. Затем в каждую пробирку гранулированных клеток вводите 0,8 мл этой мастер-смеси, чтобы обеспечить стабильные условия трансдукции во всех образцах.
- Культура и расширение клеток CAR-T (со дня 2 по день 9)
- На второй день увеличите объём посева до конечного объёма 8 мл/скважину, добавив 7,2 мл свежего cCM-F, дополненного человеческим интерлейкином-7 (hIL-7) и человеческим интерлейкином-15 (hIL-15) с конечной концентрацией по 10 нг/мл каждый (объём цитокинов рассчитан с учётом общего объёма 8 мл на скважину).
- На пятый день обновите посевную среду, аккуратно удаляя 6 мл кондиционированной среды из каждой скважины, не нарушая клетки на дне скважины, и заменяя её 6 мл свежего cCM-F с дополнением hIL-7 и hIL-15 (окончательная концентрация: 10 нг/мл, рассчитанная с учётом общего объёма 8 мл на скважину). Если вы работаете с несколькими колодцами, подготовьте мастер-микс среды cCM-F, дополненную цитокинами hIL-7 и hIL-15, чтобы обеспечить равномерное распределение цитокинов.
- На 9-й день ячейки CAR-T эффективно расширяются и готовы к последующим применениям. Для сбора клеток CAR-T аккуратно удаляйте и отбрасываете 5 мл кондиционированной среды. Используя пипетку объемом 1000 мкл, подвесьте CAR-T в оставшиеся 3 мл среды и переместите их в трубку на 15 мл. Подсчитайте клетки CAR-T и проверьте их жизнеспособность с помощью теста исключения Trypan Blue. Обычно из каждой ямы G-24 получают около 3 x 10⁷ CAR-T клеток (3,24 ± 1,67 x 10⁷ клеток).
3. Расширение CIK в культурных сосудах G-24
- Активация PBMC (День 0)
- Семена 1 x 10⁶ свежеизолированных PBMC в каждую скважину сосуда G-24, плотность которой соответствует плотности 0,5 x 10⁶/см 2, в 8 мл цКМ с добавлением рекомбинантного человеческого интерферона-γ (rhIFN-γ, итоговая концентрация: 1000 МЕ/мл). Инкубировать клетки при 37 °C, 5%CO2.
- Стимуляция и расширение ЦИК-клеток (с первого по 14-й день)
- На первый день, через 22–24 часа после стимуляции rhIFNγ, напрямую в каждую яме добавьте 4 мкл антитела к CD3 (итоговая концентрация: 50 нг/мл) и 4 мкл рекомбинантного человеческого интерлейкина-2 (rhIL-2, итоговая концентрация: 500 МЕ/мл). Инкубировать клетки при 37 °C, 5%CO2.
- Каждые 3–4 дня (в день 5, 9 и 12 клеточной культуры) заменяйте 6 мл кондиционированной среды свежими cCM и rhIL-2 (итоговая концентрация: 500 МЕ/мл), рассчитывая конечную концентрацию rhIL-2 относительно полного объема 8 мл.
- На 14-й день собирайте клетки CIK, удаляя 5 мл кондиционированной среды и возвращая их в оставшиеся 3 мл кондиционированной среды. Перенесите клетки в трубку на 15 мл и оцените общее количество клеток и жизнеспособность с помощью анализа исключения Trypan Blue. Обычно из каждой скважины получается около 8 x 10⁷ объёмных CIK-клеток (8,6 ± 4,58 x 10⁷ клеток) (Дополнительная таблица 2).
ПРИМЕЧАНИЕ: Во время изменений среды аккуратно аспирируйте супернатант, стараясь не нарушать популяцию клеточного слоя и не контактировать с газопроницаемой мембраной. Повреждение мембраны может ухудшить газообмен и негативно сказаться на жизнеспособности клетки.
4. Крупномасштабное производство ячеек CAR-T и CIK
ПРИМЕЧАНИЕ: Протоколы расширения ячеек CAR-T и CIK, описанные в разделах 2 и 3, легко масштабируются до более крупных устройств для культуры G-Rex, а именно формата G-6M. При переходе от формата G-24 (площадь поверхности: 2см²) к устройству G-6M (площадь поверхности: 10см²) все концентрации и плотности сохраняются постоянными, при этом все объёмы и абсолютные величины пропорционально увеличиваются в 5 раз для соответствия увеличенной площади поверхности. Это означает, что плотность посева клеток, концентрации субсидеров среды и концентрации цитокинов остаются неизменными, но общие объёмы среды, количество засеянных клеток и абсолютное количество добавленных цитокинов будут пропорционально масштабированы. Эта функция масштабируемости обеспечивает плавный переход от маломасштабных исследовательских протоколов к доклиническому или раннему клиническому производству без необходимости значительных изменений протокола, тем самым сохраняя стабильные характеристики эффекторных клеток.
- Расширение ячеек CAR-T в устройствах формата G-6M
- Выполните активацию PBMC на 0-й день и лентивирусную трансдукцию в первый день, как описано в Разделе 1, сохраняя все концентрации и плотности, одновременно увеличивая объёмы и абсолютные величины в пятикратном разряде.
- На второй день увеличите объём посева до 100 мл с использованием среды cCM-F. Рассчитайте и добавьте hIL-7 и hIL-15, чтобы получить итоговую концентрацию 10 нг/мл соответственно.
ПРИМЕЧАНИЕ: В отличие от формата G-24, более высокая конструкция устройства G-6M обеспечивает больший средний объём, обеспечивая стабильную поставку питательных веществ и цитокинов на протяжении всего периода культурирования без необходимости замены среды (подход «Fill and Forget »). Поэтому на пятый день дополнительные цитокины не требуются. - Чтобы собрать клетки CAR-T на 9-й день, сбросьте около 90 мл среды из каждой скважины с помощью серологической пипетки и вновь суспензуйте клетки в оставшихся 10 мл. Перенесите клетки в трубку объёмом 15 мл и используйте их для последующих анализов.
- Расширение элементов CIK в устройствах формата G-6M
- Проведите засев PBMC на 0-й день по протоколу, описанному в разделе 3, и масштабируйте все объемы и реагенты в пятикратный раз, чтобы соответствовать более крупному формату устройства (G-6M).
- В первый день скорректируйте объём посева до 100 мл с помощью cCM-среды. Добавьте в каждую скважину конечную концентрацию 500 МЕ/мл rhIL-2 и 50 нг/мл анти-CD3.
- Добавляйте 500 МЕ/мл rhIL-2 каждые 3-4 дня (5, 9 и 13 дней) в каждую скважину без средних изменений.
- Собирайте клетки CIK на 14-й день, удаляя около 90 мл среды из каждой скважины с помощью серологической пипетки. Суспензировать клетки в оставшихся 10 мл, переместить их в трубку на 15 мл и использовать для последующих анализов.
5. Характеристика фенотипа эффекторных клеток с помощью потоковой цитометрии
ПРИМЕЧАНИЕ: В конце протокола расширения проводится анализ поверхностных маркеров с помощью цитометрии потока на клетках CAR-T и CIK для оценки их фенотипа, включая различные состояния дифференцировки, то есть наивную (CD45RA+CD62L+), центральную память (CM, CD45RA-CD62L+), эффекторную память (EM, CD45RA-CD62L-) и эффекторную память CD45RA-положительный (EMRA, CD45RA+CD62L-; Дополнительный рисунок 1A-B).
- Соберите 3 x 10⁻⁵ ячеек для каждой трубки для окрашивания. Промыйте клетки в 1x PBS с 1% FBS (PBS-F), центрифугуйте при 300 x g в течение 5 минут и повторно суспензуйте клеточную гранулу в 50 мкл раствора смеси антител, приготовленной в буфере для окрашивания (1 часть буфера Brilliant и 1 часть PBS-F) согласно желаемой панели для окрашивания (Таблица 1 и Таблица 2).
- Инкубировать клетки в течение 20 минут при 4 °C, защищённых от света, затем промыть окрашенные клетки и центрифуга. Если требуется второй этап окрашивания, проведите окрашивание с использованием специфической смеси антител, как описано ранее (шаг 5.1).
- Наконец, промывайте клетки и окрашивайте красителем для жизнеспособности, здесь Fixable Viability Stain 780 (FVS780), в 50 мкл 1x PBS, инкубируемый 15 минут при 4 °C, защищённый от света. После нанесения морилки на жизнеспособность этап стирки не требуется. После инкубации добавьте 200 мкл 1x PBS в каждый образец и приступите к проточному цитометрическому отбору. Подробная стратегия гейтинга показана на дополнительном рисунке 1A-B.
| Цель | Клон | Флуорохром | Концентрация/разбавление | Цель | |
| Первый этап окрашивания | rhCD19-His | / | / | 2 мкг/мл | Обнаружение молекул CAR |
| Инкубация при 4 °C в течение 20 минут | |||||
| Шаг стирки | |||||
| Второй этап окрашивания | Его | GG11-8F3.5.1 | Физкультура | 1/50 | Обнаружение молекул CAR |
| CD3 | UCHT1 | BV510 | 1/40 | Происхождение | |
| CD4 | SK3 | BV650 | 1/40 | Происхождение | |
| CD8 | RPA-T8 | BV421 | 1/20 | Происхождение | |
| CD45RA | HI100 | PerCP-Cy5.5 | 1/83 | Созревание | |
| CD62L | DREG-56 | FITC | 1/10 | Хоминг, активация | |
| Инкубация при 4 °C в течение 20 минут | |||||
| Шаг стирки | |||||
| Третий этап окрашивания | FVS780 | / | / | 1/5000 | Дискриминация между живыми и мёртвыми клетками |
| Инкубация при 4 °C в течение 15 минут | |||||
Таблица 1: Панель антител, используемый для окрашивания CAR-T-клеток. Панель окрашивания, используемая для оценки экспрессии CAR, фенотипа Т-клеток и статуса дифференцировки. Для каждой интересующей цели сообщаются клоны, концентрация антитела и конъюгированный фторхром.
| Цель | Клон | Флуорохром | Разбавление | Цель | |
| Первый этап окрашивания | CD56 | HCD56 | Физкультура | 1/40 | Происхождение |
| NKG2D | 1D11 | БТР | 1/83 | Активация | |
| CD3 | UCHT1 | BV510 | 1/40 | Происхождение | |
| CD4 | SK3 | BV650 | 1/40 | Происхождение | |
| CD8 | RPA-T8 | BV421 | 1/20 | Происхождение | |
| CD45RA | HI100 | PerCP-Cy5.5 | 1/83 | Созревание | |
| CD62L | DREG-56 | FITC | 1/10 | Хоминг, активация | |
| Инкубация при 4 °C в течение 20 минут | |||||
| Шаг стирки | |||||
| Второй этап окрашивания | FVS780 | / | / | 1/5000 | Дискриминация между живыми и мёртвыми клетками |
| Инкубация при 4 °C в течение 15 минут | |||||
Таблица 2: Панель антител, используемый для окрашивания CIK-клеток. Панель окрашивания, используемая для оценки субпопуляций CIK, фенотипа и статуса дифференцировки. Для каждой интересующей цели сообщаются клоны, концентрация антитела и конъюгированный фторхром.
6. Оценка специфической цитотоксической активности клеток CAR-T и CIK
ПРИМЕЧАНИЕ: Цитотоксическая активность клеток CAR-T и CIK измеряется их сокультурой с целевые клетки при желаемом соотношении эффектор-целевой (E:T) клетки. Тип анализа зависит от типа целевых клеток — получены ли они из солидных опухолей или гематологических злокачественных опухолей. В этом протоколе мы описываем анализ проточной цитометрии на основе флуоресцентных красителей для суспензионных клеток и импедансный анализ клеток в реальном времени (RTCA) для адгезионных клеток.
- Анализ потоковой цитометрии на основе флуоресцентных красителей
ПРИМЕЧАНИЕ: Антиген-специфическая цитотоксичность против гематологических злокачественных заболеваний может быть оценена с помощью флуоресцентноклеточного цитометрического анализа на основе цветных красителей. Перед совместной культурой целевые клетки маркируются флуоресцентным красителем для их идентификации. После совместной культуры с эффекторными клетками смерть целевых клеток оценивается с помощью окрашивателя с помощью красителя жизнеспособности. Потоково-цитометрический анализ позволяет количественно оценивать антигеноспецифическое уничтожение на основе доли нежизнеспособных флуоресцентных клеток, положительных к красителям.- Для каждого условия совместной культуры соберите 2 x 10⁵ целевых клеток и ресуспензируйте их в 400 мкл полной культурной среды для достижения конечной концентрации 5 x 10⁵ клеток/мл. Добавьте флуоресцентный краситель при конечной концентрации 5 мкм (здесь краситель Cell Trace Violet, CTV). Инкубировать 30 минут при 37 °C, защищая от света. После инкубации промыйте клетки полной средой и снова суспензуйте гранулу в конечной концентрации 4 x 10⁵ клеток/мл.
- В чистые пробирки по 5 мл (здесь 2 x 10⁵ ячеек Раджи в модели CD19+ суспензионной ячейки) в чистые трубки по 5 мл согласно экспериментальной схеме. Подтвердить успешное окрашивание с помощью проточной цитометрии, идентифицируя целевые клетки как клетки, положительные к флуоресцентному красителю (SSC-A против CTV). Рекомендуется около 98% флуоресцентных красительных клеток.
- Параллельно подсчитайте и подготовьте эффекторные клетки (здесь 5 x 10⁶ клеток CD19 CAR-T) для каждого условия совместной культуры. Промыйте клетки и снова суспензируйте их в полной культурной среде в соответствующей концентрации, чтобы соответствовать желаемому соотношению эффектор-мишень (E:T). Добавьте 500 мкл суспензии эффекторной ячейки к каждой соответствующей трубке, содержащей целевые клетки.
- Для достижения соотношения E:T 25:1 добавьте 5 x 10 6-эффекторных CD19 CAR-T ячеек к 2 x 10⁵ Раджи в каждой трубке и подготовьте столько ламп, сколько требуется экспериментальная конструкция.
- Инкубировать совместные культуры в течение 6 часов при 37°C в увлажнённом инкубаторе с 5%CO2. Включить контрольное условие, содержащее только целевые клетки, для измерения спонтанной клеточной гибели. Этот контроль важен для различия фоновой смерти от цитотоксичности, специфичной для эффекторной клетки.
- Промывайте кокультивированные клетки и окрашивайте их красителем FVS780, разбавленной в 1x PBS (окончательное разбавление 1:5000). Инкубировать 15 минут при 4 °C, защищая от света. Промыйте клетки и снова суспензируйте последнюю ячейку в 600 мкл буфера PBS-F. Продолжите анализ с помощью потоковой цитометрии для оценки цитотоксичности, специфической к эффекторным клеткам.
- Выполните стратегию гейтинга проточного цитометра следующим образом: определите целевые клетки как клетки, положительные к флуоресцентному красителю (SSC-A против CTV), а затем в этой популяции вычислите процент мёртвых целевых клеток (SSC-A против FVS780, дополнительный рисунок 1C). Вычислите специфический лизис, вычитая спонтанную смерть целевых клеток (%FVS780+ внутри CTV+ в состоянии только для цели) от эффекторно-специфической цитотоксичности (%FVS780+ внутри CTV+ в условиях кокультуры эффектора и мишени).
- Анализ клеток в реальном времени (RTCA)
ПРИМЕЧАНИЕ: Анализ RTCA — это метод оценки цитотоксической активности эффекторных клеток против адгерирующих целевыхклеток 26. Гибель целевых клеток обнаруживается как различие в сигнале импеданса, вызванное отделением клеток от E-пластины, хорошо вовлечённой в устройство xCELLigence. Проведите анализ RTCA согласно рекомендованному производителем протоколу для обеспечения оптимальной производительности и воспроизводимости.- Субкультура целенаправленно нацеливается на клетки за день до анализа (день -1), чтобы к 0-му дню они достигли 60%-80% слияния. Этот этап критически важен для поддержания активной пролиферации клеток в начале эксперимента. Рекомендуется использовать целевые клетки между 5-20 проходами, с минимумом 1 неделей (3-4 пассажа) после оттаивания для оптимальной работы клетки.
- В день 0 аккуратно добавьте 50 мкл культурной среды в каждую ямку E-Plate, включите пластину внутри устройства и получите фоновый сигнал. Затем перенесите пластину обратно на капот для этапа посева ячейки.
- Посчитайте целевые клетки и перенесите необходимое общее количество в чистую трубку. Ресуспензировать клетки в соответствующем объёме культурной среды для достижения нужной концентрации для засева в E-Plate и перенести 100 мкл целевых клеток в каждую яме (здесь 4 x 10⁴ клеток MCF-7 в качестве модели клеточной линии опухолевых клеток). Держите пластину внутри вытяжки при комнатной температуре не менее 30 минут, чтобы обеспечить равномерное присоединение целевых ячеек. Включите пластину внутри устройства при 37 °C в инкубатореCO2 и начните процесс реального времени (интервал набора 15 минут в течение 22 часов).
ПРИМЕЧАНИЕ: Проведите титрование целевых клеток перед использованием новой линии целевых клеток, как рекомендовано производителем. - В первый день (примерно через 20–22 часа после засева целевых клеток) посчитайте эффекторные клетки и реуспендируйте их в свежей культурной среде, корректируя концентрацию клеток для достижения желаемого соотношения эффектора к целевой (E:T). Например, чтобы достичь соотношения E:T 10:1, добавьте 4 x 10⁵ эффекторных CIK-ячейок к 4 x 10 4 целевых ячейки MCF-7 для каждой скважины.
- Подготовьте каждое состояние обработки техническими дубликатами с помощью стерильной пластины с U-образным дном на 96 лунок и уравновесьте её в течение 15 минут при 37°C. Для каждого условия с помощью многоканальной пипетки подают 50 мкл суспензии эффекторной ячейки для каждого состояния. Поставьте E-Plate обратно в прибор и продолжите получение в реальном времени (интервал захвата 15 минут в течение 24 часов). Рассчитайте специфический лизис с помощью следующего уравнения:
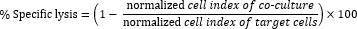
Результаты
Описанный здесь протокол обеспечивает эффективный и надёжный рабочий процесс для экс-виво расширения и инженерии эффекторных ячеек из изолированных PBMC, а именно CAR-T и CIK-клеток. Этот метод требует минимальной обработки клеток и использует газообменную способность устройств G-Rex, обеспечивая превосходную доступность питательных веществ и оксигенацию по сравнению с традиционными статическими системамикультуры 23,24. Ключевым преимуществом этого протокола является его врождённая масштабируемость от небольших 24-луночных устройств (G-24), подходящих для доклинических исследований, до более крупных устройств с 6M (G-6M), совместимых с трансляционными или клиническими производственными потребностями, без необходимости изменений протокола, кроме пропорционального масштабирования.
С помощью этого протокола как клетки CAR-T, так и CIK были успешно расширены параллельно из здоровых донорских PBMC в форматах G-24 и G-6M, как описано в разделах 2-4. К концу периода культивирования оба типа клеток демонстрировали высокую форму расширения и жизнеспособность с сопоставимой пролиферацией между двумя форматами устройств (Рисунок 2, Дополнительная таблица 1, Дополнительная таблица 2), что подчёркивает воспроизводимость протокола на разных масштабах культуры.
Для подтверждения масштабируемости устройств для культуры эффекторные клетки были дополнительно охарактеризованы фенотипически и функционально. Для клеток CD19 CAR-T мы количественно оценили экспрессию CAR и оценили подмножества CD4+ и CD8+, отметив преимущество CD19 CAR+ CD8+ Т-клеток (рисунок 3A-B, дополнительная таблица 1). Для CIK-клеток мы оценивали частоту популяций T (CD3+CD56-), NK (CD3-CD56+) и CIK (CD3+CD56+) (рисунок 3D), а также экспрессию активирующего рецептора NKG2D (рисунок 3E, дополнительная таблица 2). Кроме того, мы наблюдали общие сопоставимые фенотипы и экспрессию специфических популяционных маркеров между форматами культуры G-24 и G-6M для клеток CAR-T и CIK. Статус дифференцировки продуктов клеток CD19 CAR-T и CIK был проанализирован с помощью окрашивания CD62L и CD45RA (рисунок 3C-F, дополнительная таблица 1, дополнительная таблица 2), что выявило схожие фенотипы памяти и эффекторов между клетками, культивируемыми в форматах G-24 и G-6M. Эти результаты показывают, что масштабирование процесса не нарушает фенотипическую целостность или статус дифференцировки расширенных популяций эффекторных клеток.
Наконец, для оценки функциональной потенции мы использовали цитотоксичные тесты, специфичные для целей. И CD19 CAR-T, и CIK клетки, расширенные в любом из устройств, демонстрировали сильную цитолитическую активность, подтверждая сохранение функциональных свойств в разных масштабах (см. рисунок 4). В целом эти результаты подтверждают пригодность расширенных продуктов для дальнейших приложений в доклинических моделях и, возможно, для клинических испытаний.
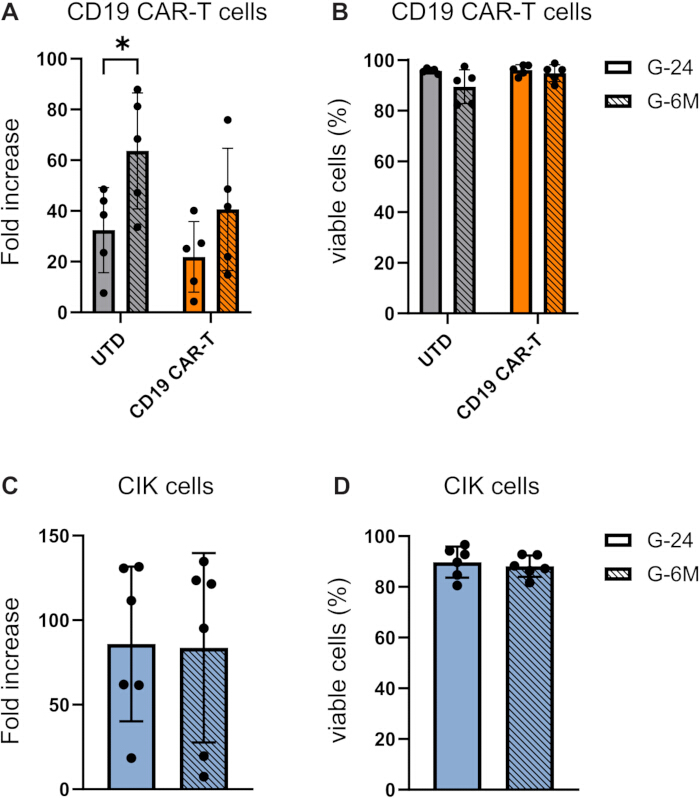
Рисунок 2: Пролиферация и жизнеспособность клеток CD19 CAR-T и CIK . Клетки CAR-T (n = 5) и клетки CIK (n = 6), расширенные из PBMC в пластинах G-24 и G-6M, были собраны соответственно на 9-й и 14-й день расширения для проведения подсчёта клеток и оценки увеличения (A-C) и процента (B-D) жизнеспособных клеток. Гистограммы представляют среднее ±выражение стандартного отклонения (SD), а точки обозначают отдельных доноров (см. Дополнительную таблицу 1 и Дополнительную таблицу 2 для индивидуальных значений). Данные анализировались с помощью двухстороннего многопарного t-теста (A-C) или с несколькими двухсторонними парами Уилкоксона (B-D), с коррекцией Холма-Сидака для множественных сравнений (*p < 0,05). Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.

Рисунок 3: Оценка фенотипа клеток CD19 CAR-T и CIK, расширенного в устройствах G-24 и G-6M. Экспрессия молекул CAR на клетках CAR-T CD19 (n = 5) была проанализирована с помощью потоковой цитометрии для оценки (A) эффективности трансдукции в протоколах расширения G-24 и G-6M, а также экспрессии (B) CD4+/CD8+ и (C) наивных/память субпопуляций в подгруппе CD3+CAR+. Фенотип объёмных клеток CIK (n = 6) был проанализирован с помощью потоковой цитометрии для изучения (D) процента CIK (CD3+CD56+), NK (CD3-CD56+) и T (CD3+CD56-), а также экспрессии (E) NKG2D и (F) наивной/памятной субпопуляции в подгруппе CD3+CD56+ (G-24 n=5, G-6M n=6). Наивная (CD45RA+CD62L+), центральная память (CM, CD45RA-CD62L+), эффекторная память (EM, CD45RA-CD62L-) и эффекторная память CD45RA-положительная (EMRA, CD45RA+CD62L-). Гистограммы представляют среднее выражение ± SD, а точки — одиночные доноры (см. Дополнительные таблицы 1 и Дополнительные таблицы 2 для индивидуальных значений). Данные анализировались с помощью двухстороннего многопарного t-теста (B-C-D-F) или двуххвостого теста с совпадением ранга Уилкоксона (A-E), с коррекцией Холма-Сидака для множественных сравнений (*p < 0,05). Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
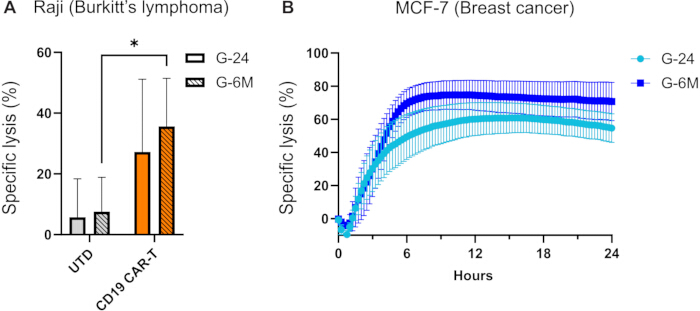
Рисунок 4: Оценка цитотоксичности CAR-T CD19 и CIK клеток .(A) Специфический лизис клеток CAR-T CD19 (оранжевый, n = 5) или нетрансдуцированных (UTD) клеток (серый, n = 5) против линии клеток Раджи лимфомы Бёркитта (как модель суспензионной клеточной линии) был проведён с помощью 6-часового проточного цитометрического теста. Результаты представлены как среднеспецифическая лизия ± SD. (B) Цитотоксичность CIK-клеток, культивируемых либо в G-24 (светло-голубой, n = 7), либо в G-6M (тёмно-синий, n=6) по клеточной линии MCF-7 рака молочной железы (как модель клеточной линии), отслеживалась каждые 15 минут в течение 24 часов с помощью анализатора клеток реального времени. Результаты представлены как средне-специфический лизис ± SEM. Данные анализировались с помощью теста Манна–Уитни, коррекции Хольма–Сидака для множественных сравнений (*p < 0,05). Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
Дополнительный рисунок 1: Стратегия гейтинга, используемая для анализа потоковой цитометрии. Репрезентативные графики, иллюстрирующие стратегии гейтинга для (A) CAR-T-клеток и (B) фенотипической характеристики CIK-клеток, а также (C) цитотоксичного анализа на основе цветных красителей флуоресцентных клеток. Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительная таблица 1: Рост, жизнеспособность и фенотип культур клеток CD-19 CAR-T от отдельных доноров. Общее количество клеток, увеличение складок, жизнеспособность и фенотипическая характеристика CD19-CAR T-клеток, собранных на 9-й день культуры в устройствах G-24 и G-6M, показаны для каждого донора. Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительная таблица 2: Рост, жизнеспособность и фенотип культур клеток CIK у отдельных доноров. Общее количество клеток, увеличение складок, жизнеспособность и фенотипическая характеристика CIK-клеток, собранных на 14-й день культуры в устройствах G-24 и G-6M, показаны для каждого донора. Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Обсуждение
Этот протокол определяет реализацию эффективной и масштабируемой платформы для генерации двух различных продуктов ACT, а именно CAR-T и CIK-ячеек, из PBMC, использующих системы культуры G-Rex. Мы реализовали функциональные и фенотипические тесты на основе доказательства концепции для проверки масштабируемости подхода. Мы показали, что при масштабировании сохраняются как фенотип, так и активность расширенных клеток, обеспечивая пригодность системы для исследовательских приложений и прямого клинического перевода. Действительно, мы успешно продемонстрировали, что как клетки CAR-T, так и CIK могут быть эффективно расширены при высоком выходе клеток, сохраняя при этом функциональный эффекторный фенотип и сильную антиген-специфическую цитотоксичность на различных устройствах для культуры.
В сочетании с газопроницаемой мембранной технологией выращиваемых устройств, этот протокол расширения обеспечивает более ускорённую кинетику расширения, снижает ручное обращение и обеспечивает стабильный высокий урожай среди доноров. Эти особенности делают протокол высоковоспроизводимым и менее трудоёмким по сравнению со стандартными системамикультуры 20,21, которые часто включают обмен множественными носителями и повышенный риск потери и загрязнения клеток.
Кроме того, этот протокол обеспечивает бесшовный переход между производственными масштабами: от небольших открытых систем (G-24, подходящий для доклинических исследований и скрининга, например, конструкций CAR, комбинаций цитокинов или вариабельности донора) к более крупным открытым системам (G-6M, для предварительной валидации GMP), и, в конечном итоге, к крупномасштабным закрытым системам (для производства GMP). Как описано в данном исследовании, переход от малых к крупномасштабным открытым системам требует лишь пропорциональной корректировки объёмов и входа ячеек относительно размера устройства, что является значительным практическим преимуществом. Аналогично, единственной реализацией, необходимой для перехода от открытых к закрытым системам производства по GMP, а значит, и адаптации протокола G-6M к крупномасштабному производству GMP, является использование соответствующих реагентов класса GMP и устройств закрытой системы (G-10M-CS с площадью поверхности 10см 2 дюйма, что соответствует одной скважине G-6M, или G-100M-CS с площадью 100 см², соответствующая открытому аналогу G-100M) без дальнейших изменений самого протокола. Эти закрытые устройства отличаются от открытых аналогов интеграцией стерильных трубок для автоматизированной обработки среды, которые работают совместно с насосом для обработки жидкостей (GatheRex), создавая полностью закрытую среду. Такой подход к замкнутой системе устраняет ручной обмен носителями и снижает риски загрязнения, что делает его идеальным для производственных сред, соответствующих требованиям GMP, где стерильность и воспроизводимость имеют первостепенное значение. В частности, масштабируемость является ключевым элементом для преодоления разрыва между ранними этапами открытия и клинической трансляцией, особенно в академических или ранних биотехнологических средах с ограниченными ресурсами.
Дальнейшая реализация этого протокола для полного соответствия GMP должна рассмотреть переход от среды, содержащей FBS, к формулам без сыворотки/ксено, в соответствии с текущими регуляторными тенденциями FDA и EMA, чтобы устранить вариативность от партии к партии, устранить потенциальные риски ксеногенного загрязнения и повысить соответствие нормативнымтребованиям 27.
Кроме того, минимальное вмешательство, необходимое для предлагаемой системы расширения, предоставляет идеальную платформу для реализации многомерного фенотипического профилирования28 путём снижения артефактов, вызванных процедурами, которые могут запутать фенотипический анализ во время производственных процедур. Кроме того, помимо клеток CAR-T и CIK, система может быть высокоадаптивной к другим популяциям лимфоцитов и модифицированным иммунным клеткам, расширяя её полезность в развитии иммунотерапии29,30.
Хотя протокол надёжен и не требует изменений, несколько шагов особенно критически важны для успеха. Для расширения CIK-клеток важно определить время добавления цитокинов для обеспечения оптимальной дифференцировки и расширения. Для CAR-T-клеток трансдукция должна происходить через 24 часа после активации для максимизации эффективности, а лентивирусные аликвоты следует размораживать только один раз, так как повторные циклы заморозки-оттаивания значительно снижают эффективностьтрансдукции 31.
Биологическая вариабельность первичных клеточных препаратов естественным образом способствует различиям в скоростях расширения и функциональной активности, отражая разнообразие доноров. Эту неизбежную и внутреннюю вариабельность можно эффективно контролировать, проводя параллельные расширения от нескольких доноров, обеспечивая устойчивые и воспроизводимые результаты в экспериментах.
В заключение, этот протокол обеспечивает быстрое, масштабируемое и надёжное расширение функциональных эффекторных лимфоцитов непосредственно из PBMC, обеспечивая гибкость как для ранних исследований, так и для масштабного клинического трансляции. Эта система легко адаптируется к различным типам клеток и генетическим модификациям, предоставляя универсальную платформу для разработки иммунотерапии.
Благодарности
Конструкция CAR была предоставлена по программе MTA Детской исследовательской больницей Святого Иуда. Эта работа была поддержана грантом ScaleReady G-Rex 2025; Падуанский университет — SOMMAGGIO_BIRD24_01; Фонд AIRC в рамках программы 5x1000 2019 — ID. 22759; Alleanza Contro il Cancro, Progetto CAR-T_2 RCR-2023-23684268. Это исследование получило финансирование «Ricerca Corrente» от Министерства здравоохранения Италии для покрытия расходов на публикацию. Фигурки создавались с помощью программного обеспечения GraphPad Prism 9 и BioRender.com.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Brilliant Stain Buffer | BD Biosciences | 566349 | |
| Антитела к CD28, античеловеческие | Miltenyi Biotech | 130-093-375 | Клон 15E8 |
| Антитела к CD3, античеловеческие | Miltenyi Biotech | 130-093-387 | Клон OKT3 |
| CD3 BV510 | BD Biosciences | 740147 | Клон UCHT1 |
| CD314 APC (NKG2D) | Биолегенда | 320808 | Клон 1D11 |
| CD4 BV650 | BD Biosciences | 563875 | Клон SK3 |
| CD45RA PerCP-Cy5.5 | BD Biosciences | 563429 | Клон HI100 |
| CD56 PE | Биолегенда | 318306 | Клон HCD56 |
| CD62L FITC | BD Biosciences | 555543 | Клон FREG-56 |
| CD8 BV450 | BD Biosciences | 562428 | Клон RPA-T8 |
| Набор для пролиферации фиолетовых клеток CellTrace | ThermoFisher Scientific | C34557 | |
| Диметилсульфоксид (DMSO) | ThermoFisher Scientific | D2650 | |
| Dulbecco и Prime; Фосфатно-буферный физиологический раствор (D-PBS) | Сигма Олдрич | D5652 | |
| E-номер 16 | Agilent | 5469813001 | |
| Сыворотка для плода (FBS), ценность | ThermoFisher Scientific | A5256701 | |
| Исправляемое пятно от жизнеспособности 780 (FVS780) | BD Biosciences | 565388 | |
| G-Rex 24 Well Plate | Уилсон Вулф | 80192M | |
| G-Rex 6M скважина и bbsp; | Уилсон Вулф | 80660M | |
| Буферное решение HEPES | Лонза | ECM0180D | |
| Его антитело | Miltenyi Biotech | 130-120-718 | |
| Человеческий альбумин 20% | CSL Behring | ||
| Рекомбинантный белок IL-15 человека | PeproTech | 200-15 | |
| Человеческий рекомбинантный белок IL-7 | PeproTech | 200-07 | |
| LSRFortessa X-20 | BD Biosciences | ||
| Лимфопреп | Технологии STEMCELL | 18060 | |
| MCF-7 | ATCC | HTB-22 | Линия клеток рака молочной железы |
| Пенициллин и стрептомицин | Лонза | ECB3001D | |
| Физиологический раствор (0,9% хлорида натрия) | Монико | ||
| Сульфат протамин | Сигма Олдрич | P3369 | |
| Раджи | ATCC | CCL-86 | Линия лимфомы Бёркитта |
| Рекомбинантная человеческая IFN-гамма | R& D Systems | 285-IF-100/CF | |
| Рекомбинантный ИЛ-2 (Пролейкин) | Novartis | ||
| rhCD19-His | Инвитроген | A42607 | |
| Мемориальный институт Росвелл-Парка, 1640 (RPMI-1640) | Евроклон | ECB9006L | |
| Стабильный L-глутамин | Лонза | ECB3004D | |
| Раствор Trypan-Blue | Сигма Олдрич | T8154 | |
| xCELLigence Анализ ячеек в реальном времени | Agilent | ||
| X-VIVO 15 Гемопоэтическая клеточная среда без сыворотки | Лонза | 02-053Q |
Ссылки
- Rosenberg, S. A., Restifo, N. P. Adoptive cell transfer as personalized immunotherapy for human cancer. Science. 348 (6230), 62-68 (2015).
- Shimasaki, N., Jain, A., Campana, D. NK cells for cancer immunotherapy. Nat Rev Drug Discov. 19 (3), 200-218 (2020).
- Cappuzzello, E., et al. How can cytokine-induced killer cells overcome CAR-T cell limits. Front Immunol. 14, 1229540(2023).
- Sharma, A., Schmidt-Wolf, I. G. H. 30 years of CIK cell therapy: Recapitulating the key breakthroughs and future perspective. J Exp Clin Cancer Res. 40, 388(2021).
- Bayatipoor, H., et al. Role of NKT cells in cancer immunotherapy-from bench to bed. Med Oncol. 40, 29(2022).
- Hayday, A., Dechanet-Merville, J., Rossjohn, J., Silva-Santos, B. Cancer immunotherapy by γδ T cells. Science. 386, 6717(2024).
- Rohaan, M. W., van den Berg, J. H., Kvistborg, P., Haanen, J. B. A. G. Adoptive transfer of tumor-infiltrating lymphocytes in melanoma: A viable treatment option. J Immunother Cancer. 6, 102(2018).
- June, C. H., O'Connor, R. S., Kawalekar, O. U., Ghassemi, S., Milone, M. C. CAR T cell immunotherapy for human cancer. Science. 359 (6382), 1361-1365 (2018).
- Fesnak, A. D., June, C. H., Levine, B. L. Engineered T cells: The promise and challenges of cancer immunotherapy. Nat Rev Cancer. 16, 566-581 (2016).
- Zhang, J., Wang, L. The emerging world of TCR-T cell trials against cancer: A systematic review. Technol Cancer Res Treat. 18, 1533033819831068(2019).
- Sadelain, M., Brentjens, R., Rivière, I. The basic principles of chimeric antigen receptor design. Cancer Discov. 3 (4), 388-398 (2013).
- Cappuzzello, E., Sommaggio, R., Zanovello, P., Rosato, A. Cytokines for the induction of antitumor effectors: The paradigm of cytokine-induced killer (CIK) cells. Cytokine Growth Factor Rev. 36, 99-105 (2017).
- Palmerini, P., et al. A serum-free protocol for the ex vivo expansion of cytokine-induced killer cells using gas-permeable static culture flasks. Cytotherapy. 22 (9), 511-518 (2020).
- Pietà, A. D., et al. Innovative therapeutic strategy for B-cell malignancies that combines obinutuzumab and cytokine-induced killer cells. J Immunother Cancer. 9, e002475(2021).
- Pievani, A., et al. Dual-functional capability of CD3+CD56+ CIK cells, a T-cell subset that acquires NK function and retains TCR-mediated specific cytotoxicity. Blood. 118 (12), 3301-3310 (2011).
- Cappuzzello, E., Tosi, A., Zanovello, P., Sommaggio, R., Rosato, A. Retargeting cytokine-induced killer cell activity by CD16 engagement with clinical-grade antibodies. OncoImmunology. 5, e1199311(2016).
- Rambaldi, B., Rizzuto, G., Rambaldi, A., Introna, M. Genetically modified and unmodified cellular approaches to enhance graft versus leukemia effect, without increasing graft versus host disease: The use of allogeneic cytokine-induced killer cells. Front Immunol. 15, 1459175(2024).
- Rotte, A., et al. Dose-response correlation for CAR-T cells: A systematic review of clinical studies. J Immunother Cancer. 10, e005678(2022).
- Zhang, Y., Schmidt-Wolf, I. G. H. Ten-year update of the international registry on cytokine-induced killer cells in cancer immunotherapy. J Cell Physiol. 235 (12), 9291-9303 (2020).
- Garcia-Aponte, O. F., Herwig, C., Kozma, B. Lymphocyte expansion in bioreactors: Upgrading adoptive cell therapy. J Biol Eng. 15, 13(2021).
- Smith, T. A. CAR-T cell expansion in a Xuri Cell Expansion System W25. Methods Mol Biol. 2086, 151-163 (2020).
- Ludwig, J., Hirschel, M. Methods and process optimization for large-scale CAR T expansion using the G-Rex cell culture platform. Methods Mol Biol. 2086, 165-177 (2020).
- Vera, J. F., et al. Accelerated production of antigen-specific T cells for preclinical and clinical applications using gas-permeable rapid expansion cultureware (G-Rex). J Immunother. 33, 305-315 (2010).
- Bajgain, P., et al. Optimizing the production of suspension cells using the G-Rex "M" series. Mol Ther Methods Clin Dev. 1, 14015(2014).
- Talleur, A. C., et al. Allogeneic CD27-depleted cells in adoptive cell therapy. Adv Cell Gene Ther. 2, e45(2019).
- Erskine, C. L., Henle, A. M., Knutson, K. L. Determining optimal cytotoxic activity of human HER2/neu-specific CD8 T cells by comparing the Cr-51 release assay to the xCELLigence system. J Vis Exp. (66), e3683(2012).
- Eberhardt, F., et al. Impact of serum-free media on the expansion and functionality of CD19.CAR T-cells. Int J Mol Med. 52, 58(2023).
- Cadiñanos-Garai, A., et al. High-dimensional temporal mapping of CAR T cells reveals phenotypic and functional remodeling during manufacturing. Mol Ther. 33, 2291-2309 (2025).
- Wang, X., Byrne, M. E., Liu, C., Ma, M. T., Liu, D. Scalable process development of NK and CAR-NK expansion in a closed bioreactor. Front Immunol. 15, 1412378(2024).
- Noldner, P. K., et al. Improving lung cancer tumor-infiltrating lymphocyte (TIL) manufacturing. Cytotherapy. 27, 1240-1250 (2025).
- Bandeira, V., et al. Downstream processing of lentiviral vectors: Releasing bottlenecks. Hum Gene Ther Methods. 23, 255-263 (2012).
Перепечатки и разрешения
