В этой статье представлен протокол культивирования обонятельных нейронов обонятельных рецепторов мотыльки, обеспечивающий долгосрочное выживание и дифференциацию. Этот подход предлагает альтернативу крайне сложным in situ записям, используя ферментативную и механическую диссоциацию с техникой культуры висящей колонны, что позволяет проводить функциональные исследования, такие как патч-кламп-записи.
Методическая статья
Первичные культуры обонятельных рецепторов мотыльков
В этой статье
Краткое содержание
Аннотация
Насекомые критически зависят от своего обоняния во многих поведенческих проявлениях, связанных с брачным процессом, питанием и социальными взаимодействиями. Они эволюционировали высокочувствительными обонятельными рецепторными нейронами (ОРН). Хотя внеклеточные записи in situ часто используются для анализа профиля отклика, кодирующего свойства и физиологии этих клеток, детальный анализ их путей передачи сигнала требует записи с помощью патч-клампа. Для облегчения использования этой электрофизиологической техники и правильного контроля состава внутриклеточных и внеклеточных растворов ORN, в этой статье описывается протокол культивирования насекомых ORN. Поскольку насекомые ОРН тесно окружены вспомогательными клетками, предотвращая острую диссоциацию взрослых ОРН и прямой доступ к их мембранам, этот протокол описывает рассечение антеннных клеток из кукол мотыльков до дифференцировки ОРН. Развивающиеся усики ферментативно и механически диссоциируются, а затем культивируются вверх ногами с помощью техники «висящей колонны» в кондиционированной среде, которая поддерживает дифференцировку и выживание ОРН в течение нескольких недель. ORN, культивируемые этим методом, подходят для функциональных анализов, таких как патч-кламп-записи.
Введение
Насекомые сильно зависят от обоняния для навигации в окружающей среде, поиска источников пищи, поиска партнёров и избеганияхищников 1,2. Их обонятельная система удивительно эффективна и тонко настроена, позволяя обнаруживать широкий спектр летучих химических сигналов с высокой чувствительностью испецифичностью 3. Одоранты в первую очередь обнаруживаются обонятельными рецепторными нейронами (ORN), которые находятся в сенсилле на антеннах, основных обонятельных органах, а также на верхнечелюстных пальпах, которые служат вторичными обонятельными структурами у двокрылых, таких как комары и дрозофилы4.
Для изучения молекулярных механизмов, лежащих в основе обонятельной передачи сигналов, необходим прямой электрофизиологический доступ к отдельным ORN. Патч-кламп-запись, являющаяся золотым стандартом в нейрофизиологии, позволяет подробно охарактеризовать ионные каналы, рецепторы и сигнальные пути. In situ записи с помощью патч-зажима с ОРН насекомых возможны, но технически сложны из-за небольшого размера, плотной упаковки в вспомогательных клетках и кутикулярной инкапсуляции этих нейронов. Эти трудности были преодолены путём заплатки экструдированных внешних дендритов гигантской сатурнидной мотыльки Antheraea polyphemus5 или заплатки ORNs из полуцелых или антеннальных срезов у Drosophila 6,7. Хотя in situ записи позволяют записывать нормально дифференцированные нейроны, эти подходы создают значительные технические сложности, что подчёркивает необходимость альтернативных подходов, обеспечивающих более доступные экспериментальные условия.
В этой статье описывается надёжный протокол культивирования ORN из антенн мотыльков. Протокол, по-видимому, применим к широкому спектру лускокрылых, хотя на других группах насекомых он ещё не был протестирован. Этот метод позволяет поддерживать и выращивать ORNs in vitro, обеспечивая прямой доступ к этим клеткам для патч-кламп-исследований8, 9, 10, а также для фармакологических и визуализационных исследований. Эта система культуры предоставляет ценную платформу для функционального анализа обонятельных трансдукционных путей и молекулярных компонентов, обходя многие ограничения, связанные с записями in situ.
Протокол
Для исследований с участием насекомых не требуется этическое одобрение и соответствующие требования. Первичные культуры насекомых ОРН были описаны на табачной мотыльке Manduca sexta (Lepidoptera, Sphingidae)11, медоносной пчеле Apis mellifera12 и капустной мотыльке Mamestra brassicae (Lepidoptera, Noctuidae)13. Описанные протоколы показывают некоторые сходства (рассечение от стадии куколки) и различия (среда посева, поверхность роста). Описанный здесь протокол успешно применялся без изменений для культивирования ORN нескольких видов мотыльков: M. brassicae, Spodoptera littoralis, Bombyx mori и Agrotis ipsilon. Все этапы выполняются под ламинарным потоком (секции 2–8 выполняются асептично).
1. Насекомые
- Задние личинки S. littoralis (Lepidoptera: Noctuidae) находятся на искусственном рационе и поддерживают их при 22-24 °C, относительной влажности 60-70% и в цикле свет/темнота 16:8, как описаноранее.
- Разделяйте самцов и самок на стадии куколки. После появления появления взрослых самцов держите отдельно от самок в пластиковых коробках и предоставляйте им свободный доступ к 20% сахарозному раствору.
- Собирайте новые куколки ежедневно и держите их при 22 °C. В таких условиях окукление длится 14–16 дней. Проводите эксперименты с самцами или самками.
2. Подготовка условной среды для культуры Grace
ПРИМЕЧАНИЕ: Среда Grace's, используемая для культивирования ORN мотыльков, обусловлена клеточной линией Manduca sexta (MRRL-CH115; эта клеточная линия доступна по запросу). Субкультивировать клетки MRRL-CH1 каждые 3 недели (примерно 80% совпадения) при 20 °C под обычным воздухом. Не позволяйте клеткам превышать 90% слияния, так как это приводит к отслоению клеток и увеличению уровня гибели клеток. В каждом отрывке выполняйте следующие шаги.
- Отсоедините аккуратно прилипающие элементы от нижней поверхности одной колбы с помощью пипетки объёмом 10 мл.
- Распределите 1,5 мл клеточной суспензии на 4 колбы и добавьте 6,2 мл среднего вещества Grace's с 10% плодовой бычьей сывороткой (FBS) в каждую колбу.
- Через два дня после передачи клетки, если в последних подготовленных колбах нет загрязнения, соберите культурную среду из оставшихся трёх колб предыдущего прохода. Фильтруйте (0,2 мкм) и храните кондиционированную среду Грейса при 5 °C. Используйте его до 6 месяцев.
3. Подготовка папаина
ПРИМЕЧАНИЕ: Папаин должен храниться в концентрированных аликвотах (100 мл при 10 мг/мл) при -80 °C, чтобы минимизировать потерю ферментативной активности со временем. Поэтому аликвоты растворителей папаина необходимо готовить отдельно. Этилендиаминтетрауксусная кислота (ЭДТА) и L-цистеин добавляются к активномупапаину 16. При смешивании с папаином их конечная концентрация составляет 0,5 мМ ЭДТА, 1 мМ цистеина и 1 мг/мл папаина (~10 Ед/мл).
- Аликвоты папаина: разбавьте папаин (25 мг) в 2,5 мл стерильного раствора сбалансированной соли Hanks Balanced Salt (HBSS) с 20% глицерином. Держите её в 100 мкл аликвотах при -80 °C.
- Аликвоты растворителя Папаина: пипетта 27 мл маннитола и регулировка осмотического давления до 380 мОсмоль/л с помощью маннитола. Добавьте 5,6 мг ЭДТА и 5,3 мг L-цистеина. Отрегулируйте pH до 6,7. Стерилизуйте с помощью фильтров с низким уровнем связывания 0,2 мкм. Держите её в 900 мкл аликвотах при -20 °C.
4. Подготовка культурных медиа
ПРИМЕЧАНИЕ: Все носители стерильны. Стерилизация проводится с использованием стерильных фильтров диаметром 0,2 мкм.
- 3+2 средний:
- Добавьте 3 части среды Лейбовица (16,4 мл), 2 части среды Грейса (11 мл) и 2% пенициллин-стрептомицина (0,6 мл) в трубку объемом 30 мл. Отрегулируйте осмотическое давление до 370 мОсмоль/л (около 150 мг маннитола) и pH до 6,7 (NaOH 1 м).
- Из полученных 28 мл среды 3+2 фильтруйте и передайте 5 мл в трубку объемом 7 мл. Добавьте несколько кристаллов фенилтиомочевины (около 1–2 мг) в оставшиеся 23 мл среды 3+2, затем простерилизуйте и перенесите 1,5 мл в 7-мл трубку (трубка #1), а затем в 6 чашок Петри, которые позже используются для вскрытия куколок и далее называются «дисекционными чашками».
ПРИМЕЧАНИЕ: Фенилтиочевина подавляет активностьоксидазы 17,18,19, что приводит к почернению тканей антенн.
- Кондиционированная среда 3+2:
- Добавьте 67 мг маннитола в трубку объемом 30 мл и 9 мл среды и фильтра Лейбовица (0,2 мкм). Затем добавьте 2 части среды условной Благодати.
- Отрегулировать количество маннитола в зависимости от осмотического давления среды Лейбовица и Грейса так, чтобы осмотическое давление кондиционируемой среды 3+2 составляло 370 ± 15 мОсмоль/л (трубка #2).
- HBSS-среда: добавьте 12 мл HBSS и 0,25 мл пенициллин-стрептомицина. Отрегулировать осмотическое давление до 370 мОсмоль/л (около 216 мг маннитола), pH до 6,7 (HCl 1 M) и стерилизовать (трубка #3).
- Среда HBSS-EGTA: Добавьте 2 мг этиленгликоль-бис (β-аминоэтилэфир)-N,N,N′,N-тетрауксусную кислоту (EGTA) и 2 мл ранее подготовленного раствора HBSS в пробирку объемом 7 мл. Отрегулируйте pH до 6,7 (NaOH 1 M) и стерилизуйте (трубка #4).
5. Вскрытие куколок (рисунок 1)
ПРИМЕЧАНИЕ: Периодически очищайте щипцы 70% этанола и впитывающей бумаги, а затем быстро поджигайте их пламенем. Вскрытие на чёрном фоне облегчает визуализацию антенны.
- Промывайте куколки возрастом 2,5–3 дня водопроводной водой, а затем под дистиллированной водой.
- Введите 20-25 куколок в чашку Петри под ламинарным капюшоном.
- Под капотом — стаканы с пламенем 2. Наполните один 70% этанолом, а другой — стерильной (автоклавной) дистиллированной водой.
- Возьмите 4 куколки с щипцами, окуните их примерно на 10 секунд в 70% этанола, затем в стерильную дистиллированную воду и переложите в крышку чашки Петри для вскрытия.
- Разрежьте кутикулу вокруг каждой антенны с помощью пламенных щипцев и перенесите пару антенн на диск с материалом 3+2 (рисунок 1A,B).
- В среде 3+2 удалите все ткани, покрывающие трубки, где происходит развитие антенн, чтобы остались только антенна и куколка (рисунок 1C), а затем перенесите антенны (рисунок 1D) на новую антенну, заполненную средой 3+2.
ПРИМЕЧАНИЕ: На рисунке 1E-J показаны изображения процесса вскрытия. - Откройте трубку, где антенна развивается, тонкими щипцами и аккуратно снимите антенну. Удаление каждой антенны по одному элементу облегчает выполнение следующих полосканий (шаги 7.1–7.9), так как они более склонны опускаться на дно трубки.
- Используя стерильную пипетку Пастера, вдохните немного вещества из блюда и выпустите его обратно в чашу, чтобы смочить внутреннюю поверхность пипетки. Это помогает уменьшить склонность антенн прилипать к стеклу внутри пипетки. Затем перенесите расчленённые антенны с пипеткой на 7-мл-трубку, заполненную 1,5 мл 3+2 (трубка #1).
- Повторите шаги 5.4–5.8 для 20 куколок и соберите 20 пар антенн в трубке #1.
6. Приготовление чашок Петри
ПРИМЕЧАНИЕ: Антеннальные клетки культивируются с помощью техники подвеснойколонны 20. Для этого требуется приготовление блюд Петри. Это можно сделать заранее.
- Вырежьте кусочки стекла (6-7 мм × 6-7 мм) с затвора. Держите их в этаноле.
- Под капотом поджечь стеклянные кусочки, сразу же обмакни их в стерильный (автоклавный) вазелин (например, вазелин) и разместить в чашках Петри, как показано на рисунке 2A.
7. Диссоциация и покрытие клеток
ПРИМЕЧАНИЕ: Для замены среды, описанных ниже, важно удалить как можно больше среды с помощью стерильной пипетки Пастера, не отбрасывая никакие антеннальные ткани. Рукав источника холодного света помогает более чётко визуализировать парящие антенны в среде. Ферментативная диссоциация и механическая тритурация проводятся последовательно, а не одновременно, чтобы избежать центрифугирования антеннальных клеток для удаления папаина.
- Поставьте папаин аликвот и папаин растворитель аликвот при комнатной температуре.
- Замените среду 3+2 в трубке #1 на расчленённую антенну на 1 мл HBSS (от лампы #3) и подождите 10 минут.
- Замените HBSS-среду на 1 мл HBSS-EGTA (от трубки #4) и подождите 5 минут.
- Замените средний HBSS-EGTA на 1 мл HBSS и подождите 5 минут.
- Замените HBSS-среду на 1 мл HBSS и подождите 5 минут.
- Переведите растворитель папаина (900 мкл) в папаин-аликвот (100 мкл). Отрегулируйте pH результирующего разбавления папаина (0,2-0,5 мкл HCl 1M), если цвет не совпадает с жёлтым в растворе 3+2. Не измеряйте pH, так как это может загрязнить раствор.
- Замените среду HBSS на 1 мл свежеразбавленного раствора папаина и инкубируйте 10-15 минут. Проведите ферментное переваривание при комнатной температуре.
- Замените раствор папаина на 1 мл HBSS + 50 мкл FBS и подождите 5 минут, чтобы активировать активность папаина.
- Промывайте дважды 1 мл HBSS в течение 5 минут.
- Замените HBSS medium на 1 мл 3+2 среднего.
- Наконечник пипетки Пастера отполирован горелкой Бунзена, чтобы уменьшить диаметр отверстия до 50-100 мкм (можно оценить на глаз при достаточной практике).
- Механически диссоциируйте антеннальные клетки, мягко перебирая среду туда-сюда с огненно полированной пипеткой Пастера, пока не останется ни одного скопления клеток. Среда должна выглядеть размытым.
- Добавьте 2 мл среднего раствора 3+2 и снова суспензируйте клетки в среде пипеткой Пастера для обеспечения однородной плотности клеток.
- Разделите суспензию ячейки на 20 чашок Петри (примерно 150 мкл на чашку) (рисунок 2B).
- Дайте клеткам осесть 45 минут.
- Замените 3+2 medium в каждой тарелке на 150 мкл кондиционированного 3+2 среднего с добавлением 5% FBS.
- Добавьте покровитель (рисунок 2C) и запечатайте тарелки парапленкой.
- Перевернуть тарелки (рисунок 2D) и поместить их между двумя увлажнёнными слоями впитывающей ткани при температуре 20 °C в инкубаторе.
8. Смена культурной среды
ПРИМЕЧАНИЕ: Заменяйте половину посевной среды каждые 4-7 дней.
- Осмотрите посуду, чтобы найти возможные загрязнения. Обычно это приводит к смене цвета (с жёлтого на красноватый).
- Открывайте посуду и аккуратно снимайте чехлы. С помощью микропипетки P100 удалите 75 мкл среды и замените его на 85 мкл свежего кондиционированного 3+2 среднего вещества с добавлением 5% FBS.
- Поставьте обратно посуды, запечатайте посуду парапленкой и храните их как раньше между увлажнёнными слоями впитывающей ткани при температуре 20 °C в инкубаторе.
Результаты
Этот протокол позволяет поддерживать ОРН насекомых живыми в культуре в течение 3-5 недель. ОРН легко идентифицируются по морфологии, характеризующейся небольшим круглым или миндалевидным телом клетки и тонкими отростками (нейритами), которые хорошо видны уже через один день в культуре (рисунок 3A) и продолжают продолжаться в течение нескольких дней (рисунок 3B-D). Две популяции нейронов можно различать по размеру их сомы: 5-7 мкм для большинства нейронов и 10-12 мкм для меньшинства (рисунок 3D). Скорее всего, малые нейроны — это ORN, а крупные — механосенсорные. Нейроны являются либо монопольными, либо биполярными и встречаются поодиночке, в небольших кластерах или внутри недиссоциированных антеннальных эксплантатов. Нейронная идентичность этих клеток была подтверждена с помощью иммуноцитохимии с анти-HRPантителами 13 (рисунок 4), золотым стандартом для маркировки нейронов в нейробиологиинасекомых 21. Через 2 недели ненейронные клетки, скорее всего глиальные, образуют непрерывный слой на поверхности антенны, на котором растут ОРН и расширяют свои нейриты (рисунок 5A,B).
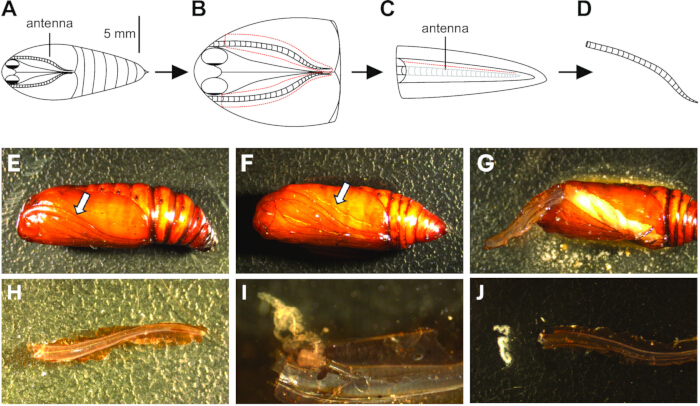
Рисунок 1: Вскрытие куколок. (A) Вентральная сторона куколки. (B) Кутикула разрезана вокруг обеих антенн (красная пунктирная линия), чтобы не проникнуть слишком глубоко в куколку и не проколоть развивающиеся взрослые ткани. Каждая антенна аккуратно снимается и переносится в антенну с материалом 3+2. (C) Все неантеннальные ткани, оставшиеся прикреплёнными к куколочной кутикуле, удаляются, а антенна переносится на новую антенну с чистой средой 3+2. Прозрачная мембрана, покрывающая развивающуюся антенну, аккуратно вырезана (красная пунктирная линия). (D) Антенна аккуратно снимается. (E) Изображение, показывающее эквивалент A. Белая стрелка указывает на антенну. (F) Изображение, показывающее эквивалент B. Белая стрелка указывает на разрез, сделанный в кутикуле. (G) Антенна аккуратно поднимается (H) и затем снимается. (I) После расщепления мембраны, в которой она развивается, антенна продвигается от дистального конца к основанию (J), а затем удаляется. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
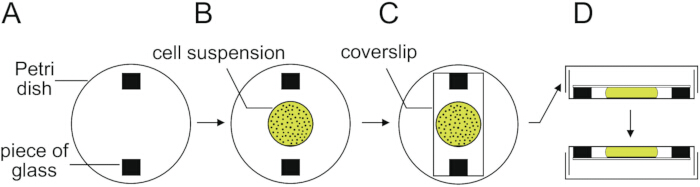
Рисунок 2: Техника подвесной колонны, используемая для культивирования антеннных клеток. (A) Два стекла приклеены стерильным вазелином к дну тарелок толщиной 35 мм. (B) Суспензия ячейки аккуратно помещается в центр тарелки и оставляется крепиться к блюду в течение 45 минут. (C) После смены среды аккуратно наносится стерильный наклад на стекло, который покрывает и поддерживает подвеску клетки на месте. (D) Чашка Петри наконец закрывается крышкой и запечатывается полоской парафильма. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
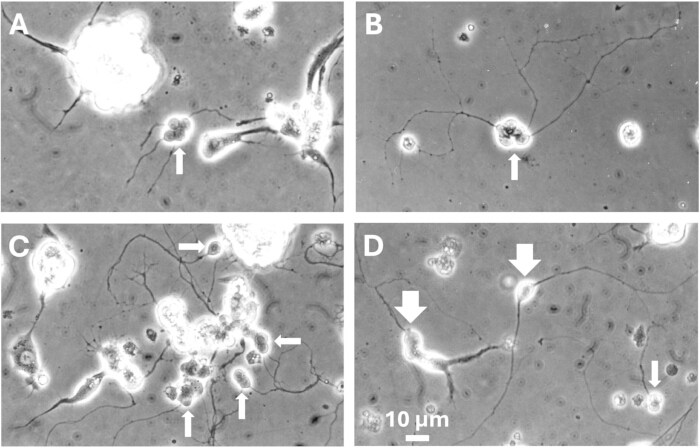
Рисунок 3: Виды молодых культур с усиков M. brassicae. (A) Через 1 день нейриты начинают удлиняться. (B) Через 2 дня нейриты становятся более вытянутыми. (C,D) Через 5 дней нейритная сеть становится плотнее. ORN (белые стрелки) легко различимы по морфологии. Они встречаются либо поодиночке, либо небольшими скоплениями. Крупные клеточные скопления, такие как те, что видны в (C), скорее всего, являются недиссоциированными антеннами эксплантами. Они могут содержать нейроны, о чём свидетельствуют нейриты, выходящие из них. Малые нейроны обозначены малыми стрелками (A-D), а 2 больших нейрона — большими стрелками (D). Масштаб (10 мкм) одинаков в A to D. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
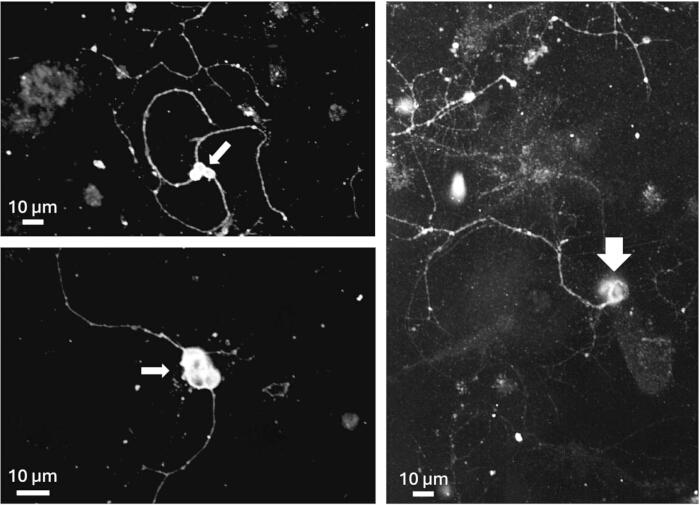
Рисунок 4: Анти-HRP-окрашивание на малых (маленькая стрелка) и больших (большая стрелка) нейронах. Эксперимент проводился на культурах возрастом 5 дней. Шкала масштаба: 10 мкм. Подробный протокол см.в статье 13. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
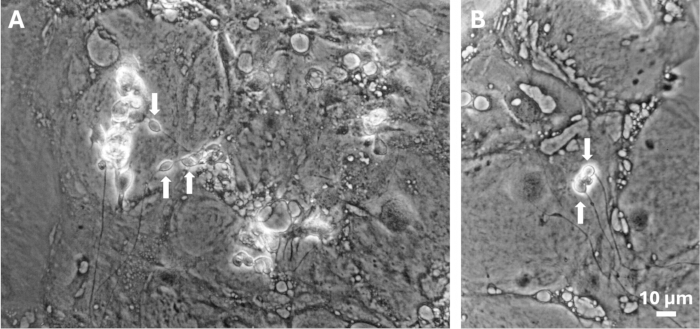
Рисунок 5: Виды старых культур с антенн M. brassicae. (A,B) После 2 недель культуры поверхность тарелки покрывается плотным слоем ненейронных клеток. Белые стрелки обозначают ORN. Масштаб (10 мкм) одинаков в A и B. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
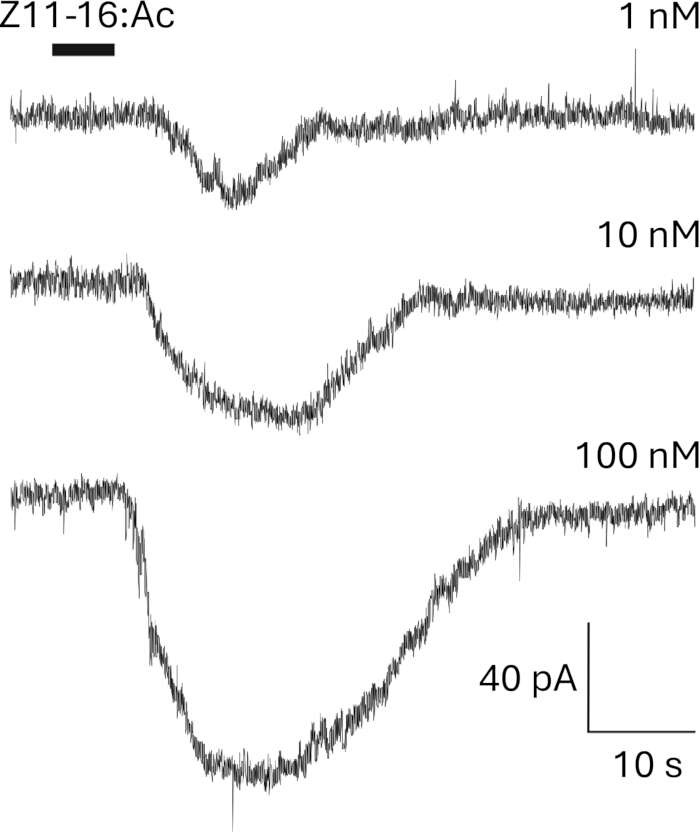
Рисунок 6: Нейроны, находящиеся в культуре, не менее 2 недель, реагируют на запаховые стимулы. Ответы на Z11-16:Ac, основное феромоновное соединение M. brassicae, можно зафиксировать в конфигурации целых клеток метода патч-клампа. Z11-16:Ac растворялся в диметилсульфоксиде (DMSO) с конечной концентрацией не более 0,1%. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
Обсуждение
Ключевые шаги протокола следующие: (i) Вскрытие куколок на правильном этапе развития. Когда куколки слишком молоды, ткани антенн очень мало, и её сложно собирать, так как она рыхлая и быстро распространяется. Когда куколки слишком стары, диссекция антенн становится гораздо проще, но ОРН не выживают in vitro. В трёх различных видах, из которых мы подготовили первичные культуры ОРН, мы экспериментально установили, что оптимальная стадия для рассечения куколок составляет всего полдня, от 2,5 до 3 дней, когда куколки поддерживаются при температуре 20 °C. (ii) Смешивание среды Грейс и Лейбовица L-15. Среда Grace часто используется для поддержки роста клеток насекомых, а среда L-15 Лейбовица поддерживает рост нейронов. (iii) Удаление FBS при нанесении клеток. Если требуется дополнение среды FBS, среда, используемая для посева чашек Петри с клеточной суспензией, должна быть свободна от FBS, так как её присутствие подавляет прикрепление клеток и, следовательно, её выживание. (iv) Культивирование антеннных клеток с высокой плотностью. Это крайне важно для выживания ORN. (v) Использование техники подвесной колонны. Он способствует лучшему росту клеток и значительно продлевает срок службы культур.
Потенциальная проблема устранения неполадок в протоколе заключается в том, что время инкубации с папаином (10-15 минут) должно быть скорректировано в зависимости от партии папаина и времени, прошедшего с момента приготовления аликвотов по 100 мкл, поскольку папаин постепенно теряет активность даже при хранении при -80 °C. Поскольку внешний вид усиков не меняется заметно во время инкубации папаина, время инкубации невозможно оценить визуальным осмотром.
Основной вопрос касается дифференцировки ОРН in vitro. По описанному протоколу ОРН могут существовать 3-5 недель. Учитывая, что усики собираются примерно за 10 дней до появления взрослых особей, а ОРН становятся полностью функциональными за 1-2 дня до появления — как измеряется с помощью EAG и записей одиночного сенсиллума (личное наблюдение) — этот период выживаемости теоретически обеспечивает достаточно времени для их дифференцировки in vitro. Было установлено, что ORN выражают большое разнообразие ионныхканалов 8, 9, 10, 14, 22, 23, 24, 25, 26. Они реагируют на обонятельные стимулы в зависимости от дозы (рисунок 6), что указывает на то, что они хотя бы частично следуют своему обычному процессу дифференцировки in vitro.
Насекомые ОРН покрыты тремя вспомогательнымиклетками 27, которые определяют сенсилларный компартмент и контролируют ионный и белковый состав сенсилярной лимфы, в которой купаются дендриты ORN. Эти вспомогательные клетки синтезируют, в частности, обонятельные связывающие белки (OBP). В одном из предыдущих исследований мы наблюдали высокую экспрессию OBP в культурах возрастом 3-4 недель, что свидетельствует о том, что дополнительные клетки также дифференцируются in vitro13. Ограничением культуры является то, что дендрит культивируемых ОРН не находится в сенсиллярной лимфе — среде с более высокой концентрацией K+ и низкой концентрацией Na+, чем гемолимфа28,29, что создаёт трансэпителиальный потенциал между этими двумякомпартментами 30. В то же время культура клеток обеспечивает доступ к вспомогательным клеткам для электрофизиологической характеристики — подход, который, насколько нам известно, ранее не применялся.
Интересно, что предварительные испытания, проведённые на S. littoralis , показывают, что этот протокол также подходит для культивирования клеток хоботника мотыльков. Были обнаружены нейроны схожей формы, которые, скорее всего, являются вкусовыми рецепторными нейронами, хотя и в небольшом кольче.
Первичные культуры обеспечивают лёгкий доступ к ОРН насекомых для записи с помощью патч-клампа. Основной недостаток двойный: клетки должны культивироваться с высокой плотностью, что означает препарирование многих антенн; Это первичные культуры, то есть новые культуры должны регулярно подготовляться. Однако это того стоит, ведь несмотря на их небольшой размер, патчирование таких нейронов относительно просто, при условии хорошего качества культуры.
Раскрытие информации
Авторам нечего раскрывать.
Благодарности
Авторы выражают благодарность Монике Стенгл за подарок клеточной линии MRRL-CH1.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| 10 мл шприцев | Avantor | Н/Д | |
| 2,5 мл шприцев | Avantor | Н/Д | |
| 21 мм x 26 мм накладных ссылок | Avantor | WVR - 631-1335 | |
| Стеклянные стекла размером 76 мм x 26 мм | Avantor | WVR - 631-9460 | Толщина: 1 мм и плюсм; 0,05 мм |
| Акродиск супор PF, 0,8/0,2 и мю; m, 25 мм | Avantor | WVR - 514-4102 | Фильтры для шприцев с низким уровнем связывания |
| Автоклав | Нет конкретного бренда | Н/Д | |
| Горелка Бунзена | Нет конкретного бренда | Н/Д | Он должен управляться педаллю |
| Corning Тарелки для культуры тканей Falcon Easy-Grip размером 35 мм x 10 мм. Corning 353001 | Avantor | WVR - 734-0005 | Стерильные чашки Петри для культивирования клеток |
| D-Mannitol | Sigma-Aldrich | M9546 | Храните при комнатной температуре |
| Щипцы Dumont #5 | Н/Д | ||
| EGTA | Sigma-Aldrich | E4378 | Храните при комнатной температуре |
| Сокол: 50 мл, 25 см², уплотнение пробки, ткань обработаны в культуре | Avantor | WVR - 734-0009 | Колбы для клеточной культуры |
| Сыворотка плода для быка | ThermoFisher Scientific | A3160801 | Храните при -20 градусах; C |
| Среда Grace's Insect, дополненная гидролизатом лактальбумина и диетолатом (1x)-Gibco | ThermoFisher Scientific | 11605045 | Дополнено средство Grace's Insect. Храните при 5 градусах; C |
| HBSS без кальция и магния-гибко | ThermoFisher Scientific | 14170138 | Сбалансированный сольный раствор Хэнкса (HBSS). Храните при 5 градусах; C |
| Индивидуально упакованные серологические пипеты, Falcon | Avantor | WVR - 734-0352 | Стерильные одноразовые пипетки на 10 мл |
| Индивидуально упакованные серологические пипеты, Falcon | Avantor | WVR - 734-0343 | Стерильные одноразовые пипетки объемом 25 мл |
| L15 medium — Gibco | ThermoFisher Scientific | 11415056 | Средний L-15 Лейбовица. Храните при 5 градусах; C |
| Ламинарная тканевая вытяжка | Нет конкретного бренда | Н/Д | |
| N-фенилтиочевина | Sigma-Aldrich | P7629 | Храните при комнатной температуре |
| Папаин | Sigma-Aldrich | P5306 | Лиофилизированный порошок, асептически заполненный. Храните аликвоты при -80 и градусах; C |
| Парафильм | Sigma-Aldrich | P7793 | |
| Пипетки Пастера забиты с ватой — 150 мм | Нет конкретного бренда | Автоклавировать как есть (с хлопковой пробкой) и хранить в коробке для стерилизации под капотом | |
| Пенициллин-стрептомицин | Sigma-Aldrich | P4333 | Пенициллин-стрептомицин: 5000 UI/ml + 5000 и микро; g/ml. Магазин при -20&°; C в стерильных аликвотах 1 мл |
| pH-метр | Нет конкретного бренда | ||
| Контроллер пипеток | Avantor | WVR - 612-7179 | Дешёвая альтернатива — использование ручной пипетки контроллеры (например, Pipette Pump или Pipette Pumps Bel-Art) |
| Рефрижераторный инкубатор | PHC Europe | Модель МИР-154-ПЭ | Система регулировки концентрации CO2 — это не нужно для регулирования pH сред культуры насекомых |
| Стереомикроскоп | Нет конкретного бренда | увеличение от 10 до 64 раз, оснащённое Холодный источник света и гибкие светонаправляющие | |
| Стерильные чашки Петри для вскрытия куколок | Avantor | WVR - 391-0868 | Можно использовать любую стерильную чашу |
| Контейнеры Sterilin с винтовой крышкой, 30 мл | Avantor | WVR - 215-0321 | Стерильные трубки объемом 30 мл |
| Контейнеры Sterilin с винтовой крышкой, 7 мл | Avantor | WVR - 215-0328 | Стерильные трубки объемом 7 мл |
| Вазелин | Sigma-Aldrich | Храните асептически при комнатной температуре; Вазелин |
Ссылки
- Gadenne, C., Barrozo, R., Anton, S. Plasticity in insect olfaction: To smell or not to smell. Annu Rev Entomol. 61, 317-333 (2016).
- Hansson, B. S. Olfaction in lepidoptera. Experientia. 51, 1003-1027 (1995).
- De Bruyne, M., Baker, T. C. Odor detection in insects: Volatile codes. J Chem Ecol. 34 (7), 882-897 (2008).
- Ayer, R. K., Carlson, J. Olfactory physiology in the Drosophila antenna and maxillary palp: Acj6 distinguishes two classes of odorant pathways. J Neurobiol. 23 (8), 965-982 (1992).
- Zufall, F., Hatt, H. Dual activation of a sex pheromone-dependent ion channel from insect olfactory dendrites by protein kinase C activators and cyclic GMP. Proc Natl Acad Sci U S A. 88, 8520-8524 (1991).
- Dubin, A. E., Harris, G. L. Voltage-activated and odor-modulated conductances in olfactory neurons of Drosophila melanogaster. J Neurobiol. 32, 123-137 (1997).
- Cao, L. H., et al. Distinct signaling of Drosophila chemoreceptors in olfactory sensory neurons. Proc Natl Acad Sci U S A. 113 (7), E902-E911 (2016).
- Kadala, A., Charreton, M., Jakob, I., Le Conte, Y., Collet, C. A use-dependent sodium current modification induced by type I pyrethroid insecticides in honeybee antennal olfactory receptor neurons. Neurotoxicology. 32 (3), 320-330 (2011).
- Lucas, P., Shimahara, T. Voltage- and calcium-activated currents in cultured olfactory receptor neurons of male Mamestra brassicae (lepidoptera). Chem Senses. 27 (7), 599-610 (2002).
- Stengl, M. Intracellular-messenger-mediated cation channels in cultured olfactory receptor neurons. J Exp Biol. 178, 125-147 (1993).
- Stengl, M., Hildebrand, J. G. Insect olfactory neurons in vitro: Morphological and immunocytochemical characterization of male-specific antennal receptor cells from developing antennae of male Manduca sexta. J Neurosci. 10 (3), 837-847 (1990).
- Gascuel, J., Masson, C., Bermudez, I., Beadle, D. J. Morphological analysis of honeybee antennal cells growing in primary cell cultures. Tissue Cell. 26 (4), 551-558 (1994).
- Lucas, P., Nagnan-Le Meillour, P. Primary culture of antennal cells of Mamestra brassicae: Morphology of cell types and evidence for biosynthesis of pheromone-binding proteins in vitro. Cell Tissue Res. 289 (2), 375-382 (1997).
- Pézier, A., et al. Calcium activates a chloride conductance likely involved in olfactory receptor neuron repolarisation in the moth Spodoptera littoralis. J Neurosci. 30 (18), 6323-6333 (2010).
- Eide, P. E., Caldwell, J. M., Marks, E. P. Establishment of two cell lines from embryonic tissue of the tobacco hornworm, Manduca sexta (L). In Vitro. 11 (6), 395-399 (1975).
- Huettner, J. E., Baughman, R. W. Primary culture of identified neurons from the visual cortex of postnatal rats. J Neurosci. 6 (10), 3044-3060 (1986).
- Ryazanova, A. D., Alekseev, A. A., Slepneva, I. A. The phenylthiourea is a competitive inhibitor of the enzymatic oxidation of dopa by phenoloxidase. J Enzyme Inhib Med Chem. 27 (1), 78-83 (2012).
- Hunt, A. J., Sherman, K. D., Weintraub, S. T. Characterization of phenoloxidases from larval cuticle of Sarcophaga bullata and a comparison with cuticular enzymes from other species. Can J Zool. 65 (11), 2501-2508 (1987).
- Zufelato, M. S., Lourenco, A. P., Simoes, Z. L., Jorge, J. A., Bitondi, M. M. Phenoloxidase activity in Apis mellifera honey bee pupae, and ecdysteroid-dependent expression of the prophenoloxidase mRNA. Insect Biochem Mol Biol. 34 (12), 1257-1268 (2004).
- Lees, G., Beadle, D. J. Cell Culture Approaches to Invertebrate Neuroscience. Beadle, D. J., Lees, G., Kater, S. B. , Academic Press. London. 109-147 (1988).
- Jan, L. Y., Jan, Y. N. Antibodies to horseradish peroxidase as specific neuronal markers in Drosophila and in grasshopper embryos. Proc Natl Acad Sci U S A. 79 (8), 2700-2704 (1982).
- Pézier, A., Acquistapace, A., Renou, M., Rospars, J. P., Lucas, P. Ca2+ stabilizes the membrane potential of moth olfactory receptor neurons at rest and is essential for their fast repolarization. Chem Senses. 32 (4), 305-317 (2007).
- Dolzer, J., Krannich, S., Stengl, M. Pharmacological investigation of protein kinase C- and cGMP-dependent ion channels in cultured olfactory receptor neurons of the hawkmoth Manduca sexta. Chem Senses. 33 (9), 803-813 (2008).
- Krannich, S., Stengl, M. Cyclic nucleotide-activated currents in cultured olfactory receptor neurons of the hawkmoth Manduca sexta. J Neurophysiol. 100 (5), 2866-2877 (2008).
- Stengl, M. Inositol-triphosphate-dependent calcium currents precede cation currents in insect olfactory receptor neurons in vitro. J Comp Physiol A. 174 (2), 187-194 (1994).
- Laurent, S., Masson, C., Jakob, I. Whole-cell recording from honeybee olfactory receptor neurons: Ionic currents, membrane excitability and odourant response in developing worker bee and drone. Eur J Neurosci. 15 (7), 1139-1152 (2002).
- Steinbrecht, R. A. Pheromone Biochemistry. Prestwich, G. D., Blomquist, G. J. , Academic Press. Orlando. 353-384 (1987).
- Kaissling, K. E. R. H. Wright Lectures on Insect Olfaction. , Simon Fraser University, Burnaby. B.C., Canada. (1987).
- Kaissling, K. E., Thorson, J. Receptors for Neurotransmitters, Hormones and Pheromones in Insects. Sattelle, D. B., Hall, L. M., Hildebrand, J. G. , Elsevier, North Holland Biomedical Press. Amsterdam. 261-282 (1980).
- Gu, Y., Lucas, P., Rospars, J. P. Computational model of the insect pheromone transduction cascade. PLoS Comput Biol. 5 (3), e1000321(2009).