В данном протоколе описывается использование миниатюризированной системы плоского липидного бислоя Монталя–Мюллера с интегрированным усилением для проведения стабильных одноканальных регистраций. Метод продемонстрирован на примере реконституции очищенного синтетического K2P-канала для подтверждения эффективности работы системы.
Методическая статья
Одноканальная электрофизиология с использованием миниатюризированной системы плоского липидного бислоя Монталя–Мюллера для регистрации синтетического канала K2P
В этой статье
Краткое содержание
Аннотация
Функциональная реконституция ионных каналов в планарные липидные бислои представляет собой стратегию исследования активности каналов на уровне одиночных молекул. Однако традиционные бислойные системы Монталя–Мюллера обычно требуют громоздких экспериментальных установок, ручной сборки камер и относительно больших объемов регистрируемого раствора, что увеличивает расход реагентов и может приводить к возникновению дополнительных источников электрического шума из-за длинной разводки проводов и внешних блоков предусиления. Здесь мы представляем миниатюрную, готовую к использованию платформу для создания бислоев (BLMchipMM), интегрированную с компактным усилителем, которая обеспечивает стабильную запись токов одиночных каналов при сниженном расходе реагентов и упрощенном управлении. В данном протоколе описывается использование этой системы для проведения электрофизиологических измерений одиночных каналов. С помощью этой системы мы реконструировали синтетический K2P-канал (ancTREK1) и использовали его в качестве контрольного белка для подтверждения принципа реконституции и записи токов одиночных каналов. Записи одиночных каналов демонстрируют зависимость ток-напряжение в симметричных растворах K+ без Mg2+, при этом значения проводимости согласуются с данными, опубликованными для каналов TREK1. Успешная реконституция этого K2P-подобного канала демонстрирует полезность данной системы для анализа одиночных каналов в искусственных мембранах.
Введение
Реконструирование ионных каналов в искусственных липидных бислойных мембранах, также известных как черные липидные мембраны (ЧЛМ), является одним из общепринятых методов электрофизиологической характеристики ионных каналов на уровне единичных молекул1. Преимущества ЧЛМ обусловлены их структурой. Плоский липидный бислой (ПЛБ) создается внутри поры в неполярной поверхности, разделяя два жидких раствора. Таким образом, имитируя биологическую мембрану, он позволяет регистрировать активность ионных каналов в строго контролируемых условиях, включая липидный состав мембраны и концентрации электролитов или химических соединений, оставаясь при этом доступным с обеих сторон. Эта доступность также позволяет осуществлять прямое встраивание ионных каналов, например, из мицеллярного раствора или путем липосомального слияния2,3.
Первая описанная система искусственных мембран была создана с использованием метода «рисования» (painting technique)4, при котором капля липидов, растворенных в нелетучем органическом растворителе, наносится кистью на небольшое отверстие. Последующее добавление водного раствора с обеих сторон отверстия приводит к спонтанному формированию липидного бислоя. Однако существенным недостатком этого метода является сохранение следов растворителя, которые могут влиять на свойства мембраны. Для уменьшения количества остаточного органического растворителя в липидных бислоях был разработан метод складывания (folding method)5, позволяющий формировать «безрастворительные» БЛМ. При таком подходе раствор липидов в летучем растворителе расстилают по поверхности воды для образования двух монослоев, и при постепенном повышении уровня водной фазы над отверстием эти липидные монослои складываются над отверстием, образуя бислой. Тем не менее, хотя полученная БЛМ считается безрастворительной, для успешного формирования бислоя требуется предварительная обработка отверстия тонким слоем нелетучего растворителя. Основным элементом, необходимым для этих экспериментов, является регистрирующая камера с двумя водными камерами (обычно называемыми cis и trans), разделенными липофильной перегородкой с небольшим отверстием (диаметром 50–250 µm) (Рисунок 1). В каждую камеру вставляют электроды из серебра/хлорида серебра (Ag/AgCl). При погружении в раствор электролита эти электроды обеспечивают электрохимическую связь между липидным бислоем и регистрирующим устройством. Последнее состоит из усилителя с фиксацией потенциала (voltage-clamp amplifier), который позволяет точно контролировать трансмембранный потенциал и одновременно измерять ионные токи, проходящие через встроенные порообразующие белки.
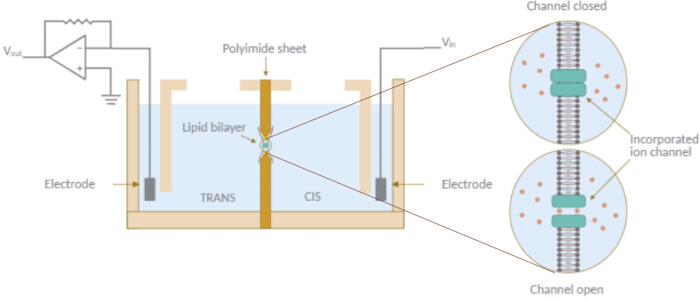
Рисунок 1: Схема установки для электрофизиологических исследований плоского липидного бислоя (PLB). Схема основных компонентов, необходимых для экспериментов с PLB. Записывающая камера состоит из двух водных отделений (цис- и транс-), разделенных липофильной перегородкой с отверстием, в котором формируется липидный бислой. Серебро-хлоридные (Ag/AgCl) электроды погружены в раствор электролита в каждом отделении. Один электрод подает стимулирующее напряжение (например, синусоидальные, прямоугольные или треугольные формы сигнала), в то время как другой, заземленный, подключен к преобразователю ток-напряжение, который преобразует ионный ток в пропорциональный сигнал напряжения. Сигнал усиливается, при необходимости фильтруется, оцифровывается и записывается для мониторинга и анализа в режиме реального времени. Нажмите здесь, чтобы просмотреть этот рисунок в увеличенном размере.
Для формирования БЛМ были разработаны и другие методы. Одним из распространенных подходов является создание липидных бислоев, подвешенных на кончике патч-кламп пипетки. В частности, метод «погружения кончика» (tip-dip method)6 позволяет сформировать подвешенный безрастворимый липидный бислой на отверстии стеклянной микропипетки диаметром ~4 µm путем многократного погружения кончика через липидный монослой на границе раздела воздух-вода, захватывая при каждом прохождении один листок бислоя. Метод патч-кламп также применялся для измерений одиночных каналов в липидных бислоях. Например, при методе «пробивания» (punch-out method)7 стеклянная пипетка диаметром от 10 до 80 µm используется для захвата участка большой мембраны, изначально нанесенной на отверстие в регистрирующей камере. В качестве альтернативы, метод «липосомного патча» предполагает использование предварительно сформированной нано- или микроразмерной везикулы в качестве безрастворимой БЛМ8,9. В частности, гигантские униламеллярные везикулы широко применялись для регистрации одиночных каналов с использованием различных конфигураций патч-клампа, включая режимы cell-attached (прикрепленный патч) и excised patch (вырезанный патч)10,11.
Также появилось несколько платформ для параллельного и автоматизированного формирования множественных бислоев. Одним из таких подходов является метод формирования бислоев на границе раздела капель (droplet interface bilayer, DIB)12, при котором водные капли помещаются в смесь липида и растворителя. В этом методе липидные монослои спонтанно собираются вокруг капель, а формирование бислоя происходит при контакте двух капель. В некоторых схемах DIB могут формироваться на гидрогелях для повышения стабильности мембраны13. Альтернативным подходом, основанным на формировании DIB на кончике стеклянной пипетки, является метод контактных пузырьковых бислоев (contact bubble bilayer, CBB)14, при котором водные пузырьки вводятся в масляную фазу с помощью двух микропипеток. Как и в случае с подходом DIB, липидный бислой спонтанно формируется при соприкосновении двух покрытых липидами пузырьков. Еще одной платформой являются массированные системы BLM, состоящие из массивов четко определенных микро- и наноразмерных пор, расположенных в виде сетки. В этих системах подвешенные липидные бислои могут формироваться либо вручную — с использованием методов «рисования» (painting) или складывания (folding), либо путем разрыва липосомальных везикул15,16,17 — либо автоматически путем последовательного впрыскивания липидных и буферных растворов при сочетании с микрофлюидными канальными структурами18,19.
Несмотря на разработку множества методов формирования безрастворимых БЛМ, в данной работе мы фокусируемся на методе складывания, реализованном на миниатюрной интегрированной платформе для исследования поведения одиночных каналов мембранных белков, встроенных в искусственный липидный бислой. Эксперименты проводились с использованием установки Elements, состоящей из двух компонентов: считывателя нанопор Elements (усилитель eNPR) и BLMchipMM (Рисунок 2A и Рисунок 2B). Первый представляет собой компактный малошумящий усилитель с фиксацией потенциала, который упрощает организацию рабочего пространства, являясь полноценным независимым устройством и исключая необходимость в дополнительных внешних приборах. BLMchipMM — это предварительно собранная миниатюрная система, разработанная для техники Монталя–Мюллера и служащая экспериментальным интерфейсом. Она состоит из прозрачной записывающей камеры из полиметилметакрилата (ПММА), интегрированной с печатной платой (PCB), которая включает два гнезда для проводов Ag/AgCl, служащих электродами для прямого подключения к усилителю. Основная структура камеры представляет собой полиимидную перегородку, загерметизированную между двумя прозрачными компонентами из ПММА. Толщина перегородки составляет 50 µm, за исключением небольшой центральной области (3,78 mm2), где толщина уменьшена до 25 µm для облегчения формирования бислоя. В центре этой более тонкой области с помощью лазерного сверления создано коническое отверстие, которое повышает механическую стабильность липидного бислоя20,21. Доступны четыре диаметра отверстий (50, 75, 100 и 140 µm), что позволяет регулировать емкость мембраны (Таблица 1). Каждый компонент из ПММА имеет С-образную полость объемом 110 µL, образующую два жидкостных отсека по обе стороны от полиимидной перегородки для удержания электролитного раствора. В каждом блоке ПММА с противоположных сторон просверлено по два наклонных жидкостных канала: один канал используется для вставки электрода Ag/AgCl, а другой позволяет вручную регулировать уровень буфера в резервуаре с помощью пипетирования.
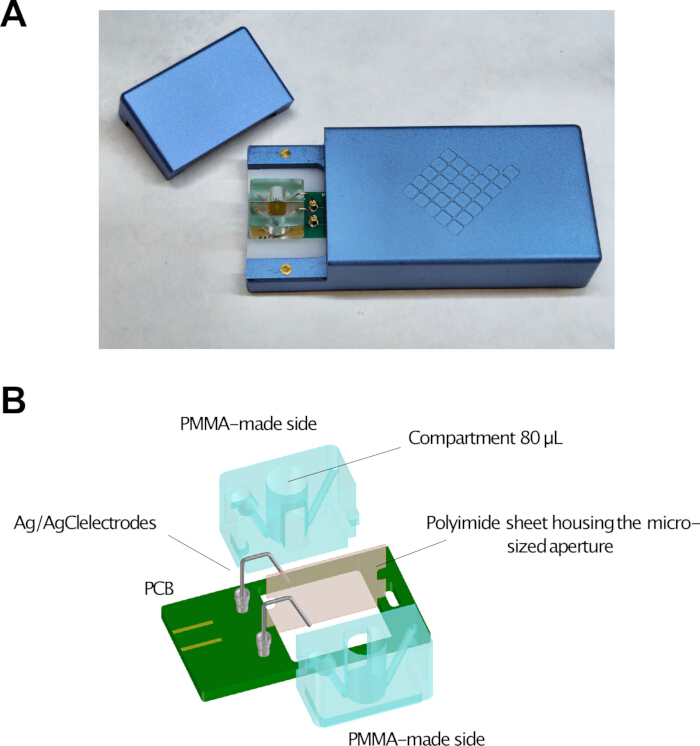
Рисунок 2: Система Integrated Elements Nanopore Reader и BLMchipMM. (A) Фотография, на которой показан BLMchipMM, вставленный в специальный слот усилителя Elements Nanopore Reader (eNPR). (B) Схематическое изображение компонентов BLMchipMM, включая записывающую камеру из полиметилметакрилата (PMMA), полиимидную перегородку с отверстием микроразмера и печатную плату (PCB) с гнездами для электродов Ag/AgCl и слотом для выравнивания камеры. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
| Диаметр отверстия (µm) | 50 | 75 | 100 | 140 |
| Толщина отверстия (µm) | 25 | 25 | 25 | 25 |
| Типичная мембранная емкость (пФ) | 20–40 | 40–60 | 60–90 | 90–140 |
Таблица 1: Характеристики доступных форматов апертур BLMchipMM. Диаметр отверстия, толщина септума в области апертуры и типичные значения емкости мембраны для устройств BLMchipMM с апертурами 50, 75, 100 и 140 µm. Значения емкости мембраны приведены для бислоев, сформированных из липидов 1,2-дифитаноил-sn-глицеро-3-фосфохолина.
Как правило, записывающие камеры, используемые в лабораториях, представляют собой либо самодельные установки, либо коммерчески доступные устройства. В первом случае создание системы предполагает сборку различных компонентов и разработку надежного метода формирования отверстия в перегородке, что может ограничить доступность такого подхода для многих лабораторий. Даже при использовании коммерческих устройств часто требуется ручная интеграция нескольких компонентов перед каждым экспериментом. Напротив, BLMchipMM поставляется в предварительно собранном виде и не требует разборки между экспериментами для проведения стандартных процедур очистки. Одно и то же устройство можно промывать и использовать повторно в нескольких экспериментах без ущерба для качества формирования мембраны, при условии, что используемые растворители совместимы с материалами устройства. Это снижает вариабельность, зависящую от пользователя, и минимизирует риск утечек, связанных с ручными уплотнительными элементами. Использование внешних, заменяемых и восстанавливаемых серебряных проволочных электродов дополнительно продлевает срок службы системы, особенно в условиях экспериментов, ускоряющих износ электродов.
Более того, самодельные устройства часто характеризуются большими объемами камер, что увеличивает количество биологических и химических компонентов, необходимых для экспериментов. Напротив, миниатюризация BLMchipMM позволяет минимизировать объемы проб, тем самым значительно снижая расход реагентов, белков и других соединений. Это особенно выгодно при работе с трудноэкспрессируемыми или низковыходными мембранными белками, а также в случаях, когда высокая стоимость синтеза исследуемых соединений увеличивает общие затраты на эксперименты. Важно отметить, что BLMchipMM позволяет формировать бислои с минимальным количеством растворителя и поддерживает асимметричные конфигурации мембран, в которых каждый листок может состоять из различных видов липидов5,22, что облегчает изучение функций мембранных белков в контролируемых условиях.
Традиционно измерения тока выполняются с помощью усилителей, предназначенных для экспериментов с методом патч-кламп, которые часто требуют подключения к отдельному дигитайзеру для сбора данных и управления через графические интерфейсы. Такие системы не только громоздки и дороги, но и зачастую требуют выполнения неинтуитивных процедур настройки для пользователей, не являющихся экспертами. Кроме того, из-за размеров регистрирующей камеры и конструкции стандартных усилителей, в которых обычно отсутствует встроенное экранирование для защиты входа головного блока от электростатических помех, часто возникает необходимость в использовании внешнего клетки Фарадея. Качество и заземление такой клетки могут существенно влиять на шумовые характеристики системы. Использование BLMchipMM в сочетании с компактным интегрированным усилителем упрощает данную конфигурацию, снижая потребность во внешних компонентах. Оцифровка сигнала происходит внутри устройства, а корпус системы обеспечивает экранирование, которое снижает восприимчивость к внешним электромагнитным помехам.
Для демонстрации применимости данной платформы в качестве тестового белка для подтверждения успешной реконституции и регистрации тока одного канала был использован K2P-подобный канал ancTREK1 — вычислительно выведенный предковый член подсемейства TREK (Supplementary Figure 1). Каналы K2P образуют димерные калиевые утечные каналы, которые регулируют потенциал покоя мембраны и возбудимость клеток, при этом каналы TREK представляют собой хорошо изученное подсемейство.
Протокол
Данное исследование не предусматривало участия людей, использования материалов человеческого происхождения или животных. Следовательно, в соответствии с институциональными и национальными рекомендациями, этическое одобрение не требовалось.
1. Подготовка установки для электрофизиологии
- Калибровка прибора
Хотя формальная калибровка не требуется, так как система сконфигурирована на заводе, перед формированием мембраны проверьте исправность системы.- Измерьте входное сопротивление в условиях разомкнутой цепи (т. е. без вставленного BLMchipMM). Измеренное сопротивление должно быть ≥1 TΩ, что подтверждает целостность входа усилителя.
- Проверьте отклик системы с помощью модельной ячейки, содержащей резистор 1 GΩ. Измеренное сопротивление должно составлять 1 GΩ с точностью ±30%, что соответствует допуску встроенного резистора.
- Измерьте базовый шум в условиях разомкнутой цепи при постоянном напряжении (0 mV). Среднеквадратичное значение (RMS) шума должно быть ≤300 fA при частоте дискретизации 10 kHz и ширине полосы пропускания 5 kHz, что подтверждает низкий уровень шума системы.
- Подготовка электродов Ag/AgCl
- При первом использовании промойте серебряные проволоки этанолом и дважды дистиллированной водой.
- Для ранее использованных проволок используйте наждачную бумагу с очень мелким зерном, чтобы удалить старый слой Ag/AgCl с поверхности проволоки до тех пор, пока поверхность не станет равномерно ярко-серебристой с чистым металлическим блеском и без видимых остатков. Затем промойте этанолом и дважды дистиллированной водой.
- Хлорируйте концевую часть серебряных проволок, вымачивая их в 1%–5% растворе гипохлорита натрия (NaOCl) (Рисунок 3A) до тех пор, пока они не станут светло-серыми, обычно в течение 15–30 min. Со временем следите за состоянием хлорированных проволок на предмет деградации во время использования, которая проявляется в изменении цвета, дрейфе базового тока или и том, и другом одновременно.
ПРИМЕЧАНИЕ: Хлорирование можно проводить с использованием обычного бытового отбеливателя (1%–5% NaOCl).
ПРЕДОСТЕРЕЖЕНИЕ: Не хлорируйте проволоки по всей их длине. Оставьте концевую часть, которая вставляется в разъем печатной платы (PCB), нехлорированной для обеспечения надлежащего электрического соединения.
ПРЕДОСТЕРЕЖЕНИЕ: Разъемы на PCB рассчитаны на серебряные проволоки диаметром 0.5 mm. Другие диаметры могут не подойти должным образом или привести к нестабильным соединениям.
- Сборка BLMchipMM
- Вставьте нехлорированные концевые части двух серебряных проволок в разъемы PCB. При необходимости используйте пинцет для их правильного позиционирования (Рисунок 3B).
- Поместите хлорированные концы проволок в жидкостные каналы, просверленные в компоненте из ПММА (Рисунок 3C).
- Осторожно поверните BLMchipMM и установите его на PCB, совместив нижний выступ камеры регистрации из ПММА со специальным пазом (Рисунок 3D).
- Проверьте положение проволок и убедитесь, что они достигают конца жидкостных каналов. При необходимости осторожно протолкните проволоки, пока их концы не появятся на дне отсеков (Рисунок 3E).
ПРЕДОСТЕРЕЖЕНИЕ: Располагайте проволоки как можно ближе к компоненту из ПММА. Чрезмерный изгиб может привести к контакту с крышкой усилителя, что вызовет короткое замыкание и насыщение сигнала.
- Подготовка липидов и регистрирующего раствора
- Приготовьте 100 µL 1% (об/об) раствора гексадекана в 100% n-гексане для предварительной обработки отверстия септы. Храните этот раствор при −20°C не более одной недели.
- Ресуспендируйте липиды 1,2-дифитаноил-sn-глицеро-3-фосфохолина (DPhPC) в 100% n-пентане до конечной концентрации 15 mg/mL. Храните этот раствор при −20°C не более 24 h.
- Приготовьте электролитный регистрирующий раствор при комнатной температуре (RT; 20°C–25°C), смешав 3 mL стокового раствора KCl 1 M с 150 µL стокового раствора 4-(2-гидроксиэтил)-1-пиперазинэтансульфоновой кислоты 1 M (pH 7.4, доведенное с помощью KOH с использованием pH-метра). Добавьте дважды дистиллированную воду до конечного объема 15 mL. Храните раствор при 4°C не более одной недели (Таблица 2).
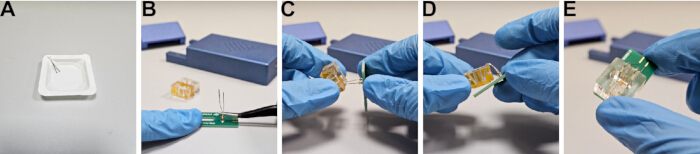
Рисунок 3: Сборка устройства BLMchipMM. (A) Хлорирование серебряных (Ag) проволок путем замачивания в отбеливателе. (B) Вставка Ag-проволок в разъемы печатной платы (PCB). (C) Размещение Ag-проволок в микрофлюидных каналах. (D) Установка регистрационной камеры на печатную плату. (E) Проверка правильности расположения электродов внутри флюидных каналов. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
| Реагент | Конечная концентрация | Объем |
| Двукратно дистиллированная вода | — | Добавьте до 15 мл |
| Хлорид калия (KCl) (1 M) | 200 мМ | 3 мл |
| HEPES pH 7,4 (KOH) (1 M) | 10 мМ | 150 µL |
Таблица 2: Электролитный регистрирующий раствор. Состав электролитного раствора, используемого для записей PLB, включая концентрации реагентов и объемы для приготовления. Конечный объем доводится до 15 mL дважды дистиллированной водой. Перед использованием регистрирующий раствор необходимо профильтровать через шприцевой фильтр 0.2 µm.
ПРИМЕЧАНИЕ: Перед использованием профильтруйте раствор для записи через шприцевой фильтр с порами 0.2 µm. Липиды DPhPC могут поставляться в виде сухого порошка или растворенными в хлороформе. Обе формы следует хранить при −20°C в герметичных стеклянных флаконах в среде инертного газа для предотвращения окисления. Перед открытием дайте сухому порошку equilibrated до RT. Готовьте свежие растворы из сухого порошка и используйте их в течение 24 h. При использовании стоковых растворов в хлороформе полностью выпарите растворитель в потоке азота перед ресуспендированием, так как остаточный хлороформ может дестабилизировать мембрану.
2. Формирование PLB методом Монтала–Мюллера
В следующих этапах описывается формирование искусственной мембраны методом складывания, также известным как техника Монталя–Мюллера5 (Рисунок 4). Данный подход включает предварительную обработку отверстия септы тонким слоем 1% (v/v) гексадекана в n-гексане, нанесение липидного раствора для формирования монослоев на границе раздела воздух–вода и складывание монослоев над отверстием по мере последовательного повышения уровня электролитного раствора в камерах.
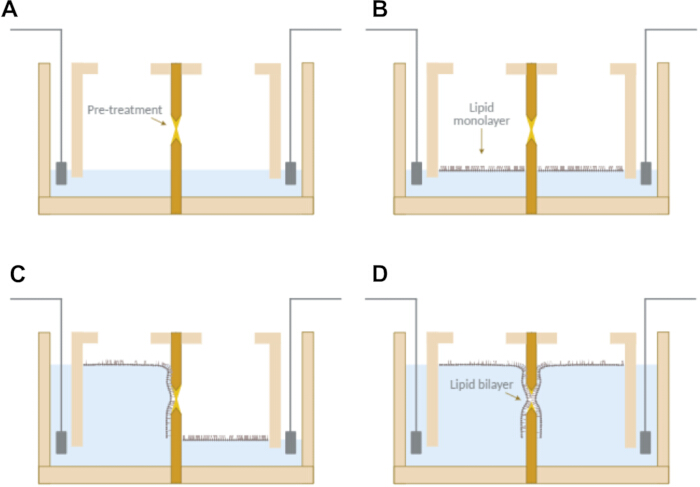
Рисунок 4: Формирование PLB методом Монталя–Мюллера. (A) Предварительная обработка апертуры 1% раствором гексадекана в n-гексане и заполнение камер до уровня апертуры. (B) Формирование липидных монослоев на границе раздела воздух–вода. (C и D) Последовательное поднятие уровня буфера в каждой камере, приводящее к складыванию монослоев и формированию безрастворительного липидного бислоя в апертуре. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
- Формирование мембраны
- Предварительно обработайте отверстие септума 1% (об/об) раствором гексадекана в н-гексане с помощью наконечника дозатора. Нанесите примерно по 2 µL на каждую сторону (Рисунок 4A).
- Дайте растворителю испариться в течение 5 мин при температуре 23°C–25°C и относительной влажности 45%–50%.
- Вставьте собранный BLMchipMM в усилитель.
- Подключите усилитель к компьютеру через USB-кабель и откройте программное обеспечение для сбора данных.
- Установите диапазон тока 2 nA и активируйте инструмент оценки RC для мониторинга емкости и сопротивления мембраны.
ПРИМЕЧАНИЕ: Настройки оценки RC сконфигурированы по умолчанию, но при необходимости могут быть отрегулированы. - Заполните каждую камеру 30 ± 2 µL регистрирующего раствора до нижнего края отверстия (Рисунок 4A).
ПРЕДОСТЕРЕЖЕНИЕ: Не допускайте смачивания регистрирующим раствором области вокруг отверстия. - Покапельно нанесите 2,5 ± 0,1 µL липидного раствора на поверхность водной фазы в каждой камере (Рисунок 4B).
- Дайте растворителю испариться в течение 2 мин.
- Поместите наконечник дозатора на дно одной из камер под углом приблизительно 90° и добавьте 80 ± 2 µL регистрирующего раствора. Повторите процедуру для второй камеры (Рисунок 4C и Рисунок 4D).
ПРИМЕЧАНИЕ: Время испарения растворителя указано для условий 23°C–25°C, неподвижного воздуха и относительной влажности 45%–50%. - Закройте крышку клетки Фарадея и контролируйте сигнал тока. Значения сопротивления мембраны выше 200 GΩ указывают на успешное формирование бислоя и хорошую целостность мембраны.
ПРИМЕЧАНИЕ: Об успешном формировании мембраны свидетельствует прямоугольный сигнал тока, колеблющийся около нуля, с амплитудой, пропорциональной емкости мембраны (Рисунок 5A).
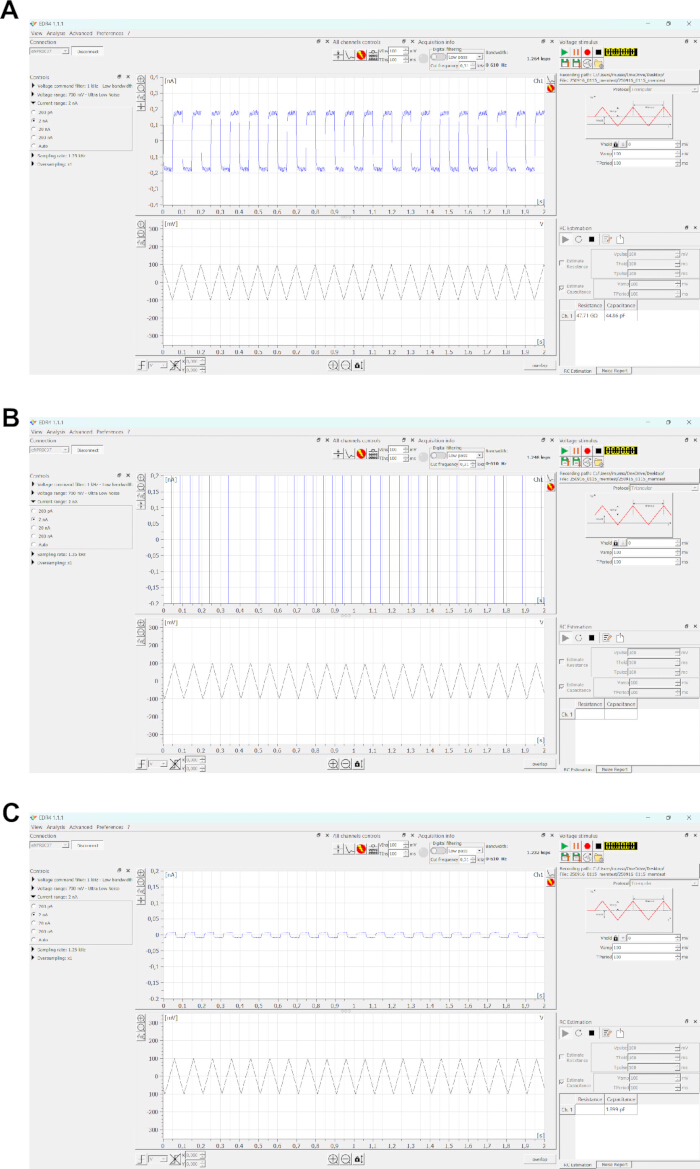
Рисунок 5: Мониторинг формирования мембраны с использованием интерфейса программного обеспечения для сбора данных. (A) Репрезентативная кривая, демонстрирующая успешное формирование мембраны. Треугольный сигнал напряжения (100 mV от пика до пика, 10 Hz) создает прямоугольный емкостный ток, пропорциональный емкости мембраны (~45 pF). (B) Репрезентативная кривая, указывающая на отсутствие формирования мембраны, что характеризуется насыщением сигнала тока. (C) Емкостный сигнал, соответствующий паразитной емкости при отсутствии сформированного бислоя, например, когда апертура открыта. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
ПРИМЕЧАНИЕ: Переключение сигнала между пределами диапазона тока указывает на повреждение мембраны (Рисунок 5B).
ПРИМЕЧАНИЕ: Среднеквадратичный (RMS) шум увеличивается с ростом емкости мембраны и, следовательно, с увеличением размера апертуры. Типичные диапазоны шума, измеренные в условиях постоянного напряжения (0 mV) при частоте дискретизации 5 kHz и ширине полосы пропускания 2.5 kHz, составляют: 0.48–2.00 pA (50 µm); 0.74–2.62 pA (75 µm); 1.00–3.52 pA (100 µm) и 1.59–5.27 pA (140 µm).
ПРИМЕЧАНИЕ: Если первые попытки оказались неудачными, понижение и последующее повышение уровня буфера в одной из камер может способствовать формированию мембраны.
ПРИМЕЧАНИЕ: При необходимости, чтобы облегчить формирование бислоя, с помощью наконечника пипетки создайте воздушный пузырек над апертурой в течение ~5 s.
ПРИМЕЧАНИЕ: Снижение уровня буфера ниже апертуры или попадание пузырька воздуха может вызвать появление сигнала, соответствующего паразитной емкости (Рисунок 5C). Если выходной сигнал напоминает Рисунок 5B, предварительная обработка могла оказаться неэффективной. Повторно нанесите раствор для предварительной обработки и липиды, либо очистите устройство и повторите процедуру.
ПРЕДУПРЕЖДЕНИЕ: Выполняйте компенсацию смещения напряжения только при отсутствии мембраны. Если мембрана присутствует, разделите ее с помощью функции ZAP перед проведением компенсации.
ПРИМЕЧАНИЕ: Эксперименты можно проводить на стандартном лабораторном столе, однако при необходимости можно использовать виброизоляционный стол.
3. Очистка BLMchipMM
- Снимите регистрирующую камеру с печатной платы (PCB).
- Промойте обе секции и жидкостные каналы 100% изопропиловым спиртом (IPA).
ПРЕДОСТЕРЕЖЕНИЕ: Время воздействия IPA не должно превышать 1 мин.
ПРЕДОСТЕРЕЖЕНИЕ: Не используйте ацетон или 100% этанол, так как эти растворители могут повредить уплотнительный материал камеры.
ПРИМЕЧАНИЕ: Перед использованием любых дополнительных растворителей проверьте их совместимость с ПММА. - Тщательно промойте дважды дистиллированной водой.
- Полностью высушите регистрирующую камеру, используя слабую струю сжатого воздуха, пока не исчезнут все видимые капли воды.
ПРИМЕЧАНИЕ: Осмотрите камеру под освещенным увеличителем, чтобы убедиться в отсутствии остаточных масляных пленок. При необходимости повторите процедуру очистки и сушки.
ПРИМЕЧАНИЕ: Перед началом нового эксперимента убедитесь, что камера полностью чистая и сухая.
4. Экспрессия и очистка синтетического ионного канала (ancTREK1)
- Подготовка экспрессионного конструкта
В следующих разделах описаны стратегии клонирования, гетерологичная экспрессия в клетках Freestyle-293F и очистка белка ancTREK1.
Сконструируйте экспрессионный вектор с помощью ПЦР-амплификации, рестрикции, лигирования и трансформации в химически компетентные клетки Escherichia coli23,24Экспрессируйте последовательность ancTREK1 (Дополнительный рисунок 1) с использованием вектора для клеток млекопитающих, содержащего C-концевой GFP-тег и His₈-тег, что позволяет осуществлять флуоресцентную детекцию25,26 и двухступенчатая аффинная очистка с использованием никель-нитрилотриуксусной кислоты (Ni2смола Ni⁺-NTA)27,28,29 с последующим использованием смолы с нанотелами к GFP30,31,32. - Амплификация ДНК ancTREK1 методом ПЦР
- Разведите праймеры для ПЦР и матричную ДНК до конечных концентраций 10 µM и ~20 нг/µL с использованием стерильной дважды дистиллированной воды.
- Разморозьте все реагенты на льду.
- Подготовьте 50 µL ПЦР-смесь, содержащая 10 µL 5-кратного буфера, 2.5 µL каждого 10 µM праймер 2 µL ДНК-матрицы, 1 µL 10 мМ dNTP, 0.5 µL высокоточной ДНК-полимеразы и стерильной дважды дистиллированной воды до достижения конечного объема (Таблица 3Осторожно перемешайте и коротко центрифугируйте.
- Проведите ПЦР при следующих условиях: начальная денатурация при 98°C в течение 3 мин; 30 циклов 98°C в течение 30 с, 68°C в течение 30 с, и 72°C в течение 30 с; финальная элонгация при 72°C в течение 3 мин (Таблица 4).
- Проведите электрофорез ПЦР-продукта в 1% (масс./об.) агарозном геле в 1× буфере TAE при напряжении 60 В в течение 90 мин и вырежьте соответствующую полосу.
ПРИМЕЧАНИЕ: Очистите продукты ПЦР методом экстракции из геля, измерьте концентрацию ДНК при 260 нм и храните очищенные продукты ПЦР при −20°C при необходимости.
- Проведение рестрикционного расщепления
- Подготовьте реакционные смеси для переваривания, содержащие 2 µg ПЦР-продукта и 2 µg плазмидной ДНК в отдельные пробирки. Добавьте 5 µL 10-кратного буфера, 0.5 µL EcoRI и 0.5 µL рестриктазы NotI, и доведите до 50 µL двоистиллированной водой (Таблица 5).
- Осторожно перемешайте и инкубируйте при 37°C в течение 3 ч.
- Термически инактивируйте ферменты при 65°C в течение 20 мин.
- Добавить 1 µL щелочную фосфатазу к смеси для рестрикции вектора и инкубировать при 37°C в течение 1 ч.
- Проведите электрофорез продуктов рестрикции в 1% агарозном геле и вырежьте необходимые полосы.
ПРИМЕЧАНИЕ: Очистите фрагменты ДНК с помощью соответствующих методов очистки и храните очищенную ДНК при −20°C при необходимости.
- Проведите лигирование и трансформацию
- Приготовьте 20 µL реакционная смесь для лигирования, содержащая вектор и вставку (молярное соотношение 3:1), 2 µL 10-кратный буфер для лигазы, и 1 µL фермент лигаза (Таблица 6).
- Инкубируйте при комнатной температуре в течение 1 часа.
- Разморозьте химически компетентные клетки E. coli на льду.
- Добавить 5 µL смеси для лигирования в 50 µL клеток и инкубировать на льду в течение 20 мин.
- Тепловой шок при 42°C в течение 1 мин, затем снова поместите на лед на 2 мин.
- Добавить 450 µL среда LB и инкубация при 37°C при перемешивании в течение 1 ч.
- Центрифугируйте при 3 000 × g в течение 1 мин, затем ресуспендируйте осадок в 50 µL.
- Высейте на селективный агар и инкубируйте в течение ночи при 37°C.
ПРИМЕЧАНИЕ: Подтвердите успешность клонирования с помощью секвенирования.
- Трансфекция клеток HEK293F
- Засейте 250 мл культуры клеток 293F с плотностью 0,5 × 10⁶ клеток/мл в безсывороточной суспензионной среде и инкубировать при 37°C с 6% CO₂.
- Подготовка 250 µg ДНК в конечном объеме 3 мл среды с пониженным содержанием сыворотки.
- Приготовьте 750 µg приготовьте раствор полиэтиленимина (PEI) в воде с концентрацией 1 мг/мл, доведите значение pH до 6,9–7,1 с помощью NaOH, пропустите раствор через стерилизующий фильтр и доведите конечный объем до 3 мл, используя среду с пониженным содержанием сыворотки.
- Смешайте растворы ДНК и ПЭИ, осторожно перемешайте и инкубируйте в течение 10 мин при комнатной температуре.
- Покапельно добавьте смесь к клеткам.
- Через 4 ч добавьте бутират натрия до конечной концентрации 10 мМ.
- Соберите клетки через 48 ч путем центрифугирования при 500 × g в течение 15 мин.
- Храните осадки клеток при −80°C.
- Солюбилизация мембранных белков
- Разморозьте осадки клеток из 100 мл культуры HEK293 на льду.
- Ресуспендируйте клеточный осадок в лизирующем буфере в соотношении 1:10 (масса/объем) (Таблица 7).
Добавьте детергент до конечных концентраций 1% n-додецил-β-D-мальтозида (DDM) и 0,1% холестерилгемисукцината (CHS). - Инкубировать при перемешивании при 4°C в течение 2 ч.
- Центрифугируйте при 100 000 × g в течение 1 ч при 4°C.
- Соберите супернатант.
ПРЕДОСТЕРЕЖЕНИЕ: Все этапы следует выполнять при 4°C с использованием предварительно охлажденных буферов.
- Провести очистку методом IMAC
- Упаковка 500 µL Ni2⁺смолу Ni-NTA в гравитационную колонку.
- Уравновесьте смолу двумя колоночными объемами (CV) уравновешивающего буфера (Таблица 8).
- Загрузите образец и инкубируйте при осторожном перемешивании со скоростью 10 об/мин и 4°C в течение 3 ч.
- Установите колонку вертикально и соберите фильтрат путем гравитационного стока.
- Промойте смолу 10 объемными порциями (CV) промывочного буфера, содержащего 30 мМ имидазола.
- Элюируйте белок 10 объемами колонки (CV) элюирующего буфера, содержащего 300 мМ имидазола.
ПРИМЕЧАНИЕ: Проанализируйте фракции методом электрофореза в ПААГ с SDS (Рисунок 6). Сохраните фракции проскока и промывки для анализа. Храните белок при 4°C в течение ночи при необходимости
- Проведите очистку с помощью антител к GFP
- Заполните гравитационную колонку 1 мл смолы с антителами к GFP.
- Уравновесьте смолу 2 CV Буфера 1 (Таблица 9Загрузите элюат после IMAC и инкубируйте при осторожном перемешивании со скоростью 10 об/мин и 4°C в течение 3 ч.
- Установите колонку вертикально и соберите фильтрат путем гравитационного стока.
- Последовательно промойте смолу 10 объемными порциями (CV) буфера 1, 10 объемными порциями (CV) буфера 2 и 10 объемными порциями (CV) буфера 1.
- Разбавьте протеазу HRV-3C в 2 мл Буфера 1 при соотношении протеазы к белку 1:50.
- Добавьте к смоле буфер 1 с добавлением протеазы HRV-3C, осторожно перемешайте и инкубируйте в течение ночи при 4°C в вертикальном статическом положении.
- Соберите расщепленный белок из элюирующей фракции.
- Сконцентрируйте образец с помощью центрифужного концентратора с порогом отсечения 50 кДа при 3000 × g и 4°C до достижения конечного объема приблизительно 500 µL достигнуто.
ПРИМЕЧАНИЕ: Проанализируйте фракции с помощью SDS-PAGE (Рисунок 7). Периодически ресуспендируйте белок в процессе концентрирования для предотвращения агрегации. Храните очищенный белок при −80°C после экспресс-заморозки. Приблизительно 60 µg из 100 мл культуры можно получить белка.
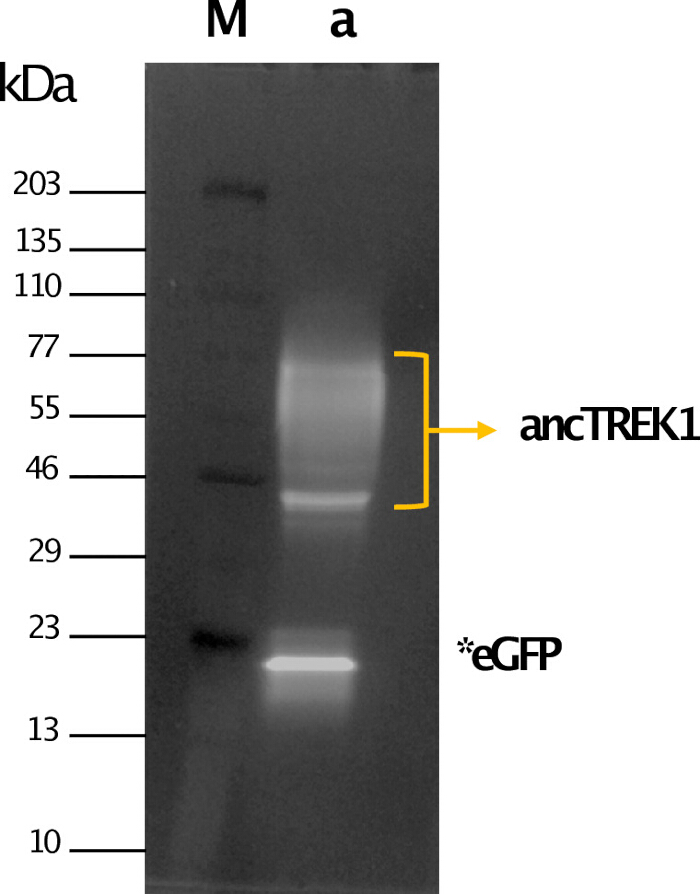
Рисунок 6: Очистка ancTREK1 методом металло-аффинной хроматографии (IMAC). Анализ фракций элюции IMAC с помощью электрофореза в полиакриламидном геле в присутствии додецилсульфата натрия (SDS-PAGE) с флуоресцентной детекцией. Дорожка M: маркер молекулярной массы. Дорожка a: фракция элюции IMAC, содержащая ancTREK1 с меткой зеленого флуоресцентного белка (GFP) (желтая стрелка). Свободный GFP, образовавшийся в результате автокаталитического расщепления, отмечен как (*eGFP). Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
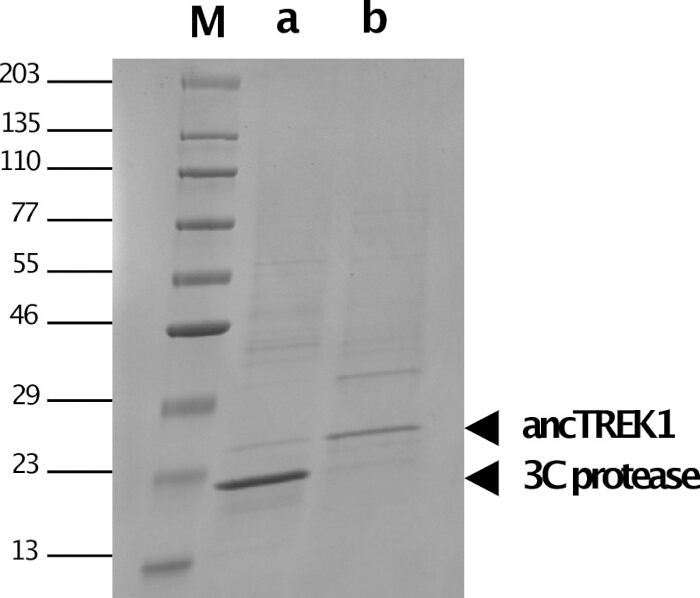
Рисунок 7Очистка ancTREK1 методом аффинной хроматографии с использованием нанотел к GFP. Анализ элюированных фракций методом ЭСД-ПААГ с окрашиванием кумасси синим. Дорожка M: маркер молекулярных масс. Дорожка a: фракция элюции анти-GFP, демонстрирующая наличие протеазы 3C. Дорожка b: очищенный ancTREK1 после концентрирования. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
| Реагент | Объем для 50 µL реакция | Конечная концентрация |
| Дважды дистиллированная вода | Добавьте в 50 µL | — |
| 5× PhusionТМ буфер GC | 10 µL | 1× |
| dNTP (по 10 мМ каждого) | 1 µL | 200 µM каждый |
| Прямой праймер (10 µM) | 2.5 µL | 0.5 µM |
| Обратный праймер (10 µM) | 2.5 µL | 0.5 µM |
| Матричная ДНК (20 нг/µL) | 2 µL | 0,8 нг/µL |
| PhusionТМ высокоточная ДНК-полимераза | 0.5 µL | 0,02 ед/µL |
Таблица 3: Схема проведения полимеразной цепной реакции (ПЦР) для амплификации ancTREK1. Состав реагентов, объемы и конечные концентрации, используемые для ПЦР-амплификации последовательности ДНК ancTREK1 с применением системы высокоточной ДНК-полимеразы.
| Шаг | Температура | Время | Циклы |
| Начальная денатурация | 98°C | 3 мин | 1 |
| Денатурация | 98°C | 30 с | 30 |
| Отжиг | 68°C | 30 с | 30 |
| Расширение | 72°C | 30 с | 30 |
| Окончательная экспансия | 72°C | 3 мин | 1 |
| Удерживать | 12°C | Удерживайте | — |
Таблица 4: Условия ПЦР-циклирования для амплификации ancTREK1.Параметры термоциклирования, использованные для амплификации последовательности ДНК ancTREK1, включая этапы денатурации, отжига, элонгации и финальной элонгации.
| Компонент | Рестрикция вставки (50 µL) | Рестрикция и дефосфорилирование вектора (50 µL) |
| ddH₂O | До 50 µL | До 50 µL |
| 10× ANZA Red Buffer | 5 µL | 5 µL |
| ДНК | ПЦР-продукт ancTREK1 (2 µg) | ДНК вектора pEG BacMam C-term 3C eGFP His8 (2 µg) |
| Anza™ EcoRI | 0.5 µL | 0.5 µL |
| Anza™ NotI | 0.5 µL | 0.5 µL |
| Anza™ Alkaline Phosphatase | — | 1 µL |
Таблица 5: Рестрикция вставки и вектора для клонирования ancTREK1. Условия реакции рестрикции ПЦР-продукта ancTREK1 и экспрессионного вектора с использованием ферментов EcoRI и NotI. Дигестия вектора включает дополнительный этап дефосфорилирования с помощью щелочной фосфатазы для предотвращения самолигирования.
| Компонент | Количество (20 µL реакция) |
| двойная дистиллированная H₂O | К 20 µL |
| 10× буфер для Т4 ДНК-лигазы | 2 µL |
| вставка ДНК ancTREK1 (843 п. н.) | 10 нг |
| векторная ДНК pEG BacMam C-term 3C eGFP His8 (7673 п. н.) | 30 нг |
| Т4 ДНК-лигаза | 1 µL |
Таблица 6: Условия лигирования вектора и вставки для клонирования ancTREK1.Реакционная смесь для лигирования вставки ancTREK1 в экспрессионный вектор pEG BacMam в молярном соотношении 1:3 с использованием T4 ДНК-лигазы.
| Компонент | Конечная концентрация | Объем (до 5 мл) |
| ддиH₂O | — | До 5 мл |
| KCl (1 M) | 200 мМ | 1 мл |
| Tris-HCl pH 8 (1 М) | 20 мМ | 100 µL |
| MgCl₂ (100 мМ) | 1 мМ | 50 µL |
| ингибитор протеаз PMSF (100 мМ) | 1 мМ | 50 µL |
| Ингибитор протеаз леупептин (1 мг/мл) | 1 µg/mL | 5 µL |
| Ингибитор протеаз апротинин (1 мг/мл) | 1 µg/mL | 5 µL |
| Ингибитор протеаз пепстатин А (1 мг/мл) | 1 µg/mL | 5 µL |
| ДНКаза I (50 мг/мл) | 25 µg/mL | 2.5 µL |
| n-додецил-β-D-мальтозид (DDM, 10%) | 1% | 500 µL |
| Холестерилгемисукцинат (CHS, 2%) | 0.10% | 250 µL |
Таблица 7: Состав лизирующего буфера для экстракции мембранных белков. Состав лизирующего буфера, используемого для солюбилизации мембранных белков, включая соли, буферные агенты, ингибиторы протеаз, нуклеазу и детергенты. Примечание: буферы следует готовить непосредственно перед использованием.
| Буфер для уравновешивания (общий объем 10 мл) | ||
| Компонент | Конечная концентрация | Количество |
| ддиH₂O | — | До 10 мл |
| KCl (1 М) | 200 мМ | 2 мл |
| Трис-HCl pH 8 (1 M) | 20 мМ | 200 µL |
| н-Додецил-β-D-мальтозид (DDM, 10%) | 0.05% | 50 µL |
| Холестерилгемисукцинат (CHS, 2%) | 0.01% | 50 µL |
| Промывочный буфер (общий объем 10 мл) | ||
| Компонент | Конечная концентрация | Количество |
| ддиH₂O | — | До 10 мл |
| KCl (1 M) | 200 мМ | 2 мл |
| Tris-HCl pH 8 (1 M) | 20 мМ | 200 µL |
| n-Додецил-β-D-мальтозид (DDM, 10%) | 0.05% | 50 µL |
| Холестерилгемисукцинат (CHS, 2%) | 0.01% | 50 µL |
| Имидазол, pH 8 (5 M) | 30 мМ | 60 µL |
| Элюирующий буфер (общий объем 10 мл) | ||
| Компонент | Конечная концентрация | Количество |
| двдист. H₂O | — | До 10 мл |
| KCl (1 М) | 200 мМ | 2 мл |
| Трис-HCl pH 8 (1 M) | 20 мМ | 200 µL |
| н-додецил-β-D-мальтозид (DDM, 10%) | 0.05% | 50 µL |
| Холестерилгемисукцинат (CHS, 2%) | 0.01% | 50 µL |
| Имидазол, pH 8 (5 M) | 300 мМ | 600 µL |
Таблица 8: Составы буферов IMAC для очистки ancTREK1.Составы уравновешивающего, промывочного и элюирующего буферов, используемых для очистки ancTREK1 методом аффинной хроматографии на иммобилизованных ионах металлов. Примечание: растворы могут храниться при 4°C до шести месяцев.
| Буфер 1 (общий объем 10 mL) | ||
| Компонент | Конечная концентрация | Количество |
| ddH₂O | — | до 10 mL |
| KCl (1 M) | 200 mM | 2 mL |
| Tris-HCl pH 8 (1 M) | 20 mM | 200 µL |
| n-Dodecyl-β-D-maltoside (DDM, 10%) | 0.05% | 50 µL |
| Cholesteryl hemisuccinate (CHS, 2%) | 0.01% | 50 µL |
| Буфер 2 (общий объем 10 mL) | ||
| Компонент | Конечная концентрация | Количество |
| ddH₂O | — | до 10 mL |
| KCl (1 M) | 500 mM | 5 mL |
| Tris-HCl pH 8 (1 M) | 20 mM | 200 µL |
| n-Dodecyl-β-D-maltoside (DDM, 10%) | 0.05% | 50 µL |
| Cholesteryl hemisuccinate (CHS, 2%) | 0.01% | 50 µL |
Таблица 9: Составы буферов для аффинной хроматографии с использованием нанотел к GFP. Составы буферов, используемых для очистки ancTREK1 методом аффинной хроматографии с использованием нанотел к GFP. Примечание: растворы могут храниться при 4°C до шести месяцев.
5. Регистрация активности ионных каналов
- Оценка качества мембраны
- Закройте крышку клетки Фарадея.
- Подайте треугольную форму сигнала напряжения (100 mV, 10 Hz) для оценки емкости мембраны.
- Подайте ступенчатые скачки напряжения (шагами по ±20 mV до ±200 mV) для оценки сопротивления мембраны.
- Контролируйте значения тока и шума.
ПРИМЕЧАНИЕ: Используйте частоту дискретизации 5 kHz и фильтрацию нижних частот 2.5 kHz, если не требуется иное.
- Регистрация активности ancTREK1
- Разведите белок ancTREK1 в регистрирующем растворе до концентрации ~2 µg/mL.
ПРИМЕЧАНИЕ: При разведении, при необходимости, выполните промежуточные разведения в Буфере 1, чтобы поддерживать концентрацию детергента выше его критической концентрации мицеллообразования (CMC) перед окончательным разведением в регистрирующем растворе. - Добавьте 1 µL разведенного раствора белка в цис-камеру рядом с отверстием септы.
ПРИМЕЧАНИЕ: Мембранный потенциал определяется как Vcis − Vtrans. Ориентация каналов в данном исследовании напрямую не определялась; следовательно, записи описываются относительно полярности приложенного напряжения, а не присвоенной стороной мембраны. - Подайте ступенчатые скачки напряжения шагами по ±20 mV до ±120 mV.
- Отслеживайте события встраивания каналов.
ПРИМЕЧАНИЕ: Встраивание канала характеризуется дискретными переходами тока между закрытым и открытым состояниями. Если встраивание не происходит, добавьте больше белка или сформируйте мембрану заново. Если встроилось несколько каналов, разрушьте мембрану и снизьте концентрацию белка.
- Разведите белок ancTREK1 в регистрирующем растворе до концентрации ~2 µg/mL.
Результаты
Вольт-амперные характеристики (ВАХ) мембран PLB
Внутренняя гидрофобная природа бислойных мембран делает их непроницаемыми для заряженных частиц. Однако воздействие внешнего электрического поля может индуцировать образование временных пор нанометрового размера, влияя тем самым на проницаемость и проводимость мембраны33. Для оценки качества искусственных бислоев, сформированных из липидов 1,2-дифитаноил-sn-глицеро-3-фосфохолина, в отсутствие встроенных белков оценивались емкость, сопротивление и вольтамперные характеристики (I–V) мембраны. Применялась серия ступеней напряжения в диапазоне от ±20 до ±200 mV (с шагом ±20 mV), и регистрировались результирующие трансмембранные токи. Сбор данных осуществлялся с частотой 5 kHz с последующей фильтрацией низких частот на 2.5 kHz.
Емкость мембраны (Cm) и сопротивление мембраны (Rm) являются ключевыми параметрами для оценки качества бислоя. ПЛБ можно описать с помощью эквивалентной резисторно-конденсаторной (RC) цепи, в которой мембрана ведет себя как конденсатор, соединенный параллельно с резистором34. Емкостный компонент отражает способность мембраны накапливать заряд, тогда как резистивный компонент отражает ионную проницаемость. Приложение треугольной формы напряжения генерирует прямоугольный отклик емкостного тока, который пропорционален емкости мембраны согласно формуле:
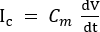 (1)
Здесь Cm — емкость мембраны, V — приложенное напряжение, а t — время. После формирования мембраны значения емкости могут увеличиваться с течением времени из-за постепенного истончения бислоя35. Если рассматривать мембрану как плоский конденсатор, то емкость связана с площадью и толщиной мембраны следующим образом:
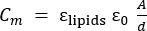 (2)
Здесь εlipids — диэлектрическая проницаемость липидного ядра (~2), ε0 — электрическая постоянная (диэлектрическая проницаемость вакуума), A — площадь мембраны, а d — толщина мембраны36,37.
Сопротивление мембраны определяли по закону Ома33:
 (3)
Здесь V — приложенное напряжение, а Rm — сопротивление мембраны. В отсутствие ионных каналов мембранный ток остается близким к 0 pA, что соответствует значениям сопротивления в диапазоне гигаом (GΩ)33.
Вольт-амперная характеристика (ВАХ) демонстрировала линейное (омическое) поведение в диапазоне от 0 до ±200 mV для устройств BLMchipMM с апертурами 75 и 100 µm. Линейная аппроксимация данных позволила получить значения сопротивления мембраны 847 ± 16 GΩ (n = 6) для апертуры 75 µm (Рисунок 8A, круги) и 980 ± 32 GΩ (n = 7) для апертуры 100 µm (Рисунок 8A, квадраты). Значения среднеквадратичного (RMS) шума, измеренные на сегментах тока длительностью 3 s, составили 3.1 ± 2 pA (n = 7) для апертуры 100 µm и 2.6 ± 0.1 pA (n = 6) для апертуры 75 µm. Стабильность мембраны оценивали путем измерения сопротивления с интервалом примерно 2 min в течение общего времени 1 h (Рисунок 8B). Правильно сформированные мембраны оставались стабильными на протяжении более 1 h, чего достаточно для большинства электрофизиологических экспериментов. Мембраны обычно выдерживали приложенные потенциалы до ±200 mV без признаков нестабильности, в то время как пробой происходил в диапазоне от ±220 до ±300 mV в зависимости от конкретного бислоя. Мембраны считались пригодными для встраивания белков, если значения емкости находились в пределах от 40 до 60 pF для апертур 75 µm и от 60 до 90 pF для апертур 100 µm при значениях тока ≤0.5 pA при 100 mV.
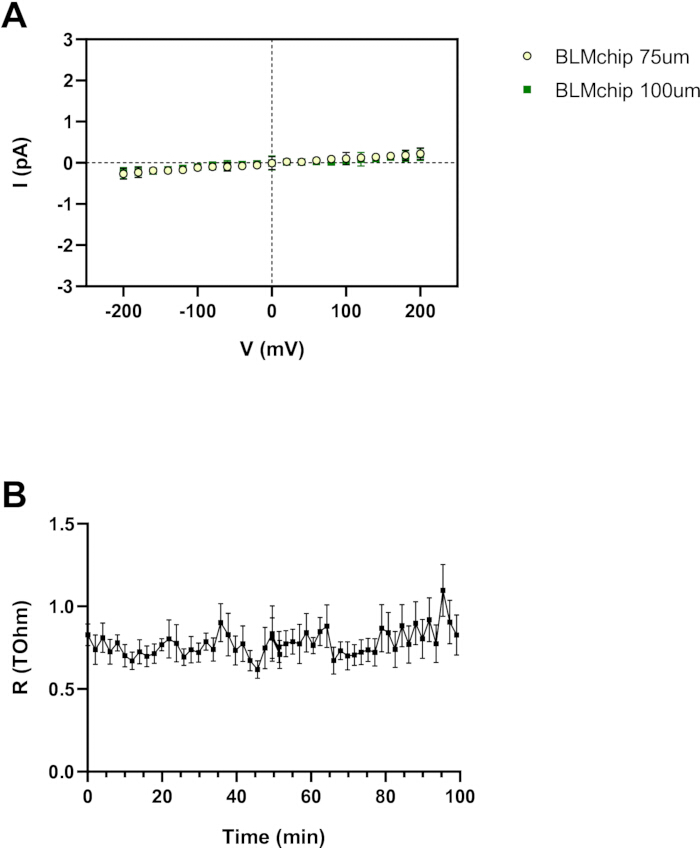
Рисунок 8: Электрическая характеристика PLB. (A) Зависимости тока от напряжения (I–V) бислоев, сформированных на апертурах 75 µm и 100 µm, демонстрирующие линейное (омическое) поведение в диапазоне ±200 mV. Линейная регрессия дает значения сопротивления мембран 847 ± 16 GΩ (n = 6) и 980 ± 32 GΩ (n = 7) соответственно. (B) Стабильность мембран, оцениваемая путем мониторинга сопротивления в течение 1 h с интервалом в 2 min. Мембраны остаются стабильными при напряжениях до ±200 mV и разрываются при напряжениях от ±220 до ±300 mV. Данные представлены как среднее значение ± стандартная ошибка среднего (SEM). Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
Первичная характеристика поведения одиночного канала ancTREK1
Синтетический ancTREK1 был очищен и реконструирован в PLB; активность одиночного канала контролировали с использованием протоколов ступенчатого изменения напряжения в диапазоне от −120 до 120 mV с шагом 20 mV. Записи одиночных каналов (Рисунок 9A и Рисунок 9B) выявили характерное мерцающее поведение каналов K2P38. При 80 mV средняя амплитуда тока составила 13,02 ± 0,78 pA (n = 5), тогда как при −80 mV амплитуда тока увеличилась до −18,72 ± 0,25 pA (n = 5) (Рисунок 9C). Полученная вольтамперная характеристика (ВАХ) показала измеримые токи одиночного канала как при положительных, так и при отрицательных потенциалах в условиях симметричного 200 mM раствора калия без Mg2+ (Рисунок 9D). Поскольку амплитуды токов оценивались по гистограммам всех точек записей, полученных с частотой 5 kHz и с низкочастотной фильтрацией 2,5 kHz, данная ВАХ представлена как описательное подтверждение принципа, а не как исчерпывающая биофизическая характеристика.
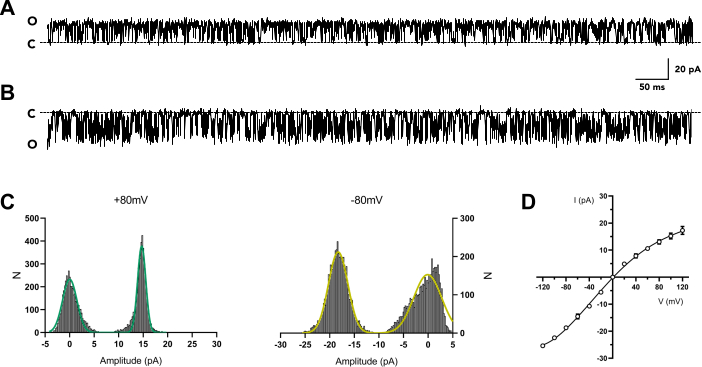
Рисунок 9: Активность одиночных каналов синтетического ancTREK1. (A и B) Репрезентативные записи токов одиночных каналов, зарегистрированные при 80 mV и −80 mV соответственно. Пунктирные линии обозначают уровень закрытого канала. (C) Гистограммы амплитуд всех точек для положительных (слева) и отрицательных (справа) потенциалов. (D) Вольт-амперная характеристика (I–V) ancTREK1 в условиях симметричного 200 mM K+ без двухвалентных катионов. Кривая аппроксимирована полиномом четвертого порядка; значения проводимости рассчитаны по наклону при ±80 mV. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
Несмотря на то, что ancTREK1 лишен расширенных N- и C-концевых областей по сравнению с млекопитающими каналами TREK1, он оставался функционально активным после реконституции. В отличие от TREK1 млекопитающих, который демонстрирует режимы высокой и низкой проводимости (132 ± 5 pS и 41 ± 5 pS при положительных потенциалах соответственно)39, ancTREK1 проявлял только режим высокой проводимости. Проводимость одиночного канала при положительных потенциалах составляла 112.8 ± 10.8 pS (80 mV, n = 5), что согласуется с опубликованными значениями для каналов TREK (85–130 pS в условиях симметричного содержания калия)38,39,40,41. При отрицательных потенциалах проводимость увеличивалась до 205.6 ± 2.05 pS (−80 mV, n = 5), что соответствует ранее описанному поведению TREK139. Примечательно, что ancTREK1 демонстрировал более высокую нормированную вероятность открытия (NPo) по сравнению с измерениями TREK1, полученными с использованием конфигурации вырезанного патча (excised patch)42. Зависимость NPo от напряжения показала повышенную активность каналов при положительных потенциалах, достигающую 0.78 ± 0.02 (n = 5) при 80 mV. Напротив, NPo снижалась при отрицательных потенциалах, принимая значения 0.53 ± 0.04 при −80 mV и 0.28 ± 0.03 при −120 mV (Рисунок 10).
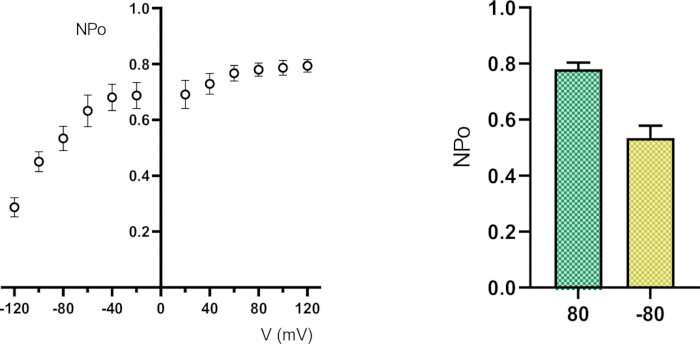
Рисунок 10: Анализ вольтаж-зависимости активности одиночного канала ancTREK1. Нормированная вероятность открытия (NPo) в зависимости от мембранного потенциала (слева) и сравнение NPo при 80 mV и −80 mV (справа), демонстрирующее увеличение открытия каналов при положительных потенциалах. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
Дополнительная фигура 1. Аминокислотная последовательность синтетического предкового двухпоричного калиевого (K2P) канала (ancTREK1). Полноразмерная аминокислотная последовательность ancTREK1, использованная для электрофизиологических записей. Последовательность была реконструирована путем вывода предковой последовательности на основе курируемого набора данных членов семейства TREK/TRAAK, включая ортологичные последовательности, собранные из баз данных UniProt и NCBI, отфильтрованные по консервативным пористым мотивам, выровненные и проанализированные с использованием филогенетики максимального правдоподобия.Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Обсуждение
В данном исследовании мы использовали метод PLB для оценки электрофизиологических свойств синтетического канала K2P на уровне отдельных молекул. Среди различных плоских липидных моделей, описанных в научной литературе, мы сосредоточились на формировании BLM, которые наносятся на отверстие диаметром от 50 до 140 µm, просверленное в вертикальной неполярной перегородке, разделяющей два водных отсека. Такая конфигурация позволяет имитировать среду клеточной мембраны, сохраняя при этом контроль над экспериментальными параметрами, включая подготовку липидной мембраны и состав электролита (например, ионную силу и pH)3. Мы воссоздавали BLM с помощью метода Монталя–Мюллера (метод складывания)5, при котором мембрана собирается спонтанно, когда два липидных монослоя, предварительно распределенных на границе раздела воздух–вода двух водных растворов, соединяются над отверстием при поднятии уровня воды.
Представленный здесь протокол формирования мембраны весьма интуитивен, однако несколько критических этапов существенно влияют на успех эксперимента. Для обеспечения надлежащего электрического соединения между BLMchipMM и усилителем необходимо избегать хлорирования концов проволоки Ag/AgCl, которые вставляются в разъемы печатной платы. При сборке BLMchipMM неправильное расположение проводов может привести к их контакту с корпусом усилителя, что вызовет короткое замыкание и насыщение сигнала. Еще одним критическим фактором является процедура предварительной обработки апертуры: чрезмерное усилие при нанесении раствора для предварительной обработки может повредить полиимидную перегородку, а неправильное обращение с электролитом — в частности, чрезмерное замачивание области апертуры — может затруднить формирование мембраны. Кроме того, для обеспечения воспроизводимости результатов крайне важна тщательная очистка записывающей камеры BLMchipMM. Использование 100% изопропилового спирта с последующим тщательным промыванием и полным высушиванием гарантирует, что остатки веществ не будут препятствовать проведению последующих экспериментов.
Возможны несколько модификаций протокола. Хотя хлорирование путем замачивания в отбеливателе представляет собой практический и широко используемый подход, также могут быть применены альтернативные методы, такие как гальваностегия43. Аналогичным образом возможны вариации в предварительной обработке и подготовке липидов. Стандартные растворы для предварительной обработки обычно состоят из длинноцепочечных алканов, растворенных в летучих углеводородных растворителях36; хотя обычно используется 1% раствор гексадекана в н-гексане, могут быть подходящими и другие растворители. Липидный состав также может быть адаптирован в зависимости от требований эксперимента. В то время как липиды DPhPC обеспечивают оптимальную стабильность мембраны, могут быть использованы альтернативные липидные смеси, включая природные или синтетические составы36. Ключевым преимуществом вертикальных липидных бислоев, сформированных методом складывания, является возможность создания асимметричных мембран, где каждый листок состоит из разных видов липидов5,22, что, как известно, влияет на функцию мембранных белков.
Устранение проблем при формировании мембраны обычно включает корректировку уровня водной фазы. Если мембрана не образуется изначально, многократное понижение и повышение уровня буфера в одном из отделений может способствовать сборке бислоя. В случае неудачи применение пузырька воздуха над апертурой может стимулировать перераспределение липидов и формирование мембраны. Постоянные сбои обычно указывают на проблемы, связанные с предварительной обработкой или загрязнением, в таком случае рекомендуется очистить регистрирующую камеру и начать эксперимент заново.
Основные компоненты данной установки включают компактный усилитель eNPR 100 kHz и BLMchipMM. Усилитель представляет собой компактную малошумящую систему фиксации потенциала (voltage-clamp), которая устраняет необходимость в дополнительных внешних устройствах, включая внешние клетки Фарадея, так как корпус самого усилителя обеспечивает эффективное электромагнитное экранирование. BLMchipMM — это предварительно собранная миниатюрная регистрирующая камера, интегрированная с печатной платой для прямого подключения к усилителю. Она состоит из двух С-образных отсеков, разделенных полиимидной перегородкой с конической лазерной апертурой, в которой формируется искусственная мембрана. Уменьшенные размеры системы с объемом отсеков примерно 110 µL значительно снижают расход реагентов и уменьшают собственную емкость, тем самым повышая качество сигнала. Кроме того, при соблюдении надлежащих процедур очистки устройство можно использовать многократно без разборки, что снижает вариабельность и повышает воспроизводимость экспериментов.
Несмотря на эти преимущества, следует учитывать некоторые ограничения. Текущая установка не включает интегрированные модули для контроля температуры, давления или перфузии. Было сообщено, что внутреннее мембранное натяжение влияет на механочувствительные каналы, такие как TREK144,45,46; однако данная установка не предусматривает контролируемого манипулирования натяжением мембраны, и в данной работе механистические выводы не делаются. В целом, эта платформа представляет собой надежную и доступную систему для регистрации активности ионных каналов в искусственных мембранах. В этом исследовании мы изучили синтетический K2P-канал ancTREK1 — предковый канал подсемейства TREK, полученный с помощью компьютерного моделирования. Зарегистрированные данные показывают, что очищенный ancTREK1, реконструированный в PLB, проявляет поведение одиночного канала, соответствующее описанным свойствам проводимости, характерным для TREK1. В условиях симметричного 200 mM раствора калия без Mg2+ канал демонстрирует измеримую зависимость I–V с амплитудными значениями примерно 13 pA при 80 mV и −19 pA при −80 mV. Кроме того, ancTREK1 проявляет характерный режим высокой проводимости, наблюдаемый в каналах TREK1, с более высокой проводимостью при отрицательных потенциалах (~205.6 pS) по сравнению с положительными потенциалами (~112.8 pS). Примечательно, что ancTREK1 демонстрирует повышенный NPo при положительных потенциалах (0,78 при 80 mV) и сниженный NPo при отрицательных потенциалах (0,53 при −80 mV и 0,28 при −120 mV), что отличается от наблюдений в конфигурациях вырезанных патчей42. Эти результаты подтверждают возможность использования данной системы для принципиальной регистрации одиночных каналов реконструированных мембранных белков.
Раскрытие информации
F.T. и A.P. являются генеральным директором и сотрудником компании Elements S.r.l. соответственно. Все остальные авторы заявляют об отсутствии конфликта интересов.
Благодарности
Мы благодарим Софию Дилетту Гуццелони за помощь в процедуре трансфекции клеток. Мы признательны сотрудникам Elements доктору Леону Хуаресу и доктору Микеланджело Пачи. Данная работа была поддержана кафедрой молекулярной медицины Университета Павии, Италия, в рамках инициативы Dipartimenti di Eccellenza (2023–2027), фондом Cariplo (#2019-1809) и исследовательской программой PNRR CN00000013 «Национальный центр высокопроизводительных вычислений, больших данных и квантовых вычислений» (National Centre for HPC, Big Data and Quantum Computing) для M.L.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| 1,2-дифитаноил-sn-глицеро-3-фосфохолин (DPhPC) | Avanti Polar Lipids | 850356P | Формирование искусственных липидных бислоев |
| 2-Пропанол (≥99.5%) | Honeywell | 24137-5L | Очистка устройства BLMchipMM |
| Агароза | Fisher BioReagents | BP160-500 | Приготовление агарозных гелей |
| Система горизонтального электрофореза в агарозном геле | BTLabSystems | BT102 | Разделение фрагментов ДНК |
| Ампициллин | Fisher BioReagents | BP1760-25 | Отбор трансформированных бактерий |
| Сефароза с нанотелом к GFP (собственного приготовления) | — | — | Аффинная очистка белков с GFP-меткой |
| Щелочная фосфатаза Anza | Invitrogen | IVGN2208 | Дефосфорилирование вектора |
| EcoRI Anza | Invitrogen | IVGN0116 | Рестрикция |
| NotI Anza | Invitrogen | IVGN0014 | Рестрикция |
| Красный буфер Anza (10×) | Invitrogen | IVGN2008 | Буфер для рестрикции |
| Ингибитор протеаз апротинин | Fisher Scientific | 15996008 | Предотвращение деградации белков |
| Настольная центрифуга | Eppendorf | EP5420000164 | Осаждение клеток и подготовка образцов |
| BLMchipMM | Elements s.r.l. | — | Формирование плоских липидных бислоев |
| Холестерилгемисукцинат (CHS) | Anatrace | CH210 | Стабилизация мембранных белков |
| Кумасси бриллиантовый синий | Sigma-Aldrich | 1125530025 | Окрашивание белков |
| Обычный бытовой отбеливатель | — | — | Хлорирование серебряных проволок |
| ДНКаза I | Sigma-Aldrich | 11284932001 | Снижение вязкости лизата |
| Двукратно дистиллированная вода | — | — | Приготовление буферов и растворов |
| Этанол (чистый, 99.9%) | Girelli Alcool s.r.l. | — | Очистка проволок Ag/AgCl |
| Бромистый этидий | Sigma-Aldrich | 1116080030 | Окрашивание ДНК |
| Мелкозернистая наждачная бумага | — | — | Удаление покрытия Ag/AgCl с проволок |
| Усилитель eNPR 100 кГц | Elements s.r.l. | — | Электрофизиологическая регистрация |
| Набор Gel-Out для экстракции ДНК из агарозы | A&A Biotechnology | 023-250 | Очистка ДНК |
| Маркер молекулярного веса ДНК GeneRuler 1 kb | Thermo Fisher Scientific | SM0311 | Эталон размера ДНК |
| FreeStyle™ 293-F | Thermo Fisher Scientific | R79007 | Экспрессия белка ancTREK1 |
| HEPES (≥99.5%) | Sigma-Aldrich | H3375-500G | Буферный агент |
| Гексадекан (≥99%) | Sigma-Aldrich | H6703-100ML | Предварительная обработка апертуры |
| Гексан (≥99%) | Sigma-Aldrich | 139386-100ML | Растворитель липидов |
| Краситель для нанесения ДНК (собственного приготовления, 5×) | — | — | Подготовка образцов ДНК |
| Буфер Лаэммли с SDS (восстанавливающий, собственного приготовления, 6×) | — | — | Подготовка образцов белков |
| Раствор для обесцвечивания (собственного приготовления) | — | — | Обесцвечивание гелей SDS-PAGE |
| Протеаза HRV-3C (собственного приготовления) | — | — | Расщепление слитных белков |
| Электрофоретический буфер для SDS-PAGE (собственного приготовления, 10×) | — | — | Буфер для электрофореза SDS-PAGE |
| Имидазол | Alfa Aesar | A10221 | Элюция белков с His-меткой |
| Колонки для пакетной очистки | — | — | Протоколы очистки белков |
| Инкубатор-шейкер Innova44 | New Brunswick Innova | M1282 | Культивирование клеток |
| KCl | Honeywell | 31248-1KG | Приготовление электролита и буфера |
| Бульон LB (Lennox) | Condalab | 1231 | Культивирование бактерий |
| Ингибитор протеаз лейпептин | Thermo Scientific | 78435 | Предотвращение деградации белков |
| Гексагидрат хлорида магния | Acros Organics | 447700010 | Компонент буфера |
| Спектрофотометр Nanodrop | DeNovix | DS-11 | Количественное определение ДНК и белков |
| n-Додецил-β-D-мальтозид (DDM) | NeoBiotech | NB-19-0056-25G | Солюбилизация мембранных белков |
| Высокоэффективная смола Ni Sepharose | Cytiva | 17526801 | Очистка методом IMAC |
| Ноутбук (компьютер) | — | — | Управление приборами и сбор данных |
| Ультрацентрифуга Optima LE-80K | Beckman | 365668 | Выделение мембранной фракции |
| Пентан (≥99%) | Sigma-Aldrich | 236705-100ML | Растворитель липидов |
| Ингибитор протеаз пепстатин A | Thermo Scientific | 78436 | Предотвращение деградации белков |
| Буфер Phusion GC (5×) | Thermo Fisher Scientific | F519 | Буфер для ПЦР |
| Полимераза ДНК Phusion High-Fidelity | Thermo Fisher Scientific | F530S | ПЦР-амплификация |
| Ингибитор протеаз PMSF | Thermo Scientific | 36978 | Защита белков при лизисе |
| Полиэтиленимин (PEI) | Clinisciences | 24765-100 | Реагент для трансфекции |
| Готовый Tris-Glycine гель ProteinEle (4–20%) | TransGen Biotech | DG101-01-V2 | Разделение белков |
| Система электрофореза в SDS-PAGE гелях | Bio-Rad | 1658002FC | Электрофорез белков |
| Бутират натрия | Fisher Scientific | A11079 | Усилитель экспрессии белков |
| ДНК-лигаза T4 | Thermo Fisher Scientific | EL0011 | Лигирование ДНК |
| Буфер для ДНК-лигазы T4 (10×) | Thermo Fisher Scientific | B69 | Буфер для лигирования |
| Термоциклер (Mastercycler Nexus) | Eppendorf | 6331000025 | ПЦР-амплификация |
| Tris-основание | Sigma-Aldrich | T1503-1KG | Приготовление буфера |
| Агар соево-казеиновый с лецитином и полисорбатом 80 | HiMedia | M449-5KG | Посев бактерий |
| Две серебряные проволоки | Elements s.r.l. | — | Электроды для электрофизиологии |
| Концентратор Ultra-spin (порог отсечения 50 kDa) | Merck Amicon | UFC8050 | Концентрирование белка |
| Экспрессионный вектор pEG BacMam | Addgene | 160687 | Экспрессия белка |
| USB-кабель | — | — | Соединение между усилителем и компьютером |
Ссылки
- Wickenden, A. D. Overview of electrophysiological techniques. Curr Protoc Pharmacol. 11 (1), (2000).
- Polak, A., Mulej, B., Kramar, P. System for measuring planar lipid bilayer properties. J Membr Biol. 245 (10), 625-632 (2012).
- Zakharian, E. Recording of ion channel activity in planar lipid bilayer experiments. Methods Mol Biol. 998, 109-118 (2013).
- Mueller, P., Rudin, D., Tien, H. T., Wescott, W. C. Reconstitution of cell membrane structure in vitro and its transformation into an excitable system. Nature. 194, 979-980 (1962).
- Montal, M., Mueller, P. Formation of bimolecular membranes from lipid monolayers and a study of their electrical properties. Proc Natl Acad Sci U S A. 69 (12), 3561-3566 (1972).
- Coronado, R., Latorre, R. Phospholipid bilayers made from monolayers on patch-clamp pipettes. Biophys J. 43 (2), 231-236 (1983).
- Andersen, O. S. Ion movement through gramicidin A channels. Single-channel measurements at very high potentials. Biophys J. 41 (2), 119-133 (1983).
- Tank, D. W., Miller, C., Webb, W. W. Isolated-patch recording from liposomes containing functionally reconstituted chloride channels from Torpedo electroplax. Proc Natl Acad Sci U S A. 79 (24), 7749-7753 (1982).
- Criado, M., Keller, B. U. A membrane fusion strategy for single-channel recordings of membranes usually non-accessible to patch-clamp pipette electrodes. FEBS Lett. 224 (1), 172-176 (1987).
- Varnier, A., et al. A simple method for the reconstitution of membrane proteins into giant unilamellar vesicles. J Membr Biol. 233, 85-92 (2010).
- Garten, M., et al. Reconstitution of a transmembrane protein, the voltage-gated ion channel KvAP, into giant unilamellar vesicles for microscopy and patch clamp studies. J Vis Exp. (95), e52281 (2015).
- Funakoshi, K., Suzuki, H., Takeuchi, S. Lipid bilayer formation by contacting monolayers in a microfluidic device for membrane protein analysis. Anal Chem. 78 (24), 8169-8174 (2006).
- Heron, A. J., Thompson, J. R., Mason, A. E., Wallace, M. I. Direct detection of membrane channels from gels using water-in-oil droplet bilayers. J Am Chem Soc. 129 (51), 16042-16047 (2007).
- Iwamoto, M., Oiki, S. Contact bubble bilayers with flush drainage. Sci Rep. 5, 9110 (2015).
- Han, X., et al. Nanopore arrays for stable and functional free-standing lipid bilayers. Adv Mater. 19 (24), 4466-4470 (2007).
- Miyata, R., et al. Parallel recordings of transmembrane hERG channel currents based on solvent-free lipid bilayer microarray. Micromachines. 12 (1), 98 (2021).
- Kresak, S., Hianik, T., Naumann, R. L. C. Giga-seal solvent-free bilayer lipid membranes: from single nanopores to nanopore arrays. Soft Matter. 5 (20), 4021 (2009).
- Suzuki, H., Pioufle, B. L., Takeuchi, S. Ninety-six-well planar lipid bilayer chip for ion channel recording fabricated by hybrid stereolithography. Biomed Microdevices. 11, 17-22 (2009).
- Zagnoni, M., Sandison, M. E., Morgan, H. Microfluidic array platform for simultaneous lipid bilayer membrane formation. Biosens Bioelectron. 24 (5), 1235-1240 (2009).
- Baker, C. A., Bright, L. K., Aspinwall, C. A. Photolithographic fabrication of microapertures with well-defined, three-dimensional geometries for suspended lipid membrane studies. Anal Chem. 85 (19), 9078-9086 (2013).
- Tadaki, D., et al. Mechanically stable solvent-free lipid bilayers in nano- and micro-tapered apertures for reconstitution of cell-free synthesized hERG channels. Sci Rep. 7 (1), 17736 (2017).
- Collins, M. D., Keller, S. L. Tuning lipid mixtures to induce or suppress domain formation across leaflets of unsupported asymmetric bilayers. Proc Natl Acad Sci U S A. 105 (1), 124-128 (2008).
- Cohen, S. N., Chang, A. C. Y., Boyer, H. W., Helling, R. B. Construction of biologically functional bacterial plasmids in vitro. Proc Natl Acad Sci U S A. 70 (11), 3240-3244 (1973).
- Hoseini, S., Sauer, M. G. Molecular cloning using polymerase chain reaction, an educational guide for cellular engineering. J Biol Eng. 9 (1), 2 (2015).
- Goehring, A., et al. Screening and large-scale expression of membrane proteins in mammalian cells for structural studies. Nat Protoc. 9 (11), 2574-2585 (2014).
- Kawate, T., Gouaux, E. Fluorescence-detection size-exclusion chromatography for precrystallization screening of integral membrane proteins. Structure. 14 (4), 673-681 (2006).
- Porath, J., Carlsson, J., Olsson, I., Belfrage, G. Metal chelate affinity chromatography, a new approach to protein fractionation. Nature. 258 (5536), 598-599 (1975).
- Hochuli, E., Dobeli, H., Schacher, A. New metal chelate adsorbent selective for proteins and peptides containing neighbouring histidine residues. J Chromatogr A. 411, 177-184 (1987).
- Hochuli, E., et al. Genetic approach to facilitate purification of recombinant proteins with a novel metal chelate adsorbent. Biotechnology (N Y). 6 (11), 1321-1325 (1988).
- Kirchhofer, A., et al. Modulation of protein properties in living cells using nanobodies. Nat Struct Mol Biol. 17 (1), 133-138 (2010).
- Kubala, M. H., Kovtun, O., Alexandrov, K., Collins, B. M. Structural and thermodynamic analysis of the GFP:GFP-nanobody complex. Protein Sci. 19 (12), 2389-2401 (2010).
- Lee, H., Lolicato, M., Arrigoni, C., Minor, D. L. Production of K2P2.1 (TREK-1) for structural studies. Methods Enzymol. 653, 151-188 (2021).
- Kramar, P., Miklavcic, D., Kotulska, M., Lebar, A. M. Voltage- and current-clamp methods for determination of planar lipid bilayer properties. Adv Planar Lipid Bilayers Liposomes. 11, 29-69 (2010).
- Golowasch, J., Nadim, F. Capacitance, membrane. Encyclopedia of Computational Neuroscience. , (2014).
- Niles, W. D., Levis, R. A., Cohen, F. S. Planar bilayer membranes made from phospholipid monolayers form by a thinning process. Biophys J. 53 (3), 327-335 (1988).
- Gutsmann, T., et al. Protein reconstitution into freestanding planar lipid membranes for electrophysiological characterization. Nat Protoc. 10 (1), 188-198 (2015).
- White, S. H. A study of lipid bilayer membrane stability using precise measurements of specific capacitance. Biophys J. 10 (12), 1127-1148 (1970).
- Bockenhauer, D., Zilberberg, N., Goldstein, S. A. N. KCNK2: reversible conversion of a hippocampal potassium leak into a voltage-dependent channel. Nat Neurosci. 4 (5), 486-491 (2001).
- Li, X. T., et al. The stretch-activated potassium channel TREK-1 in rat cardiac ventricular muscle. Cardiovasc Res. 69 (1), 86-97 (2006).
- Honoré, E., Maingret, F., Lazdunski, M., Patel, A. J. An intracellular proton sensor commands lipid- and mechano-gating of the K+ channel TREK-1. EMBO J. 21 (12), 2968-2976 (2002).
- Patel, A. J., et al. A mammalian two pore domain mechano-gated S-like K+ channel. EMBO J. 17 (15), 4283-4290 (1998).
- Maingret, F., Honore, E., Lazdunski, M., Patel, A. J. Molecular basis of the voltage-dependent gating of TREK-1, a mechano-sensitive K+ channel. Biochem Biophys Res Commun. 292 (2), 339-346 (2002).
- Lemtiri-Chlieh, F., Ali, R. Characterization of heterologously expressed transporter genes by patch- and voltage-clamp methods: application to cyclic nucleotide-dependent responses. Methods Mol Biol. 1016, 67-93 (2013).
- Opsahl, L. R., Webb, W. W. Lipid-glass adhesion in giga-sealed patch-clamped membranes. Biophys J. 66 (1), 75-79 (1994).
- Perez-Mitta, G., MacKinnon, R. Freestanding lipid bilayer tensiometer for the study of mechanosensitive ion channels. Proc Natl Acad Sci U S A. 120 (12), e2221541120 (2023).
- Sorum, B., et al. Tension activation of mechanosensitive two-pore domain K+ channels TRAAK, TREK-1, and TREK-2. Nat Commun. 15 (1), 3142 (2024).
Перепечатки и разрешения
