С помощью таймлапс-визуализации можно проследить полный процесс регенерации сфероидов Гидры . Этот протокол описывает генерацию сфероидов Гидры , рассматривает различные стратегии крепления и подробно описывает, как проводить долгосрочную живую визуализацию с использованием вращающейся дисковой конфокальной микроскопии, а также световой флуоресцентной микроскопии.
Для просмотра этого контента требуется подписка на JoVE. Войдите или начните свой бесплатный пробный период.
Методическая статья
Подготовка и живые визуализации регенерирующих сфероидов Гидры
В этой статье
Краткое содержание
Аннотация
Гидра славится своей исключительной регенеративной способностью. Удивительно, но небольшие регенерирующие фрагменты ткани Гидры , называемые сфероидами Гидры , могут создавать органайзер de novo. После установления этот органайзер направляет окружающую ткань к дифференциации в соответствующие структуры полости рта. В течение нескольких дней сфероид может развиться в небольшой, но полностью оформленный полип. Относительно короткий временной масштаб этого процесса позволяет непрерывно снимать весь процесс с таймлапсом, предоставляя уникальную возможность для изучения пространственно-временной динамики регенерации. Здесь мы представляем подробный рабочий процесс и демонстрируем репрезентативные результаты для генерации таймлапс-наборов регенерирующих сфероидов Гидры . Протокол включает подробную процедуру генерации сфероидов и рекомендации по выбору оптимальных образцов для визуализации. Мы обсуждаем стратегии монтажа, подходящие для долгосрочной визуализации живых образцов, и демонстрируем подходы визуализации с использованием как вращающегося дискового конфокального, так и светового листового микроскопов. Описанные здесь принципы широко применимы к другим модельным системам, в которых динамические морфогенетические процессы можно изучать с помощью долгосрочной визуализации.
Введение
Гидра — небольшой пресноводный полип, наиболее известный своей исключительной регенеративной способностью. Фрагменты ткани, вырезанные из середины тела, складываются в полый сфероид, состоящий из двух эпителиальных слоёв Гидры — эктодермы и энтодермы. Во время регенерации эти сфероиды Гидры образуют органайзер de novo1. Примерно через 3 дня ось тела удлиняется, и клетки на конечностях головы и стопы дифференцируются. Благодаря относительно короткому времени весь процесс регенерации можно зафиксировать с помощью живой визуализации. Наборы данных с таймлапсом сыграли ключевую роль в выявлении характерных циклов инфляции и дефляции, через которые проходят сфероиды Гидры во времярегенерации 2. Растяжение тканей, возникающее в результате этих осмотически управляемых механическими колебаниями, способствует локализацииорганизатора 3.
Успешная долгосрочная живая съёмка требует быстрого получения изображения, чтобы избежать артефактов движения, а также минимизации освещения для предотвращения фотоповреждения образца. Классическая одноточечная сканирующая конфокальная микроскопия не соответствует этим требованиям. Однако были разработаны передовые методы. В этом протоколе мы сосредоточимся на двух широко распространённых методах: вращающейся дисковой конфокальной микроскопии (SDCM) и флуоресцентной микроскопии с лёгким листовым покрытием (LSFM). SDCM использует быстро вращающийся диск с массивом отверстий4. Такая конструкция позволяет одновременно возбуждать и обнажать несколько точек в образце, сохраняя при этом конфокальность. Это параллельное получение значительно ускоряет визуализацию, позволяя без движения захватывать движущиеся образцы. Дополнительное преимущество — сокращение экспозиции значительно снижает фототоксичность. Тем не менее, из-за ограниченной глубины изображения живой съёмка крупных структур является сложной задачей.
LSFM получил своё название от тонкого слоя света, который используется для возбуждения флуорофоров только внутри этойплоскости 5. В отличие от отверстия, которая создаёт осевое разрешение за счёт ограничения излучаемого света, микроскопы с световыми листами устанавливают аксиальное разрешение, ограничивая возбужденный объём. Детекторный объектив расположен ортогонально, собирая флуоресценцию под углом 90° к световому слою. Это позволяет камере собрать флуоресцентный сигнал со всей освещённой плоскости за одну экспозицию, увеличивая скорость захвата и минимизируя фототоксичность. Распространённые геометрии LSFM, построенные вокруг одного или двух горизонтально расположенных объектов обнаружения, имеют дополнительное преимущество в том, что один и тот же образец можно сфотографировать с нескольких ракурсов. Если микроскоп оснащён двумя детекторными объективами, образцы можно одновременно снимать с двух сторон6. В качестве альтернативы образец можно поворачивать для получения обзоров с разных ракурсов.
Методы визуализации, используемые для изучения живой гидры, значительно продвинулись в последние годы, позволяя наблюдать морфологические изменения, связанные с регенерацией, вплоть до динамики активностинейронов 7,8,9,10. Здесь мы расширяем ранее опубликованныепротоколы 6,11, с акцентом на демонстрацию различных подходов к живой визуализации регенерирующих сфероидов Гидры. Мы описываем методы получения сфероидов Гидры из мелких фрагментов тканей и предоставляем рекомендации по идентификации правильно сложенных образцов. Пошаговые инструкции приведены по трём стратегиям монтажа, которые обычно используются для живой съёмки. Для изображения на инвертированном микроскопе, распространённой геометрии для SDCM, сфероиды обычно устанавливаются в агарозных колодцах. Это позволяет им свободно двигаться и вращаться, оставаясь в поле зрения. Фторэтиленпропилен (FEP) обычно используется для монтажа, поскольку его показатель преломления (1,34) близок к воде (1,33). Фольга FEP может быть термоформирована в индивидуальные камеры для визуализации, адаптированные под конкретные экспериментальные нужды. Аналогично, внедрение сфероидов в агарозу в стеклянные капилляры является стандартным подходом для LSFM. Хотя эта техника ограничивает количество образцов на капилляр, она облегчает вращение, необходимое для многовидного обнаружения. Наконец, мы демонстрируем, как проводить живую визуализацию с использованием SDCM и LSFM, и обсуждаем ключевые моменты при выборе подходящей техники в зависимости от целей эксперимента. Хотя этот протокол оптимизирован для Hydra, его основные принципы широко применимы к другим моделям, которые используют долгосрочную визуализацию для изучения динамических морфогенетических процессов.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Протокол
Все описанные процедуры выполнялись в соответствии с этическими нормами швейцарских национальных правил по исследованиям на животных. Перед началом эксперимента Гидру следует кормить нормально, 3 раза в неделю, как минимум 2 недели. Гидра , используемая для экспериментов, должна бытьздоровой в 12 лет, без половых органов и без почков. Недавно выросшую гидру, которую можно узнать по меньшей длине по сравнению с другими гидрами в колонии, также следует избегать.
1. Подготовка сфероидов Гидры (рисунок 1)
- Начните с подготовки тарелки с диссоциационной средой (DM; рецепт см. таблицу 1). Ведущий должен быть при комнатной температуре для эксперимента.
- Подготовьте остальную часть рабочего пространства: поместите крышку 10-сантиметровой чаши для клеточной культуры под стереоскоп и заполните её слоем среды Hydra (HM; для рецепта см. таблицу 1). Сам контейнер для культуры клеток может использоваться для сбора оставшейся ткани Гидры . Наконец, соберите Гидру и поместите её в тарелку рядом со стереоскопом.
- Используйте стеклянную пипетку Пастера, чтобы переместить гидру к крышке под стереоскопом. Рекомендуется притуплять пипетки Пастера. Чтобы добиться этого, быстро поднимите их кончик в пламени.
- Часто Гидра будет плавать на поверхности среды; повторять Гидру , пока она не опустится на дно крышки.
- Разделите Гидру пополам, создав один прямой разрез между областями тела B2 и B3 (рисунок 1A,B). Будьте последовательны в части тела, от которой отрезаны сфероиды, так как это сильно влияет на поведение сфероидов.
ПРИМЕЧАНИЕ: Если резать определённую часть тела не требуется, используйте сфероиды от середины оси тела. Для животных с сильным фенотипом (например, животных с множеством внематочных голов) ищите области тела, которые лучше всего напоминают среднюю часть оси. - Ждите, пока Гидра полностью расслабится после монтажа. Если нужно, повторяйте плавающие части тела, чтобы они снова утонули.
- После того как разрезаная ткань расслабляется, разрезанная часть ткани останется опухшей. Сделайте второй разрез там, где отёк заканчивается, чтобы образовать кольцо ткани (рисунок 1C). Тканевые кольца можно вырезать из каждой половины Гидры .
- Удалите оставшиеся концы головы и ноги с крышки. Эти оставшиеся части тела можно оставить для регенерации. После того как Гидра должным образом восстановилась и была накормлена минимум 2 недели, её можно использовать для других экспериментов.
- Разрежьте тканевые кольца. Разрежьте открытые кольца на несколько кусочков ткани (рисунок 1D). Стремитесь к прямоугольным кусочкам ткани размером ~100-150 мкм на ~300-500 мкм.
ПРИМЕЧАНИЕ: Количество кусочков, которые можно вырезать на кольцо, варьируется. Например, гидры из штамма 105 обычно гораздо тоньше, чем гидры из штамма AEP. Если кольцо из ткани слишком мало для создания двух правильных частей ткани, обрезайте открытое кольцо, чтобы получить один кусочек соответствующего размера, а другой убрать меньший кусочек. - Переместите кусочки ткани в ДМ комнатной температуры. Минимизируйте количество ГМ, которое перемещается вместе с кусочками ткани.
- Оставьте сфероиды складываться в ДМ на 3-4 часа. Оцените, правильно ли сфероиды сложились. Успешно сложенные сфероиды должны иметь округлую форму и полностью покрыты эктодермой (рисунок 2A-D).
ПРИМЕЧАНИЕ: Если более половины сфероидов ещё не сложились успешно, оставьте их в DM ещё на 30 минут. - Выберите сложенные сфероиды диаметром 250–350 мкм (рисунок 2E-H). Избегайте сфероидов, заражённых экзогенными материалами, такими как пластиковые волокна. Переместите выбранные сфероиды на HM перед посадкой.
ПРИМЕЧАНИЕ: Если эксперимент будет проводиться в дополнительной среде (например, медикаментозное лечение), немедленно перемещайте сфероиды в эту среду. Имейте в виду, что после перемещения сфероидов в HM они начинают колебаться.
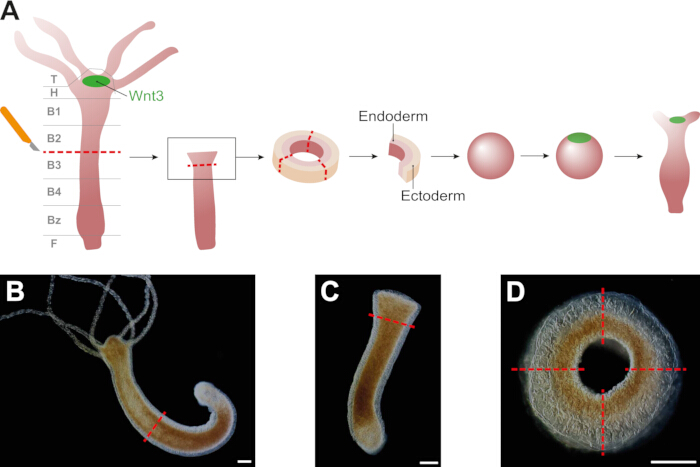
Рисунок 1: Подготовка сфероидов Гидры . (A) Схема, показывающая генерацию сфероидов Гидры . Сфероиды нарушают симметрию, восстанавливая органайзер Wnt3+, который определяет формирование, удлинение и дифференцировку осей. (B) Первый разрез проводится в середине тела, на границе между областями B2 и B3, как указано в (A). (C) Каждая получившаяся половина снова разрезается чуть ниже опухшей области. (D) Полученные тканевые кольца затем разрезают и делят на 2-4 части ткани в зависимости от размера кольца. Шкалы: 250 мкм. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
| Среда | Состав | Температура хранения | ||
| Среда диссоциации (ДМ) | 3,6 мМ KCl, 6 мМ CaCl2, 1,2 мМ MgSO4, 6 мМ цитрат натрия, 6 мМ пирувата натрия, 4 мМ глюкозы и 12,5 мМ TES (pH 6,9) | 4 °C | ||
| Среда Hydra (HM) | 1 мМ CaCl2, 0,2 мМ NaHCO3, 0,02 мМ KCl, 0,02 мМ MgCl2 и 0,2 мМ трис-HCl (pH 7,4) | Комнатная температура | ||
Таблица 1: Композиции и хранение медиа.
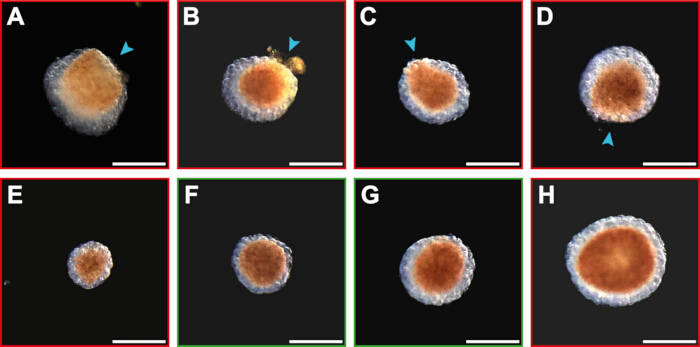
Рисунок 2: Обзор раскрытых и сложенных сфероидов. (A-D) Раскрытые сфероиды расположены от наименее сложенных до почти полностью сложенных. Раскрытые сфероиды распознаются по области, где эктодерма не покрывает энтодерму (обозначено синими стрелками). (E) Пример сфероида, который слишком мал. (F-G) Сложенные сфероиды оптимального размера (250–350 мкм). (H) Пример сфероида, который слишком большой. Изображения были получены на четырёхколочной стеклянной пластине с использованием гибридного микроскопа Revolve от Echo (RVL2-K), в инвертированном режиме с объективом 4,0x и камерой с пропускающим светом (цветной). Шкалы: 250 мкм. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
2. Стратегии монтажа
ПРИМЕЧАНИЕ: Сочетание расположения микроскопа и экспериментального дизайна определяет наиболее подходящую стратегию крепления для эксперимента. Здесь мы описываем различные техники крепления, которые могут применяться для различных применений.
- Монтаж в агарозных скважинах (рисунок 3A)
- Приготовьте 1% агарозы в HM, варя смесь до полного растворения.
ПРИМЕЧАНИЕ: Запас 1% агарозы можно заранее подготовить и хранить в плотно закрытой стеклянной бутылке в течение 1 месяца. Мы советуем не нагревать агарозу чаще 5 раз. Однако агарозные колодцы должны быть подготовлены в день эксперимента. - Пока агароза ещё жидкая, полностью покройте дно пластины с стеклянным дном с 4 лунками слоем толщиной 2 мм.
ПРИМЕЧАНИЕ: Другие визуализационные пластины также могут подойти в зависимости от системы визуализации и количества тестовых условий. Для экспериментов с использованием обработки обязательно компенсируйте агарозу. Термостабильные химические вещества можно напрямую смешивать в агарозу. Сделайте 2% агарозный раствор, а после кипячения смешайте его с двухкратным раствором нужного вещества. Покройте агарозу раствором в 1 раз как обычно. Если химикат нестабилен, отрегулируйте его концентрацию с учётом объёма агарозы в ининговой пластине и используйте этот раствор для покрытия агарозы. - Оставьте агарозу полностью застыть. Затем создайте колодцы в агарозе. Оставьте не менее 10 мм агарозы между каждой скважиной для обеспечения их структурной целостности.
- Удерживая поршень, введите кончик пипетки P1000 в агарозу, пока она не коснётся низа пластины для изображения.
ПРИМЕЧАНИЕ: Размер агарозных колодец можно регулировать, например, с помощью другого размера наконечника или с помощью штампа. Важно, чтобы образцы имели достаточно места для перемещения. - Держите пипетку прямо вверх и заподлицовайте с нижней частью пластины для визуализации. Затем покрутите и покрутите кончик пипетки, чтобы разрезать агарозу.
- Отпустите поршень пипетки и одновременно медленно снимайте кончик пипетки с агарозы, поднимая её прямо вверх.
- Удерживая поршень, введите кончик пипетки P1000 в агарозу, пока она не коснётся низа пластины для изображения.
- Повторяйте процесс создания скважин, пока не будет создано достаточно скважин. Если пипетку снять слишком быстро или агарозу не срезать полностью до удаления, часть агарозы останется на дне колодца. Избегайте использования этих скважин, так как они могут повлиять на качество изображения.
- Накройте агарозу тонким слоем HM. Чтобы предотвратить испарение среды, используйте визуализационную пластину с крышкой.
- Выпустите любые воздушные пузырьки, которые могли образоваться в агарозных колодцах, коснувшись их наконечником пипетки P20.
- Перемещайте сфероиды Гидры по одному в изображенческую пластину. Если сфероид не падает сразу в колодец, направите его в сторону колодца, мягко подтолкнув сфероид пипеткой.
ПРИМЕЧАНИЕ: Два сфероида могут оказаться в одной и той же скважине. Удалите оба сфероида аспирацией и попробуйте установить их снова. Имейте в виду, что повторная аспирация сфероидов может привести к повреждению сфероидов и/или агарозного колодца. Если это случится, продолжайте использовать другие колодцы и новые сфероиды. - Снимите образцы на инвертированном микроскопе (рисунок 4A).
- Приготовьте 1% агарозы в HM, варя смесь до полного растворения.
- Монтаж в скважинах FEP (рисунок 3B)
- Подготовьте специальные стеклянные пипетки, которые будут использоваться для удаления пузырьков воздуха из скважин FEP (дополнительный рисунок 1).
- Нагрейте стеклянную пипетку Пастера в огне в месте, где конец кончика всё ещё можно удерживать. Продолжайте вращать пипетку для равномерного нагрева.
- Когда стекло начнёт смягчаться, быстро растяните кончик пипетки, вынимая её из пламени.
- Разбить разреженную область, чтобы получить новый кончик пипетки примерно 0,4–0,5 мм. Быстро коснитесь кончиком пипетки в пламя, чтобы притупить его; Убедитесь, что это не закрывает пипетку.
- Нагрейте стеклянную пипетку Пастера в том месте, где пипетка расширяется. Не вращайте пипетку, а убирайте её из пламени, когда кончик пипетки начинает провисать. Держите пипетку горизонтально, пока она не затвердеет в форме буквы L.
- Создайте камеры FEP с помощью вакуумного термоформования FEP-фили поверх индивидуальных алюминиевыхформ 6. Размеры форм можно адаптировать под разные размеры образцов или микроскопические камеры. Для сфероидов Гидры лучше всего подходят скважины диаметром 0,5 мм.
- Нарежьте фольгу FEP на листы размером 15 x 15 см. Зажмите фольгу FEP внутри термоформовочной машины и нагрейте её 8 минут.
- Положите алюминиевые формы под фольгу. Под вакуумом формируйте фольгу вокруг форм на 30 секунд.
- Вручную вырезать камеры из термоформованной фольги FEP.
- Сделайте камеру FEP без пыли с помощью баллонного воздуха. Заполните камеру FEP HM.
ПРИМЕЧАНИЕ: Обычно камеры FEP не имеют крышки. Это означает, что часть среды испарится во время визуализации. Если испарение среды вызовет проблемы, спроектируйте камеру, которую можно закрыть - Выпускайте пузырьки воздуха из скважин с помощью заранее подготовленных стеклянных пипеток. Используйте зачерпывающее движение, чтобы вытолкнуть воздушный пузырь из колодца кончиком пипетки.
- Когда все колодцы освободятся от пузырьков, перемещайте сфероиды Гидры по одному в камеру FEP. Если сфероид не падает в колодец, введите его пипеткой.
ПРИМЕЧАНИЕ: Если два сфероида падают в одну и ту же яму, удалите их с помощью пипетки и установите обратно. Конструкция скважин FEP определяет, какой тип микроскопа следует использовать для визуализации. В целом подходят микроскопы с одним или несколькими горизонтально расположенными детектирующими объективами (рисунок 4B).
- Подготовьте специальные стеклянные пипетки, которые будут использоваться для удаления пузырьков воздуха из скважин FEP (дополнительный рисунок 1).
- Крепление с агарозой в стеклянных капиллярах (рисунок 3C)
- Приготовьте агарозу с низкой температурой плавления 1% в HM, варя смесь до полного растворения агарозы с низкой температурой плавления. Переместить 1 мл жидкой агарозы в микроцентрифуговую трубку.
ПРИМЕЧАНИЕ: Запас агарозы с низкой температурой плавления 1% можно заранее подготовить и хранить в плотно закрытой стеклянной бутылке в течение месяца. При необходимости агарозу можно поддерживать в жидком состоянии, поддерживая при 37 °C. Однако не нагревайте агарозу сразу после добавления образцов. Рассмотрите возможность дополнения агарозы лечением (см. шаг протокола 2.1.2) или флуоресцентными шариками на этом этапе. Бусины могут использоваться для реконструкции с многовидным видом. - Переместите 2-4 сфероида в агарозу. Полностью вставьте поршневой стержень в стеклянный капилляр; Поршневой шток должен плотно сидеть.
- Вставьте конец капилляра в агарозу и, медленно подтягивая поршень, поднимите агарозу в капилляр. Начинайте аспирировать агарозу без сфероидов, затем, не останавливаясь, загружайте сфероиды, встроенные агарозой, в капилляр.
ПРИМЕЧАНИЕ: Для наилучших результатов визуализации отдельные сфероиды должны быть хорошо разделены и располагаться внизу колонки агарозы (рисунок 3C).
- Приготовьте агарозу с низкой температурой плавления 1% в HM, варя смесь до полного растворения агарозы с низкой температурой плавления. Переместить 1 мл жидкой агарозы в микроцентрифуговую трубку.
- Вынимите капилляр из агарозы и протрите снаружи бумагой. Держите капилляр горизонтально и вращайте его, пока агароза не затвердеет; Это поможет удерживать сфероиды в центре агарозной колонны.
- Поместите капилляры, наполненные агарозами, в HM, чтобы образцы оставались гидратированными. Образцы, установленные в стеклянных капиллярах, следует снимать с помощью микроскопа с одним или несколькими горизонтально расположенными детектирующими объективами (рисунок 4C).
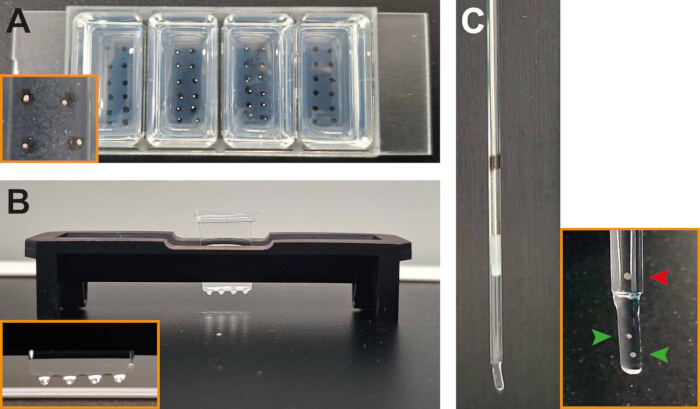
Рисунок 3: Монтаж сфероидов Гидры для живой съёмки. (A) Агарозные колодцы с (средними двумя камерами) и без (внешних камер) сфероидами. (B) Сфероиды, установленные в скважинах FEP. (C) Сфероиды, встроенные в агарозу и установленные в стеклянном капилляре. Для визуализации агарозная колонна немного вытеснена из стеклянного капилляра. Поэтому сфероиды должны располагаться ближе к нижней части колонны агарозы (зелёные наконечники стрел), оставаясь при этом хорошо разделенными. Сфероиды, расположенные слишком далеко от низа (красная стрелка), не подлежат эффективному визуализации. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
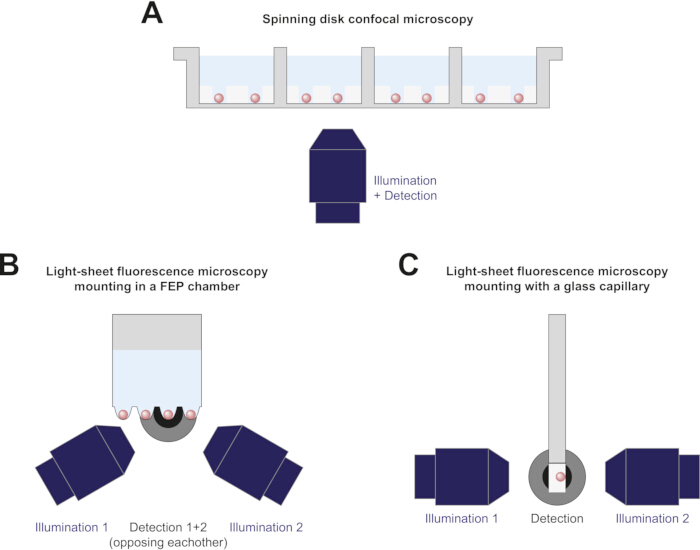
Рисунок 4: Схематические схемы установок визуализации, подходящие для описанных стратегий монтажа. (A) Сфероиды, установленные в агарозных ямах и сфотографированные на инвертированном вращающемся дисковом конфокальном микроскопе. (B) Сфероиды, установленные в камере FEP и снимённые с помощью флуоресцентного микроскопа с лёгкими слоями, подходящим для многокамернойсъёмки 6. Для ясности: второй объект обнаружения, расположенный напротив объекта обнаружения 1, не показан. (C) Сфероид, встроенный в агарозу и установленный в стеклянном капилляре для флуоресцентной микроскопии с использованием микроскопа с альтернативной конфигурацией по сравнению с (B). Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
3. Вращающаяся дисковая конфокальная микроскопия
- Снимите образцы на инвертированном микроскопе с вращающимся диском. Установите температуру камеры микроскопа на 18-21 °C. Если микроскоп нельзя охладить, лучше охладить комнату.
- Выберите цель с полем обзора, охватывающим всю выборку. Для образцов, установленных в агарозных скважинах, поле зрения должно покрывать всю скважину.
ПРИМЕЧАНИЕ: Предпочтительно использовать сухую цель, особенно для таймлапс-наборов данных с несколькими образцами. - Поставьте держатель образца в стадию микроскопа. Включите пропускаемый свет и установите время экспозиции.
- Выберите длину волны лазера, мощность лазера и время экспозиции для флуорофоров, присутствующих в образце. Выберите комбинацию мощности лазера и времени экспозиции, которая будет максимально низкой, чтобы снизить риск фототоксичности, но достаточно высокой для хорошего соотношения сигнал/шум.
ПРИМЕЧАНИЕ: Живые образцы могут значительно сдвинуться во время визуализации. По возможности одновременное захват флуоресценции и проходящего света, либо двойной лазерной флуоресценции, используя две камеры. Если снимок более двух каналов, приоритет уделяется одновременному захвату тех каналов, где точное пересечение наиболее важно. - Найдите все образцы и установите их как несколько позиций для изображения. Для каждого образца создайте z-стек, начиная с плоскости, которая ближе всего к цели, и заканчивающаяся на первой размытой плоскости. Для сфероидов Гидры рекомендуется шаг 2 мкм.
ПРИМЕЧАНИЕ: Создание z-стека не всегда необходимо. Например, при изучении колебательного поведения регенерирующих сфероидов Гидры достаточно одной плоскости, сосредоточенной на экваторной плоскости образцов. Когда образцы Hydra правильно опустились на дно агарозной скважины и выбрана соответствующая цель, эта плоскость должна находиться в пределах рабочего расстояния от цели. - Задайте параметры таймлапса. Время от 60 до 70 часов с изображением каждые 10 минут подходит для полной регенерации сфероидов Гидры . Начинайте снимать.
4. Флуоресцентная микроскопия на световых листов
- Снимите образцы на световой микроскоп с горизонтально расположенными детектирующими объективами.
- Перед началом выровняйте световой лист, созданный осветительными объективами. Установите температуру камеры микроскопа на 18-21 °C. Если микроскоп нельзя охладить, лучше охладить комнату.
- Выберите объект обнаружения, который помещает весь образец в поле зрения. Когда образцам появляется пространство для перемещения, выберите цель обнаружения, которая это учитывает.
- Поставьте держатель образца в микроскоп. Если образцы установлены в стеклянном капилляре, нажмите поршень вниз, пока образцы не выйдут из стекла, чтобы собрать только через агарозу (рисунок 3C).
- Настройте настройки микроскопа для пропускаемого света, флуоресценции, множественных положений и таймлапса, как описано в разделе 3 (вращающаяся дисковая конфокальная микроскопия).
- Если микроскоп не оснащён несколькими объектами обнаружения, настройте многовидное обнаружение образца с разных углов обнаружения. Если в одном z-стеке можно обнаружить более половины образца, достаточно двух видов, разделённых углом 180°. В качестве альтернативы используйте три-пять просмотров.
- Настройте z-стеки с соответствующим размером шага, для сфероидов Hydra рекомендуется шаг 2 мкм. Z-стек должен полностью покрывать сэмпл. При изображении образцов, свободно движущихся в скважинах FEP, создайте z-стек, который покрывает всю яму. Начинайте снимать.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Результаты
Мы успешно сгенерировали долгосрочные наборы данных с таймлапсом для регенерации сфероидов Гидры с использованием как вращающейся дисковой конфокальной микроскопии (SDCM), так и световой флуоресцентной микроскопии (LSFM). Регенерация происходила нормально в обеих установках визуализации: сфероиды нарушили симметрию, удлинились и развили щупальца и стопу в течение 3 дней (рисунок 5A, рисунок 6A, дополнительное ви...
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Обсуждение
И SDCM, и LSFM хорошо подходят для генерации долгосрочных таймлапс-наборов регенерирующих сфероидов Гидры. Оптические принципы, на которых основана каждая техника, уникальны и, следовательно, обладают уникальными преимуществами и ограничениями (Таблица 2). SDCM предпочтительнее, если не требуется полное, высокоразрешающее изображение образца. В одном эксперименте можно сфотографировать несколько образцов, что делает его особенно полезным для тестирования различн...
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Раскрытие информации
Авторы заявляют, что у них нет конфликта интересов.
Благодарности
Мы хотели бы поблагодарить Лор Плантар из Центра передовой визуализации и микроскопии FMI за её ценный вклад. Эта работа была поддержана исследовательским фондом Novartis.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Материалы
```html
```
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| 20×/0.8 объектив Plan-Apochromat | Zeiss | 440640-9903-000 | Для конфокальной микроскопии с вращающимся диском |
| Объектив 20×/1.0 W Plan-Apochromat с погружением в воду | Zeiss | 421452-9700-000 | Используется в качестве детектирующего объектива в Zeiss Lightsheet 7 |
| 3D-печать держатель для монтажа камеры FEP | изготовлен по заказу | ||
| Импульсная пластинка со стеклянным дном на 4 колодца (№1.5H) | Ibidi | 80427 | |
| Агароза | Carl Roth | 3810.4 | |
| Алюминиевый формовочный блок для камеры FEP | изготовлен по заказу | ||
| Хлорид кальция | Sigma-Aldrich | C4901 | |
| Сжатый воздух | Durable | POWERCLEAN STANDARD 400 | |
| Культуральная тарелка (6 см) | Thermo Fisher Scientific | 150288 | |
| D-(+)-глюкоза | Sigma-Aldrich | G8769 | |
| Фольга FEP (толщина 127 мкм) | Adtech Polymer Engineering | ||
| FluoSpheres с карбоксилатно-модифицированной поверхностью (0.2 мкм, темно-красные) | Thermo Fisher Scientific | F8807 | |
| Стеклянный капилляр | Brand | 701904 | |
| Стеклянная пастеровская пипетка (150 мм) | VWR | 612-1701 | |
| Hydra vulgaris | |||
| Программное обеспечение для имэйджинг | Visitron | VisiView | Для конфокальной микроскопии с вращающимся диском |
| Инвертированный световой микроскоп | Zeiss | Axio observer 7 | Для конфокальной микроскопии с вращающимся диском |
| Микроскоп светового листа | Leica | Viventis Deep LS2 | |
| Микроскоп светового листа | Zeiss | Lightsheet 7 | |
| Агароза с низкой температурой плавления | Thermo Fisher Scientific | R0801 | |
| Хлорид магния | Sigma-Aldrich | M8266 | |
| Сульфат магния | Sigma-Aldrich | M2643 | |
| Микроскальпель | pfm medical | 200300745 | |
| Резинка для пипеток | |||
| Трансферпеттор с поршневой трубкой | Brand | 701932 | |
| Хлорид калия | Sigma-Aldrich | P9333 | |
| Бензиновая горелка Bunsen | INTEGRA Biosciences | FIREBOY plus | |
| sCMOS-камеры | Photometrics | Prime 95B | Для конфокальной микроскопии с вращающимся диском |
| Бикарбонат натрия | Fluka Analytical, Sigma-Aldrich | 71630 | |
| Дигидроглицинат натрия | Sigma-Aldrich | W302600 | |
| Пируват натрия | Sigma-Aldrich | P2256 | |
| Сканирующая единица конфокального микроскопа с вращающимся диском (с отверстиями 50 мкм) | Yokogawa | CSU-W1 | Для конфокальной микроскопии с вращающимся диском |
| Стереоскоп | Leica | M80 | |
| TES | Sigma-Aldrich | T1375 | |
| Термоформовщик | Yuyao Jintai Machine Factory | Jintai JT-18 | |
| Тканевая культуральная чаша (10 см) | VWR | 734-2321 | |
| Буфер Tris-HCl | Roche Diagnostics | 10812846001 |
Ссылки
- Bode, P. M., Bode, H. R. Formation of pattern in regenerating tissue pieces of hydra attenuata: I. Head-body proportion regulation. Dev Biol. 78 (2), 484-496 (1980).
- Fütterer, C., Colombo, C., Jülicher, F., Ott, A. Morphogenetic oscillations during symmetry breaking of regenerating hydra vulgaris cells. Europhys Lett. 64 (1), 137(2003).
- Weevers, S. L., et al. Mechanochemical patterning localizes the organizer of a luminal epithelium. Sci Adv. 11 (26), eadu2286(2025).
- Oreopoulos, J., Berman, R., Browne, M. Chapter 9 - Spinning-disk confocal microscopy: present technology and future trends. Meth Cell Biol. 123, 153-175 (2014).
- Stelzer, E. H. K., et al. Light sheet fluorescence microscopy. Nat Rev Meth Primers. 1 (1), 73(2021).
- Moos, F., et al. Open-top multisample dual-view light-sheet microscope for live imaging of large multicellular systems. Nat Meth. 21 (5), 798-803 (2024).
- Soriano, J., Colombo, C., Ott, A. Hydra molecular network reaches criticality at the symmetry-breaking axis-defining moment. Phys Rev Lett. 97 (25), 258102(2006).
- Livshits, A., Shani-Zerbib, L., Maroudas-Sacks, Y., Braun, E., Keren, K. Structural inheritance of the actin cytoskeletal organization determines the body axis in regenerating hydra. Cell Rep. 18 (6), 1410-1421 (2017).
- Hanson, A., et al. Automatic monitoring of neural activity with single-cell resolution in behaving hydra. Sc Rep. 14 (1), 5083(2024).
- Escobar, A., et al. Terminal differentiation precedes functional circuit integration in the peduncle neurons in regenerating hydra vulgaris. Neural Dev. 19 (1), 18(2024).
- Ferenc, J., Tsiairis, C. D. Studying Mechanical Oscillations During Whole-Body Regeneration in Hydra. Whole-Body Regenerat. 2450, 619-633 (2022).
- Bossert, P., Galliot, B. How to use hydra as a model system to teach biology in the classroom. Int J Dev Biol. 56 (6-8), 637-652 (2012).
- Jemielita, M., Taormina, M. J., Delaurier, A., Kimmel, C. B., Parthasarathy, R. Comparing phototoxicity during the development of a zebrafish craniofacial bone using confocal and light sheet fluorescence microscopy techniques. J Biophotonics. 6 (11-12), 920-928 (2013).
- Icha, J., Weber, M., Waters, J. C., Norden, C. Phototoxicity in live fluorescence microscopy, and how to avoid it. Bioessays. 39 (8), 1700003(2017).
- Ravichandran, Y., Vogg, M., Kruse, K., Pearce, D. J. G., Roux, A. Topology changes of hydra define actin orientation defects as organizers of morphogenesis. Sci Adv. 11 (3), eadr9855(2025).
- Maroudas-Sacks, Y., Garion, L., Suganthan, S., Popović, M., Keren, K. Confinement modulates axial patterning in regenerating hydra. PRX Life. 2 (4), 043007(2024).
- Bailles, A., et al. Anisotropic stretch biases the self-organization of actin fibers in multicellular hydra aggregates. Proc Natl Acad Sci. 122 (32), e2423437122(2025).
- Luu, P., Fraser, S. E., Schneider, F. More than double the fun with two-photon excitation microscopy. Comm Biol. 7 (1), 364(2024).
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Перепечатки и разрешения
