Этот протокол описывает метод производства и оценки антимикробной активности и цитотоксичности катионного пептида Mel4 и пептидного имита RK758. Интегрируя химический синтез, рекомбинантную экспрессию и стандартизированные функциональные анализы, он обеспечивает упрощённый рабочий процесс для производства и тестирования пептидов и маломолекулярных имитаторов.
Методическая статья
Производство и тестирование антимикробных пептидов и их имитаций
В этой статье
Краткое содержание
Аннотация
Антимикробные пептиды (АМП) и их синтетические имитации становятся перспективными альтернативами традиционным антибиотикам, особенно в ответ на растущую угрозу антимикробной устойчивости. Естественные АМП являются важными компонентами врожденной иммунной системы и демонстрируют широкое спектр активности против различных микробных патогенов, в то время как их синтетические имитаторы, включая пептидомиметики и полимерные аналоги, предназначены для повышения стабильности, снижения токсичности и улучшения фармакокинетики. Цель данного исследования — продемонстрировать производство, характеристику и биологическую оценку AMP и маломолекулярных пептидных мимиков. AMP генерируются с помощью рекомбинантных экспрессионных систем или синтеза пептидов в твердой фазе, что позволяет точно контролировать аминокислотные последовательности и структурные свойства. Маломолекулярные пептидные имитаторы синтезируются с помощью химических методов, включая каркас антраниловой кислоты (2-аминобензойной кислоты) для повышения структурной стабильности и фармакологической эффективности. После синтеза соединения очищаются и химически характеризуются перед биологическим тестированием. Антимикробная активность оценивается с помощью минимальной ингибиторной концентрации in vitro (MIC), а цитотоксичность оценивается по линиям клеток млекопитающих для определения селективности. Репрезентативные результаты показывают, что как АМП, так и их имитаторы проявляют сильную активность против Klebsiella pneumoniae и Escherichia coli, что подчёркивает их широкоспектральный антибактериальный потенциал. В целом, этот протокол предоставляет комплексную и воспроизводимую основу для разработки и систематической оценки антимикробных пептидов и их имитации как средств следующего поколения противоинфекционных препаратов.
Введение
Антимикробная резистентность (АМР) стала серьёзной глобальной угрозой для здоровья1. По данным Всемирной организации здравоохранения (ВОЗ), AMR непосредственно ответственен примерно за 1,27 миллиона смертей в 2019 году и способствовал примерно 4,95 миллиону смертей по всемумиру 2. Чрезмерное и неправильное использование существующих антибиотиков подчеркнуло появление мультилекарственно-устойчивых патогенов, оставив ограниченные варианты лечения микробов, таких как бактерии, грибы, вирусы ипростейшие 2,3. Этот кризис с АМР инициировал поиск альтернативных антимикробных стратегий, которые эффективны, стабильны и менее подвержены развитию устойчивости. Среди самых перспективных кандидатов — AMP и их синтетическиеимитации 4.
АМП — это естественные молекулы, играющие жизненно важную роль в врождённой иммунной системе человека, животных ирастений 5. Они обычно проявляют широкоспектральную антимикробную активность благодаря таким механизмам, как нарушение работы мембран, вмешательство в микробный метаболизм и модуляция иммунныхответов 6. Например, человеческий кателицидиновый пептид LL-37 продемонстрировал сильную активность против бактерий, грибов ивирусов 7. Однако, несмотря на их многообещающийпотенциал 4, масштабное терапевтическое использование натуральных АМП часто ограничено их низким естественным содержанием. Кроме того, получение их активных форм из естественных источников может быть сложно, так как многие пептиды требуют специфических посттрансляционных модификаций для становления функциональноактивными 8.
Чтобы преодолеть ограничения, связанные с натуральными AMP, исследователи разработали синтетические аналоги и пептидные имитаторы. Мимики могут быть небольшими, рационально спроектированными молекулами, которые сохраняют антимикробную эффективность натуральных АМФ, одновременно обеспечивая повышенную стабильность, селективность и фармакокинетическуюэффективность 9.
Недавние достижения в химии пептидов и молекулярной биологии позволили эффективно производить АМП с помощью таких методов, как синтез пептидов в твердой фазе (SPPS), синтез пептидов в жидкой фазе (LPPS) и рекомбинантные экспрессионные системы, обеспечивая точный контроль ключевых структурных параметров, таких как состав последовательностей, распределение заряда иамфипатичность 10. Рекомбинантные экспрессионные системы подходят для крупномасштабного производства и для более длинных или сложных полипептидов. После оптимизации рекомбинантные методы — обычно с использованием ферментационных или биореакторных систем — предлагают экономичный и масштабируемый подход к промышленному производству терапевтическихпептидов 11.
В этой статье демонстрируются взаимодополняющие подходы к производству и оценке AMP и их имитаторов. Хотя синтез химических веществ в твердой фазе широко используется для генерации пептидов, он может стать неэффективным и дорогостоящим для длинных последовательностей или высококатионных пептидов из-за агрегации, низких выходов и сложностейочистки 12. В отличие от этого, химический синтез остаётся весьма выгодным для получения коротких пептидных имитаций с точными структурными модификациями и ненатуральными остатками13. Рекомбинантные экспрессионные системы, напротив, позволяют экономично и масштабируемо вырабатывать более длинные или структурно сложные пептиды в микробных хозяевах, преодолевая ограничения по длине и выходу, присущие чисто синтетическимметодам 12. Интегрируя стратегии химического и биологического производства, эта объединённая структура обеспечивает большую гибкость, масштабируемость и трансляционный потенциал, чем один из этих методов, что делает её особенно удобной для механистических исследований и терапевтических разработок.
После производства биологическая оценка этих соединений проводится с помощью двух ключевых анализов. Анализ антимикробной активности измеряет ингибиторный потенциал каждого пептида или мимика против представительных микроорганизмов, предоставляя представление об их спектре и силе. Анализ токсичности оценивает цитосовместимость с помощью клеточных линий млекопитающих для обеспечения безопасности и селективности. Интегрируя эти экспериментальные этапные проектирование, синтез и функциональные испытания, этот протокол предоставляет комплексную основу для характеристики эффективности и безопасности AMP и их синтетических аналогов. Вместе эти методологии формируют систематический подход к разработке и валидации новых антимикробных препаратов для решения растущей глобальной проблемы АМР.
Протокол
1. Синтез антраниламидного пептида, имитирующего RK758
- RK758 синтезируется на собственном уровне из ключевых органических строительных блоков: N-бензилкарбамат, защищённого L-триптофаном и 5-бром-изатоинового ангидрида. Сообщалось о нескольких синтетических подходах; Однако приведённый ниже подход показал хорошую масштабируемость и общий выход, что является улучшением ранее опубликованных синтетических протоколов14,15.
- Метод 1: Синтез бензил (S)-(1-((2-((трет-бутоксикарбонил)амино)этил)амино)-3-(1H-индол-3-ил)-1-оксопропан-2-ил) карбамата (2):
- В одношейной колбе объёмом 250 мл, оснащённой магнитным перемешивателем, взвешивают Cbz-L-триптофан (10,0 г, 29,6 ммоль) и растворяют в 30 мл DMF и 80 мл DCM.
ВНИМАНИЕ: ДМФ подозревается в причинении врождённых дефектов; Избегайте брать в руки при беременности и обращаться только в вытяжном контейнере. - Добавьте HOBt (4,08 г, 29,6 ммоль), N-Boc-этилендиамин (4,66 мл, 29,6 ммоль) и диизопропилэтиламин (8,31 мл, 59,0 ммоль) и перемешивайте 15 минут.
- Добавьте соль гидрохлорида EDC (11,3 г, 59 ммоль). Перемешивать при комнатной температуре 20 часов.
ВНИМАНИЕ: Карбодииды, такие как EDC, известны тем, что повышают чувствительность к анафилактическим реакциям при повторном воздействии; Убедитесь, что надеваются соответствующие перчатки. - Проверьте TLC с использованием 1:1 (v/v) DCM/этилацетата, чтобы убедиться, что весь Cbz-L-Trp был израсходован.
- После завершения реакции используйте ротационный испаритель для концентрации реакции и удаления дихлорметана из смеси.
- Растворить шлам примерно в 300–400 мл этилацетата
ПРИМЕЧАНИЕ: Шаг 1.1.1.6 даёт суспензия в диметилформамиде. Используйте достаточно этилацетата для растворения суспензии. - Налейте раствор в сепаративную воронку объемом 500 мл вместе с 50 мл воды. Потрясти разделительную воронку.
ВНИМАНИЕ: Поскольку здесь используется большое количество летучих растворителей, крайне важно периодически выпускать сепаративную воронку. - Дренаж водного слоя, сохраняя органический этилацетатный слой.
- Повторите шаг 1.1.1.7-1.1.1.8, используя 50 мл воды, 50 мл насыщенного водного бикарбоната натрия и 50 мл насыщенного водного хлорида натрия.
- Перенесите оставшийся органический слой в коническую колбу объёмом 1 л. Высушите органику, добавив безводный сульфат натрия и покрутив колбу до образования свободно текущего порошка.
- Фильтруйте смесь в колбу с круглым дном объёмом 1 л, затем концентрируйте до сухости на ротационном испарителе (водяная баня 40 °C с вакуумом 180 мбар).
- Добавьте 50 мл диэтилового эфира и магнитную батончик для перемешивания, и помешайте суспензию 45-60 минут.
ПРИМЕЧАНИЕ: Эффективно соскребать твёрдые частицы со стенки фляжки металлической лопаткой. - Фильтруйте суспензию, чтобы собрать осаживающиеся твёрдые частицы. Промойте фильтр ещё дважды порциями диэтилового эфира по 50 мл. Сушите твёрдые вещества под всасыванием для получения соединения 2 в виде бежевого порошка с выходом 87%.
- В одношейной колбе объёмом 250 мл, оснащённой магнитным перемешивателем, взвешивают Cbz-L-триптофан (10,0 г, 29,6 ммоль) и растворяют в 30 мл DMF и 80 мл DCM.
- Метод 2: Синтез карбамата трет-бутил (S)-(2-(2-амино-3-(1H-индол-3-ил) пропанамидо) этил) карбамата (3)
- В колбе с круглым дном объёмом 250 мл с двумя горлышками, оснащённой резиновой перегородкой и стеклянной пробкой, растворите продукт 2 (10,8 г, 22,3 ммоль) в 100 мл метанола с помощью магнитного перемешивания
ПРИМЕЧАНИЕ: Не смазывайте стеклянную пробку, так как это может привести к загрязнению. - Во время помешивания добавляйте 10% палладия на углерод (1,07 г) через отверстие с помощью стеклянной пробки. Используя коллектор Шленка, пропустите азотный газ в смесь не менее 30 минут.
ПРИМЕЧАНИЕ: Может использоваться любой инертный газ, например аргон; однако в этом случае достаточно дома N2. - Замените стеклянную пробку на двухсторонний заземляющий стеклянный адаптер, при этом одна линия подключена к водородному шару, а другая — к вакууму. Обмотайте PTFE-ленту вокруг соединения, чтобы создать герметичное уплотнение.
- Откройте колбу для вакуума, пока метанол не начнёт закипать, затем быстро откройте колбу для водородного шара. Повторите ещё дважды.
- Контролируйте реакцию с помощью тонкослойной хроматографии (используя этилацетат/дихлорметан 1:1 в качестве элюента), извлекая небольшие аликвоты реакционной смеси через резиновую перегородку с помощью шприца и фильтруя через мембранный фильтр PTFE с толщиной 40 мкм.
- На коллекторе Шленка переключите вакуум на азот. Снимите резиновую перегородку из колбы и дайте азоту вывести оставшийся водород примерно на 5 минут.
ВНИМАНИЕ: Палладий на углероде может спонтанно воспламеняться в воздухе, когда на него адсорбируется водород. Важно вести реакцию под инертным газовым одеялом. - Подготовьте слой из диатомовой земли, сформировав суспензию из диатомовой земли в этилацетате и перемесив её в фильтрующую воронку средней пористости стеклянного фрита, прикреплённую к колбе с круглым дном объёмом 500 мл, и создайте лёгкий вакуум, пока растворитель не окажется чуть выше уровня диатомической земли
ПРИМЕЧАНИЕ: Колонна диатомовой земли должна быть не менее 2–4 см в высоту при загрузке в воронку.
ВНИМАНИЕ: Диатомовый земляный/кристаллический кремнезём является высококанцерогенным и известен тем, что вызывает мезотелиому через воздействие дыхательных путей. Его всегда следует держать в вытяжке или с соответствующим респиратором. - Используя пипетку или иным способом, перенесите реакционную суспензию на верхнюю часть целитовой колонны, стараясь не потревожить верхний слой целита. Повторяйте, пока в колбе не останется лишь небольшое количество реакционной суспензии (<2 мл)
ПРИМЕЧАНИЕ: После достаточного количества головки растворителя над столом содержимое колбы можно залить в фильтрующую воронку. - Периодически протягивайте лёгкий вакуум на воронке/колбу, пока головка растворителя не окажется чуть выше стола, промывайте содержимое колбы небольшим количеством этилацетата и повторяйте это 3–4 раза
ПРИМЕЧАНИЕ: Слой палладиа/углерода поверх целита никогда не должен подвергаться воздействию воздуха. - Продолжайте мыть прокладку, пока все средства не будут профильтрованы; это можно проверить, капнув немного фильтрованного растворителя на небольшой кусочек пластины TLC и визуализировав его под ультрафиолетовым светом.
- Удалите весь растворитель с роторного испарителя. Добавьте минимальное количество дихлорметана (5 мл) в остаток и осадьте продукт, добавив диэтиловый эфир (50 мл).
- Фильтруйте смесь, сохраняя осадок, который обеспечивает промежуточный продукт 3 по количественному выходу.
- В колбе с круглым дном объёмом 250 мл с двумя горлышками, оснащённой резиновой перегородкой и стеклянной пробкой, растворите продукт 2 (10,8 г, 22,3 ммоль) в 100 мл метанола с помощью магнитного перемешивания
- Метод 3: Синтез карбамата трет-бутил (S)-(2-(2-(2-амино-5-бромобензамидо)-3-(1H-индол-3-ил)пропанамидо)этил) карбамата (4)
- В термо с одним горлышком и круглым дном объёмом 250 мл взвешивают продукт 3 (5,00 г, 14,5 ммоль) и 5-бромоисатоиновый ангидрид (5) (3,50 г, 14,5 ммоль). Добавьте 50 мл безводного ацетонитрила.
ПРИМЕЧАНИЕ: Безводный ацетонитрил был получен из системы очистки растворителя путём перколяции растворителя через колонну активированного глинозема. - Оснастите колбу водяным конденсатором рефлюкса и сушильной трубкой, заполненными безводным хлоридом кальция, и герметизируйте соединения PTFE-лентой.
- Нагрейте смесь до рефлюкса (б.п. ацетонитрил = 82 °C), температура масляной ванны = 100 °C. Перемешивайте при рефлюксе 18 часов или пока TLC не покажет потребление трёх таблеток. После завершения сконцентрируйте реакционную смесь на сухость в вакууме.
- К твердым веществам добавьте 30 мл ацетонитрила и 50 мл диэтилового эфира и отфильтруйте смесь, сохраняя твёрдый продукт. Соберите твёрдый продукт, чтобы получить заглавный состав 4 в 78% выхода.
- В термо с одним горлышком и круглым дном объёмом 250 мл взвешивают продукт 3 (5,00 г, 14,5 ммоль) и 5-бромоисатоиновый ангидрид (5) (3,50 г, 14,5 ммоль). Добавьте 50 мл безводного ацетонитрила.
- Метод 4: Синтез терт-бутил (S)-(2-(2-(2-(2-(2-нафтамидо)-5-бромобензамидо)-3-(1H-индол-3-ил)пропанамидо)этил) карбамата (6)
- В 50 мл высушенной в духовке с одним горлом и круглым дном растворите 2-нафтоилхлорид (572 мг, 3,0 ммоль) в 10 мл дихлорметана. Поставьте в колбу резиновую перегородку. Эта колба далее называется «фляга A».
ПРИМЕЧАНИЕ: В исследовании использовался нафтоилхлорид от коммерческого поставщика, но аналогичные результаты были получены из 2-нафтоевой кислоты с использованием оксалилхлорида, какуказано в 14). - В отдельной фляжке с круглым дном объёмом 100 мл с одним горлом взвешивают продукт 4 (544 мг, 1,0 ммоль). Эта фляга далее называется «Фляга B».
- Поставьте Flask B резиновой перегородкой и подключите к коллектору Шленка с помощью иглы для шприца и адаптера Luer. Промите колбу B в вакууме и заполните азотом, повторите дважды.
- Добавьте 20 мл безводного дихлорметана с помощью шприца в колбу B. Добавьте триэтиламин (455 мкл, 3,24 ммоль) с помощью шприца в колбу B. Охладите на ледяной ванне 10 минут.
- Наполните содержимое фляжки А в шприц подходящего размера. Добавляйте раствор из шприца в термос B капля с перемешиванием.
ПРИМЕЧАНИЕ: Производство гидрохлорида триэтиламина может рассматриваться в виде белых паров над растворителем. Удалите из ледяной ванны после добавления раствора хлорида кислоты. - Перемешивайте смесь, пока не израсходоваем весь состав соединения 4 согласно анализу TLC. Концентрируйте смесь почти до сухости на ротационном испарителе (600 мбар, 40 °C).
- Разделите смесь на воду (30 мл) и этилацетат (70 мл). Добавляйте слои, встряхивая в отдельную воронку и сбрасывая водный слой.
- Промыйте органическую смесь насыщенными водными растворамиNaHCO 3 (30 мл) и NaCl. Высушите органический слой, добавив безводный Na2SO4 , пока при смешивании не появится свободно текущий порошок.
- Концентрируйте сухость на ротационном испарителе (170 мбар, 40 °C). Тритурируйте грубые твердые частицы с помощью ацетонитрила (15 мл) и диэтилового эфира (15 мл), чтобы получить основное соединение в виде белоснежного твердого тела с выходом 70%.
- В 50 мл высушенной в духовке с одним горлом и круглым дном растворите 2-нафтоилхлорид (572 мг, 3,0 ммоль) в 10 мл дихлорметана. Поставьте в колбу резиновую перегородку. Эта колба далее называется «фляга A».
- Метод 5: Синтез (S)-N-(2-((1-((2-аминоэтил)амино)-3-(1H-индол-3-ил)-1-оксопропан-2-ил)карбамоил)-4-бромофенил)-2-нафтамида (7)
- Обрабатывайте суспензию промежуточного вещества 6 (1,5 г, 2,15 ммоль) в дихлорметане (конечная концентрация 0,2 м) 1,2-этанедитиолом (20% объёма по объёму DCM).
ВНИМАНИЕ: 1,2-этанедиол имеет неприятный запах, который может вызывать тошноту даже при низкой концентрации. Держитесь в выхлопчике. - Охладите смесь в ледяной ванне, затем обработайте трифторуксусной кислотой (тот же объём, что и DCM). Перемешайте смесь при 0 °C в течение 2 часов.
- После завершения сконцентрировать реакционную смесь путём промывания азотом
ПРИМЕЧАНИЕ: Выхлопные газы могут пузыриться через отбеливатель для ограничения выделения запаха. - Тритурируйте сырые твердые частицы с помощью диэтилового эфира (10 мл) и фильтруйте для их собрания. Промыйте фильтр дважды диэтиловым эфиром (по 10 мл каждый), затем дайте твёрдым веществам высохнуть под всасыванием.
- Обрабатывайте суспензию промежуточного вещества 6 (1,5 г, 2,15 ммоль) в дихлорметане (конечная концентрация 0,2 м) 1,2-этанедитиолом (20% объёма по объёму DCM).
- Метод 6: Синтез трет-бутил (S,Z)-(3-((1H-индол-3-ил)метил)-1-(2-(2-(2-нафтамидо)-5-бромофенил)-1,4-диоксо-9-(фенилимино)-2,5,8,10-тетраазадодекан-12-ил) карбамата (9)
- Заряжайте колбу с одним горлышком с круглым дном с промежуточным содержанием 7 (1,0 г, 1,4 ммоль), производным тиомовини 8 (415 мг, 1,4 ммоль) и триэтиламином (1,01 мл, 4,2 ммоль) в N, N-диметилформамиде (5 мл).
- Охладите реакцию до -5 °C в ванне с рассолам, добавьте хлорид ртуть (II) (760 мг, 2,8 ммоль) и помешивайте 16 часов.
ВНИМАНИЕ: Хлорид ртуть (II) смертелен через пероральное, дермальное и дыхательное воздействие. Он также крайне токсичен для водных организмов. Носите химически стойкие перчатки, защиту для глаз и тело. Кроме того, избегайте аэрозольных растворов с ртутно(II) хлоридом и обрабатывайте их в выхлопной вытяжке. Убедитесь, что отходы этого процесса отделены от других органических потоков и не попадают ртутные отходы в канализацию. - После завершения разведите смесь 2-пропранолом и профильтруйте через слой целита, собирая фильтрат.
- Концентрируйте фильтрат до сухости на ротационном испарителе и подвергайте остатки хроматографии с флэш-колонной хроматографией на кремнезёме с использованием метанола/дихлорметана 3:97 в качестве элюэнта.
- Проанализируйте собранные дроби с помощью TLC, а затем соберите чистые дроби, чтобы позволить себе состав титула.
- Метод 7: Синтез RK758
- Метод снятия защиты с промежуточной 8 для образования RK758 идентичен шагу 1.1.5.
- Растворить полученный продукт в 5 мл ацетонитрила/сверхчистой воды с соотношением 1:1 (v/v) и перенести в винтовую крышку с боросиликатным стеклом. Заморозьте раствор в ванне с жидким азотом, а затем заморозьте сублимацию, чтобы получить продукт.
ПРИМЕЧАНИЕ: Важно убедиться, что используемый флакон состоит из боросиликата, чтобы предотвратить трещины при заморозке.
ВНИМАНИЕ: Воздействие жидкого азота может привести к обморожению или повреждению кожи. Убедитесь, что надеваются соответствующие перчатки и защита для глаз.
- Метод 1: Синтез бензил (S)-(1-((2-((трет-бутоксикарбонил)амино)этил)амино)-3-(1H-индол-3-ил)-1-оксопропан-2-ил) карбамата (2):
2. Рекомбинантное производство и очистка высококатионного антимикробного пептида Mel4 (KNKRKRRRRRRRRRRRR)
- Оптимизированный протокол для производства
- Синтез генов
- Спроектировать и синтезировать генную кассету со следующими компонентами: HIS (6x/7x метка гистидина для выделения рекомбинантного пептида, метка кетостероидной изомеразы (KSI) для формирования инклюзивного тела (IB) и участка расщепления вируса табака (TEV) (ENLYFQ↓G, S, A, M, C, H) для устойчивого, химически свободного удаления KSI и His-tag из белкового мотива.
- Выберите аминокислоту сразу после разреза (G, S, A, M, C, H) так, чтобы она не влияла на активность AMP.
ПРИМЕЧАНИЕ: Glycine обеспечивает наивысшую эффективность расщепления TEV. Одна аминокислота, расположенная либо на N-, либо на C-конце, может влиять на физико-химические свойства AMPs, что приводит к их активности. - Синтезировать синтетическую последовательность генов, включая фланговые области, с сайтами рестрикции XbaI диаметром 5' и 3' XhoI. Аминокислотная последовательность приведена в Таблице 1 и схематично на рисунке 1.
- Клонирование
- Переварить вектор pET с помощью совместимых рестрикционных ферментов.
ПРИМЕЧАНИЕ: В этом случае плазмида p15TVL (производное pET15b, промотор Ampr, T7) была переварена с помощью XbaI, XhoI и ScaI (для расщепления нежелательного фрагмента). - Чтобы предотвратить повторное перелигание переваренных фрагментов, обрабатывайте щелочной фосфатазой в кишечнике телёнка в течение 10 минут при 37 °C. Переварить синтетический ген His-KSI-Mel4 с XbaI и XhoI в реакции на 20 мкл.
- Очистите фрагменты от всех рестрикционных ферментов с помощью комплекта для очистки QIAquick PCR Purification Kit. В качестве альтернативы проведите гель-электрофорез и вырезайте полосу, связанную с нужным фрагментом вектора, затем извлеките фрагмент из геля с помощью набора для экстракции геля.
ПРИМЕЧАНИЕ: Убедитесь, что очищенные фрагменты количественно оцениваются с помощью спектрофотометрического метода (NanoDrop) для оптимизации лигирования.
- Переварить вектор pET с помощью совместимых рестрикционных ферментов.
- Связывание и преобразование
- Перевязать переваренный синтетический ген, вставленный в вектор pET. Убедитесь, что пропорции вставка и вектора равнозначны.
- Инкубировать смесь с T4-лигазой на ночь при 16 °C. Преобразование в химически или электрокомпетентный DH5α с помощью теплового удара или электропорации соответственно.
- Аккуратно смешайте химически компетентные DH5α клетки с плазмидной ДНК и инкубируйте на льду, чтобы обеспечить прикрепление ДНК. Затем подвергайте клетки тепловым ударом в течение 30 секунд при 42 °C, чтобы облегчить поглощение ДНК, а затем быстро охлаждайте на льду.
- После восстановления в среде без антибиотиков 450 мкл LB при 37 °C в течение часа клетки помещают в селективный агар с соответствующим антибиотиком.
ПРИМЕЧАНИЕ: Трансформированные колонии обычно появляются после ночной инкубации. Для электрокомпетентных клеток DH5α смешивают небольшой объём очищенной, безсолёной плазмидной ДНК (обычно 1–2 мкл 10–100 нг в клетки ~50 мкл) с клетками в охлаждённой электропорационной кувете. - После короткого охлаждения подайте один импульс (распространённые настройки: 1,8 кВ для кюветки с зазором 0,2 см, дающая постоянную времени ~5 мс; отрегулируйте под ваше устройство/кювет), стараясь избежать дуги с помощью обезсолённой ДНК и ледяных реагентов.
- Сразу добавьте ~450 мкл предварительно подогреного LB, восстанавливайте при 37 °C с часовым встряхиванием, затем кладите на селективный агар.
- Выращивание трансформаторов на ночь в бульоне LB для выделения плазмид с помощью набора для очистки плазмид. Проверьте окончательную конструкцию плазмиды с помощью ПЦР с помощью праймеров из таблицы 1 и подтвердите последовательность с помощью секвенирования Сэнгера.
- Преобразуем проверенную плазмиду в экспрессионного хозяина (химически или электрокомпетентного), E. coli BL21(DE3), как указано выше.
- Синтез генов
- Оптимизированное производство экспрессии и инклюзивного тела (IB)
- Инокулятируйте бульон 10 мл LB (100 мкг/мл ампициллина) и выращивайте при 37 °C ночью. Используйте это для инокуляции 100 мл, а затем для культуры производства 1 л.
- Разбавить в LB до оптической плотности (OD 600) посева при времени 0 = 0,1. Используйте среду LB с добавлением 1% глюкозы и 100 мкг/мл ампициллина.
- Инкубировать при 37 °C и контролировать ОД для достижения логарифмической фазы (OD 600 0,5–0,6). Индуцируют с низкой концентрацией изопропил β-D-1-тиогалактопиранозида IPTG, обычно 0,1 мМ.
Поддерживайте при 37 °C в течение 16–24 часов для улучшения формирования инклюзивных тел. - Продолжайте инкубацию в течение 16–24 часов. Собирайте клетки центрифугой (5 000 x g, 4 °C) в течение 10 минут и храните гранулы при -80 °C.
- Лизис клеток и фракционирование белков
- Оттаяйте гранулы клеток на льду и ревзвешенно в реагенте Bugbuster, чтобы инициировать химический лизис. Центрифугуйте лизат при 4000 г в течение 20 минут при 4 °C. Соберите супернатант как растворимую белковую долю.
- Промой оставшиеся гранулы и снова суспенгируй её в 10% (v/v) Bugbuster в воде MilliQ. Подвергать суспензию соникации для полного восстановления нерастворимой фракции белка (включающих тел).
- Обрабатывайте образцы 100 мкл буфера образцов SDS-PAGE с 5% β-меркаптоэтанолом. Инкубировать смесь при 95 °C в течение 5 минут, чтобы обеспечить полную денатурацию белка.
- Электрофорез SDS-PAGE
- Загрузите денатурированные лизаты на дублирующиеся гели 15% SDS-PAGE для стандартного электрофоретического разделения.
- Промой один гель водой в течение 1 часа. Нанесите морилку на ночь с помощью реагента GelCode Blue Stain. На следующий день используйте воду, пока полосы не будут чётко визуализированы.
- Визуализируйте и задокументируйте (рисунок 2A) окрашенный гель для оценки общего профиля белка (TCP) и распределения фракций с помощью прибора Biorad Gel Doc с помощью Image Lab.
- Вестерн блоттинг (иммуннодетекция)
- Уравновесить неокрашенный гель, нитроцеллюлозную мембрану, фильтрующую бумагу и губки в буфере трансфера (20 мМ Tris-HCl pH 7,4, 150 мМ NaCl, 0,1% Tween 20). Соберите сэндвич для переноса и проведите передачу при 100 В в течение 1 часа при окружающей температуре.
- Инкубировать мембрану в блокирующем буфере (5% обезжиренное молоко в TBST) в течение 1 часа при комнатной температуре, чтобы предотвратить неспецифическое связывание.
- Инкубировать мембрану первичным антителом Mouse anti-HisTag (разбавленным в буфере блокировки 1:1 000) ночью при 4 °C с мягким перемешиванием.
- Промой мембрану три раза с помощью TBST по 5 минут каждая. Инкубировать мембрану с помощью HRP-конъюгированного противомышиного IgG (разбавленный в буфере 1:5 000) в течение 1 часа при комнатной температуре.
- Проведите финальный раунд из трёх промывок TBST. Прикладывайте подложку Enhanced Chemiluminescence (ECL) на мембрану на 1 минуту и визуализуйте с помощью хемилюминесцентного имиджера или воздействуя на рентгеновскую плёнку. Задокументируйте изображение (как показано на рисунке 2B).
- Изоляция IB и очистка аффинности
- Повторная суспензия клеточной гранулы в лизисном буфере (100 мМ Трис· Cl, pH 7,0, 5 мМ EDTA, 5 мМ DTT (770 мг/литр), 5 мМ бензамидин· HCl (780 мг/литр)) и выполняет механический лизис (например, френч-пресс/соникация). Центрифуга (20 000 x g, 4 °C в течение 20 минут) для выделения нерастворимой гранулы KSI-Mel4 IB.
- Тщательно промыйте гранулы с помощью буфера для промывания (100 мМ Трис· Cl, pH 7, 5 мМ EDTA, 5 мМ DTT, 2 млн мочевины, 2% (с в/в) Triton X-100). Растворить гранулу в объеме не более 2 М мочевины.
ПРИМЕЧАНИЕ: Концентрация мочевины для растворения IB должна находиться в рабочем диапазоне протеазы TEV. - Количественно оцените изолированный IB с помощью комплекта BCA согласно инструкциям производителя.
- Смешайте реагенты Pierce B и A в соотношении объёма 1:50. Рассчитайте общий объём, необходимый на основе количества стандартов и образцов, которые будут использоваться в тройном экземпляре.
- Используя бычий сывороточный альбумин (BSA) в качестве эталона, подготовьте серию разбавлений для создания стандартной кривой от 3000 мкг/мл до 200 мкг/мл.
- Используя пластину на 96 лунок, пипетка по 25 мкл каждого стандарта BSA и образца (включая очищенный супернатант и ресуспендированный осадок) в скважины.
- Добавьте 200 мкл подготовленного рабочего реагента BCA в каждую скважину, содержащей стандарт или образец. Ненадолго перемешайте пластину и инкубируем 1–2 часа при 37 °C, чтобы дать цвету развиться.
- После инкубации измерите поглощение пластины на 562 нм с помощью спектрофотометра. График поглощения стандартов BSA с их известными концентрациями, чтобы получить линейную или квадратичную стандартную кривую.
- Определите концентрацию белка в образцах His-KSI-Mel4 или рекомбинантного Mel4, сравнивая их значения поглощения с сгенерированной стандартной кривой. Концентрации до и после расщепления TEV показаны на рисунке 3.
- Ферментативное расщепление и удаление меток
- Реакция расщепления: протеаза TEV His-tag (рекомендуемое молярное соотношение 1:50 к 1:100 протеазы: Fusion Protein). Инкубировать 16 часов при 4 °C для максимальной эффективности.
- Удаление меток и очистка иммобилизованной хроматографии аффинности металла (IMAC):
- Пропустите смесь реакции расщепления по свежей колонке никель-нитрилотриуксусной кислоты (Ni-NTA). Уравновесьте Ni-NTA-смолу с буфером связывания (Лизисный буфер).
- Загрузите смесь реакции расщепления. Компоненты, отмеченные His, (фрагмент KSI и протеаза TEV) связываются с смолою.
- Собрать проток, который содержит немаркированный рекомбинантный пептид Mel4 с остаточными аминокислотами G, S, A, M, C и H из места расщепления TEV.
- Убедитесь, что эта дополнительная аминокислота не влияет на активность AMP, проведя MIC тест с химически синтезированным Mel4 в качестве контроля.
- Элюируйте связанный фрагмент KSI и протеазу TEV с помощью буферного градиента элюции (500 мМ Имидазол, 500 мМ NaCl, 20 мМ буфера фосфата натрия, pH 8).
- Проведите анализ BCA, как указано в шаге 2.6.3.
3. Антимикробная активность
- Подготовка медиа
- Подготовьте среду [бульон Мюллера Хинтона, катионно-регулируемый (CAMHB), соевый бульон триптиказы (TSB), нейтрализующий бульон D/E и соевый агар триптиказы (TSA)] согласно инструкции производителя. Также приготовьте 1 × фосфатно-буферный физиологический раствор (PBS) из 10 × концентрированного PBS. Затем автоклавуйте их при 121 °C при 15 фунтах на2 дюйма.
- Подготовка пептидного запаса
- Растворять AMP и имитировать в стерильной воде при высокой концентрации, например, 20 мМ или не менее 2 мг/мл. Если пептид нерастворим, используйте стерильную воду с конечной концентрацией 0,01% уксуснойкислоты 16. Если ожидается адсорбция к пластиковым поверхностям, дополните стандартный раствор 0,2% (с в/в) BSA, так как он действует как блокирующийагент 17.
ПРИМЕЧАНИЕ: Диметилсульфоксид (DMSO) также рекомендуется для растворения пептидов или мимиков, которые нерастворимы в воде. Приготовьте концентрированный бульонный раствор, например, 20 мМ или 2 мг/мл. - Фильтруйте-стерилизуйте пептидный материал с помощью шприцового фильтра 0,22 мкм в асептических условиях.
- Приготовьте аликвоты из запаса AMP и храните при -20 °C (в зависимости от стабильности AMP). Подготовьте такой же растворительный механизм.
- Растворять AMP и имитировать в стерильной воде при высокой концентрации, например, 20 мМ или не менее 2 мг/мл. Если пептид нерастворим, используйте стерильную воду с конечной концентрацией 0,01% уксуснойкислоты 16. Если ожидается адсорбция к пластиковым поверхностям, дополните стандартный раствор 0,2% (с в/в) BSA, так как он действует как блокирующийагент 17.
- Подготовка бактериального инокулума
- Разведите бактериальный изолят для тестирования на богатую питательными веществами среду, такую как TSA, чтобы получить чистые, хорошо изолированные колонии.
- Инкубировать пластину аэробным способом при 36 ± 1 °C в течение 18-24 часа.
- Выберите три-пять морфологически похожих, хорошо изолированных колоний из культивирующей пластины с помощью стерильной инокуляционной петли. Переместите их в стерильную трубку с 5–10 мл TSB или CAMHB. Для достижения равномерного подвешивания аккуратно натирайте петлю бактериальными колониями о внутреннюю стенку наклонной трубки, чтобы получить однородную суспензию.
- Инкубировать культуру бульона при 36 ± 1 °C, встряхивая при 180 об/мин в течение 18–24 часов.
- Центрифугуйте ночную культуру при 3000 г в течение 10 минут при 25 °C и трижды промыйте бактериальную гранулу стерильной дозой 1 × PBS.
- В стерильной ёмкости насыпьте 2 мл по 1 × PBS, затем добавьте 50–100 мкл промытой бактериальной суспензии и создайте вихрь в течение 5–10 секунд для достижения равномерности.
- Измерьте оптическую плотность при 600 нм (OD 600) с помощью спектрофотометра. Кратко добавьте 200 мкл бактериальной суспензии к пластине с 96 лунками, а также тот же объём 1× PBS, что и в заготовке, и измерьтеOD 600 для получения эквивалента 0,1, что примерно соответствует 1–2 × 10⁸ CFU/mL (проверьте по жизнеспособному числу пластин на TSA).
- Разведите скорректированную суспензию на 1:100 в CAMHB, чтобы получить итоговый инокулюм 106 CFU/mL.
- Настройка пластин
- Промаркируйте стерильную пластину с плоским дном на 96 лунок бактериальным штаммом, названием AMP, датой и инициалами учёного. На пластине отметьте места для тестовых, заготовок и контроля на крышке.
- Наливайте 200 мкл раствора AMP (максимальной концентрации) в первую колонку пластины. К оставшимся скважинам, с колонок 2 по 12, добавьте 100 мкл CAMHB.
- С помощью многоканальной пипетки выполните дважды последовательные разбавления AMP от столбца 1 до столбца 10, отбрасывая 100 мкл из десятого столбца.
- Добавьте 100 мкл подготовленного бактериального инокулюма (106 КОЕ/мл) в каждую яму, кроме контроля стерильности (бланк). Это даст итоговую бактериальную концентрацию примерно 5 × 10⁵ CFU/mL в испытательных скважинах. Добавьте 100 мкл CAMHB в пустые скважины, чтобы увеличить итоговый объём до 200 мкл. Подготовьте тройные скважины для каждой концентрации.
ПРИМЕЧАНИЕ: Для AMP, которые осаждаются при разбавлении в CAMHB, добавление уксусной кислоты с BSA 0,1–0,2% может решить проблему; Оптимизация может потребовать эмпирическоготестирования 16. В таких случаях включайте скважины с контролем растворителя (содержащие CAMHB с уксусной кислотой и/или BSA). - Аналогично, выполните MIC для AMP mimic (RK758) и компараторного антибиотика (например, колистин).
- Накройте тарелку крышкой, запечатайте пищевой пленкой, чтобы предотвратить испарение, и инкубуйте при 36 ± 1 °C в течение 18–24 часа.
- Включить эталонный штамм E. coli (например, MCR-1-носитель E. coli NCTC 13846) параллельно и процессировать процесс аналогично пептиду или пептидному имитированию.
- После инкубации записывайте MIC.
- Определение MIC
- ИзмерьтеOD 600 каждой ямы с помощью считывателя микропластин. Рассчитайте процентное снижение роста относительно необработанного контроля роста. MIC определяется как самая низкая концентрация AMP, которая приводит к снижениюOD 600 как минимум на 90% по сравнению с контролемроста 18.
- Определите значения MIC как минимум из трёх независимых экспериментов, проведённых в трёх экземплярах. Сообщайте результаты как среднее ± стандартное отклонение для обеспечения воспроизводимости.
ПРИМЕЧАНИЕ: MIC для контрольного штамма, E. coli NCTC 13846, должен находиться в пределах двойного разбавления ожидаемого MIC колистина. Подтвердите, что контроли растворителей, содержащие ДМСО, уксусную кислоту и БСА, сами по себе не имели тормозной активности.
- Определение минимальной бактерицидной концентрации (MBC)
- Из скважин на MIC и выше, а также из одной концентрации ниже, 100 мкл бактериальной суспензии передают в 900 мкл D/E бульона для получения последовательных разбавлений.
- Пластинка 20 мкл каждой разбавленной суспензии нанесёт на TSA в тройных экземплярах для определения жизнеспособного количества бактерий.
- После ночной инкубации при 36 ± 1 °C в течение 24 часов подсчитайте колонии, умножьте на соответствующий коэффициент разбавления и сравните жизнеспособные подсчета с теми, что были из контрольной скважины, обработанной аналогичным образом.
- MBC определяется как самая низкая концентрация антимикробного агента, которая приводит к снижению жизнеспособного количества бактерий на 99,9% (≥ 3 log10) по сравнению с первоначальным инокуляром после 24 часов инкубации (контроль роста) при стандартныхусловиях 19.
- Репортажи
- Отчёт MIC и MBC в μg/mL и μM.
- Преобразуем μg/mL в μM с помощью μM = μg/mL × 1 000/молекулярной массы (g/mol)
- Утилизация инфекционных отходов
- Выбросить все материалы, контактировавшие с живыми бактериальными культурами, включая 96-колодцевые микротитровые пластины, наконечники пипеток и трубки Falcon, в специальные мешки для биологической опасности для отходов.
- Автоклавировать собранные биологически опасные отходы при 121 °C в течение 15–20 минут под давлением 15 psi для полной стерилизации перед утилизацией в соответствии с институциональными рекомендациями по биобезопасности.
4. Цитотоксичность
- Подсчёт клеток и посев для анализа токсичности
- Содержать клетки, такие как клетки фибробласта мыши L929, в колбе размером 75см 2 в минимально необходимой среде Дульбекко (DMEM), содержащей 10% сыворотки плода бычьего скота (FBS) и 1% антибиотиков (стрептомицин сульфат и пенициллин G) при 37 °C с 5% CO2.
- Промывайте клетки с помощью 1x PBS и трипсинизуйте с помощью 0,25% трипсина-EDTA. Подсчитайте клетки, смешав 50 мкл суспензии клеток с 50 мкл 0,4% Трипан Синий, и загрузите 10 мкл в гемоцитометр.
- Посчитайте жизнеспособные (неокрашенные) и мёртвые (синие) клетки в четырёх угловых квадратах и вычислите общее количество ячеек с помощью следующих ячеек = (среднее количество живых ячеек × 104 × 2 [коэффициент разбавления]).
- Рассчитайте жизнеспособность (%) = (живы / [живы + мёртвы]) × 100.
- Отрегулировать конечную концентрацию ячеек на 5 × 10⁴ клеток/мл (что соответствует 5 000 клеток/скважине в 100 мкл с использованием среды DMEM).
- Семя по 100 мкл клеточной суспензии в каждую яме стерильной пластины на 96 лунок помещать. Инкубировать в течение 24 часов при 37 °C с 5%CO2 для обеспечения придержки.
- Подготовка тестовых решений Mel4 и RK758
- Приготовьте рабочие растворы Mel4/RK758 в обычном DMEM (без FBS и антибиотиков) при конечных целевых концентрациях (1 000, 500, 250, 125, 62,5, 31,25, 15,6, 7,8 и 3,9 мкм), используя стандартный раствор, описанный в шаге 3.2.
- Удалите посевную среду из каждой колодца. Добавьте 100 мкл соответствующего рабочего раствора 1× Mel4/RK758 непосредственно в скважины.
- Добавьте 100 мкл DMEM в назначенные отрицательные контрольные (NC) скважины.
- Добавьте 100 мкл ДМСО в положительно контролируемых скважинах (ПК) (помимо ДМСО, в качестве положительного контроля рекомендуется цитотоксический агент, такой как Triton X-100).
- Добавьте 100 мкл 1 x PBS в качестве пустого элемента.
ПРИМЕЧАНИЕ: Проводите все процедуры и контроль в трёх экземплярах. Обращайтесь с DMSO перчатками и защитой для глаз; Избегайте контакта с кожей и утилизируйте отходы растворителя согласно институциональным процедурам.
- 3-(4,5-диметилтиазол-2-ил)-2,5-дифенилтетразолий бромид (MTT) анализ
- После 24 часов воздействия Mel4/RK758 аккуратно аспирируйте тестовую среду, не нарушая клетки.
ПРИМЕЧАНИЕ: Продолжительность обработки антимикробными соединениями может варьироваться в зависимости от конкретного дизайна эксперимента. - Приготовьте рабочий раствор MTT, разбавляя стандартный раствор 5 мг/мл 1:9 обычным DMEM (конечная концентрация 0,5 мг/мл).
- Добавьте 100 мкл рабочего раствора MTT в каждую скважину. Накройте пластину алюминиевой фольгой для защиты от света и инкубуйте 2 часа при 37 °C, пока не образуются фиолетовые кристаллы формазана.
ПРИМЕЧАНИЕ: MTT чувствительный к свету и токсичен. Обращайтесь с перчатками и утилизируйте отходы в соответствии с институциональными процедурами биобезопасности. Всегда выключайте свет во время обработки с реагентом MTT.
- После 24 часов воздействия Mel4/RK758 аккуратно аспирируйте тестовую среду, не нарушая клетки.
- Измерение растворения и поглощения формазана
- Аккуратно удаляйте раствор MTT из каждой скважины. Добавьте 100 мкл DMSO в каждую яму, чтобы растворить кристаллы формазана.
- Поставьте тарелку на шейкер на 5 минут, чтобы обеспечить полное растворение. Измерьте поглощение при 570 нм с помощью считывателя микропластин.
- Анализ данных и определение 50% цитотоксической концентрации (IC50 или CC50)
- Вычтите значения поглощения пустых (PBS) из всех показаний и используйте исправленную пустоту для расчёта.
- Рассчитайте жизнеспособность клетки (%) с помощью уравнения: жизнеспособность (%) = (обработанная A /A NC (клетка)) × 100.
- Рассчитайте IC50 или CC50 с помощью программного обеспечения GraphPad Prism.
ПРИМЕЧАНИЕ: Повторяйте эксперименты в тройном экземпляре и отражайте данные как средние ± стандартное отклонение.
Результаты
Синтез RK758
Аналитические данные до промежуточного уровня 7 были опубликованыранее 14. Аналитические данные для RK758 и промежуточных 8–9 следующие:
Терт-бутил (2-(3-фенилтиореидо)этилкарбамат (8):
Продукт 8 получался в виде белоснежного твердого материала (1,89 г, 87%); м.п. 167,4–168,3 °C; 1H ЯМР (300 МГц, DMSO-d 6) δ 9,58 (s, 1H), 7,71 (s, 1H), 7,44–7,29 (m, 4H), 7,11 (t, J = 12,0 Гц, 1H), 6,88 (br s, 1H), 3,55-3,53 (m, 2H), 3,13 (q, J = 4,0 Гц, 2H), 1,59 (s, 9H); 13C ЯМР (75 МГц,DMSO-d 6) δ 180,9, 156,3, 139,5, 129,1, 124,7, 123,7, 78,2, 44,3, 28,7; HRMS (ESI+): m/z, рассчитанные для C14H 21N3O2 SNa+ [M + Na]+: 318.1247, найдено: 318.1252.
терт-бутил (S,Z)-(3-((1H-индол-3-ил)метил)-1-(2-(2-(2-нафтамидо)-5-бромофенил)- 1,4-диоксо-9-(фенилимино)-2,5,8,10-тетраазадодекан-12-ил)карбамат (9):
Продукт 9 был получен в виде белого твёрдого вещества (0,253 г, 62%); m.p. 173,4–174,9 °C; 1H ЯМР (400 МГц, DMSO-d 6) δ 12,23 (s, 1H), 10,86 (s, 1H), 9,61 (s, 1H), 9,27 (d, J = 8,0 Hz, 1H), 8,57-8,54 (m, 2H), 8,44 (s, 1H), 8,11 (d, J = 4,0 Гц, 1H), 8,06-8,03 (m, 3H), 7,84 (dd, J = 4,0, 12,0 Гц, 1H), 7,78 (d, J = 12,0 Гц, 2H), 7,69–7,60 (m, 2H), 7,36 (т, J = 8,0 Гц, 2H), 7,27-7,23 (м, 5H), 7,01-6,97 (м, 3H), 4,82-4,78 (м, 1H), 3,14-3,13 (м, 10H), 1,32 (с, 9H); 13C ЯМР (100 МГц, DMSO-d6) δ 172.3, 167.8, 165.1, 156.3, 154.4, 138.9, 136.5, 135.4, 134.9, 132.6, 131.7, 129.9, 129.1, 128.7, 128.7, 128.4, 128.2, 127.6, 127.6, 126.4, 124.8, 124.1, 123.6, 122.8, 121.4, 118.9, 118.7, 115.1, 111.8, 110.9, 78.4, 55.2, 42.3, 41.9, 39.4, 38.3, 29.5, 28.6, 27.9; HRMS (ESI+): m/z рассчитано для C45H 47BrN 8O5 [M + H]+: 859.2926, найдено: 859.2925.
(S,E)-N-(2-((1-((2-(3-(2-аминоэтил)-2-фенилгуанидино)этил)амино)-3-(1H-индол- 3-ил)-1-оксопропан-2-ил)карбамоил)-4-бромофенил)-2-нафтамид (RK758) (10):
RK758 был получен в виде белого твердого материала (0,039 г, 75%); м.п. 240,0–240,9 °C; 1H ЯМР (400 МГц, MeOD-d 4): δ 8,39 (s, 1H), 8,27 (d, J = 12,0 Гц, 1H), 7,98–7,95 (m, 3H), 7,88 (d, J = 8,0 Гц, 1H), 7,79 (d, J = 4,0 Гц, 1H), 7,71-7,60 (m, 4H), 7,40 (t, J = 8,0 Гц, 1H), 7,30-7,20 (m, 4H), 7,16 (s, 1H), 7,05-6,97 (m, 2H), 4,88-4,86 (m, 1H), 3,33-3,32 (m, 3H), 3.27-3.24 (м, 5ч); 13C ЯМР (100 МГц, MeOD-d4): δ 174.3, 168.5, 166.4, 154.6, 137.1, 136.7, 135.1, 134.7, 131.4, 132.6, 131.3, 130.8, 129.8, 128.9, 127.97, 127.8, 127.9, 127.6, 127.5, 127.2, 126.8, 125.6, 123.5, 123.5, 123.24, 123.2, 118.6, 117.8, 116.1, 111.1, 109.6; HRMS (ESI+): m/z рассчитано для C40H 39BrN8O3 [M + H]+: 759.2401, найдено: 759.2407.
Синтез RK758 проводился с общей выходностью 17% из Cbz-L-триптофана в 7 этапов (см. рисунок 4). Общий доход этого процесса составил 44% по ключевому промежуточному 7 и 19% к RK758. Данные ЯМР 1H указывают на высокую чистоту конечного соединения без значительных обнаруженных примесей.
ПЦР-скрининг колонии подтвердил успешную установку кассет Mel4 и His-KSI-Mel4 в выбранные трансформаторы (рисунок 5A). ПЦР-анализ минипреп-изолированных плазмид дополнительно подтвердил ожидаемый размер ампликона, что позволило правильную сборку конструкции перед преобразованием в BL21(DE3) для экспрессии (рисунок 5B).
Рекомбинантное производство и очистка высококатионного антимикробного пептида Mel4
Хотя Mel4 был коммерчески получен компанией AusPep Peptide с минимальной чистотой 90%, он был синтезирован SPPS, а также применялся рекомбинантный подход для биологического производства Mel4. В конце протокола анализ Western blot белка Total Cell Protein (TCP) из лизированной клеточной гранулы подтвердил экспрессию рекомбинантного слиятельного белка HIS-KSI-Mel4. Образцы белка были разделены с помощью SDS-PAGE и визуализированы с использованием белковой лестницы в качестве эталонного показателя молекулярного веса. Была обнаружена отдельная полоса, соответствующая ожидаемой молекулярной массе фузионного белка HIS-KSI-Mel4, что подтверждает успешную экспрессию целевого белка в клетках хозяина (рисунок 5B).
Из белковой последовательности выбранного мотива был рассчитан теоретический состав аминокислот и сопоставлен с экспериментальными результатами анализа аминокислот, полученными с очищенного пептида HIS-KSI-TEV-Mel4 IB. Сравнение показало хорошую корреляцию между предсказанным и экспериментально определённым соотношением аминокислот, что подтвердило точность экспрессированной пептидной последовательности и её успешное выделение в доли включения тела (Таблица 2).
Аспарагин превращается в аспарагиновую кислоту, а глутамин — в глутаминовую кислоту. Метод анализа аминокислот нечувствителен к цистеину и триптофану, и они не анализируются этим методом. Это необходимо учитывать при анализе результатов.
Антибактериальная активность Mel4 и RK758
Минимальные ингибирующие концентрации (MIC) RK758, Mel4 и колистина были оценены по двум грамотрицательным бактериальным штаммам — K. pneumoniae JIE 2709 и E. coli NCTC 13846 (Таблица 3). RK758 демонстрировал MIC 16 мкг/мл (21 мкм) против K. pneumoniae и E. coli. Для сравнения, Mel4 показал MIC 62,5 мкг/мл (26,6 мкм) для K. pneumoniae и 125 мкг/мл (53,2 мкм ) для E. coli, что указывает на более низкую потенцию по сравнению с RK758. Колистин использовался в качестве компаративного антибиотика, показав самый низкий MIC — 1 мкг/мл (0,87 мкм) для K. pneumoniae, тогда как референсный штамм E. coli, резистентный к колистину, имел MIC 8 мкг/мл (6,9 мкм).
Цитотоксичный эффект Mel4 и RK758
Цитотоксический потенциал Mel4 и RK758 был оценён в клетках фибробластов L929 у мышей (ATCC CCL-1) с помощью MTT-анализа после 24-часового воздействия серийных концентраций. Оба соединения демонстрировали типичные сигмоидальные кривые дозы-ответ, проанализированные нелинейной регрессией с моделью «ингибитор против нормированного ответа — переменный наклон» в GraphPad Prism (версия 9.5.1), что подтверждает концентрационно-зависимое ингибирование жизнеспособности клетки. RK758 показал значение CC50 172,6 мкм, тогда как MEL4 показал немного более высокую цитотоксичную силу с CC50 147,5 мкм, что примерно в 1,17 раза выше цитотоксичности, чем RK758 (см. рисунок 6 и рисунок 7).
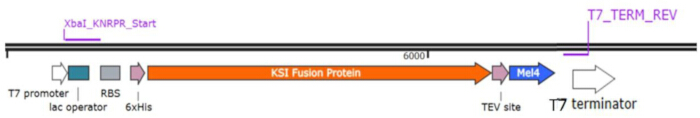
Рисунок 1: Схематическое представление экспрессионной кассеты p15TV-L-His-KSI-Mel4. Схематическая карта конструкции экспрессии p15TV-L, показывающая промотор T7, сайт связывания рибосомы (RBS), метку 6×His, партнёра по синтезу кетостероидной изомеразы (KSI), место расщепления протеазы TEV и последовательность пептидов Mel4, за которой следует транскрипционный терминатор T7. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
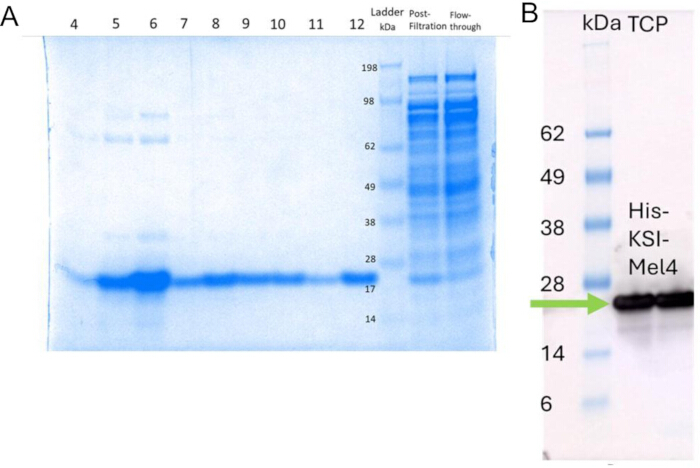
Рисунок 2: SDS-PAGE и вестерн-блот экспрессии рекомбинантных белков. (A) SDS-PAGE инклюзивных тел и целых клеточных белков после фильтрации и прохождения сырого клеточного лизата. (B) Западный блот белка целого клеточного белка. Зелёная стрелка указывает положение интересующего белка на ожидаемой молекулярной массе. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
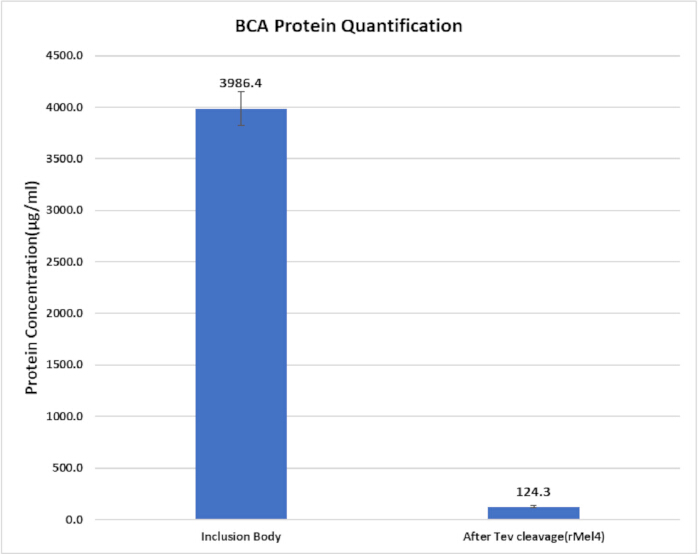
Рисунок 3: Количественная оценка рекомбинантного белка до и после расщепления TEV. Столбчатый график, показывающий концентрации белков, определяемые анализом BCA для изолированной инклюзивной фракции тела и расщеплённого рекомбинанта Mel4, полученного после обработки протеазой TEV. Полоски ошибок обозначают экспериментальные вариации между измерениями. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
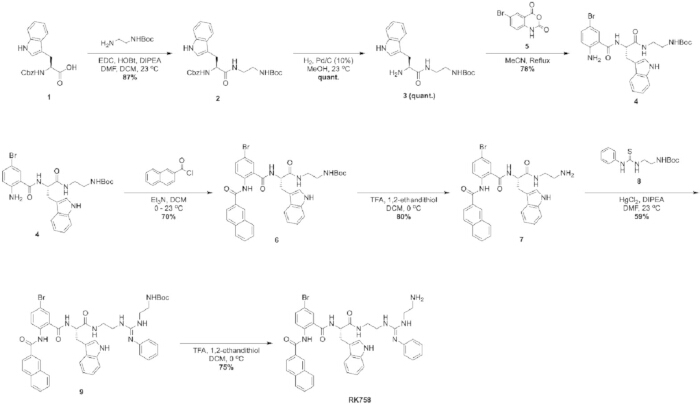
Рисунок 4: Общий синтетический подход к получению RK758. Схема реакции, описывающая семиступенчатый химический синтез RK758, начиная с Cbz-L-триптофана, включая промежуточное формирование, преобразования функциональных групп и окончательную депротекторию для получения пептидного имитатора. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
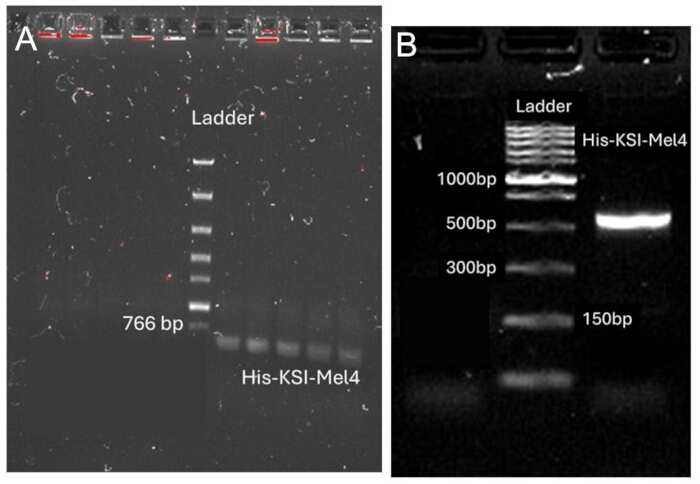
Рисунок 5: Агарозный гель электрофорез рекомбинантных плазмид. (A) Колония ПЦР трансформантов для His-Mel4 и His-KSI-Mel4. (B) ПЦР-подтверждение плазмид после минипреп. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
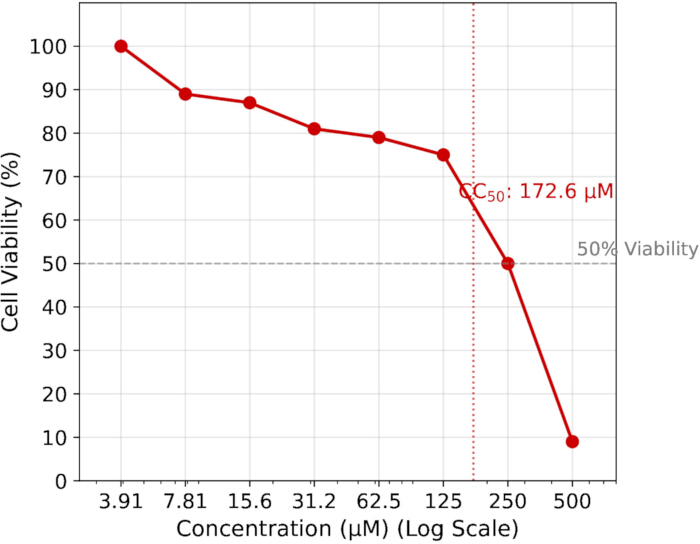
Рисунок 6. Цитотоксичность RK758 против клеток фибробластов L929. Кривая доза-ответ, показывающая влияние RK758 на жизнеспособность клеток при увеличении концентраций. Значения CC50 были рассчитаны нелинейной регрессией с использованием модели «ингибитор против нормированного ответа — переменный уклон» в GraphPad Prism, что подтверждало концентрационно-зависимое ингибирование жизнеспособности клетки. Данные представляют среднее ± SD трёх независимых биологических репликатов. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
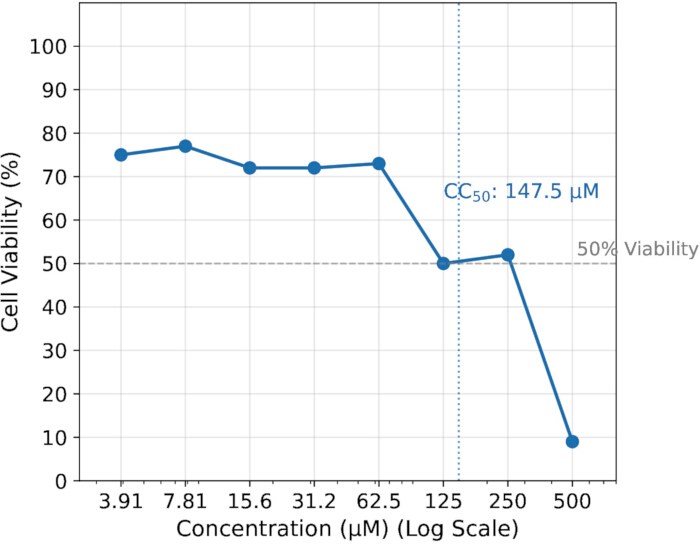
Рисунок 7: Цитотоксичность Mel4 против клеток L929. Кривая доза-ответ, показывающая концентрационно-зависящее влияние Mel4 на жизнеспособность клетки. Значения CC50 были рассчитаны нелинейной регрессией с использованием модели «ингибитор против нормированного ответа — переменный уклон» в GraphPad Prism, что подтверждало концентрационно-зависимое ингибирование жизнеспособности клетки. Данные представляют среднее ± SD трёх независимых биологических репликатов. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
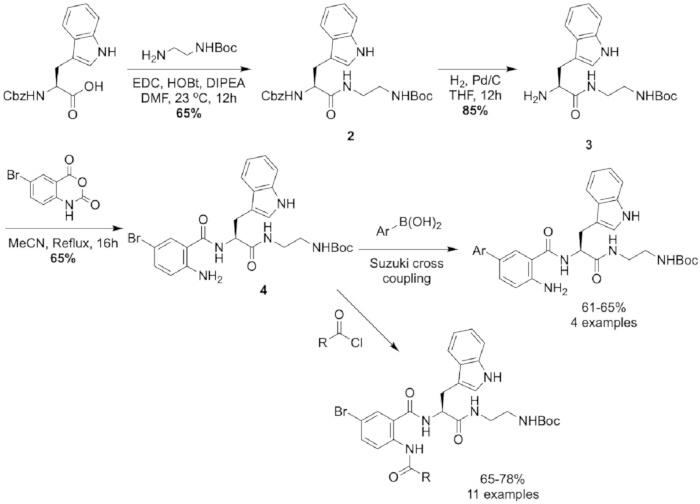
Рисунок 8: Модифицированная синтетическая стратегия, начиная с Cbz-L-триптофана. Альтернативный синтетический путь, иллюстрирующий получение анраниламидных промежуточных продуктов с использованием Cbz-L-триптофана и последующие этапы функционализации для обеспечения структурной диверсификации. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
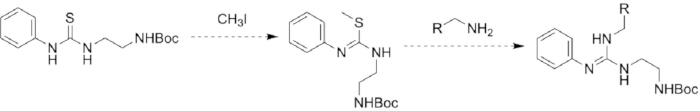
Рисунок 9: Алкилирование тиомочевины с последующим нуклеофильным замещением аминовым субстратом. Предложенный путь реакции, включающий алкилирование серы тиомочевины с последующим нуклеофильным замещением аминовым субстратом для получения продуктов, содержащих гуанидин. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
| Раздел | Название/Особенность | Последовательность | |||
| Праймеры | XbaI_KNRPR_Start | 5'-TAGGGGAATTGTGAGCGGATAACAATTCCCCCCTCTAGAAATAATT-3' | |||
| T7_TERM_REV | 5'-CCAAGGGGTTATGGCTAGTTATTGCTCA-3' | ||||
| Кассета Gene | Аминокислотная последовательность His-KSI-Mel4 | MDHHHHHHMIDETQRKATVLEYFERVNAKDLDGVVKLF ATDAVVADPVGAPPVAGEEALRAYFQRVLHEFDTHDVPGV PSGAQDGQSVALPLKATINNPQDPTGGVRLDVNLVSVFTIG EDGLISEMRAYWGLTDIAPAGASSGRENLYFQGKNKRKRRR RRRGGRRRR | |||
| ДНК-последовательность | 5'-TAACAATTCCCCCCTCTAGAAATTAATTTTGTTTAACTTTAAGAAGGA GATATACCATGGATCACCACCACCATCACCACATGATTGACGAGAC GCAACGTAAAGCGACGGTCTTAGAGTTTTTATTTTGAACGCGTGAATGCAA AAGACTTGGATGGCGTGGTGGTTAAACTCTTTGCCACGGACGCCGTGT AGCCGACCCTGTTGGGGCACCACCAGTGGCTGGTGAGGAGGCACTC CGTGCCTACTTCCAGCGCGTCTTGCATGAATTTGACACCCATGATGTCC CGGGCGTTCCATCTGGTGGTGCTCAGGATGGCCAATCAGTCACTCCCAC TTAAAGCAACCATCAACAATCCTCAAGATCCAACAGGGGGGGGGGCCCCCC TTGATGTGAACTTAGTGAGCGTATTATTCACGATTGGGGCGAAGACGGGTTAAT CTCCGAGATGCGTGGCGTACTGGGGGGGTTGGACTGATGATGCTCCCCCAGGT GCAAGCAGTGGGGTCCGAGAACTTGTACTTCCAAGGTAAGAACAAGCGTA AGAGACGCCGGCCCCCCCCCCCGGGGGGAGGGAGGAGAGGTCGCTAATCGAAC TCGAGATCCGGCT-3' | ||||
Таблица 1: Праймерные последовательности, используемые для ПЦР-верификации, и полная генная кассетная последовательность финальной конструкции плазмиды.
| Аминокислота | Рассчитано | Протестирован |
| Гистидин | 4.70% | 4.70% |
| Серин | 3.60% | 3.40% |
| Аргинин | 10.70% | 9.20% |
| Глицин | 9.50% | 11% |
| Аспарагиновая кислота | 11.30% | 11.50% |
| Глутаминовая кислота | 8.90% | 8.90% |
| Треонин | 4.70% | 4.60% |
| Аланин | 9.50% | 9.70% |
| Пролайн | 5.30% | 5.30% |
| Лизин | 4.10% | 4.50% |
| Тирозин | 2.40% | 2.20% |
| Метионин | 1.80% | 1.90% |
| Изолейцин | 3.00% | 3.20% |
| Лейцин | 7.10% | 7.40% |
| Фениаланин | 3.60% | 3.60% |
| Валин | 9.50% | 8.90% |
| Триптофан | 0.60% | - |
Таблица 2: Анализ состава аминокислот.
| Бактериальные штаммы | MIC мкг/мл (мкМ) | ||
| RK758 | Mel4 | Колистин | |
| K. pneumoniae JIE 2709 | 16 (21) | 62.5 (26.6) | 1 (0.87) |
| E. coli NCTC 13846 | 16 (21) | 125 (53.2) | 8 (6.9) |
Таблица 3: MIC RK758, Mel4 и колистина против грамотрицательных бактерий.
Обсуждение
Описанный здесь протокол предоставляет комплексную основу для производства и функциональной оценки катионного AMP Mel4 (который может быть изменён для использования с другими AMP) и пептидного имита RK758. Этот рабочий процесс сочетает многоступенчатый химический синтез или рекомбинантную экспрессию в E. coli с антимикробными и цитотоксичными анализами. Интеграция этих подходов предоставляет универсальную платформу для систематических исследований AMP, позволяя прямое сравнение химически синтезированных и биологически произведённых пептидов. Несколько этапов этого протокола особенно важны для успешного производства пептидов и оценки активности.
RK758 — это синтетический пептидный имитатор на основе антраниламидного каркаса. Во время фазы скрининга соединений для обнаружения новых имитаторов AMP сложно использовать скрининг in silico для планирования библиотеки соединений. Поэтому важно основывать эти имитации на каркасах, которые обеспечивают разнообразие библиотеки соединений. По этой причине был выбран эшафот из антраниламида. Дополнительным преимуществом каркасов на основе антраниламида является то, что метаболит RK758, 5-бромоантраниловая кислота, обладает антимикробными свойствами.
Предыдущие работы по оптимизации структуры и антибактериальной активности RK758 и его аналогов использовали различные синтетические процедуры. Оригинальное исследование оптимизации структуры изучало влияние различных катионных групп и заместителей на анраниловую фениловую группу. Таким образом, синтез начался с открытия кольца производных изатоического ангидрида с использованием L-триптофанового метилового эфира. Затем продукт можно было модифицировать, как показано Куппусами и др. 15. Последующее исследование изучало структуру и расположение гидрофобной группы. Последующее исследование показало, что каркас, замещённый Бромо, переносил различные гидрофобные группы в позиции нафтила, а промежуточный 4 был подвержен перекрёстному сцеплению Сузуки в позиции бромо, как показано на рисунке 8.
Текущая работа затрагивает некоторые проблемы предыдущих подходов. В подходе, показанном на рисунке 4, несмотря на синтез промежуточного 11, сообщающего об очистке с помощью тритурации с диэтиловым эфиром, попытки воспроизвести этот результат с тех пор привели к получению липящих нечистых смесей, требующих хроматографической очистки. Кроме того, промежуточный 6 также требовал хроматографической очистки с использованием этого подхода. В целом, оригинальная работа получила промежуточный выход 7 при 21% за шесть шагов из гидрохлорида L-триптофана метилэфира. Второй подход15, хотя и менее урожайный (14% от Cbz-L-триптофана), давал промежуточные продукты, которые было проще обработать за меньшее количество шагов.
В этом исследовании было установлено, что соединение Cbz-L-Trp с N-Boc-этилендиамином требует оптимизации, чтобы гарантировать, что в продукте не осталось остаточного DMF, как это было зафиксировано в начальных исследованиях по масштабированию этой реакции. Использование смешанной системы растворителя с соотношением DMF к DCM 3:8 (v/v) снизило количество DMF, что облегчило удаление во время обработки; Однако замена хлорированных растворителей может вызвать опасения по поводу воздействия на окружающую среду. Эта модификация также увеличила выход до 87%, что, вероятно, связано с побочным продуктом мочевины от EDC, осадившимся в смеси DCM, выступая движущей силой реакции. Гидрогенизация также была выявлена как узкое место, так как эти реакции обычно дают >90%. В этом исследовании было установлено, что замена метанола на THF даёт 3 в количественном выходе по сравнению с 85% в предыдущих работах и сокращает время реакции до 4 час. Это также можно объяснить использованием более чистого исходного материала, поскольку в первоначальном исследовании, вероятно, содержался остаточный ДМФ, который мог отравить катализатор палладия. В целом, по сравнению с предыдущими подходами, выход до промежуточного 7 улучшился до 48% за 5 шагов по сравнению с Cbz-L-Триптофаном. В более ранних экспериментах (обсуждаемых выше) общий выход составлял 21%, из которых 14% — для последующих реакций, тогда как в данном исследовании для соединения 7 был достигнут общий выход 48%, что демонстрирует разнообразие аналогов, которые можно синтезировать из соответствующим образом заменённых изатоических ангидридных производных.
Сильно деактивированный амин в антраниламиде 4 (см. рисунок 8) требует трёх эквивалентов кислотного хлорида для эффективной реакции. Когда используются только стехиометрические количества, происходит неполное преобразование 4 в 6, что усложняет очистку из-за схожих хроматографических и растворимых характеристик промежуточных препаратов 4 и 6. Авторы признают, что это ограничение строительных лесов и работают над разработкой новой методологии для снижения избыточного количества хлорида кислоты.
Предпоследняя реакция для присоединения тиомочевины 8 к амину 7 требует хлорида ртути (II), который крайне токсичен и чрезвычайно вреден для окружающей среды, что потенциально исключает этот метод для крупномасштабного синтеза. Этот подход был применён в текущей работе, поскольку ртутное (II) прикрепление тиомовин происходит при комнатной температуре. Альтернативный метод с использованием тиомочевины 8 включает алкилирование атома серы с последующим нуклеофильным замещением аминовым субстратом, как показано на рисунке 9. Такой тип реакции был описан, однако во многих случаях для него необходимы повышенные температуры и базовые условия, которые могут привести к образованию побочных продуктов ссубстратами 20,21. Альтернативно, используя аналогичный метилированный субстрат тиомочевины, фотокаталитический подход был описан Saetan и др.20. Они сообщают, что эта реакция происходит при окружающей температуре под облучением светом белого светодиода. Сообщалось, что эта реакция происходит с различными первичными и вторичными аминами, давая продукты более 80%. Для финальной реакции тритурация с диэтиловым эфиром, а затем сублимационная сушка даёт продукт, обычно не требующий дальнейшей очистки (>95% чистый на 1H ЯМР в MeOD-d4). Основной примесью является остаточный этанетиол с высокой температурой кипения 1,2, который легко обнаружить по характерному запаху, похожему на капусту. Рекомбинантная экспрессия Mel4 требует индукции при оптимальной оптической плотности (OD 600 0,5–0,6) и тщательного поддержания температуры индукции для максимизации формирования инклюзивного тела при сохранении жизнеспособностибактерий 22.
Антимикробные и цитотоксичные анализы также включают этапы, необходимые для получения точных, воспроизводимых результатов. Требуется точная подготовка инокуля и последовательное разбавление пептидов, поскольку небольшие вариации плотности бактерий или растворимости пептидов могут существенно изменить измеренные значения MIC иMBC 16. В анализах цитотоксичности MTT точный подсчёт клеток, равномерное распределение и полное растворение формазана имеют решающее значение для получения надёжных метаболическихпоказаний 23.
Несколько модификаций протокола могут решить общие проблемы. Пептиды с ограниченной растворимостью в воде могут растворяться в 0,01%уксусной кислоте 16 , а пептиды или мимики также могут растворяться вDMSO 24 или дополняться 0,1–0,2%BSA17 для предотвращения адсорбции пластических поверхностей при определении MIC. Тела рекомбинантного включения могут быть растворены и сворачиваться путем регулировки концентрации хлорида гуанидиния или мочевины, после чего проводится поэтапный диализ. Для МТТ-тестов мягкое встряхивание и полное растворение ДМСО могут снизить вариабельность показаний поглощения.
Значимость этого протокола заключается в интеграции взаимодополняющих стратегий производства и оценки, что даёт преимущества по сравнению со стандартными подходами с одним методом. Многие исследования сосредоточены на одном методе выработки пептидов или мимиков, но ни один подход не является идеальным для всех соединений; Выбор подходящего метода на основе свойств пептида обеспечивает оптимальный выход и функциональность. Например, химический синтез позволяет точно включать ненатуральные аминокислоты и пептидныеимитаторы 4, что может быть сложно в рекомбинантных системах. Напротив, рекомбинантная экспрессия обеспечивает экономически эффективное образование высококатионныхпептидов 25, которые могут агрегироваться в ходе химического синтеза. Объединяя оба метода со стандартизированными функциональными анализами, протокол позволяет тщательно характеризуть активность AMP и цитотоксичность, превосходя только стандартные анализыMIC.
По сравнению с традиционными самостоятельными методами, этот протокол широко применим в исследованиях и разработке терапевтических исследований антимикробных пептидов. Его можно адаптировать для изучения взаимосвязей между структурой и активностью, оптимизации потенции пептидов и оценки токсичности. Кроме того, методы могут поддерживать высокопроизводительный скрининг пептидных библиотек, изучение механизмов резистентности бактерий и оценку комбинированных терапий с традиционными антибиотиками. Помимо антибактериальных применений, этот рабочий процесс может применяться и к тестированию на противовирусные или противогрибковые пептиды, нанесении поверхностных покрытий для контроля инфекций и биомедицинских применений, таких как нарушение биопленки или иммуномодуляция.
В заключение, этот протокол обеспечивает универсальный и воспроизводимый рабочий процесс для производства, очистки и функциональной оценки AMP и пептидных имитаторов. Учитывая важные методологические аспекты, предлагая стратегии для устранения неполадок и предоставляя разнообразные приложения, она закладывает прочную основу для антимикробных и биомедицинских исследований.
Раскрытие информации
У авторов нет конфликта интересов, которые можно было бы заявлять.
Благодарности
Авторы выражают признательность Аналитическому центру Марка Уэйнрайта и Центру рекомбинантных продуктов (RPF) при Университете Нового Южного Уэльса. В частности, Центр биоаналитической масс-спектрометрии для анализа HRMS и ЯМР-центр для доступа к ЯМР-приборам.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| 1,2-этанедиол | Oakwood | M03555 | |
| 100X антибиотиков | Сигма Олдрич | A5955-20ML | |
| 1-Этил-3-(3-диметиламинопропил)карбодиимид гидрохлорид | Комби-блоки | SS-7536 | Далее называется EDC |
| 2-нафтоилхлорид | Комби-блоки | OR-0173 | |
| Уксусная кислота | Ajax Finechem | R18401O | |
| Ацетонитрил | VWR | 20060.35 | |
| Щелочная фосфатаза | New England Biolabs | M0525S | |
| Бычий сывороточный альбумин (BSA) | Сигма Олдрич | A1933 | |
| Катионно-скорректированный бульон Мюллера-Хинтона (CAMHB) | Бектон, Дикинсон и компания | 212322 | |
| Cbz-L-Trp | Комби-блоки | QB-6691 | |
| Colistin | Сигма Олдрич | C4461 | |
| Дей-Энгли (D/E) Нейтрализующий бульон | Оксоид | R453042 | |
| Диатомовая земля (Celite 545) | Сигма Олдрич | 102693 | Размер частиц 0,02–0,1 мм |
| Дихлорметан (DCM) | VWR | 23366.327 | |
| Диэтиловый эфир | Chem-Supply | EA036 | |
| Диметилсульфоксид (DMSO) | Chem-Supply Pty Ltd | LCS-CHEM-0098 | |
| Дитиотрейтол (DTT) | Thermo Scientific | J15397.03 | |
| Медиа культуры DMEM | Thermo Fisher Scientific | UCS-BIO-0058 | |
| Хозяин E. coli BL21(DE3) | Сигма Олдрич | 70235-М | |
| Электропоратор | Thermo Scientific | NEON1SK | |
| Этилацетат | Chem-Supply | EA011-2.5L-P | |
| Этилендиаминтетрауксусная кислота (ЭДТА) | Thermo Scientific | 118432500 | |
| Сыворотка для плода быка (FBS) | Сигма Олдрич | 12003C-500ML | |
| С тегом TEV Protease | Сигма Олдрич | T4455 | |
| Гидроксибензотриазол Гидрат | Chem-Implex | 24755 | |
| Имидазол | Thermo Scientific | 288-32-4 | |
| Изопропил и бета;-D-1-тиогалактопиранозид (IPTG) | Сигма Олдрич | I6758 | |
| Лурия-Бертани Бультон (LB), | Thermo Scientific | 12795027 | |
| Лизис Буфер | Thermo Scientific | 89822 | |
| Ртуть (II) хлорид | Сигма Олдрич | 215465 | |
| Метанол (ВЭЖХ Grage) | VWR | A452-4K | |
| Реагент MTT | Сигма Олдрич | M2128-100MG | |
| N,N-диизопропилэтиламин (DIPEA) | Сигма Олдрич | 3440 | |
| N,N-диметилформамид (ДМФ) | Chem-Supply | RP1051 | |
| NanoDrop | Thermo Scientific | ND-ONE | |
| N-Boc-этилендиамин | Комбинированные блоки | AM-1613 | |
| Колонка NTA Affinity Resin | Сигма Олдрич | 70666 | |
| Палладий на углероде | Сигма Олдрич | 205699 | 10% с Pd |
| Набор для очистки плазмид | QIAGEN | 27104 | |
| Полипропиленовые микротитровые трубки | SARSTEDT | 72.690.008 | |
| Силикагель для хроматографии с флэш-колонной | Силицикл | R12030B | Silica Gel 60, 230-400 mesh |
| Силикагель Тонкослойная хроматографическая пластина | Мерк | 1055540001 | Толщина слоя 0,2 мм на алюминиевой подложке с индикатором флуоресцентного напряжения 254 нм |
| Фосфат натрия, буферный солн 0,2 м | Thermo Scientific | J63816. AP | |
| Стерильная плоскодонная микротитровая пластина из полипропилена с 96 лунками и крышкой | Корнинг | 3599 | |
| Лигаза ДНК T4 | New England Biolabs | M0202S | |
| Триэтиламин (Et3N) | Chem-Supply | TR02151000 | |
| Трифторуксусная кислота (TFA) | Сигма Олдрич | T6508 | |
| Tris-HCL | Thermo Scientific | J62848. АК | |
| Triton X-100 | Thermo Scientific | A16046.AE | |
| Трипан-синий | MP BIOMEDICALS AUSTRALIA PTY LTD | ||
| Трипсин-ЭДТА (0,25%) | Сигма Олдрич | T4049-500ML | |
| Триптиказ соевый агар | Бектон, Дикинсон и компания | 211043 | |
| Мочевина | Thermo Scientific | 29700 | |
| Вектор (промотор T7) | - | Плазмида с высоким числом копий по выбору |
Ссылки
- Naghavi, M., et al. Global burden of bacterial antimicrobial resistance 1990–2021: a systematic analysis with forecasts to 2050. Lancet. 404 (10459), 1199-1226 (2024).
- Antimicrobial resistance. , World Health Organization. Available at: https://www.who.int/news-room/fact-sheets/detail/antimicrobial-resistance (2023).
- Puri, B., Vaishya, R., Vaish, A. Antimicrobial resistance: Current challenges and future directions. Med. J. Armed Forces India. 81 (3), 247-258 (2025).
- Zhang, T., Jin, Q., Ji, J. Antimicrobial peptides and their mimetics: promising candidates of next-generation therapeutic agents combating multidrug-resistant bacteria. Adv. Biol. 9 (4), 2400461(2025).
- Pasupuleti, M., Schmidtchen, A., Malmsten, M. Antimicrobial peptides: key components of the innate immune system. Crit. Rev. Biotechnol. 32 (2), 143-171 (2012).
- Oliveira Júnior, N. G., et al. Antimicrobial peptides: structure, functions and translational applications. Nat. Rev. Microbiol. , (2025).
- Keshri, A. K., et al. LL-37, the master antimicrobial peptide, its multifaceted role from combating infections to cancer immunity. Int. J. Antimicrob. Agents. 65 (1), 107398(2025).
- Alzain, M., et al. Antimicrobial peptides: mechanisms, applications, and therapeutic potential. Infect. Drug Resist. , 4385-4426 (2025).
- Kuppusamy, R., Willcox, M., Black, D. S., Kumar, N. Short cationic peptidomimetic antimicrobials. Antibiotics. 8 (2), (2019).
- Xu, J. Peptides chemistry, manufacturing, and controls. Peptide Science: Chemical Ligation, Lead Generation, and Therapeutic Advances. , 471-508 (2025).
- Wang, Q., et al. Expression and purification of antimicrobial peptide buforin IIb in Escherichia coli. Biotechnol. Lett. 33 (11), 2121-2126 (2011).
- Cai, Z., et al. Peptide synthesis: a review of classical and emerging methods. Biofabrication. 18 (1), 012001(2026).
- Gentilucci, L., De Marco, R., Cerisoli, L. Chemical modifications designed to improve peptide stability: incorporation of non-natural amino acids, pseudo-peptide bonds, and cyclization. Curr. Pharm pseudo-peptide. Des. 16 (28), 3185-3203 (2010).
- Kuppusamy, R., et al. Tuning the anthranilamide peptidomimetic design to selectively target planktonic bacteria and biofilm. Antibiotics. 12 (3), 585(2023).
- Kuppusamy, R., et al. Guanidine functionalized anthranilamides as effective antibacterials with biofilm disruption activity. Org. Biomol. Chem. 16 (32), 5871-5888 (2018).
- Wiegand, I., Hilpert, K., Hancock, R. E. Agar and broth dilution methods to determine the minimal inhibitory concentration (MIC) of antimicrobial substances. Nat. Protoc. 3 (2), 163-175 (2008).
- Ji, S., et al. Adsorption and morphology analysis of bovine serum albumin on a micropillar-enhanced quartz crystal microbalance. J. Phys. Chem. B. 128 (41), 10247-10257 (2024).
- Yasir, M., Dutta, D., Willcox, M. D. Activity of antimicrobial peptides and ciprofloxacin against Pseudomonas aeruginosa biofilms. Molecules. 25 (17), (2020).
- Methods for the determination of susceptibility of bacteria to antimicrobial agents. terminology. Clin. Microbiol. Infect. 4 (5), 291-296 (1998).
- Saetan, T., Sukwattanasinitt, M., Wacharasindhu, S. A mild photocatalytic synthesis of guanidine from thiourea under visible light. Org. Lett. 22 (20), 7864-7869 (2020).
- Woodring, J. L., et al. Disrupting the conserved salt bridge in the trimerization of influenza A nucleoprotein. J. Med. Chem. 63 (1), 205-215 (2019).
- Terpe, K. Overview of bacterial expression systems for heterologous protein production: from molecular and biochemical fundamentals to commercial systems. Appl. Microbiol. Biotechnol. 72 (2), 211-222 (2006).
- Berridge, M. V., Herst, P. M., Tan, A. S. Tetrazolium dyes as tools in cell biology: new insights into their cellular reduction. Biotechnol. Annu. Rev. 11, 127-152 (2005).
- Deni, W. H., Gao, T., Wu, J. Protocol for reconstituting peptides/peptidomimetics from DMSO to aqueous buffers for circular dichroism analyses. STAR Protoc. 5 (1), 102850(2024).
- Lou, M., et al. Microbial production systems and optimization strategies of antimicrobial peptides: a review. World J. Microbiol. Biotechnol. 41 (2), 66(2025).
- Hancock, R. E., Sahl, H. G. Antimicrobial and host-defense peptides as new anti-infective therapeutic strategies. Nat. Biotechnol. 24 (12), 1551-1557 (2006).
Перепечатки и разрешения
