В этом исследовании были выявлены общие гены, биологические пути, иммунные ассоциации и потенциальные терапевтические цели, лежащие в основе сахарного диабета 2 типа и атеросклеротических сердечно-сосудистых заболеваний посредством интегрированной биоинформатики и экспериментальной валидации.
Исследовательская статья
Общие молекулярные механизмы и кандидатные мишени препаратов при сахарном диабете 2 типа и атеросклеротических сердечно-сосудистых заболеваний
В этой статье
Краткое содержание
Аннотация
В этом исследовании изучались механизмы, лежащие в основе сопутствующей морбидизности между сахарным диабетом 2 типа (СД2) и атеросклеротическим сердечно-сосудистым заболеванием (ASCVD), при этом были выявлены потенциальные терапевтические цели. Распространённые дифференциально экспрессируемые гены (C-DEG) между Т2 СДМ и АСКВД были извлечены из наборов данных GSE78721 и GSE12288. Были проведены анализы обогащения путей генной онтологии (GO) и Киотской энциклопедии генов и геномов (KEGG), построения сетей взаимодействия белков и белков (PPI), идентификации генов в центрах и анализа базы данных взаимодействия лекарств и генов (DGIdb). Связь между C-DEG-центрами и иммуноинфильтрирующими клетками была проанализирована с помощью метода CIBERSORT. Уровни экспрессии C-DEG в центре были количественно оценены с помощью qRT-PCR и анализа западного блота. Всего было выявлено 32 C-DEG, из которых 20 генов с повышенной регуляцией и 12 пониженных генов. C-DEGs преимущественно обогащались ключевыми путями, включая вирусный миокардит, аритмогенную кардиомиопатию правого желудочка, гипертрофическую кардиомиопатию и дилатационную кардиомиопатию. Анализ PPI выявил 29 узлов и 39 ребер, что привело к идентификации восьми центральных C-DEG (HSP90B1, PLAU, SLPI, TOP3A, NCF4, PRF1, TUBA1C и CS) в обоих наборах данных. Кроме того, узловы C-DEG (TOP3A, SLPI, NCF4, PRF1 и PLAU) показали значимые корреляции с уровнями иммунинфильтрационных клеток. Препараты, специально нацеленные на эти центральные C-DEG, представляют собой перспективных кандидатов для лечения СД2 и ASCVD. Кроме того, экспрессия центральных C-DEGs на уровнях мРНК и белка была подтверждена у пациентов с СДМ 2 и ASCVD. Интегрированный биоинформатический анализ способствовал скринингу кандидатов на терапевтические мишени, механизмы и препараты для СД2 и ASCVD, предоставив новые знания о молекулярной терапии этих состояний.
Введение
Сахарный диабет (СД) — это хроническое заболевание со сложной этиологией, на которую влияют различные генетические и экологические факторы, которое в настоящее время затрагивает примерно 463 миллиона человек по всему миру, и ожидается, что к 2045 году их число достигнет 700миллионов. 1,2. Сахарный диабет 2 типа (СД2) — это многофакторное состояние, характеризующееся инсулинорезистентностью и относительным дефицитом инсулина, вызванным недостатком бета-клеток, приводящим к гипергликемии и дислипидемии, что составляет 90% случаев ДМ 3,4,5. Инсулинорезистентность является ключевым предшественником многочисленных сердечно-сосудистых метаболических нарушений, которые вместе способствуют развитию атеросклеротического сердечно-сосудистого заболевания (ASCVD) и могут влиять на его прогноз 6,7. Ишемическая болезнь сердца (ИБС) в основном возникает из-за прогрессирующего накопления атеросклеротического материала, что приводит к сужению света и обструкциикровотока 8. Атеросклероз вызывается множеством факторов, включая гиперхолестеринемию и диабет 9,10. Значительные человеческие и финансовые нагрузки, связанные с синдромом ДМ 2 и ХПП, а также трудности в их долгосрочном управлении подчёркивают острую необходимость эффективных профилактических стратегий.
Пациенты с ХАЗ и одновременном ЦД2 сталкиваются с заметно более высоким риском сердечных событий11. Сердечно-сосудистые заболевания (ССЗ) являются распространённым осложнением СД2 и являются ведущей причиной смертности среди пациентов с ЦД2, при этом примерно 32,2% страдают отССЗ-12. Подисследование LoDoCo2 подтверждает, что сопутствующий ТД2 ДМ коррелирует с повышенным риском крупных неблагоприятных сердечно-сосудистых событий в популяциях с хроническойИБС 13. У пациентов с ЦД2 повышенный риск развитияASCVD 14,15, а у людей с хроническим ИБЗ и диабетом риск последующих сердечно-сосудистых событий16 — значительно выше, что подчёркивает критическую неудовлетворённую потребность в инновационных методах лечения.
Всё больше исследовательских групп проводят скрининг на новые дифференциально экспрессированные гены (DEG) при ДД2 и ASCVD посредством комплексного анализа транскриптомных данных из различных баз данных. Усилия направлены на прояснение связи между этими заболеваниями и выявление эффективных биологических функций. Недавние биоинформатические исследования изучали ЦД2 в связи с другими состояниями; например, Сонг и др. выявили общие DEGs между СД2 иостеоартритом 17, Кастильо-Веласкес и др. предсказали связь между болезнью Альцгеймера иДМ-18, а важные гены и пути при синдроме СД2 и синдроме поликистозных яичников были выявлены с помощью биоинформатическогоанализа 19. Тем не менее, молекулярные механизмы, связывающие Т2 СДМ и АСДВ, остаются плохо изученными, что подчёркивает важность выявления новых потенциальных терапевтических целей для лечения прогрессирования обоих состояний.
Данное исследование направлено на систематическое выявление общих молекулярных путей и потенциальных терапевтических целей между СДМ 2 и ASCVD путём проведения интегрированного биоинформатического анализа транскриптомических данных из наборов данных GSE78721 (T2DM) и GSE12288 (ASCVD). Эти наборы данных были выбраны для предоставления сопоставленных образцов пациентов и контрольных для каждого заболевания, используя сопоставимые микрочиповые платформы для проведения надёжного сравнительного анализа. Текущий подход включал выявление распространённых DEGs (C-DEG), проведение анализа функционального обогащения и взаимодействия белков, оценку ассоциаций с иммунной инфильтрацией и прогнозирование взаимодействующих лекарств. Кроме того, была проведена предварительная экспериментальная валидация. Эта работа предоставляет новые инсайты и кандидатские цели для понимания сопутствующей морбидизности ДД2 и ASCVD.
Протокол
Этот протокол исследования был рассмотрен и утверждён Институциональным обзорным советом Медицинского университета Нинся по этике (Внутренний референтный номер: этика [2023]-YCSKT-002) и соответствовал принципам, изложенным в Хельсинкской декларации. Письменное согласие всех пациентов, участвовавших в исследовании, было получено до их участия.
Источники данных о экспрессии для T2DM и ASCVD
Данные экспрессии генов для T2 DM и ASCVD были получены из наборов данных GSE78721 и GSE12288 соответственно, полученных из базы данных GEO. Оба набора данных использовали микрочиповые данные с платформ [PrimeView] Affymetrix Human Gene Expression Array и [HG-U133A] Affymetrix Human Genome U133A. Набор данных GSE78721 включал данные о экспрессии у 68 пациентов с СД 2 и 62 нормальных образцов (подробности в дополнительной таблице 1), а GSE12288 набора включал данные экспрессии из 110 образцов ASCVD и 112 нормальных контрольных групп (подробности в Дополнительной таблице 2). Генные зонды были преобразованы в соответствующие генные символы на основе информации аннотации платформы.
Идентификация дифференциально экспрессированных генов при СД2 и АССВД
После загрузки данных из базы данных GEO исходные матрицы экспрессии для T2DM и ASCVD были исправлены и нормализованы с помощью программного пакета «limma» для идентификации DEG. Для скрининга ДЕГ применялся порог P < 0,05. Результаты дифференциальных выражений визуализировались с помощью R-пакетов 'heatmap' и 'ggplot2' для создания тепловой карты и диаграммы вулкана соответственно. C-DEGs между T2DM и ASCVD были идентифицированы с помощью диаграммы Венна.
Функциональный анализ обогащения путей Генной онтологии (GO) и Киотской энциклопедии генов и геномов (KEGG) в рамках C-DEGs
Биологические функции и пути были определены с помощью анализа обогащения путей GO и KEGG. Организация R Package Org. Hs.eg.db использовался для преобразования названий C-DEG в идентификаторы генов, а анализ обогащения GO проводился с использованием R-пакетов clusterProfiler, enrichplot, ggplot2 и GOplot для изучения распространённых биологических функций C-DEG. Впоследствии был проведён анализ KEGG для выявления общих значимых путей, участвующих в молекулярных механизмах, лежащих в основе сопутствующей формы ДД2 и ASCVD. Результаты обогащения GO и KEGG были представлены в гистограммах, иллюстрирующих количество генов, функциональные описания и значения P , при этом статистическая значимость была определена как P < 0,05.
Анализ сетей взаимодействия белков и белков (PPI) C-DEGs
В этом исследовании C-DEG и хабовые гены были определены как общие гены. Для оценки функциональных ассоциаций между этими общими генами была построена сеть PPI с использованием базы данных STRING (https://string-db.org). Анализ начинался с выбора «Multiple proteins» в функции «SEARCH» и ввода названий C-DEG при указании вида как «Homo sapiens». Базовые параметры для C-DEG были настроены для отображения регулирующей сети PPI. Визуализация сети PPI проводилась с помощью программного обеспечения Cytoscape (версия 3.9.1) (https://apps.cytoscape.org/), предоставляющего графическое представление взаимодействий между C-DEG. Хабы C-DEGs были выявлены в сети PPI с помощью плагина CytoHubba в Cytoscape на основе алгоритма ранжирования степени.
Анализ инфильтрации иммунных клеток
Для изучения различий в инфильтрации иммунных клеток между группой с СД2 и нормальной контрольной группой был использован метод CIBERSORT для оценки численности различных типов клеток, инфильтрирующих иммунно. Алгоритм теста Уилкоксона был впоследствии применён для сравнения пропорций этих инфильтрирующих иммунных клеток между образцами СД2 и контрольными образцами, что облегчило оценку наблюдаемых различий. Визуализация данных осуществлялась с помощью скрипичных графиков. Для проверки корреляции между C-DEGs и иммунноинфильтрирующими клетками для расчёта коэффициентов корреляции Спирмана использовались R-пакеты, такие как limma, scales, tidyverse и ggplot2. На этом этапе была количественно определена связь между экспрессией C-DEG и уровнем инфильтрации иммунных клеток, результаты которого отображались в виде тепловых карт. P-значение менее 0,05 считалось статистически значимым.
Анализ взаимодействия узловых C-DEGs с потенциально таргетными препаратами
База данных взаимодействия лекарств и генов (DGIdb) предоставляет комплексный каталог взаимодействий лекарств-генов и генетических профилей одобренных и потенциальных терапевтических агентов. В этом исследовании список центральных C-DEG был введён в базу данных для получения информации о взаимодействии между C-DEG и их потенциальными таргетными препаратами, что затем визуализировалось с помощью программного обеспечения Cytoscape.
Экспериментальная валидация основных генов клиническими образцами
Для экспериментальной валидации основных генов были собраны образцы периферической крови у клинических испытуемых. В когорту были экспериментальные группы и контрольная группа. Экспериментальная группа состояла из 15 пациентов с диагнозом как СД2, так и ASCVD, что является сопутствующим заболеванием. В контрольную группу входили 10 здоровых добровольцев с возрастом и полом, не имевших истории диабета, сердечно-сосудистых заболеваний или других серьёзных системных заболеваний. Все пациенты в экспериментальной группе были окончательно диагностированы с соблюдением установленных клинических рекомендаций по ЦД2 и АСТВД.
Количественная полимеразная цепная реакция в реальном времени (qRT-PCR)
Общая РНК была выделена с помощью реагента TRIzol, а кДНК первой цепи синтезировала с помощью комплекта системы обратной транскрипции. Затем кДНК разбавялась для qRT-PCR с помощью SYBR-зелёного PCR Master Mix, при этом GAPDH служила внутренним контролем. Относительные изменения в выражении складок рассчитывались с помощью метода 2−ΔΔCt . Праймеры, использовавшиеся для анализа, были следующими: TUBA1C-вперед: 5′-GACCTCGTGTTGGACCGAAT-3′ и обратно: 5′-CGAGGTGAACCCAGAACCAG-3′; NCF4-вперед: 5′-CTAAGTTTCAAAGCTGGAGGTG-3′ и назад: 5′-GAATTCCTGAAAGGGCTCCTG-3′; PRF1-вперед: 5′-CCCAGTGGACACAAAGGTT-3′ и назад: 5′-TCGTTGCGGATGCTACGAG-3′; SLPI-вперед: 5′-CCCTTCCTGGTGCTGCT-3′ и обратно: 5′-CCTCCTTGTTGGTTGG-3′; HSP90B1-вперед: 5′-CCGAAGAAGAACCTGAAGAG-3′ и назад: 5′-CATCTGTTCCCACATCCATT-3′; ПЛАУ-вперед: 5′-GGGGAGATGAAGTTTGAGGTG-3′ и назад: 5′-GCAATGTCGTTGTGGTGAGC-3′; GAPDH-вперёд: 5′-CAGGGCTGCTTTTAACTCTGG-3′ и обратно: 5′-GGGTGGAATCATATTGGAACA-3′.
Вестерн-блот анализ
Общий белок был выделен, разведён в буфере загрузки и выделен 10% SDS-PAGE, после чего переносился на мембраны PVDF. Мембраны были заблокирован и исследованы специфическими первичными антителами, включая анти-TUBA1C (1:1000, ab222849), анти-HSP90B1 (1:1000, ab238126), анти-NCF4 (1:1000, 14648-1-AP), анти-PRF1 (1:1000, ab256453), анти-SLPI (1:1000, ab46763), анти-PLAU (1:1000, 17968-1-AP) и анти-GAPDH (1:5000, 10494-1-AP). Были применены вторичные антитела, конъюгированные с пероксидазой хрена (HRP) (1:2000, ab6721), а полоски визуализированы с использованием усиленного хемилюминесцентного (ECL) субстрата.
Статистический анализ
Статистический анализ проводился с помощью программного обеспечения GraphPad Prism, при этом данные были представлены как среднее ± SD. Различия между группами оценивались с помощью t-теста Студента, и P-значение менее 0,05 считалось статистически значимым.
Результаты
Идентификация DEG
В этом исследовании были использованы два набора данных, GSE78721 и GSE12288, для биоинформатического анализа. В GSE78721 году было выявлено в общей сложности 2 266 DEG между пациентами с ЦД2 и нормальными образцами, включая 1 209 повышенных и 1 057 пониженных генов (рисунок 1A). В GSE12288 году между пациентами с ASCVD и контрольными группами было подтверждено 924 DEG, включая 403 гена, которые были переэкспрессированы, и 521 — с понижением регуляции (рисунок 1C). Топ-50 DEG, выявленных в обоих наборах данных, представлены на тепловых картах, показанных на рисунке 1B,D. Путём пересечения этих двух наборов данных было выявлено 32 C-DEG, включающих 20 повышенных и 12 пониженных генов (рисунок 2A,B).
Обогащение GO и KEGG C-DEGs
Для разъяснения биологических функций и ключевых путей, связанных с 32 C-DEG, были проведены анализы GO и KEGG. Десять топ-терминов, связанных с биологическим процессом (BP), клеточным компонентом (CC) и молекулярной функцией (MF) среди C-DEG, представлены на рисунке 3A. Функции BP в основном включают регуляцию активации плазминогенов, регуляцию фибринолиза, положительную регуляцию дифференцировки кардиоцитов, отрицательную регуляцию связывания белками и дифференциацию кардиобластов. Функции CC относятся к комплексу эндопептидазы серинового типа, белковым комплексам, участвующим в адгезии клеточного матрикса, конденсированной хромосоме, специфической гранулированной мембране и телу PML. MF включает структурные компоненты цитоскелета, активность активаторов оксидазы NADPH, генерирующую супероксид, активность внутримолекулярной трансферазы (фосфотрансфераз), активность экзопептидазы серинового типа и связывание IgG (рисунок 3A). С точки зрения анализа KEGG, C-DEGs в первую очередь участвуют в критических путях, включая вирусный миокардит, аритмогенную кардиомиопатию правого желудочка, каскады комплемента и коагуляции, рак простаты, гипертрофическую кардиомиопатию, дилатационную кардиомиопатию, апоптоз, фагосому и обработку белков в эндоплазматическом ретикуле (см. рисунок 3B).
Строительство сетей ИПП и скрининг генов в центрах
Из 32 C-DEG три гена не имели известных взаимодействий с другими C-DEG в базе данных STRING и поэтому были исключены из построения сети PPI. Платформа STRING была использована для анализа PPI оставшихся 29 C-DEG, выяв сеть, состоящую из 29 узлов и 39 рёбер, что было визуализировано с помощью Cytoscape (рисунок 4A). Впоследствии были идентифицированы восемь C-DEG хабов (HSP90B1, PLAU, SLPI, TOP3A, NCF4, PRF1, TUBA1C и CS) на основе степени их связности (рисунок 4B).
Различия в инфильтрации иммунных клеток и их корреляция с C-DEGs хаба
Этот анализ был сосредоточен исключительно на наборе данных по Т2 ДМ (GSE78721) для предварительного изучения изменений в иммунной микросреде в контексте Т2ДМ и их связи с генами хаба. Графики скрипки использовались для визуализации связи между набором данных по СД 2 и уровнями инфильтрации 22 типов иммунных клеток (рисунок 5A; подробности в дополнительной таблице 3). Анализ инфильтрации иммунных клеток показал более высокую долю активированных дендритных клеток в группе с Т2СД по сравнению с контрольной группой (P = 0,049), тогда как доля дендритных клеток в покое была значительно ниже в группе с Т2СД (P = 0,023). Кроме того, связь между уровнями экспрессии восьми вузовых C-DEG и уровнями инфильтрации 22 различных типов иммунных клеток была визуализирована с помощью тепловой карты (рисунок 5B). Примечательно, что экспрессия TOP3A показала сильную положительную корреляцию с уровнем инфильтрации регуляторных Т-клеток (Tregs) (P < 0,001), тогда как экспрессия SLPI была сильно положительно коррелирована с инфильтрацией гамма-дельта Т-клеток (P < 0,001). В то же время экспрессия NCF4 показала сильную отрицательную корреляцию с уровнем инфильтрации активированных NK-клеток (P < 0,001), экспрессия PRF1 была сильно отрицательно коррелирована с уровнем инфильтрации макрофагов M2 (P < 0,001), а экспрессия PLAU была сильно негативно связана с уровнем инфильтрации наивных В-клеток (P < 0,001).
Кандидатская сеть для целевых препаратов для центральных C-DEG
Из восьми выявленных C-DEGs в центре, CS и TOP3A не были указаны в базе данных DGIdb как известные мишени для лекарств и, следовательно, исключены из последующего анализа сети кандидатов по лекарству. Для выявления лекарств с потенциальной терапевтической ролью при ЦД2 и ASCVD оставшиеся шесть центральных C-DEGs были отправлены в базу данных DGIdb (подробности в дополнительной таблице 4). Впоследствии Cytoscape был использован для создания кандидатной сети для лекарственных целей, иллюстрирующей связь между центральными C-DEGs и кандидатными таргетными препаратами (рисунок 6). Эта сеть включала шесть центральных C-DEG, 136 молекулярных препаратов и 137 ребер. В частности, были выявлены 82, 5, 3, 4, 1 и 42 кандидатных таргетных препаратов для TUBA1C, NCF4, PRF1, SLPI, HSP90B1 и PLAU соответственно, при этом большинство из них классифицированы как противоопухлиные, противовоспалительные и антитромботические препараты.
Валидация экспрессии C-DEGs в хабе
Из-за отсутствия CS и TOP3A в качестве кандидатных мишеней в базе данных DGIdb и менее напрямую связанных с терапевтическими стратегиями в контексте исследований СДМ 2 и ASCVD, исследование сосредоточилось на оставшихся шести центральных C-DEG (HSP90B1, PLAU, SLPI, NCF4, PRF1 и TUBA1C) для экспериментальной валидации. Для дальнейшего изучения роли этих центральных C-DEG были проведены qRT-PCR и western blot анализы для оценки уровней экспрессии основных генов в различных группах (см. рисунок 7 и рисунок 8). Уровни экспрессии TUBA1C, NCF4, SLPI, HSP90B1 и PLAU были значительно повышены у пациентов с ЦД2 и ASCVD по сравнению с соответствующими здоровыми контрольными группами, тогда как экспрессия PRF1 была снижена. Эти данные свидетельствуют о том, что эти основные гены могут играть значительную роль в прогрессировании пациентов с ТД2 и АСДВД.
ДОСТУПНОСТЬ ДАННЫХ:Наборы данных экспрессии генов, GSE78721 и GSE12288 использованных для биоинформатического анализа в данном исследовании, доступны из публичной базы данных NCBI GEO. Исходные данные из части экспериментальной валидации, полученные в этом исследовании, приведены в Дополнительном файле 1.
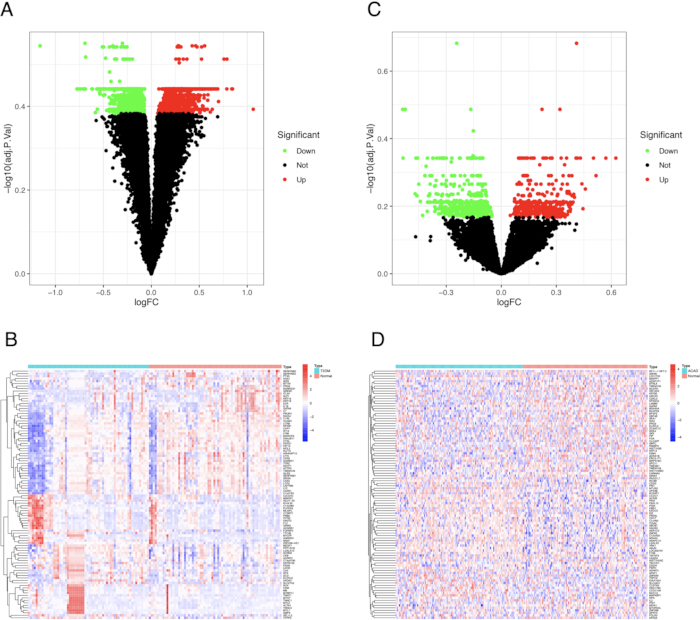
Рисунок 1: Идентификация DEG в наборах данных GSE78721 и GSE12288. (A,C) Вулканические графики DEGs в GSE78721 и GSE12288 соответственно. |logFC|≥ 0,5 и P < 0,05 были установлены в качестве порога скрининга; Повышенные гены были отмечены красным, а пониженные — зелёными. (B,D) Тепловые карты топ-50 DEG в GSE78721 и GSE12288 годах соответственно. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
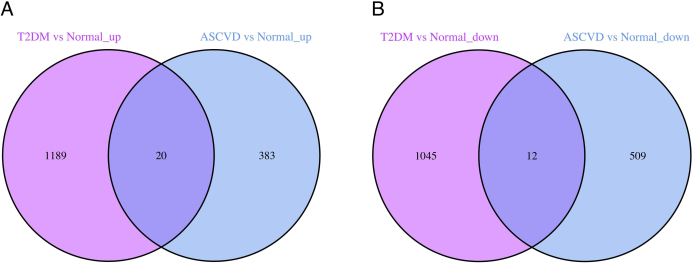
Рисунок 2: Диаграмма Венна C-DEG из двух наборов данных. (A) Диаграмма Венна повышенных C-DEGs из T2DM и ASCVD в GSE78721 и GSE12288 наборах данных. (B) Диаграмма Венна пониженных C-DEG из T2DM и ASCVD в GSE78721 и GSE12288 наборах данных. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
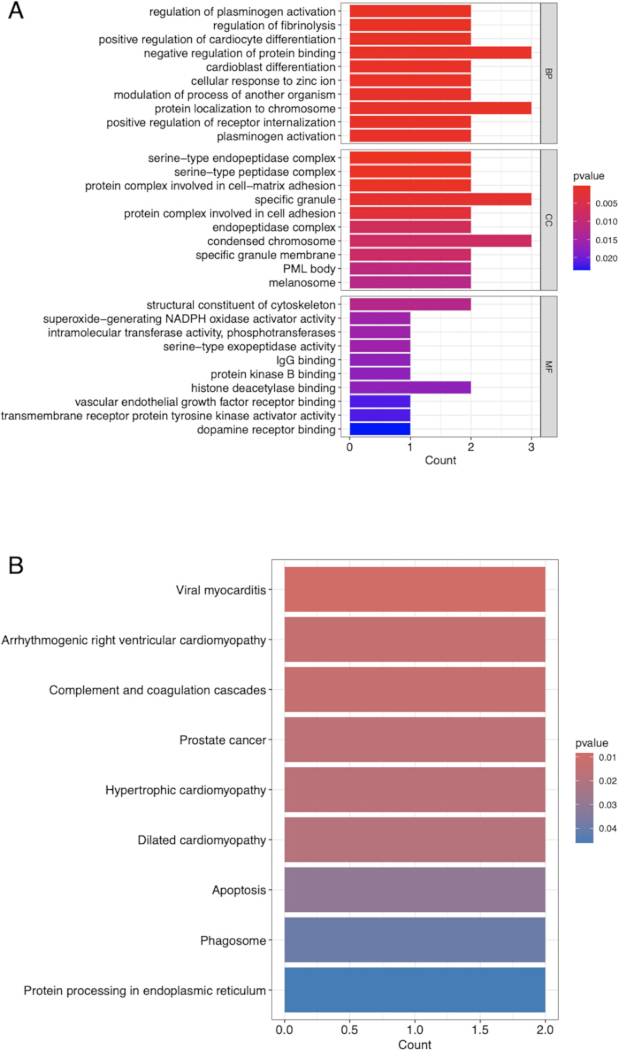
Рисунок 3: Функциональный и патологический анализ обогащения C-DEG. Столбчатые диаграммы анализа обогащения GO (A) и KEGG (B). Вертикальные координаты указывают на описание различных элементов GO или путей KEGG, а горизонтальные координаты — количество обогащённых C-DEG. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
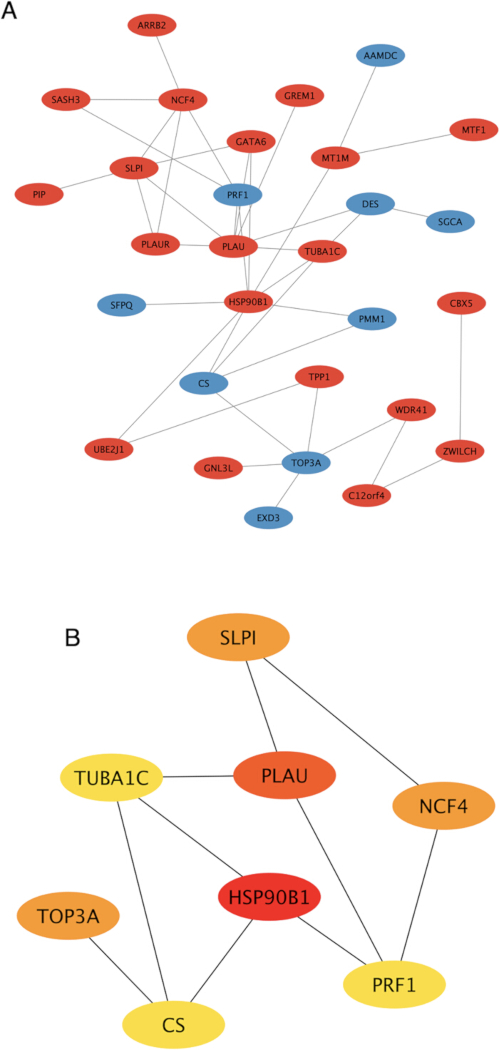
Рисунок 4: Скрининг генов сети PPI и хаба C-DEGs. (A) Сеть PPI C-DEG. Красный и синий обозначают соответственно повышенные и пониженные C-DEG. (B) Среди C-DEG было выявлено восемь генов хаба. Узлы представляют C-DEG, а рёбра — взаимодействие между C-DEG. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
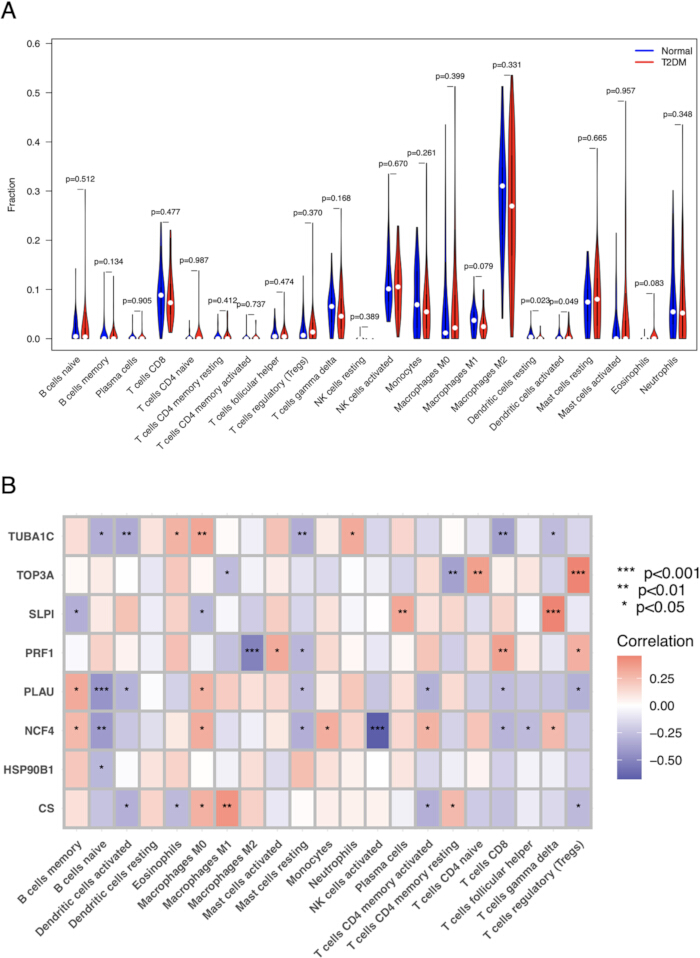
Рисунок 5: Анализ инфильтрации иммунных клеток. (A) Различия в инфильтрации 22 типов иммунных клеток между группой с СД 2 и контрольной группой. Горизонтальная ось: подтипы иммунных клеток; Вертикальная ось: относительный уровень инфильтрации иммунных клеток. (B) Тепловая карта корреляции экспрессии 8 хабовых C-DEGs и уровней инфильтрации 22 типов иммунных клеток. Красные квадраты: положительная корреляция; Синие квадраты: отрицательная корреляция. Более тёмные цвета указывают на более сильную корреляцию. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
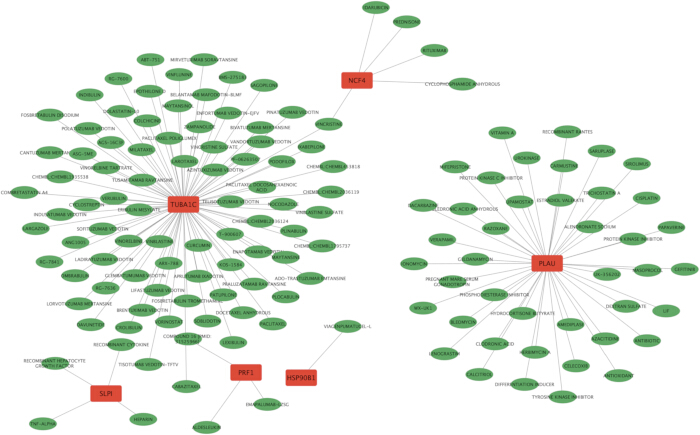
Рисунок 6: Кандидатная сеть для медикаментозного мишени для шести узлов C-DEG. Красные узлы обозначают C-DEG хаба, зелёные — кандидаты на таргетные препараты, а рёбра между ними — пары взаимодействия. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
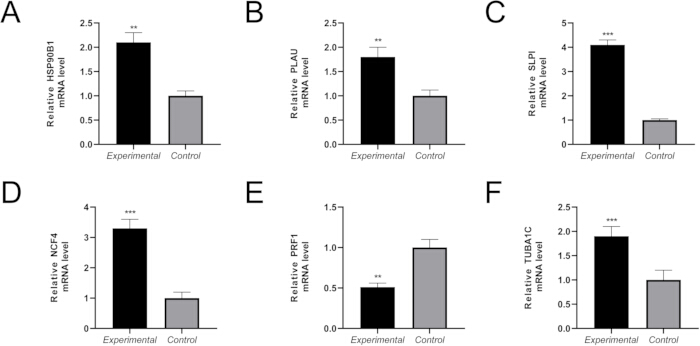
Рисунок 7: Валидация экспрессии основных генов у пациентов с ЦД2 и ASCVD методом qRT-PCR. Уровни экспрессии мРНК HSP90B1 (A), PLAU (B), SLPI (C), NCF4 (D), PRF1 (E) и TUBA1C (F) были обнаружены с помощью qRT-PCR. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
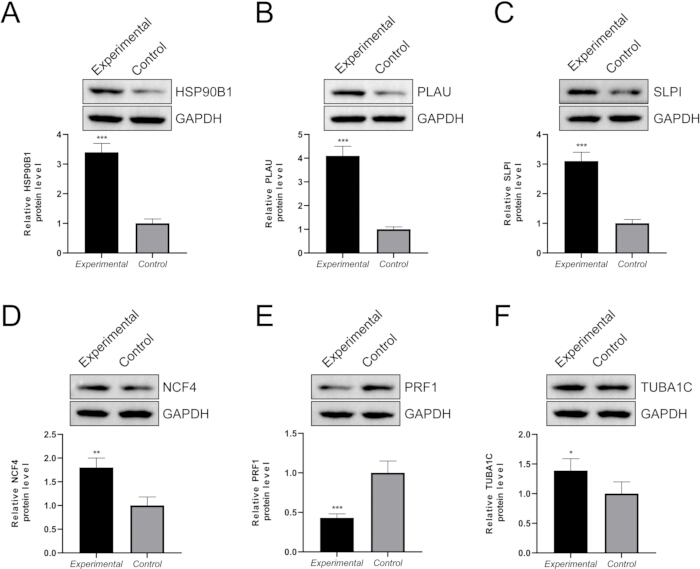
Рисунок 8: Валидация экспрессии основных генов у пациентов с ЦД2 и ASCVD методом Western blot. Уровни экспрессии белков HSP90B1 (A), PLAU (B), SLPI (C), NCF4 (D), PRF1 (E) и TUBA1C (F) были обнаружены с помощью вестерн-блот-тестов. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
Дополнительная таблица 1. Матрица экспрессии генов для GSE78721 набора данных, использованная для транскриптомического анализа T2DM в этом исследовании. Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительная таблица 2. Матрица экспрессии генов для GSE12288 набора данных, использованной для транскриптомного анализа ASCVD в этом исследовании. Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительная таблица 3: Анализ инфильтрации иммунных клеток в наборе данных GSE78721. Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительная таблица 4: Кандидатные взаимодействия лекарств-мишень для хабовых общих дифференциально экспрессируемых генов. Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительный файл 1: Исходные данные из части экспериментальной валидации, полученные в этом исследовании. Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Обсуждение
ТД2 и ASCVD — сложные заболевания, и новые данные указывают на значительную связь между ними. Инсулинорезистентность служит ключевым предшественником различных сердечно-сосудистых метаболических нарушений, включая ДД2, которые вместе способствуют развитию ASCVD и могут влиять на его прогноз 6,7. Кроме того, ведущий является движущей силой в прогрессировании атеросклероза20. У пациентов с ЦД2 повышается рискХКЗ-21, однако остаются вопросы относительно основных механизмов сопутствующей болезни. Цель исследования — изучить взаимосвязь и механизмы, связывающие эти два заболевания, а также выявить потенциальные биомаркеры с помощью биоинформатического анализа и экспериментальной валидации.
В этом исследовании было выявлено в общей сложности 32 C-DEG между СД2 и ASCVD, включающих 20 генов с повышенной регулированностью и 12 пониженных генов. Анализы обогащения GO и KEGG показали, что эти C-DEGs преимущественно обогащены критически важным метаболическими путями, тесно связанными как с CAD, так и с T2DM22,23. Восемь хабовых C-DEG (HSP90B1, PLAU, SLPI, TOP3A, NCF4, PRF1, TUBA1C и CS) были отсеяны в двух условиях. В частности, C-DEGs в центре (TOP3A, SLPI, NCF4, PRF1 и PLAU) были значительно связаны с уровнем инфильтрации иммунных клеток. HSP90B1 был связан с прогрессированиемрака 24 и может быть связан сСД25. Показано, что PLAU играет роль в предотвращении преждевременного сосудистого старения, связанного сСД26, и играет ключевую роль в прогрессировании атеросклеротической бляшки, предоставляя данные для биомаркеров раннего предупреждения и проясняя механизмы, лежащие в основе прогрессированияИБЗ 27. Экспрессия SLPI увеличивается с прогрессирующей метаболическойдисфункцией 28 и идентифицирована как C-DEG, связанная с нарушенной толерантностью к глюкозе иДД29. NCF4 установил связи сCAD 30 и способствует регуляции активности оксидазы NADPH и активации инфламмасом31. Благодаря ключевой роли PRF1 в иммунном мониторинге и регуляции32, он обладает диагностическим потенциалом, различая инфаркт миокарда и стабильныйCAD 33. Кроме того, PRF1 выступает в роли ключевого игрока иммунного регулятора при инсулинорезистентности, связанной сожирением 34. TUBA1C также ассоциируется с раковыми заболеваниями и связан с иммунной инфильтрацией в микроокружениеопухолей 35. Он был идентифицирован как ген восприимчивости к ишемической болезнисердца 36. Однако связь между ASCVD и T2DM остаётся недостаточно изученной.
Анализ KEGG выявил участие этих кандидатных генов в таких путях, как «Каскады комплемента и коагуляции» и «Обработка белка в эндоплазматическом ретикулуме». Экспериментальная валидация ключевых генов в этих путях, а именно PLAU (сериновая протеаза, участвующая в фибринолизе и свертывании) и HSP90B1 (эндоплазматический ретикулярный шаперон), подтвердила их дисрегуляцию в нашей модели T2 DM. Эти результаты помещают наши исследования в определённую молекулярную структуру, предполагая, что дисбалансы в стрессовом ответе эндоплазматического ретикулума и тромболитических путях могут быть неотъемлемой частью диабетической патологии, выходя за рамки широко признанных воспалительных процессов.
Обширные исследования задокументировали дисфункциональные иммунные ответы удиабетических пациентов 37. Аномальная активация иммунных клеток играет ключевую роль в прогрессировании СД2 38,39. Анализ иммунной инфильтрации выявил значительное изменение в дендритном клеточном компартменте при СД2, характеризующееся увеличением доли активированных дендритных клеток и уменьшением доли покоящих дендритных клеток (рисунок 5A). Это указывает на состояние повышенной презентации антигена и иммунной активации при ЦД2, что потенциально способствует хроническому воспалительному повреждению целевых тканей. Кроме того, сильные корреляции между специфическими генами-хабом (например, NCF4 с активированными NK-клетками, PRF1 с M2-макрофагами) (рисунок 5B) свидетельствуют о механистических связях между экспрессией генов в метаболических тканях и составом местной иммунной микросреды, тем самым выявляя новые цели для иммуномодуляторных вмешательств.
Кроме того, был проведен анализ сети лекарственно-таргетных препаратов для прогнозирования потенциальных терапевтических мишеней, основных механизмов и лекарств для лечения ЦД2 и ASCVD. Эта кандидатная сеть на таргет для лекарств включала шесть вузлов C-DEG, 136 молекулярных препаратов и 137 краёв. Анализ выявил 82, 5, 3, 4, 1 и 42 кандидатных таргетных препарата для TUBA1C, NCF4, PRF1, SLPI, HSP90B1 и PLAU соответственно. Большинство этих препаратов классифицируются как противоопухольные, противовоспалительные и антитромботические средства. В частности, некоторые препараты, включая ритуксимаб, преднизолон, антиоксиданты, верапамил, антибиотики, колхицин и гепарин, продемонстрировали терапевтические свойства как приСД2 15, 40, 41, 42, 43, 44, 45, 46 и приКЗ 15, 47, 48, 49, 50. 51,52,53,54,55, что указывает на их потенциальные терапевтические эффекты у пациентов с СД2 и ХПР. Кроме того, несколько препаратов, таких как алендронат натрия, кальцитриол, целекоксиб, мазопрокол, мифепристон и куркумин, проявили терапевтические функции, особенно приЦД2 56, 57, 58, 59, 60, 61, 62, 63, что также может быть полезно для ASCVD. Также была проведена валидация экспрессии этих центральных C-DEGs в Тид2ДМ и ASCVD.
У этого исследования есть несколько ограничений. Во-первых, размеры клинической выборки в валидационном эксперименте оказались недостаточными и должны быть расширены. Во-вторых, необходимы дальнейшие экспериментальные исследования для получения ценных сведений о связи между ДД2 и АСДВД. Будущая работа будет включать подтверждение результатов с помощью более крупных клинических когорт и проведение более комплексных экспериментальных исследований для разъяснения молекулярных механизмов и патологических путей, связывающих эти два заболевания. В разделе экспериментальной валидации образцы пациентов с ЦД2 и ASCVD были объединены в одну «экспериментальную группу» для сравнения со здоровыми контрольными группами. Хотя такая конструкция способствовала валидации общих изменений экспрессии в выявленных основных C-DEGs в сопутствующем состоянии, она не различает, являются ли эти изменения экспрессии специфичными для Т2 ДМ, ASCVD или общими для обоих. В последующих исследованиях следует сравнивать отдельные группы пациентов с ЦД2, пациентов с ЦСВД и лиц с коморбидным ТД2 и АССВД, чтобы более точно определить конкретные роли этих генов в отдельных заболеваниях по сравнению с сопутствующим состоянием. Кроме того, анализ инфильтрации иммунных клеток проводился исключительно на наборе данных по Т2СД (GSE78721), а не параллельно для набора данных ASCVD (GSE12288). Таким образом, сообщаемые корреляции между C-DEGs в хабах и уровнями инфильтрации иммунных клеток (например, TOP3A с Tregs, SLPI с гамма-дельта-Т-клетками) отражают только их потенциальные иммуномодуляторные роли в патологическом контексте СД 2. Ещё одним ограничением является отсутствие функциональной валидации предсказанных взаимодействий между лекарством и мишенью. Будущие исследования должны включать молекулярные симуляции стыковки для оценки аффинности связывания, а также эксперименты in vivo с использованием животных моделей для оценки терапевтической эффективности этих кандидатов на препараты.
В заключение, этот интегрированный биоинформатический анализ, дополненный предварительной экспериментальной валидацией, выявил несколько общих хаб-генов и путей между СДД2 и ASCVD и предлагает потенциальные кандидаты в препараты, направленные на эти гены. Эти результаты предлагают новые гипотезы и кандидатные цели для дальнейших механистических и терапевтических исследований сложного взаимодействия между ЦД2 и АССВД.
Раскрытие информации
Авторы не заявляют о конкурирующих интересах.
Благодарности
Авторы с благодарностью выражают признательность за финансовую поддержку, предоставленную Программой Фонда естественных наук Нинся (Грант No 2023AAC03498) и Проектом инноваций в науке и технологиях Иньчуаня (Грант No 2024SF005). Авторы также благодарят всех участников и исследователей, чьи вклады сделали это исследование возможным.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Anti-GAPDH | Proteintech | 60004-1-Ig | |
| Anti-HSP90B1 | Abcam | ab238126 | |
| Anti-NCF4 | Proteintech | 14648-1-AP | |
| Anti-PLAU | Proteintech | 17968-1-AP | |
| Anti-PRF1 | Abcam | ab256453 | |
| Anti-SLPI | Abcam | ab46763 | |
| Anti-TUBA1C | Abcam | ab222849 | |
| CIBERSORT | Stanford University | https://cibersortx.stanford.edu | |
| clusterProfiler (R package) | Bioconductor | http://www.bioconductor.org/packages/release/bioc/html/clusterProfiler.html | |
| CytoHubba (Cytoscape plugin) | Cytoscape Consortium | https://apps.cytoscape.org | |
| Cytoscape (version 3.9.1) | Cytoscape Consortium | http://cytoscape.org/ | |
| DGIdb (Drug-Gene Interaction Database) | Washington University | http://www.dgidb.org/ | |
| Enhanced chemiluminescent (ECL) substrate | Thermo Fisher Scientific | 34080 | |
| enrichplot (R package) | Bioconductor | http://bioconductor.org/packages/release/bioc/html/enrichplot.html | |
| Gel imaging system | Bio-Rad | ChemiDox XRS | |
| GEO Database (Datasets: GSE78721, GSE12288) | NCBI | https://www.ncbi.nlm.nih.gov/geo/ | |
| ggplot2 (R package) | CRAN | https://ggplot2.tidyverse.org | |
| GOplot (R package) | CRAN | https://cran.r-project.org/web/packages/GOplot/index.html | |
| GraphPad Prism(version 9.1.2) | GraphPad Software | https://www.graphpad.com/scientific-software/prism/ | |
| limma (R package) | Bioconductor | http://bioconductor.org/packages/release/bioc/html/limma.html | |
| loading buffer | Bio-Rad | 1610737 | |
| org.Hs.eg.db (R package) | Bioconductor | https://bioconductor.org/packages/release/data/annotation/html/org.Hs.eg.db.htm | |
| PVDF membrane | Bio-Rad | 1620177 | |
| R software (version 4.0.2) | R Foundation | https://www.r-project.org/ | |
| Real-time PCR system | Bio-Rad | CFX-96 | |
| Reverse Transcription System Kit | Takara | D6110A | |
| scales (R package) | CRAN | https://CRAN.R-project.org/package = scales | |
| SDS-PAGE Gels | Bio-Rad | 4561085 | |
| Secondary antibody | Abcam | ab6721 | |
| STRING databas | STRING Consortium | https://string-db.org/ | |
| SYBR-green PCR Master Mix | Vazyme Biotech | Cat #Q311-02 | |
| tidyverse (R package) | CRAN | https://cran.r-project.org/web/packages/tidyverse/index.html | |
| Trans-Blot transfer system | Bio-Rad | 1704150 | |
| TRIzol reagent | Thermo Fisher Scientific | #1559602 |
Ссылки
- Artasensi A, Pedretti A. Type 2 diabetes mellitus: a review of multi-target drugs. Molecules. 2020;25(8):1986.
- Saeedi P, Petersohn I, Salpea P, Malanda B, Karuranga S, Unwin N, et al. Global and regional diabetes prevalence estimates for 2019 and projections for 2030 and 2045: results from the International Diabetes Federation Diabetes Atlas, 9th edition. Diabetes Res Clin Pract. 2019;157:107843.
- Chatterjee S, Khunti K, Davies MJ. Type 2 diabetes. Lancet. 2017;389(10085):2239-2251.
- Wu J, Yang K, Fan H, Wei M, Xiong Q. Targeting the gut microbiota and its metabolites for type 2 diabetes mellitus. Front Endocrinol (Lausanne). 2023;14:1114424.
- Holman N, Young B, Gadsby R. Current prevalence of Type 1 and Type 2 diabetes in adults and children in the UK. Diabet Med. 2015;32(9):1119-1120.
- Mancusi C, de Simone G. Myocardial mechano-energetic efficiency and insulin resistance in non-diabetic members of the Strong Heart Study cohort. Cardiovasc Diabetol. 2019;18(1):56.
- Hill MA, Yang Y, Zhang L, Sun Z, Jia G, Parrish AR, et al. Insulin resistance, cardiovascular stiffening and cardiovascular disease. Metabolism. 2021;119:154766.
- Trigka M, Dritsas E. Long-term coronary artery disease risk prediction with machine learning models. Bioengineering (Basel). 2023;23(3):1193.
- Nowbar AN, Gitto M, Howard JP, Francis DP, Al-Lamee R. Mortality from ischemic heart disease. Circ Cardiovasc Qual Outcomes. 2019;12(6):005375.
- Mensah GA, Roth GA, Fuster V. The global burden of cardiovascular diseases and risk factors: 2020 and beyond. J Am Coll Cardiol. 2019;74(20):2529-2532.
- Tian R, Liu H, Feng S, Wang H, Wang Y, Wang Y, et al. Gut microbiota dysbiosis in stable coronary artery disease combined with type 2 diabetes mellitus influences cardiovascular prognosis. Nutr Metab Cardiovasc Dis. 2021;31(5):1454-1466.
- Ma CX, Ma XN, Guan CH, Li YD, Mauricio D, Fu SB. Cardiovascular disease in type 2 diabetes mellitus: progress toward personalized management. Cardiovasc Diabetol. 2022;21(1):74.
- Mohammadnia N, Los J, Opstal TSJ, Fiolet ATL, Eikelboom JW, Mosterd A, et al. Colchicine and diabetes in patients with chronic coronary artery disease: insights from the LoDoCo2 randomized controlled trial. Front Cardiovasc Med. 2023;10:1244529.
- Einarson TR, Acs A, Ludwig C, Panton UH. Prevalence of cardiovascular disease in type 2 diabetes: a systematic literature review of scientific evidence from across the world in 2007-2017. Cardiovasc Diabetol. 2018;17(1):83.
- Huang J, Li N, Li Z, Hou XJ, Li ZZ. Low-dose unfractionated heparin with sequential enoxaparin in patients with diabetes mellitus and complex coronary artery disease during elective percutaneous coronary intervention. Chin Med J (Engl). 2018;131(7):764-769.
- Knuuti J, Wijns W, Saraste A, Capodanno D, Barbato E, Funck-Brentano C, et al. 2019 ESC Guidelines for the diagnosis and management of chronic coronary syndromes. Eur Heart J. 2020;41(3):407-477.
- Song S, Yu J. Identification of the shared genes in type 2 diabetes mellitus and osteoarthritis and the role of quercetin. J Cell Mol Med. 2024;28(4):18127.
- Castillo-Velázquez R, Martínez-Morales F, Castañeda-Delgado JE, García-Hernández MH, Herrera-Mayorga V, Paredes-Sánchez FA, et al. Bioinformatic prediction of the molecular links between Alzheimer's disease and diabetes mellitus. PeerJ. 2023;11:14738.
- Zhang J, Zhang FJ, Zhang L, Xian DX, Wang SA, Peng M, et al. Identification of key genes and molecular pathways in type 2 diabetes mellitus and polycystic ovary syndrome via bioinformatics analyses. Eur Rev Med Pharmacol Sci. 2023;27(8):3255-3269.
- Sun H, Ma X, Ma H, Li S, Xia Y, Yao L, et al. High glucose levels accelerate atherosclerosis via NLRP3-IL/MAPK/NF-κB-related inflammation pathways. Biochem Biophys Res Commun. 2024;704:149702.
- Hasbani NR, Westerman KE. Type 2 diabetes modifies the association of CAD genomic risk variants with subclinical atherosclerosis. Circ Genom Precis Med. 2023;16(6):004176.
- Vernon ST, Tang O, Kim T, et al. Metabolic signatures in coronary artery disease: results from the BioHEART-CT study. J Am Heart Assoc. 2021;10(5):019852.
- Colosimo S, Mitra SK, Chaudhury T, Marchesini G. Insulin resistance and metabolic flexibility as drivers of liver and cardiac disease in T2DM. Diabetes Res Clin Pract. 2023;206:111016.
- Huang X, Zhang W, Yang N, Zhang Y, Qin T, Ruan H, et al. Identification of HSP90B1 in pan-cancer hallmarks to aid development of a potential therapeutic target. Mol Cancer. 2024;23(1):19.
- Sims-Robinson C, Zhao S, Hur J, Feldman EL. Central nervous system endoplasmic reticulum stress in a murine model of type 2 diabetes. Diabetologia. 2012;55(8):2276-2284.
- Wan Y, Liu Z, Wu A, Khan AH. Hyperglycemia promotes endothelial cell senescence through AQR/PLAU signaling axis. Int J Mol Sci. 2022;23(5):2677.
- Song C, Qiao Z, Chen L, Ge J, Zhang R, Yuan S, et al. Identification of key genes as early warning signals of acute myocardial infarction based on weighted gene correlation network analysis and dynamic network biomarker algorithm. Front Immunol. 2022;13:879657.
- López-Bermejo A, Ortega FJ, Castro A, Ricart W, Fernández-Real JM. The alarm secretory leukocyte protease inhibitor increases with progressive metabolic dysfunction. Clin Chim Acta. 2011;412(11-12):1122-1126.
- Songtao Y, Fangyu L, Jie C, Li Y. Identification of claudin-2 as a promising biomarker for early diagnosis of pre-diabetes. Front Pharmacol. 2024;15:1370708.
- Wang Y, Liu T, Liu Y, Chen J, Xin B, Wu M, et al. Coronary artery disease associated specific modules and feature genes revealed by integrative methods of WGCNA, MetaDE and machine learning. Gene. 2019;710:122-130.
- Li L, Mao R, Yuan S, Xie Q, Meng J, Gu Y, et al. NCF4 attenuates colorectal cancer progression by modulating inflammasome activation and immune surveillance. 2024;15(1):5170.
- Chen J, Yu L, Zhang S, Chen X. Network analysis-based approach for exploring the potential diagnostic biomarkers of acute myocardial infarction. Front Physiol. 2016;7:615.
- Zhang L, Wang Q, Xie X. Identification of biomarkers related to immune cell infiltration with gene coexpression network in myocardial infarction. Dis Markers. 2021;2021:2227067.
- Revelo XS, Tsai S, Lei H, Luck H, Ghazarian M, Tsui H, et al. Perforin is a novel immune regulator of obesity-related insulin resistance. Diabetes. 2015;64(1):90-103.
- Zou Y, Wang G. Comprehensive multiomic analysis identified TUBA1C as a potential prognostic biological marker of immune-related therapy in pan-cancer. 2022;2022:9493115.
- Yan X, Huang Y, Wu J. Identify cross talk between circadian rhythm and coronary heart disease by multiple correlation analysis. J Comput Biol. 2018;25(12):1312-1327.
- Rubinstein MR, Genaro AM, Wald MR. Differential effect of hyperglycaemia on the immune response in an experimental model of diabetes in BALB/cByJ and C57BL/6J mice: participation of oxidative stress. Clin Exp Immunol. 2013;171(3):319-329.
- Donath MY, Shoelson SE. Type 2 diabetes as an inflammatory disease. Nat Rev Immunol. 2011;11(2):98-107.
- Zhou J, Zhang X, Ji L. Identification of potential biomarkers of type 2 diabetes mellitus-related immune infiltration using weighted gene coexpression network analysis. 2022;2022:9920744.
- Su Z, Ma C, Zhao R, Jiang Y, Cai Y, Yong G, et al. Heterogeneity of circulating CXCR5−PD-1hi Tph cells in patients with type 2 and type 1 diabetes in the Chinese population. 2023;60(6):767-776.
- Banerjee M, Vats P. Reactive metabolites and antioxidant gene polymorphisms in type 2 diabetes mellitus. Redox Biol. 2014;2:170-177.
- Leh HE, Lee LK. Lycopene: a potent antioxidant for the amelioration of type II diabetes mellitus. 2022;27(7):2335.
- Wu X, Gong H, Hu X, Shi P, Cen H, Li C. Effect of verapamil on bone mass, microstructure and mechanical properties in type 2 diabetes mellitus rats. BMC Musculoskelet Disord. 2022;23(1):363.
- Chen YS, Weng SJ, Chang SH. Evaluating the antidiabetic effects of R-verapamil in type 1 and type 2 diabetes mellitus mouse models. PLoS One. 2021;16(8):e0255405.
- Chu L, Su D, Wang H. Association between antibiotic exposure and type 2 diabetes mellitus in middle-aged and older adults. 2023;15(5):1290.
- Guan J, Abudouaini H, Lin K, Yang K. Emerging insights into the role of IL-1 inhibitors and colchicine for inflammation control in type 2 diabetes. Diabetol Metab Syndr. 2024;16(1):140.
- Armitage JD, Montero C, Benner A, Armitage JO, Bociek G. Acute coronary syndromes complicating the first infusion of rituximab. Clin Lymphoma Myeloma. 2008;8(4):253-255.
- Ribichini F, Joner M, Ferrero V, Finn AV, Crimins J, Nakazawa G, et al. Effects of oral prednisone after stenting in a rabbit model of established atherosclerosis. J Am Coll Cardiol. 2007;50(2):176-185.
- Bastani A, Rajabi S, Daliran A, Saadat H, Karimi-Busheri F. Oxidant and antioxidant status in coronary artery disease. Biomed Rep. 2018;9(4):327-332.
- Sotoudeh Anvari M, Mortazavian Babaki M, Boroumand MA, Eslami B, Jalali A, Goodarzynejad H. Relationship between calculated total antioxidant status and atherosclerotic coronary artery disease. Anatol J Cardiol. 2016;16(9):689-695.
- Winniford MD, Jansen DE, Reynolds GA, Apprill P, Black WH, Hillis LD. Cigarette smoking-induced coronary vasoconstriction in atherosclerotic coronary artery disease and prevention by calcium antagonists and nitroglycerin. Am J Cardiol. 1987;59(4):203-207.
- Muhlestein JB. Antibiotic treatment of atherosclerosis. Curr Opin Lipidol. 2003;14(6):605-614.
- Nelson K, Fuster V, Ridker PM. Low-dose colchicine for secondary prevention of coronary artery disease: JACC review topic of the week. J Am Coll Cardiol. 2023;82(7):648-660.
- Fiolet ATL, Nidorf SM, Mosterd A, Cornel JH. Colchicine in stable coronary artery disease. Clin Ther. 2019;41(1):30-40.
- Aimo A, Pascual-Figal DA, Barison A, Cediel G, Vicente ÁH, Saccaro LF, et al. Colchicine for the treatment of coronary artery disease. Trends Cardiovasc Med. 2021;31(8):497-504.
- Ikeda T, Manabe H, Iwata K. Clinical significance of alendronate in postmenopausal type 2 diabetes mellitus. Diabetes Metab. 2004;30(4):355-358.
- Wang Y, Huang M, Xu W, Li F, Ma C, Tang X. Calcitriol-enhanced autophagy in gingival epithelium attenuates periodontal inflammation in rats with type 2 diabetes mellitus. Front Endocrinol (Lausanne). 2022;13:1051374.
- Cheng S, So WY, Zhang D, Cheng Q, Boucher BJ, Leung PS. Calcitriol reduces hepatic triglyceride accumulation and glucose output through Ca2+/CaMKKβ/AMPK activation under insulin-resistant conditions in type 2 diabetes mellitus. Curr Mol Med. 2016;16(8):747-758.
- Tian F, Zhang YJ, Li Y, Xie Y. Celecoxib ameliorates non-alcoholic steatohepatitis in type 2 diabetic rats via suppression of the non-canonical Wnt signaling pathway expression. PLoS One. 2014;9(1):e83819.
- Reed MJ, Meszaros K, Entes LJ, Claypool MD, Pinkett JG, Brignetti D, et al. Effect of masoprocol on carbohydrate and lipid metabolism in a rat model of type II diabetes. Diabetologia. 1999;42(1):102-106.
- Fleseriu M, Biller BMK, Findling JW, Molitch ME, Schteingart DE, Gross C. Mifepristone, a glucocorticoid receptor antagonist, produces clinical and metabolic benefits in patients with Cushing's syndrome. J Clin Endocrinol Metab. 2012;97(6):2039-2049.
- Chuengsamarn S, Rattanamongkolgul S, Luechapudiporn R, Phisalaphong C, Jirawatnotai S. Curcumin extract for prevention of type 2 diabetes. Diabetes Care. 2012;35(11):2121-2127.
- Bozkurt O, Kocaadam-Bozkurt B. Effects of curcumin, a bioactive component of turmeric, on type 2 diabetes mellitus and its complications: an updated review. 2022;13(23):11999-12010.