В этом обзоре определяется иммунометаболический баланс кишечника и печени при стеатозном заболевании печени, связанной с метаболической дисфункцией, и её воспалительно-фиброзном фенотипе (MASH), охватывая барьерный недостаток и активацию инфламмасом, а также оценивает многоцелевые натуральные продукты и стратегии, стратификационные по биомаркерам, для точного вмешательства.
Обзорная статья
Модуляция оси кишечника и печени традиционной китайской медицины: от нарушения барьера до активации воспаления, возникающей при MASLD/MASH
В этой статье
Краткое содержание
Аннотация
Связанное с метаболической дисфункцией стеатотическое заболевание печени (MASLD) и его воспалительно-фиброзный фенотип (MASH) демонстрируют выраженную иммунометаболическую связь. В этом обзоре обобщаются данные вдоль оси кишечника — печень — от эпителиального плотного соединения и сосудистого барьера кишечника (GVB) до амплификации TLR4–MyD88/TRIF–NF-κB и активации инфламмасом NLRP3, а также изложена логика спектра воздействия, полученного из кишечника — липополисахарид (LPS), эндогенный этанол, желчные кислоты (BA), короткоцепочечные жирные кислоты (SCFA) и триметиламин N-оксид (TMAO). Мы позиционируем BA-FXR/TGR5, SCFAs-GPR41/43 и AMPK/Nrf2 как модуляторы вверх/вниз, которые сбрасывают пороги воспалительных порог и обеспечивают ступеньно-зависимую придатность препаратов. Основываясь на картографировании узлов в путь, мы суммировали механизмы и трансляционные сигналы для берберина (BBR), Кушихуаю (QSHY), отварения Да-Чай-Ху (DCHD) и полисахаридов (например, Astragalus, Ganoderma), делая акцент на фармакокинетических и ограничениях по месту воздействия, поддерживающим действие «в первую очередь кишечника». Мы предлагаем минимальный набор компаньонов биомаркеров — LBP/sCD14, профили BA с динамикой FGF19–C4 и IL-1β/GSDMD-N — в паре с иерархическими элементами визуализации (≥30% относительного снижения МРТ-PDFF; MRE/ELF) для основы типизации ответа и решений «идти/нет». Наконец, мы выделяем критические пробелы (прямые показания человеческого GVB; продольные мультиомические исследования, связанные с клиническими результатами) и определяем биомаркерно-ориентированный многоступенчатый путь (MAMS) для адаптивной, стратифицированной разработки многоцелевых интервенций традиционной медицины при MASLD/MASH.
Введение
Связанное с метаболической дисфункцией стеатозное заболевание печени (MASLD) и его воспалительно-фиброзный фенотип MASH всё чаще рассматриваются не как изолированные метаболические нарушения, а как системные состояния, вызванные нарушением иммунометаболической связи. Сходящиеся данные ставят ось кишечник–печень в центр эволюции болезни: когда целостность кишечного барьера ослабевает, молекулярные паттерны, ассоциированные с люминальными патогенами, и метаболические сигналы легче попадают в портальный кровообращение, инициируя и усиливая внутрипеченочные врождённые иммунныеответы 1. Механистически дисфункция барьера включает ремоделирование эпителиального плотного соединения и нарушение кишечного сосудистого барьера (GVB), что вместе увеличивает портальную доставку сигналов, полученных от микроорганизмов и диеты, которые снижают порог активации печеночного врождённого иммунитета.
Под эпителием сосудистый барьер кишечника (ГВБ) выполняет функции второго контрольного пункта с принципами селективности, аналогичными гематоэнцефалическому барьеру. Экспериментальные и трансляционные данные показывают, что дестабилизация GVB может предшествовать явному стеатогепатиту, а стабилизация барьера механистически связана с уменьшением портальной воспалительной нагрузки.
Циркулирующий эндотоксин (липополисахарид, LPS) демонстрирует наиболее стабильную положительную связь с прогрессированием от MASLD к MASLD и прогрессирующим фиброзом, закрепляя популяционную связь между молекулярной нагрузкой, полученной из кишечника, и повреждениемпечени 1. Причинно-следственным является и «автопивоваренный» путь: высокообразующая алкоголь Klebsiella pneumoniae ассоциируется с MASLD, а экспериментальная колонизация вызывает жировую печень при отсутствии экзогенногоэтанола 2. Дополнительные метаболиты, полученные из кишечника (например, желчные кислоты, SCFAs и TMAO) формируют иммунометаболический тонус хозяина и могут способствовать межиндивидуальной гетерогенности траекторий заболевания и ответа на лечение.
На уровнях рецепторов и путей портальные входы обрабатываются в синусоиде TLR4/MD-2, который сигнализирует через MyD88/TRIF→IKK для активации NF-κB, повышая TNF-α, IL-1β и CCL2, а также стимулируя инфильтрацию лейкоцитов и паренхимальныеповреждения 3. TLR4 дополнительно понижает уровень TGF-β псевдорецептора BAMBI в печёночных звёздчатых клетках, повышая чувствительность фиброгенных сигналов, и рекрутирует моноциты через ось CCL2/CCR2, тем самым связывая воспаление сфиброзом 4,5. В дальнейшем инфламмасоме NLRP3 требуется NF-κB-опосредованное прайминг (сигнал 1) вместе с активационными сигналами от митохондриальной ROS, АТФ–P2X7 или кристаллов холестерина (сигнал 2) для активации каспазы-1, высвобождения IL-1β/IL-18 и выполнения пироптоза; фармакологическое подавление (например, MCC950) эффективно на нескольких моделях, но гистологическая польза неравномерна в контекстах с высоким содержанием жиров и холестерина, что указывает на то, что «лекарственность» ограничена составом DAMP и временем 6,7,8. Параллельно пути BA–FXR/TGR5, SCFA–GPR41/43 и AMPK/Nrf2 модулируют позвоночник на нескольких уровнях, сбрасывая пороги воспалительных воспаления и обеспечивая реакцию, зависящую отстадии 9,10,11.
Этот фреймворк определяет оперативные узлы для многоцелевого вмешательства. Берберин (BBR) иллюстрирует стратегию низкого системного воздействия, которая ингибирует бактериальный BSH, ремоделирует пул BA и активирует ось подвздошной FXR–FGF15 для «удалённой» перекалибровки внутрипеченочных иммунометаболическихпоказателей 12,13; его ионный комплекс BUDCA/HTD1801 снизил МРТ-PDFF в рандомизированном контролируемом исследовании фазы 2 (RCT)14. Формулы, такие как Qushihuayu (QSHY), показали скоординированные реакции микробиома и метаболита с улучшением печеночных ферментов и суррогатных матерей фиброза при многоцентровойрандомизации 15. Отвар Да-Чай-Ху (DCHD) и полисахариды (например, Astragalus, Ganoderma) соответствуют стабилизации GVB и пластичности иммунитета к слизистой и инфламмасомсоответственно 16,17,18. Однако доказательная среда традиционной китайской медицины (ТКМ) в MASLD/MASH остаётся неоднородной, охватывая небольшое количество рандомизированных исследований с гетерогенными конечными точками и переменным качеством отчетности, а также более широкий объём доклинических и гипотечных исследований.
Соответственно, одной из главных целей данного обзора является предоставление структурированного, критического синтеза доказательств ТКМ, отделения надёжных данных на людях от доклинических выводов и оценки дизайна исследований, риска смещения, размеров эффектов, сигналов безопасности и долговечности ответа. Мы также подчеркиваем практические трансляционные ограничения, особенно важные для вмешательств ТКМ, включая стандартизацию продукта, согласованность между партиями и рамки Q-маркеров, а также регуляторные аспекты, регулирующие пороги доказательств для разработки и клинического внедрения.
На этом фоне обзор состоит из трёх строк. Сначала мы прослеживаем континуум от отказа эпителиевых/GVB до активации TLR4–NF-κB и NLRP3, интегрируя ключевые данные на уровне человека, животных и клеток. Во-вторых, мы синтезируем фармакологию систем и репрезентативные клинические/трансляционные данные о ТКМ-полученных и других природных агентах, нацеленных на позвоночник барьер-рецептор–инфламмасома и его иммунометаболические перекрёстные контакты, с явным согласованием фармакокинетики, воздействия и механизма. В-третьих, мы описываем измеримые биомаркеры и схемы типирования ответа, которые сочетаются с этими путями для улучшения интерпретируемости и внешней воспроизводимости в гетерогенных когортах MASLD/MASH. Связывая механизм с вмешательством и количественными показаниями, иммунная ось кишечника и печени превращается в проверимую трансляционную структуру, которая может информировать будущую стратифицированную терапию (см. рисунок 1). Недавние синтезы дополнительно позиционируют стратегии, ориентированные на микробиом, как основную трансляционную ось в MASLD/MASH, охватывающую модуляцию на основе диеты, до/про/синбиотику, трансплантацию фекальных микробиоты и новые подходы, такие как модифицированные бактерии и бактериофаги, укрепляя клиническую значимость вмешательств, направленных накишечник 19.
Обзор и перспектива
Ось кишечника–печени: от разрушения барьера до активации воспаления.
Дисбаланс эпителиального барьера и усиленная парацеллюлярная утечка
Эпителиальный барьер кишечника поддерживается слизистым слоем на основе люминального MUC2 вместе с апикальными плотными соединениями (TJ); ZO-1, окклюдин и множественные клаудины определяют параклеточную селективность и тем самым ограничивают прямые контакты между молекулярными паттернами, ассоциированными с люминальными микробами, и эпителиальными врождёнными иммунными рецепторами. В метаболически воспалённых состояниях фактор некроз опухолей α (TNF-α) запускает программу, зависящую от NF-κB, которая усиливает миозин-легкоцепочную киназу (MLCK), вызывая окклюдиновый эндоцитоз и периджункционную реорганизацию актомиозина для создания «утечки» — эффект, продемонстрированный как in vivo, так и in vitroмоделей 20,21.
Эти механистические наблюдения совпадают с клиническими фенотипами. Исследования на людях постоянно показывают повышенную проницаемость кишечника при MASLD, что коррелирует со стеатозом и тяжестью воспалительного заболевания. В биопсийных физиологических исследованиях пациенты с неалкогольной жировой болезнью печени (сейчас в рамках MASLD) показывают повышенную проницаемость 51Cr-EDTA, а также аномалии ТЖ и чрезмерный бактериальный рост в тонком кишечнике, при этом проницаемость положительно коррелирует со стеатозом и воспалительной активностью. Последующий систематический обзор тестов на проницаемость с двойным сахаром подтвердил значительно более высокую проницаемость тонкого кишечника у MASLD по сравнению со здоровыми контролями, закрепив повреждение эпителиального барьера как воспроизводимый признак на уровне популяции. В этом контексте люминальные PAMPs и метаболические сигналы легче получают доступ к портальной циркуляции, обеспечивая входящие сигналы, которые обеспечивают сигнализацию печени TLR4–NF-κB и лицензируют активацию инфламасомы NLRP3.
Связь микробиоты кишечника с барьером в гомеостазе и MASLD/MASH
В физиологических условиях микробиота кишечника способствует поддержанию барьера через скоординированное воздействие на слизь, плотные соединения и слизистое иммунитет. Структура комменсального сообщества влияет на свойства слизистого барьера, в то время как эпителиально-микробные взаимодействия формируют ремоделирование плотных соединений и трансэпителиальную проницаемость, тем самым ограничивая транслокацию микробных продуктов при гомеостазе 22,23,24. SCFA, образующиеся в результате микробной ферментации, действуют как сигнальные метаболиты, которые могут поддерживать программы эпителиального барьера и буферировать воспалительные транскрипционные реакции, обеспечивая функциональную устойчивость к нарушениюбарьера 23,25.
В MASLD/MASH дисбиоз и изменённый микробный функциональный выход могут разрушать эти стабилизирующие программы и усиливать барьерную дисфункцию. Изменённая проницаемость и транслокация микробных продуктов увеличивают воздействие на порталы и снижают порог активации печеночного врождённого иммунитета, создавая ось прямого перехода от дисбиоза к отказу барьера и воспалительнойамплификации 23. Механистически прямым примером является эндогенное производство этанола высоко-продуцирующими алкоголь Klebsiella pneumoniae, которые могут стимулировать жировые фенотипы печени без экзогенного алкоголя, связывая специфическую микробную функцию с метаболическим повреждением хозяина и воспалительной воспалительной восприимчивостью2.
Этот подраздел консолидирует связь «микробиота → барьерный тон → воздействие портала», чтобы предоставить явную точку входа для интерпретации вмешательств ТКМ проксимального кишечника, которые утверждают восстановление барьера или ремоделирование микробиоты.
Нарушение сосудистого барьера кишечника и раннее воздействие порталов
Расположенный под эпителием, кишечный сосудистый барьер (GVB) формируется подслизистыми капиллярными эндотелиальными клетками и их соединительными комплексами; Функционально аналогично гематоэнцефалическому барьеру, оно ограничивает транслокацию бактерий и макромолекул через стенку кишечника в портальныйкровообращение 26. Экспериментальные модели стеатогепатита показывают, что нарушение GVB предшествует воспалению печени, тогда как фармакологическое усиление сигналов эндотелиального FXR–β-катенина смягчает воспалительныепортальные нагрузки 27.
Вместе эти результаты запускают многослойную модель перехвата — «эпителиальный барьер → ГВБ → портальную экспозицию» — и номинируют ГВБ как управляемый ранний патологический узел в MASLD/MASH 28. Механистически целостность GVB отражает перекрёстный диалог между Wnt/β-катенином и FXR-путями; апрегуляция белка, ассоциированного с плазмалеммальной везикулой (PLVAP/PV-1), отмечает открытие в области фенестрального отверстия и коррелирует спротекающей 26,27. Комбинированное скомпрометирование эпителиального и сосудистого барьера увеличивает эффективную портальную доставку воспалительных сигналов, тем самым снижая порог внутрипеченочного сенсора иамплификации 27.
Поток молекул, полученных из кишечника, и ландшафт воздействия синусоидальной печёнки
На уровне популяции циркулирующий эндотоксин (ЛПС) является наиболее стабильно ассоциированным молекулярным сигналом с прогрессированием MASLD. Недавний мета-анализ показывает более высокие уровни ЛПС при MASLD, чем у контрольных групп, что коррелирует со стадией заболевания и воспалительных показателей, тем самым подтверждая цепочку доказательств «барьерной недостаточности → эндотоксемии → печёночного воспаления» 1. Эндогенный этанол является вторым ключевым фактором: Klebsiella pneumoniae с высоким содержанием алкоголя обогащается в китайской когорте MASLD, и оральная колонизация достаточна для индуцирования жировой печени при отсутствии экзогенного этанола, устанавливая причинно-следственную связь между конкретным штамом, его метаболитом и повреждениемпечени 2. Другие метаболиты, полученные из кишечника (например, желчные кислоты и SCFAs) модулируют пороги воспаления, но рассматриваются здесь как контекстуальные регуляторы, а не как первичные драйверывоздействия 29,30,31.
Активационные и эффекторные программы печёночного каскада TLR4–MyD88/TRIF–NF-κB
Когда портальные входы достигают печеночных синусоидов, комплексы TLR4/MD-2 на клетках Купфера, гепатоцитах и эндотелиальных клетках печени распознавают LPS и липидные лиганды, привлекают адаптеры MyD88 или TRIF для взаимодействия с комплексом IKK и стимулируют ядерную транслокацию NF-κB, тем самым индуцируя TNF-α, IL-1β и CCL2, что приводит к инфильтрации моноцитарно-макрофагов и повреждениюпаренхимы 3,32.
Сигнализация TLR4 также усиливает травмы с помощью химотактических и фиброгенных осей. Путь CCL2/CCR2 привлекает моноциты, полученные из костного мозга, в печень, а фармакологическая или генетическая блокада CCR2 снижает инфильтрацию моноцитов Ly6C⁺ и снижает воспаление и фиброз в диетических моделяхMASH 4. В печёночных звёздчатых клетках TLR4 понижает уровень TGF-β псевдорецептора BAMBI, сенсибилизуя клетки к TGF-β и связывая врождённую иммунную активацию с фиброгенным программированием черезпути 5. Соответственно, при оценке вмешательств ТКМ доказательства ослабления оси TLR4–NF-κB–CCL2 (а также фиброгенной сенсибилизации по низшей линии) рассматриваются как механистически более значимые, чем изолированные изменения в общих воспалительных маркерах.
Двойное сигнальное активирование инфламмасомы NLRP3 и пироптоза
Сигнализация TLR–NF-κB обеспечивает этап примирования (сигнал 1) для NLRP3 и про-IL-1β/IL-18, тогда как митохондриальная ROS, активация АТФ–P2X7 и свободный или кристаллический холестерин выступают в роли сигналов активации (сигнал 2), которые собирают комплекс NLRP3–ASC–каспаза-1, обеспечивая формирование зрелых пор IL-1β/IL-18 и гасдермин-D (GSDMD) для выполнения пироптоза и стимулирования воспалительной и фибрознойпрогрессии 33. В различных моделях MASH и человеческих тканях гиперактивация NLRP3 имеет воспалительную и фиброзную степень, а кристаллы холестерина являются ключевым DAMP и источником сигнала 2 при стеатогепатите 6,34.
Стадия заболевания и контекст модели являются критически важными квалификаторами. В условиях с высоким содержанием жиров и высокого холестерина (HFHC) либо дефицит Nlrp3, либо лечение MCC950 не улучшили гистологические показатели, что указывает на то, что состав DAMP и окно дозировки определяют пригодность воспаления воспаления; в естественной истории MASLD/MASH NLRP3 лучше рассматривать как ключевой усилитель, а не как универсальный ограничивающий скорость, с прямыми последствиями для стратифицированных и комбинированных вмешательств 8,35. Эта стадийная зависимость мотивирует явное разделение (i) претензий, направленных на воспалительные сомы, от (ii) доказательств на людях, связывающих показания инфламмасом (например, IL-1β/IL-18, GSDMD-N) с клинически значимыми конечными точками.
Модуляционные пути перекрёстных помех
Пути BA–FXR/TGR5, SCFA–GPR41/43 и AMPK/Nrf2 модулируют пороги воспалительных порог в этом каскаде. Вместо детального расширения этих путей мы сохраняем их как модуляторные уровни, влияющие на ступеньно-зависимую лекарственность позвоночника барьера–TLR4–NLRP3 9,27.
Когда эпителиальная и сосудистая защита последовательно выходит из строя, молекулы кишечника усиливают внутрипечёночную врождённую иммунную сигнализацию, что приводит к пироптозу, вызванному инфламасомами, и фибрознойпрогрессии 6,27,36. Этот обтекаемый механистический каркас служит опорой, по которой оцениваются вмешательства ТКМ в следующих разделах (см. таблицу 1).
| Узел оси (анатомический уровень) | Ключевое механистическое событие | Вклад в активацию и воспаление инфламмасом | Трансляционные показания | Репрезентативные исследования |
| Экология микробиоты кишечника | Дисбиоз изменяет микробные продукты (нагрузка эндотоксинов, выработка этанола, трансформация желчных кислот, выделение SCFA) | Увеличивает воспалительную нагрузку на портал и снижает порог активации иммунного иммуната печени | Микробиом кала (16S/метагеномика); метаболом стула; циркулирующий LBP/sCD14 | Юань и др., 20192; Tilg и др., 2016,37 |
| Слизистый слой и эпителиальные герметичные соединения | TNF–NF-κB–MLCK–зависимое TJ-ремоделирование; окклюдиновый эндоцитоз; Поровая формация клаудин-2 | Улучшенная парацеллюлярная проницаемость способствует транслокации PAMP (запуск сигнала 1) | экспрессия ZO-1/окклюдина; тесты на проницаемость с двойным сахаром; 51Cr-EDTA; LBP/sCD14 | Ye и др., 2006,38; Marchiando и др., 2010,21 |
| Кишечный сосудистый барьер (GVB) | Эндотелиальная утечка через Wnt/β-катенин и FXR-зависимые пути; Арегуляция PLVAP/PV-1 | Усиливает портальную доставку микробных и метаболических воспалительных сигналов | Окрашивание PLVAP; парные портальные/воспалительные маркеры; Индексы визуализации, связанные с экспозицией | Мурис и др., 201927 |
| Портальное молекулярное воздействие | Повышение циркулирующего эндотоксина; эндогенный этанол; изменённая среда BA/SCFA | Усиливает грунтование TLR4; модулирует разрешительность инфламмасомы | LPS (зависит от метода); LBP; sCD14; Профиль BA; Квантификация SCFA | Фархади и др., 2008,39; Юань и др., 20192 |
| Печёночная сигнализация TLR4 | активация TLR4–MyD88/TRIF–NF-κB; Снижение BAMBI; Индукция CCL2 | Запуск сигнала 1 NLRP3; хемотаксис; сенсибилизация звёздчатых клеток к TGF-β | печеночные мишени TLR4/NF-κB; CCL2; α-SMA; Коллагеновые транскрипты | Seki и др., 2007,5; Шарифния и др., 2015,3 |
| Активация воспаление NLRP3 | Прайминг NF-κB (сигнал 1) + триггеры DAMP (ROS, ATP–P2X7, кристаллы холестерина) (сигнал 2) | активация Caspase-1; выпуск IL-1β/IL-18; Пироптотическое усиление | IL-1β; IL-18; Активность CASPASE-1; Декольте GSDMD | Wree и др., 2014,40; Мридха и др., 20177 |
| Метаболические и иммунные перекрёстные контактные узлы | BA–FXR/TGR5; SCFA–GPR41/43; Пути AMPK/Nrf2 | Сброс воспалительных порогов и ступенько-зависимость от препаратов | FGF19–C4; подписи BA; Уровни SCFA; Мишени AMPK/NRF2 | Neuschwander-Tetri и др., 2015,9; Кимура и др., 2013,25 |
Таблица 1: Механистические контрольные точки, связывающие сбой барьера с активацией печёночного воспаление при MASLD/MASH.
Системная фармакология и молекулярные механизмы вмешательств ТКМ
Системно-фармакологический фреймворк с многоомической валидацией
Использование фармакологии систем и сетей в качестве генератора гипотез — проецирование отношений «соединение–мишень–путь» на патобиологию MASLD/MASH и затем замыкание цикла с помощью мультиомики и межмасштабных экспериментов — предлагает удобный путь к воспроизводимым механистическимутверждениям 41.
Однако в этом обзоре системная фармакология явно рассматривается как генерирующая гипотезы, а не подтверждающая. Выводы, полученные из сети, считаются трансляционно закреплёнными только при согласовании с (i) клиническими данными человека, (ii) правдоподобностью дозы и воздействия, (iii) анатомически согласованным местом действия и (iv) воспроизводимыми показаниями путей.
Только скрининг и обогащение, основанные на базе данных, склонны к завышенным показателям ложноположительных результатов; Поэтому предлагаемые сети необходимо испытывать стресс-тестирование на ограничения по дозе и воздействию, месте и времени действия, а также клинической связи, прежде чем они будут представлены в качестве объяснительныхмоделей 42.
Этот рабочий процесс уже поддерживает берберин (BBR) на уровне парадигмы. Перорально введённая BBR ингибирует микробную гидролазу желчной соли (BSH), увеличивает количество люминально-конъюгированных желчных кислот, таких как таурохоловая кислота (TCA), активирует ось подвздошной FXR–FGF15 и снижает поглощение липидов печёночной (например, Cd36), что в совокупности улучшает обработку липидов в печени и снижает воспалительные нагрузки на кишечник ипечень 12,13. В интегрированных исследованиях животных и омиксов предполагаемый каскад BSH→TCA→FXR/FGF15 совпадает с печёночными транскрипционными ответами, указывая на локус действия кишечника, а не на эффективность, вызванную высоким системнымвоздействием 12,43,44.
Появляются доказательства на уровне формулы. В двойном слепом рандомизированном исследовании Qushihuayu (QSHY) улучшил показатели печёночных ферментов и индексы суррогатного фиброза, сопровождаясь скоординированными изменениями микробиома кишечника и профилей метаболитов, что подтверждает возможность валидации «сетевой→мультиомической→клинической конечной триады» 15,45. Однако среди вмешательств ТКМ в MASLD/MASH количество адекватно усиленных РКИ остаётся ограниченным, конечные точки часто основаны на суррогатной матери, а отчетность о сокрытии распределения/ослеплении и сопутствующей терапии варьируется, что требует структурированной градации прочности доказательств.
Оценка доказательств и измерения риска предвзятости. Для устранения гетерогенности и обеспечения структурированного синтеза мы классифицируем доказательства на четыре уровня: уровень 1 — рандомизированные контролируемые исследования с заранее заданными конечными точками; Уровень 2 — контролируемые нерандомизированные или наблюдательные исследования на людях; Уровень 3 — модели животных; и уровень 4, in vitro, вычислительный или сетевой вывод46,47. Рассматриваемые аспекты риска предвзятости включают рандомизацию и сокрытие распределения, ослепление, иерархию и мультипликацию конечных точек, продолжительность наблюдения, предварительную регистрацию, уток, соблюдение и контроль фоновой терапии. Помимо одного только типа исследования, доказательная сила в данном обзоре интерпретируется как сочетание (i) иерархии дизайна исследований, (ii) внутренней валидности и доменов риска смещения, (iii) согласованности между независимыми исследованиями, (iv) согласованности механистического взаимодействия узлов и клинических конечных точек, и (v) фармакокинетической правдоподобности воздействия на цель. Механистическая когерентность без выравнивания человеческой конечной точки считается генерирующей гипотез, тогда как клинические сигналы без согласованности путей трактуются осторожно как потенциально неспецифические эффекты. Эта интегративная оценка применяется ко всем вмешательствам ТКМ, рассмотренным ниже.
Картирование вмешательств вдоль иммунного позвоночника кишечника и печени
На уровне барьера ранний MASLD/MASH характеризуется нарушением кишечного эпителия и кишечного сосудистого барьера (GVB), что увеличивает портальную нагрузку PAMPs. Агонизм FXR стабилизирует GVB через эндотелиальную Wnt/β-катениновую сигнализацию, тем самым снижая воздействие печени и воспалительные активации — ось, подтвержденная в диетических моделяхMASH 27,48. В рамках вмешательств традиционной китайской медицины (ТКМ) полисахариды увеличивают экспрессию ZO-1/окклюдина, снижают проницаемость и уменьшают приток портальных эндотоксинов, образуя восходящую стратегию «деэкспозиции» 49. Большинство заявлений о защите барьеров остаются доказательствами уровня 3, если не подтверждены мерами проницаемости человека или прокси портала/воздействия в сочетании с клиническими конечными показателями.
Модуль TLR4–MyD88–NF-κB выступает в роли инициирующего усилителя для провоспалительных и хемотактических программ печени. В печёночных звёздчатых клетках сигнализация TLR4 снижает уровень TGF-β псевдорецептора BAMBI, повышая чувствительность клеток к TGF-β и облегчая переход от воспаления кфиброзу 5,50. В соответствии с этим узлом полисахариды астрагала (APS) подавляют TLR4 и фосфо-NF-κB как в кишечнике, так и печени, а также в нижних частотах TNF-α/IL-6, что указывает на связанное торможение вдоль континуума «барьер→TLR4»49. Для трансляционного вывода показания, согласованные по пути (например, ослабление осей TLR4–NF-κB–CCL2 с помощью суррогатных матери фиброза) имеют более тяжёлый вес, чем изолированные изменения в общих воспалительныхмаркерах 51,52,53.
В качестве второстепенной платформы инфламмасома NLRP3 требует NF-κB-зависимого прайминга (повышение NLRP3 и про-IL-1β) вместе с активационными сигналами липотоксичности, ROS или кристаллов холестерина. В клинических образцах и нескольких мышиных моделях MASH ингибирование или блокада активации NLRP3 снижает воспаление и фиброз печени, хотя размеры эффектов варьируются в зависимости от диеты и метаболических контекстов — что указывает на состав и время DAMP как факторы лекарственности 7,40. В исследованиях, ориентированных на ТКМ, APS снижает сигнализацию NLRP3 и созревание/высвобождение IL-1β/IL-18, что приводит к двойному ограничению на прайминг и активацию; Полисахариды, полученные из ганодермы, ремоделируют микробиоту и ослабляют низкостепенную эндотоксию, косвенно снижая склонность к запуску NLRP349,54. Эти результаты преимущественно являются доказательствами третьего уровня; Связь с конечными точками или мерами визуализации при фиброзе человека остаётся скудной и должна интерпретироваться осторожно. На уровне перекрёстного взаимодействия путей BA–FXR/TGR5 и SCFA–GPR41/43 совместно настраивают иммунометаболическую связь; SCFAs активируют свои рецепторы для стабилизации энергетического и иммунного гомеостаза, тем самым модулируя уязвимостьпечени 25. Интеграция этих узлов, барьерных показаний (ZO-1/окклюдин, проницаемость, LBP/EAA), провоспалительных выходов (TNF-α, IL-6 и сопутствующие оси хемотаксиса), выходов инфламмасом (IL-1β/IL-18, каспаза-1/GSDMD) и показаний ядерных рецепторов/метаболических веществ (профили BA с мишенями FXR/TGR5; SCFA с GPR41/43) могут быть корегистрированы между мультиомическими слоями для укрепления внешней валидности механистическоговывода 25,27,49. В этом обзоре такая совместная регистрация используется для оценки механистической когерентности, но выравнивание человеческой конечной точки остаётся основным определяющим фактором прочности доказательств.
Фармакокинетические и ограничения по месту воздействия на механистический вывод
У крыс абсолютная пероральная биодоступность берберина (BBR) составляет ~0,36%–0,68%, что ограничено первопроходным клиренсом кишечника и выбросом P-gp; Распределение тканей свидетельствует о высоком печёночном распределении, несмотря на низкий уровеньплазмы 55,56,57. Эти особенности определяют BBR как локальный модулятор оси кишечника и печени, в котором световое воздействие достаточно для взаимодействия с каскадом BSH→BA→FXR/FGF15 55,57. Стратегии формулирования, значительно увеличивающие системное воздействие, могут сместить основное место действия и окно безопасности; Поэтому механистические заявления должны сообщать о портальных и системных концентрациях наряду с взаимоотношениями воздействия иреакции 57.
Низкое системное воздействие не исключает снижения входа портального PAMP через локальную ось микробиоты–желчная кислота–ядерный рецептор и снижает склонность активации TLR4/NLRP3 печени — результаты, неоднократно подтверждаемые мультиомическими и сегментно-специфическимиэкспериментами 12,13,58. В отличие от этого, полисахариды/олигосахариды в основном остаются светящимися после внутренней подачи, с эффективностью благодаря ремонту барьеров и микробным ферментационным продуктам (SCFA). Их эффективность зависит от достижимой дозы света, кинетики ферментации и временных окна вторичных желчных кислот и СКФА; соответственно, временные ряды метаболомики BA/SCFA в сочетании с барьерными белками и метриками проницаемости обеспечивают соответствующие показания для атрибуции 25,59,60. Неспособность интегрировать фармакокинетическую правдоподобность (воздействие люминала, кинетика ферментации, окна временного метаболита) является повторяющейся слабостью в механистической атрибуции в исследованиях ТКМ и способствует ограниченной воспроизводимости.
Иерархия доказательств, биомаркеры компаньонов и контроль качества
Трансляционные сигналы возникли на нескольких уровнях. В рандомизированном контролируемом исследовании фазы 2 ионного комплекса берберин–урсодезоксихолат (HTD1801/BUDCA) МРТ-PDFF значительно снизился вместе с улучшением метаболических параметров, что соответствует популяционной трансляции иммунометаболической модуляции, связанной с BA–FXR, 14,61. На уровне формулы двойное слепое многоцентровое РКИ Кушихуаю (QSHY) продемонстрировало согласованные сдвиги в микробиоме кишечника и профилях метаболитов, а также улучшения печеночных ферментов и FIB-4, что подчёркивает, как компаньонные биомаркеры усиливают причинную интерпретацию клиническихрезультатов 15. Там, где доступно, конечные точки первого уровня (суррогаты жира или фиброза на основе визуализации) отдаются приоритетом по сравнению с биохимическими результатами.
Нейтральные и отрицательные выводы должны быть включены для смягчения избирательной отчетности. В подмножествах MASLD берберин не превосходит контроль по печёночным ферментам или липидам, при этом гетерогенность вероятно, обусловлена базовым метаболическим фенотипом, состоянием проницаемости, сопутствующими лекарствами и различиями в дозе/воздействии — что в будущих исследованиях аргументирует заранее определённый тип ответа и стратификацию по биомаркерам62. Обновленный клинический метаанализ 2024 года сообщает о общем улучшении чувствительности печени и инсулина к берберину, но при этом подчеркивает гетерогенность исследований и необходимость более качественных РКИ для определения границпопуляции 63. В разных вмешательствах вариабельность в дизайне исследования, выборе суррогатной конечной точки, продолжительности наблюдения и фоновой терапии усложняет сопоставимость между исследованиями. Размеры эффектов часто скромны, а отчётность по доменам риска предвзятости непоследовательна.
Для воспроизводимости были предложены маркеры качества (Q-маркеры) и сквозный контроль качества — связывающий материальную основу и in vivo воздействие фармакодинамических показаний — как фундаментальные элементы для стандартизации исследований ТКМ; В сочетании с достижениями в системной/сетевой фармакологии и многоомической валидации эта структура может повысить внешнюю воспроизводимость и клиническуюпереводимость 41. Стандартизация, согласованность между партиями и согласованность регуляторов являются критическими факторами масштабируемости и сопоставимости перекрёстных исследований и рассматриваются здесь как неотъемлемая составляющая трансляционной достоверности, а не как вспомогательные факторы. В совокупности существующие данные подтверждают биологическую правдоподобность для множества вмешательств ТКМ вдоль барьера–TLR4–NLRP3. Однако только подмножество (например, формулы на основе берберина и избранные испытания с формулами) соответствуют критериям первого уровня с человеческими конечными показателями, поддерживаемыми визуализацией, и даже они ограничены умеренными размерами эффектов и гетерогенностью. Большинство утверждений на уровне путей — особенно связанных с модуляцией инфламмасом или стабилизацией GVB — остаются в основном подкреплены доклиническими данными уровня 3 и должны рассматриваться как механистически последовательные, но клинически предварительные.
Репрезентативные вмешательства: трансляционные данные вдоль оси барьер–TLR4–NLRP3
Берберин восстанавливает функцию кишечного барьера и ослабляет сигнализацию инфламмасом NLRP3
Перорально введённый берберин демонстрирует низкое системное воздействие с высокой световой доступностью: у грызунов абсолютная пероральная биодоступность составляет ~0,36%–0,68%, что ограничено клиренсом первого прохода кишечника и выбросом P-гликопротеинов55,57. Микробиота кишечника может восстановить BBR до дигидроберберина — более усваиваемой формы, соответствующей траектории воздействия «сначала кишечник, печень второй»64. Эти фармакокинетические и биотрансформационные особенности позволяют BBR модулировать процессы в области кишечника и печени, которые формируют воспалительные трансдукции в печени вниз.
На границе барьера BBR смягчает неправильную локализацию ZO-1/окклудина/клаудин, вызванную эндотоксинами/провоспалительными цитокиноми, и уменьшает парацеллюлярную утечку, частично за счёт ингибирования оси NF-κB–MLCK; это косвенно снижает нагрузку на портальную LPS и синусоидальную экспозициюпечени 65. BBR также подавляет активность NF-κB в макрофагах слизистой оболочки толстой кишки и propria пластинки, снижая уровень TNF-α и IL-6 и дополнительно ослабляя каскад TLR4–MyD88–NF-κB66,67. Эти эффекты барьера и оси TLR4 преимущественно подтверждаются данными уровня 3 (животные), с ограниченной количественной оценкой прямой проницаемости в когортах MASLD человека.
В узле инфламмасомы BBR сдерживает активацию NLRP3 и пироптоз в моделях питательного/липотоксичного стресса, частично за счёт понижения модуляции оси ROS–TXNIP, интегрирующей сигналы прайминга и активации, тем самым снижая активацию каспазы-1 и высвобождениеIL-1β/IL-18 68. Хотя механистически согласованы, эти находки воспалительных сомонов остаются в основном доклиническими и требуют подтверждения на фиброз человека или конечные точки визуализации.
BBR также действует через эндокринную ось желчной кислоты (BA): ингибирование микробной гидролазы желчной соли (BSH) увеличивает количество люминально-конъюгированных BA, особенно таурохолевой кислоты, активирует подвздошенный путь FXR–FGF15 и снижает функции поглощения липидов в печени, такие как Cd36 — связывая метаболическое перепрограммирование с сниженной восприимчивостью инфламмасом12. Этот механизм BA–FXR обеспечивает биологическую правдоподобность для кросс-масштабных эффектов, но сам по себе не подтверждает клиническую эффективность.
В клинических исследованиях РКИ фазы 2 ионного комплекса берберин–урсодезоксихолата (BUDCA/HTD1801) показала значительные снижения МРТ-PDFF с сопутствующими метаболическими преимуществами по сравнению с плацебо, что соответствует трансляции между осями кишечника–BA–FXR в липотоксические/воспалительные показателипечени 14. Недавние мета-анализы сообщают о умеренных размерах эффектов на ALT/AST и стеатоз печени, при этом отмечается гетерогенность между РКИ по дозировке, формулировкам и профилям регистрации — что подчёркивает необходимость биомаркеров компаньонов и стратификации типовответа 63,69. Риски смещения включают переменное слепое, ограниченную продолжительность наблюдения и зависимость от суррогатной конечной точки. Данные по безопасности в целом положительны, но долгосрочный мониторинг гепатотоксичности и профилирование взаимодействия лекарственного вещества (например, модуляция CYP/P-gp) остаются неполностью охарактеризованными.
Для трансляционного проектирования индексы проницаемости, LBP и MRI-PDFF предоставляют рациональные маркеры компаньонов. Будущие исследования выиграли бы от заранее заданного типа ответа и отчётности о размере эффекта, стратификационных по базовой проницаемости или статусу активации инфламмасом. В целом, берберин представляет собой одно из немногих вмешательств, основанных на ТКМ, подкреплённых доказательствами на основе визуализации уровня 1, хотя и с умеренным размером эффекта, гетерогенностью между формулами и ограниченным гистологическим подтверждением. Механистические утверждения, выходящие за рамки модуляции желчной кислоты/FXR — особенно подавления инфламмасом — остаются в значительной степени доклиническими и должны рассматриваться как трансляционно правдоподобные, но пока не подтверждены клинически.
Qushihuayu (QSHY): Многоцентровые клинические и мультиомические данные вдоль оси барьер–желчная кислота–TLR4
В доклинических исследованиях QSHY и его предшественница QHD восстанавливают плотные пересечения толстой кишки и ограничивают транслокацию LPS; Толстый фосфопротеомный профиль указывает на MAPK-сигнализацию как восходящий регулятор, что соответствует последовательности «восстановление барьера → уменьшение портальной нагрузки PAMP → ослабленная печёночная TLR-сигнализация»70. На гепатоцеллюлярном уровне QHD активирует AMPK, усиливает CPT-1A-зависимое β-окисление и, следовательно, снижает липотоксический драйв и вторичные воспалительныевходы 71,72. Мультиомические анализы также показывают сопутствующее ремоделирование микробиоты кишечника и профилей липидных/метаболитных профилей сыворотки, что указывает на то, что вмешательство охватывает несколько узлов метаболического интерфейса кишечника ипечени 73. В совокупности эти результаты в основном представляют собой механистические данные уровня 3, подтверждающие биологическую правдоподобность, но не определяют клинический размер или долговечность эффекта у человека.
Клинически многоцентричное, двойное слепое, двойное фиктивное РКИ 2024 года (n=246) с использованием VCTE-LFC и ALT в качестве ко-первичных конечных точек показало, что QSHY превосходит контроль для ALT, AST и FIB-4, при этом микробиом и метаболитные сигнатуры отслеживают клинический ответ — связывая сдвиги «микробиоты–метаболитов» с показателями трансаминазы иэластографии 15, но интерпретация ограничена зависимостью от суррогатных концевых точек продолжительностью 24 недели, и возможные остаточные замешательства от совместных вмешательств в стиле жизни. Влияние на несколько конечных точек вторичной визуализации было ограниченным, а гетерогенность между субъектами (включая исходную проницаемость и воспалительные состояния) вероятно, разбавила сигнал, поддерживая стратификацию на основе проницаемости/воспаления в последующих исследованиях. Если это возможно, отчётность о сокрытии распределения, соблюдении и отклонениях протокола критически важна для контекстуализации риска смещения для наблюдаемых размеров эффектов.
Далее следуют два переводных приоритета. Во-первых, компаньонные биомаркеры и заранее определённые слои: пациенты с повышенным базовым LBP, аномальными пропорциями вторичных желчных кислот в кале или более высоким уровнем IL-1β теоретически более склонны получать выгоду от координированного ингибирования вдоль оси барьер–BA–TLR4 15. Во-вторых, качество и отслеживаемость воздействия: используйте Q-маркеры на основе отпечатков пальцев (представительные флавоноиды/фенольные кислоты) и сопоставьте их с воздействием in vivo и фармакодинамическими эффектами. Учитывая формульный характер QSHY, согласованность между партиями и прозрачная характеристика активных фракций являются необходимыми условиями для сопоставимости перекрёстного исследования и разработки нормативногоуровня 74,75. Комбинационные стратегии анатомически и механистически взаимодополняют — ресметиром преимущественно нацелен на гепатоцеллюлярную обработку липид/фиброз, тогда как агонисты рецепторов GLP-1 действуют на вес и инсулинорезистентность — что делает совместную разработку с QSHY рациональным путём к более широкому охватуответа 76,77. Такие комбинации следует оценивать с учётом заранее заданного мониторинга безопасности и документации по терапии с учётом взаимодействия, особенно если сопутствующие метаболические препараты распространены в когортах MASLD/MASH. В итоге QSHY подтверждается доказательствами уровня 1 для биохимических и эластографических результатов, однако масштаб и долговечность его эффекта ещё предстоит подтвердить в более длительных, ориентированных на визуализацию или гистологических исследованиях. Большинство заявлений о механистическом отображении узлов остаются уровня 3, и продвижение в области регулирования будет зависеть от стандартизации и воспроизведения между независимыми когортами.
Отвар Da-Chai-Hu (DCHD): поддержание сосудистого барьера кишечника и восстановление перекрёстной связи PPARα/AMPK–NF-κB
DCHD улучшает липиды, инсулинорезистентность и гистологию печени в моделях HFD-MASLD, сопровождаясь ремоделированием микробиоты кишечника и метаболома сыворотки, что соответствует координированному действию на восходящем барьере и внутрипеченочном иммунометаболическихузлах 16,78. На «втором барьере», сосудистом барьере кишечника (GVB), DCHD сохраняет эндотелиальную целостность при перегрузке питательными веществами в моделях взаимодействия кишечника и печени, снижает портальный поток патогенных молекул и уменьшает события транслокации печени, подчёркивая пластичность PLVAP/PV-1 и эндотелиальных соединений; хотя получены в контексте метастазирования кишечника и печени, эти результаты обеспечивают механистическую поддержку стабилизации GVB уровня 3 и мотивируют тестирование в условиях, соответствующих MASLD, с конечными точками, связанными с проницаемостью и эндотоксином. В печёночном сигнальном центре эффекты DCHD совпадают с модуляцией на пересечении PPARα/AMPK–NF-κB, что указывает на влияние на иммунометаболическую связь науровне системы 79. В целом, текущие данные по ДХДС остаются преимущественно доклиническими и генерирующими гипотезы, с ограниченным количеством данных уровней 1–2, напрямую связанными с результатами, соответствующими путям.
Что касается доказательной силы, систематический обзор 2024 года показывает общую пользу ДХДС для трансаминазов, липидов и некоторых показателей визуализации, при этом подчеркивая ограничения качества исследований и гетерогенности конечных точек; Доступные клинические исследования имеют разнородный дизайн, часто опираются на суррогатные конечные точки и предоставляют ограниченные многоуровневые отчетности (МРТ-PDFF/ELF/MRE), ограничивая выводы о размере и долговечностиэффекта 80. Опасения риска предвзятости включают сокрытие вариативного ослепления/распределения, контроль фоновой терапии и неполное отчёт о соблюдении и утечке, что усложняет сопоставимость между исследованиями. Следующий трансляционный этап — это механизмно-обогащённая РКИ, которая двойно нацеливается на конечные точки GVB и эпителиального барьера — например, фекально/сывороточную проницаемость, эндотоксинные маркеры плюс PDFF/ELF — и перспективно обогащает участников высокой портальной нагрузкой PAMP, увеличивая вероятность выявления клинической пользы, согласованной с путями,на 80. Учитывая вероятность появления сопутствующих метаболических препаратов (например, статинов, метформин) в когортах MASLD/MASH, в проектирование исследования следует включить документацию с учётом взаимодействия и заранее определённый мониторинг безопасности. В совокупности DCHD в настоящее время в основном опирается на механистические данные уровня 3 и гетерогенные клинические сигналы. Её позиционирование как вмешательства, модулирующего GVB, биологически согласовано, но остаётся клинически временным до подтверждения человеческой конечной точки в соответствии с путями.
Полисахариды из традиционной китайской медицины (Astragalus, Ganoderma): усиление слизистого иммунитета и координированное подавление TLR4–NF-κB–NLRP3
Полисахариды ТКМ преимущественно подвергаются световому воздействию и поэтому хорошо подходят для взаимодействия с иммунным барьером слизистой слизистой и перекрёстным контактом между микробиотой и метаболитом. Полисахариды Astragalus (APS) ремоделируют гомеостаз желчно-кислотной и связь микробиоты–BA в моделях HFD-MASLD, улучшая показания стеатоз печени и воспалительные заболевания и показывая активность через мост «барьер–BA–печень» 18,81. Полисахариды ганодермы повышают секреторный уровень IgA, восстанавливают клетки кубка и плотные соединения, а также повышают транскрипты TLR2/4/6 в условиях иммуносупрессии, что соответствует «снижению шума» при снижении иммунитета и барьера слизистой слизистой — TLRтона 82. Внутри печени полисахариды ганодермы подавляют инфламмасому NLRP3 и снижают выброс IL-1β/IL-18, что способствует прерыванию релей пироптоз–фиброз 17. Недавний синтез каталогизировал многомерные механизмы, при которых полисахариды улучшают MASLD через ось кишечника–печень, и предложил стандарты определения Q-маркеров и картирования экспозиции-эффект83. В совокупности эти данные преимущественно представляют собой доказательства уровня 3 (доклинические); надёжные исследования на людях уровней 1–2 с конечными точками, центрированными на визуализацию или фиброз, остаются ограниченными.
Ряд ограничений требуют уточнения. Большинство исследований с полисахаридами остаются доклиническими или ранними фазами; Гетерогенность производства и распределение молекулярной массы сильно различаются, и достижимые концентрации in vivo с консистенцией от партии к партии являются повторяющимися узкими местами. Эта гетерогенность усложняет воспроизводимость, поскольку термин «полисахарид» часто означает смесь с переменным спектром молекулярного веса, чистотой и биоактивностью в разных препаратах. Нейтральные результаты по визуализации или воспалительным конечным точкам возникают и, вероятно, обусловлены различиями в формулировках, неоптимальной длительностью и сопутствующими препаратами. Соответственно, следует сообщать и включать отрицательные или нейтральные результаты для снижения предвзятости публикаций и переоценки эффективности. Для клинической трансляции схема ответа, доминирующего барьером — повышенная проницаемость, высокий LBP и низкий sIgA на исходном уровне — в сочетании с многоуровневыми конечными точками (sIgA/микробиота/SCFAs → рДНК LBP/16S → MRI-PDFF/ELF) обеспечивает аудитируемую цепочку атрибуции, тогда как отпечатки пальцев с полисахаридами и спектры молекулярного веса могут служить примитивами Q-маркеров, согласованными с воздействием и фармакодинамическимиэффектами 84,85. Кроме того, химическая и структурная характеристика (например, состав моносахаридов, профилирование гликозидных связей и распределение молекулярной массы) может усилить прослеживаемость и стандартизацию регуляторного уровня, выходящую за пределы грубых измерений «содержанияполисахаридов» 86,87. Комбинированные стратегии с агонистами рецепторов ресметиром или GLP-1 механистически комплементарны: первая делает акцент на обработке гепатоцеллюлярных липидов и показания фиброза, а вторая — вес и инсулинорезистентность 74,88,89. Такие комбинации следует оценивать с заранее заданным мониторингом безопасности и тщательной документацией по фоновой терапии, особенно в популяциях, получающих несколько метаболических агентов.
В четырёх классах вмешательств якорные узлы вдоль позвоночника барьера — TLR4–NLRP3 — различаются, но сходятся в потоке доказательств — от фармакокинетики и места действия через мультиомические показания до конечных точек популяции. Берберин действует за счёт высокого воздействия кишечника и сигнализации BA–FXR; QSHY обеспечивает скоординированное управление по оси барьер–желчная кислота–TLR4; DCHD устанавливает двойную защиту в области ГВБ и эпителиального барьера с иммунометаболической ренастройками; Полисахариды снижают исходящий шум в цепях слизистого иммунитета–барьер–инфламмасом. Повышение механистических маркеров (проницаемость/LBP, sIgA, профили BA, IL-1β/IL-18) вместе с многоуровневыми конечными точками визуализации (MRI-PDFF и ELF/MRE, где это возможно) до заранее заданных стратификаторов может повысить интерпретируемость и снизить гетерогенность; Внедрение этих данных в контроль качества, основанный на Q-маркерах, и связь экспозиции-эффект крайне важно для воспроизводимости и нормативной трансляции. Будущие исследования должны фиксировать иерархические конечные точки, которые сочетают барьерные/GVB-индексы с МРТ-PDFF/ELF/MRE и априори обогащают подгруппы «высокой проницаемости–воспаление» для уточнения пути сигнала к результату. Таким образом, хотя полисахариды демонстрируют убедительную иммуномодуляционную когерентность между барьерными и инфламмасомными узлами, существующая база доказательств остаётся в основном доклиническим. Клиническая валидация с использованием стандартизированных препаратов, воспроизводимых Q-маркеров и многоуровневых конечных точек визуализации необходима для принятия окончательных выводов об эффективности.
Во всех интервенциях доказательная сила неравномерна. Формулы на основе берберина в настоящее время обладают наиболее сильными данными, поддерживаемыми изображениями человека, тогда как QSHY демонстрирует появляющуюся многоцентровую поддержку РКИ, преимущественно для суррогатных конечных точек. DCHD и полисахариды остаются механически согласованными, но преимущественно подкреплены доклиническими или гетерогенными клиническими данными. Эта асимметрия подчёркивает важность структурированного градирования, репликации и стандартизированных формулировок до выдвижения широких трансляционных утверждений (см. таблицу 2).
| Класс интервенции | Основные узлы на позвоночнике | Ключевые механистические заявления | Сообщаемые трансляционные показания в оригинальных исследованиях | Статус человеческих доказательств | Уровень доказательств | Репрезентативные исследования |
| Формула на основе берберина / берберина (HTD1801/BUDCA) | Барьер/BA–FXR; Ниже TLR4/NLRP3 (в основном доклинический) | Микробное ингибирование BSH → ↑тауро-конъюгированный BA (например, TCA) → активация подвздошной FXR–FGF15 → ↓patic Cd36; Предлагаем ослабление барьера/оси TLR4 и ограничение инфламмасом | Визуализация: МРТ-PDFF; Биохимические: ALT/AST, метаболические параметры; Механистические: мишени подвздошной FXR/FGF15, профили BA | Плацебо-контролируемое РКИ фазы 2 с уменьшением МРТ-PDFF (плюс метаболические исходы) | Уровни 1–2 для конечных точек визуализации и биохимии; Уровень 3 для утверждений о воспалениях | Харрисон, et.al, 202114; Sun, et.al, 2017,12; Неджати, et.al, 2022,62; Ние, et.al, 202463 |
| Кушихуаю (QSHY) / прародитель QHD | Барьер; Метаболическая настройка, связанная с BA/AMPK; Ось TLR4 (механистическая) | восстановление TJ и уменьшение транслокации LPS; Регуляция, связанная с MAPK, восходящая по потоку (доклинический); AMPK/CPT-1A-связанный FAO и метаболическое перепрограммирование; Ремоделирование микробиоты и липидома | Человек: ALT/AST, FIB-4; VCTE-LFC (совместно с ALT); реакция отслеживания микробиома/метаболитных сигнатур; Доклинические: показания AMPK/CPT-1A/FAO; Микробиом + липидомические сдвиги | Многоцентровое двойное слепое, двойное фиктивное РКИ с совместными первичными концами (VCTE-LFC + ALT), суррогаты вторичного фиброза | Уровень 1 для суррогатных клинических конечных точек + ассоциация омиксов; Уровень 3 для претензий механистических узлов | Лю, et.al, 202415; Фэн, et.al, 2013,71; Вс, et.al, 202272 |
| Отвар Да-Чай-Ху (DCHD) | GVB; барьер выше по течению; PPAR/AMPK–NF-κB (доклинический) | Сохраняет целостность GVB (связан с PLVAP/PV-1) при гиперпитании; снижает события потока и транслокации порталов; улучшает метаболический и воспалительный фенотип в моделях НАЖБП | Доклинические: гистология, измерения липидов/ИК; микробиота кишечника + сывороточная метаболомика; Маркеры целостности GVB (PLVAP/PV-1) | Клинические доказательства в основном основаны на гетерогенных исследованиях, суммированных в систематическом обзоре; Ограниченные конечные точки уровня изображения | Преимущественно уровень 3; Клинические сигналы гетерогенны | Цуй, et.al, 202016; Ван, et.al, 202378; Мо, et.al, 202480 |
| Полисахариды ТКМ (Astragalus, Ganoderma) | Слизистый иммунитет/барьер; TLR4–NF-κB; NLRP3 (в основном доклинический) | Усиление барьера (белки TJ), модуляция слизистой иммунной системы (sIgA); снижение эндотоксии; сообщается о сдерживании воспаления; Соединение микробиоты/BA в моделях NAFLD | Доклинические: белки TJ (ZO-1/окклюдин), sIgA, цитокины; состав микробиоты кишечника; гомеостаз BA (включая показания, ориентированные на пути BA); Печень: маркеры инфламмасом (IL-1β/IL-18/NLRP3 в моделях травм) | Ограничены надёжные исследования, основанные на человеческой визуализации/фиброзе; Доказательства в основном механистические/доклинические | Преимущественно уровень 3 | Чжэн, et.al, 202418; Йинг, et.al, 2020,82; Чжун, et.al, 202249 |
Таблица 2: Репрезентативные вмешательства, отображённые по оси барьер–TLR4–NLRP3, и представленные трансляционные показания.
Биомаркеры и типирование реакции, закреплённые на иммунном позвоночнике кишечника и печени
Минимальная панель биомаркеров и определения порогов
Операционализация позвоночника «barrier–TLR4–NLRP3» требует минимальной, in vivo повторяемой панели, которая отслеживает с визуализацией и клиническими конечными точками. Для молекулярной нагрузки, полученной из кишечника, систематический обзор и метаанализ показывают, что циркулирующий липополисахарид повышается по спектру от MASLD до MASH и прогрессирующего фиброза, что подтверждает его использование для стратификации и в качестве показаний проксимального воздействия 1,90,91. Поскольку количественная оценка LPS методологически неоднородна, в исследованиях обычно используют белки, связывающие LPS, и растворимый CD14 (sCD14) в качестве суррогатных матерей; оба коррелируют с активностью ЛПС, но не имеют специфичности и чувствительны к флуктуациям после обеды, что отстаивает парный исходный уровень натощак и стандартизированный послеобеденный отбор с явным отчётом времени и интерпретативнымиоговорками 1,92. Кроме того, структурное разнообразие липида A изменяет пороги, вызывающие TLR4, поэтому при сравнении кросс-исследований следует указывать формат источника и анализа LPS, чтобы избежать смещения «одного имени, разной молекулы» 93.
Соответственно, в клинических исследованиях, ориентированных на ТКМ, выбор биомаркеров должен отдавать приоритет воспроизводимости анализов и сопоставимости между когортами над теоретической полнотой, а методологическая прозрачность должна сопровождаться всеми показаниями воздействия.
Профилирование желчной кислоты даёт окно для дисрегуляции BA–FXR/TGR5. В МАШ кал и плазма общая концентрация BA и специфические виды (например, холиновая кислота, хенооксихолиновая кислота) часто повышены и ассоциируются со стадием фиброза и инсулинорезистентностью, что поддерживает подтип 94, доминирующий «BA–FXR». В плазме 7α-гидрокси-4-холестен-3-один (C4) отражает синтез BA и обычно обратно отслеживает обратную связь FXR–FGF19 по подвздошной системе; показания, интегрирующие FGF19 с C4, помогают определить динамический статус FXR и могут использоваться для оценки отзывчивости на вмешательства, направленные на BA–FXR, 95, 96, 97. Для короткоцепных жирных кислот (SCFA) ассоциации со стеатозом и фиброзом направно зависят от питания и экологии; Сочетание каловых или плазменных SCFA с метагеномными функциональными возможностями (биосинтетические пути SCFA) и показаниями рецепторов (GPR41/43) улучшает внешнюювалидность 98.
Поскольку измерения BA и SCFA чувствительны к питанию пищи, экологии микробиома и вариативности платформы LC-MS, заранее определённые протоколы отбора проб и аналитические конвейеры необходимы, если эти маркеры должны служить сопутствующими биомаркерами в испытаниях ТКМ.
Прямые меры «проницаемости» остаются нерешёнными. Человеческий зонулин соответствует пре-гаптоглобин-2, однако часто используемые ИФЗП не обладают специфичностью и могут перекрестно реагировать с пропердином или другими представителями «зонулинового семейства», приводя к нестабильным результатам в когортах; Зонулин лучше всего рассматривать как исследовательский метод и перекрестную валидацию с помощью теста функциональной проницаемости или барьерных транскрипционных сигнатур для минимизации ложноположительныхрекомендаций 99,100. Молекулярные доказательства бактериальной транслокации (циркулирующая или печёночная рДНК 16S) по своей природе низкая биомасса и подвержена реагентам и пакетному загрязнению; Строгие отрицательные контроли и конвейеры дезактивации обязательны, а причинно-следственная интерпретация должна быть осторожной даже при выявлении различий в метаболических/ожиренных тканяхпечени 101.
Пороговые показания визуализации и фиброза обеспечивают стандартизированные элементы «запуск/нет». Относительное снижение МРТ-PDFF на ≥30% коррелирует с гистологической реакцией (улучшение NAS/разрешение MASH) и подходит для промежуточного принятия решений на 4–12 недель и планирования размеравыборки 102,103. Повышенные пороги фиброза печени (ELF) в составе 9,8 и 11,3 поддерживают долгосрочную стратификацию рисков и триггеры наблюдения. Жёсткость печени при магнитно-резонансной эластографии (MRE) около 3,3 кПа в сочетании с FIB-4 ≥ 1,6 согласно правилу MEFIB, обогащает фиброз ≥F2 с высокой уверенностью по когортам, позволяя быстро выявлять группы с высоким риском и направлять набор104. Для развития ТКМ сочетание проксимальных иммунных маркеров (например, LBP, IL-1β) с многоуровневыми порогами визуализации обеспечивает иерархическую структуру, снижающую зависимость только от биохимических суррогатных материнских матерей.
Типирование реакции, закреплённое на иммунном позвоночнике
Используя последовательность «epithelium/GVB → LPS–TLR4–NF-κB → NLRP3» в качестве основы организации, MASLD/MASH можно оперативно разбить на три подтипа, сопоставимые с помощью вмешательства. Фенотип, доминирующий барьером, характеризуется повышенным голоданием или стандартизированным постпрондиальным LBP/sCD14, переходом к более высоким соотношениям первичной и вторичной желчной кислоты и дисбалансом иммунного слизистого. Визуализация обычно показывает высокий уровень МРТ-PDFF при том, что MRE/ELF всё ещё находится в диапазонах низкого и промежуточного риска, что отдаёт предпочтение стратегиям первой линии, укрепляющей целостность эпителия и GVB, ремоделированию микробиоты и нормализации пула желчных кислот; ранний ответ лучше всего оценивается по совместному снижению LBP/sCD14 вместе с уменьшениемPDFF на 1,92.
Этот подтип особенно актуален для стратегий ТКМ, акцентирующих внимание на стабилизации барьера и ремоделировании микробиоты (например, полисахариды или формулы, похожие на QSHY), и обеспечивает рациональную основу для обогащения в исследованиях, направленных на барьеры. Фенотип с доминированием инфламасомы характеризуется повышенным уровнем IL-1β в крови или печени, положительными сигнатурами NLRP3 и пироптоза (GSDMD-N) на уровне транскрипта/белка, а также соответствующим ухудшением показаний фиброза. Человеческие ткани и животные модели показывают, что GSDMD-N увеличивается с активностью заболевания и фиброзом, а селективное ингибирование NLRP3 снижает воспаление печени и фиброз, при этом оказывая ограниченное влияние на стеатоз — что подчёркивает риск несоответствия, при котором снижение жира не означает воспалительное/фиброзное улучшение. В этом подтипе сочетание блокады NLRP3–каспаза-1–IL-1β с метаболическим перепрограммированием, управляемым AMPK/Nrf2, может повысить вероятностьответа 7,36.
В контексте ТКМ этот фенотип механистически совпадает с агентами, которые, как сообщается, модулируют сигнализацию инфламмасом (например, BBR, APS), и подчёркивает риск того, что «только жирные» конечные точки могут не зафиксировать пользу, согласованную с путями. Дисрегулированный фенотип BA–FXR характеризуется аномальным составом кал/плазмы BA и нарушением динамики FGF19/C4, что указывает на нефизиологическое состояние контура BA–FXR/TGR5 кишечника–печени. Помимо барьерных/микробиотных мер, этот подтип требует чёткой оценки отзывчивости и запасов безопасности FXR/TGR5; Эффективность должна оцениваться по физиологической переориентации профилей БА вместе с соответствующими улучшениями в PDFF и MRE94,95. Для вмешательств ТКМ, влияющих на желчнокислотные бассейны или активность FXR, этот подтип предлагает биологически согласованную стратегию обогащения при условии мониторинга запасов безопасности и внецелевых эффектов желчных кислот.
Стратифицированное выравнивание и продольный контроль
Для перевода механизма → биомаркеров → исходов на индивидуальном уровне рекомендуется использовать трехпунктовую схему: исходный → промежуточный (4–12 недель) → результат (≥24–48 недель). Исходное исследование должно включать минимальную панель (LBP/sCD14, профилирование BA и — если это информативно — SCFA и тщательно деконтаминированную 16S рДНК), визуализацию с помощью МРТ-PDFF/MRE и классификацию рисков (например, MEFIB), с заранее заданными общими и специфическими для подтипов вторичными конечными точками, полученными из трёхклассовойсхемы 105. В промежуточном времени МРТ-PDFF функционирует как сигнал «запуск/нет»: относительное снижение на ≥30% в течение 4–12 недель, сопровождаемое синхронным снижением LBP/sCD14, свидетельствует о эффективном задействии барьерной руки. Если PDFF снижается, но IL-1β/GSDMD-N или ELF/MRE не улучшаются, этот паттерн указывает на несоответствие между инфламасомами и должен вызвать добавление или переход к стратегиям, направленным на NLRP3–каспазу-1102,103.
В окне исхода приоритет уделяется МРЭ/ЭЛФ и клиническим конечным точкам в течение ≥24–48 недель для фиксации динамики фиброза; Пороги ELF 9,8/11,3 и MRE гейт около 3,3 кПа — в сочетании с FIB-4 ≥1,6 в правиле MEFIB — поддерживают рестратификацию риска и рассмотрение событий104. В поддержку возможности стратификации рисков, основанных на мультиомиках, недавнее исследование фекального микробиома и метаболома цирроза выявило микробные и метаболические сигнатуры, зависящие от осложнений, с хорошей диагностической эффективностью и корреляцией с клиническими маркерами, иллюстрируя, как омиксы, полученные из кишечника, могут быть связаны с клинически значимымирезультатами 78. Для анализов с низкой биомассой необходимо раскрывать отрицательные контроли и трубопроводы для дезактивации; Зонулин должен оставаться исследовательским и подвергаться перекрёстной валидации с помощью тестов функциональной проницаемости или эпителиальных барьерных сигнатур, чтобы избежать ложноположительныхрекомендаций 101.
В рамках этой системы минимальная панель биомаркеров и многоуровневые пороги визуализации лежат в основе согласованной системы типирования и последующего наблюдения ответов. Классы, доминирующие по барьеру, инфламасома доминирующие и BA–FXR-дисрегулированные классы соответствуют практическим стратегиям — защита эпителиевых/GVB с ремоделированием микробиоты и BA; ингибирование NLRP3–каспазы-1 с метаболической перестройкой; и модуляция FXR/TGR5 соответственно — с валидацией через координированные изменения в LBP/sCD14, профилях BA, IL-1β/GSDMD-N и MRI-PDFF/MRE/ELF. Таким образом, иммунный позвоночник превращается в тестируемые критерии «кто получает выгоду», которые определяют временные правила остановки, обогащение и наблюдение в рамках 1103-го испытания. Явно связывая подтип, класс вмешательства и иерархические конечные показатели, иммунный позвоночник превращается в проверяемые критерии «кто получает выгоду», которые могут повысить эффективность исследований, снизить гетерогенность и усилить причинную атрибуцию в исследованиях ТКМ.
Иллюстративные, протокольные, рабочие примеры для дизайнов с биомаркерами
Для повышения реализуемости предлагаемых концепций биомаркера и адаптивного проектирования мы предлагаем два примера на уровне протокола, основанных на опубликованных проектах испытаний и проверенных порогов визуализации/биомаркеров, а не с гипотетическим выбором параметров. Цель — показать, как механистическое подтипирование может быть операционализовано с помощью заранее заданных конечных точек, промежуточных правил принятия решений и воспроизводимых анализов.
Работал пример 1: исследование с барьерно-обогащённой формулой (QSHY) с изображением и показанием фиброза.
Практическая реализация схемы барьерно-доминантной может использовать существующую многоцентровую, двойно слепою, двойную фиктивную рандомизированную схему исследования Qushi Huayu (QSHY) в популяциях с НАЖБП, которая использовала ко-первичные конечные точки, согласованные с содержанием жира печени с помощью вибрационной транзиентной эластографии и ALT на 24-й неделе. Обогащённый протокол мог бы заранее определить критерии входа при базовом стеатозе с помощью МРТ-PDFF (например, ≥10%) и повышенного барьерно-связанного воздействия (LBP и/или sCD14 выше верхнего третиля/квартиля скринингованной когорты), сохраняя при этом ту же структуру ослепления и компаратора для осуществимости и интерпретации15. Промежуточное решение на 12-й неделе будет использовать MRI-PDFF в качестве ворот: относительное снижение ≥30% определяется как ранний сигнал ответа на основе метааналитических данных, связывающих этот порог с гистологическим откликом и разрешениемNASH 102 , а также с коэффициентами регрессиифиброза 103. Участники продолжали бы до 24–48 недель с приоритетом, ориентированным на фиброз (ELF и/или MRE), используя установленные прогностические страты ELF (например, <9.8 против ≥11.3) для переклассификации риска и интерпретацииисходов 104. Если требуется обогащение фиброза, правило MEFIB (MRE ≥3,3 кПа плюс FIB-4 ≥1,6) может быть заранее заданно на исходном уровне либо как страта допустимости, либо как ключевая подгруппа для усиления мощности для вывода, релевантного кфиброзу, 105. Компаньонные биомаркеры (LBP/sCD14, исследовательский IL-1β/GSDMD-N) будут собраны на исходном этапе и на 12-й неделе для проверки вовлечения путей и поддержки механистической интерпретации диссонантных траекторий визуализации и биохимических процессов.
Рабочий пример 2: исследование интервенции, обогащённое BA–FXR (формула на основе берберина) с PDFF-гейт-гейтом и метаболическими ко-конечными точками.
Внедрение BA–FXR-дисрегулированное применение может быть связано с плацебо-контролируемым испытанием берберина урсодезоксихолата (HTD1801/BUDCA), которое показало значительное снижение МРТ-PDFF наряду с метаболическими улучшениями при предполагаемом NASH при сахарномдиабете 2 типа 14. Реализуемый протокол предварительно определял бы обогащение по оси BA, используя базовые профили BA и/или динамику FGF19–C4 (как описано в рукописи), при этом сохраняя MRI-PDFF как основную конечную точку ранней визуализации. Промежуточный гейт на 12–18 недель может вновь принять относительный порог снижения PDFF ≥30% для поддержки решений по разрешению/отклонению и планирования размера выборки, что соответствует данным ранних фаз102. Поскольку клинические сигналы с продуктами берберина демонстрируют гетерогенность — включая РКИ, сообщающие о нейтральном воздействии на печёночные ферменты, и метаболические показатели в подмножествах НАЖБП — протоколы должны заранее определять типизацию ответа и планировать анализ гетерогенности, а не рассматривать нулевые сигналы как пост-хоксюрпризы 62. Недавний мета-анализ также выявил вариабельность между испытаниями берберина в формуле, дозе и профилях пациентов, что подтверждает необходимость использования компаньонных биомаркеров и стратифицированнойинтерпретации 63. Мониторинг безопасности следует определить проспективно с особым вниманием к переносимости желудочно-кишечного тракта и потенциалу взаимодействия лекарственного препарата в метаболически обработанных когортах, в соответствии с негативными событиями, описанными в исследовании HTD1801года 14.
Шаблон реализации: упрощённый биомаркерный MAMS
Прагматичный многоступенчатый подход можно оформить как три заранее определённых, клинически знакомых ворота, а не как высокопараметризованную адаптивную платформу: Этап 1 выбирает вмешательства по раннему ответу на печеночный жир (МРТ-PDFF ≥относительное снижение на 30%) с использованием основанных на доказательствах102; Этап 2 оценивает динамику фиброза с помощью ELF и/или MRE (с опциональным обогащением MEFIB) в течение 24–48 недель104 105; Третий этап подтверждает долговечность с заранее заданным композитным результатом и профилем безопасности. Отчётность должна следовать Adaptive Designs CONSORT Extension (ACE) для обеспечения прозрачности заранее запланированных адаптаций, правил остановки и контроля ошибок типаI 106. Этот «шаблон исполнения» сохраняет реализовать фреймворк, сохраняя при этом механистическое обогащение с помощью сопутствующих биомаркеров (LBP/sCD14, BA/FGF19–C4, IL-1β/GSDMD-N).
Выводы
По непрерывной последовательности эпителиального и кишечного сосудистого барьера, портального молекулярного притока, амплификации TLR4–NF-κB и пироптоза, опосредованного NLRP3, современные данные определяют архитектуру иммунометаболического заболевания для MASLD/MASH. Реорганизация эпителиальных плотных соединений вместе с утечкой GVB снижает порог активации синусоидального врождённого иммунитета; Входы, полученные из кишечника — LPS, эндогенный этанол и неупорядоченные профили желчных кислот — затем обрабатываются печеночным TLR4 и распространяются через воспалительные каскады, в конечном итоге сходясь на сигналы NLRP3–каспаза-1–IL-1β/IL-18, вызывая воспаление ифиброз 26,27,33. Этот позвоночник иерархически связан с цепями BA–FXR/TGR5, SCFA–GPR41/43 и AMPK/Nrf2, что обеспечивает двунаправленную настройку между метаболизмом и иммунитетом 9,10. В этом биологическом контексте многоцелевые природные агенты позволяют «коаксиальное» вмешательство в барьеры, рецептор–сигнальные узлы и метаболические пороги: берберин, ингибируя бактериальный BSH, ремоделируя желчнокислотный бассейн и активируя ось подвздошной FXR–FGF15, осуществляет низкий системный контроль внутрипеченочных иммунометаболических показателей и снижает МРТ-PDFF в фазе 2 испытания его ионногокомплекса 12,13. Терапии на основе формул и полисахаридов добавляют трансляционные сигналы для восстановления барьера и сдерживания инфламмасом15,17. Вместе ось кишечник–печень обеспечивает практическую основу для выравнивания механизмов, биомаркеров и клинических конечных точек в одной системе передач.
Преобразование этих знаний в результаты требует трёх ключевых изменений. Во-первых, необходимы прямые доказательства на людях в пользу GVB и воспроизводимые функциональные показания. Комплексные показатели, отражающие координированное нарушение эпителий–эндотелий — временные серии профилирования натощак и стандартизированное пост-прондиальное LBP/sCD14, связанное с динамикой синтеза желчных кислот FGF19/C4 и подвздошной обратной связью — встроенные в продольную визуализацию и клиническое наблюдение, установят проверенную цепочку «барьера → воздействия →органов» 26,27. Во-вторых, переходы между мультиомиками и многоуровневыми конечными точками должны быть чётко выражены: проспективная метагеномика/транскриптомика с плазменными и фекальными спектрами BA и SCFA, согласованными с порогами визуализации — ≥30% относительного снижения МРТ-PDFF на 12–24 неделе как промежуточный гейт, и MRE (~3,3–3,5 кПа) с ELF (9,8/11,3) на 24–48 неделе для фиброза и прогностической стратификации — чтобы механистические сигналы занимали тот же диапазон, что и структурные и результатныепоказатели 102, 105. В-третьих, гипотезы стратификации должны быть заранее определены и поддаются фальсификации: люди в верхнем квартиле натощак или стандартизированного постпрондиального LBP/sCD14 должны иметь более вероятность достижения ≥30% снижения PDFF при скоординированной защите от барьера/GVB и нормализации микробиоты–BA, сопровождаемой согласованным снижением LBP/sCD14; у тех, у кого повышены сигнатуры IL-1β или NLRP3/пироптоза (GSDMD-N), преимущественно должны проявлять улучшение ELF/MRE при связи блокады NLRP3–каспазы-1 с ренастройками AMPK/Nrf2; Опора только на барьерные стратегии в биологии, доминирующей инфламасомой, рискует привычным несоответствием снижения стеатозабез фиброза 1,7,102.
Методологически многоступенчатые и биомаркерно-ориентированные адаптивные конструкции могут повысить эффективность и воспроизводимость в многомеханизмных программах. Начальная стадия, ограниченная снижением ≥30% МРТ-PDFF, может сортировать низковероятностные группы; вторая стадия, включающая ELF/MRE, может обновлять рандомизацию внутри барьерно-доминантных, инфламмасом-доминантных и BA–FXR-дисрегулированных слоёв; Третий этап может оценивать 48-недельные композитные клинически-визуализационные результаты. Пороги выхода, правила остановки и распределение α должны быть заранее зарегистрированы и прозрачно сообщаться; Анализы с низкой биомассой (например, циркулирующие или тканевые рДНК 16S) требуют строгого отрицательного контроля и конвейеров дезактивации, а Q-маркеры должны обеспечивать согласованность и прослеживаемость партий по материальной основе, экспозиции in vivo и фармакодинамическиепоказатели 101,106. Интеграция барьерно-врожденного иммунитета–метаболического позвоночника с заранее определёнными слоями, иерархическими конечными точками и адаптивными исследованиями позволяет перевести многоцелевые вмешательства от доказательства концепции к долгосрочной пользе в определённых популяциях, освещая биологическую гетерогенность в MASLD/MASH и предоставляя операционную основу для точной и переводимой комбинированной терапии.
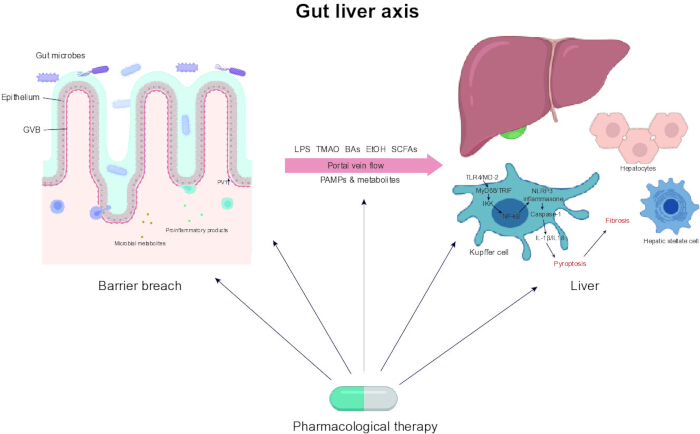
Рисунок 1: Графический аннотация оси кишечника–печени в MASLD/MASH. Эта диаграмма обобщает ключевые механизмы и терапевтические последствия оси кишечника и печени при MASLD и её прогрессирование в MASH. В ней показано, как вещества, производящиеся из кишечника (например, LPS, BAs, SCFAs, TMAO) транслируются в печень через воротную вену при нарушении кишечного барьера, активируя иммунные ответы (например, TLR4–NF-κB, воспаление NLRP3), которые вызывают воспаление, повреждение гепатоцитов и фиброз. В рамках также выделены многоцелевые терапии, лежащие в основе стратегии стратифицированного вмешательства при MASLD/MASH, ориентированной на биомаркеры. Сокращения: MASLD = связанное с метаболической дисфункцией стеатозное заболевание печени; MASH = стеатогепатит, связанный с метаболической дисфункцией; LPS = липополисахарид; BA = желчные кислоты; SCFAs = короткоцечечные жирные кислоты; TMAO = триметиламин-N-оксид; TLR4 = Толл-подобный рецептор 4; NF-κB = ядерный фактор каппа B; NLRP3 = белок NOD-, LRR- и пирин-домен 3. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
Раскрытие информации
У авторов нет конфликтов интересов, которые нужно раскрывать.
Благодарности
Эта работа была поддержана Программой науки и технологий традиционной китайской медицины провинции Чжэцзян (No 2024ZL1181) и Муниципальной программой науки и технологий Цзиньхуа, Ключевой проект социального развития (No 2024-3-071).
Ссылки
- Soppert, J., et al. Blood endotoxin levels as biomarker of nonalcoholic fatty liver disease: a systematic review and meta-analysis. Clin Gastroenterol Hepatol. 21, 2746-2758 (2023).
- Yuan, J., et al. Fatty liver disease caused by high-alcohol-producing Klebsiella pneumoniae. Cell Metab. 30, 675-688.e7 (2019).
- Sharifnia, T., et al. Hepatic TLR4 signaling in obese NAFLD. Am J Physiol Gastrointest Liver Physiol. 309, G270-G278 (2015).
- Miura, K., Yang, L., van Rooijen, N., Ohnishi, H., Seki, E. Hepatic recruitment of macrophages promotes nonalcoholic steatohepatitis through CCR2. Am J Physiol Gastrointest Liver Physiol. 302, G1310-G1321 (2012).
- Seki, E., et al. TLR4 enhances TGF-beta signaling and hepatic fibrosis. Nat Med. 13, 1324-1332 (2007).
- Wree, A., et al. NLRP3 inflammasome activation results in hepatocyte pyroptosis, liver inflammation, and fibrosis in mice. Hepatology. 59, 898-910 (2014).
- Mridha, A. R., et al. NLRP3 inflammasome blockade reduces liver inflammation and fibrosis in experimental NASH in mice. J Hepatol. 66, 1037-1046 (2017).
- Ioannou, G. N., et al. Genetic deletion or pharmacologic inhibition of the Nlrp3 inflammasome did not ameliorate experimental NASH. J Lipid Res. 64, 100330(2023).
- Neuschwander-Tetri, B. A., et al. Farnesoid X nuclear receptor ligand obeticholic acid for non-cirrhotic, non-alcoholic steatohepatitis (FLINT): a multicentre, randomised, placebo-controlled trial. Lancet. 385, 956-965 (2015).
- Thomas, C., et al. TGR5-mediated bile acid sensing controls glucose homeostasis. Cell Metab. 10, 167-177 (2009).
- Gao, W., et al. Dissecting the crosstalk between Nrf2 and NF-κB response pathways in drug-induced toxicity. Front Cell Dev Biol. 9, 809952(2021).
- Sun, R., et al. Orally administered berberine modulates hepatic lipid metabolism by altering microbial bile acid metabolism and the intestinal FXR signaling pathway. Mol Pharmacol. 91, 110-122 (2017).
- Tian, Y., et al. Berberine directly affects the gut microbiota to promote intestinal farnesoid X receptor activation. Drug Metab Dispos. 47, 86-93 (2019).
- Harrison, S. A., et al. A phase 2, proof of concept, randomised controlled trial of berberine ursodeoxycholate in patients with presumed non-alcoholic steatohepatitis and type 2 diabetes. Nat Commun. 12, 5503(2021).
- Liu, Q., et al. Efficacy and safety of Qushi Huayu, a traditional Chinese medicine, in patients with nonalcoholic fatty liver disease in a randomized controlled trial. Phytomedicine. 130, 155398(2024).
- Cui, H., et al. Da-Chai-Hu decoction ameliorates high fat diet-induced nonalcoholic fatty liver disease through remodeling the gut microbiota and modulating the serum metabolism. Front Pharmacol. 11, 584090(2020).
- Chen, Y. S., Chen, Q. Z., Wang, Z. J., Hua, C. Anti-inflammatory and hepatoprotective effects of Ganoderma lucidum polysaccharides against carbon tetrachloride-induced liver injury in Kunming mice. Pharmacology. 103, 143-150 (2019).
- Zheng, N., Wang, H., Zhu, W., Li, Y., Li, H. Astragalus polysaccharide attenuates nonalcoholic fatty liver disease through THDCA in high-fat diet-fed mice. J Ethnopharmacol. 320, 117401(2024).
- Saeed, H., et al. Microbiome-centered therapies for the management of metabolic dysfunction-associated steatotic liver disease. Clin Mol Hepatol. 31, S94-S111 (2025).
- Al-Sadi, R., Guo, S., Ye, D., Rawat, M., Ma, T. Y. TNF-α modulation of intestinal tight junction permeability is mediated by NIK/IKK-α axis activation of the canonical NF-κB pathway. Am J Pathol. 186, 1151-1165 (2016).
- Marchiando, A. M., et al. Caveolin-1-dependent occludin endocytosis is required for TNF-induced tight junction regulation in vivo. J Cell Biol. 189, 111-126 (2010).
- Jakobsson, H. E., et al. The composition of the gut microbiota shapes the colon mucus barrier. EMBO Rep. 16, 164-177 (2015).
- Allam-Ndoul, B., Castonguay-Paradis, S., Veilleux, A. Gut microbiota and intestinal trans-epithelial permeability. Int J Mol Sci. 21, 6402(2020).
- Takiishi, T., Fenero, C. I. M., Câmara, N. O. S. Intestinal barrier and gut microbiota: shaping our immune responses throughout life. Tissue Barriers. 5, e1373208(2017).
- Kimura, I., et al. The gut microbiota suppresses insulin-mediated fat accumulation via the short-chain fatty acid receptor GPR43. Nat Commun. 4, 1829(2013).
- Spadoni, I., et al. A gut-vascular barrier controls the systemic dissemination of bacteria. Science. 350, 830-834 (2015).
- Mouries, J., et al. Microbiota-driven gut vascular barrier disruption is a prerequisite for non-alcoholic steatohepatitis development. J Hepatol. 71, 1216-1228 (2019).
- Di Tommaso, N., Santopaolo, F., Gasbarrini, A., Ponziani, F. R. The gut-vascular barrier as a new protagonist in intestinal and extraintestinal diseases. Int J Mol Sci. 24, 1470(2023).
- Vinolo, M. A., Rodrigues, H. G., Nachbar, R. T., Curi, R. Regulation of inflammation by short chain fatty acids. Nutrients. 3, 858-876 (2011).
- Corrêa-Oliveira, R., Fachi, J. L., Vieira, A., Sato, F. T., Vinolo, M. A. Regulation of immune cell function by short-chain fatty acids. Clin Transl Immunology. 5, e73(2016).
- Larabi, A. B., Masson, H. L. P., Bäumler, A. J. Bile acids as modulators of gut microbiota composition and function. Gut Microbes. 15, 2172671(2023).
- Kim, S. Y., et al. Pro-inflammatory hepatic macrophages generate ROS through NADPH oxidase 2 via endocytosis of monomeric TLR4-MD2 complex. Nat Commun. 8, 2247(2017).
- Yu, L., et al. The NLRP3 inflammasome in non-alcoholic fatty liver disease and steatohepatitis: therapeutic targets and treatment. Front Pharmacol. 13, 780496(2022).
- Wang, L., Hauenstein, A. V. The NLRP3 inflammasome: mechanism of action, role in disease and therapies. Mol Aspects Med. 76, 100889(2020).
- Liang, J. Q., et al. Dietary cholesterol promotes steatohepatitis related hepatocellular carcinoma through dysregulated metabolism and calcium signaling. Nat Commun. 9, 4490(2018).
- Xu, B., et al. Gasdermin D plays a key role as a pyroptosis executor of non-alcoholic steatohepatitis in humans and mice. J Hepatol. 68, 773-782 (2018).
- Tilg, H., Cani, P. D., Mayer, E. A. Gut microbiome and liver diseases. Gut. 65, 2035-2044 (2016).
- Ye, D., Ma, I., Ma, T. Y. Molecular mechanism of tumor necrosis factor-alpha modulation of intestinal epithelial tight junction barrier. Am J Physiol Gastrointest Liver Physiol. 290, G496-G504 (2006).
- Farhadi, A., et al. Susceptibility to gut leakiness: a possible mechanism for endotoxaemia in non-alcoholic steatohepatitis. Liver Int. 28, 1026-1033 (2008).
- Wree, A., et al. NLRP3 inflammasome activation is required for fibrosis development in NAFLD. J Mol Med (Berl). 92, 1069-1082 (2014).
- Panossian, A. Trends and pitfalls in the progress of network pharmacology research on natural products. Pharmaceuticals (Basel). 18, 538(2025).
- Li, L., et al. Network pharmacology: a bright guiding light on the way to explore the personalized precise medication of traditional Chinese medicine. Chin Med. 18, 146(2023).
- Stroeve, J. H., et al. Intestinal FXR-mediated FGF15 production contributes to diurnal control of hepatic bile acid synthesis in mice. Lab Invest. 90, 1457-1467 (2010).
- Song, L., et al. Hepatic FXR-FGF4 is required for bile acid homeostasis via an FGFR4-LRH-1 signal node under cholestatic stress. Cell Metab. 37, 104-120.e9 (2025).
- Lan, Q., et al. Hepatoprotective effect of Qushihuayu formula on non-alcoholic steatohepatitis induced by MCD diet in rat. Chin Med. 16, 27(2021).
- Sterne, J. A. C., et al. 2: a revised tool for assessing risk of bias in randomised trials. BMJ. 366, 14898(2019).
- Sterne, J. A., et al. ROBINS-I: a tool for assessing risk of bias in non-randomised studies of interventions. BMJ. 355, i4919(2016).
- Verbeke, L., et al. The FXR agonist obeticholic acid prevents gut barrier dysfunction and bacterial translocation in cholestatic rats. Am J Pathol. 185, 409-419 (2015).
- Zhong, M., et al. Astragalus mongholicus polysaccharides ameliorate hepatic lipid accumulation and inflammation as well as modulate gut microbiota in NAFLD rats. Food Funct. 13, 7287-7301 (2022).
- Bhattacharyya, S., et al. Toll-like receptor 4 signaling augments transforming growth factor-β responses: a novel mechanism for maintaining and amplifying fibrosis in scleroderma. Am J Pathol. 182, 192-205 (2013).
- Ali, A. A., Fouda, A., Abdelaziz, E. S., Abdelkawy, K., Ahmed, M. H. The promising role of CCL2 as a noninvasive marker for nonalcoholic steatohepatitis diagnosis in Egyptian populations. Eur J Gastroenterol Hepatol. 33, e954-e960 (2021).
- Menzel, A., et al. Common and novel markers for measuring inflammation and oxidative stress ex vivo in research and clinical practice-which to use regarding disease outcomes. Antioxidants (Basel). 10, 414(2021).
- Trubnikov, A., et al. Effectiveness and safety of a shorter treatment regimen in a setting with a high burden of multidrug-resistant tuberculosis. Int J Environ Res Public Health. 18, 4121(2021).
- Chang, C. J., et al. Ganoderma lucidum reduces obesity in mice by modulating the composition of the gut microbiota. Nat Commun. 6, 7489(2015).
- Liu, Y. T., et al. Extensive intestinal first-pass elimination and predominant hepatic distribution of berberine explain its low plasma levels in rats. Drug Metab Dispos. 38, 1779-1784 (2010).
- Tan, X. S., et al. Tissue distribution of berberine and its metabolites after oral administration in rats. PLoS One. 8, e77969(2013).
- Chen, W., et al. Bioavailability study of berberine and the enhancing effects of TPGS on intestinal absorption in rats. AAPS PharmSciTech. 12, 705-711 (2011).
- Roy, S., et al. Hepatic NLRP3-derived Hsp70 binding to TLR4 mediates MASLD to MASH progression upon inhibition of PP2A by harmful algal bloom toxin microcystin, a second hit. Int J Mol Sci. 24, 16354(2023).
- Zeng, H., Umar, S., Rust, B., Lazarova, D., Bordonaro, M. Secondary bile acids and short chain fatty acids in the colon: a focus on colonic microbiome, cell proliferation, inflammation, and cancer. Int J Mol Sci. 20, 1214(2019).
- Visekruna, A., Luu, M. The role of short-chain fatty acids and bile acids in intestinal and liver function, inflammation, and carcinogenesis. Front Cell Dev Biol. 9, 703218(2021).
- Di Bisceglie, A. M., et al. Pharmacokinetics and pharmacodynamics of HTD1801 (berberine ursodeoxycholate, BUDCA) in patients with hyperlipidemia. Lipids Health Dis. 19, 239(2020).
- Nejati, L., Movahedi, A., Salari, G., Moeineddin, R., Nejati, P. The effect of berberine on lipid profile, liver enzymes, and fasting blood glucose in patients with non-alcoholic fatty liver disease (NAFLD): a randomized controlled trial. Med J Islam Repub Iran. 36, 39(2022).
- Nie, Q., et al. The clinical efficacy and safety of berberine in the treatment of non-alcoholic fatty liver disease: a meta-analysis and systematic review. J Transl Med. 22, 225(2024).
- Feng, R., et al. Transforming berberine into its intestine-absorbable form by the gut microbiota. Sci Rep. 5, 12155(2015).
- Gu, L., et al. Berberine ameliorates intestinal epithelial tight-junction damage and down-regulates myosin light chain kinase pathways in a mouse model of endotoxinemia. J Infect Dis. 203, 1602-1612 (2011).
- Yan, F., et al. Berberine promotes recovery of colitis and inhibits inflammatory responses in colonic macrophages and epithelial cells in DSS-treated mice. Am J Physiol Gastrointest Liver Physiol. 302, G504-G514 (2012).
- Zhang, H., et al. Berberine suppresses LPS-induced inflammation through modulating Sirt1/NF-κB signaling pathway in RAW264.7 cells. Int Immunopharmacol. 52, 93-100 (2017).
- Mai, W., et al. Berberine inhibits Nod-like receptor family pyrin domain containing 3 inflammasome activation and pyroptosis in nonalcoholic steatohepatitis via the ROS/TXNIP axis. Front Pharmacol. 11, 185(2020).
- Wei, X., Wang, C., Hao, S., Song, H., Yang, L. The therapeutic effect of berberine in the treatment of nonalcoholic fatty liver disease: a meta-analysis. Evid Based Complement Alternat Med. 2016, 3593951(2016).
- Leng, J., et al. Amelioration of non-alcoholic steatohepatitis by Qushi Huayu decoction is associated with inhibition of the intestinal mitogen-activated protein kinase pathway. Phytomedicine. 66, 153135(2020).
- Feng, Q., et al. Qushi Huayu decoction inhibits hepatic lipid accumulation by activating AMP-activated protein kinase in vivo and in vitro. Evid Based Complement Alternat Med. 2013, 184358(2013).
- Sun, Q., et al. Qushi Huayu decoction attenuated hepatic lipid accumulation via JAK2/STAT3/CPT-1A-related fatty acid β-oxidation in mice with non-alcoholic steatohepatitis. Pharm Biol. 60, 2124-2133 (2022).
- Ni, Y., et al. Qushi Huayu decoction ameliorates non-alcoholic fatty liver disease in rats by modulating gut microbiota and serum lipids. Front Endocrinol (Lausanne). 14, 1272214(2023).
- Yang, W., et al. Approaches to establish Q-markers for the quality standards of traditional Chinese medicines. Acta Pharm Sin B. 7, 439-446 (2017).
- Xiong, H., Yu, L. X., Qu, H. Batch-to-batch quality consistency evaluation of botanical drug products using multivariate statistical analysis of the chromatographic fingerprint. AAPS PharmSciTech. 14, 802-810 (2013).
- Mousa, A. M., Mahmoud, M., AlShuraiaan, G. M. Resmetirom: the first disease-specific treatment for MASH. Int J Endocrinol. 2025, 6430023(2025).
- Dahiya, K., Palkar, M., Sharma, S. Unlocking the potential of THR-β agonist therapies: resmetirom's chemistry, biology, and patent insights. Naunyn Schmiedebergs Arch Pharmacol. 398, 9703-9720 (2025).
- Wang, R., et al. Dachaihu decoction inhibits hypernutrition-induced liver metastasis from colorectal cancer by maintaining the gut vascular barrier. Cancer Pathog Ther. 1, 98-110 (2023).
- Xu, S., et al. Da-Chai-Hu-Tang protects from acute intrahepatic cholestasis by inhibiting hepatic inflammation and bile accumulation via activation of PPARα. Front Pharmacol. 13, 847483(2022).
- Mou, Z., et al. The efficacy and safety of Dachaihu decoction in the treatment of nonalcoholic fatty liver disease: a systematic review and meta-analysis. Front Med (Lausanne). 11, 1397900(2024).
- Chen, Y., et al. Polysaccharides from traditional Chinese medicines: extraction, purification, modification, and biological activity. Molecules. 21, 1705(2016).
- Ying, M., et al. Ganoderma atrum polysaccharide ameliorates intestinal mucosal dysfunction associated with autophagy in immunosuppressed mice. Food Chem Toxicol. 138, 111244(2020).
- Chen, X., et al. Research progress on the therapeutic effect of polysaccharides on non-alcoholic fatty liver disease through the regulation of the gut-liver axis. Int J Mol Sci. 23, 11710(2022).
- Bergheim, I., Moreno-Navarrete, J. M. The relevance of intestinal barrier dysfunction, antimicrobial proteins and bacterial endotoxin in metabolic dysfunction-associated steatotic liver disease. Eur J Clin Invest. 54, e14224(2024).
- Yu, M., et al. Multiple fingerprints and spectrum-effect relationship of polysaccharides from Saposhnikoviae Radix. Molecules. 27, 5278(2022).
- Swackhamer, C., Jang, S., Park, B. R., Hamaker, B. R., Jung, S. K. Structure-based standardization of prebiotic soluble dietary fibers based on monosaccharide composition, degree of polymerization, and linkage composition. Carbohydr Polym. 367, 123949(2025).
- Zhu, Y., et al. Monosaccharide composition and glycosidic linkages analysis by ultra high performance liquid chromatography-triple quadrupole tandem mass spectrometry-case study of plant polysaccharides. Int J Biol Macromol. 281, 136471(2024).
- Zhu, B., et al. Characterization and comparison of bioactive polysaccharides from Grifola frondosa by HPSEC-MALLS-RID and saccharide mapping based on HPAEC-PAD. Polymers. 15, 208(2022).
- Suvarna, R., Shetty, S., Pappachan, J. M. Efficacy and safety of resmetirom, a selective thyroid hormone receptor-β agonist, in the treatment of metabolic dysfunction-associated steatotic liver disease (MASLD): a systematic review and meta-analysis. Sci Rep. 14, 19790(2024).
- An, L., et al. The role of gut-derived lipopolysaccharides and the intestinal barrier in fatty liver diseases. J Gastrointest Surg. 26, 671-683 (2022).
- Lau, H. C., Zhang, X., Yu, J. Gut microbiome in metabolic dysfunction-associated steatotic liver disease and associated hepatocellular carcinoma. Nat Rev Gastroenterol Hepatol. 22, 619-638 (2025).
- Hoshiko, H., et al. An observational study to evaluate the association between intestinal permeability, leaky gut related markers, and metabolic health in healthy adults. Healthcare (Basel). 9, 1583(2021).
- Mohr, A. E., Crawford, M., Jasbi, P., Fessler, S., Sweazea, K. L. Lipopolysaccharide and the gut microbiota: considering structural variation. FEBS Lett. 596, 849-875 (2022).
- Caussy, C., et al. Serum bile acid patterns are associated with the presence of NAFLD in twins, and dose-dependent changes with increase in fibrosis stage in patients with biopsy-proven NAFLD. Aliment Pharmacol Ther. 49, 183-193 (2019).
- Pattni, S. S., Brydon, W. G., Dew, T., Walters, J. R. Fibroblast growth factor 19 and 7α-hydroxy-4-cholesten-3-one in the diagnosis of patients with possible bile acid diarrhea. Clin Transl Gastroenterol. 3, e18(2012).
- Walters, J. R., et al. The response of patients with bile acid diarrhoea to the farnesoid X receptor agonist obeticholic acid. Aliment Pharmacol Ther. 41, 54-64 (2015).
- Schumacher, N., et al. Cell-autonomous hepatocyte-specific GP130 signaling is sufficient to trigger a robust innate immune response in mice. J Hepatol. 74, 407-418 (2021).
- Li, X., et al. Short-chain fatty acids in nonalcoholic fatty liver disease: new prospects for short-chain fatty acids as therapeutic targets. Heliyon. 10, e26991(2024).
- Scheffler, L., et al. Widely used commercial ELISA does not detect precursor of haptoglobin2, but recognizes properdin as a potential second member of the zonulin family. Front Endocrinol (Lausanne). 9, 22(2018).
- Tripathi, A., et al. Identification of human zonulin, a physiological modulator of tight junctions, as prehaptoglobin-2. Proc Natl Acad Sci U S A. 106, 16799-16804 (2009).
- Salter, S. J., et al. Reagent and laboratory contamination can critically impact sequence-based microbiome analyses. BMC Biol. 12, 87(2014).
- Stine, J. G., et al. Change in MRI-PDFF and histologic response in patients with nonalcoholic steatohepatitis: a systematic review and meta-analysis. Clin Gastroenterol Hepatol. 19, 2274-2283.e5 (2021).
- Tamaki, N., et al. Clinical utility of 30% relative decline in MRI-PDFF in predicting fibrosis regression in non-alcoholic fatty liver disease. Gut. 71, 983-990 (2022).
- Saarinen, K., et al. Enhanced liver fibrosis test predicts liver-related outcomes in the general population. JHEP Rep. 5, 100765(2023).
- Jung, J., et al. MRE combined with FIB-4 (MEFIB) index in detection of candidates for pharmacological treatment of NASH-related fibrosis. Gut. 70, 1946-1953 (2021).
- Dimairo, M., et al. The adaptive designs CONSORT extension (ACE) statement: a checklist with explanation and elaboration guideline for reporting randomised trials that use an adaptive design. BMJ. 369, m115(2020).