Способность экспрессировать вирусные векторы в допубертатном мозге является фундаментальной для изучения клеточных и цепевых механизмов развития мозга. Здесь мы описываем протокол проведения стереотаксической вирусной хирургии у младенца мыши на 11-й или 12-й день после родов (P11-P12) и предоставляем рекомендации по послеоперационному уходу.
Методическая статья
Стереотаксическая хирургия у младенцев-мышей и послеоперационный уход
В этой статье
Краткое содержание
Аннотация
Понимание процессов развития, клеток и цепей в послеродовом периоде крайне важно для разъяснения сложностей развития мозга и его влияния на поведенческое и социальное созревание. Переход от младенца во взрослую жизнь включает значительные нейробиологические изменения, включая синаптическую обрезку и миелинизацию, которые являются фундаментальными для когнитивных способностей, эмоциональной регуляции и социальных взаимодействий. Изучение развития мозга у мышей до пубертатного возраста позволяет исследователям выявлять критические периоды, поддерживающие здоровый рост мозга, и устанавливать своевременные вмешательства при нейроразвитийных расстройствах. Для точного анализа функций мозга стереотаксическая хирургия стала ключевым методом в нейронаучных исследованиях, обеспечивая непревзойдённую точность в выявлении интересующих областей мозга и позволяющую доставлять вирусные агенты. Хотя стереотаксичные операции у взрослых мышей широко применяются в нейробиологических лабораториях, существует очень ограниченное количество рекомендаций по проведению стереотаксичных операций у допубертатных мышей, а также по необходимости важного послеоперационного ухода, чтобы обеспечить успешное возвращение младенца к матери и однородникам помёта. Здесь мы описываем протокол стереотаксической хирургии и вирусной инъекции у мышей младенцев (P11-P12), выделяя анестезию и анальгезию, аспекты для послеоперационного ухода и отличия от стереотаксичной хирургии у взрослых. Этот протокол может быть реализован в любой интересующей области мозга путём обновления нужных целевых координат и может быть модифицирован для таргетинга мозга на поздних стадиях постнатального развития, например, в ювенильном периоде (P15-P30). В целом, этот протокол служит отправной точкой для изучения послеродового развития и функций мозга.
Введение
Младенчество и подростковый возраст — это важнейшие постнатальные периоды для развития мозга, характеризующиеся миелинизацией, синаптогенезом и синаптической обрезкой, что способствует уточнениюцепей 1,2. Появление социальных поведенческих проявлений, включая брачное поведение, агрессию и социальную игру, происходит в перипубертатальный период (P28-40)3 и строго регулируется циркулирующими стероиднымигормонами 4,5. Несмотря на значительный прогресс в инструментах для анализа клеточных основ социальных поведенчений у взрослых, мало что известно о нейронных механизмах, лежащих в основе возникновения социальных поведенческих действий на протяжении послеродового развития. Причины непонимания развития социальных цепей включают: 1) трудности, связанные с проведением операций у младенцев, включая стереотаксичные установки, не предназначенные для молодых мышей, 2) баланс между безопасностью и эффективностью обезболивающих и анестезиологических средств во времяоперации, 6; и 3) принятие младенцев матерью после операции. Кроме того, современные методы доставки генетических конструкций в ранние постнатальные периоды, такие как электропорацияутробы 7, инъекция вируса в мозг новорождённой мыши (P0-P10)8 или генетические пересечения рекомбиназы драйвера и -отзывчивыхлиний 9, не являются идеальными, так как они не имеют точного таргетирования и фокусируются на эмбриональное или P0-таргетирование.
Здесь мы предлагаем простой протокол стереотаксической хирургии у младенцев мышей (P11-P12) и послеоперационного ухода для успешной реинтеграции с матерью и однородниками. Этот протокол использует текущий стереотаксический протокол для взрослыхмышей 10 и требует лишь незначительных изменений в стереотаксической системе. Мы также предоставляем подробные рекомендации по послеоперационному уходу, а также по успешной анестезии и обезболиванию у младенцев мышей. Мы выбрали время P11-12 для операции, так как для экспрессии вируса существует 2-недельный инкубационный период, поэтому мышей можно тестировать in vivo начиная с P24, до перипубертального периода (P28-40)3. Однако этот же протокол может применяться для стереотаксической хирургии в более поздние временные моменты. Мы сосредотачиваемся на развивающейся медиальной миндалине (MeA), подразделении миндалины, характеризующейся своей ролью в разнообразном наборе социальных поведенчений11,12. Мы специально изучаем субпопуляцию MeA, экспрессирующую Foxp2 (MeA Foxp2)13, фактор транскрипции forkhead box, поскольку ранее выяснилось, что эти клетки уникально запрограммированы для обработки мужских сенсорных сигналов in vivo у самцов мышей на протяжении послеродовогоразвития 14. Кроме того, субпопуляцияMeA Foxp2 необходима для двусторонней модуляции территориальной агрессии усамцов 14. В целом, действующий протокол позволяет нейроучёным точно вводить вирусные агенты в целевые области мозга на ключевых постнатальных этапах развития мозга для изучения клеточных и цепных основ социальных и аффилиативных поведений в подростковом и взрослом возрасте.
Протокол
Эта процедура была одобрена Комитетом по уходу и использованию животных NIEHS и соответствовала рекомендациям Национальных институтов здоровья по использованию и уходу за животными. На протяжении всей операции и в присутствии животных использовались соответствующие средства индивидуальной защиты, включая перчатки, маску для лица, одноразовый халат, сетку для волос и обувные чехлы.
1. Подготовка и регулировка стереотаксичного аппарата мыши (Рисунок 1)
- Подготовьте стереотаксичный аппарат с стереотаксичными аксессуарами для младенцев-мышей, включая пару ушных планок без возбуждения, модифицированный держатель для головы для газовой анестезии и нёбную планку для младенцев P12.
- Дезинфицируйте все хирургические инструменты с помощью стеклянного бусина (250 °C, 30 секунд для мелких инструментов и 1 минута для крупных). После стерилизации положите стерильные инструменты на стерильную занавеску. Стерильные инструменты должны оставаться на стерильном поле на протяжении всей операции.
- Положите ещё одну стерильную занавеску поверх грелки при температуре ~37 °C на стереотаксическом устройстве, чтобы поддерживать контролируемую температуру младенца на протяжении всей операции. Следите за температурой грелки на протяжении всей операции.
2. Подготовка к операции на мыши, стереотаксическое размещение, выравнивание и краниотомия
- Измеряйте массу тела, чтобы обеспечить правильную дозу обезболивающего.
- Поместите мышь в индукционную камеру с 3% изофлураном и расходом кислорода 0,9 л/мин. Проверьте, что дыхание мыши снизилось до ~1 вдоха в секунду и нет ли реакции после проверки рефлекса отмены педалей. Переключите поток изофлурана/кислорода на стереотаксичную систему и уменьшите концентрацию изофлурана до 2%.
ПРИМЕЧАНИЕ: Адекватная анестезия должна подтверждаться отсутствием реакции на отмену педального рефлекса каждые 5 минут на протяжении всей операции. Внимательно наблюдайте за дыханием мыши на протяжении всей операции. Корректируйте концентрацию изофлурана на протяжении всей операции так, чтобы минимальный процент использовался для поддержания глубокой анестезии и предотвращения передозировки анестезией. - Установите мышь на модифицированный стереотаксический аппарат с стереотаксичными аксессуарами для младенцев. Разместите непроколотные ушные планки по бокам головы мыши и выровняйте линейку так, чтобы она была на равном расстоянии с обеих сторон относительно стереотаксичной линии рамки. Для младенцев P11 установите стереотаксичную линейку на 5 мм.
ПРИМЕЧАНИЕ: Младенцы с P11 обычно ещё не открыты глаза, поэтому смазка для глаз не требуется. К P12 у некоторых младенцев уже открыты глаза. Если глаза младенца открыты, следует наносить офтальмологическую мазь и повторно наносить по мере необходимости в течение всей операции. - Вводите 5 мг/кг мелоксикама через подкожный (s.c.) внутрилопаточный путь, используя шприц объёмом 1 мл с иглой 27 G.
- Разведите 0,5% бупивакаина (5 мг/мл) физиологическим раствором до 0,5 мг/мл (1:10) и введите с.к. под кожу головы (то есть 0,05 мл для младенца весом 5 г).
ПРИМЕЧАНИЕ: Шаги с 2.6 по 3.15 следует выполнять в стерильных перчатках. - Выполните разрез шириной 1,5 см маленькими ножницами вдоль средней линии головы.
- Используйте стерильную ватную палочку, чтобы аккуратно удалить мягкие ткани с поверхности черепа с помощью бетадина.
- Поместите вытянутый стеклянный капилляр (~0,8 мм в длину) в держатель для стеклянной пипетки. Крепите держатель на вертикальный стереотаксический рычаг.
ПРИМЕЧАНИЕ: Шаги с 2.9 по 3.10 следует выполнять под дисектирующим микроскопом. - Выровняйте передне-задний угол поверхности черепа:
- Переместить капилляр к ростральной точке слияния дорсальных синусов (RCS) (рисунок 2), как описано в Chan и др. 15.
- Под микроскопом с двукратным увеличением нуль координат X (медиально-латеральное), Y (передне-задний) и Z (дорсально-вентральное) координаты, когда капилляр слегка касается черепа в точке RCS с помощью цифровой пульты стереотаксичного прибора.
- Переместите капилляр в лямбда (при Y = -7,30 мм) и опустите капилляр, чтобы слегка коснуться черепа (рисунок 2).
- Проверьте значение координат Z и выровняйте передне-задний угол в стереотаксическом риге, чтобы изменить угол наклона головы. Повторяйте шаги с 2.9.1 по 2.9.3, пока разница в значениях координат Z между RCS и лямбда не составит <0,02 мм.
- Выровняйте медиально-латеральный угол поверхности черепа:
- Переместите капилляр к точке RCS.
- Ноль координат X (медиально-латеральный) и Y (передне-задний) совпадают, когда капилляр слегка касается черепа в точке RCS.
- Чтобы выровнять голову по постеродорсальных координатам MeA (MeApd), капилляр перемещается на X = +2,50 мм, Y = -4,20 мм и ноль Z (дорсально-вентральное), при этом капилляр слегка касается черепа.
- Переместите капилляр на X = -2,50 мм, Y = -4,20 мм в другом полушарии и немного опустите капилляр, чтобы соприкоснуться с черепом.
- Проверьте значение Z и отрегулируйте ось медиально-латеральной системы в стереотаксиче, чтобы изменить угол наклона головы. Повторяйте шаги с 2.10.1 по 2.10.4, пока разница в значении Z между правым и левым полушариями не составит <0,03 мм.
- Снимите держатель капилляра и установите микросверло с сверлом #75 в стереотаксичный держатель на вертикальном стереотаксическом рычаге.
- Разместите кончик сверла над точкой RCS, обнулите координаты X (медиально-латеральный) и Y (передне-задний). Переместитесь к X = ±2,03 мм, Y = -4,20 мм, чтобы нацелиться на MeApd младенцев P11.
- Просверлите краниотомию диаметром 0,5 мм через череп.
- Аккуратно очистите поверхность черепа стерильным физиологическим раствором с помощью тонких салфеток и ватных палочков.
ПРИМЕЧАНИЕ: Регулярно наносите стерильный физиологический раствор, чтобы поддерживать увлажнённую поверхность черепа.
3. Вирусная инъекция
- Заполните новый капилляр минеральным маслом с помощью гибкой иглы microfil.
- Прикрепите и затяните капилляр к нанолитровому инжектору.
- Снимите микросверло и установите нанолитровый инжектор на вертикальный стереотаксический рычаг.
- Отменьте как минимум вдвое больше необходимого количества вируса для операции (здесь 400 нл) со скоростью 10 нл/с.
ПРИМЕЧАНИЕ: Любой интересующий AAV вирус может использоваться для инъекции вируса после одобрения Института. В этом протоколе мы использовали AAV2-DIO-mCherry (BSL-1, 2,5 E+13 vg/mL, 3 мкл/трубка, хранится при -80 °C и затем передаётся в лед для хирургического вмешательства). - Переместите капилляр в точку RCS и обнулите координаты X и Y.
- Переместите капилляр в целевую область интереса мозга, здесь MeApd (координаты: X = ±2,03 мм, Y = -4,20 мм, Z= -5,08 мм от RCS).
- Опустите капилляр к поверхности черепа, затем обнулите координату Z.
- Проложите путь, опустив капилляр до нужной глубины и выведя капилляр обратно из мозга.
- Введите ~8 нл вируса, чтобы убедиться, что капилляр не закупорен, прежде чем ввести обратно в мозг. Если он засорен, добавьте стерильный физиологический раствор к дворнику и аккуратно протрите бока и нижнюю часть капилляра, чтобы устранить засору.
- Опустите капилляр ещё раз до нужной глубины и введите нужное количество вируса (в данном случае 150 нл вируса) со скоростью 20 нл/мин.
- Когда всё закончится, подождите 5 минут, прежде чем медленно снимать капилляр.
- При необходимости повторяйте шаги 3.4-3.11, чтобы ввести вирус в противоположное полушарие.
- Удалите капилляр из нанолитрового инжектора. Отброс использовал капилляры и вирусные трубки в конической трубке объёмом 50 мл с 10% отбеливателем.
ПРИМЕЧАНИЕ: Отдельные лаборатории должны соблюдать все рекомендации по обращению с отходами, управлению разливами и соблюдению требований биобезопасности из Институционального биологического и биобезопасного отдела. - Наложите швы на кожу невпитывающим швом размером 7-0. Попробуйте поднять волосы при накладке швов, чтобы швы оставались скрытыми.
ПРИМЕЧАНИЕ: Обычно достаточно 3-4 швов. В наших руках шов размером 7-0 лучше всего помогает, чтобы не разорвать швы плотиной после возвращения младенца в домашнюю клетку. - Протри участок шва перекисью водорода 3%, затем физиологическим раствором стерильными ватными палочками.
ПРИМЕЧАНИЕ: Операция обычно длится от 1 до 2 часов, в зависимости от количества введённых вирусов. Вирусам обычно требуется минимум 2 недели для полной экспрессии.
4. Послеоперационный уход
- Вынимите младенца из стереотаксичной рамки и поместите его в чистую клетку на грелке. Для предотвращения обезвоживания рекомендуется инъекция стерильного физиологического раствора.
- Следите за младенцем, пока он не станет подвижным.
- Когда малыш сможет перемещаться по клетке, поставьте плотину в новую чистую клетку на ~2 минуты.
- Поместите малыша в его первоначальную домашнюю клетку рядом с одновыводками. Аккуратно протрите всех детёнышей материалом для гнезда и подстилки из их клетки, затем поместите их обратно внутрь. Продолжайте устанавливать плотину обратно в клетку.
- Внимательно следите за плотиной и младенцами. Убедитесь, что мама возвращается в гнездо и ухаживает за хирургическим младенцем, но не вытягивает швы.
- Если после 1 часа мать не принимает хирургического младенца, используйте приемную плотину. Если мать уже показала готовность к детёнышам, используйте эту мать для последующих помётов (принятие младенцев в первый помёт было 100%).
- Через двадцать четыре часа после операции проверьте место разреза и введите Мелоксикам (5 мг/кг, с.к.).
- После успешного послеоперационного ухода оставьте хирургическую мышь с матерью и однородниками до отлучения от груди в P21. Удалять видимые швы в течение 10-14 дней после операции.
ПРИМЕЧАНИЕ: У хирургических мышей не ожидается значимых различий в питании пищи, весе тела или поведении передвижения по сравнению с контролем братьев в помёте.
Младенцев будут наблюдать ежедневно как минимум 2 дня после операции, а затем не менее двух раз в неделю. Критерии гуманной конечной точки: Если младенец не будет ходить через 2 часа после операции, его гуманно усыпляют. Если после операции у младенца наблюдается снижение массы тела и/или подвижности, его гуманно усыпляют.
Результаты
Безопасность комбинации изофлурана, бупивакаина и мелоксикама для операций у младенцев
Безопасность использования анестезии и обезболивающих средств у младенцев по-прежнемунеясна 6. Поэтому мы проверили использование комбинации анестезии и обезболивающих у младенцев мышей, чтобы определить уровень выживаемости. Младенцев мышей с P11 (масса тела = 6,09 ± 0,90 г, минимальная масса тела — 3,9 г; n=13) помещали в индукционную камеру для начальной анестезии с 3% изофлураном в 0,9 л/мин кислорода. После того как младенцы были анестезиированы и перестали реагировать на рефлекс отъёма педалей, их переводили в стереотаксичный аппарат, где анестезия изофлурана снижалась до 1,5-2% изофлурана в кислороде 0,9 л/мин с помощью погревающей прокладки (41,23 ± 2,28 °C). После помещения младенцев в стереотаксичный аппарат вводили анальгезию (5 мг/кг Мелоксикам), а также местную анестезию под кожей головы (0,05 мг/мл бупивакаина). Через тридцать минут мы вынули младенцев из стереотаксичного оборудования и поместили их в чистую клетку. Мы наблюдали 100% выживаемость (13/13) через 30 минут после анальгезии. Кроме того, мы не наблюдали осложнений через 24 и 72 часа после операции, а также во взрослом возрасте. Эти результаты показывают, что сочетание местной анестезии с нестероидным противовоспалительным препаратом безопасно для младенцев мышей и снижает боль и страдания.
Точная и точная доставка вируса в MeA
Для подтверждения точности и точности доставки вируса во время стереотаксических операций у младенцев мы ввели AAV2-hSyn-DIO-mCherry в MeApd самцов мышей Foxp2cre+/- на уровне P11 (рисунок 3A). Мышей затем отлучали от груди в P21. При P45 мозг мышей собирался для иммуногистохимии и анализа изображений, как ранее описано нашейгруппой 14 и другими16 (рисунок 3B,C). Мышей анестезиировали и перфузировали 30 мл 1× ПБС, затем 30 мл 4% ПФА при 10 мл/мин. Мозг был постфиксирован за ночь при 4 °C при 4% PFA, криопротектирован 30% сахарозой, встроен в O.C.T. и секционирован при 50 мкм на криостате. Каждая третья секция была обработана для иммуногистохимии, как описаноранее, 14. Свободно плавающие участки блокировались в 10% нормальной сыворотке осли, инкубировали с первичным антителом ночью, затем промывались, инкубировали вторичным антителом в течение 4 часов, затем снова промывались и устанавливались с носителем DAPI перед покрытием покрытия. Срезы мозга были окрашены антителами Foxp2 и Alexa Fluor 488 AffiniPure Donkey Anti-Rabbit IgG (H+L).
Для подтверждения эффективности целевой эффективности мы определили коэкспрессию клеток mCherry+ и Foxp2+ в MeA и наблюдали 90,2% ± 2,1 пересечения между популяциями, что указывает на то, что экспрессия mCherry ограничена клетками Foxp2+ в cre-зависимом виде (рисунок 3D). Этот результат подчёркивает высокую эффективность вирусной инъекции с использованием этого протокола. Кроме того, мы исследовали точность вирусных инъекций, анализируя процент клеток mCherry+ в MeApd относительно общего процента mCherry во всех регионах. Мы наблюдали, что 93,7% ± 1,4 клеток mCherry+ находились внутри MeApd, что указывает на то, что пространственная экспрессия вируса ограничена нашей областью интереса (рисунок 3E).

Рисунок 1: Подготовка для стереотаксической хирургии младенцев. (A) Стереотаксическая установка. (B) Ушные планки без разрыва. (C) Держатель для головы и планка для нёба для детей P12 с газовой анестезией. (D) Стерилизатор бусин. (E) Контроллер погревающей площадки. (F) Стереотаксичная рука. (G) Нанолитровый инжектор. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.

Рисунок 2: Основные ориентиры в черепе мыши P11. (A) Схематическая иллюстрация основных ориентиров в черепе младенца. (B) Голова младенца закреплена специализированными стереотаксичными аксессуарами, включающими неразрывные ушные планки, модифицированный держатель газовой головки и гранулу для мышей P12. Сокращение: RCS = ростральное слияние пазух, SSS = верхний сагиттальный синус, RRV = рострально-ринальные вены, SOS = верхний обонятельный синус. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
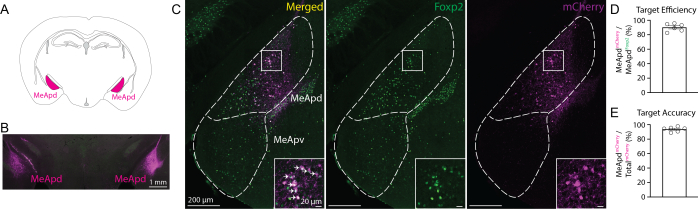
Рисунок 3: Таргетированная двусторонняя вирусная экспрессия в MeAPD после стереотаксической операции у младенцев. (A) Схематическая иллюстрация MeApd (корональный вид). (B) Репрезентативное гистологическое изображение двусторонней экспрессии клеток антитела Foxp2 (зелёный) и mCherry+ (пурпурный) у взрослых мышейFoxp2 cre+/. (C) Расширенный вид MeA как с объединённых, так и с отдельных каналов. Белые стрелки обозначают совместно маркированные антитела Foxp2 и клетки mCherry+ . (D) Эффективность впрыскивания. (E) Точность инъекций. (D,E) n=3 мыши, левое и правое полушария/мышь. Аббревиатуры: MeApd = постодорсальная медиальная миндалина; MeApv = задневентральная медиальная миндалина. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
| Методы | Плюсы | Минусы | Ссылка |
| Электропорация в утробе | Более крупная плазмидная трансфекция | Отсутствие точного прицеливания, токсичность, необходимы высококвалифицированные навыки | Wang и др., Методы Mol Biol. (2013). |
| Инъекция вируса внутримозговой брожелудочковы | Быстро, просто, экономично | Отсутствие точного назначения, риск инфантицида | Ким и др., J Vis Exp. (2014). |
| Стереотактическая микроинъекция при P0 | Точное таргетирование, снижение риска материнского отторжения | Клеточная токсичность из-за вируса — не лучший вариант для изучения постпубертатных временных точек | Чен и др., J Vis Exp. (2018). |
| Генетическое скрещивание рекомбиназных линий | Неинвазивные | Отсутствие точного прицеливания, дорого | Робертсон и др., Nat Neurosci. (2013). |
Таблица 1: Краткое изложение предыдущих методов изучения клеточного и контурного эмбрионального и послеродового развития у грызунов.
Обсуждение
Изучение нейронных механизмов, лежащих в основе социального поведения на протяжении послеродового развития, крайне важно для понимания не только их возникновения, но и для понимания того, как эти механизмы могут быть нарушены факторами окружающей среды или при нейроразвитийных расстройствах. В нашем исследовании описан подробный протокол стереотаксической хирургии для точной и эффективной доставки вируса в мозг мышей P11-12. Таким образом, этот протокол позволяет манипулировать, фиксировать и изучать схемы молекулярно определённых нейронных субпопуляций до и после полового созревания с использованием вирусной стратегии. Мы выделяем предоперационные и послеоперационные модификации и уход, а также безопасную комбинацию анестезиологических и обезболивающих средств, которые хорошо переносятся младенцами.
Ключевой и сложный элемент стереотаксической хирургии младенцев — успешное возвращение младенца в домашнюю клетку вместе с матерью и братьями в пометке. Для обеспечения надлежащего ухода за младенцем при повторном введении в клетку мать должна забрать и ухаживать за младенцем (без чрезмерного ухода), а любые признаки возможного пренебрежения должны тщательно контролироваться. Из-за разреза и швов у младенца плотина может чрезмерно ухаживать за головой, что может привести к разрыву и снятию швов. Это было бы вредно, и поэтому мониторинг поведения матери по отношению к младенцу после операции критически важен для обеспечения выживания. Чтобы повысить прием младенца после операции, мы рекомендуем использовать перекись водорода и физиологический раствор после швов для очистки оставшихся кровяных остатков с кожи и шерсти, а также использовать более тонкие швы (7-0), чем у взрослых (5-0). Эти две стратегии привели к тому, что мать приняла мышей после операции.
Кроме того, наше исследование предоставляет рекомендации по безопасному использованию анестезии и обезболивающих средств при операциях у младенцев. Это критично важно, поскольку новорождённые и младенцы мыши не выдерживают дозировки обезболивающих и анестезии, как взрослые, что может привести к негативным респираторным и сердечнымпобочным эффектам 6. Мы наблюдали, что изофлуран — пероральная анестезия — и комбинация мелоксикама и бупивакаиновой анальгезии, введённые подкожно (внутрикупулярно и под кожей головы соответственно), хорошо переносились младенцами и обеспечивали долгосрочную выживаемость. Кроме того, ранее мы показали, что стереотаксическая хирургическая процедура у младенцев привела к аналогичным временам исследования по отношению к сородичам у молодых мышей через 2 недели после операции по сравнению с возрастными контрольными группами, которые не проходилиоперацию 14. Таким образом, эти результаты свидетельствуют о достаточном восстановлении и отсутствии явных моторных дефицитов после операции у младенцев мышей. Стоит отметить, что мы не измеряли насыщение кислородом в крови на протяжении всей операции. Уровень кислорода в крови следует контролировать с помощью пульсоксиметра, чтобы предотвратитьгипоксию 17.
Ещё одним важным компонентом этого протокола является использование стереотаксичной системы координат, основанной на лямбде и RCS на сагиттальной средней линии15. RCS — это ориентир, определяемый пересечением верхнего сагиттального синуса и верхнего обонятельного синуса вдоль сагиттальной средней линии. Этот ориентир демонстрирует стабильно меньшую изменчивость положения по сравнению с другими дорсальными ориентирами после глобального выравнивания головы. Это так, поскольку увеличенное расстояние между RCS/лямбда по сравнению с bregma/lambda повышает стабильность и воспроизводимость межживотного горизонтальногоугла 15.
Предыдущие методы изучения развития нейронов были сосредоточены на вирусных стратегиях в эмбриональном и P0-временных точках, а также на генетических скрещиваниях для интересующих судьбоносных картографических клеток (Таблица 1). Методы, такие как электропорация в утробе и инъекции вируса в мозговой бровенулочек, не имеют точного нацеливания. Проведение таргетных вирусных инъекций наP0 18 позволяет решить эту проблему, точно вводя вирусную конструкцию в интересующую область. Однако вирусные конструкции могут стать цитотоксичными через несколько недель, что приводит к гибели клеток. Поэтому введение вирусного конструкта в мозг новорождённого для продольных исследований полового созревания, которые могут продолжаться во взрослом возрасте, может быть не лучшим вариантом. Поэтому наш подход, при котором вирусная инъекция происходит через полторы недели после рождения, снижает риск токсичности клеток в период полового созревания.
Несмотря на преимущества нашего подхода, остаётся несколько факторов. Во-первых, координаты мозга, используемые у младенцев мышей, должны быть изменены по сравнению с теми, что применяются у взрослых. Например, у мышей P11 мы используем следующие координаты для набора MeApd: X= +2,03 мм, Y= -4,20 мм, Z= -5,08 мм; в то время как у взрослых используется координаты: X= +2,15 мм, Y= -5,00 мм, Z= -5,10 мм. К сожалению, для мышей19 лет в атласах мозга меньше, чем для взрослых мышей (Allen Mouse Brain Atlas, mouse.brain-map.org и atlas.brain-map.org)20,21. Поэтому для успешного достижения правильного вирусного таргетирования в других областях мозга за пределами MeA, исследователям необходимо получить обоснованную оценку координат и провести координационное тестирование. Во-вторых, необходимо учитывать время инкубации AAV. Оптимальное время инкубации для экспрессии AAV in vivo составляет не менее 2-3 недель. Учитывая, что по нашему протоколу стереотаксическая хирургия проводится у младенцев мышей с P11, исследователи смогут начать тестирование мышей после операции только на P25, после оптимального инкубационного периода AAV.
В целом, этот протокол предоставляет подробные рекомендации для исследователей по высокоточному воздействию на интересующие области мозга у младенцев мышей с использованием вирусных векторов. Этот подход весьма выгоден, так как он чрезвычайно гибок: можно впрыскивать любую коммерческую или индивидуальную конструкцию AAV. Таким образом, она позволяет изучать молекулярно определённые интересующие клеточные субпопуляции и их анатомические цепи, динамику нейронов и роль клетки до и после полового созревания в критический временной окно, совпадающий с появлением социальных поведенческих особенностей. Кроме того, этот подход эффективен для поражения не только миндалины, как показано здесь, но и других субкортикальных структур, таких как гипоталамус и корковые области.
Раскрытие информации
У авторов нет никаких конфликтов интересов, о которых можно было бы заявлять.
Благодарности
Мы благодарим доктора Эндрю Гормана, доктора Донну Уэбб и Дэвида Гулдинга из отделения сравнительной медицины (CMB) Национального института наук о здоровье окружающей среды (NIEHS/NIH) за ценные обсуждения лучших практик в анестезии и анальгезии при операциях на грызунах. Мы также благодарим всех членов CMB в NIEHS за их максимальное внимание к животным и всем членам группы нейроповеденческих цепей. Эта работа была поддержана Внутренней исследовательской программой Национального института экологических наук о здоровье, Национальных институтов здравоохранения (NIEHS/NIH) (ZIA ES103403) (J.E.L.). Вклад авторов NIH считается работами правительства Соединённых Штатов. Выводы и выводы, представленные в этой статье, принадлежат авторам и не обязательно отражают позиции NIH или Министерства здравоохранения и социальных служб США.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Сверло #75 | Город буровых долочек | 10WS75-850FL | |
| Игла 27 G | Коветрус | 60757 | |
| 3% перекиси водорода | Лебедь | NDC 0809-0871-43 | |
| 32% параформальдегид | Науки об электронной микроскопии | 15714 | |
| AAV2-hSyn-DIO-mCherry | Addgene | 50459-AAV2 | |
| Alexa Fluor 488 AffiniPure Donkey (1:1000) Anti-Rabbit IgG (H+L) | Jackson Immuno Research | 711-545-152 | |
| Аналитический баланс | Сарториус | 1102--15 | |
| Бетадин | Аптека Avrio | NDC 67618-155-15 | |
| Бупивакаин | Hospira | NDC 0409-1163-18 | |
| Криостат | Leica | CM1950 | |
| Дисецирующий микроскоп | Zeiss | 2149-629 | |
| Глазная мазь | Dechra Veterinary | Пуралубе | |
| Флюоромонтные монтажные носители с DAPI | Термо Фишер Сайентифик | 00-4959-52 | |
| Антитела Foxp2 (1:1000) | Антитело Atlas/Cosmo Bio | HPA000382 | |
| Мыши Foxp2cre+/- мыши | Лаборатория Джексона | 30541 | |
| Держатель для головы и планка для нёба для щенков P12 | David Kopf Instruments | 1934-C | |
| Стеклянный бусиновый стерилизатор | Fisher Scientific | 10-000-632 | |
| Стеклянный капилляр | World Precision Instruments | 504949 | |
| Держатель для стеклянных пипеток | David Kopf Instruments | 1975-1.2-A | |
| Грелка | Kent Scientific Корпорация | RT-0520 | |
| Изофлуран | Пирамаль в центре критической терапии | NDC 66794-017-10 | |
| Мелоксикам | Ветеринарный материал Pivetal | NDC 46066-937-13 | |
| Микродрилл | David Kopf Instruments | Дрель модели 1911 года | |
| Гибкая игла Microfil | World Precision Instruments | MF28G67-5 | |
| Микроскопические слайды | Термо Фишер Сайентифик | 12-550-15 | |
| Минеральное масло | Сигма-Олдрич | M5904-500ML | |
| Нанолитровый инжектор | World Precision Instruments | NANOLITER2020 | |
| Невпитываемый шов | AD Surgical | С-N718SP13 | |
| Ушные стержни без восторга | David Kopf Instruments | 1921-A | |
| Обычная ослиная сыворотка | Jackson ImmunoResearch | 017-000-121 | |
| O.C.T. Compound | Сакура | 4583 | |
| Стереотаксичный риг | David Kopf Instruments | 1900 | |
| Стерильный ватный тампон | ULINE | S-21102 | |
| Стерильная драпировка | Одноразовые товары больницы Буссе | 696 | |
| Стерильный физиологический раствор | Hospira | NDC 0409-1966-02 | |
| Стерильная вода | Hospira | NDC 0409-4887-24 | |
| Сахароза | Фишер Кемикал | S5-500 | |
| Шприц | Fisher Scientific | 50-252-2568 |
Ссылки
- Andersen, S. L. Trajectories of brain development: Point of vulnerability or window of opportunity. Neurosci Biobehav Rev. 27 (1-2), 3-18 (2003).
- Zeiss, C. J. Comparative milestones in rodent and human postnatal central nervous system development. Toxicol Pathol. 49 (8), 1368-1373 (2021).
- Bell, M. R. Comparing postnatal development of gonadal hormones and associated social behaviors in rats, mice, and humans. Endocrinology. 159 (7), 2596-2613 (2018).
- Auger, A. P., Olesen, K. M. Brain sex differences and the organisation of juvenile social play behaviour. J Neuroendocrinol. 21 (6), 519-525 (2009).
- Barkley, M. S., Goldman, B. D. A quantitative study of serum testosterone, sex accessory organ growth, and the development of intermale aggression in the mouse. Horm Behav. 8 (2), 208-218 (1977).
- National Research Council (US) Committee on Guidelines for the Use of Animals in Neuroscience and Behavioral Research. Guidelines for the care and use of mammals in neuroscience and behavioral research. , The National Academies Press. (2003).
- Wang, C., Mei, L. In utero electroporation in mice. Methods Mol Biol. 1018, 151-163 (2013).
- Kim, J. Y., Grunke, S. D., Levites, Y., Golde, T. E., Jankowsky, J. L. Intracerebroventricular viral injection of the neonatal mouse brain for persistent and widespread neuronal transduction. J Vis Exp. (91), e51863(2014).
- Robertson, S. D., Plummer, N. W., De Marchena, J., Jensen, P. Developmental origins of central norepinephrine neuron diversity. Nat Neurosci. 16 (8), 1016-1023 (2013).
- Geiger, B. M., Frank, L. E., Caldera-Siu, A. D., Pothos, E. N. Survivable stereotaxic surgery in rodents. J Vis Exp. (20), e880(2008).
- Prakash, N., Abu Irqeba, A., Corbin, J. G. Development and function of the medial amygdala. Trends Neurosci. 48 (1), 22-32 (2025).
- Raam, T., Hong, W. Organization of neural circuits underlying social behavior: A consideration of the medial amygdala. Curr Opin Neurobiol. 68, 124-136 (2021).
- Lischinsky, J. E., et al. Embryonic transcription factor expression in mice predicts medial amygdala neuronal identity and sex-specific responses to innate behavioral cues. Elife. 6, e21012(2017).
- Lischinsky, J. E., et al. Transcriptionally defined amygdala subpopulations play distinct roles in innate social behaviors. Nat Neurosci. 26 (12), 2131-2146 (2023).
- Chan, E., Kovacević, N., Ho, S. K., Henkelman, R. M., Henderson, J. T. Development of a high resolution three-dimensional surgical atlas of the murine head for strains 129s1/svimj and c57bl/6j using magnetic resonance imaging and micro-computed tomography. Neuroscience. 144 (2), 604-615 (2007).
- Tu, L., et al. Free-floating immunostaining of mouse brains. Methods Mol Biol. 176, 1-12 (2021).
- Thal, S. C., Plesnila, N. Non-invasive intraoperative monitoring of blood pressure and arterial pCO during surgical anesthesia in mice. J Neurosci Methods. 159 (2), 261-267 (2007).
- Chen, S. -Y., Kuo, H. -Y., Liu, F. -C. Stereotaxic surgery for genetic manipulation in striatal cells of neonatal mouse brains. J Vis Exp. (137), e57270(2018).
- Kronman, F. N., et al. Developmental mouse brain common coordinate framework. Nat Commun. 15 (1), 9072(2024).
- Dong, H. W. The Allen reference atlas: A digital color brain atlas of the C57BL/6J male mouse. , John Wiley & Sons. (2008).
- Paxinos, G., Franklin, K. B. The mouse brain in stereotaxic coordinates. , Academic Press. (2004).
Перепечатки и разрешения
Эта статья была опубликована
Видео скоро будет доступно