Функция хрусталика для фокусировки света на сетчатке зависит от прозрачности тканей, биомеханики и показателя преломления. В этом обзоре подчёркивает трёхмерную архитектуру линзы и рассматриваются сложные механизмы, поддерживающие гомеостаз тканей.
Для просмотра этого контента требуется подписка на JoVE. Войдите или начните свой бесплатный пробный период.
Обзорная статья
Фокус глазной хрусталика млекопитающих: развитие, анатомия, физиология, прозрачность, биомеханика и возрастные вызовы
В этой статье
Краткое содержание
Аннотация
Хрусталик — это прозрачный эллипсовидный орган в передней камере глаза, который фокусирует свет на сетчатке. Состоящая из эпителиальных и волокнистых клеток, эта трёхмерная ткань хорошо организована для обеспечения чистого светового пути и использует различные стратегии для установления и поддержания высокого показателя преломления и прозрачности. У человека хрусталик меняет форму, фокусируя свет с разных расстояний в процессе, называемом аккомодация, и эти эластичные и биомеханические свойства хрусталика зависят от тканевых, клеточных и молекулярных механизмов. Катаракта, определяемая как любая непрозрачность в обычно прозрачном хрусталике, остаётся ведущей причиной слепоты в мире. Пресбиопия, вызванная возрастными изменениями жёсткости хрусталиков, связана с аккомотативным снижением и необходимостью в очках для чтения. В этом обзоре будет рассмотрено развитие хрусталиков у млекопитающих и их пожизненный рост, кристаллы и цитоскелетные белки, коммуникацию и микроциркуляцию между клетками, биомеханику хрусталиков, а также задачи и новые методы изучения этой уникальной ткани.
Введение
Глазная хрусталика на первый взгляд представляет собой относительно простую ткань, состоящую из двух типов клеток: эпителиальных клеток и волоконных клеток. Основная масса хрусталика состоит из волоконных клеток, а переднееполушарие 1 покрывает монослой эпителиальных клеток (рисунок 1A). Вся ткань заключена в тонкую базальную мембрану, называемую капсулой линзы, которая в основном состоит из коллагена IV и ламинина, как описано в предыдущемобзоре 2. Из-за отсутствия кровоснабжения и нервов хрусталик подвешен в передней камере глаза эластичными зонулярными волокнами (также известными как зонулы), соединяющими капсулу с ресничнымтелом 1. Передние или центральные эпителиальные клетки линзы кубовидны и расположены в булыжномузоре 3,4,5 (рисунок 1A, светло-голубые клетки, вверху). Эти клетки находятся в состоянии покоя и неразмножаются 6. Непосредственно перед экватором линзы эпителиальные клетки делятся в зародышей зоне (рисунок 1A, оранжевые клетки, вверху справа), и эти экваториальные клетки мигрируют к экватору, где становятся сильно упорядочёнными в меридиональные ряды с шестиугольной формойячеек 7,8,9,10 (рисунок 1A, зеленые ячейки, вверху справа). Меридиональные рядовые клетки закрепляют свои верхушечные кончики на фальце, или модиолусе, и начинают удлиняться и дифференцироваться в новые вторичные волокнистые клетки (рисунок 1A, внизу слева). Апикальные кончики вторичных волокон мигрируют к переднему полюсу, взаимодействуя с апикальной стороной эпителиальных клеток, образуя необычный апикально-апикальный переход3 (рисунок 1A, красная линия). Задние базальные кончики новообразованных волокон простираются к заднему полюсу, двигаясь вдоль капсулы хрусталика (рисунок 1A, нижний левый угол). Когда кончики удлиняющихся волоконных клеток достигают переднего или заднего полюса, клетки отделяются от передних эпителиальных клеток или задней капсулы и встречаются с кончиками клеток, простирающихся с противоположной стороны ткани, образуя шов 11,12,13 (рисунок 1A, вверху слева). Клетки хрусталики имеют удлинённую шестиугольную форму с поперечным сечением с двумя длинными/широкими сторонами, 4 короткими сторонами и 6 трёхклеточными соединениями (рисунок 1A, внизу справа)14. Минимальное межклеточное пространство между соседними волокнистыми клетками снижает рассеяниесвета 14. Постоянное добавление клеток корковых волокон на периферии, наложенных на предыдущие поколения волокон, способствует пожизненному ростухрусталики 14,15. Центр хрусталика называется ядром, и эта область хрусталика имеет повышенную жесткость по сравнению с периферией или коры, как описано в предыдущемобзоре 16.
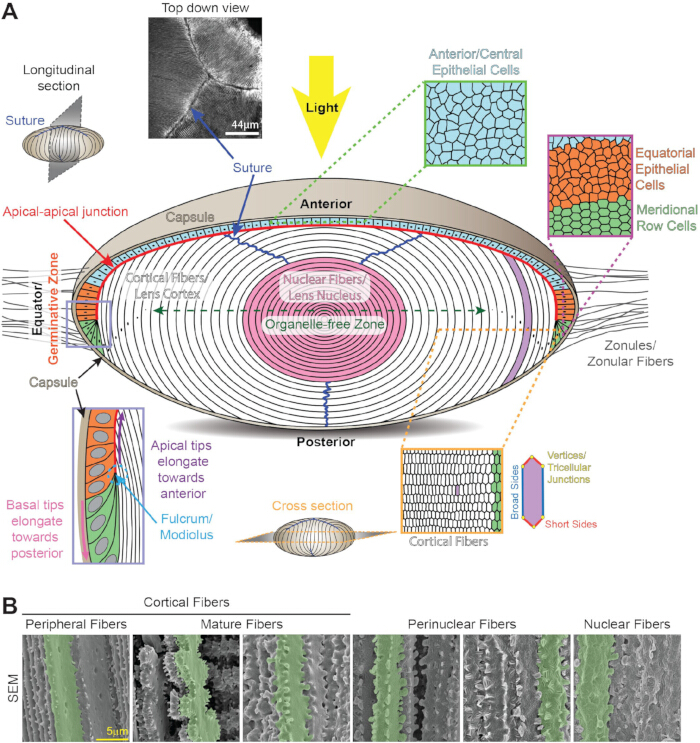
Рисунок 1: Анатомия и структура хрусталика. (A) Хрусталик состоит из монослоя эпителиальных клеток (светло-голубых, оранжевых и светло-зелёных), покрывающих переднее полушарие, и массы волокон хрусталик (белых и розовых). Тонкая коллагеновая мембрана, называемая капсулой линзы (тан), охватывает ткань. Хрусталик подвешен в передней камере глаза зонулярными волокнами (зонулами), вставленными в капсулу вокруг экватора хрусталика. Передние/центральные эпителиальные клетки (светло-голубые, сверху) имеют кубическую форму и имеют булыжник по поперечному сечению. Экваториальные эпителиальные клетки (оранжевые) в зародывающей зоне трансформируются из случайно упакованных клеток (оранжевые) в организованные меридиональные ряды шестиугольных клеток (зелёный). Меридиональные рядовые клетки удлиняются, превращаясь в новые слои кортикальных вторичных волоконных клеток (белых) на периферии хрусталика. Верхушечные кончики вновь образовавшихся вторичных волокон закрепляются в точке опоры/модиоле (барвинковый ящик, внизу слева). Верхушечные кончики удлиняющихся вторичных волокон мигрируют к переднему полюсу вдоль апикальной стороны клеток эпителиального линзического линзического отделения и образуют необычное апикально-апикальное соединение (красную линию). Базальные кончики удлиняющихся волокон мигрируют к заднему полюсу вдоль задней капсулы. Когда вторичные волокна полностью удлиняются, кончики отделяются от переднего эпителия или задней капсулы, образуя шов хрусталика (тёмно-синие линии и изображение в верхнем левом углу). Клетки хрусталикового волокна представляют собой удлинённые шестиугольники в поперечном сечении (внизу справа) с двумя длинными/широкими сторонами, 4 короткими сторонами и 6 трёхклеточными соединениями. Во время созревания волокнистых клеток все клеточные органеллы удаляются, чтобы образовать зону без органелл (тёмно-зелёная стрелка с двумя головами) и минимизировать рассеяние света. Самые древние клетки хрусталиковых волокон уплотняются в центре ткани, формируя ядро хрусталика (розовое). Мультфильмы не рисованы в масштабе. (B) Сканирующие изображения волокнистых клеток с помощью сканирующего электронного микроскопа на разной глубине хрусталика показывают изменяющуюся морфологию клеток во время дифференцировки и созревания. Отдельные ячейки выделены зелёным цветом для выделения. Кортикальные периферические волокна имеют шарикообразные пересечения вдоль длинных сторон и небольшие выступы вдоль коротких сторон. Во время созревания волокнистых клеток короткие стороны зрелых клеток украшают большие лопатки, украшенные мелкими выступами и крупными выступами. Перинуклеарные волокна имеют промежуточные языки и борозды по всей мембране и крупные выступы вдоль коротких сторон. Ядерные волокна имеют крупные выступы вдоль коротких сторон и морфологию шаровидной мембраны. Шкала — 5 мкм. Изменено с 16 328. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
Сложность хрусталика заключается в высокоупорядоченном трёхмерном (3D) расположении клеток, специализированном созревании волоконных клеток, которое разрушает и удаляет все клеточные органеллы, а также молекулярных и клеточных механизмах для установления и поддержания прозрачности и высокого показателя преломления ткани. Отсутствие клеточных органелл в большинстве клеток хрусталиковых волокон увеличивает трудности в поддержании здоровья и долговечности каждой клетки хрустали, когда-либо созданных на протяжении жизни организма. Хрусталик является отличной тканью для изучения старения и возрастных изменений, поскольку центральные клетки формируются в раннем эмбриональном развитии, и хрусталик продолжает генерировать новые клетки на периферии ткани на протяжении всей жизни, что позволяет изучать клетки, которые хронологически стары, а не клетки, созданные в старости. Функция тонкой фокусировки линзы позволяет формировать чёткое изображение на сетчатке с объектов на разных расстояниях и зависит от способности хруста менять форму или приспособляться. Хрусталик — это несоединительная и немышечная ткань, для которой для нормального функционирования необходимы биомеханические свойства.
Основной причиной нарушения зрения является возраст17 лет. Возрастные изменения приводят к двум основным заболеваниям хрусталиков: катаракте ипресбиопии 18. Катаракта или любая непрозрачность хрусталиков остаётся ведущей причиной слепоты в мире19 и вызвана генетическими и экологическими факторами, включая ультрафиолетовое излучение, курение, диабет и окислительный стресс, которые приводят к агрегации белков и/или дефектам клеток, как описано в предыдущихобзорах 18,20,21,22,23,24,25 . Пресбиопия, возрастное снижение аккомодации, вызвана снижением способности линзы менять форму при фокусировке на близких объектах и, соответственно, необходимостью в очках длячтения 26,27,28. Всемирная организация здравоохранения оценивает, что в мире насчитывается как минимум 1 миллиард человек с невыявленными нарушениями зрения, включая 65,2 миллиона человек с катарактой и 826 миллионов человек спресбиопической (17). В условиях старения населения возникает острая необходимость лучше понять физиологию и биологию хрусталика.
В этом обзоре рассматриваются структуры тканей, расположение клеток и молекулярные механизмы, важные для функции и гомеостаза хрусталиков млекопитающих, а также некоторая информация о хрусталах других позвоночных. Цель — дать общий обзор биологии и физиологии хрусталика с ссылками на дополнительные подробные обзоры. Темы включают развитие эмбрионального хрусталика, послеродовой рост хрусталик, трехмерное расположение клеток и тканей, биомеханические свойства ткани и микроциркуляцию. Основные белки хрустали, а именно кристаллы, цитоскелетные сети и клетко-клеточная коммуникация, обсуждаются ниже. Обзор завершится актуальными вызовами и новыми методами изучения этой уникальной ткани.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Обзор и перспектива
Развитие эмбрионального хрусталика и послеродовой рост хрусталика
У позвоночных хрусталик развивается из клеток поверхностной эктодермы, а будущий хрусталик начинается с утолщения поверхностной эктодермы над зрительнымпузырьком 6,29,30 (рисунок 2A). Вместе с образованием оптической чаши утолщённая эктодерма или плакода хрусталики проникает вхрусталик 6,29,30 (рисунок 2B). Актиновые филаменты (F-актин) прикрепляют заднюю ямку хрусталика к передней поверхности развивающейся оптической чашки для координации движения и изменения формы этих развивающихсятканей 31, 32, 33, 34, а для инвагинации в хрулик требуется апикальное сужение клеток линзике35, 36, 37, 38, 39, 40(Рисунок 2C). Отверстие в кристаллической яме продолжает сужаться, пока отверстие не закрывается, поскольку клетки стебелья хрусталик проходятапоптоз 41,42,43. Везикула хрусталика отделяется от будущей роговицы эктодермы, образуя хрусталик — полую сферу эпителиальныхклеток 6,29,30 (см. рисунок 2D). Задние эпителиальные клетки в везикуле хрусталика удлиняются к переднему эпителию и дифференцируются в первичные волокнистые клетки, заполняя полость и образуя эмбриональную хрусталик (рисунок 2E). Монослой эпителиальных клеток, покрывающих переднее полушарие, сохраняется, при этом в полностью сформированном эмбриональном хрусталице отсутствуют задние эпителиальные клетки (рисунок 2F). Первичные волокнистые клетки образуют самую центральную часть ядра хрусталика и окружены новыми поколениями вторичных волокон, которые добавляются с периферии хрусталика или коры на протяжении всей жизни 6,29,30. В то время как у большинства позвоночных хрусталик образуется путём инвагинации, у данио-рерио-реза плакон утолщается, а затем расслоивается, образуяхрусталик 44.
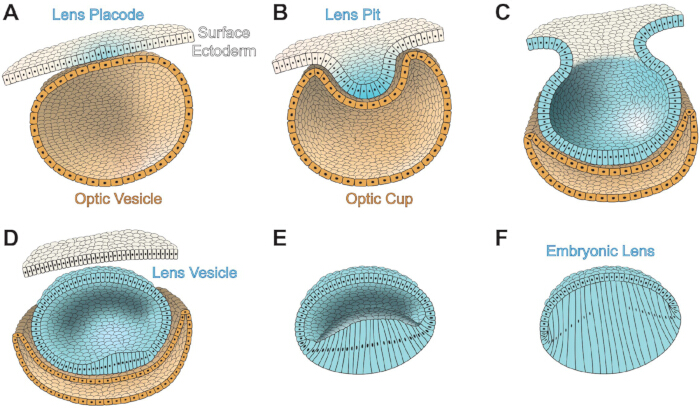
Рисунок 2: Развитие эмбрионального хрусталика у глаз млекопитающих. Поверхностные эктодермы белые, клетки хрусталика светло-голубые, а клетки оптической чашки/пузырьков — песчаного цвета. (A) Эмбриональная пластинка хрусталика (светло-голубая) формируется из поверхностной эктодермы. Позади поверхностной эктодермы и пластинки хрусталика находится зрительный пузырь. (B) Инвагинация плакода хрусталика образует хрусталевую ямку, а инвагинация зрительной пузырьки — зрительную чашу. Передняя зрительная чаша развивается в радужку и ресничное тело, а задняя — в пигментированный эпителий сетчатки и сетчатки. (C) Отверстие с табличкой линзы сужается, пока отверстие не закроется. (D) Везикула хрусталика отделяется от поверхностной эктодермы и представляет собой полую сферу, выстланную эпителиальными клетками линзы. (E) Задние эпителиальные клетки в везикуле хрусталика начинают удлиняться и дифференцироваться в первичные хрусталики. (F) Волокна первичного хрусталика заполняют полость везикула хрусталика, формируя эмбриональную хрусталику. Мультфильмы не рисованы в масштабе. Создано по образцу 411. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
Во время эмбрионального развития хрусталик окружён корзинообразной сетью кровеносныхсосудов 6,45,46. Эти сосуды берут начало от гиалоидной артерии сетчатки и начинают образовывать сеть в задней части хрусталики и в конечном итоге образуют упорядоченный сетчатый элемент tunica vasculosa lentis для питания эмбрионального хрусталика до полного развития передней камеры и водного образованияжидкости 6,45. Эти сосуды регрессируют и исчезают, чтобы обеспечить чистый световой путь до рождения или до открытия глаз, в зависимости отвида 6,45,46,47.
Pax6 необходим для раннего развития глаз48, 49, 50, 51, 52 и необходим и достаточно для развитияхрусталик 53, 54, 55, 56. Фосфорилирование и SUMOилирование Pax6 регулируют функцию этого транскрипционного фактора в процессе развития мозга, центральной нервной системы иглаз 57,58,59,60. Другие важные сигнальные пути, необходимые для развития эмбрионального глаза и хрусталиков, пересекаются с сигнальными средствами Pax6, включая энхансеры [Meis, костные морфогенные белки (Bmp) и фактор роста фибробластов (FGF)] и нижние белки [Foxe3 и ретиноевая кислота (RA)], как описано в предыдущемобзоре 61. Meis1 и Meis2 связываются с энхансерной областью гена Pax6 и необходимы для индукции хрусталика упозвоночных 62. Генетические исследования показывают, что Bmp7 необходим для формирования плакода хрусталика, регулируя экспрессиюPax6 63,64. Foxe3 находится после сигнализации Pax6 и необходим для развитияхрусталика 65,66, особенно для чистого отделения стебелья хрусталика от поверхностной эктодермы при формировании везикула хлинзы. Потеря Foxe3 приводит к врождённым дефектам глаз, известным как аномалияПитерса 67. Сигнализация рецепторов FGF (FGFR) сотрудничает с Bmp7 для регулирования экспрессии Pax6, что, в свою очередь, влияет на уровни Foxe3 в развивающейсяхрусталице 68. Экспрессия ингибиторной формы FGFR приводит к задержке образования плакода хрусталика, неполному отделению стебля хрусталика и небольшомупузырьку 68. Нарушение сигнализации РА приводит к дефектам формирования глаз69, и при нарушении Pax6 экспрессия РА снижается, что указывает на перекрёстные контакты между двумя сигнальнымипутями 70.
После полного формирования эмбрионального хрусталика предполагается, что непрерывный рост хрусталика через пролиферацию и дифференцировку экваториальных эпителиальных клеток во вторичные хрусталические волокна обусловлен сигналами фактора роста, главным образом через FGF у млекопитающих, как описано в предыдущемобзоре 71. FGF более распространены в стекловидном корпусе, чем в водном влошении, что создаёт градиент усиливающихся сигналов роста и дифференцировки вблизи экваторахлинзы 72,73. Линза экспрессирует 3 из 4 FGFR: FGFR1, FGFR2 и FGFR3, с увеличением экспрессии на и позади экваторахрусталки 74,75. Чрезмерная экспрессия FGF вызывает аномальное удлинение и дифференцировку обычно спокойных передних эпителиальных клеток в волокнообразныеклетки 76,77,78. Помимо сигнализации FGF, ингибиторные анализы показали, что путь BMP играет роль в удлинении волокнистыхклеток 79,80, а аномальный трансформирующий фактор роста бета (TGFβ) нарушает нормальное созревание волокнистыхклеток 81.
Прозрачность линза и показатель преломления
Волокнистые клетки хрусталиков проходят специализированный процесс удаления всех клеточных органелл во время созревания, чтобы устранить объекты, рассеивающие свет, на световом пути, и создать зону без органелл (OFZ)82 (рисунок 1A). Координированная потеря всех клеточных органелл происходит быстро, когда волокнистые клетки достигают определённой стадии программированиясозревания 83,84,85,86,87,88. Аномальная деградация органелл приводит к катаракте, и несколько моделей данио-ребриша и мышей (knockout, KO), выявили гены для деградации хроматина иДНК 89,90,91,92,93, циклин-зависимых киназ 94,95, фактора теплового шока4 91,96,97,98 и PLATT фосфолипазы99 которые важны для формирования OFZ. Аномальная экспрессия или мутации в клеточных мембранах и цитоскелетных белках 100,101,102,103,104, кристаллинов 105,106,107 и онкогенов108,109 также могут влиять на удаление органелл и прозрачность хрусталиков. Однако точный сигнал, вызывающий деградацию органелл в волоконных клетках, остаётся неясным. Недавние исследования показали важность белков, связывающих РНК, в развитии хрусталика и катарактогенезе, как описано в предыдущемобзоре 110. Нарушение РНК-связывающих белков, включая Tdrd7111, caprin2112, Rbm24113 и Celf1 114,115,116, приводит к аномальному развитию хрусталиков, нарушению деградации органелл и катаракте.
По сравнению с большинством типов клеток в организме, волокнистые клетки хрустликов у млекопитающих обладают чрезвычайно высокой концентрацией белка (200–450 мг/мл)117 118 119 120. Белки составляют 30–35% от общей массы хрусталик, и, следовательно, в хрусталице относительно низкое содержание воды — около 65–70%121 122. Девяносто процентов белков линзы по массе составляюткристаллы 123, а в хрустах млекопитающих существует 3 семейства кристаллических белков: α, β и γ, как описано в предыдущихобзорах 124 125. Высокое содержание белка обычно увеличивает риск появления агрегатов, превышающих половину длины волны света, что приводит к рассеяниюсвета 126, но кристаллические белки организованы в цитоплазме волокнистых клеток с коротким порядком для обеспечения высокого показателя преломления ипрозрачности 117,127. Агрегация белков ослабляется за счёт шаперонных функций α-кристаллинов, описанных ниже. Градиентный показатель преломления (GRIN) через хрусталик способствует фокусировке света, как описано в предыдущихобзорах 128,129, а максимальный показатель преломления в центре хрусталика коррелирует с уплотнением ядерных волоконныхклеток 130,131,132. В хрусталах рыб данные показывают, что высокий показатель преломления в ядре является результатом транспорта белка в центрткани 133. Равномерное распределение кристаллических белков по клеткам и между оболочками волокон, предполагается, что облегчается макромолекулярным транспортным путём через слияния мембран вдоль мембранволокнистых клеток 134,135. Однако мембранные слияния не были чётко обнаружены в мышиныхлинзах 136, 137, 138, а исследования импеданса в линзах нескольких видов не выявили мембранныхслияний 139, 140, 141, 142. Данные с мышиных моделей с нарушением коммуникации между разрывами показывают, что связь между клетками и удлинение волоконных клеток также способствуют макромолекулярному транспортномупути 143.
Кристаллы имеют молекулярную массу ~20–30 кДа и играют структурную и преломляющую роль в хрустике. Альфа-кристаллины состоят из αA и αB субъединиц, которые имеют общий гомологическийхарактер 55–60% 144 145 146, и хотя αB повсеместно экспрессируется в большинстве клеток, αA-кристаллин преимущественно экспрессируется в хрусталице и обнаружен на низких уровнях в других тканях, включая селезёнку итимус 147 148. Недавние исследования также показали, что пигментированные эпителиальные клетки сетчатки и ганглиозные клетки сетчатки могут экспрессировать αA-кристаллин во время стресса или болезни, предположительно для обеспечения нейропротекторногоэффекта 149,150,151. Альфа-кристаллины обычно ассоциируются с крупными гетеромультимерами из 30–35 смешанных αA и αBсубъединиц 123. В эпителии линзы мыши, крупного рогатого скота и человека в передних клетках обнаруживается только αB, тогда как αA и αB существуют в соотношении 1:3 в экваториальных клетках; Это соотношение меняется до 3:1 во время дифференцировки и удлинения вторичныхволоконных клеток 123,152,153. Альфа-кристаллины относятся к семейству малых белков теплового шока и выполняют функции, похожие нашаперонов 154, что позволяет им связываться и удерживать аномальные или неразвернутые белки, предотвращая дальнейшее агрегирование белков. Малые α-кристаллинные пептиды изучались для предотвращения заболеваний, вызванных агрегацией белков, включая катаракту, как описано в предыдущемобзоре 155. Однако повышенная или сниженная шаперон-активность α-кристаллинов в моделях мышей демонстрирует, что оба сценария приводят к увеличению тяжести катаракты и указывают на то, что соответствующая шаперон-активность α-кристаллинов имеет решающее значение для прозрачностилинзы 156. Бета- и γ-кристаллины принадлежат к собственному семейству белков β/γ и являются специфическими для волокнистых клеток; У млекопитающих существует 7 изоформ β-кристаллинов, которые существуют как димеры, тетрамеры или олигомеры высшего порядка, а также 7 изоформ γ-кристаллинов, которые являются мономерами, как описано в предыдущемобзоре 125. Помимо структурных функций, β и γ-кристаллины связывают ионы кальция и регулируют доступность и запасы ионов кальция в волокнаххрусталика 157, 158, 159, 160, 161.
Цитоскелетные и мембранные белки хрусталики
Клетки линзового эпителия и волокна имеют сети промежуточных нитей F-актина, кератина или виментина, специализированных промежуточных нитей с бусинкой и микротрубочков, как описано в предыдущих обзорах. 162 163 164 165 166. Помимо функций в развитии глаз ихрусталик, 31,32,33,34, различные F-актиновые сети в эпителиальных и волоконных клетках хрусталиков важны для прозрачностихрусталиков 167,168,169,170,171,172. Недавние исследования показали, что изменение F-актиновой сети влияет на биомеханику хрусталика173, 174, 175, 176. Промежуточные нити, состоящие из виментина или кератина, встречаются только на ранних стадиях дифференцировки клеток хрусталиков или в период эмбрионального развития, соответственно177, 178, 179, 180, 181; в отличие от этого, все волокна хрусталик имеют промежуточные филаменты, состоящие из гетеродимеров филензина (также известного как CP95/CP115, кодируемых Bsfp1) и CP49 (также известного как факинин, кодируемых Bsfp2)182,183,184. Бусинчатый вид этих гетеродимеров обусловлен олигомерами, состоящими из CP49 и филенсина, украшающими ядро филамента185,186, и связыванием α-кристаллинов вдоль этих специализированных промежуточныхнитей 187,188,189,190,191. Потеря либо филенсина, либо CP49 приводит к полной потере этой сети 192,193,194,195. Нарушение промежуточных нитей виментина или промежуточных нитей с бусинами вызывает катаракту у людей и животных моделей 192,193,196,197,198,199,200,201,202,203,204, показывая важность этих цитоскелетных сетей для прозрачности линзы. Недавние исследования свидетельствуют о том, что микротрубочки важны для удлинения205 206 и образования зоны, свободной оторганелл, 177.
Соединения адхеренсов, взаимодействующие с актиновым цитоскелетом, важны для формированияхрусталики 207 и дифференцировки волоконных клеток. E-кадгерин и N-кадгерин оба экспрессируются в эпителиальных клеткахлинзы 208, 209, 210, 211, а E-кадгерин отключается в начале дифференцировкиволокнистых клеток 212. N-кадгерин высоко экспрессируется в клетках хрусталикового волокна и обогащается в середине базального шестиугольного стопы удлиняющихся волокнистыхклеток 8 209. Потеря N-кадгерина после формирования первичных волоконных клеток вызывает нарушение удлинения вторичных волокнистых клеток из-за аномальной миграции апикальных кончиков дифференцирующихся волокон вдоль апикальной поверхности передних эпителиальныхклеток 213. Нарушение двунаправленной сигнализации Eph-Ephrin в хрусталице вызывает дефекты в соединениях адгеренов 4,7,214,215,216.
Другие крупные белки хрустальной мембраны включают аквапорины; коннексины; MP20, как описано в предыдущемобзоре 217; галектин 3; галектин-связанный межволокнистый белок (GRIFIN); интегрины, как описано в предыдущемобзоре 218; а также секретируемый белок, кислый и богатый цистеином (SPARC). Аквапорины и коннексины обсуждаются в следующем разделе. MP20 (также известный как MP17 или Lim2) — это мембранный белок, специфический для хруста с функциями адгезии клетки85 219, который широко встречается в волокнистыхклетках 220 221; мутации в MP20 приводят к катаракте 222,223,224,225,226,227,228,229,230. Недавние исследования показали взаимодействие между MP20 и галектином 3, ещё одной важной клеточно-клеточной адгезией 231,232,233. GRIFIN, линзавидная специфическая изоформа галектина, локализована в мембранах волоконных клеток и взаимодействует с Pax6, кристаллинами и кадгеринами234, 235, 236, 237. Интегрины являются важными связующими элементами между внеклеточным матриксом (ЭКМ) и цитоскелетом, необходимыми для нормального развития хрусталиков. Изоформы интегрина, экспрессируемые в хрусталике, служат рецепторами для компонентов капсулы, таких как ламинин, коллаген илифибронектин 8,238,239,240,241,242,243,244,245. Каждый компонент матрицы может взаимодействовать с несколькими интегринами, что приводит к разнообразной передаче сигналов через пространственно-временную экспрессию интегринов во время развития и ростахрусталика 218. Особый интерес уделяется пониманию изменений в TGFβ, интегринах и компонентах ECM во время перехода от эпителия к мезенхиме в остаточных клетках хрусталикового эпителия после операции по катаракте, что приводит к затемнению задней капсулы, как описано в предыдущемобзоре 218. SPARC, молекула адгезии и пролиферации клеток, локализована в эпителии линзы и отсутствует в дифференцирующихволокнах 246. Потеря SPARC приводит к катаракте 246,247,248, и недавние исследования показали, что SPARC может обладать функциями, похожими на шапероны, 249, воздействует на интегрины и белкиECM 250,251,252, а также влияет на микроциркуляционныйпуть 253.
Микроциркуляторный путь аваскулярной ткани
Из-за нехватки кровоснабжения полностью сформированный хрусталик создаёт собственный микроциркуляционный путь для доставки питательных веществ и удаления отходов, как описано в предыдущих обзорах 254,255,256,257. Ионный ток входит в хрусталик на переднем и заднем полюсах и выходит наэкваторе 258. Внутренний ток зависит от перемещения натрия в внеклеточные пространства между клетками линзы на каждом полюсе по градиенту концентрации, созданному активным транспортом, а внешний ток облегчается каналами разрыва на мембранах волоконных клеток, концентрированных вблизи экватора линзы, позволяя ионам натрия выходить на экваторе259 линзы. Экваториальные эпителиальные и периферические волокнистые клетки обладают высокой экспрессией насосов Na+/K+ АТФазы, которые активно обменивают 3 иона натрия из клеток на 2 иона калия из внелентикулярнойсреды 260,261,262. Линза поддерживает высокую концентрацию калия (135 мм) и низкую концентрацию натрия (16 мм), чтобы создать условия для повторного проникновения натрия в линзу на полюсах по градиентуконцентрации 259 263. Помимо Na+/K+ АТФазы, ионный котранспортер Na-K-2Cl котранспортер 1 (NKCC1) также помогает регулировать концентрации ионов линзы через активацию механочувствительными каналами, как описано в предыдущемобзоре 264.
Разрывные соединения в хрусталице состоят из трёх коннексинов: коннексина 43 (Cx43 или α1), Cx46 (или α3) и Cx50 (или α8)265,266. Cx43 в основном экспрессируется в эпителиальных клеткахлинзы 267, и хотя инициация образования волоконных клеток нормальна в линзах Cx43 KO, интерфейс между эпителиальными и волокнистыми клетками имеет расширенное внеклеточное пространство и внутриклеточные вакуоли, что указывает на функцию Cx43 в осмотическомбалансе 268. Cx46 концентрируется в клетках хрусталиков, а Cx50 присутствует как в эпителиальных, так и вволокнистых клетках 269. Cx23 также экспрессируется в волокнистых клетках мышиных линз, но не вчеловеческих 270, 271, 272, 273. Доминантная мутация в Cx23 вызывает дефекты волокнистых клеток умышей 270, но линзы Cx23 KO не имеют заметныхдефектов 274. Шесть субединиц коннексина образуют коннексон или полуканал, а коннексон на одной клетке соединяется с коннексоном на соседней клетке, образуя разрывную зону, которая создаёт пору ангстрема размером ~10 между соседними клетками, позволяя обмениваться малыми молекулами, ионами иводой 275 276. Коннексиновые полуканалы обеспечивают проход материалов между внутриклеточной цитоплазмой и внеклеточной средой, как описано в предыдущих обзорах 277 278, а гемиканалы важны для микроциркуляции279, механочувствительного транспорта питательных веществ иантиоксидантов 280 281 282 283 и ответа на окислительныйстресс 284 285,286,287,288. Разрывные соединения собираются в крупные бляшки на мембране волокнистых клеток; В хрусталике бляшки могут быть размером с микрон и расположены вдоль длинных сторон соседних волоконныхклеток 289. Потеря Cx46 в мышиных линзах приводит к плотной ядерной катаракте из-за блокировки выходного пути микроциркуляциихрусталика 290,291. Сборка и/или стабильность крупных Cx46-бляшек на мембране волоконной клетки требует F-актиновой и бусерчатых промежуточных филаментныхсетей 289. KO Cx50 приводит к микрофтальмии, лёгкой ядерной катаракте и мелким хрустам из-за аномальной пролиферации эпителиальныхклеток 292,293. Потеря Cx50 влияет на замыкание оставшихся бляшек Cx46 в клеткахлинзических волокон 139. Замена Cx50 на knock-in Cx46, экспрессируемый под эндогенным локусом Cx50 (4 копии Cx46), спасает катаракту из-за потери Cx50 и усиливает связь между волокнами между промежуточными соединениями, но эти прозрачные линзы с knock-in остаютсямаленькими 142 294. Таким образом, Cx46 не может заменить функцию роста хрусталика Cx50. Стратегия «knock-in» также использовалась для спасения ядерной катаракты, вызванной мутантными белками γB-кристалл, что позволяет предположить, что усиление соединения между разрывами может служить стратегией улучшения гомеостаза хрусталика и профилактикикатаракты 295.
Ионный поток, генерируемый ионами натрия, сопровождается потоком воды в клетки линзы через каналыаквапорина 259. Каналы аквапорина состоят из Aqp1 в эпителиальных клетках, тогда как в волокнистых клетках водные каналы образуют Aqp0 (также известный как MIP) и Aqp5, в зависимости от зрелости клеток, как описано в предыдущих обзорах 264,296,297. Движение воды через каналы перехода между зазорами создаёт гидростатический градиент давления черезлинзу 298 299, и этот градиент поддерживает осмотическое давление линзы за счёт механочувствительных каналов транзитного рецепторного потенциала 1 (TRPV1) и TRPV4, которые соответственно увеличивают и уменьшают гидростатическое давлениелинзы 299 300 301 302. Снижение зонального натяжения на хрустике снижает гидростатическое давление, активируя TRPV1, а затем NKCC1 для увеличения концентрации ионов в линзе и стимулирования потока воды в линзу для восстановления нормального гидростатическогодавления 300,301. Напротив, увеличенное зональное натяжение и объём линзы активируют TRPV4, а затем Na+/K+ АТФазу, снижая концентрацию ионов линзы и, соответственно, снижая гидростатическоедавление на 300 301 302.
Незаменимые питательные вещества и аминокислоты транспортируются в хрусталик через микроциркуляционныйпуть 303, и этот транспорт особенно важен для волокон OFZ. Фасилитативные переносчики глюкозы (GLUT) встречаются в клетках линзического эпителия и волокна; GLUT1 экспрессируется в обоих типах клеток, а GLUT3 — в эпителиальных клетках 304,305,306,307. У мышей GLUT1 KO развивается катаракта, что говорит о необходимости поглощения глюкозы для прозрачностихрусталика 308. Глутатион (ГСГ), важный антиоксидант для прозрачностилинзы 309,310, вырабатывается в хрусталице и может транспортироваться в хрусталик из водянойжидкости 311,312,313,314,315. Цистеин, глутамат и глицин являются незаменимыми аминокислотами для синтеза GSH, и накопление этих аминокислот присутствует в коре и ядерных областях хруста314,315. Возрастное снижение синтеза GSH или увеличение использования GSH может привести к снижению доступности GSH в хрусталике, особенно в ядре 316,317,318,319,320,321. Глутатионпероксидазы (GPX) используют GSH как кофермент для нейтрализации гидропероксида, и недавние исследования показывают, что ферроптоз из-за токсичных липидных пероксидов может привести к катаракте из-за нарушенияGPX4 322,323.
Архитектура и биомеханика 3D-линз
Узоры волокон хрусталиков в организованные ряды шестиугольных клеток возникают благодаря формированию экваториальных эпителиальных клеток в меридиональные ряды (см. рисунок 1A). Механизмы, управляющие организацией случайно упакованных и булыжных эпителиальных клеток экваториального эпителия в шестиугольные меридиональные рядные клетки, вращаются вокруг актинового цитоскелета. Сигнализация рецепторной тирозинкиназы EphA2 необходима для стимулирования накопления F-актина в вершинах шестиугольных меридиональных рядовых клеток с целью улучшения организацииклеток 7 324. Миозин IIA, сократительный белок, связывающийся с F-актином, также важен для поддержания формы шестиугольной клетки 8,325,326. Давно считалось, что для прозрачности хруста требуется такая сильно упорядочённая упаковка волоконных клеток, но неправильная упаковка из-за потериEphA2 7,324, мутаций в миозинеIIA 325,326 или искажённых клеток, образующихся в старости130 лет, свидетельствует о том, что упаковка шестиугольных клеток не требуется для прозрачности.
Волокнистые клетки, простирающиеся от переднего до заднего полюса, могут иметь длину в несколько миллиметров в зависимости от вида животных и размерахрусталика 327. Обычно волокнистые клетки имеют размер сечения327 всего 4–7 мкм, и эти длинные и тонкие клетки удерживаются вместе динамическими интердигитациями клеток-клеток, образующими 3D-молнию между соседними волокнистыми клетками, как описано в предыдущемобзоре 328. Интердигитация клеток хрусталиковых волокон имеет сложные узоры, которые меняются по мере дифференцировки и созревания клеток: 1) периферические новообразованные волокна с небольшими выступами вдоль коротких сторон и выступами шарика и глазниц вдоль длинных сторон; 2) зрелые волокнистые клетки, теряющие органеллы, с большими лопастями с небольшими перецепляющимися выступами вдоль коротких сторон, 3) перинуклеарные волокна с крупными взаимосцепляющимися выступами вдоль коротких сторон и промежутками язычков и борозданий по всей мембране, и 4) ядерные волокна с крупными выступами вдоль коротких сторон и морфологией шаровидной мембраны по всей мембране 137,328,329,330,331,332,333,334,335, 336 337 338 339 (рисунок 1B). Недавние исследования предоставили прямые доказательства того, что межцифры между клетками хрусталиков, зависящими от F-актиновых сетей, важны для жёсткоститканей 174, что подтверждает давнюю гипотезу. Потеря ARVCF, компонента соединений адгеренов, приводит к аномалиям интердигитации волокнистых клеток, увеличению внеклеточного пространства и раннему началу кортикальнойкатаракты 340. Дефекты жёсткости и размера ядра хрусталиков коррелируют с изменениями межцифровых пересечений языка и борозд, а также с задержкой перехода к морфологии шаровидноймембраны 131.
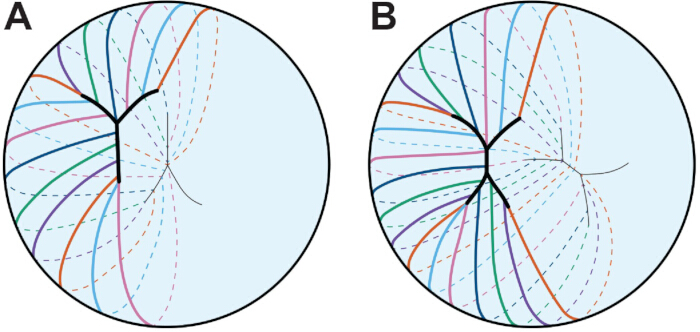
Рисунок 3: Узор швов хрусталиков. Каждая цветная линия представляет собой одну волокнистую ячейку. (A) Волокнистые клетки в эмбриональном хрусталике человека образуют Y-образный шов. Y-образный шов зеркален на переднем и заднем полюсах. (B) По мере развития и роста человеческого хрусталика шов становится более ветвящимся. Здесь для простоты изображён шов из четырёх ветвей. Схема шва смещена между двумя полюсами. Мультфильмы не рисованы в масштабе. Смоделировано по образцу 45 года. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
Общая форма хрусталика различается в зависимости от вида, и считается, что кривизна и тип шва волокнистых клеток определяютформу хрусталика 341 342. Шов формируется путем соединения кончиков удлиняющихся волоконных клеток на переднем и заднем полюсах, а шов зеркально расположен между двумя полюсами11, 12, 13, 343 (рисунок 3). В мышиных линзах шов имеет Y-образную форму, а у приматов и человека шов начинается в форме буквы Y, а с возрастом11, 12, 45 лет он становится более ветвлёвым. Интересно, что Y-образный шов в мышиных линзах ограничивает упругость или упругость хрусталика после снятия механической нагрузки, а ветвлённые швы в KO линзах с нарушением эфриновой сигнализации коррелируют с повышениемустойчивости 344. Нормальное формирование шва хрусталика требует коммуникации между щельнымисоединениями 345, а возрастная передняя катаракта в мышиных хрусталах является результатом неполного образованияшва 130.
Биомеханические свойства хрусталика могут зависеть от различных молекулярных, клеточных и тканевых факторов, как описано в предыдущемобзоре 16. Возрастное увеличение жёсткости хрусталиков считается основным факторомпресбиопии 346. У людей, при рассмотрении удалённых объектов, расслабление ресничных мышц растягивает зональные волокна, прикреплённые к капсуле, что приводит к сплющениюхрусталика 1. При фокусировке на объекте вблизи ресничная мышца сокращается, позволяя зонулам расслабиться, и хрусталик округляется вверх, чтобы сфокусировать свет от ближайшегообъекта 1. Этот процесс аккомодации требует биомеханических свойств хрусталиков, сокращения ресничных мышц и зонального напряжения. С возрастом исследования показали мало или вовсе не меняется сокрачиваемость ресничных мышц и зонулярная гибкостьи напряжение 347,348,349,350. Несколько исследований показали, что увеличение размера хрусталика, а также его размера и жесткости ядра способствуют общему жёсткому ужесточению всей хрусталки свозрастом 26 351 352 353 354 года. Однако исследования жёсткости хрусталика с возрастом у мышей показывают, что существует низкая корреляция между размером хрусталика и ядра при полной жесткостихрусталика 130 132, что указывает на то, что на возрастное ужесточение хрусталик влияют и другие факторы. Недавние исследования показали, что изменения в цитоскелетных сетях влияют на жёсткость хрусталика; Потеря тропомиозина 3.5, стабилизирующего белка F-актина, влияет на состав и расположение F-актиновых сетей на мембране волокнистых клеток и снижает жёсткостьхрусталика 173. Аналогично, спонтанные мутации в нескольких инбредных линиях диких мышей приводят к спонтанному KO CP49 192 355 и более мягкимлинзам 356 357. Мембраны клеточных клеток хрусталики обладают необычно высоким содержанием холестерина 358,359,360,361,362,363, что может регулировать упругостьмембраны 364. Изменения содержания холестерина в мембране и связывания α-кристаллинов с мембраной волокнистых клеток с возрастом предполагают увеличение жёсткостихрусталика 365,366,367,368,369,370,371,372.
Проблемы и новые методы изучения объектива
Трёхмерная структура линзы создаёт трудности для понимания расположения клетки и клеток и создания подходящих in vitro моделей, воспроизводящих архитектуру тканей. Хотя ценные данные по сигнализации и локализации мутантных белков были получены с помощью увековеченных или первичных культурных клеток, изолированные эпителиальные клетки линзы не имеют характерной кубоидальной морфологии и не имеют той же экспрессии генов или цитоскелетных структур, что и нативные линзическиеэпителиальные клетки 373. In vitro лентоид, как описано в предыдущем обзоре,модели 374 и lensletмодели 375 создают волокнообразные клетки и шары клеток, напоминающие мини-линзу соответственно. Эти модели создают прозрачную структуру, похожую на линзу, что может быть полезно для быстрого скрининга лекарств, но ни одна из моделей не воспроизводит нормальную организацию волоконных клеток или трёхмерную структуру линзы. Было разработано множество протоколов для локализации белков в срезах ткани хрусталики и иммунокрашивки, и этот метод остаётся самым эффективным способом понять, экспрессируются ли белки в определённых клеточных компартментах. Однако сечение тканей для гистологии и иммунокрашивки могут быть затруднены, особенно у образцов пожилых млекопитающих, из-за неполной фиксациихрусталики 137; а изучение 3D-структуры в двумерных секциях устраняет детали, важные для понимания формы клеток, взаимодействий между клетками и локализации белков. Хотя электронная микроскопия (ЭМ) остаётся золотым стандартом для изучения формы волокнистых клеток, локализация белков в ЭМ-образцах остаётсясложной задачей 376 377 378. Недавние работы с плоскими креплениями монослоя эпителиальнойячейки 4,7,324,373, окрашивание одиночных волоконных клеток 85,173,174,379 и изображение целостнойлинзы 4,7,324,344,380,381 выявили важную информацию о спайках клеток и клеток, биомеханике хрусталика и изменении цитоскелетных сетей в волокнах хрусталиков.
Эпителиальные и волокнистые клетки хрусталики имеют разные функции, транскриптомы и протеомы, и предыдущие исследования, сравнивающие разные клеточные компартменты, были сложны, поскольку переднее полушарие покрывает только монослой эпителиальных клеток, что ограничивает количество РНК или белка, которое можно собирать без объединения большого количества образцов. Достижения в технологиях экстракции РНК, ПЦР в реальном времени и автоматизированном капиллярном электрофорезе, позволили провести анализ генов и белков образцов эпителиальных клеток хрусталиков, собранных из одной пары глаз мышей130 132 373 382 или микродиссектирующих областей эпителия хрусталика, корковых волокон иядерных волокон 383. Одноклеточная транскриптомика позволяет глубоко профилировать клетки хрусталиков эмбрионов данио-рерио, а также эмбрионов личинок и цыплят 384 385. Эти новые методы открывают дверь для выявления молекулярных механизмов, поддерживающих каждый компартмент хрусталики во время нормального старения и патологии.
По мере развития этой области важно помнить, что генетический фон мышей может играть важную роль в патологии хрусталика386 387 ибиомеханике 355 356 357, поэтому контроль братьев для экспериментов имеет решающее значение для анализа данных. Мутантные и KO модели мышей обеспечивают систему для изучения возрастной катаракты и увеличения жесткостихрусталиков 130,356,357,388,389,390,391,392,393,394,395,396,397, и из-за относительно короткой продолжительности жизни мышей исследования старения следует проводить на пожилых животных, а не экстраполировать данные от молодых.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Выводы
Достижения в технологиях транскриптомики, протеомики, визуализации и биомеханических испытаний улучшили наше понимание биологии, физиологии и патологии хрусталиков. Наши расширяющиеся знания о различиях между различными популяциями эпителиальных и волокнистых клеток хрусталики будут важны для понимания изменений в процессе старения и механизмов долголетия белков и клеток. Возрос интерес к разработке фармацевтических вмешательств для профилактики или задержки катаракты и/или пресбиопии, а...
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Раскрытие информации
Авторам нечего раскрывать.
Благодарности
Эта работа была профинансирована грантом R01 EY032056 (для CC) от Национального института глаз. Авторы благодарят Исайю Дж. Инниса и Гриффина М. Флауэрса за их полезные замечания.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Ссылки
- Freddo, T. F., Chaum, E. Anatomy of the Eye and Orbit: The Clinical Essentials, 1e. , Lippincott Williams & Wilkins, a Wolters Kluwer business. (2018).
- Danysh, B. P., Duncan, M. K. The lens capsule. Exp Eye Res. 88 (2), 151-164 (2009).
- Zampighi, G. A., Eskandari, S., Kreman, M. Epithelial organization of the mammalian lens. Exp Eye Res. 71 (4), 415-435 (2000).
- Cheng, C., Gong, X. Diverse roles of Eph/ephrin signaling in the mouse lens. PLoS One. 6 (11), e28147(2011).
- Parreno, J., Cheng, C., Nowak, R. B., Fowler, V. M. The effects of mechanical strain on mouse eye lens capsule and cellular microstructure. Mol Biol Cell. 29 (16), 1963-1974 (2018).
- Lovicu, F. J., Robinson, M. L. Development of the Ocular Lens. , Cambridge University Press. (2011).
- Cheng, C., Ansari, M. M., Cooper, J. A., Gong, X. EphA2 and Src regulate equatorial cell morphogenesis during lens development. Development. 140 (20), 4237-4245 (2013).
- Bassnett, S., Missey, H., Vucemilo, I. Molecular architecture of the lens fiber cell basal membrane complex. J Cell Sci. 112 (Pt 13), 2155-2165 (1999).
- Bassnett, S., Sikic, H. The lens growth process. Prog Retin Eye Res. 60, 181-200 (2017).
- Sikic, H., Shi, Y., Lubura, S., Bassnett, S. A full lifespan model of vertebrate lens growth. R Soc Open Sci. 4 (1), 160695(2017).
- Kuszak, J. R. The development of lens sutures. Progress in Retinal and Eye Research. 14 (2), 567-591 (1995).
- Kuszak, J. R., Mazurkiewicz, M., Zoltoski, R. Computer modeling of secondary fiber development and growth: I. Nonprimate lenses. Mol Vis. 12, 251-270 (2006).
- Kuszak, J. R., Zoltoski, R. K., Tiedemann, C. E. Development of lens sutures. Int J Dev Biol. 48 (8-9), 889-902 (2004).
- Kuszak, J. R. The ultrastructure of epithelial and fiber cells in the crystalline lens. Int Rev Cytol. 163, 305-350 (1995).
- Kuszak, J. R., Macsai, M. S., Rae, J. L. Stereo scanning electron microscopy of the crystalline lens. Scan Electron Microsc. (Pt 3), 1415-1426 (1983).
- Cheng, C. Tissue, cellular, and molecular level determinants for eye lens stiffness and elasticity. Front Ophthalmol (Lausanne). 4, 1456474(2024).
- World Health Organization. World report on vision. , (2019).
- Michael, R., Bron, A. J. The ageing lens and cataract: a model of normal and pathological ageing. Philos Trans R Soc Lond B Biol Sci. 366 (1568), 1278-1292 (2011).
- Asbell, P. A., et al. Age-related cataract. Lancet. 365 (9459), 599-609 (2005).
- Hejtmancik, J. F. Oxidative Stress in Genetic Cataract Formation. Antioxidants (Basel). 13 (11), (2024).
- Shiels, A., Hejtmancik, J. F. Biology of Inherited Cataracts and Opportunities for Treatment. Annu Rev Vis Sci. 5, 123-149 (2019).
- Truscott, R. J. W., Friedrich, M. G. Molecular Processes Implicated in Human Age-related Nuclear Cataract. Invest Ophthalmol Vis Sci. 60 (15), 5007-5021 (2019).
- Fan, X., Monnier, V. M. Protein posttranslational modification (PTM) by glycation: Role in lens aging and age-related cataractogenesis. Exp Eye Res. 210, 108705(2021).
- Budnar, P., Tangirala, R., Bakthisaran, R., Rao, C. M. Protein Aggregation and Cataract: Role of Age-related Modifications and Mutations in alpha Crystallins. Biochemistry (Mosc). 87 (3), 225-241 (2022).
- Shiels, A., Hejtmancik, J. F. Inherited cataracts: Genetic mechanisms and pathways new and old. Exp Eye Res. 209, 108662(2021).
- Heys, K. R., Cram, S. L., Truscott, R. J. Massive increase in the stiffness of the human lens nucleus with age: the basis for presbyopia? Mol Vis. 10, 956-963 (2004).
- Glasser, A., Campbell, M. C. Biometric, optical and physical changes in the isolated human crystalline lens with age in relation to presbyopia. Vision Res. 39 (11), 1991-2015 (1999).
- Weeber, H. A., et al. Dynamic mechanical properties of human lenses. Exp Eye Res. 80 (3), 425-434 (2005).
- Piatigorsky, J. Lens differentiation in vertebrates. A review of cellular and molecular features. Differentiation. 19 (3), 134-153 (1981).
- Gunhaga, L. The lens: a classical model of embryonic induction providing new insights into cell determination in early development. Philos Trans R Soc Lond B Biol Sci. 366 (1568), 1193-1203 (2011).
- Chauhan, B. K., et al. Cdc42 and IRSp53 dependent contractile filopodia tether presumptive lens and retina to coordinate epithelial invagination. Development. 136 (21), 3657-3667 (2009).
- McAvoy, J. W. Cytoplasmic processes interconnect lens placode and optic vesicle during eye morphogenesis. Exp Eye Res. 31 (5), 527-534 (1980).
- Mann, I. The development of the human eye. , 3d, Grune & Stratton. (1964).
- Eiraku, M., et al. Self organizing optic cup morphogenesis in three dimensional culture. Nature. 472 (7341), 51-56 (2011).
- Lang, R. A., Herman, K., Reynolds, A. B., Hildebrand, J. D., Plageman, T. F. Jr p120 catenin dependent junctional recruitment of Shroom3 is required for apical constriction during lens pit morphogenesis. Development. 141 (16), 3177-3187 (2014).
- Plageman, T. F. Jr, et al. A Trio RhoA Shroom3 pathway is required for apical constriction and epithelial invagination. Development. 138 (23), 5177-5188 (2011).
- Borges, R. M., Lamers, M. L., Forti, F. L., Santos, M. F., Yan, C. Y. Rho signaling pathway and apical constriction in the early lens placode. Genesis. 49 (5), 368-379 (2011).
- Quintin, S., Gally, C., Labouesse, M. Epithelial morphogenesis in embryos: asymmetries, motors and brakes. Trends Genet. 24 (5), 221-230 (2008).
- Muccioli, M., Qaisi, D., Herman, K., Plageman, T. F. Jr Lens placode planar cell polarity is dependent on Cdc42 mediated junctional contraction inhibition. Dev Biol. 412 (1), 32-43 (2016).
- Houssin, N. S., Martin, J. B., Coppola, V., Yoon, S. O., Plageman, T. F. Jr Formation and contraction of multicellular actomyosin cables facilitate lens placode invagination. Dev Biol. 462 (1), 36-49 (2020).
- Glucksmann, A. Cell deaths in normal vertebrate ontogeny. Biol Rev Camb Philos Soc. 26 (1), 59-86 (1951).
- Ozeki, H., Ogura, Y., Hirabayashi, Y., Shimada, S. Suppression of lens stalk cell apoptosis by hyaluronic acid leads to faulty separation of the lens vesicle. Exp Eye Res. 72 (1), 63-70 (2001).
- Yan, Q., Liu, J. P., Li, D. W. Apoptosis in lens development and pathology. Differentiation. 74 (5), 195-211 (2006).
- Easter, S. S. Jr, Nicola, G. N. The development of vision in the zebrafish (Danio rerio). Dev Biol. 180 (2), 646-663 (1996).
- Mann, I. The development of the human eye. , The University Press. (1928).
- Darche, M., et al. Three dimensional characterization of developing and adult ocular vasculature in mice using in toto clearing. Communications Biology. 5 (1), 1135(2022).
- Wang, Z., Liu, C. H., Huang, S., Chen, J. Assessment and Characterization of Hyaloid Vessels in Mice. J Vis Exp. (147), e59222(2019).
- Hill, R. E., et al. Mouse small eye results from mutations in a paired like homeobox containing gene. Nature. 354 (6354), 522-525 (1991).
- Jordan, T., et al. The human PAX6 gene is mutated in two patients with aniridia. Nat Genet. 1 (5), 328-332 (1992).
- Hogan, B. L., et al. Small eyes (Sey): a homozygous lethal mutation on chromosome 2 which affects the differentiation of both lens and nasal placodes in the mouse. J Embryol Exp Morphol. 97, 95-110 (1986).
- Hanson, I. M., et al. Mutations at the PAX6 locus are found in heterogeneous anterior segment malformations including Peters' anomaly. Nat Genet. 6 (2), 168-173 (1994).
- Grindley, J. C., Davidson, D. R., Hill, R. E. The role of Pax 6 in eye and nasal development. Development. 121 (5), 1433-1442 (1995).
- Fujiwara, M., Uchida, T., Osumi Yamashita, N., Eto, K. Uchida rat (rSey): a new mutant rat with craniofacial abnormalities resembling those of the mouse Sey mutant. Differentiation. 57 (1), 31-38 (1994).
- Collinson, J. M., Hill, R. E., West, J. D. Different roles for Pax6 in the optic vesicle and facial epithelium mediate early morphogenesis of the murine eye. Development. 127 (5), 945-956 (2000).
- Quinn, J. C., West, J. D., Hill, R. E. Multiple functions for Pax6 in mouse eye and nasal development. Genes Dev. 10 (4), 435-446 (1996).
- Ashery Padan, R., Marquardt, T., Zhou, X., Gruss, P. Pax6 activity in the lens primordium is required for lens formation and for correct placement of a single retina in the eye. Genes Dev. 14 (21), 2701-2711 (2000).
- Kim, E. A., et al. Phosphorylation and transactivation of Pax6 by homeodomain interacting protein kinase 2. J Biol Chem. 281 (11), 7489-7497 (2006).
- Mikkola, I., Bruun, J. A., Bjorkoy, G., Holm, T., Johansen, T. Phosphorylation of the transactivation domain of Pax6 by extracellular signal regulated kinase and p38 mitogen activated protein kinase. J Biol Chem. 274 (21), 15115-15126 (1999).
- Yan, Q., et al. Sumoylation activates the transcriptional activity of Pax 6, an important transcription factor for eye and brain development. Proc Natl Acad Sci U S A. 107 (49), 21034-21039 (2010).
- Yan, Q., et al. Protein phosphatase 1 modulates the function of Pax 6, a transcription factor controlling brain and eye development. J Biol Chem. 282 (19), 13954-13965 (2007).
- Cvekl, A., Zhang, X. Signaling and Gene Regulatory Networks in Mammalian Lens Development. Trends Genet. 33 (10), 677-702 (2017).
- Zhang, X., Friedman, A., Heaney, S., Purcell, P., Maas, R. L. Meis homeoproteins directly regulate Pax6 during vertebrate lens morphogenesis. Genes Dev. 16 (16), 2097-2107 (2002).
- Dudley, A. T., Lyons, K. M., Robertson, E. J. A requirement for bone morphogenetic protein 7 during development of the mammalian kidney and eye. Genes Dev. 9 (22), 2795-2807 (1995).
- Wawersik, S., et al. BMP7 acts in murine lens placode development. Dev Biol. 207 (1), 176-188 (1999).
- Blixt, A., et al. A forkhead gene, FoxE3, is essential for lens epithelial proliferation and closure of the lens vesicle. Genes Dev. 14 (2), 245-254 (2000).
- Brownell, I., Dirksen, M., Jamrich, M. Forkhead Foxe3 maps to the dysgenetic lens locus and is critical in lens development and differentiation. Genesis. 27 (2), 81-93 (2000).
- Dimanlig, P. V., Faber, S. C., Auerbach, W., Makarenkova, H. P., Lang, R. A. The upstream ectoderm enhancer in Pax6 has an important role in lens induction. Development. 128 (22), 4415-4424 (2001).
- Faber, S. C., et al. Fgf receptor signaling plays a role in lens induction. Development. 128 (22), 4425-4438 (2001).
- Bavik, C., Ward, S. J., Chambon, P. Developmental abnormalities in cultured mouse embryos deprived of retinoic by inhibition of yolk sac retinol binding protein synthesis. Proc Natl Acad Sci U S A. 93 (7), 3110-3114 (1996).
- Enwright, J. F. 3rd, Grainger, R. M. Altered retinoid signaling in the heads of small eye mouse embryos. Dev Biol. 221 (1), 10-22 (2000).
- Lovicu, F. J., McAvoy, J. W. Growth factor regulation of lens development. Dev Biol. 280 (1), 1-14 (2005).
- Schulz, M. W., Chamberlain, C. G., de Iongh, R. U., McAvoy, J. W. Acidic and basic FGF in ocular media and lens: implications for lens polarity and growth patterns. Development. 118 (1), 117-126 (1993).
- Lovicu, F. J., Chamberlain, C. G., McAvoy, J. W. Differential effects of aqueous and vitreous on fiber differentiation and extracellular matrix accumulation in lens epithelial explants. Invest Ophthalmol Vis Sci. 36 (7), 1459-1469 (1995).
- de Iongh, R. U., Lovicu, F. J., Chamberlain, C. G., McAvoy, J. W. Differential expression of fibroblast growth factor receptors during rat lens morphogenesis and growth. Invest Ophthalmol Vis Sci. 38 (9), 1688-1699 (1997).
- de Iongh, R. U., Lovicu, F. J., Hanneken, A., Baird, A., McAvoy, J. W. FGF receptor 1 (flg) expression is correlated with fibre differentiation during rat lens morphogenesis and growth. Dev Dyn. 206 (4), 412-426 (1996).
- Lovicu, F. J., Overbeek, P. A. Overlapping effects of different members of the FGF family on lens fiber differentiation in transgenic mice. Development. 125 (17), 3365-3377 (1998).
- Robinson, M. L., et al. Extracellular FGF 1 acts as a lens differentiation factor in transgenic mice. Development. 121 (2), 505-514 (1995).
- Robinson, M. L., et al. Disregulation of ocular morphogenesis by lens specific expression of FGF 3/int 2 in transgenic mice. Dev Biol. 198 (1), 13-31 (1998).
- Faber, S. C., Robinson, M. L., Makarenkova, H. P., Lang, R. A. Bmp signaling is required for development of primary lens fiber cells. Development. 129 (15), 3727-3737 (2002).
- Belecky Adams, T., et al. Pax 6, Prox 1, and Chx10 homeobox gene expression correlates with phenotypic fate of retinal precursor cells. Invest Ophthalmol Vis Sci. 38 (7), 1293-1303 (1997).
- de Iongh, R. U., et al. Requirement for TGFbeta receptor signaling during terminal lens fiber differentiation. Development. 128 (20), 3995-4010 (2001).
- Bassnett, S. Lens organelle degradation. Exp Eye Res. 74 (1), 1-6 (2002).
- Bassnett, S. The fate of the Golgi apparatus and the endoplasmic reticulum during lens fiber cell differentiation. Invest Ophthalmol Vis Sci. 36 (9), 1793-1803 (1995).
- Bassnett, S., Beebe, D. C. Coincident loss of mitochondria and nuclei during lens fiber cell differentiation. Dev Dyn. 194 (2), 85-93 (1992).
- Bassnett, S., Shi, Y., Vrensen, G. F. Biological glass: structural determinants of eye lens transparency. Philos Trans R Soc Lond B Biol Sci. 366 (1568), 1250-1264 (2011).
- Counis, M. F., et al. Analysis of nuclear degradation during lens cell differentiation. Cell Death Differ. 5 (4), 251-261 (1998).
- Vrensen, G. F., Graw, J., De Wolf, A. Nuclear breakdown during terminal differentiation of primary lens fibres in mice: a transmission electron microscopic study. Exp Eye Res. 52 (6), 647-659 (1991).
- Costello, M. J., et al. Autophagy and mitophagy participate in ocular lens organelle degradation. Exp Eye Res. 116, 141-150 (2013).
- De Maria, A., Bassnett, S. DNase IIbeta distribution and activity in the mouse lens. Invest Ophthalmol Vis Sci. 48 (12), 5638-5646 (2007).
- He, S., et al. Chromatin remodeling enzyme Brg1 is required for mouse lens fiber cell terminal differentiation and its denucleation. Epigenetics Chromatin. 3 (1), 21(2010).
- Cui, X., et al. HSF4 regulates DLAD expression and promotes lens de nucleation. Biochim Biophys Acta. 1832 (8), 1167-1172 (2013).
- Nakahara, M., et al. Degradation of nuclear DNA by DNase II like acid DNase in cortical fiber cells of mouse eye lens. FEBS J. 274 (12), 3055-3064 (2007).
- Nishimoto, S., et al. Nuclear cataract caused by a lack of DNA degradation in the mouse eye lens. Nature. 424 (6952), 1071-1074 (2003).
- Chaffee, B. R., et al. Nuclear removal during terminal lens fiber cell differentiation requires CDK1 activity: appropriating mitosis related nuclear disassembly. Development. 141 (17), 3388-3398 (2014).
- Lyu, L., et al. Unfolded protein response associated stabilization of p27(Cdkn1b) interferes with lens fiber cell denucleation, leading to cataract. FASEB J. 30 (3), 1087-1095 (2016).
- Gao, M., et al. HSF4 regulates lens fiber cell differentiation by activating p53 and its downstream regulators. Cell Death Dis. 8 (10), e3082(2017).
- Fujimoto, M., et al. HSF4 is required for normal cell growth and differentiation during mouse lens development. EMBO J. 23 (21), 4297-4306 (2004).
- Min, J. N., Zhang, Y., Moskophidis, D., Mivechi, N. F. Unique contribution of heat shock transcription factor 4 in ocular lens development and fiber cell differentiation. Genesis. 40 (4), 205-217 (2004).
- Morishita, H., et al. Organelle degradation in the lens by PLAAT phospholipases. Nature. 592 (7855), 634-638 (2021).
- Capetanaki, Y., Smith, S., Heath, J. P. Overexpression of the vimentin gene in transgenic mice inhibits normal lens cell differentiation. J Cell Biol. 109 (4 Pt 1), 1653-1664 (1989).
- Hamai, Y., Kuwabara, T. Early cytologic changes of Fraser cataract. An electron microscopic study. Invest Ophthalmol. 14 (7), 517-527 (1975).
- Muggleton Harris, A. L., Festing, M. F., Hall, M. A gene location for the inheritance of the cataract Fraser (CatFr) mouse congenital cataract. Genet Res. 49 (3), 235-238 (1987).
- Hamai, Y., Fukui, H. N., Kuwabara, T. Morphology of hereditary mouse cataract. Exp Eye Res. 18 (6), 537-546 (1974).
- Takehana, M. Hereditary cataract of the Nakano mouse. Exp Eye Res. 50 (6), 671-676 (1990).
- Uga, S., Kador, P. F., Kuwabara, T. Cytological study of Philly mouse cataract. Exp Eye Res. 30 (1), 79-92 (1980).
- Nakamura, M., Russell, P., Carper, D. A., Inana, G., Kinoshita, J. H. Alteration of a developmentally regulated, heat stable polypeptide in the lens of the Philly mouse. Implications for cataract formation. J Biol Chem. 263 (35), 19218-19221 (1988).
- Wang, K., et al. GammaD crystallin associated protein aggregation and lens fiber cell denucleation. Invest Ophthalmol Vis Sci. 48 (8), 3719-3728 (2007).
- Cavalheiro, G. R., et al. N myc regulates growth and fiber cell differentiation in lens development. Dev Biol. 429 (1), 105-117 (2017).
- Khillan, J. S., et al. Defects in lens fiber differentiation are linked to c mos overexpression in transgenic mice. Genes Dev. 1 (10), 1327-1335 (1987).
- Lachke, S. A. RNA binding proteins and post transcriptional regulation in lens biology and cataract: Mediating spatiotemporal expression of key factors that control the cell cycle, transcription, cytoskeleton and transparency. Exp Eye Res. 214, 108889(2022).
- Lachke, S. A., et al. Mutations in the RNA granule component TDRD7 cause cataract and glaucoma. Science. 331 (6024), 1571-1576 (2011).
- Dash, S., Dang, C. A., Beebe, D. C., Lachke, S. A. Deficiency of the RNA binding protein caprin2 causes lens defects and features of Peters anomaly. Dev Dyn. 244 (10), 1313-1327 (2015).
- Dash, S., et al. The master transcription factor SOX2, mutated in anophthalmia/microphthalmia, is post transcriptionally regulated by the conserved RNA binding protein RBM24 in vertebrate eye development. Hum Mol Genet. 29 (4), 591-604 (2020).
- Siddam, A. D., et al. The RNA binding protein Celf1 post transcriptionally regulates p27Kip1 and Dnase2b to control fiber cell nuclear degradation in lens development. PLoS Genet. 14 (3), e1007278(2018).
- Siddam, A. D., et al. High Throughput Transcriptomics of Celf1 Conditional Knockout Lens Identifies Downstream Networks Linked to Cataract Pathology. Cells. 12 (7), (2023).
- Aryal, S., et al. The cataract linked RNA binding protein Celf1 post transcriptionally controls the spatiotemporal expression of the key homeodomain transcription factors Pax6 and Prox1 in lens development. Hum Genet. 139 (12), 1541-1554 (2020).
- Takemoto, L., Sorensen, C. M. Protein protein interactions and lens transparency. Exp Eye Res. 87 (6), 496-501 (2008).
- Oyster, C. W. The human eye : structure and function. , Sinauer Associates, Inc.. (1999).
- Flaugh, S. L., Kosinski Collins, M. S., King, J. Contributions of hydrophobic domain interface interactions to the folding and stability of human gammaD crystallin. Protein Sci. 14 (3), 569-581 (2005).
- Papanikolopoulou, K., et al. Formation of amyloid fibrils in vitro by human gammaD crystallin and its isolated domains. Mol Vis. 14, 81-89 (2008).
- Graw, J. Genetics of crystallins: cataract and beyond. Exp Eye Res. 88 (2), 173-189 (2009).
- Kosinski Collins, M. S., King, J. In vitro unfolding, refolding, and polymerization of human gammaD crystallin, a protein involved in cataract formation. Protein Sci. 12 (3), 480-490 (2003).
- Horwitz, J., Bova, M. P., Ding, L. L., Haley, D. A., Stewart, P. L. Lens alpha crystallin: function and structure. Eye (Lond). 13 (Pt 3b), 403-408 (1999).
- Hejtmancik, J. F., et al. Progress in Molecular Biology and Translational Science. Hejtmancik, J. F., Nickerson, J. M. 134, Academic Press. 169-201 (2015).
- Bloemendal, H., et al. Ageing and vision: structure, stability and function of lens crystallins. Prog Biophys Mol Biol. 86 (3), 407-485 (2004).
- Benedek, G. B. Theory of transparency of the eye. Appl Opt. 10 (3), 459-473 (1971).
- Delaye, M., Tardieu, A. Short range order of crystallin proteins accounts for eye lens transparency. Nature. 302 (5907), 415-417 (1983).
- Bassnett, S., Costello, M. J. The cause and consequence of fiber cell compaction in the vertebrate lens. Exp Eye Res. 156, 50-57 (2017).
- Pierscionek, B. K., Regini, J. W. The gradient index lens of the eye: an opto biological synchrony. Prog Retin Eye Res. 31 (4), 332-349 (2012).
- Cheng, C., et al. Age-related changes in eye lens biomechanics, morphology, refractive index and transparency. Aging (Albany NY). 11 (24), 12497-12531 (2019).
- Cheng, C., et al. EphA2 Affects Development of the Eye Lens Nucleus and the Gradient of Refractive Index. Invest Ophthalmol Vis Sci. 63 (1), 2(2022).
- Flowers, G. M., et al. Eph ephrin signaling affects lens growth and shape, nucleus size, and gradient refractive index in adult mice. Frontiers in Ophthalmology. 5, (2025).
- Kozlowski, T. M., Kroger, R. H. H. Constant lens fiber cell thickness in fish suggests crystallin transport to denucleated cells. Vision Res. 162, 29-34 (2019).
- Shestopalov, V. I., Bassnett, S. Expression of autofluorescent proteins reveals a novel protein permeable pathway between cells in the lens core. J Cell Sci. 113 (Pt 11), 1913-1921 (2000).
- Shestopalov, V. I., Bassnett, S. Development of a macromolecular diffusion pathway in the lens. J Cell Sci. 116 (Pt 20), 4191-4199 (2003).
- Dunia, I., et al. Structural and immunocytochemical alterations in eye lens fiber cells from Cx46 and Cx50 knockout mice. Eur J Cell Biol. 85 (8), 729-752 (2006).
- Blankenship, T., Bradshaw, L., Shibata, B., Fitzgerald, P. Structural specializations emerging late in mouse lens fiber cell differentiation. Invest Ophthalmol Vis Sci. 48 (7), 3269-3276 (2007).
- Lo, W. K., Reese, T. S. Multiple structural types of gap junctions in mouse lens. J Cell Sci. 106 (Pt 1), 227-235 (1993).
- Baldo, G. J., et al. Gap junctional coupling in lenses from alpha(8) connexin knockout mice. J Gen Physiol. 118 (5), 447-456 (2001).
- Baldo, G. J., Mathias, R. T. Spatial variations in membrane properties in the intact rat lens. Biophys J. 63 (2), 518-529 (1992).
- Duncan, G., Patmore, L., Pynsent, P. B. Impedance of the amphibian lens. J Physiol. 312, 17-27 (1981).
- Martinez Wittinghan, F. J., et al. Lens gap junctional coupling is modulated by connexin identity and the locus of gene expression. Invest Ophthalmol Vis Sci. 45 (10), 3629-3637 (2004).
- Cheng, C., et al. Gap junction communication influences intercellular protein distribution in the lens. Exp Eye Res. 86 (6), 966-974 (2008).
- Bloemendal, H. The vertebrate eye lens. Science. 197 (4299), 127-138 (1977).
- van der Ouderaa, F. J., de Jong, W. W., Bloemendal, H. The amino acid sequence of the alphaA2 chain of bovine alpha crystallin. Eur J Biochem. 39 (1), 207-222 (1973).
- Bloemendal, H., de Jong, W. W. Lens proteins and their genes. Prog Nucleic Acid Res Mol Biol. 41, 259-281 (1991).
- Kato, K., et al. Immunoreactive alpha A crystallin in rat non lenticular tissues detected with a sensitive immunoassay method. Biochim Biophys Acta. 1080 (2), 173-180 (1991).
- Srinivasan, A. N., Nagineni, C. N., Bhat, S. P. alpha A crystallin is expressed in non ocular tissues. J Biol Chem. 267 (32), 23337-23341 (1992).
- Nath, M., Fort, P. E. alphaA Crystallin Mediated Neuroprotection in the Retinal Neurons Is Independent of Protein Kinase B. Front Neurosci. 16, 912757(2022).
- Skeie, J. M., Mahajan, V. B. Proteomic interactions in the mouse vitreous retina complex. PLoS One. 8 (11), e82140(2013).
- Ruebsam, A., et al. A specific phosphorylation regulates the protective role of alphaA crystallin in diabetes. JCI Insight. 3 (4), (2018).
- Vermorken, A. J., Hilderink, J. M., van de Ven, W. J., Bloemendal, H. Lens differentiation. Crystallin synthesis in isolated epithelia from calf lenses. J Cell Biol. 76 (1), 175-183 (1978).
- Boyle, D. L., Takemoto, L., Brady, J. P., Wawrousek, E. F. Morphological characterization of the Alpha A and Alpha B crystallin double knockout mouse lens. BMC Ophthalmol. 3, 3(2003).
- Horwitz, J. Alpha crystallin. Exp Eye Res. 76 (2), 145-153 (2003).
- Raju, M., Santhoshkumar, P., Krishna Sharma, K. Alpha crystallin derived peptides as therapeutic chaperones. Biochim Biophys Acta. 1860 (1 Pt B), 246-251 (2016).
- Cheng, C., et al. Altered chaperone like activity of alpha crystallins promotes cataractogenesis. J Biol Chem. 285 (52), 41187-41193 (2010).
- Aravind, P., et al. The betagamma crystallin superfamily contains a universal motif for binding calcium. Biochemistry. 48 (51), 12180-12190 (2009).
- Srivastava, S. S., Mishra, A., Krishnan, B., Sharma, Y. Ca2+ binding motif of betagamma crystallins. J Biol Chem. 289 (16), 10958-10966 (2014).
- Vanmarle, J., Jonges, R., Vrensen, G. F., Dewolf, A. Calcium and its localization in human lens fibres: an electron tomographic study. Exp Eye Res. 65 (1), 83-88 (1997).
- Jobby, M. K., Sharma, Y. Calcium binding to lens betaB2 and betaA3 crystallins suggests that all beta crystallins are calcium binding proteins. FEBS J. 274 (16), 4135-4147 (2007).
- Bergman, M. R., Deravi, L. F. Manipulating polydispersity of lens beta crystallins using divalent cations demonstrates evidence of calcium regulation. Proc Natl Acad Sci U S A. 119 (48), e2212051119(2022).
- Cheng, C., Nowak, R. B., Fowler, V. M. The lens actin filament cytoskeleton: Diverse structures for complex functions. Exp Eye Res. 156, 58-71 (2017).
- Quinlan, R. A., Clark, J. I. Insights into the biochemical and biophysical mechanisms mediating the longevity of the transparent optics of the eye lens. J Biol Chem. 298 (11), 102537(2022).
- Song, S., et al. Functions of the intermediate filament cytoskeleton in the eye lens. J Clin Invest. 119 (7), 1837-1848 (2009).
- FitzGerald, P. G. Lens intermediate filaments. Exp Eye Res. 88 (2), 165-172 (2009).
- Logan, C. M., Menko, A. S. Microtubules: Evolving roles and critical cellular interactions. Exp Biol Med (Maywood). 244 (15), 1240-1254 (2019).
- More, M. I., Kirsch, F. P., Rathjen, F. G. Targeted ablation of NrCAM or ankyrin B results in disorganized lens fibers leading to cataract formation. J Cell Biol. 154 (1), 187-196 (2001).
- Lin, Q., et al. Genetic variations and polymorphisms in the ezrin gene are associated with age-related cataract. Mol Vis. 19, 1572-1579 (2013).
- Hao, J., Kunishima, S., Guo, X., Hu, R., Gao, W. A large family with MYH9 disorder caused by E1841K mutation suffering from serious kidney and hearing impairment and cataracts. Ann Hematol. 91 (7), 1147-1148 (2012).
- De Rocco, D., et al. MYH9 related disease: five novel mutations expanding the spectrum of causative mutations and confirming genotype/phenotype correlations. Eur J Med Genet. 56 (1), 7-12 (2013).
- Economou, M., et al. MYH9 related disorders: report on a patient of Greek origin presenting with macroscopic hematuria and presenile cataract, caused by an R1165C mutation. J Pediatr Hematol Oncol. 34 (6), 412-415 (2012).
- Saposnik, B., et al. Mutation spectrum and genotype phenotype correlations in a large French cohort of MYH9 Related Disorders. Mol Genet Genomic Med. 2 (4), 297-312 (2014).
- Cheng, C., et al. Tropomyosin 3.5 protects the F-actin networks required for tissue biomechanical properties. J Cell Sci. 131 (23), (2018).
- Cheng, C., et al. Tropomodulin 1 Regulation oF-actin Is Required for the Formation of Large Paddle Protrusions Between Mature Lens Fiber Cells. Invest Ophthalmol Vis Sci. 57 (10), 4084-4099 (2016).
- Maddala, R., Walters, M., Brophy, P. J., Bennett, V., Rao, P. V. Ankyrin B directs membrane tethering of periaxin and is required for maintenance of lens fiber cell hexagonal shape and mechanics. Am J Physiol Cell Physiol. 310 (2), C115-C126 (2016).
- Won, G. J., Fudge, D. S., Choh, V. The effects of actomyosin disruptors on the mechanical integrity of the avian crystalline lens. Mol Vis. 21, 98-109 (2015).
- Kasper, M., Moll, R., Stosiek, P., Karsten, U. Patterns of cytokeratin and vimentin expression in the human eye. Histochemistry. 89 (4), 369-377 (1988).
- Kasper, M., Viebahn, C. Cytokeratin expression and early lens development. Anat Embryol (Berl). 186 (3), 285-290 (1992).
- Ellis, M., Alousi, S., Lawniczak, J., Maisel, H., Welsh, M. Studies on lens vimentin. Exp Eye Res. 38 (2), 195-202 (1984).
- Ramaekers, F. C., Dunia, I., Dodemont, H. J., Benedetti, E. L., Bloemendal, H. Lenticular intermediate sized filaments: biosynthesis and interaction with plasma membrane. Proc Natl Acad Sci U S A. 79 (10), 3208-3212 (1982).
- Ramaekers, F. C., et al. Identification of the cytoskeletal proteins in lens forming cells, a special epitheloid cell type. Exp Cell Res. 127 (2), 309-327 (1980).
- FitzGerald, P. G. Immunochemical characterization of a Mr 115 lens fiber cell specific extrinsic membrane protein. Curr Eye Res. 7 (12), 1243-1253 (1988).
- Ireland, M. E., et al. Up regulation of novel intermediate filament proteins in primary fiber cells: an indicator of all vertebrate lens fiber differentiation? Anat Rec. 258 (1), 25-33 (2000).
- Quinlan, R. A., Stewart, M. Molecular interactions in intermediate filaments. Bioessays. 13 (11), 597-600 (1991).
- Goulielmos, G., et al. Filensin and phakinin form a novel type of beaded intermediate filaments and coassemble de novo in cultured cells. J Cell Biol. 132 (4), 643-655 (1996).
- Georgatos, S. D., Gounari, F., Goulielmos, G., Aebi, U. To bead or not to bead? Lens specific intermediate filaments revisited. J Cell Sci. 110 (Pt 21), 2629-2634 (1997).
- Ireland, M., Maisel, H. A cytoskeletal protein unique to lens fiber cell differentiation. Exp Eye Res. 38 (6), 637-645 (1984).
- Bloemendal, H., et al. Interaction of crystallins with the cytoskeletal plasma membrane complex of the bovine lens. Ciba Found Symp. 106, 177-190 (1984).
- Carter, J. M., Hutcheson, A. M., Quinlan, R. A. In vitro studies on the assembly properties of the lens proteins CP49, CP115: coassembly with alpha crystallin but not with vimentin. Exp Eye Res. 60 (2), 181-192 (1995).
- Chaves, J. M., Gupta, R., Srivastava, K., Srivastava, O. Human alpha A crystallin missing N terminal domain poorly complexes with filensin and phakinin. Biochem Biophys Res Commun. 494 (1-2), 402-408 (2017).
- FitzGerald, P. G., Graham, D. Ultrastructural localization of alpha A crystallin to the bovine lens fiber cell cytoskeleton. Curr Eye Res. 10 (5), 417-436 (1991).
- Sandilands, A., et al. Bfsp2 mutation found in mouse 129 strains causes the loss of CP49' and induces vimentin dependent changes in the lens fibre cell cytoskeleton. Exp Eye Res. 78 (4), 875-889 (2004).
- Sandilands, A., et al. Knockout of the intermediate filament protein CP49 destabilises the lens fibre cell cytoskeleton and decreases lens optical quality, but does not induce cataract. Exp Eye Res. 76 (3), 385-391 (2003).
- Alizadeh, A., et al. Targeted deletion of the lens fiber cell specific intermediate filament protein filensin. Invest Ophthalmol Vis Sci. 44 (12), 5252-5258 (2003).
- Alizadeh, A., et al. Targeted genomic deletion of the lens specific intermediate filament protein CP49. Invest Ophthalmol Vis Sci. 43 (12), 3722-3727 (2002).
- Perng, M. D., Zhang, Q., Quinlan, R. A. Insights into the beaded filament of the eye lens. Exp Cell Res. 313 (10), 2180-2188 (2007).
- Muller, M., et al. Dominant cataract formation in association with a vimentin assembly disrupting mutation. Hum Mol Genet. 18 (6), 1052-1057 (2009).
- Bornheim, R., et al. A dominant vimentin mutant upregulates Hsp70 and the activity of the ubiquitin proteasome system, and causes posterior cataracts in transgenic mice. J Cell Sci. 121 (Pt 22), 3737-3746 (2008).
- Jakobs, P. M., et al. Autosomal dominant congenital cataract associated with a deletion mutation in the human beaded filament protein gene BFSP2. Am J Hum Genet. 66 (4), 1432-1436 (2000).
- Conley, Y. P., et al. A juvenile onset, progressive cataract locus on chromosome 3q21 q22 is associated with a missense mutation in the beaded filament structural protein 2. Am J Hum Genet. 66 (4), 1426-1431 (2000).
- Zhang, Q., et al. Clinical description and genome wide linkage study of Y sutural cataract and myopia in a Chinese family. Mol Vis. 10, 890-900 (2004).
- Cui, X., et al. The E233del mutation in BFSP2 causes a progressive autosomal dominant congenital cataract in a Chinese family. Mol Vis. 13, 2023-2029 (2007).
- Ma, X., et al. A new mutation in BFSP2 (G1091A) causes autosomal dominant congenital lamellar cataracts. Mol Vis. 14, 1906-1911 (2008).
- Ramachandran, R. D., Perumalsamy, V., Hejtmancik, J. F. Autosomal recessive juvenile onset cataract associated with mutation in BFSP1. Hum Genet. 121 (3-4), 475-482 (2007).
- Logan, C. M., Bowen, C. J., Menko, A. S. Functional role for stable microtubules in lens fiber cell elongation. Exp Cell Res. 362 (2), 477-488 (2018).
- Basu, S., Rajakaruna, S., Reyes, B., Van Bockstaele, E., Menko, A. S. Suppression of MAPK/JNK MTORC1 signaling leads to premature loss of organelles and nuclei by autophagy during terminal differentiation of lens fiber cells. Autophagy. 10 (7), 1193-1211 (2014).
- Pontoriero, G. F., et al. Co operative roles for E-cadherin and N-cadherin during lens vesicle separation and lens epithelial cell survival. Dev Biol. 326 (2), 403-417 (2009).
- Leonard, M., Zhang, L., Bleaken, B. M., Menko, A. S. Distinct roles for N-cadherin linked c Src and fyn kinases in lens development. Dev Dyn. 242 (5), 469-484 (2013).
- Leonard, M., et al. Modulation of N-cadherin junctions and their role as epicenters of differentiation specific actin regulation in the developing lens. Dev Biol. 349 (2), 363-377 (2011).
- Maddala, R., Nagendran, T., Lang, R. A., Morozov, A., Rao, P. V. Rap1 GTPase is required for mouse lens epithelial maintenance and morphogenesis. Dev Biol. 406 (1), 74-91 (2015).
- Wigle, J. T., Chowdhury, K., Gruss, P., Oliver, G. Prox1 function is crucial for mouse lens fibre elongation. Nat Genet. 21 (3), 318-322 (1999).
- Xu, L., Overbeek, P. A., Reneker, L. W. Systematic analysis of E , N and P cadherin expression in mouse eye development. Exp Eye Res. 74 (6), 753-760 (2002).
- Logan, C. M., et al. N-cadherin regulates signaling mechanisms required for lens fiber cell elongation and lens morphogenesis. Dev Biol. 428 (1), 118-134 (2017).
- Cooper, M. A., et al. Loss of ephrin A5 function disrupts lens fiber cell packing and leads to cataract. Proc Natl Acad Sci U S A. 105 (43), 16620-16625 (2008).
- Son, A. I., et al. Further analysis of the lens of ephrin A5 / mice: development of postnatal defects. Mol Vis. 19, 254-266 (2013).
- Biswas, S., Son, A. I., Yu, Q., Zhou, R., Lo, W. K. Breakdown of interlocking domains may contribute to formation of membranous globules and lens opacity in ephrin A5( / ) mice. Exp Eye Res. 145, 130-139 (2016).
- Maher, G. J., Black, G. C., Manson, F. D. Focus on molecules: lens intrinsic membrane protein (LIM2/MP20). Exp Eye Res. 103, 115-116 (2012).
- Walker, J., Menko, A. S. Integrins in lens development and disease. Exp Eye Res. 88 (2), 216-225 (2009).
- Shi, Y., et al. Further analysis of the lens phenotype in Lim2 deficient mice. Invest Ophthalmol Vis Sci. 52 (10), 7332-7339 (2011).
- Mulders, J. W., et al. MP17, a fiber specific intrinsic membrane protein from mammalian eye lens. Curr Eye Res. 7 (2), 207-219 (1988).
- Voorter, C. E., et al. Distribution of MP17 in isolated lens fibre membranes. Curr Eye Res. 8 (7), 697-706 (1989).
- Steele, E. C. Jr, et al. Identification of a mutation in the MP19 gene, Lim2, in the cataractous mouse mutant To3. Mol Vis. 3, 5(1997).
- Irum, B., et al. Mutation in LIM2 Is Responsible for Autosomal Recessive Congenital Cataracts. PLoS One. 11 (11), e0162620(2016).
- Wang, X., et al. Elongated axial length and myopia related fundus changes associated with the Arg130Cys mutation in the LIM2 gene in four Chinese families with congenital cataracts. Ann Transl Med. 9 (3), 235(2021).
- Berry, V., et al. A recurrent variant in LIM2 causes an isolated congenital sutural/lamellar cataract in a Japanese family. Ophthalmic Genet. 43 (5), 622-626 (2022).
- Pei, R., et al. A novel mutation of LIM2 causes autosomal dominant membranous cataract in a Chinese family. Int J Ophthalmol. 13 (10), 1512-1520 (2020).
- Ponnam, S. P., Ramesha, K., Tejwani, S., Matalia, J., Kannabiran, C. A missense mutation in LIM2 causes autosomal recessive congenital cataract. Mol Vis. 14, 1204-1208 (2008).
- Pras, E., et al. A missense mutation in the LIM2 gene is associated with autosomal recessive presenile cataract in an inbred Iraqi Jewish family. Am J Hum Genet. 70 (5), 1363-1367 (2002).
- Goyal, S., Singh, R., Singh, J. R., Vanita, V. Novel and known variants in GJA3 and LIM2 in congenital cataract families from North India. BMC Genomics. 25 (1), 31(2024).
- Puk, O., Ahmad, N., Wagner, S., de Angelis, M. H., Graw, J. Microphakia and congenital cataract formation in a novel Lim2(C51R) mutant mouse. Mol Vis. 17, 1164-1171 (2011).
- Dahm, R., Bramke, S., Dawczynski, J., Nagaraj, R. H., Kasper, M. Developmental aspects of galectin 3 expression in the lens. Histochem Cell Biol. 119 (3), 219-226 (2003).
- Gonen, T., Donaldson, P., Kistler, J. Galectin 3 is associated with the plasma membrane of lens fiber cells. Invest Ophthalmol Vis Sci. 41 (1), 199-203 (2000).
- Gonen, T., Grey, A. C., Jacobs, M. D., Donaldson, P. J., Kistler, J. MP20, the second most abundant lens membrane protein and member of the tetraspanin superfamily, joins the list of ligands of galectin 3. BMC Cell Biol. 2, 17(2001).
- Barton, K. A., Hsu, C. D., Petrash, J. M. Interactions between small heat shock protein alpha crystallin and galectin related interfiber protein (GRIFIN) in the ocular lens. Biochemistry. 48 (18), 3956-3966 (2009).
- Garcia Caballero, G., et al. Chicken lens development: complete signature of expression of galectins during embryogenesis and evidence for their complex formation with alpha , beta , delta , and tau crystallins, N CAM, and N-cadherin obtained by affinity chromatography. Cell Tissue Res. 379 (1), 13-35 (2020).
- Garcia Caballero, G., et al. Chicken GRIFIN: binding partners, developmental course of localization and activation of its lens specific gene expression by L Maf/Pax6. Cell Tissue Res. 375 (3), 665-683 (2019).
- Ogden, A. T., et al. GRIFIN, a novel lens specific protein related to the galectin family. J Biol Chem. 273 (44), 28889-28896 (1998).
- Menko, A. S., Philip, N. J. Beta 1 integrins in epithelial tissues: a unique distribution in the lens. Exp Cell Res. 218 (2), 516-521 (1995).
- Menko, S., Philp, N., Veneziale, B., Walker, J. Integrins and development: how might these receptors regulate differentiation of the lens. Ann N Y Acad Sci. 842, 36-41 (1998).
- Walker, J. L., Menko, A. S. alpha6 Integrin is regulated with lens cell differentiation by linkage to the cytoskeleton and isoform switching. Dev Biol. 210 (2), 497-511 (1999).
- Walker, J. L., Zhang, L., Zhou, J., Woolkalis, M. J., Menko, A. S. Role for alpha 6 integrin during lens development: Evidence for signaling through IGF 1R and ERK. Dev Dyn. 223 (2), 273-284 (2002).
- Wederell, E. D., et al. Laminin binding integrins in rat lens morphogenesis and their regulation during fibre differentiation. Exp Eye Res. 81 (3), 326-339 (2005).
- Barbour, W., et al. Expression patterns of beta1 related alpha integrin subunits in murine lens during embryonic development and wound healing. Curr Eye Res. 29 (1), 1-10 (2004).
- Wu, J. E., Santoro, S. A. Complex patterns of expression suggest extensive roles for the alpha 2 beta 1 integrin in murine development. Dev Dyn. 199 (4), 292-314 (1994).
- Duncan, M. K., Kozmik, Z., Cveklova, K., Piatigorsky, J., Cvekl, A. Overexpression of PAX6(5a) in lens fiber cells results in cataract and upregulation of (alpha)5(beta)1 integrin expression. J Cell Sci. 113 (Pt 18), 3173-3185 (2000).
- Bassuk, J. A., et al. Disruption of the Sparc locus in mice alters the differentiation of lenticular epithelial cells and leads to cataract formation. Exp Eye Res. 68 (3), 321-331 (1999).
- Gilmour, D. T., et al. Mice deficient for the secreted glycoprotein SPARC/osteonectin/BM40 develop normally but show severe age onset cataract formation and disruption of the lens. EMBO J. 17 (7), 1860-1870 (1998).
- Kantorow, M., Horwitz, J., Carper, D. Up regulation of osteonectin/SPARC in age-related cataractous human lens epithelia. Mol Vis. 4, 17(1998).
- Emerson, R. O., Sage, E. H., Ghosh, J. G., Clark, J. I. Chaperone like activity revealed in the matricellular protein SPARC. J Cell Biochem. 98 (4), 701-705 (2006).
- Weaver, M. S., Sage, E. H., Yan, Q. Absence of SPARC in lens epithelial cells results in altered adhesion and extracellular matrix production in vitro. J Cell Biochem. 97 (2), 423-432 (2006).
- Weaver, M. S., Workman, G., Sage, E. H. The copper binding domain of SPARC mediates cell survival in vitro via interaction with integrin beta1 and activation of integrin linked kinase. J Biol Chem. 283 (33), 22826-22837 (2008).
- Yan, Q., Perdue, N., Blake, D., Sage, E. H. Absence of SPARC in murine lens epithelium leads to increased deposition of laminin 1 in lens capsule. Invest Ophthalmol Vis Sci. 46 (12), 4652-4660 (2005).
- Greiling, T. M., Stone, B., Clark, J. I. Absence of SPARC leads to impaired lens circulation. Exp Eye Res. 89 (3), 416-425 (2009).
- Giannone, A. A., Li, L., Sellitto, C., White, T. W. Physiological Mechanisms Regulating Lens Transport. Front Physiol. 12, 818649(2021).
- Donaldson, P. J., Chen, Y., Petrova, R. S., Grey, A. C., Lim, J. C. Regulation of lens water content: Effects on the physiological optics of the lens. Prog Retin Eye Res. 95, 101152(2023).
- Donaldson, P. J., Grey, A. C., Maceo Heilman, B., Lim, J. C., Vaghefi, E. The physiological optics of the lens. Prog Retin Eye Res. 56, e1-e24 (2017).
- Mathias, R. T., Kistler, J., Donaldson, P. The lens circulation. J Membr Biol. 216 (1), 1-16 (2007).
- Robinson, K. R., Patterson, J. W. Localization of steady currents in the lens. Curr Eye Res. 2 (12), 843-847 (1982).
- Mathias, R. T., Rae, J. L., Baldo, G. J. Physiological properties of the normal lens. Physiol Rev. 77 (1), 21-50 (1997).
- Gao, J., Sun, X., Yatsula, V., Wymore, R. S., Mathias, R. T. Isoform specific function and distribution of Na/K pumps in the frog lens epithelium. J Membr Biol. 178 (2), 89-101 (2000).
- Alvarez, L. J., Candia, O. A., Grillone, L. R. Na+ K+ ATPase distribution in frog and bovine lenses. Curr Eye Res. 4 (2), 143-152 (1985).
- Delamere, N. A., Dean, W. L. Distribution of lens sodium potassium adenosine triphosphatase. Invest Ophthalmol Vis Sci. 34 (7), 2159-2163 (1993).
- Paterson, C. A. Distribution and movement of ions in the ocular lens. Doc Ophthalmol. 31 (1), 1-28 (1972).
- Donaldson, P. J., Petrova, R. S., Nair, N., Chen, Y., Schey, K. L. Regulation of water flow in the ocular lens: new roles for aquaporins. J Physiol. 602 (13), 3041-3056 (2024).
- Goodenough, D. A. The crystalline lens. A system networked by gap junctional intercellular communication. Semin Cell Biol. 3 (1), 49-58 (1992).
- Mathias, R. T., White, T. W., Gong, X. Lens gap junctions in growth, differentiation, and homeostasis. Physiol Rev. 90 (1), 179-206 (2010).
- Beyer, E. C., Kistler, J., Paul, D. L., Goodenough, D. A. Antisera directed against connexin43 peptides react with a 43 kD protein localized to gap junctions in myocardium and other tissues. J Cell Biol. 108 (2), 595-605 (1989).
- Gao, Y., Spray, D. C. Structural changes in lenses of mice lacking the gap junction protein connexin43. Invest Ophthalmol Vis Sci. 39 (7), 1198-1209 (1998).
- Rong, P., et al. Disruption of Gja8 (alpha8 connexin) in mice leads to microphthalmia associated with retardation of lens growth and lens fiber maturation. Development. 129 (1), 167-174 (2002).
- Puk, O., et al. Mutation in a novel connexin like gene (Gjf1) in the mouse affects early lens development and causes a variable small eye phenotype. Invest Ophthalmol Vis Sci. 49 (4), 1525-1532 (2008).
- Sonntag, S., et al. Mouse lens connexin23 (Gje1) does not form functional gap junction channels but causes enhanced ATP release from HeLa cells. Eur J Cell Biol. 88 (2), 65-77 (2009).
- Bassnett, S., Wilmarth, P. A., David, L. L. The membrane proteome of the mouse lens fiber cell. Mol Vis. 15, 2448-2463 (2009).
- Wang, Z., Han, J., David, L. L., Schey, K. L. Proteomics and phosphoproteomics analysis of human lens fiber cell membranes. Invest Ophthalmol Vis Sci. 54 (2), 1135-1143 (2013).
- Berthoud, V. M., et al. Connexin23 deletion does not affect lens transparency. Exp Eye Res. 146, 283-288 (2016).
- Fleishman, S. J., Unger, V. M., Yeager, M., Ben Tal, N. A Calpha model for the transmembrane alpha helices of gap junction intercellular channels. Mol Cell. 15 (6), 879-888 (2004).
- Unger, V. M., Kumar, N. M., Gilula, N. B., Yeager, M. Three dimensional structure of a recombinant gap junction membrane channel. Science. 283 (5405), 1176-1180 (1999).
- Hu, Z., Riquelme, M. A., Gu, S., Jiang, J. X. Regulation of Connexin Gap Junctions and Hemichannels by Calcium and Calcium Binding Protein Calmodulin. Int J Mol Sci. 21 (21), (2020).
- Quan, Y., Du, Y., Tong, Y., Gu, S., Jiang, J. X. Connexin Gap Junctions and Hemichannels in Modulating Lens Redox Homeostasis and Oxidative Stress in Cataractogenesis. Antioxidants (Basel). 10 (9), (2021).
- Ebihara, L., Korzyukov, Y., Kothari, S., Tong, J. J. Cx46 hemichannels contribute to the sodium leak conductance in lens fiber cells. Am J Physiol Cell Physiol. 306 (5), C506-C513 (2014).
- Liu, J., et al. Mechanosensitive collaboration between integrins and connexins allows nutrient and antioxidant transport into the lens. J Cell Biol. 219 (12), (2020).
- Tong, Y., et al. Mechano activated connexin hemichannels and glutathione transport protect lens fiber cells against oxidative insults. Redox Biol. 73, 103216(2024).
- Wang, G., Quan, Y., Ma, B., Gu, S., Jiang, J. X. Mechano activated connexin hemichannels mediate intercellular glutathione transport and support lens redox homeostasis. Redox Biol. 85, 103767(2025).
- Shi, W., Riquelme, M. A., Gu, S., Jiang, J. X. Connexin hemichannels mediate glutathione transport and protect lens fiber cells from oxidative stress. J Cell Sci. 131 (6), (2018).
- Ramachandran, S., Xie, L. H., John, S. A., Subramaniam, S., Lal, R. A novel role for connexin hemichannel in oxidative stress and smoking induced cell injury. PLoS One. 2 (8), e712(2007).
- Quan, Y., Du, Y., Wu, C., Gu, S., Jiang, J. X. Connexin hemichannels regulate redox potential via metabolite exchange and protect lens against cellular oxidative damage. Redox Biol. 46, 102102(2021).
- Quan, Y., Du, Y., Wu, C., Gu, S., Jiang, J. X. Data on Connexin 43 hemichannels regulation of cellular redox in lens. Data Brief. 39, 107572(2021).
- Ren, Q., et al. Cataract causing mutation of human connexin 46 impairs gap junction, but increases hemichannel function and cell death. PLoS One. 8 (9), e74732(2013).
- Siller Jackson, A. J., et al. Adaptation of connexin 43 hemichannel prostaglandin release to mechanical loading. J Biol Chem. 283 (39), 26374-26382 (2008).
- Cheng, C., et al. Lens ion homeostasis relies on the assembly and/or stability of large connexin 46 gap junction plaques on the broad sides of differentiating fiber cells. Am J Physiol Cell Physiol. 308 (10), C835-C847 (2015).
- Gong, X., et al. Disruption of alpha3 connexin gene leads to proteolysis and cataractogenesis in mice. Cell. 91 (6), 833-843 (1997).
- Gong, X., Baldo, G. J., Kumar, N. M., Gilula, N. B., Mathias, R. T. Gap junctional coupling in lenses lacking alpha3 connexin. Proc Natl Acad Sci U S A. 95 (26), 15303-15308 (1998).
- White, T. W., Goodenough, D. A., Paul, D. L. Targeted ablation of connexin50 in mice results in microphthalmia and zonular pulverulent cataracts. J Cell Biol. 143 (3), 815-825 (1998).
- Sellitto, C., Li, L., White, T. W. Connexin50 is essential for normal postnatal lens cell proliferation. Invest Ophthalmol Vis Sci. 45 (9), 3196-3202 (2004).
- White, T. W. Unique and redundant connexin contributions to lens development. Science. 295 (5553), 319-320 (2002).
- Li, L., et al. Connexin mediated cataract prevention in mice. PLoS One. 5 (9), (2010).
- Schey, K. L., et al. Lens Aquaporins in Health and Disease: Location is Everything! Front Physiol. 13, 882550(2022).
- Schey, K. L., Petrova, R. S., Gletten, R. B., Donaldson, P. J. The Role of Aquaporins in Ocular Lens Homeostasis. Int J Mol Sci. 18 (12), (2017).
- Gao, J., et al. Lens intracellular hydrostatic pressure is generated by the circulation of sodium and modulated by gap junction coupling. J Gen Physiol. 137 (6), 507-520 (2011).
- Gao, J., Sun, X., White, T. W., Delamere, N. A., Mathias, R. T. Feedback Regulation of Intracellular Hydrostatic Pressure in Surface Cells of the Lens. Biophys J. 109 (9), 1830-1839 (2015).
- Shahidullah, M., et al. TRPV1 activation stimulates NKCC1 and increases hydrostatic pressure in the mouse lens. Am J Physiol Cell Physiol. 318 (5), C969-C980 (2020).
- Petrova, R. S., et al. Modulation of Membrane Trafficking of AQP5 in the Lens in Response to Changes in Zonular Tension Is Mediated by the Mechanosensitive Channel TRPV1. Int J Mol Sci. 24 (10), (2023).
- Chen, Y., Petrova, R. S., Qiu, C., Donaldson, P. J. Intracellular hydrostatic pressure regulation in the bovine lens: a role in the regulation of lens optics? Am J Physiol Regul Integr Comp Physiol. 322 (3), R263-R279 (2022).
- Donaldson, P. J., Musil, L. S., Mathias, R. T. Point: A critical appraisal of the lens circulation model an experimental paradigm for understanding the maintenance of lens transparency? Invest Ophthalmol Vis Sci. 51 (5), 2303-2306 (2010).
- Merriman Smith, B. R., Krushinsky, A., Kistler, J., Donaldson, P. J. Expression patterns for glucose transporters GLUT1 and GLUT3 in the normal rat lens and in models of diabetic cataract. Invest Ophthalmol Vis Sci. 44 (8), 3458-3466 (2003).
- Merriman Smith, R., Donaldson, P., Kistler, J. Differential expression of facilitative glucose transporters GLUT1 and GLUT3 in the lens. Invest Ophthalmol Vis Sci. 40 (13), 3224-3230 (1999).
- Zahraei, A., et al. Mapping Glucose Uptake, Transport and Metabolism in the Bovine Lens Cortex. Front Physiol. 13, 901407(2022).
- Lim, J. C., Perwick, R. D., Li, B., Donaldson, P. J. Comparison of the expression and spatial localization of glucose transporters in the rat, bovine and human lens. Exp Eye Res. 161, 193-204 (2017).
- Swarup, A., et al. Deletion of GLUT1 in mouse lens epithelium leads to cataract formation. Exp Eye Res. 172, 45-53 (2018).
- Reddy, V. N. Metabolism of glutathione in the lens. Exp Eye Res. 11 (3), 310-328 (1971).
- Truscott, R. J. Age-related nuclear cataract oxidation is the key. Exp Eye Res. 80 (5), 709-725 (2005).
- Kannan, R., Yi, J. R., Zlokovic, B. V., Kaplowitz, N. Molecular characterization of a reduced glutathione transporter in the lens. Invest Ophthalmol Vis Sci. 36 (9), 1785-1792 (1995).
- Mackic, J. B., et al. Transport of circulating reduced glutathione at the basolateral side of the anterior lens epithelium: physiologic importance and manipulations. Exp Eye Res. 62 (1), 29-37 (1996).
- Li, B., Li, L., Donaldson, P. J., Lim, J. C. Dynamic regulation of GSH synthesis and uptake pathways in the rat lens epithelium. Exp Eye Res. 90 (2), 300-307 (2010).
- Lim, J., Li, L., Jacobs, M. D., Kistler, J., Donaldson, P. J. Mapping of glutathione and its precursor amino acids reveals a role for GLYT2 in glycine uptake in the lens core. Invest Ophthalmol Vis Sci. 48 (11), 5142-5151 (2007).
- Li, L., Lim, J., Jacobs, M. D., Kistler, J., Donaldson, P. J. Regional differences in cystine accumulation point to a sutural delivery pathway to the lens core. Invest Ophthalmol Vis Sci. 48 (3), 1253-1260 (2007).
- Rathbun, W. B. Activity of glutathione synthesis enzymes in the rhesus monkey lens related to age: a model for the human lens. Curr Eye Res. 5 (2), 161-166 (1986).
- Sethna, S. S., Holleschau, A. M., Rathbun, W. B. Activity of glutathione synthesis enzymes in human lens related to age. Curr Eye Res. 2 (11), 735-742 (1982).
- Giblin, F. J., et al. Nuclear light scattering, disulfide formation and membrane damage in lenses of older guinea pigs treated with hyperbaric oxygen. Exp Eye Res. 60 (3), 219-235 (1995).
- Padgaonkar, V. A., et al. Hyperbaric oxygen in vivo accelerates the loss of cytoskeletal proteins and MIP26 in guinea pig lens nucleus. Exp Eye Res. 68 (4), 493-504 (1999).
- Padgaonkar, V., Giblin, F. J., Reddy, V. N. Disulfide cross linking of urea insoluble proteins in rabbit lenses treated with hyperbaric oxygen. Exp Eye Res. 49 (5), 887-899 (1989).
- Lou, M. F., Dickerson, J. E. Jr Protein thiol mixed disulfides in human lens. Exp Eye Res. 55 (6), 889-896 (1992).
- Wei, Z., et al. Aging lens epithelium is susceptible to ferroptosis. Free Radic Biol Med. 167, 94-108 (2021).
- Wei, Z., et al. Deficiency in glutathione peroxidase 4 (GPX4) results in abnormal lens development and newborn cataract. Proc Natl Acad Sci U S A. 121 (48), e2407842121(2024).
- Cheng, C., Fowler, V. M., Gong, X. EphA2 and ephrin A5 are not a receptor ligand pair in the ocular lens. Exp Eye Res. 162, 9-17 (2017).
- Islam, S. T., Cheheltani, S., Cheng, C., Fowler, V. M. Disease related non muscle myosin IIA D1424N rod domain mutation, but not R702C motor domain mutation, disrupts mouse ocular lens fiber cell alignment and hexagonal packing. Cytoskeleton (Hoboken). 81 (12), 789-805 (2024).
- Islam, S. T., Cheng, C., Parreno, J., Fowler, V. M. Nonmuscle Myosin IIA Regulates the Precise Alignment of Hexagonal Eye Lens Epithelial Cells During Fiber Cell Formation and Differentiation. Invest Ophthalmol Vis Sci. 64 (4), 20(2023).
- Forrester, J. V., Dick, A. D., McMenamin, P. G., Roberts, F., Pearlman, E. The Eye (Fourth Edition). Forrester, J. V. , W.B. Saunders. 1-102.e102 (2016).
- D’Amore, P. A. Encyclopedia of the Eye (Second Edition). , Elsevier. 514-520 (2025).
- Vrensen, G. F. Aging of the human eye lens a morphological point of view. Comp Biochem Physiol A Physiol. 111 (4), 519-532 (1995).
- Vrensen, G. F., Duindam, H. J. Maturation of fiber membranes in the human eye lens. Ultrastructural and Raman microspectroscopic observations. Ophthalmic Res. 27 Suppl 1, 78-85 (1995).
- Willekens, B., Vrensen, G. The three dimensional organization of lens fibers in the rabbit. A scanning electron microscopic reinvestigation. Albrecht Von Graefes Arch Klin Exp Ophthalmol. 216 (4), 275-289 (1981).
- Willekens, B., Vrensen, G. The three dimensional organization of lens fibers in the rhesus monkey. Graefes Arch Clin Exp Ophthalmol. 219 (3), 112-120 (1982).
- Willekens, B., Vrensen, G. Lens fiber organization in four avian species: a scanning electron microscopic study. Tissue Cell. 17 (3), 359-377 (1985).
- Lo, W. K., et al. Aquaporin 0 targets interlocking domains to control the integrity and transparency of the eye lens. Invest Ophthalmol Vis Sci. 55 (3), 1202-1212 (2014).
- Lo, W. K., Harding, C. V. Square arrays and their role in ridge formation in human lens fibers. J Ultrastruct Res. 86 (3), 228-245 (1984).
- Kistler, J., et al. Membrane interlocking domains in the lens. Invest Ophthalmol Vis Sci. 27 (10), 1527-1534 (1986).
- Dickson, D. H., Crock, G. W. Interlocking patterns on primate lens fibers. Invest Ophthalmol. 11 (10), 809-815 (1972).
- Kuszak, J., Alcala, J., Maisel, H. The surface morphology of embryonic and adult chick lens fiber cells. Am J Anat. 159 (4), 395-410 (1980).
- Kuwabara, T. The maturation of the lens cell: a morphologic study. Exp Eye Res. 20 (5), 427-443 (1975).
- Martin, J. B., et al. Arvcf Dependent Adherens Junction Stability is Required to Prevent Age-related Cortical Cataracts. Front Cell Dev Biol. 10, 840129(2022).
- Chen, Y., Stump, R. J., Lovicu, F. J., Shimono, A., McAvoy, J. W. Wnt signaling is required for organization of the lens fiber cell cytoskeleton and development of lens three dimensional architecture. Dev Biol. 324 (1), 161-176 (2008).
- Sugiyama, Y., et al. Concave to convex curve conversion of fiber cells correlates with Y shaped suture formation at the poles of the rodent lens. Exp Eye Res. 248, 110066(2024).
- Kuszak, J. R., Sivak, J. G., Weerheim, J. A. Lens optical quality is a direct function of lens sutural architecture. Invest Ophthalmol Vis Sci. 32 (7), 2119-2129 (1991).
- Cheng, C. EphA2 and Ephrin A5 Guide Eye Lens Suture Alignment and Influence Whole Lens Resilience. Invest Ophthalmol Vis Sci. 62 (15), 3(2021).
- Xia, C. H., et al. Absence of alpha3 (Cx46) and alpha8 (Cx50) connexins leads to cataracts by affecting lens inner fiber cells. Exp Eye Res. 83 (3), 688-696 (2006).
- BEERS, A. P. A., van der HEIJDE, G. L. Age-related Changes in the Accommodation Mechanism. Optometry and Vision Science. 73 (4), 235-242 (1996).
- van Alphen, G. W., Graebel, W. P. Elasticity of tissues involved in accommodation. Vision Res. 31 (7-8), 1417-1438 (1991).
- Fisher, R. F. The ciliary body in accommodation. Trans Ophthalmol Soc U K (1962). 105 (Pt 2), 208-219 (1986).
- Graebel, W. P., van Alphen, G. W. H. M. The Elasticity of Sclera and Choroid of the Human Eye, and Its Implications on Scleral Rigidity and Accommodation. Journal of Biomechanical Engineering. 99 (4), 203-208 (1977).
- Tamm, S., Tamm, E., Rohen, J. W. Age-related changes of the human ciliary muscle. A quantitative morphometric study. Mech Ageing Dev. 62 (2), 209-221 (1992).
- Scarcelli, G., Kim, P., Yun, S. H. In vivo measurement of age-related stiffening in the crystalline lens by Brillouin optical microscopy. Biophys J. 101 (6), 1539-1545 (2011).
- Zhou, H., Yan, H., Yan, W., Wang, X., Li, Q. In vivo ultraosound elastographic evaluation of the age-related change of human lens nuclear stiffness. BMC Ophthalmol. 20 (1), 135(2020).
- Hermans, E., Dubbelman, M., van der Heijde, R., Heethaar, R. The shape of the human lens nucleus with accommodation. J Vis. 7 (10), 16.1-10 (2007).
- Fisher, R. F., Pettet, B. E. Presbyopia and the water content of the human crystalline lens. J Physiol. 234 (2), 443-447 (1973).
- Alizadeh, A., et al. Characterization of a mutation in the lens specific CP49 in the 129 strain of mouse. Invest Ophthalmol Vis Sci. 45 (3), 884-891 (2004).
- Fudge, D. S., et al. Intermediate filaments regulate tissue size and stiffness in the murine lens. Invest Ophthalmol Vis Sci. 52 (6), 3860-3867 (2011).
- Gokhin, D. S., et al. Tmod1 and CP49 synergize to control the fiber cell geometry, transparency, and mechanical stiffness of the mouse lens. PLoS One. 7 (11), e48734(2012).
- Duindam, J. J., Vrensen, G. F., Otto, C., Greve, J. Aging affects the conformation of cholesterol in the human eye lens. Ophthalmic Res. 28 Suppl 1, 86-91 (1996).
- Li, L. K., So, L., Spector, A. Age dependent changes in the distribution and concentration of human lens cholesterol and phospholipids. Biochim Biophys Acta. 917 (1), 112-120 (1987).
- Mainali, L., Raguz, M., O'Brien, W. J., Subczynski, W. K. Changes in the Properties and Organization of Human Lens Lipid Membranes Occurring with Age. Curr Eye Res. 42 (5), 721-731 (2017).
- Truscott, R. J. Age-related nuclear cataract: a lens transport problem. Ophthalmic Res. 32 (5), 185-194 (2000).
- Subczynski, W. K., Raguz, M., Widomska, J., Mainali, L., Konovalov, A. Functions of cholesterol and the cholesterol bilayer domain specific to the fiber cell plasma membrane of the eye lens. J Membr Biol. 245 (1), 51-68 (2012).
- Widomska, J., Subczynski, W. K. Why Is Very High Cholesterol Content Beneficial for the Eye Lens but Negative for Other Organs? Nutrients. 11 (5), (2019).
- Khadka, N. K., Mortimer, M. F., Marosvari, M., Timsina, R., Mainali, L. Membrane elasticity modulated by cholesterol in model of porcine eye lens lipid membrane. Exp Eye Res. 220, 109131(2022).
- Bracchi, P. G., Carta, F., Fasella, P., Maraini, G. Selective binding of aged alpha crystallin to lens fibre ghosts. Exp Eye Res. 12 (1), 151-154 (1971).
- Maraini, G., Fasella, P. Reversible binding of soluble lens proteins to lens fibre ghosts. Exp Eye Res. 10 (1), 133-139 (1970).
- Broekhuyse, R. M., Kuhlmann, E. D. Lens membranes. IV. Preparative isolation and characterization of membranes and various membrane proteins from calf lens. Exp Eye Res. 26 (3), 305-320 (1978).
- Friedrich, M. G., Truscott, R. J. Large scale binding of alpha crystallin to cell membranes of aged normal human lenses: a phenomenon that can be induced by mild thermal stress. Invest Ophthalmol Vis Sci. 51 (10), 5145-5152 (2010).
- Khadka, N. K., Timsina, R., Mainali, L. An AFM Approach Applied in a Study of alpha Crystallin Membrane Association: New Insights into Lens Hardening and Presbyopia Development. Membranes (Basel). 12 (5), (2022).
- Timsina, R., Khadka, N. K., Maldonado, D., Mainali, L. Interaction of alpha crystallin with four major phospholipids of eye lens membranes. Exp Eye Res. 202, 108337(2021).
- Timsina, R., Mainali, L. Association of Alpha Crystallin with Fiber Cell Plasma Membrane of the Eye Lens Accompanied by Light Scattering and Cataract Formation. Membranes (Basel). 11 (6), (2021).
- Timsina, R., Trossi Torres, G., O'Dell, M., Khadka, N. K., Mainali, L. Cholesterol and cholesterol bilayer domains inhibit binding of alpha crystallin to the membranes made of the major phospholipids of eye lens fiber cell plasma membranes. Exp Eye Res. 206, 108544(2021).
- Parreno, J., et al. Methodologies to unlock the molecular expression and cellular structure of ocular lens epithelial cells. Front Cell Dev Biol. 10, 983178(2022).
- Cvekl, A., Camerino, M. J. Generation of Lens Progenitor Cells and Lentoid Bodies from Pluripotent Stem Cells: Novel Tools for Human Lens Development and Ocular Disease Etiology. Cells. 11 (21), (2022).
- Murphy, P., et al. Light focusing human micro lenses generated from pluripotent stem cells model lens development and drug induced cataract in vitro. Development. 145 (1), (2018).
- Goldberg, M. W. High Resolution Scanning Electron Microscopy and Immuno Gold Labeling of the Nuclear Lamina and Nuclear Pore Complex. Methods Mol Biol. 1411, 441-459 (2016).
- Goldberg, M. W., Fiserova, J. Immunogold Labeling for Scanning Electron Microscopy. Methods Mol Biol. 1474, 309-325 (2016).
- Hermann, R., Walther, P., Muller, M. Immunogold labeling in scanning electron microscopy. Histochem Cell Biol. 106 (1), 31-39 (1996).
- Vu, M. P., Cheng, C. Preparation and Immunofluorescence Staining of Bundles and Single Fiber Cells from the Cortex and Nucleus of the Eye Lens. J Vis Exp. (196), e65638(2023).
- Emin, G., et al. Whole Mount Imaging to Visualize and Quantify Peripheral Lens Structure, Cell Morphology, and Organization. J Vis Exp. (203), e66017(2024).
- Zhou, Y., Shiels, A. Epha2 and Efna5 participate in lens cell pattern formation. Differentiation. 102, 1-9 (2018).
- Huynh, P. N., Cheng, C. Spatial temporal comparison of Eph/Ephrin gene expression in ocular lenses from aging and knockout mice. Front Ophthalmol (Lausanne). 4, 1410860(2024).
- Disatham, J., et al. Lens differentiation is characterized by stage specific changes in chromatin accessibility correlating with differentiation state specific gene expression. Dev Biol. 453 (1), 86-104 (2019).
- Farnsworth, D. R., Posner, M., Miller, A. C. Single cell transcriptomics of the developing zebrafish lens and identification of putative controllers of lens development. Exp Eye Res. 206, 108535(2021).
- Tangeman, J. A., et al. Integrated single cell multiomics uncovers foundational regulatory mechanisms of lens development and pathology. Development. 151 (1), (2024).
- Xia, C. H., et al. Periaxin gene variants are linked to age-related cataracts in Cx46 deficient lenses. Commun Biol. 8 (1), 1356(2025).
- Gong, X., Agopian, K., Kumar, N. M., Gilula, N. B. Genetic factors influence cataract formation in alpha 3 connexin knockout mice. Dev Genet. 24 (1-2), 27-32 (1999).
- Baradia, H., Nikahd, N., Glasser, A. Mouse lens stiffness measurements. Exp Eye Res. 91 (2), 300-307 (2010).
- Sindhu Kumari, S., et al. Role of Aquaporin 0 in lens biomechanics. Biochem Biophys Res Commun. 462 (4), 339-345 (2015).
- Cheng, C., Gokhin, D. S., Nowak, R. B., Fowler, V. M. Sequential Application of Glass Coverslips to Assess the Compressive Stiffness of the Mouse Lens: Strain and Morphometric Analyses. J Vis Exp. (111), e53986(2016).
- Wolf, N. S., Li, Y., Pendergrass, W., Schmeider, C., Turturro, A. Normal mouse and rat strains as models for age-related cataract and the effect of caloric restriction on its development. Exp Eye Res. 70 (5), 683-692 (2000).
- Martin Montalvo, A., et al. Metformin improves healthspan and lifespan in mice. Nat Commun. 4, 2192(2013).
- Pearson, K. J., et al. Resveratrol delays age-related deterioration and mimics transcriptional aspects of dietary restriction without extending life span. Cell Metab. 8 (2), 157-168 (2008).
- Pendergrass, W., Penn, P., Possin, D., Wolf, N. Accumulation of DNA, nuclear and mitochondrial debris, and ROS at sites of age-related cortical cataract in mice. Invest Ophthalmol Vis Sci. 46 (12), 4661-4670 (2005).
- Pendergrass, W. R., Penn, P. E., Li, J., Wolf, N. S. Age-related telomere shortening occurs in lens epithelium from old rats and is slowed by caloric restriction. Exp Eye Res. 73 (2), 221-228 (2001).
- Schriner, S. E., et al. Extension of murine life span by overexpression of catalase targeted to mitochondria. Science. 308 (5730), 1909-1911 (2005).
- Wolf, N., et al. Age-related cataract progression in five mouse models for anti oxidant protection or hormonal influence. Exp Eye Res. 81 (3), 276-285 (2005).
- Panja, S., et al. Aggrelyte 2 promotes protein solubility and decreases lens stiffness through lysine acetylation and disulfide reduction: Implications for treating presbyopia. Aging Cell. 22 (4), e13797(2023).
- Panja, S., Nam, M. H., Gaikwad, H., Rankenberg, J., Nagaraj, R. H. Topical ocular application of aggrelyte 2A reduces lens stiffness in mice. Frontiers in Ophthalmology. 3, (2023).
- Kador, P. F., Guo, C., Kawada, H., Randazzo, J., Blessing, K. Topical nutraceutical Optixcare EH ameliorates experimental ocular oxidative stress in rats. J Ocul Pharmacol Ther. 30 (7), 593-602 (2014).
- Kador, P. F., Webb, T. R., Bras, D., Ketring, K., Wyman, M. Topical KINOSTAT ameliorates the clinical development and progression of cataracts in dogs with diabetes mellitus. Vet Ophthalmol. 13 (6), 363-368 (2010).
- Kador, P. F., Wyman, M., Oates, P. J. Aldose reductase, ocular diabetic complications and the development of topical Kinostat((R)). Prog Retin Eye Res. 54, 1-29 (2016).
- Maden, M. Salamanders as Key Models for Development and Regeneration Research. Methods Mol Biol. 2562, 1-23 (2023).
- Grogg, M. W., Call, M. K., Tsonis, P. A. Signaling during lens regeneration. Semin Cell Dev Biol. 17 (6), 753-758 (2006).
- Tsonis, P. A., Makarev, E. On dorsal/ventral specific genes in the iris during lens regeneration. Cell Mol Life Sci. 65 (1), 41-44 (2008).
- Kha, C. X., Son, P. H., Lauper, J., Tseng, K. A. A model for investigating developmental eye repair in Xenopus laevis. Exp Eye Res. 169, 38-47 (2018).
- Gwon, A. E., Gruber, L. J., Mundwiler, K. E. A histologic study of lens regeneration in aphakic rabbits. Invest Ophthalmol Vis Sci. 31 (3), 540-547 (1990).
- Gwon, A., Gruber, L. J., Mantras, C. Restoring lens capsule integrity enhances lens regeneration in New Zealand albino rabbits and cats. J Cataract Refract Surg. 19 (6), 735-746 (1993).
- Medvedovic, M., Tomlinson, C. R., Call, M. K., Grogg, M., Tsonis, P. A. Gene expression and discovery during lens regeneration in mouse: regulation of epithelial to mesenchymal transition and lens differentiation. Mol Vis. 12, 422-440 (2006).
- Call, M. K., Grogg, M. W., Del Rio Tsonis, K., Tsonis, P. A. Lens regeneration in mice: implications in cataracts. Exp Eye Res. 78 (2), 297-299 (2004).
- Kuszak, J. R., Brown, H. G. Embryology and anatomy of the crystallin lens. , W.B. Saunders. 82-96 (1994).
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Перепечатки и разрешения
Теги
Эта статья была опубликована
Видео скоро будет доступно