В этом протоколе представлен подробный метод выделения высококачественных одноклеточных суспензий как из здоровой, так и из опухолевой ткани лёгких мышей. Этот протокол может применяться к scRNA-seq, анализу потоковой цитометрии и выделению первичных клеток.
Методическая статья
Оптимизированная подготовка цельной мышиной опухолевой ткани лёгких для циркуляционной цитометрии и секвенирования одноклеточной РНК
В этой статье
Краткое содержание
Аннотация
НМРЛ составляет примерно 85% случаев рака лёгких, а саркома крыс Кирстена (KRAS) является самым часто мутируемым геном при НМРЛ. Хотя управление НМРЛ значительно продвинулось в последние годы, его гетерогенность и пластичность остаются неполностью изученными. Секвенирование одноклеточной РНК (scRNA-seq) стало важным инструментом для анализа клеточной гетерогенности в сложных тканях, таких как лёгкие. Однако получение высококачественных одиночных суспензий из ткани лёгких, содержащей опухоли, является сложно, особенно при образовании опухоли, когда ткань становится фиброзной и гетерогенной. Ключевым требованием для успешного scRNA-seq является подготовка жизнеспособных отдельных клеток с минимальным стрессом или повреждениями, вызванными обработкой. Здесь представлен подробный пошаговый протокол для выделения высококачественных одиночных суспензий как из здоровой, так и из опухолевой ткани лёгких мышей вKras G12D; tdTomato репортер-модель мыши. Процедура включает перфузию тканей, контролируемое ферментное пищеварение, мягкую механическую диссоциацию, лиз эритроцитов, фильтрацию и оценку жизнеспособности, а также достигает >85% жизнеспособных клеток до scRNA-seq. Наконец, опухолевые клетки tdTomato+ эффективно изолируются FACS и могут быть обнаружены как отдельные кластеры с помощью scRNA-seq с помощью этого протокола.
Введение
Рак легких является одной из ведущих причин смертей, связанных с раком, во всём мире. Его можно широко классифицировать на два основных подтипа: мелкоклеточный рак лёгких (SCLC) и немелкоклеточный рак лёгких (NSCLC)1. НМРЛ составляет примерно 85% всех случаев рака лёгких, при этом аденокарцинома является самым распространённым гистологическимподтипом 2. Хотя терапевтические стратегии при НМРЛ значительно улучшились за последние десятилетия, уровень смертности от рака лёгких остаётся высоким3. Химиотерапия и иммунотерапия — два основных метода лечения, используемых в клинической практике; однако многие пациенты испытывают лекарственную резистентность или не реагируют на иммунотерапию 4,5.
Микросреда опухоли (ТМЭ) играет ключевую роль в её инициации, прогрессировании и терапевтическойустойчивости 6. Всё больше данных свидетельствует о том, что состав TME динамически меняется современем 7,8. Противоопухолевые иммунные клетки обычно обогащаются ТМЭ на ранних стадиях опухологенеза, тогда как иммуносупрессивные и раковые популяции клеток становятся преобладающими по мере развитияопухоли 9. Поэтому понимание гетерогенности и пластичности ТМЭ при прогрессировании рака лёгких крайне важно для разъяснения механизмов заболевания и улучшения терапевтических результатов.
Секвенирование одноклеточной РНК (scRNA-seq) позволяет высокоразрешающее профилирование экспрессии генов на уровне отдельных клеток, что позволяет всесторонне охарактеризовать сложные тканевыетранскриптомы 10. Этот метод стал незаменимым для изучения клеточной гетерогенности и выявления механизмов, лежащих в основе прогрессирования опухоли и лекарственной устойчивости при ракелегких 11. Подготовка высококачественной одноклеточной суспензии является критически важным компонентом успешного scRNA-seq, поскольку стресс или повреждение клеток во время диссоциации могут привести к неточнымрезультатам 12,13.
Этот протокол позволяет секвенировать РНК из всех отдельных клеток, очищенных из целых опухолевых лёгких, независимо от размера клеток и не отбрасывая живые субпопуляции. Многие предыдущие исследования сообщали о секвенировании одиночных клеток опухолевых лёгких, которые либо были сосредоточены на опухолевых клетках и отброшенных CD45+ клетках 14, 15, 16, либо на иммунных клетках или других специфических типахклеток 17 и отброшенных опухоли. Этот протокол направлен на эффективное отделение всех типов клеток от целой мышиной опухолевой ткани лёгких, обеспечивая при этом высвобождение злокачественных клеток и сохраняя жизнеспособность нормальных клеток. Включая все живые одиночные клетки, этот протокол позволяет изучать все релевантные типы клеток в микросреде лёгких, содержащей опухоли, включая макрофагоподобные клетки, связанные с раком (CAMLs)18. Включены опциональные этапы сортировки клеток с флуоресценцией (FACS) для контроля качества и обогащения конкретных популяций клеток. Дополнительные рекомендации предоставляются по окрашиванию антител, маркировке 4',6-диамидино-2-фенилиндолом (DAPI) и краткосрочных процедур фиксации, когда немедленное сортирование невозможно.
Потенциальным ограничением этого протокола является оптимизация и валидация для тканей легких с ранними стадиями опухолей и нагрузкой на опухоли ниже 40%. Для лёгких с опухолями высокой степени или с опухолевой нагрузкой более 50% эффективность диссоциации может снижаться из-за наличия плотных стромальных компонентов и обширногофиброза 19,20, которые могут блокировать полное высвобождение злокачественных клеток.
Протокол
Все эксперименты, связанные с животными, проводились в соответствии с руководящими принципами Scripps Research по уходу и использованию животных и одобрены Комитетом по уходу и использованию животных Scripps Research в соответствии с протоколом #10-0019. KrasLSL-G12D/+; Мыши TdTomato+/- были созданы путём скрещивания мышей Kras LSL-G12D/+ с мышами TdTomato репортёров. KrasLSL-G12D/+, которому девять или десять недель; Мыши TdTomato+/- использовались в качестве моделей рака лёгких. Они инфицируются внутритрахеально лентивирусом, экспрессирующим рекомбиназу Cre, при вирусном титре 5 × 10⁵ единиц, образующих бляшок на мыши. Ткани лёгких, содержащие опухоли, были собраны через 25 недель. Возможные проблемы с пищеварением и устранение неполадок приведены в Дополнительной таблице 1. Реагенты и используемое оборудование перечислены в Таблице материалов.
1. Подготовка буферов
- Среда DMEM/F12: Подготовьте 2% (v/v) термоинактивированный FBS в среде DMEM/F12.
- Буфер для промывки клеток: Подготовьте 2% (v/v) термоинактивированного FBS в свободном PBS Ca+/Mg+ (pH 7,4).
- Перфузионный буфер: предварительно охлаждённый Ca+/Mg+ свободный PBS (pH 7,4).
- Ферментные растворы: растворить 10 мг (1600 U/mg) коллагеназы IV в среде 1 мл DMEM/F12 для получения раствора коллагеназы IV с концентрацией 16000 U/mL; Растворить 42 мг (1,19 U/mg) Dispase II в среде 1 мл DMEM/F12 для получения раствора Dispase II с содержанием 50 U/mL; Растворите 5 мг DNase I в среде DMEM/F12 с 1 мл для получения раствора ДНКазы I с концентрацией 5 мг/мл.
- Среда для расщепления: смешать 250 мкл коллагеназы IV, 200 мкл Диспазы II и 100 мкл растворов ДНКазы I в среде объёмом 5 мл DMEM/F12 для получения конечной концентрации 800 Мк/мл коллагеназы IV, 2 Мк/мл Диспазы II и 0,1 мг/мл ДНКазы I.
- Буфер реанимации: смешать 1 мкл 0,5 м EDTA (10 мкм), 1 мл термоинактивированного FBS (2% v/v) в 50 мл Ca+/Mg+ свободного PBS (pH 7,4).
- Раствор BSA: растворить 0,5 г BSA в 100 мл Ca+/Mg+ свободного PBS для получения раствора BSA с 0,5% (w/v).
- Буфер FACS: смешать 2,5 мл 1 M HEPES, 200 мкл 0,5 M EDTA в 100 мл BSA для получения конечной концентрации 25 мМ HEPES и 1 мМ EDTA.
2. Сбор ткани лёгких мыши
ПРИМЕЧАНИЕ: Все хирургические инструменты дезинфицируются 70% этанолом между образцами. Образцы хранятся на льду между каждым этапом, а вся пластиковая посуда сертифицирована как не содержащая ДНКаз/РНаз.
- Эвтаназия мышей в камере сCO 2 (согласно утверждённым протоколам). Положите мышь на спину на дисекционную площадку и прикрепите ножки. Обильно распыляйте 70% этанола.
- Сделайте разрез по средней линии шириной 2–3 см через кожу и мышцы нижней части живота. Аккуратно открывайте грудь и избегайте порезов лёгких или сердца.
- Прикрепите иглу Safety Multifly 21 G к шприцу объемом 50 мл и аспирируйте буфер для перфузии на 30 мл.
- Введите иглу в левый желудочек и сделайте небольшой разрез в правом предсердии с помощью острых прямых ножниц.
- Перфузия всеготела 21 с буфером перфузии 15 мл.
ПРИМЕЧАНИЕ: Отбеливание печени свидетельствует о завершении перфузии всего тела. - Удалить лёгкие из груди и вырезать лишнюю ткань, прикреплённую клёгким 22. Поместите лёгкие в 10 мл предварительно охлаждённого Ca+/Mg+ свободного PBS, чтобы смыть лишнюю кровь.
- Переместить лёгкие в трубку объёмом 1,5 мл, содержащую 500 мкл ледяного DMEM/F12.
3. Подготовка суспензии легких с одной клеточной суспензией
- Разрежьте лёгкую ткань на мелкие кусочки (1–2мм 3) с помощью сверхузких прямых ножниц на 2–3 минуты.
- Переложите измельчённую ткань лёгких в чашку диаметром 6 см с пищеварительной средой объемом 5 мл.
- Поставьте тарелку диаметром 6 см на термостатический шейкер при 50 об/мин на 25 минут при 37 °C. Смешивайте подвеску с помощью пипетки объёмом 1 мл каждые 8 минут.
- Поставьте сетчатое сито толщиной 100 мкм в чашку диаметром 10 см. Предварительно смочите сито 1 мл среднего DMEM/F12.
- Переложите переваренную суспензию в сито. Протолкните ткань через сито резиновым концом стерильного поршня для шприца.
- Поставьте сетчатое сито 70 мкм поверх центрифугной трубки объемом 50 мл. Предварительно смочите сито 1 мл среднего DMEM/F12.
- Фильтруйте суспензию ячейки через сито и промывайте сито средним раствором 5 мл DMEM/F12.
- Центрифугно фильтруйте ячейку при 400 г в течение 10 минут при 4 °C и аккуратно удалите супернатант. Взвесьте клеточную гранулу в лизинговом буфере 1 мл эритроцитарных клеток на 2 минуты при комнатной температуре.
- Добавьте 14 мл буфера для промывки и центрифугу при 400 г на 10 минут при 4 °C.
ПРИМЕЧАНИЕ: Если после стирки гранула всё ещё красная, повторите шаги 8 и 9. - Сбросьте супернатант и подвесьте ячейки в буфере реанимации объемом 20 мл.
- Смешайте 10 мкл одноэлементной суспензии с равным объёмом трипан-синего и добавьте 10 мкл смеси в затвор камеры для подсчёта ячеек. Проверьте жизнеспособность живой ячейки, номер ячеек и статус одной ячейки с помощью счётчика ячейки.
4. Анализ потоковой цитометрии
- Суспензировать клетки в ледяной буфере FACS и перенести 100 мкл клеточной суспензии в трубки объёмом 1,5 мл, содержащие 1 мкл Fc-блок антитела (1:100). Инкубировать образцы 15 минут на льду.
- Анализируйте пробы в центрифуге при 500 г в течение 5 минут и сбросьте супернатант. Суспендировать клетки в 200 мкл антитела CD326-APC (1:100) и инкубировать 45 минут в темноте при 4 °C.
- Анализируйте пробы в центрифуге при 500 г в течение 5 минут и сбросьте супернатант. Ресуспензировать клетки в 500 мкл буфера FACS с DAPI-окрашиванием (1:5000).
- Перенесите все образцы в пробирки FACS и защитите их от света.
- Проанализируйте образцы с помощью потокового цитометра. Использовались следующие флуорофоры: DAPI-V450, Tdtomato-YG585, CD326-APC. Стратегия гейтинга показана на рисунке 1.
Результаты
Высокая жизнеспособность клеток была достигнута в одноклеточной суспензии, подготовленной с использованием этого оптимизированного протокола. Изменения, улучшившие жизнеспособность клеток для легких с опухолями, включали оптимизацию концентрации ферментов (дополнительная таблица 2), встряхивание и смешивание образцов во время инкубации при 37 °C. Кроме того, использование дополнительного сетчатого сита объемом 40 мкм на шестом этапе было исключено для снижения механических сдвиговых напряжений, увеличивающих вероятность повреждения клетки; Добавление дополнительного сита может снизить образование мультиплетов. В среднем жизнеспособность ячеек превышала 85%, по сравнению с менее чем 80% до оптимизации (Таблица 1). Вариации концентрации клеток в основном объяснялись различиями в размере лёгких и используемой суспензионной средой в разных репликах.
В этой мышиной модели аденокарциномы лёгких, управляемойKras G12D, присутствуют опухолевые узлы, а нагрузка на опухоли варьируется от 10% до 40% через двадцать пять недель после началаопухоли 23. Две целоклеточные суспензии с одной клеточкой лёгких подвергались воздействию scRNA-seq на платформе 10x Genomics. Оценка качества Cell Ranger выявила соответственно 23 488 и 21 436 оценочных клеток в двух выборках (Таблица 2). График штрихкодов показал минимальное загрязнение окружающей РНК, вероятно, отражающее высокую жизнеспособность клеток (рисунок 2A,B).
Анализ главных компонентов (PCA) и равномерное приближение и проекция многообразия (UMAP) выявили хорошо определённые кластеры, при этом представлены все основные типы клеток лёгких (рисунок 3A). Точечные диаграммы репрезентативных маркерных генов подтвердили, что канонические биомаркеры высоко экспрессируются в соответствующих типах клеток (рисунок 3B). Кроме того, клетки TdTomato+ были обогащены эпителиальными кластерами, а клетки TdTomato+/EpCAM+ успешно выделены с помощью FACS (рисунок 1).
В итоге, этот оптимизированный протокол позволяет эффективно диссоциировать мышиную опухолевой ткань лёгких, обеспечивая высокую жизнеспособность клеток, низкую РНК-контаминацию и полное клеточное представление.
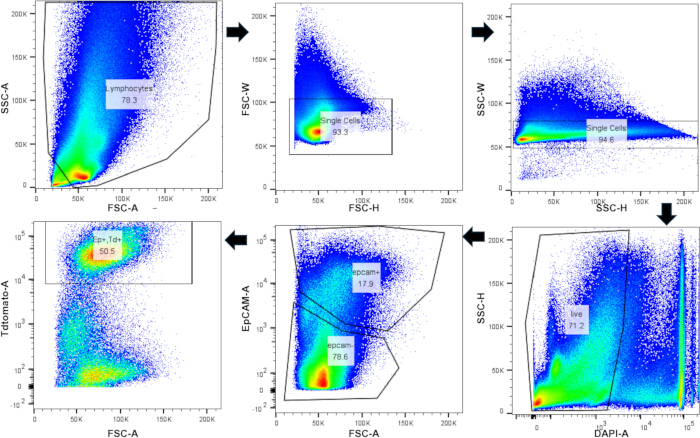
Рисунок 1: Выделение клеток TdTomato+/CD326 (EpCAM+) с помощью потоковой цитометрии. Стратегия гейтинга потоковой цитометрии для одноклеточной суспензии лёгких у мышей. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
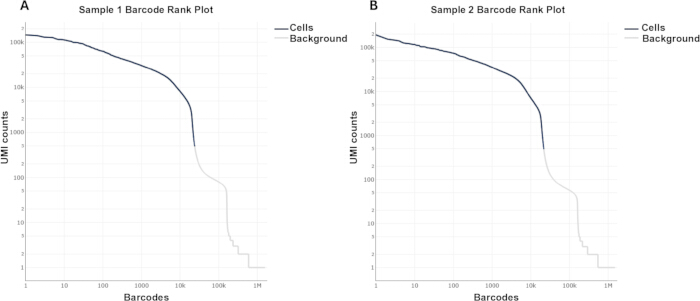
Рисунок 2: График ранжирования штрих-кода ScRNA-seq у лёгких мышей, содержащих опухоль. КрасLSL-G12D/+; Легкие мышей TdTomato+/- были собраны через 25 недель после заражения лентивирусом-Cre. (A,B) График ранжирования лёгких с опухолями по анализу Cellranger. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этого рисунка.
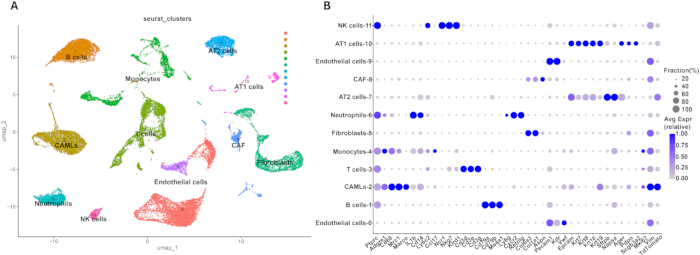
Рисунок 3: Анализ моноклеточной транскриптомики лёгких, содержащих опухоли мышей. (A) Проекция UMAP целых наборов данных лёгких с опухолями. (B) Точечный график классических генов, используемых для аннотаций кластеров. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
| До оптимизации | После оптимизации | |||
| Повтор 1 | Повтор 2 | Повтор 1 | Повтор 2 | |
| Общее количество ячеек | 1.3E+06 | 6.4E+05 | 1.8E+06 | 6.4E+05 |
| Живые клетки | 9.8E+05 | 5.0E+05 | 1.5E+06 | 5.7E+05 |
| Процент живых клеток | 76% | 77% | 83% | 89% |
Таблица 1: Жизнеспособность одиночных суспензионных клеток легких с опухолями до и после оптимизации . Концентрация и процент живых клеток определялись до и после использования этого протокола.
| Пример 1 | Пример 2 | |
| Оценочное количество ячеек | 23,488 | 21,436 |
| Средние значения на ячейку | 18,354 | 20,542 |
| Медианные гены на клетку | 2,565 | 2,513 |
| Общее количество обнаруженных генов | 30,893 | 30,556 |
| Медианный количество UMI на ячейку | 6,864 | 6,583 |
| Действительные штрихкоды | 95.90% | 95.80% |
| Насыщение секвенирования | 26.10% | 28.20% |
| Чтения дробей в клетках | 94.10% | 95.40% |
Таблица 2: Анализ контроля качества ScRNA-seq с помощью Cell Ranger . Ключевые оценки данных по одной ячейке, полученные из Cell Ranger
Дополнительная таблица 1: Решения по устранению неполадок. Предлагаются решения для устранения проблем, которые могут возникнуть в процессе пищеварения. Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительная таблица 2: Компоненты ферментных коктейлей до и после оптимизации. Конечные концентрации ферментного коктейля, использованные до и после оптимизации. Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Обсуждение
Этот протокол предусматривает подробную пошаговую процедуру подготовки высококачественных одноклеточных суспензий из ткани лёгких мышей. Для достижения оптимальных результатов требуется несколько критически важных шагов.
Перед ферментативным пищеварением необходимо провести перфузию всего тела для удаления крови из лёгких. Это гарантирует, что иммунные клетки, обнаруженные scRNA-seq, происходят из ткани лёгких, а не из циркулирующей крови. Во время перфузии необходимо ввести иглу в левый желудочек, чтобы предотвратить попадание перфузата в легочное кровообращение и повреждение клеток лёгких. Для сохранения жизнеспособности клетки все буферы, включая растворы для промывки, ресуспензии и перфузии, должны быть предварительно охлаждены на льду. Учитывая врождённую гетерогенность легкойткани 24, образцы следует хранить в среде DMEM/F12 до и во время пищеварения, так как эта среда обеспечивает необходимые питательные вещества, поддерживающие жизнеспособность клеток.
Высокая жизнеспособность клеток и хорошо определённые клеточные кластеры, наблюдаемые в этом протоколе, подтверждают, что комбинация ферментов является одновременно мягкой и эффективной. Известно, что ионы кальция и магния способствуют скуплению клеток и усиливаютферментативную активность 25,26. Поэтому для подготовки большинства буферов с целью минимизации скупления используется свободный PBS Ca+/Mg+, а DMEM/F12, содержащий эти ионы, служит базальной средой для буфера пищеварения с целью поддержания сбалансированной ферментативной эффективности.
Хотя предыдущие исследования описывали диссоциирующие мышиные лёгкие или ткани опухоли, они часто демонстрируют значительную вариабельность или неполное описание отбора и концентрациипротеаз 11,15,27. Например, Хан и др.11 использовали ферментные коктейли без указания концентрации, что затрудняет репликацию. Напротив, высокоспециализированный метод, описанный Chen и др.28, эффективен для диссоциации клеток альвеолярного типа II (AT2), но требует сложного рабочего процесса, что непрактично при одновременном сборе нескольких мышей.
Критической проблемой в исследованиях онкологии лёгких является структурная гетерогенность легкого, содержащего опухоль, которое состоит как из хрупких нормальных клеток, так и из злокачественных опухоли. Стандартные протоколы или коммерческие наборы часто разрабатываются специально для образцов нормальных тканей или опухолей. Они либо приводят к неполному пищеварению, либо к недостаточному освобождению раковых клеток из опухоли, либо к чрезмерному перевариванию, что вызывает значительный стресс и гибель клеток в более чувствительных нормальных тканях образцов легких с опухолями.
Этот протокол решает эту проблему за счёт тонкой настройки ферментативного коктейля (коллагеназа IV, Диспаза II и ДНКаза I) для достижения сбалансированной диссоциации. Эта оптимизация обеспечивает высвобождение злокачественных клеток при сохранении жизнеспособности нормальных клеток. Это подтверждается анализом потоковой цитометрии, в ходе которого мы успешно идентифицировали и расщепили две отдельные эпителиальные клетки. Эпителиальные клетки хорошо разделены на клетки TdTomato+ или TdTomato- клетки. Такой уровень разрешения демонстрирует, что этот метод подходит для изучения всей микросреды лёгких с опухолями, не жертвуя целостностью ткани хозяина. Включая в анализ все живые отдельные клетки, этот протокол позволяет изучать все релевантные типы клеток в микросреде лёгких, содержащей опухоли, включая макрофагоподобные клетки, ассоциированные с раком (CAML), (рисунок 3), которые ранее не были широко описаныв предыдущих исследованиях 15,16,17.
После переваривания анализ scRNA-seq показал, что эта процедура успешно изолирует различные типы клеток. Ферментные растворы должны быть свежеприготовлены в день эксперимента. Все параметры пищеварения оптимизированы для одного целого мышиного лёгкого. При использовании только одной доли или нескольких лёгких время пищеварения следует корректировать для обеспечения высокой жизнеспособности клеток и полной диссоциации тканей. Загрязнение окружающей среды РНК и образование мультиплетов — два основных фактора, влияющих на качество scRNA-seq29. Хотя наборы для удаления мертвых клеток часто используются для повышения жизнеспособности, этот протокол стабильно даёт более 80% живых клеток после переваривания, что делает этот этап необязательным. График штрих-кодов подтвердил минимальное загрязнение окружающей РНК даже без удаления мёртвых клеток.
Текущее исследование подтверждает эту методологию в контексте всего мышиного лёгкого с опухолями. Это оптимизированное ферментное пищеварение служит шаблоном для изучения различных других тканей, содержащих опухоли, характеризующихся схожими микросредами. Кроме того, высокая жизнеспособность клеток и сохранение всех типов клеток, достигнутые этим протоколом, делают его подходящим для передовых технологий секвенирования, таких как CITE-seq для картирования поверхностных белков и ATAC-seq для эпигенетического профилирования.
Хотя этот протокол обеспечивает высококачественные одиночные суспензии при низкой стоимости, процессуальный клеточный стресс всё же может возникать во время ферментативного пищеварения. Чтобы минимизировать артефакты экспрессии генов, связанных со стрессом, один оператор должен одновременно обрабатывать не более четырёх образцов.
Раскрытие информации
Авторы заявляют, что у них нет конкурирующих интересов.
Благодарности
Эта работа была поддержана Национальным институтом здоровья, Национальным институтом глаз (NEI), США, грантами 5R01EY026202, R01EY035333; Национальный институт стоматологических и черепно-лицевых исследований (NIDCR) предоставляет гранты R01DE031044, 2R01DE014756, а также гранты Национального института рака (NCI) R01CA271500 и 2R01CA211187.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| DMEM/F12 | Термо Фишер | 11320033 | Культура клеток |
| Коллагеназный тип IV | Сигма Алдич | C5138 | Пищеварительные ферменты |
| Dispase II | Сигма Алдич | D4693 | Пищеварительные ферменты |
| DNase I | Рош | 11284931001 | Удалить ДНК |
| Сито Falcon 70 Cell | Falcon | 352350 | Удалите непереваренную ткань |
| Стерильные ножницы | FST | 14088-10 | Разрезные ткани |
| Буфер лизиса эритроцитов | Сигма Алдич | R7757 | Удалять кровяные клетки |
| FBS, неактивированный теплом, | Феникс Сайентифик | PS100 | Защитные клетки |
| Ca+/Mg+ бесплатный PBS | Термо Фишер | 10010023 | Растворительные ферменты/клетки промывания |
| Safety-multifly 21G игла | Сарштедт | 3051524 | Перфузия всего тела |
| 50 мл шприца | BD | 300866 | Перфузия всего тела |
| Тарелка размером 6 см | Корнинг | 430116 | Переваривание тканей |
| Тарелка диаметром 10 см | Корнинг | 430167 | Переваривание тканей |
| Fc-блок антитела | BD | 553141; RRID:AB_394655 | Проточная цитометрия |
| DAPI | BD | 564907; RRID:AB_2869624 | Проточная цитометрия |
| CD326 | BD | 563478; RRID:AB_2738234 | Проточная цитометрия |
| HIVmPGKCre VSVG | Ядро вирусного вектора UI | VVC-U Айовы — 7556 | Лентивирный |
| Потоковый цитометр ZE5 (Yeti) | Био-Рад | Анализ потоковой цитометрии | |
| Мышь KrasLSL-G12D/+ | Лаборатория Джексона | 008179; RRID:IMSR_JAX:008179 | |
| Мышь репортёра TdTomato | Лаборатория Джексона | 007909; RRID:IMSR_JAX:007909 |
Ссылки
- Leiter, A., Veluswamy, R. R., Wisnivesky, J. P. The global burden of lung cancer: current status and future trends. Nat Rev Clin Oncol. 20 (9), 624-639 (2023).
- Schabath, M. B., Cote, M. L. Cancer progress and priorities: Lung cancer. Cancer Epidemiol Biomarkers Prev. 28 (10), 1563-1579 (2019).
- Sung, H., et al. Global cancer statistics 2020: GLOBOCAN estimates of incidence and mortality worldwide for 36 cancers in 185 countries. CA Cancer J Clin. 71 (3), 209-249 (2021).
- Yu, H. A., et al. Poor response to erlotinib in patients with tumors containing baseline EGFR T790M mutations. Ann Oncol. 25 (2), 423-428 (2014).
- Cappuzzo, F., et al. MET increased gene copy number and primary resistance to gefitinib therapy in non-small-cell lung cancer. Ann Oncol. 20 (2), 298-304 (2009).
- Maman, S., Witz, I. P. A history of exploring cancer in context. Nat Rev Cancer. 18 (6), 359-376 (2018).
- Croci, D. O., et al. Dynamic cross-talk between tumor and immune cells in orchestrating the immunosuppressive network. Cancer Immunol Immunother. 56 (11), 1687-1700 (2007).
- Dunn, G. P., Old, L. J., Schreiber, R. D. The immunobiology of cancer immunosurveillance and immunoediting. Immunity. 21 (2), 137-148 (2004).
- Mittal, D., Gubin, M. M., Schreiber, R. D., Smyth, M. J. New insights into cancer immunoediting: Elimination, equilibrium and escape. Curr Opin Immunol. 27, 16-25 (2014).
- Papalexi, E., Satija, R. Single-cell RNA sequencing to explore immune cell heterogeneity. Nat Rev Immunol. 18 (1), 35-45 (2018).
- Han, G., et al. An atlas of epithelial cell states and plasticity in lung adenocarcinoma. Nature. 627 (8004), 656-663 (2024).
- van den Brink, S. C., et al. Single-cell sequencing reveals dissociation-induced gene expression in tissue subpopulations. Nat Methods. 14 (10), 935-936 (2017).
- Denisenko, E., et al. Systematic assessment of tissue dissociation and storage biases in single-cell and single-nucleus RNA-seq workflows. Genome Biol. 21 (1), 130(2020).
- Zhao, W., et al. A cellular and spatial atlas of TP53-associated tissue remodeling defines a multicellular tumor ecosystem in lung adenocarcinoma. Nat Cancer. 6 (11), 1857-1879 (2025).
- Marjanovic, N. D., et al. Emergence of a high-plasticity cell state during lung cancer evolution. Cancer Cell. 38 (2), 229-246.e13 (2020).
- Xie, L., et al. PLVAP mediates regulation of the tumour microenvironment in early-stage lung adenocarcinoma. Clin Transl Med. 15 (12), e70532(2025).
- Fernandes, L. M., et al. A single-cell atlas of normal and KRASG12D-malformed lymphatic vessels. JCI Insight. 10 (5), e185181(2025).
- Pirrello, A., Killingsworth, M., Spring, K., Rasko, J. E. J., Yeo, D. Cancer-associated macrophage-like cells as a prognostic biomarker in solid tumors. J Liquid Biopsy. 6, 100275(2024).
- Rudnick, J. A., Debnath, J. Autophagy in host stromal fibroblasts supports tumor desmoplasia. Autophagy. 17 (12), 4497-4498 (2021).
- Nissen, N. I., Karsdal, M., Willumsen, N. Collagens and cancer-associated fibroblasts in reactive stroma. J Exp Clin Cancer Res. 38 (1), 115(2019).
- Wu, J., et al. Transcardiac perfusion of the mouse for brain tissue dissection and fixation. Bio Protoc. 11 (5), e3988(2021).
- Morton, J., Snider, T. A. Guidelines for collection and processing of lungs from aged mice for histological studies. Pathobiol Aging Age Relat Dis. 7 (1), 1313676(2017).
- Pariollaud, M., et al. Circadian disruption enhances HSF1 signaling and tumorigenesis in KRAS-driven lung cancer. Sci Adv. 8 (39), eabo1123(2022).
- Wu, F., et al. Single-cell profiling of tumor heterogeneity and microenvironment in advanced NSCLC. Nat Commun. 12 (1), 2540(2021).
- McKeehan, W. L., Ham, R. G. Calcium and magnesium ions regulate multiplication in normal and transformed cells. Nature. 275 (5682), 756-758 (1978).
- Seltzer, J. L., Welgus, H. G., Jeffrey, J. J., Eisen, A. Z. Role of Ca2⁺ in mammalian collagenase activity. Arch Biochem Biophys. 173 (1), 355-361 (1976).
- Shao, S., et al. Pharmacological expansion of type II alveolar epithelial cells promotes airway repair. Proc Natl Acad Sci U S A. 121 (16), e2400077121(2024).
- Chen, Q., Liu, Y. Isolation and culture of mouse alveolar type II cells. STAR Protoc. 2 (1), 100241(2021).
- Arceneaux, D., et al. A contamination-focused approach for optimizing single-cell RNA-seq experiments. iScience. 26 (7), 107242(2023).
Перепечатки и разрешения
Теги
