Магнитная стимуляция всего тела (WB-MS) использовалась в модели кормления, похожей на переедание, с периодическим доступом к приемлемому рациону. WB-MS временно снижал потребление во время моделирования, не изменяя еду. Тем не менее, эффекты не сохранялись, так как после лечения поведение, похожее на переедание, возвращалось без изменений веса, жира или экспрессии accumbens c-fos.
Для просмотра этого контента требуется подписка на JoVE. Войдите или начните свой бесплатный пробный период.
Исследовательская статья
Магнитная стимуляция всего тела снижает переедание в модели мышиного расстройства пищевого поведения
В этой статье
Краткое содержание
Аннотация
Магнитная стимуляция всего тела (WB-MS) использовалась в модели кормления, похожей на переедание, с периодическим доступом к приемлемому рациону. WB-MS временно снижал потребление во время моделирования, не изменяя еду. Тем не менее, эффекты не сохранялись, так как после лечения поведение, похожее на переедание, возвращалось без изменений веса, жира или экспрессии accumbens c-fos.
Введение
Переедание — это нарушенный режим питания, характеризующийся быстрым потреблением больших количества очень вкусной пищи при отсутствии физиологического голода. Это основная особенность расстройства переедания (BED), состояния, тесно связанного с ожирением и метаболическиминарушениями 1,2. Растущие данные подчёркивают роль мезолимбических цепей вознаграждения в потере контроля над поведением прикормлении 3,4. BED всё чаще рассматривается как нарушение кортикостриатальной сигнализации, при котором нарушение коммуникации между системами, связанными с вознаграждением, и системами исполнительного контроля способствует компульсивному употреблению пищи. На нейробиологическом уровне дофаминергическая сигнализация в мезолимбическом пути вместе с глутаматергическими входами способствует изменению значимости стимулов и чрезмерной мотивации к вкуснойпище 5,6. Кроме того, периферические метаболические сигналы, такие как GLP-1, инсулин и грелин, взаимодействуют с этими цепями для модуляции оценки вознаграждения и поведения прикормлении 7. Недавние данные также указывают на то, что поведение, похожее на переедание, связано с изменениями нейронной динамики внутри NAc, включая низкочастотные колебания в диапазонах дельта и тета (2–8 Гц), которые связаны с ожиданием вознаграждения и состояниями тяги перед потерейконтроля 8.
NAc выступает в роли интегративного узла, связывающего лимбические, корковые и моторные системы, преобразуя мотивационные сигналы в целенаправленное поведение. Нарушение этой системы, особенно при повторном воздействии на вкусную пищу, способствует компульсивным и привыкательным моделям употребления 9,10. Экспериментальные модели, использующие прерывистый доступ к вкусной пище, надёжно вызывают переедание, связаны с повышенной активацией NAc, что подтверждает его роль в компульсивном питательномповедении 11–14. Неинвазивная нейромодуляция — это методы, изменяющие активность мозга без хирургического вмешательства, включая подходы, основанные на магнитном поле, такие как транскраниальная магнитнаястимуляция 15. Эти стратегии приобрели клиническую значимость благодаря своей способности модулировать нервную возбудимость и сетевую активность при нейропсихиатрическихрасстройствах 16,17. У людей нейромодуляция снижает симптомы переедания и улучшает поведенческий контроль, а также влияет на метаболическуюрегуляцию 18,19.
Исходя из этих данных, магнитная стимуляция всего тела (WB-MS) может представлять собой неинвазивный терапевтический подход, способный модулировать цепи, участвующие в компульсивном питании. В отличие от фокальных методов, низкочастотные магнитные поля могут влиять на возбудимость нейронов и распределённые мозговые сети, что указывает на потенциальное влияние на подкортикальные структуры, такие какNAc8. Экспериментальные исследования показали, что такие поля модулируют дофаминергическую и глутаматергическуюнейротрансмиссию 6,7,8,19, обеспечивая правдоподобный механизм влияния на цепи, связанные с вознаграждением. Однако его влияние на поведение, похожее на переедание, остаётся неизвестным. Поэтому в настоящем исследовании оценивались эффекты низкочастотного WM-MS на мышиной модели переедания, вызываемого прерывистым доступом к вкусной пище, оценивая потребление пищи, массу тела, жир и экспрессию c-Fos в NAc.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Протокол
Все процедуры проводились в соответствии с Мексиканским официальным стандартом по уходу и использованию лабораторных животных (NOM-062-ZOO-199) и утверждёны Институциональным комитетом по уходу и использованию лабораторных животных (CICUAL) Национального автономного университета Мексики (UNAM) в соответствии с протоколом No 035-CIC-2023. Все материалы, использованные в исследовании, указаны в Таблице материалов.
Определение и приобретение популяции
Всего было использовано 30 мышей C57BL/6 (9 самок и 21 самец) на 30-й день после родов (P30), с начальным весом тела 15–18 г. Мышей содержали индивидуально в домашних клетках в контролируемых условиях: цикл светло-тёмный 12:12 (свет включается в 6:00 утра), температура окружающей среды 23 ± 2 °C и относительная влажность 70 ± 10%.
Привычка
В P30 животных содержали по отдельности в домашних клетках с доступом к воде и стандартному корму ad libitum. Все клетки были обогащены с помощью картонных труб, а в качестве подстилки использовались деревянные стружки. В течение 7-дневного периода привыкания масса тела, потребление пищи и потребление воды фиксировались каждые 24 часа.
Приём, подобный перееданию
Экспериментальная модель, используемая в этом исследовании, основана на парадигме прерывистого переедания, описаннойисследователями 14. До распределения групп все животные были доведены до сопоставимой средней массы тела (17 г) для снижения исходной вариабельности. Животных (N = 30) затем случайным образом распределяли по экспериментальным группам с помощью цифрового инструмента «крутить колесо», в котором отдельные участники перечислялись и последовательно распределялись по одной из трёх групп. Стандартная группа включала женщин (стандартная женская группа, SFG; n = 3) и самцов (стандартная мужская группа, SMG; n = 7), которые имели постоянный доступ к стандартной еде и воде. Группа непрерывного доступа включала самок (непрерывная женская группа, CFG; n = 3) и самцов (непрерывная мужская группа, CMG; n =7) с непрерывным ad libitum доступом к стандартной еде, воде и вкусной пище (M&M's). Группа с прерывистым доступом включала самок (группа прерывистых самок, IFG; n =3) и самцов (группа прерывистых самцов, IMG; n = 7), которые имели ad libitum доступ к стандартной еде и воде и получали доступ к вкусной пище три раза в неделю (понедельник, среда и пятница) в течение 2 часов (16:00–18:00). Эти условия кормления сохранялись в течение 35 дней.
Магнитная стимуляция всего тела (WB-MS)
Эта парадигма стимуляции была выбрана на основе предыдущих исследований с использованием низкочастотных электромагнитных полей (50 Гц, 1 мТ) у мышей C57BL/6 при аналогичных экспериментальныхусловиях 20,21. WB-MS проводилась с помощью импульсного магнитотерапевтического устройства (Dhan 1000, магнитотерапевтический блок), которое генерировало синусоидальное переменное магнитное поле 10 гаусс (1 мТ) при частоте 50 Гц. Во время сеансов стимуляции мыши оставались в своих клетках по отдельности, которые размещались между двумя электромагнитными пластинами по разные стороны каждой клетки. Чтобы избежать помех магнитного поля, металлические компоненты, включая проволочную клетку, решётку и бутылку с водой, временно удалялись во время стимуляции. Такая схема позволяла животным свободно передвигаться на протяжении всей процедуры без ограничений и дополнительного стресса.
Для обеспечения экспериментальной стабильности поддерживались одинаковые условия обращения и окружающей среды как во время стимуляции, так и без стимуляции. Во время контрольных сессий (дни 15–21) магнитные пластины располагались одинаково, но оставались неактивными, что контролировало возможные эффекты обращения, манипуляции клеткой, шума окружающей среды или размещения электромагнитных пластин.
WB-MS состоял из ежедневных 20-минутных экспозиций с 15:40 до 16:00 в течение семи последовательных дней (22–28 дней экспериментального протокола), непосредственно перед периодом оценки переедания (16:00–18:00). С 29 по 35-й день мыши снова проходили сеансы без стимуляции, после чего оценивали их потребление пищи.
Сбор жировой ткани
В конце экспериментального протокола (36-й день, 8:00 утра) была собрана жировая ткань из всех экспериментальных групп. SG состоял из трёх женщин и двух мужчин (n = 5), CG — трёх женщин и трёх мужчин (n = 6), а IG — трёх женщин и четырёх мужчин (n = 7). Все животные были анестезиированы кетамином (60 мг/кг) и ксилазином (5 мг/кг)22, а отсутствие ноцицептивного ответа на стимуляцию сжатия пальцев на ногах подтвердило адекватную глубину анестезии. Затем был проведен вентральный разрез по средней линии с помощью скальпеля No3, проходящий через подреберную, паховую и среднюю области живота, после чего следовал мягкий боковой отступ кожи для открытия брюшной полости.
Депо гонадальной, ретроперитонеальной и подкожной жировой тканей были тщательно выявлены, вскрыты и удалены в стандартизированных условиях для минимизации изменчивости между выборками. Сразу после вскрытия ткани взвешивались с помощью калиброванного аналитического веса (максимальная вместимость 220 г, читаемость 0,1 мг), предварительно проверенного по спецификациям производителя23. Все образцы были обработаны в одинаковых условиях для обеспечения экспериментальной согласованности.
Подготовка мозговой ткани и иммунофлуоресценция
Мышей эвтаназировали через 90 минут после последней сессии употребленияпищи 24. Мозг был собран после внутрисердечной перфузии с 4% параформальдегида, а затем обработан для гистологического анализа. Корональные срезы мозга (30 мкм) были получены с помощью криостата, поддерживаемого при температуре −18 °C и хранящегося в PBS с азидом натрия до обработки. Подгруппа самцов из каждой экспериментальной группы была распределена для подготовки мозговой ткани для иммунофлуоресцентного анализа (SG, n = 4; CG, n = 4; IG, n = 4), а оставшиеся животные использовались для сбора жировой ткани. Это дифференциальное распределение было определено априори на основе методологических требований, поскольку внутрисердечная перфузия с параформальдегидом приводит к фиксации тканей, которая несовместима с последующим извлечением жировой ткани из-за нарушения целостности жировой ткани. Таким образом, распределение образцов осуществлялось исключительно техническими ограничениями и было независимо от назначения экспериментальных групп или биологических результатов.
Для иммунофлуоресценции c-Fos секции инкубировали в течение 72 часа с помощью моноклонального анти-c-Fos антитела мыши (1:1000, sc-166940), разбавленных в PBS, содержащем 0,25% желатина свининой кожи и 0,5% Triton X-100, который служил раствором для блокировки и проницаемости. Первичная инкубация антител проводилась в течение 24 часов при комнатной температуре, затем 48 часов при 4 °C. После инкубации секции тщательно промывались в PBS и инкубировали в течение 2 часов с разбавлением вторичного антитела против мышей (Alexa Fluor 488-конъюгированный, 1:500, AB_2338840), разбавленных в том же растворе. Наконец, секции монтировались на стеклянные стекли с использованием монтажного материала.
Получение и количественная оценка изображений
Конфокальная визуализация проводилась с помощью микроскопа с лазером 488 нм и объективной линзой 20x. Изображения Z-стека получались с помощью программного обеспечения NIS-Elements C и хранились под закодированными идентификаторами для слепого анализа. Количественная оценка c-фосположительных ядер проводилась с помощью ImageJ (ImageJ 2.9.0 / 1.53t). В подсчёты включались только полностью содержащиеся ядра, а для предотвращения двойного подсчёта отдельных клеток применялся квадрантный подход. Для каждого животного было получено по одному изображению из трёх независимых иммуноокрашенных секций с одинаковыми параметрами приобретения во всех экспериментальных группах. Количество c-фосположительных ядер количественно определялось индивидуально для каждого изображения, а значения, полученные из трёх срезов, соответствующих одному и тому же животному, суммировались. Это общее значение впоследствии нормализовали до общей анализируемой площади и выражали в c-Fos плотности (положительные ядра/мм 2). Общая схема используемых экспериментальных процедур иллюстрирована на рисунке 1A–H.
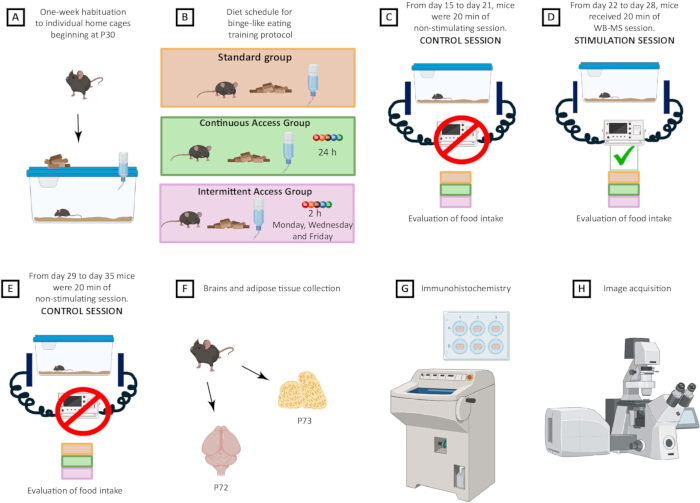
Рисунок 1: Экспериментальный дизайн и хронология протокола переедания, похожего на переедание, а также вмешательства WB-MS. (A) показывает репрезентативное изображение мыши, указывающее на начальные условия содержания. Всего 30 мышей (9 самок и 21 самец) были индивидуально помещены в домашние клетки, начиная с P30, и прошли недельный период привыкания. (B) иллюстрирует диетические условия, реализованные на протяжении всего протокола переедания с экспериментального дня по 35-й день. Контрольная группа имела ad libitum доступ к стандартной еде и воде. Группы непрерывного доступа имели ad libitum доступ к стандартной еде, воде и вкусной еде. Группы с прерывистым доступом имели ad libitful доступ к стандартной еде и воде. В то же время вкусная пища предоставлялась только по понедельникам, средам и пятницам с 16:00 до 18:00 (C), что указывает на то, что с 15 по 21 день животные продолжали соблюдать те же условия питания, а магнитные стимуляционные пластины помещались под клетки без стимуляции (фиктивного воздействия). (D) показывает, что с 22 по 28 день WB-MS вводили за 20 минут до употребления вкусной пищи при сохранении соответствующих диетических условий для каждой группы. (E) указывает, что с 29 по 35 день WB-MS был остановлен, хотя условия питания остались неизменными. (F) показывает, что мозг был собран на 72-й день после родов (P72), за которым следовал сбор жировой ткани на 73-й день (P73). (G) иллюстрирует сечение мозга с помощью криостата и иммуногистохимических процедур. Наконец, (H) показывает конфокальный микроскопический анализ иммунореактивности c-Fos. Изображения были созданы авторами с использованием Biorender, и получена соответствующая лицензия. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
Статистический анализ
Статистический анализ проводился с использованием версии SPSS 25. Поскольку нельзя было предполагать нормальное распределение, на протяжении всего исследования использовались непараметрические тесты. Различия между SG, CG и IG оценивались с помощью теста Крускаля–Уоллиса. Повторные сравнения внутри каждой экспериментальной группы анализировались с помощью теста Фридмана, а при необходимости проводились многократные сравнения. Из-за ограниченного размера выборки для некоторых экспериментальных конечных точек, особенно у самок (n = 3 на группу), данные от самцов и самок мышей C57BL/6 были объединены для анализов, представленных на рисунках 2, 3 и 4 , чтобы повысить статистическую устойчивость и поддержать исследовательскую оценку экспериментальных результатов. Кроме того, были проанализированы объединённые данные о похожем на переедание от самцов и самок мышей C57BL/6 с помощью двустороннего ANOVA, после чего проводились многократные сравнения для оценки эффектов экспериментальной группы и времени на протяжении всего протокола кормления, включая неделю стимуляции WB-MS. Статистическая значимость была определена как p ≤ 0,05.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Результаты
Во время переедания участники групп с прерывистым доступом (IMG для мужчин, IFG для женщин) демонстрировали значительно более высокий калорийный рацион, чем у стандартных (SFG и SMG) и непрерывных групп (CFG и CMG) на 15, 17 и 19 дни (тест Крускаля-Уоллиса; p < 0,05; Рисунок 2A–B). WB-MS проводился с интенсивностью 1 мТ и частотой 50 Гц в течение 20 минут в день в течение семи последовательных дней, как указывала серая полоса. Во вр...
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Обсуждение
Текущие результаты показывают, что WB-MS может временно модулировать поведение, похожее на переедание, в модели мышей, вызванное прерывистым доступом к вкусной пище. Хотя в NAc не было выявлено значительных изменений в активности нейронов, приемлемая пища постепенно снижалась в течение сессий с прерывистым доступом в период стимуляции, что приводило к значительному снижению во время финальной сессии переедания. Эти наблюдения показывают, что магнитная стимуляция может влиять на процессы ...
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Раскрытие информации
Авторы не заявляют о конкурирующих интересах или принадлежностях, которые могли бы повлиять на содержание этой рукописи.
Благодарности
Авторы благодарят Сандру Тересу Флорес Гарсию, M.Sc Армандо Муньос-Комонфорта, доктора Франсиско Эстрада-Рохо и доктора Фабиолу Эрнандес-Васкес за их ценную техническую поддержку. Они также хотели бы поблагодарить доктора Густаво Лопеса-Толедо за разработку Рисунка 1. Соня Ортега-Тиноко — аспирантка Программы поскадры и биомедицинских наук (UNAM), поддерживаемая стипендией CONAHCyT с номером 1102522. Эта работа была профинансирована грантом UNAM-DGAPA-PAPIIT, IN214826 присуждён доктору Хулиете Гардуньо и IA301325 доктору Раулю Сампьери-Кабрере.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Материалы
```html
```
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| ImageJ | imagej.net | Public Domain, BSD-2 | Software. Java-based image processing program. Developed at the National Institutes of Health and the Laboratory for Optical and Computational Instrumentation (LOCI, University of Wisconsin) |
| Coverslips | Corning | 2935 | Cover glass 24 x 50 mm (Thickness 0.13–0.17) |
| Secondary antibody | Jackson ImmunoResearch | AB_2340758 | Donkey polyclonal anti-mouse secondary antibody |
| Laboratory Rodent Diet 5001 | LabDiet | 1320 | Standard food. https://di.facmed.unam.mx/comisiones/Composici%C3%B3n%20del%20alimento%20Laboratory%20Rodent%20Diet%205001.pdf |
| Leica CM1510 S | Leica | CM1510 S | Cryostat for routine histology. |
| M&Ms 43.8g (Brown packaging) | M&M´s | NA | Palatable food. Nutritional content per 100 : 480 kcal, 19 g of fat, 70 g of carbohydrates, 5.1 g of protein, 0.13 g of saltIngredients: sugar, cocoa mass, skimmed milk powder, cocoa butter, lactose, starch, milk fat, palm fat, glucose syrup, shea fat, stabiliser (gum arabic), dextrin, glazing agents (beeswax, carnauba wax), colours (E100, carmine, E132, E133, E150a, E150c, E150d, E153, E160a, E160e, E162, E163, E170), beetroot concentrate, emulsifiers (soya lecithin, E445), salt, flavourings, palm kernel oil, antioxidant (E306). (May contain: peanut, hazelnut, almond). Milk chocolate contains milk solids 14% minimum. Milk chocolate contains vegetable fats in addition to cocoa butter. |
| Dhan 1000 | Magnetoterapia SA de CV | MAG1000 | Pulsed magnetotherapy device |
| PBS | MEYER | Monobasic 2415. Dibasic 2410. NaCl S3014 | Sodium Phsphate Monobasic monohydrate . Sodium Phospate Dibasic heptahydrate. Crystalline Sodium Chloride grade molecular biology. |
| Nikon Microscope | Nikon Instruments, Inc | A1R+ STORM | Confocal Microscope |
| Polycarbonate mice cage | Orchid Scientific | EM01 | Non ferromagnetic policarbonate cage used for WB-MS exposure, fully transparent and autovlave (373 x 190 x 138 mm). |
| Anesket | Pisa | 040.000.0226.00 | Ketamine injectable solution |
| Procin Equus | Pisa | Q-7833-111 | Xylazine injectable solution |
| c-Fos antibody | Santa Cruz Biotechnology | sc-166940 | Mouse monoclonal anti-c-Fos antibody |
| Laboratory balance | Sartorius | Analytical balance | |
| VECTASHIELD Mounting Medium | Vector Laboratories | H-1000-10 | Antifade mounting medium is specially formulated to preserve fluorescence signals in immunofluorescence (IF) microscopy by minimizing photobleaching. |
| Glass slides | VELAB | VE-P30 | Microscope glass slides Frosted on one side 26 x 76 mm (Thickness 0.8–1.1 mm) |
| Sodium azide | K 6048.0100 | 99% Sodium azide |