В исследовании представлен метод экстракорпорального изучения бактериальной инфекции с использованием кишечных органоидов, полученных из тканевых стволовых клеток. Протокол описывает, как культивировать и дифференцировать органоиды в двух измерениях, инфицировать их адхерентно-инвазивной Escherichia coli и оценивать ключевые показатели, включая нарушение эпителиального барьера, визуализацию инфекции и ответ эпителиальной РНК.
Методическая статья
Двумерная органоидная культура на экстракте инвазивной или базальной мембраны для изучения взаимодействий хозяина и бактерий
В этой статье
Краткое содержание
Аннотация
Органоидная технология предоставляет экспериментальную in vitro платформу для изучения физиологии человека в области здоровья и заболеваний. По сравнению с другими системами in vitro , такими как клеточные линии или эксплантации, полученные от рака, органоиды, полученные из тканевых стволовых клеток (TSC), обладают ключевыми преимуществами: их можно расширять бесконечно, сохраняя геномную стабильность, и они подвержены модификации CRISPR. Поскольку эти органоиды образуются из нормальных ТСК, они содержат типы клеток их происхождения. Это делает органоиды особенно ценными для изучения взаимодействий между бактериями и дифференцированными, неопухоловыми человеческими клетками. Кишечные органоиды выращиваются в виде двумерных поляризованных монослоев на вставках для культуры клеток, покрытых экстрактом базальной мембраны (BME) или инвазизом — это безживотная и экономически выгодная альтернатива, и могут быть дифференцированы на основные типы эпителиальных клеток кишечника для заражения патогенными адгерентно-инвазивными E. coli. Ключевые показатели инфекции включают мониторинг экспрессии эпителиальных генов с помощью количественного ПЦР обратной транскрипции (RT-qPCR), визуализацию взаимодействия бактерий и эпителия с помощью конфокальной микроскопии и количественную оценку прорыва эпителиального барьера. Протокол легко адаптируется для изучения других органов и бактериальных видов, предоставляя универсальную платформу для изучения взаимодействия хозяина и микробов в органоидах.
Введение
Кишечный эпителий образует первую линию защиты от патогенных бактерий, присутствующих в просвете кишечника. Модели кишечного эпителия in vitro широко используются для изучения взаимодействия бактерий с эпителиальными клетками, реакции этих клеток на инфекцию и того, как бактерии преодолевают эпителиальныйбарьер 1. Эти модели особенно ценны для изучения патогенов, специфичных для человека, в контролируемой, редукционистской среде. Исторически биология инфекций in vitro опиралась на клеточные линии, полученные от опухолей, например, клетки Caco-2, или на эксплантаты, полученные пациентами, поддерживаемые exvivo 2,3. В последнее время кишечные органоиды, полученные из стволовых клеток человеческих тканей, стали мощным инструментом, сочетающим преимущества обоих подходов: как и клеточные линии, органоиды могут проходить, расширяться, криоконсервироваться, оттаиваться и генетически манипулироваться; и, как и эксплантаты, они получаются из неопухолевых стволовых клеток, способных дифференцироваться во все основные типы эпителиальныхклеток 4,5.
При вложении в матрицу, такую как Matrigel или экстракт базальной мембраны (BME), органоиды кишечника человека обычно самоорганизуются в сферические, поляризованные структуры с апикальной поверхностью, обращённой внутрь, и базальной поверхностью, обращённой наружу. Поскольку большинство кишечных патогенов получают доступ к эпителиальным клеткам с апикальной стороны, было разработано несколько стратегий для воздействия этой поверхности для бактерий ворганоидах 4. Один из подходов — микроинъекция бактерий непосредственно в просветорганоида 6. Другая заключается в обратном изменении полярности органоидов путем их высвобождения из внеклеточного матрикса, образуя «апикально-выходные» органоиды всуспензии 7. Третья стратегия — диссоциировать органоиды на отдельные клетки и пересадить их на вставки для культуры клеток для образования поляризованных двухмерных монослоев (2D органоидных листов), при этом апикальная сторона обращена к верхнемукомпартменту 8. Первые два метода имеют важные ограничения: микроинъекция требует много времени и труда, ограничивает пропускную способность, а апикальные органоиды живут всего несколько дней без поддержки матрицы и не могут бытьдифференцированы 1. В отличие от этого, двумерные органоидные листы поддерживают высокопроизводительные эксперименты (бактерии можно просто добавить в верхний отсек) и могут поддерживаться в течение нескольких недель, дифференцируя их в основные эпителиальные клеткикишечника типа 9.
В отличие от увековеченных клеточных линий, которые легко прикрепляются к пластиковым поверхностям, клетки, полученные из органоидов, требуют покрытия пластинами для эффективного сцепления. Покрытие может проводиться с использованием разбавленнойBME-10 или, альтернативно, с использованием инвазина — бактериального белка, связывающего интегрины наорганоидных клетках 11. Инвазин легко производится в лаборатории, он значительно экономичнее BME или Matrigel и полностью свободен от животных.
Этот протокол описывает формирование и дифференцировку кишечных органоидов как двумерных поляризованных монослоев на вставках для культуры клеток, покрытых инвазивным или экстрактом базальной мембраны (BME). Дифференцированные органоидные листы впоследствии инфицируются Adherent-инвазивной Escherichia coli (AIEC), патогенным штаммом, связанным с воспалительными заболеваниямикишечника 12. Для оценки эпителиальных ответов и бактериальной транслокации представлены несколько последующих индикаторов инфекции. Учитывая, что AIEC проникает в эпителиальные клетки и проникает в кишечный эпителий — механизм, который, как считается, способствует его патогенности — эпителиальное нарушение количественно измеряется путём измерения бактерий, достигающих базолатеральной камеры вставки клеточной культуры, после подтверждения целостности барьера с помощью измерения трансэпителиального/трансэндотелиального электрического сопротивления (TEER) 13. Также предоставляются процедуры для фиксации и визуализации инфицированных монослоев для визуализации внутри- и внеклеточного AIEC, а также для экстракции РНК для оценки эпителиальных транскрипционных ответов на инфекцию. Полный протокол может быть выполнен менее чем за две недели и требует только широко доступного лабораторного оборудования, включая кабинет BSL-2, конфокальный микроскоп и количественный ПЦР-прибор.
В целом, этот протокол обеспечивает экономичный, универсальный и доступный метод изучения бактериальной инфекции дифференцированного кишечного эпителия человека in vitro. Он легко адаптируется к другим органоидным системам и другим микробным видам, что делает его полезным примером для исследований биологии инфекций in vitro .
Протокол
Органоиды кишечника человека были получены из отходов пациентов, проходящих операцию по поводу колоректального рака в Медицинском центре Университета Утрехта (UMCU). Пациенты предоставили информированное согласие на создание своих органоидов в соответствии с протоколом UPORT Cancer Biobank 21-042, утверждённым местным этическим комитетом по биобанкингу. Рисунок 1A иллюстрирует 8 разделов протокола . Реагенты и детали оборудования приведены в таблице материалов.
1. Покрытие вставки для клеточной культуры
- Покрытие инвазивным покрытием
- Все процедуры проводите внутри капюшона для культуры тканей в стерильных условиях.
- Приготовьте раствор инвазина с концентрацией 5 мкг/мл в стерильном фосфат-буферном физиологическом растворе (PBS).
- Добавьте 100 мкл этого раствора в верхний отсек каждой вставки для культуры полиэстеровых клеток объемом 3 мкм, помещённой в пластину с 24 лунками.
- Убедитесь, что мембрана полностью покрыта.
- Инкубировать на ночь при 4 °C.
ПРИМЕЧАНИЕ: Избегайте образования пузырьков во время дозирования, так как пузырьки препятствуют равномерному покрытию.
- Покрытие с экстрактом базальной мембраны (альтернатива)
- Экстракт базальной мембраны на льду.
- Приготовьте 10% раствор в ледяной температуре DMEM.
ПРИМЕЧАНИЕ: Держите раствор холодным, чтобы предотвратить преждевременную полимеризацию. - Добавьте 100 мкл разбавленного раствора в верхний компартмент каждого вставка поровой клетки объемом 3 мкм.
- Обеспечьте полное покрытие поверхности мембраны.
- Инкубировать 1 час при комнатной температуре.
2. Засев органоидных клеток
- Подготовка органоидов
- Удалить культурную среду из органоидных пластин, поддерживаемых в условиях расширения (3-5 дней после расщепления).
- Суспензировать органоиды в 1 мл ледяного DMEM14.
- Перенесите свеску в коническую трубку объёмом 15 мл, содержащую 4 мл ледяного ДМЭМ.
ПРИМЕЧАНИЕ: Используйте примерно 1 полноценную скважину из пластины на 12 лунок для вставок для 4 клеточных культурных вставок.
- Гранулирование органоидов
- Центрифуга в течение 5 минут при 500 × г при 4 °C.
- Полностью удалите супернатант.
- Диссоциирующие органоиды
- Суспензируйте гранулу в 3 мл рекомбинантного заместителя трипсина.
- Пипетки вверх и вниз с помощью пипетки P1000 для механического разрушения органоидов.
- Инкубировать при 37 °C в течение 15–20 минут, пока не появятся отдельные клетки или небольшие кластеры (3–4 клетки).
ПРИМЕЧАНИЕ: Инкубация не превышает 20 минут. Пипетки каждые 5 минут, чтобы облегчить диссоциацию. Вставьте наконечник P10 внутрь наконечника P1000, если требуется дополнительная механическая нагрузка.
- Промывочные ячейки
- Добавьте 5 мл ледяного DMEM.
- Центрифуга в течение 5 минут при 500 × г при 4 °C.
- Удалите супернатант.
- Подготовить подвеску ячейки
- Ресуспензия ячеек в среде расширения (100 мкл на вставку для культуры клетки; см. таблицу 1 для состава расширяющей среды).
ПРИМЕЧАНИЕ: Не включайте антибиотики. Включайте ингибитор Rho kinase для предотвращения аноикиса. - Считайте клетки с помощью счётчика клеток или гемоцитометра.
- Отрегулируйте примерно до 2 × 10⁶ элементов/мл.
- Ресуспензия ячеек в среде расширения (100 мкл на вставку для культуры клетки; см. таблицу 1 для состава расширяющей среды).
- Посев вставок для клеточной культуры
- Удалите раствор покрытия с вставок.
- Добавьте 100 мкл суспензии клеток (2 × 10⁵ ячеек) в верхний компартмент.
- Добавьте 500 мкл расширяющей среды в нижний отсек.
3. Вставка культуры и дифференциация клеточных культур
- Инкубировать при 37 °C с 5%CO2 до достижения слияния (примерно через 3 дня).
ПРИМЕЧАНИЕ: Обновляйте среду в обоих отделениях каждые 4-5 дней, если это необходимо. - После слияния оба отсека промой с предварительно подогреным DMEM.
- Добавьте 500 мкл дифференциационной среды (таблица 2) в нижний отсек.
- Добавьте 100 мкл Advanced DMEM/F12 с дополнением HEPES и Glutamax (AdvDMEM++) (Таблица 3) в верхний отсек.
- Инкубировать 5 дней при 37 °C с 5%CO2.
- Меняйте материалы в обоих отделениях каждые 2 дня.
4. Измерение трансэпителиального/трансэндотелиального электрического сопротивления (TEER)
- Стерилизуйте электроды TEER в 70% этаноле в течение 15 минут.
- Электроды для промывания в стерильном PBS.
- Вставьте короткий электрод в верхний отсек, а длинный — в нижний.
ПРИМЕЧАНИЕ: Не трогайте монослой кончиком электрода. - Записывайте значения сопротивления.
- Измеряйте сопротивление пустых элементов с использованием безклеточной вставки с PBS (100 мкл верхнего участка, 500 мкл ниже).
- Вычислите TEER: TEER = (вставка R_cell культуры − R_blank) × площади поверхности (см²)
ПРИМЕЧАНИЕ: Для вкладышей на 24 лунки площадь поверхности = 0,33 см².
5. Инфекция AIEC
- Приготовьте бактериальную культуру
- Инокуляция флуоресцентного AIEC в 3 мл LBсреде 15.
- Инкубировать ночь при 37 °C с встряхиванием.
ВНИМАНИЕ: Выполняйте все бактериальные процедуры в капюшоне BSL-2.
- Приготовить инокулюм
- Центрифуга 500 мкл посева в течение 5 минут при 1500 × г.
- Повторная подвеска в 1 мл AdvDMEM++.
- Измерять оптическую плотность (OD).
- Разбавить примерно до 1 × 10⁸ CFU/mL в AdvDMEM++.
ПРИМЕЧАНИЕ: OD = 1 соответствует примерно 1 × 10⁹ CFU/mL.
- Заражение монослоев
- Замените носители в обоих отделениях.
- Добавьте среду дифференцировки 500 мкл в нижний отсек.
- Добавьте 100 мкл бактериальной суспензии в верхний отсек для инфицированного состояния.
- Добавьте 100 мкл AdvDMEM++ в верхний отсек для неинфицированного состояния.
- Инкубировать при 37 °C, 5% CO₂.
6. Оценка нарушения эпителия
- Через 2,5 часа после заражения соберите 100 мкл из нижнего компартмента.
- Разбавьте в PBS и поставьте на LB агар.
- Добавьте 100 мкл свежей дифференциационной среды в нижний отсек.
- Инкубировать тарелки ночью при 37 °C.
- Повторный отбор проб через 5 часов после заражения.
- На следующий день Подразделение по формированию колоний (CFU).
- Рассчитайте CFU на вставку клеточной культуры: CFU/вставка в культуру клетки = колонии × 5 × коэффициент разбавления
7. Инфекция изображения
- Через 5 часов после заражения удалите среду и зафиксируйте 4% параформальдегида.
ВНИМАНИЕ: Параформальдегид токсичен и летуч. Ручка внутри вытяжки с перчатками. - Фиксируйте 30 минут.
- Помыйте три раза с PBS.
- Удалите вставку мембраны и поместите клетки, направленные вверх, в колодцевую пластину.
- Покрасьте флуоресцентным фаллоидином 1-2 часа.
- Помыйте три раза с PBS.
- Окрашивайте ядра DAPI в течение 10 минут.
- Помыйте три раза с PBS.
- Закрепите на стеклянный затвор с монтажной средой и нанесите защитную защиту.
- Запечатайте лаком для ногтей.
- Получите конфокальные изображения каналов DAPI, актина и бактерий.
- Получите z-стек, охватывающий базальные и апикальные поверхности с интервалами в 1 мкм.
- Открытые изображения на Фиджи.
- Выберите изображение → Z Project → средней интенсивности.
- Выберите Image → Stacks → Orthogonal Views для визуализации сечений.
8. Анализ эпителиального отклика
- Через 5 часов после заражения удалите среду.
- Добавьте 350 мкл буфера лизиса в верхний отсек.
- Пипетте для лизирования клеток и переноса в трубку без РНазы на льду.
- Проводите экстракцию РНК согласно инструкциям в наборе.
- Измерять концентрацию РНК и нормализовать образцы.
- Выполните обратную транскрипцию.
- Проведите количественную ПЦР по инструкциям производителя (последовательности праймеров для TNFα и эталонного гена β-актина приведены в таблице 4).
Результаты
После достижения слияния клетки кишечника на вставке для культуры клетки демонстрировали мозаичный узор (рисунок 1B) без видимых щелей в монослое. После дифференцировки герметичность эпителия оценивалась путём измерения трансэпителиального электрического сопротивления (TEER) (рисунок 1C). Значения TEER выше 500 Ω·см² соответствовали образованию плотного эпителиального монослоя¹⁶.
Количество AIEC, обнаруженных в базолатеральном компартменте, со временем увеличивалось, что отражает бактериальное нарушение эпителиального барьера (рисунок 2A,B). Отсутствие AIEC в нижнем компартменте указывает на неудачу бактериальной транслокации.
Рабочий процесс визуализации инфекции изложен на рисунке 3A. Конфокальная визуализация продемонстрировала формирование поляризованного монослоя с ядрами локализованными базально и апикальное обогащение актиновой сети (рисунок 3B). Более высокое увеличение выявило как внутриклеточные AIEC, так и внеклеточные бактерии, прикреплённые к апикальной мембране (рисунок 3C).
RT-qPCR-анализ показал повышение экспрессии TNFα в ответ на инфекцию AIEC (рисунок 4A,B), подтвердив активацию эпителиального воспалительного ответа.
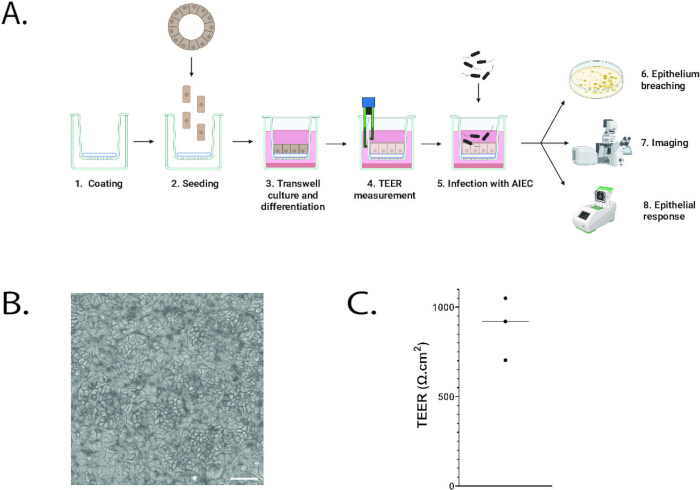
Рисунок 1: Обзор протокола. (A) Схемы протокола. (B) Яркое изображение органоидных клеток кишечника, культивируемых и дифференцированных на вставке с инвазивной оболочкой. Шкала шкалы: 50 мкм . (C) Трансэпителиальное/трансэндотелиальное электрическое сопротивление (TEER) кишечных органоидов, выращенных и дифференцированных на вставках с инвазивной покрытостью клеток. Каждая точка показывает независимый эксперимент. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
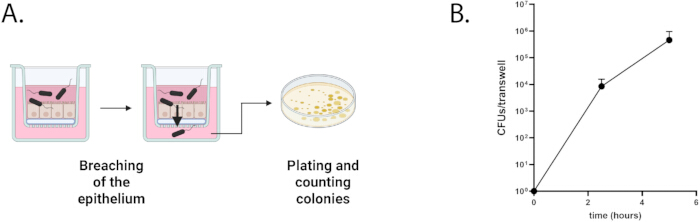
Рисунок 2: Оценка нарушения эпителия (A) Схемы протокола. (B) Количественная оценка единиц формирования колоний (CFU) AIEC со временем в нижнем отсеке вставки клеточной культуры. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
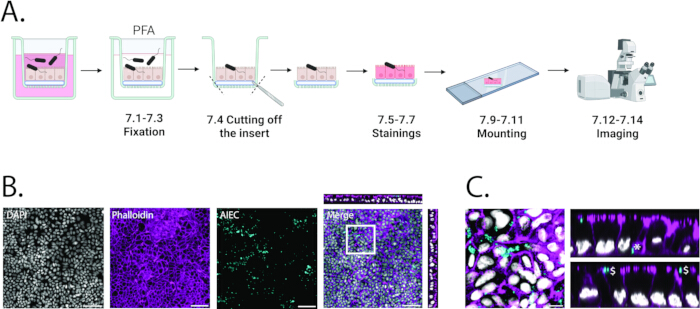
Рисунок 3: Инфекция визуализации. (A) Схемы протокола. (B) Конфокальная визуализация кишечных органоидов, инфицированных флуоресцентным AIEC, в течение 5 часов. Грей: DAPI. Пурпурная: фаллоидин. Сиан: AIEC. Шкала: 50 мкм. Ортогональные виды объединённого изображения отображаются вверху и справа. (C) Большое увеличение белого квадрата в B. Серый: DAPI. Пурпурная: фаллоидин. Сиан: AIEC. Шкала масштаба: 10 мкм. Ортогональные виды отображаются справа. Выделены внутриклеточные AIEC (*) и внеклеточные AIEC, прикреплённые к апикальной мембране эпителиальных клеток ($). Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
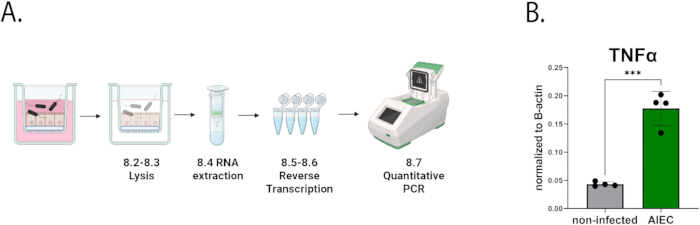
Рисунок 4: Анализ эпителиального отклика. (A) Схемы протокола. (B) Экспрессия TNFα кишечными органоидами после 5 часов заражения AIEC (зелёный) по сравнению с неинфицированным контролем (серый). Экспрессия TNFα нормализовалась до экспрессии B-актина с использованием формулы 2-(Cq(TNFα)-Cq(β-актин)). n=4 реплики. Статистический анализ проводился с использованием t-теста Студента без пары. P < 0,001. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
| Компонент | Концентрация |
| Adv DMEM | Финал 1 раз |
| HEPES | 1% v/v |
| Глутамакс | 1% v/v |
| Wnt суррогат | 0,5 нМ |
| R-spo1 UPE | 2% v/v |
| Ноггин UPE | 1% v/v |
| B27 без витамина A | 2% v/v |
| N-ацетилцистеин | 1,25 мМ |
| Никотинамид | 10 мкм |
| hEGF | 50 нг/мл |
| A83-01 (ингибитор TGF-β) | 0,5 мкм |
| SB202190 (ингибитор p38) | 3 мкм |
| Простагландин E2 | 1 мкм |
| Ингибитор рокиназы | 10 мкм |
Таблица 1: Среда расширения для органоидов кишечника человека. Состав расширяющей среды, используемой для поддержания и размножения органоидов кишечника человека.
| Компонент | Концентрация |
| Adv DMEM | Финал 1 раз |
| HEPES | 1% v/v |
| Глутамакс | 1% v/v |
| R-spo1 UPE | 2% v/v |
| Ноггин UPE | 1% v/v |
| B27 без витамина A | 2% v/v |
| NAC | 1,25 мМ |
| hEGF | 50 нг/мл |
Таблица 2: Среда дифференцировки для органоидов кишечника человека. Состав дифференциационной среды, используемой для стимулирования эпителиального созревания монослоев органоидов кишечника человека.
| Компонент | Концентрация |
| Adv DMEM | Финал 1 раз |
| HEPES | 1% v/v |
| Глутамакс | 1% v/v |
Таблица 3: Adv DMEM++ для инфекции. Состав продвинутой среды DMEM/F12, дополненной HEPES и глутамаксом (Adv DMEM++), используемыми при анализах бактериальных инфекций.
| Название | Последовательность |
| TNFα F | CTCTTCTGCCTGCTGCACTTTG |
| TNFα R | ATGGGGCTACAGGCTTGTCACTC |
| β-актин F | TGACGTTGACATCCGTAAG |
| β-актин R | GAGGAGCAATGATCTTGATCT |
Таблица 4: Праймеры для qPCR TNFα. Показаны праймерные последовательности, используемые для количественного ПЦР-анализа TNFα с использованием β-актина в качестве эталонного гена.
Обсуждение
В этом исследовании был разработан протокол для изучения бактериальной инфекции эпителиальных клеток кишечника человека с использованием органоидов, полученных из ТСК, культивируемых на вставках для клеточной культуры. Вставки с порами 3 мкм обеспечивали эффективное прикрепление клеток и бактериальную транслокацию, тогда как поры размером 0,4 мкм не позволяют пройти AIEC, что соответствует примерно 1 мкм E . coli. Транслокация органоидных клеток через поры размером 3 мкм не наблюдалась, вероятно, из-за их эпителиального и неинвазивного фенотипа.
Несколько экспериментальных переменных были критически важны для воспроизводимости, включая эффективное прикрепление клеток, соответствующую плотность посева и полное слияние до заражения. Эпителиальные клетки, полученные из органоидов, не прилипают к непокрытому пластику, поэтому покрытие становится необходимым. BME обеспечивал стабильно высокую эффективность крепления. Инвазивное покрытие дало сопоставимые результаты и представляет собой экономически выгоднуюальтернативу 11, хотя его необходимо производить самостоятельно. Также было предложено покрытие коллагеном в качествеальтернативы 17.
Условия роста бактерий сильно влияют на эффективность инфекции. Штаммы E. coli хорошо растут при DMEM; однако остаточные антибиотики могут подавлять пролиферацию. В оптимальных условиях инфицированные культуры обычно демонстрируют более высокую мутность по сравнению с контрольными посеями, а рост бактерий можно подтвердить с помощью покрытия апикальных компартментов.
Стратегия визуализации позволила визуализировать как внутриклеточные и внеклеточные бактерии, нацеливаясь на AIEC, экспрессирующий флуорофор под конститутивным промотором (например, с использованием плазмиды pMB1-spect-PthrC-eGFP). Альтернативные методы позволяют селективно обнаруживать внутриклеточные бактерии, включая дифференциальное иммунофлюоресцентное окрашивание18 или репортёры, экспрессируемые на определённых стадияхинвазии 19. Гентамициновые анализы на защиту дают дополнительный количественныйподход 20.
Эта модель намеренно редукционистская и сосредоточена на прямых взаимодействиях между бактериями и кишечным эпителием. Она позволяет исследовать инфекцию в дифференцированном эпителиальном монослое без дополнительных типов клеток in vivo. Дифференциационная среда преимущественно индуцировала дифференцировку энтероцитов и кубковыхклеток 21, но может быть модифицирована для изменения эпителиальногосостава 22,23. Сложность системы может быть увеличена путём совместной культуры иммунных или стромальных клеток в базальномкомпартменте 24.
Система не повторяет трёхмерную архитектуру слизистой кишечника. Платформы на основе органа на чипе преодолевают некоторые структурныеограничения 25 , но требуют большей технической сложности и ресурсов. Кроме того, модель лучше всего подходит для острых инфекций, поскольку избыточный рост бактерий ограничивает продолжительность экспериментов примерно 8 часами. Для изучения хронических инфекций in vitro26 необходимы более сложные системы, такие как микрофлюидные платформы, обеспечивающие непрерывный обмен средами.
Аналогичные системы инфекций на основе вставленных органоидов клеток применялись к множеству тканей и патогенов, включая желудочные органоиды, инфицированные Helicobacterpylori 27,28, кишечные органоиды, инфицированныеShigella 29, органоиды дыхательных путей, инфицированные Pseudomonas aeruginosa10, и уротелиальные органоиды, инфицированные Enterococcus faecalis30. Таким образом, этот протокол предоставляет универсальную основу для изучения взаимодействия эпителиального и бактериального взаимодействия между органными системами, при условии учитывать специфические для патогена потребности в росте.
Органоидная технология предоставляет физиологически значимые человеческие модели для изучения взаимодействий хозяина и патогена в нетрансформированных эпителиальныхклетках 4,5. Учитывая растущее бремя на инфекции, устойчивые к антибиотикам, и их связь с хроническими воспалительными заболеваниями и раком, такие системы in vitro представляют собой ценные инструменты для механистических и трансляционных исследований.
Раскрытие информации
Х.К. является изобретателем нескольких патентов, связанных с органоидной технологией. Полное раскрытие информации H.C. опубликовано в https://www.uu.nl/staff/JCClevers/.
Благодарности
Авторы выражают благодарность Utrecht Portal за органоидные технологии (UPORT), в частности Аннету Брусали, Йорике Салий и Арнольда Бинду, а также пациентов и хирургов Университетского медицинского центра Утрехта за предоставление тканей толстой кишки. Авторы также благодарят Николя Барнича за то, что он поделился штаммом AIEC LF82. Эта работа была поддержана грантом CRUK OPTIMISTIC (C10674/A27140). TG финансировалось по исследовательской и инновационной программе Европейского союза Horizon 2020 в рамках грантового соглашения Марии Склодовской-Кюри 101107988 года. Схемы создавались с помощью BioRender (https://www.biorender.com/).
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| A83-01 (TGF и бета-ингибитор) | Токрис | 2939 | |
| Адгерентно-инвазивная Escherichia coli LF82 | добрый дар Николя Барниха | ||
| Продвинутый DMEM/F12 | Инвитроген | 12634-010 | |
| B27 без витамина A | Инвитроген | 12587010 | |
| Набор для cDNA | Прикладные биосистемы | 4387406 | Руководство доступно здесь: https://documents.thermofisher.com/TFS-Assets/LSG/manuals/MAN 0017977_highcap_cDNA_RT_UG.pdf |
| Счётчик ячеек | DeNovix | H2796 | |
| Счётчик ячеек | Leica | Stellaris | |
| Покрытия размером 24 мм x 50 мм | Менцель-Гл&аумль; зер | BB024050S1 | |
| Экстракт базальной мембраны Cultrex (BME) | R& D Systems, Bio-Techne | 3533-001-02 | |
| DAPI | Сигма-Олдрич | 10236276001 | |
| одноразовый скальпель стерильный N° 10 | Свонн Мортон | 3033838 | |
| DMEM | Gibco | 11965092 | |
| Фиджи | Фиджи | Фиджи — открытый доступ, и его можно скачать здесь: https://imagej.net/software/fiji/downloads | |
| Глутамакс | Gibco | 35050-061 | |
| hEGF | Peprotech | AF-100-15 | |
| HEPES | Gibco | 15630-080 | |
| Invasin | изготовлено на заказ согласно Wijnakker и др. PNAS 2024 | ||
| LB | Термофишер | CM0996 | |
| LB Агар | Термофишер | CM1116 | |
| Камера Малассеза | KOVA | 87144E | |
| Микроскопические стекли | Skycraft | 18901 | |
| Миллиэлементный вольттомметр (измерение TER) | Merck | MERS00002 | |
| Монтажная среда | Vectors Laboratories | Vectashield H-1000-10 | |
| N-ацетилцистеин | Сигма-Олдрич | A9165 | |
| Никотинамид | Сигма-Олдрич | N0636 | |
| Ноггин UPE | IPA Therapeutics | N002 | |
| Параформальдегидный раствор 4% | Сигма-Олдрич | 1.00496 | |
| Фаллоидин 647 | Сигма-Олдрич | 65906-10NMOL | |
| плазмида pMB1-spect-PthrC-eGFP | Addgene | 107408 | |
| Простагландин E2 | Токрис | 2296 | |
| Машина qPCR | Biorad | C1000-Touch | |
| Ингибитор рокиназы | AbMole | M1817 | |
| Набор для экстракции РНК | Цягэн | 74534 | Руководство доступно здесь: https://www.qiagen.com/us/resources/resourcedetail?id=bf60203 F-291D-48AE-8206-86B0696B28C0& lang=en |
| R-spo3 UPE | IPA Therapeutics | R001 | |
| SB202190 (ингибитор p38) | Сигма-Олдрич | S7076 | |
| Спектиномицин | Сигма-Олдрич | S9007 | |
| Подвесная пластина для органоидной культуры | Грейнер | 665102 | |
| SYBR зелёный | Biorad | 170-8887 | Руководство доступно здесь: https://www.bio-rad.com/webroot/web/pdf/lsr/literature/4106212.pdf |
| Термоциклер | Biorad | T100 | |
| Вставка для клеточной культуры | Transwells 24w 3 и микро; m pores, Greiner | 662631 | |
| Triton X-100 | Сигма-Олдрич | T8787 | |
| TrypLE | Gibco, Thermo Fisher Scientific | 12605-010 | |
| Wnt суррогат | U-Protein Express | Таможенный заказ | https://www.life-sciences-europe.com/organisation/protein-express-immunoprecise-group-utrecht-netherlands-west-europe-2001-30404.html |
Ссылки
- McCoy, R., et al. In vitro Models for Investigating Intestinal Host-Pathogen Interactions. Adv Sci. 11 (8), 2306727(2023).
- Sambuy, Y., De Angelis, I., Ranaldi, G., Scarino, M. L., Stammati, A., Zucco, F. The Caco-2 cell line as a model of the intestinal barrier: influence of cell and culture-related factors on Caco-2 cell functional characteristics. Cell Biol Toxicol. 21 (1), 1-26 (2005).
- Gustafsson, J. K., Ermund, A., Johansson, M. E. V., Schütte, A., Hansson, G. C., Sjövall, H. An ex vivo method for studying mucus formation, properties, and thickness in human colonic biopsies and mouse small and large intestinal explants. Am J Physiol Gastrointest Liver Physiol. 302 (4), G430-G438 (2012).
- Puschhof, J., Pleguezuelos-Manzano, C., Clevers, H. Organoids and organs-on-chips: Insights into human gut-microbe interactions. Cell Host Microbe. 29 (6), 867-878 (2021).
- Clevers, H. Modeling Development and Disease with Organoids. Cell. 165 (7), 1586-1597 (2016).
- Kim, M., Fèvre, C., Lavina, M., Disson, O., Lecuit, M. Protocol for live imaging of bacteria-cell interactions in genetically modified mouse small intestinal organoids. STAR Protoc. 5 (1), 102773(2024).
- Co, J. Y., Margalef-Català, M., Monack, D. M., Amieva, M. R. Controlling the polarity of human gastrointestinal organoids to investigate epithelial biology and infectious diseases. Nat Protoc. 16 (11), 5171-5192 (2021).
- Moon, C., VanDussen, K. L., Miyoshi, H., Stappenbeck, T. S. Development of a primary mouse intestinal epithelial cell monolayer culture system to evaluate factors that modulate IgA transcytosis. Mucosal Immunol. 7 (4), 818-828 (2014).
- VanDussen, K. L., et al. Development of an enhanced human gastrointestinal epithelial culture system to facilitate patient-based assays. Gut. 64 (6), 911-920 (2015).
- Pleguezuelos-Manzano, C., et al. Dual RNA sequencing of a co-culture model of Pseudomonas aeruginosa and human 2D upper airway organoids. Sci Rep. 15 (1), 2222(2025).
- Wijnakker, J. J. A. P. M., et al. Integrin-activating Yersinia protein Invasin sustains long-term expansion of primary epithelial cells as 2D organoid sheets. Proc Natl Acad Sci U S A. 122 (1), e2420595121(2025).
- Darfeuille-Michaud, A., et al. Presence of adherent Escherichia coli strains in ileal mucosa of patients with Crohn's disease. Gastroenterology. 115 (6), 1405-1413 (1998).
- Darfeuille-Michaud, A., et al. High prevalence of adherent-invasive Escherichia coli associated with ileal mucosa in Crohn's disease. Gastroenterology. 127 (2), 412-421 (2004).
- Pleguezuelos-Manzano, C., Puschhof, J., van den Brink, S., Geurts, V., Beumer, J., Clevers, H. Establishment and culture of human intestinal organoids derived from adult stem cells. Curr Protoc Immunol. 130 (1), e106(2020).
- Anilionyte, O., Liang, H., Ma, X., Yang, L., Zhou, K. Short, auto-inducible promoters for well-controlled protein expression in Escherichia coli. Appl Microbiol Biotechnol. 102 (16), 7007-7015 (2018).
- Chen, S., Einspanier, R., Schoen, J. Transepithelial electrical resistance (TEER): a functional parameter to monitor the quality of oviduct epithelial cells cultured on filter supports. Histochem Cell Biol. 144 (5), 509-515 (2015).
- In, J. G., Foulke-Abel, J., Clarke, E., Kovbasnjuk, O. Human colonoid monolayers to study interactions between pathogens, commensals, and host intestinal epithelium. J Vis Exp. (146), e59357(2019).
- Quereda, J. J., et al. A dual microscopy-based assay to assess Listeria monocytogenes cellular entry and vacuolar escape. Appl Environ Microbiol. 82 (1), 211-217 (2016).
- Schulte, M., Grotheer, L., Hensel, M. Bright individuals: Applications of fluorescent protein-based reporter systems in single-cell cellular microbiology. Mol Microbiol. 121 (3), 605-617 (2024).
- Sharma, A., Puhar, A. Gentamicin protection assay to determine the number of intracellular bacteria during infection of human TC7 intestinal epithelial cells by Shigella flexneri. Bio-protocol. 9 (13), e3292(2019).
- Sato, T., et al. Long-term expansion of epithelial organoids from human colon, adenoma, adenocarcinoma, and Barrett's epithelium. Gastroenterology. 141 (5), 1762-1772 (2011).
- Fujii, M., et al. Human intestinal organoids maintain self-renewal capacity and cellular diversity in niche-inspired culture conditions. Cell Stem Cell. 23 (6), 787-793 (2018).
- He, G. -W., et al. Optimized human intestinal organoid model reveals interleukin-22-dependency of paneth cell formation. Cell Stem Cell. 29 (9), 1333-1345 (2022).
- Ding, L., et al. Toll-like receptor 9 pathway mediates Schlafen⁺-MDSC polarization during Helicobacter-induced gastric metaplasias. Gastroenterology. 163 (2), 411-425 (2022).
- Alonso-Roman, R., et al. Organ-on-chip models for infectious disease research. Nature Microbiol. 9 (4), 891-904 (2024).
- Jalili-Firoozinezhad, S., et al. A complex human gut microbiome cultured in an anaerobic intestine-on-a-chip. Nature Biomed Eng. 3 (7), 520-531 (2019).
- Vllahu, M., et al. Inflammation promotes stomach epithelial defense by stimulating the secretion of antimicrobial peptides in the mucus. Gut Microbes. 16 (1), 2390680(2024).
- Aguilar, C., et al. et al.Helicobacter pylori shows tropism to gastric differentiated pit cells dependent on urea chemotaxis. Nature Commun. 13 (1), 1-14 (2022).
- Llanos-Chea, A., et al. Bacteriophage therapy testing against Shigella flexneri in a novel human intestinal organoid-derived infection model. J Ped Gastroenterol Nutr. 68 (4), 509-516 (2019).
- Horsley, H., Dharmasena, D., Malone-Lee, J., Rohn, J. L. A urine-dependent human urothelial organoid offers a potential alternative to rodent models of infection. Sci Rep. 8 (1), 1238(2018).
Перепечатки и разрешения
