SNRNP70 демонстрирует потенциал как диагностический маркер остеоартрита (ОА), при этом экспрессия в тканях ОА стабильно ниже, чем в контрольных группах. Он также может оказывать противовоспалительное действие, что указывает на терапевтический подход. Будущие механистические исследования могут способствовать развитию управления OA.
Исследовательская статья
SNRNP70 связан с фокальной адгезией и воспалениями хондроцитов при остеоартрите
* These authors contributed equally
В этой статье
Краткое содержание
Аннотация
Остеоартрит (ОА) — дегенеративное заболевание суставов, характеризующееся прогрессирующим разрушением хряща и воспалением синовиализма, однако ключевые молекулярные факторы его патогенеза остаются неполностью изучены. Здесь было проведено исследование на то, способствует ли SNRNP70 — ключевой компонент комплекса U1 snRNP, необходимый для пре-мРНК-сплайсинга — прогрессии ОА. Анализ десяти публичных транскриптомических наборов данных показал, что SNRNP70 стабильно понижается в хряще ОА по сравнению с нормальной контрольной группой. Мета-анализ также показал хорошую диагностическую точность для ОА с объединённым AUC 0,92. В первичных хондроцитах крыс, стимулируемых интерлейкином-1β (IL-1β), SNRNP70 экспрессия подавлялась при воспалительных условиях. Принудительная экспрессия SNRNP70 не только снизила производство провоспалительных медиаторов (IL-6 и MMP-13), но и восстановила ключевые компоненты внеклеточного матрикса (ECM) (ACAN и COL2A1), а также способствовала миграции хондроцитов и заживлению ран. Корреляция Пирсона, за которой последовало обогащение KEGG, показала, что сигнализация фокальной адгезии является путём, связанным с регуляцией SNRNP70 . Спасательные эксперименты подтвердили идею, что SNRNP70 частично повышает репаративную способность хондроцитов, активируя этот путь. В совокупности эти данные свидетельствуют о том, что SNRNP70 может служить ранее неизвестным регулятором функции воспалительных хондроцитов и гомеостаза хряща. Они также открывают возможность механистической связи между активностью сплайсосом и синтезом матрицы, опосредованной фокальными адгезиями, что требует дальнейшей оценки SNRNP70 как кандидата на диагностический маркер или терапевтическую мишень при ОА.
Введение
Остеоартрит (ОА) представляет собой распространённое заболевание суставов, которое преимущественно поражает людей в возрасте 65 лет и старше, затрагивая примерно 7% населения мира 1,2. Удивительно, но между 1990 и 2019 годами мировая распространённость ОА выросла на ошеломляющие 113,25%, увеличившись с 247,51 миллиона случаев до 527,81миллиона 3. ОА в первую очередь характеризуется коварным прогрессированием дегенеративных изменений в тканях суставов, при этом характерно деградация хряща и воспалениесиновиа 4,5,6. В частности, механическая перегрузка и неумолимый ход времени были установлены как два наиболее выраженных фактора риска, способствующих егопатогенезу 7,8. Кроме того, всё больше исследований подчеркивают ключевую роль дегенерации мениска как неотъемлемого элемента сложной патологииOA 9. Предыдущие исследования убедительно показали, что поражения мениска встречаются от 68% до 90% пациентов сОА 10,11.
На молекулярном уровне растущее количество доказательств указывает на то, что ОА — это не просто следствие биомеханического стресса и старения, а заболевание, вызванное сложными изменениями в регуляции генов и посттранскрипционномконтроле 12,13,14. Среди этих механизмов сплайсеосома привлекла всё большее внимание в различных контекстах заболеваний. Любопытно, что, хотя она была предметом обширных исследований патогенеза воспаления, роль сплайсеосомы в ОА остаётся заметно недостаточноизученной 15,16,17. По сути, сплайсому можно представить как белок-ориентированный металлический рибозим18,19. Среди этих механизмов РНК-сплайсинг стал критически важным фактором фенотипа хондроцитов и гомеостаза ЭКМ. Точное сплайсинг обеспечивает правильную экспрессию структурных и сигнальных белков, необходимых для целостности хряща, тогда как аберрантное сплайсинг может нарушать оборот ЭБМ, стимулировать катаболические пути и ускорять дегенерациюхряща 20,21,22.
Недавние исследования выделили сплайсеосомные белки как ключевые регуляторы гомеостаза тканей суставов, однако их роль в патогенезе остеоартрита остаётся в значительной степенинеизученной 23. В частности, SNRNP70, являющийся ключевым компонентом комплекса малого ядерного рибонуклеопротеина U1, регулирует распознавание 5′-участков сращивания в процессе премРНК и тем самым влияет на включение или исключение специфическихэкзонов 24,25. Дисрегуляция SNRNP70 была связана с различными патологическими состояниями, но его вклад в дегенерацию хряща ранее не был охарактеризован. Одной из потенциальных целей регуляции, опосредованной сплайсеосомами, является фокальная адгезионная киназа (FAK) — центральная сигнальная молекула, интегрирующая механические и биохимические сигналы для контроля адгезии хондроцитов, динамики цитоскелета, выживаемости и механтрансдукции26. Повышенная активность FAK связана с усилением фокальных адгезионных сигналов, что, в свою очередь, способствует синтезу ECM и повышению регуляции ключевых специфических белков хряща, включая aggrecan (ACAN) и коллаген типа II альфа-1 (COL2A1)27,28. Эти белки незаменимы для поддержания структуры и функции хряща, а их понижение — отличительная черта прогрессирования ОА.
Несмотря на достижения в транскрипционных и эпигенетических исследованиях в ОА, роль регуляции FAK, опосредованной сплайсеосомами, в контроле сигнализации фокальной адгезии и метаболизма ЭКМ остаётся плохо определенной. Основываясь на этих наблюдениях, было сделано вывод, что SNRNP70 может влиять на поведение хондроцитов и гомеостаз ЭКМ, модулируя альтернативное сплайсинг FAK и, далее, сигнализацию фокальной адгезии. Чтобы проверить эту идею, первым вопросом был вопрос, изменяется ли SNRNP70 выражение в OA; Был оценен его потенциал как диагностического маркера, а также возможные связи с воспалительными реакциями и фокальной адгезией путями в хондроцитах.
Протокол
Протокол исследования на животных был утверждён Этическим комитетом Гуансийского медицинского университета и Первой аффилированной больницей Гуансийского медицинского университета (код протокола 202109001, NO2022-KY-E-252).
ВНИМАНИЕ: Все процедуры должны соответствовать институциональным и национальным рекомендациям по уходу за животными. Обученный персонал должен носить СИЗ (перчатки, маски, лабораторные халаты) при работе с животными или образцами. Операции требуют достаточной анестезии и послеоперационного мониторинга. Своевременно сообщайте о побочных явлениях (кровотечения, инфекции, изменения в поведении). Правильно утилизируйте туши и загрязнённые материалы. Проводите регулярные инспекции объектов для обеспечения соблюдения требований. Коммерческие детали животных, реагентов и оборудования, использованных в этом исследовании, приведены в Таблице материалов.
Пациенты и наборы данных по экспрессии генов
Для изучения паттернов экспрессии SNRNP70 в ОА систематически извлекались общедоступные наборы данных РНК-секвенирования (RNA-seq) и микрочипов из базы данных Gene Expression Omnibus (GEO) (https://www.ncbi.nlm.nih.gov/geo/)21. Стратегия поиска включала следующие ключевые слова: «SNRNP70 ИЛИ RPU1 ИЛИ Snp1 ИЛИ U1AP ИЛИ U170K ИЛИ U1RNP ИЛИ RNPU1Z ИЛИ SNRP70 ИЛИ U1-70K» в сочетании с «OA». Критерии включения были определены следующим образом: (i) наборы данных, полученные из человеческих образцов; (ii) исследования, специально посвящённые остеоартриту, с исключением ревматоидного артрита и других воспалительных заболеваний суставов; (iii) наличие как минимум трёх независимых биологических репликат как в группах OA, так и в нормальном контроле (NC), что позволяет вычислять стандартизированные средние различия (SMD). Рабочий процесс обработки данных: После определения подходящих наборов данных скачивались сырые данные экспрессии и соответствующие клинические метаданные. Для наборов данных микрочипов данные на уровне зонда нормализовались с помощью надёжного алгоритма многомассивного среднего (RMA), а зонды аннотировали к официальным символам генов с помощью аннотационных файлов платформы. Для наборов данных по РНК-секвенции исходные счета преобразовывались в значения транскриптов на миллион (TPM), затем преобразованы в log2 для обеспечения сопоставимости между наборами данных. При сопоставлении нескольких зондов с одним геном сохранялся зонд с наибольшей дисперсией экспрессии между образцами. Контроль качества и гармонизация: Для минимизации эффекта пакетных эффектов в различных исследованиях была применена функция ComBat из пакета "sva" R. Анализ основных компонентов (PCA) проводился как до, так и после коррекции для оценки эффективности удаления пакетного эффекта. Наборы данных, показавшие низкое качество, неполные аннотации или не различавшие группы OA и NC, были исключены из дальнейшего анализа.
Идентификация дифференциально экспрессируемых SNRNP70 в ОА и нормальных хрящевых тканях
Для оценки дифференциальной экспрессии SNRNP70 между тканями ОА и нормальной хрящевой (НК) был применён многоступенчатый аналитический подход. Во-первых, данные выражений для SNRNP70 извлекались из доступных наборов данных. Статистические сравнения между группами OA и NC были проведены с помощью t-теста Студента, чтобы определить, существенно ли различаются средние уровни экспрессии. Для дальнейшей оценки дискриминационной мощности SNRNP70 были сгенерированы кривые операционной характеристики приёмника (ROC) с помощью GraphPad Prism 8.0 и платформы Sangerbox (http://vip.sangerbox.com/). Площадь под кривой (AUC) была рассчитана для количественной оценки диагностической эффективности уровней экспрессии SNRNP70 .
Далее был проведён мета-анализ с использованием Stata 14.0 для интеграции результатов из нескольких наборов данных. Статистическая гетерогенность оценивалась с помощью теста Q Кокрана и статистикиI-2 . При низкой гетерогенности (p > 0,01 иI 2 < 50%), применялась модель фиксированных эффектов; в противном случае была принята модель случайных эффектов. Стандартизированная средняя разница (SMD) с соответствующим 95% доверительным интервалом (CI) была рассчитана для количественной оценки дифференциальной экспрессии SNRNP70 между тканями OA и NC. Для точности диагностики был проведён диагностический метаанализ с использованием модуля Midas в Stata. В данном анализе оценивается объединённая чувствительность, специфичность, положительное отношение правдоподобия (PLR), отрицательное отношение правдоподобия (NLR) и диагностическое отношение шансов (DOR) для SNRNP70. Кроме того, была построена кривая сводной рабочей характеристики приёмника (sROC) для общей оценки диагностических характеристик. Наконец, были проведены анализы чувствительности путём последовательного исключения отдельных наборов данных для оценки устойчивости и устойчивости объединённых результатов. Потенциальная публикационная смещённость оценивалась с помощью теста асимметрии воронкового графика Дикса. Используя эту интегрированную аналитическую основу, были систематически оценены паттерны экспрессии и диагностический потенциал SNRNP70 в тканях с ОА по сравнению с тканями NC.
Изоляция и культивирование клеток
Первичные хондроциты были выделены из суставного хряща у крыс Спрага–Доули на второй день после родов. Всего для каждой изоляции использовалось шесть новорождённых крыс. Поскольку животных собирали на ранней послеродовой стадии, пол не определялся. Для каждого независимого клеточного препарата хрящевые ткани всех шести крыс собирались и собирались перед высевкой. Каждый независимо изолированный препарат хондроцита — полученный из отдельной группы животных — рассматривался как одна биологическая реплика. Технические реплики, включая повторные колодцы или повторные qRT-ПЦР-реакции из одного и того же клеточного препарата, не считались независимыми биологическими репликатами.
Кратко говоря, новорождённых крыс эвтаназировали в стерильных условиях, а коленные суставы были вскрыты для обнажения суставного хряща. Ткань хряща тщательно отделялась от подхондральной кости с помощью микрохирургических ножниц, измельчённая на фрагменты примерно 1 мм³, а затем последовательно переваривалась с помощью ферментов. Фрагменты ткани сначала инкубировали с добавлением 0,25% трипсина–ЭДТА в течение 30 минут при 37 °C для удаления остаточной соединительной ткани. После промывания с фосфатно-буферным физиологическим раствором оставшиеся фрагменты переваривались с коллагеназой II типа 0,2% в безсывороточном DMEM в течение 4–6 часов при 37 °C с мягким перемешиванием. Полученная клетка суспензия была профильтрована через клеточный фильтр диаметром 70 мкм, центрифугирована при 300 × г в течение 5 минут и вновь суспензирована в полном DMEM с добавлением сыворотки из 10% плода бычьего скота, 100 U/mL пенициллина и 100 мкг/мл стрептомицина. Клетки засеивались в колбы и поддерживались при 37 °C в увлажнённом инкубаторе с 5% CO₂. Среду меняли каждые 2–3 дня. Для последующих экспериментов для минимизации дедифференцировки использовались только проходы 1 или 2 хондроцитов.
Идентичность и чистота хондроцитов были подтверждены до экспериментального использования. Морфологически первичные клетки демонстрировали типичный многоугольный или булыжный вид хондроцитов, похожий на булыжник при фазово-контрастной микроскопии. На молекулярном уровне идентичность хондроцитов подтверждалась экспрессией маркеров, связанных с хрящем, включая COL2A1 и ACAN, с помощью вестерн-блота. Для воспалительной модели in vitro первичные хондроциты стимулировались рекомбинантным интерлейкином-1β крысы (IL-1β) при 10 нг/мл в течение 48 часов. Необработанные клетки, культивируемые в одинаковых условиях, служили нормальной контрольной группой. Для экспериментов по SNRNP70 гиперэкспрессии хондроциты из независимых биологических препаратов трансфекцировались отдельно, и каждая биологическая реплика обрабатывалась независимо в ходе трансфекции, стимуляции IL-1β, экстракции РНК/белков и статистического анализа.
Количественная ПЦР в реальном времени (qRT-PCR)
Общая РНК была выделена из субконфлюентных культур хондроцитов (~80% совпадения) с помощью комплекта RNAfast200. Чистота РНК оценивалась на NanoDrop 2000, принимая только образцы с соотношением A260/280 1,8–2,0, а целостность подтверждена 1% агарозным гелевым электрофорезом. КДНК первой цепи была обратно транскрибирана из 1 мкг общей РНК с помощью комплекта qPCR RT в реакции объемом 20 мкл, содержащей случайные праймеры и dNTP. Тепловой профиль для обратной транскрипции составлял 42 °C в течение 30 минут, затем 95 °C в течение 5 минут. qPCR проводилась с премиксом на основе SYBR Green на системе реального времени ПЦР. Каждая реакция на 20 мкл состояла из 10 мкл SYBR Green Master Mix, по 0,5 мкл прямых и обратно праймеров (10 мкМ), 2 мкл кДНК и 7 мкл воды без нуклеаз. Условия циклирования были следующими: 95 °C в течение 30 с, затем 40 циклов по 95 °C в течение 5 с и 60 °C в течение 30 с. Анализ кривой расплава был проведён после амплификации для проверки специфичности одного продукта. GAPDH служила внутренней опорой, а относительная экспрессия вычислялась методом 2−ΔΔCt . Реакции проводились в тройном виде с тремя независимыми биологическими репликатами. Последовательности праймеров приведены в таблице 1.
Вестерн блот
Экспрессия белков ACAN, COL2A1 и MMP13 была оценена в хондроцитах после обработки IL-1β и SNRNP70 гиперэкспрессии. Клетки дважды промывались ледяным фосфат-буферным физиологическим раствором (PBS) и лизировали в буфере RIPA, содержащем ингибиторы протеазы и фосфатазы. Лизаты инкубировали на льду в течение 30 минут с периодическим вихрем, затем центрифугировали при 12 000 × г в течение 15 минут при 4 °C. Концентрации белка в очищенных супернатантах определялись с помощью набора BCA. Равные количества белка (30 мкг на полосу) разделялись на 10% SDS-PAGE и передавались на мембраны PVDF путем влажного переноса. Мембраны блокировались 5% обезжиренным молоком в TBST при комнатной температуре в течение 1 часа, затем исследовались ночью при 4 °C первичными антителами против ACAN (1:1000), COL2A1 (1:1000) или MMP13 (1:1000). После трёх промывок TBST (по 10 минут каждая) мембраны инкубировали с сопряжёнными с HRP вторичными антителами (1:5000) в течение 1 часа при комнатной температуре. Сигнал разрабатывался с использованием реагента ECL и записывался на систему ChemiDoc XRS+. Была проведена полосная денситометрия с помощью ImageJ, и все сигналы целевых белков были нормализованы в GAPDH в качестве контроля нагрузки. Данные представлены как относительные уровни белка по сравнению с контрольной группой.
Трансфекция
Хондроциты были трансфектированы плазмидой SNRNP70 сверхэкспрессии (oe-SNRNP70), когда культуры достигли примерно 80% слияния. Для трансфекции клетки посеяли в пластины с 6 колодцями по 2 × 10⁵ клетки на колодцу и оставляли прикрепляться на ночь в стандартной почве для роста (DMEM с добавлением 10% плодовой сыворотки крупного рогатого скота и 1% пенициллина/стрептомицина) при 37 °C при 5% CO₂. Трансфекции выполнялись с использованием LipoFiter 3.0 в соответствии с инструкциями производителя. Кратко, 2–3 мкг плазмидной ДНК на одну скважину разбавлялись в 100 мкл безсывороточной среды и смешивались с соответствующим количеством липидного реагента. ДНК-липидные комплексы инкубировали 15–20 минут при комнатной температуре для формирования комплекса, затем аккуратно добавляли в каждую яму, содержащую хондроциты, в свежей, безсывороточной среде. Через 6 часов среду заменяли на полноценную форму для снижения цитотоксичности.
Эффективность трансфекции и экспрессия SNRNP70 оценивались через 48–72 часа после трансфекции. SNRNP70 уровней мРНК измерялись с помощью количественного ПЦР в реальном времени (qRT-PCR), при этом GAPDH был внутренним контролем. Экспрессия белка оценивалась с помощью Simple Western Automated Western Blot System согласно протоколу производителя. Кратко: клеточные лизаты были подготовлены, измерены концентрации белков, а образцы загружались на капиллярные картриджи для автоматического разделения и иммунодиагностики антителами к SNRNP70. Эффективность трансфекции была рассчитана путём сравнения SNRNP70 экспрессии в клетках с oe-SNRNP70-трансфекцией с экспрессией в контрольных клетках, трансфектируемых пустым вектором.
Иммунофлуоресценция
Иммунофлуоресценция использовалась для изучения уровней белков IL-6 и MMP-13 в хондроцитах oe-SNRNP70 после стимуляции IL-1β. Кратковременно клетки посеяли на стерильные стеклянные накладки в пластинах с 24 лунками и культивировали в стандартных условиях до достижения 70–80% слияния. Затем их фиксировали 4% параформальдегидом в течение 15 минут при комнатной температуре и три раза мыли с помощью PBS. Для проницаемости применялся 0,1% Triton X-100 в PBS на 10 минут при комнатной температуре. Неспецифические сайты связывания блокировались путём инкубации клеток в 5% бычьей сыворотке альбумина (BSA) в PBS в течение 1 часа при комнатной температуре.
После блокировки клетки инкубировали ночью при 4 °C с первичными антителами против IL-6 и MMP-13 (разбавленные 1:200 при 1% BSA/PBS). После трёх промываний с помощью PBS для удаления несвязанных первичных антител клетки инкубировали с видоспецифическими фторо-конъюгированными вторичными антителами (разбавленные 1:500) в течение 1 часа при комнатной температуре в темноте. Ядра были контрокрашены 4′,6-диамидино-2-фенилиндолом (DAPI) в течение 5 минут. Накладки монтировались на стеклянные стекла с монтажной средой против фейда, а флуоресцентные изображения делались с помощью флуоресцентного микроскопа при увеличении 20×. Для количественного анализа в ImageJ анализировали 10 случайно выбранных клеток на образец для измерения флуоресцентной интенсивности целевых белков. Средняя интенсивность флуоресценции рассчитывалась для каждой группы и использовалась для статистического сравнения.
Анализ закрытия раны от царапины клетки
Был проведён анализ на закрытие раны с помощью царапины для оценки способности хондроцитов закрывать искусственную рану при различных условиях лечения. Первичные хондроциты были засеяны в пластины с 6 колодцями с плотностью 1 × 10,5 клеток на колодец и культивировались до достижения примерно 90% слияния. В монослое клетки была создана линейная царапина с помощью стерильного наконечника пипетки объёмом 200 мкл. Отдельные клетки удалялись дважды промыванием PBS, после чего добавляли свежую полную культурную среду с указанными методами. Клетки были распределены к следующим группам: нормальная контрольная, обработанная IL-1β и гиперэкспрессия IL-1β плюс SNRNP70 . Изображения той же области раны были сделаны на 6 и 12 часах после царапания с помощью инвертированного микроскопа (дополнительный рисунок 1). Закрытие раны рассчитывалось как процентное уменьшение площади раны относительно начальной площади раны на 0 часа по следующей формуле:
Закрытие раны (%) = [(область раны на 0 часа — область раны в указанной точке времени) / область раны на 0 часа] × 100. (1)
Статистический анализ
Все количественные данные представлены как среднее ± стандартного отклонения (SD) от трёх независимых биологических реплик (n = 3), если не указано иное. Статистический анализ проводился с использованием GraphPad Prism 8.0. Для сравнения между двумя группами использовался непарный t-тест Студента. Статистическая значимость указывалась следующим образом: *p < 0,05 и **p < 0,01.
Результаты
SNRNP70 экспрессия в тканях суставной полости
Для всестороннего изучения роли SNRNP70 в ОА был проведен систематический скрининг 10 общедоступных наборов данных РНК-секвенации и микрочитрий, соответствующих строгим критериям включения и исключения (Таблица 2). SNRNP70 уровня экспрессии были тщательно извлечены и проанализированы в этих наборах данных. Поразительно, что в 6 из 10 когорт экспрессия SNRNP70 была значительно понижена в тканях с ОА по сравнению с нормальной контрольной группой (p < 0,05), что свидетельствует о стабильной модели транскрипционного подавления (см. рисунок 1).
Стоит отметить, что три набора данных (GSE114007, GSE169077 и GSE19060) не выявили статистически значимых различий между OA и контрольными выборками. Вместо того чтобы игнорировать эти различия, были использованы стратегии пакетной коррекции и интеграции наборов данных для повышения надёжности и надёжности анализа. В частности, наборы данных, полученные с идентичных платформ секвенирования, были объединены для увеличения статистической мощности. Например, GSE114007 был объединён с GSE89408 для генерации GSE114007-89408, а GSE169077, GSE12021 и GSE55457 объединены в GSE169077-12021-55457 (рисунок 1). Такой интегративный подход минимизировал изменчивость между исследованиями и усилил воспроизводимость результатов. В итоге, анализ человеческих наборов данных показывает постоянное снижение SNRNP70 в тканях суставов ОА, что указывает на его потенциал как диагностического биомаркера. Однако неясно, вызывает ли это снижение напрямую дисрегуляцию сплайсинга или дегенерацию хряща у человека, и остаётся неясно, что ожидает проверки, желательно в моделях человеческих тканей.
Клиническая диагностическая способность SNRNP70
Для строгой оценки диагностической ценности SNRNP70 в ОА был проведён комплексный мета-анализ с интеграцией данных из 165 образцов ОА и 125 нормальных контрольных групп. Это, насколько известно, представляет собой систематическую оценку SNRNP70 как потенциального диагностического биомаркера при ОА. Анализ гетерогенности выявил значительную гетерогенность между наборами данных (I2 = 72,9%; p = 0,001), что требует модели случайных эффектов. Объединённый анализ показал устойчивое и стабильное снижение экспрессии SNRNP70 в тканях ОА по сравнению с нормальными контролями, со стандартизированной средней разницей (SMD) -1,07 (95% ДИ: -1,34 до -0,80) (рисунок 2A–B). Помимо профилирования экспрессии, диагностическая эффективность SNRNP70 была дополнительно оценена. Объединённые результаты диагностических тестов показали совокупную чувствительность 0,82 (95% ДИ: 0,57–0,94) и специфичность 0,88 (95% ДИ: 0,73–0,95), что подчёркивает его сильную дискриминационную способность (рисунок 3A). Постоянно кривая сводной операционной характеристики приемника (SROC) давала площадь под кривой (AUC) в размере 0,92 (95% ДИ: 0,90–0,94), что дополнительно подчёркивает высокую точность SNRNP70 при различии пациентов с ОА от здоровых лиц (см. рисунок 3B).
Для обеспечения надёжности этих результатов был проведён анализ чувствительности, подтвердивший, что последовательное исключение отдельных наборов данных существенно не изменяет общий размер эффекта (рисунок 4A). Важно, что как тест асимметрии воронкового графика Дика (p = 0,41), так и тест Эггера не показали значительного смещения публикации, что подтверждает достоверность результатов (рисунок 4B). В совокупности эти данные показывают, что экспрессия SNRNP70 при ОА снижается и указывают на то, что она может служить диагностическим биомаркером. Тем не менее, гетерогенность между наборами данных и отсутствие независимой когорты валидации заслуживают осторожности. Эти результаты считаются предварительными и ожидаются дальнейших исследований для уточнения клинической полезности SNRNP70 в диагностике и лечении ОА.
SNRNP70 модуляция экспрессии воспалительных генов при ОА
Для определения регуляторной роли SNRNP70 в воспалительном сигнале во время прогрессирования ОА была первоначально разработана модель ОА in vitro путём воздействия хондроцитов IL-1β — хорошо охарактеризованного провоспалительного цитокина. анализ qRT-PCR, проведённый после 48 часов стимуляции IL-1β, показал значительное снижение уровня SNRNP70 мРНК по сравнению с группой NC (см. рисунок 5). Это подавление экспрессии SNRNP70 при воспалительных состояниях согласуется с транскриптомическими данными из общедоступных наборов данных по ОА, что обеспечивает убедительные доказательства того, что SNRNP70 последовательно подавляется при воспалении, связанном с ОА. Для дальнейшего изучения возможностей восстановления экспрессии SNRNP70 модулировать воспалительный фенотип хондроцитов, клетки были трансфектированы с помощью плазмиды SNRNP70 гиперэкспрессии (oe-SN). Удивительно, что принудительная экспрессия SNRNP70 значительно облегчила воспаление, вызванное IL-1β, что отражено как в транскрипционных, так и в трансляционных изменениях. В частности, qRT-PCR показала устойчивое снижение уровней мРНК IL-6 и MMP-13 в группе oe-SN по сравнению с контролями, обработанными IL-1β (см. рисунок 5).
В дополнение к этим молекулярным открытиям, иммунофлуоресцентное окрашивание предоставило прямые клеточные доказательства противовоспалительного потенциала SNRNP70. В клетках, обработанных IL-1β, IL-6 проявил выраженное накопление цитоплазматыки, что соответствует активированному воспалительному состоянию. Поразительно, что чрезмерная экспрессия SNRNP70 приводила к заметному снижению интенсивности цитоплазматического окрашивания IL-6 (рисунок 6A), что подчёркивало его способность обратить воспалительные реакции на клеточном уровне. Похожая картина наблюдалась для MMP-13, где лечение IL-1β усилило его экспрессию, но SNRNP70 гиперэкспрессия заметно подавляла локализацию MMP-13 и интенсивность сигнала (рисунок 6B).
В отличие от предыдущих исследований, которые в основном сосредотачивались на структурном повреждении хряща, данные in vitro с хондроцитов крыс показывают, что SNRNP70 действует как регулятор экспрессии воспалительных генов. В частности, принудительная экспрессия SNRNP70 ослабленных IL-1β-активных провоспалительных медиаторов, включая IL-6 и MMP-13, в этой модели крыс. Важно, что поскольку эти эксперименты проводились исключительно в модели воспалительных веществ у крыс, они не повторяют напрямую результаты человеческих данных. Тем не менее, эти результаты дают концептуальную основу, указывающую на то, что SNRNP70 может функционировать не только как сплайсинг, но и как потенциальный модулятор воспаления — возможность, заслуживает дальнейших исследований в человеческих тканях.
Идентификация путей, связанных с SNRNP70, в ОА
Для изучения биологических путей, связанных с экспрессией SNRNP70 при остеоартрите, анализ корреляции Пирсона был проведён отдельно в публичных транскриптомических наборах данных GSE98918, GSE117999, GSE129147, GSE51588, GSE169077_12021_55457, GSE114007-89408 и GSE82107-19060. Гены с абсолютным коэффициентом корреляции (|r|) > 0,8 и p < 0,05 считались существенно коррелированными с экспрессией SNRNP70 в каждом наборе данных. Было получено объединение коррелированных генов во всех наборах данных, в результате чего было получено 929 родственных SNRNP70 генов.
Анализ обогащения путей KEGG впоследствии проводился с использованием пакета clusterProfiler с корректировкой для множественных испытаний методом Бенджамини–Хохберга. Этот анализ выявил значительное обогащение выявленных генов по нескольким путям, включая фокальный адгезионный путь (рисунок 7). Этот сигнальный каскад известен тем, что регулирует адгезию хондроцитов, механотрансдукцию и ремоделирование ЭКМ, которые являются ключевыми процессами прогрессирования ОА. В совокупности эти результаты свидетельствуют о связи между экспрессией SNRNP70 и фокальной адгезиейной экспрессией генов в наборах данных OA.
SNRNP70 опосредует воспалительные восстановления хондроцитов через фокальный адгезионный путь
Для оценки роли SNRNP70 в способности воспалительных хондроцитов к заживлению ран был проведён анализ закрывания раны с использованием первичных хондроцитов. Клетки были разделены на три группы: нормальный контроль, обработанный IL-1β и гиперэкспрессия с IL-1β плюс SNRNP70. Стимуляция IL-1β уменьшила степень закрытия зазоров по сравнению с нормальной контрольной группой, что свидетельствовало о снижении способности к заживлению ран при воспалительных условиях. В отличие от этого, SNRNP70 гиперэкспрессия способствовала закрытию зазоров царапины в хондроцитах, обработанных IL-1β, по сравнению с одним только лечением IL-1β (рисунок 8A). В совокупности эти результаты показывают, что SNRNP70 гиперэкспрессия усиливает реакцию на закрытие раны у хондроцитов, обработанных IL-1β.
На молекулярном уровне анализ Western blot показал, что лечение IL-1β подавляет экспрессию белков хрящового матрикса ACAN и COL2A1, одновременно способствуя повышению уровня деградирующего фермента MMP13. Важно, что SNRNP70 гиперэкспрессия не только восстановила уровни ACAN и COL2A1 , но и значительно понизила уровень MMP13, тем самым сохранив целостность ECM (рисунок 8B). Механически, in vitro, положительные эффекты SNRNP70 тесно связаны с активацией сигнального пути фокальной адгезии.
В совокупности анализ данных на людях показывает, что SNRNP70 понижен при ОА, а его экспрессия коррелирует с генами, участвующими в фокальной адгезии. У крысиных хондроцитов, подвергшихся стимуляции IL-1β, принудительная экспрессия SNRNP70 способствует восстановлению воспалительных клеток и синтезу ECM, а также связана с фокальной адгезиейной сигнализацией. Хотя эти наблюдения in vitro из модели крыс выглядят наводяще, они напрямую не подтверждают результаты, полученные из человеческих наборов данных. Тем не менее, эти сходящиеся линии доказательств поддерживают модель, в которой SNRNP70 вносит вклад в патогенез ОА человека посредством фокальной адгезийной сигнализации — гипотезы, которая сейчас ожидает окончательного подтверждения в человеческих тканях или моделях in vivo с человеческим значением.
ДОСТУПНОСТЬ ДАННЫХ:
Наборы данных, использованные и проанализированные в этом исследовании, доступны из набора данных GEO (https://www.ncbi.nlm.nih.gov/geo/). Все данные, полученные или проанализированные в ходе этого исследования, были полностью представлены и обсуждаются в рукописи. Исходные данные этого исследования загружаются в виде дополнительного файла.
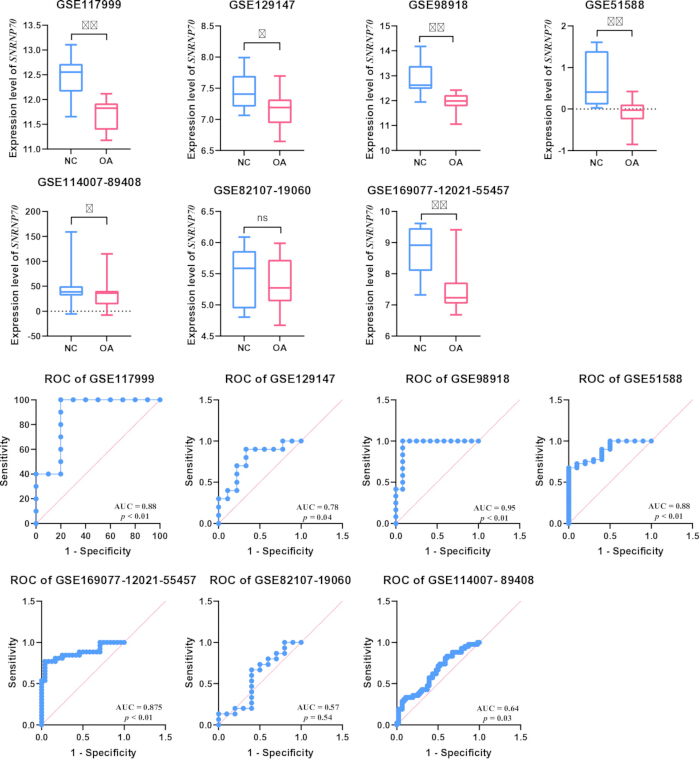
Рисунок 1: t-тест и кривая ROC студентов для семи исследований. Результаты показали, что экспрессия SNRNP70 в тканях OA была ниже, чем в тканях NC в GSE117999, GSE129147, GSE98918, GSE51558, GSE114007-89408 и GSE169077-12021-55457 (p < 0,05), а ROC AUC показал высокую осуществимость. p < 0,05 (*), p < 0,01(**). Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
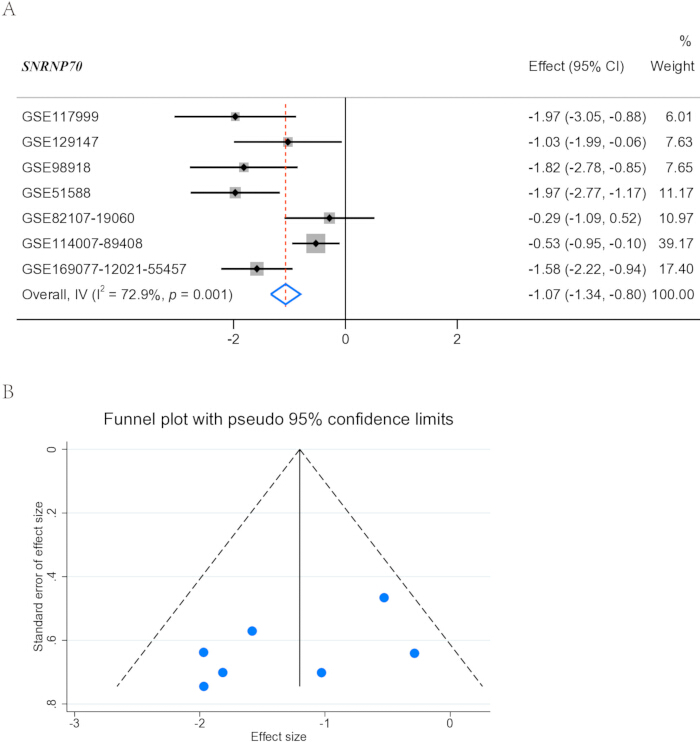
Рисунок 2: Мета-анализ для семи наборов данных. (A) Результаты показали, что I2 = 72,9%, p = 0,001, а общий SMD составил -1,07. (B) Диаграмма воронки была оценена на публикационную смещённость в мета-анализе. Оказалось, что он в основном симметричен. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
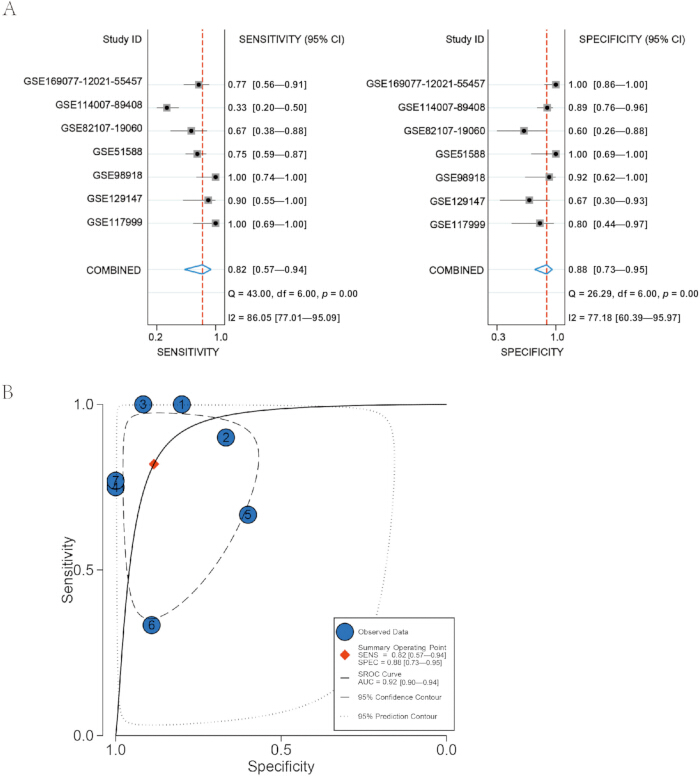
Рисунок 3: Диагностическая эффективность SNRNP70. (A) Q-тест показал, что и чувствительность, и специфичность имеют p-значения < 0,05, а I2 — 86,05% и 77,18% соответственно, что указывает на значительную гетерогенность. В исследовании была отмечена чувствительность 0,82 и специфичность 0,88, что подчёркивает его заметные показатели. (B) AUC sROC составил 0,92, что свидетельствует о высоком уровне доверия к исследованиям. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
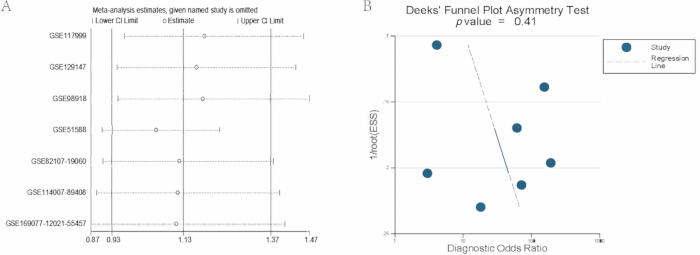
Рисунок 4: Анализ влияния и график воронки Дика. (A) Анализ влияния показал, что исключение какого-либо отдельного исследования существенно не повлияло на общие результаты. (B) В семи исследованиях все результаты не показали значимого смещения (p = 0,41). Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
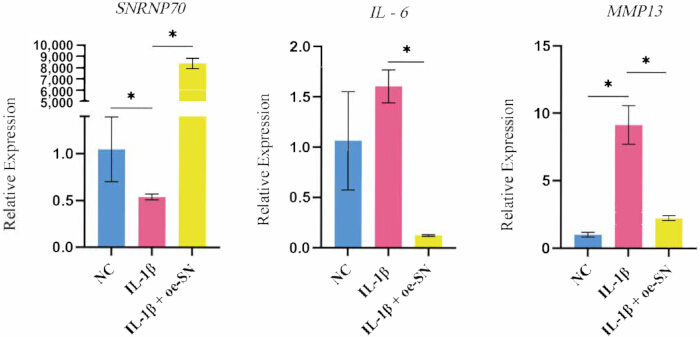
Рисунок 5: Результаты qRT-ПЦР показывают значительное снижение экспрессии SNRNP70 в хондроцитах после лечения IL-1β. В группе oe-SN наблюдалось заметное снижение уровня экспрессии воспалительных маркеров IL-6 и MMP13 по сравнению с группой IL-1, что свидетельствует о том, что гиперэкспрессия SNRNP70 может обратить воспалительные маркеры в хондроцитах, обработанных IL-1β. Данные представлены как среднее ± SD из n = 3 независимых биологических репликатов. p-значения < 0,05 (*), p-значения < 0,01(**). Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
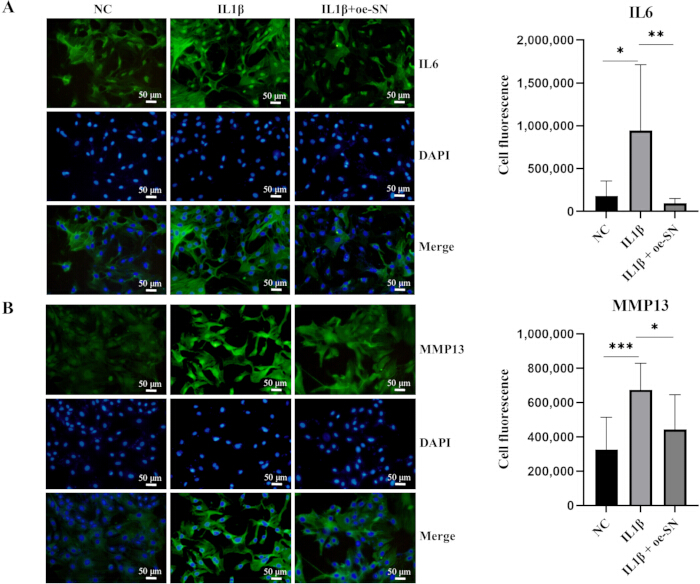
Рисунок 6: ИФ-анализ хондроцитов, обработанных IL-1β, после обработки IL-1β, показывающий интенсивность флуоресценции. (A) Интенсивность флуоресценции IL-6 и (B) MMP13 значительно увеличилась. Однако чрезмерная экспрессия SNRNP70 приводила к заметному снижению флуоресцентной интенсивности воспалительных маркеров IL-6 и MMP13. Эти результаты свидетельствуют о том, что SNRNP70 гиперэкспрессия может смягчать воспаление в хондроцитах, обработанных IL-1β. Все микроскопические снимки были сделаны с увеличением в 10 раз. Данные представлены как среднее ± SD из n = 3 независимых биологических репликатов. p-значения < 0,05 (*), p-значения < 0,01(**). Шкала = 50 мкм. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
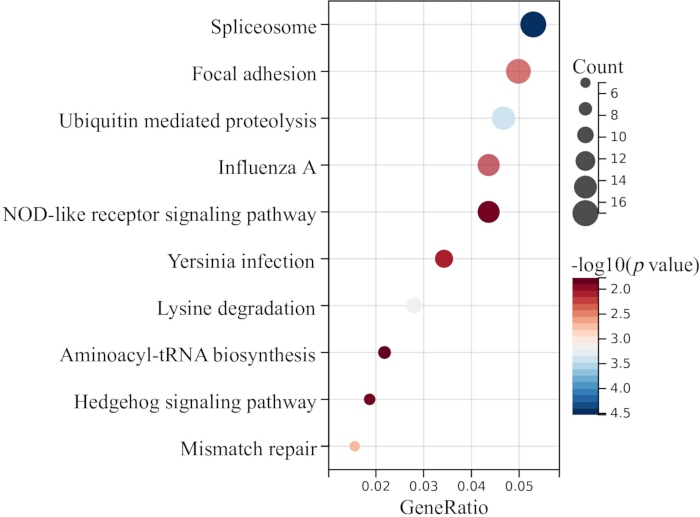
Рисунок 7: Корреляционный анализ обогащения KEGG генов, связанных с SNRNP70, в наборах данных по остеоартриту. Топ-10 обогащённых путей, идентифицированных кластеромProfiler (коррекция Бенджамини–Хохберга). Размер пузыря = количество генов; color = значимость (-log10(p-значение )). Фокальный адгезионный путь (выделенный) опосредует адгезию хондроцитов, механотрансдукцию и ремоделирование ЭКМ при ОА. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
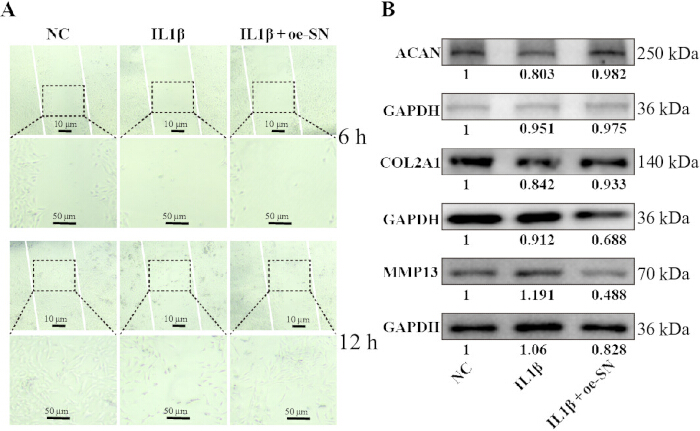
Рисунок 8: SNRNP70 гиперэкспрессия восстанавливает восстановление ЭКМ в хондроцитах, обработанных IL-1β. (A) Изображения закрывающейся царапиной раны в контрольной зоне, обработанных IL-1β и хондроцитов с гиперэкспрессией IL-1β плюс SNRNP70. (B) Репрезентативные западные пятна ключевого хрящового матрикса и катаболических белков. Мембраны были исследованы на наличие ACAN, COL2A1 и MMP13. GAPDH показан как система управления нагрузкой. Увеличения следующие: группы NC, IL-1β и IL-1β+oe-SN: при 4-кратном увеличении шкала = 10 мкм. При увеличении 10x: шкала = 50 мкм. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
Дополнительный рисунок 1: Количественный анализ закрытия раны и денситометрия западного блота . (A) Количественная оценка закрытия царапинной раны в первичных хондроцитах групп NC, IL-1β и IL-1β + oe-SNRNP70 . (B) Денситометрическое количественное определение западных блот-полос ACAN, COL2A1 и MMP13. Интенсивность полос была количественно измерена с помощью ImageJ и нормализована до GAPDH. Данные представлены как среднее ± SD из n = 3 независимых биологических репликатов. *p < 0,05, **p < 0,01. Пожалуйста, нажмите здесь, чтобы скачать этот файл.
| Целевой ген | Последовательность прямых праймеров | Последовательность прямых праймеров |
| GAPDH | 5'-TCTCTGCTCCTCCCTCTGTTCT-3' | 5'-ATCCGTTCACACCGACCTTC-3' |
| SNRNP70 | 5'-GAGACATGCACTCCACCACG-3' | 5'-TGCGGTGCTGTGATCTTACC-3' |
| IL6 | 5'-ACAAGTCCGGAGAGGAGACT-3' | 5'-ACAGTGCATCATCGCTGTTC-3' |
| MMP13 | 5'-GGACAAAGACTATCCCCCCCC-3' | 5'-GGCATGACTCTCACAATGCG-3' |
Таблица 1: Праймеры для целевых генов. Показаны прямые и обратные праймеры для GAPDH, SNRNP70, IL6 и MMP13 , используемые в qRT-PCR, все в ориентации 5′ > 3′. GAPDH был внутренним контролем.
| Study ID | Платформа | NC (n) | OA (n) | Ткани |
| GSE114007 | GPL11154, GPL18573 | 18 | 20 | Хрящи |
| GSE117999 | GPL20844 | 10 | 10 | Хрящи |
| GSE129147 | GPL15207 | 9 | 10 | Хрящи |
| GSE169077 | GPL96 | 5 | 6 | Хрящи |
| GSE12021 | GPL96 | 13 | 20 | Синовиумы |
| GSE55457 | GPL96 | 10 | 10 | Синовиумы |
| GSE89408 | GPL11154 | 28 | 22 | Синовиумы |
| GSE82107 | GPL570 | 7 | 10 | Синовиумы |
| GSE19060 | GPL570 | 3 | 5 | Мениск |
| GSE98918 | GPL20844 | 12 | 12 | Мениск |
| GSE51588 | GPL13497 | 10 | 40 | Субхондральная кость |
Таблица 2: Наборы данных в данном исследовании из базы данных GEO. Сводка 11 общедоступных наборов данных GEO, соответствующих критериям включения. Для каждого набора данных предоставляются идентификатор доступа, платформа и количество образцов нормального контроля (NC) и остеоартрита (OA), а также тип ткани. n = количество образцов.
Обсуждение
Текущая работа предполагает, что SNRNP70 может функционировать как защитный ген в патогенезе остеоартрита — многогранного заболевания суставов, представляющего серьёзную глобальную проблему вздравоохранении 29,30. Это исследование стало первым, в котором отражается роль SNRNP70 в OA. В этом исследовании мы продемонстрировали значительное снижение экспрессии SNRNP70 в тканях ОА, что подтверждается анализом данных ГЕО (общий SMD = -1,07, 95% ДИ: -1,34, -0,80; Рисунок 2). Важно, что это открытие впоследствии было подтверждено на хондроцитах, обработанных IL-1β. Кроме того, в этом исследовании рассматривалась роль SNRNP70 в воспалительном ответе хондроцитов, обработанных IL-1β. Как защитный ген, связанный с ОА, SNRNP70 проявлял способность замедлять прогрессирование ОА, подавляя экспрессию IL-1 и MMP13. На сегодняшний день это первое экспериментальное исследование, которое зафиксировало заметное различие в уровнях экспрессии SNRNP70 между тканями OA и NC, что указывает на потенциальную роль SNRNP70 в патогенезе OA. Это интригующее наблюдение побуждает нас задуматься о возможных диагностических последствиях SNRNP70 в ОА.
Метаанализ, который мы проводили, включающий несколько наборов данных и массив РНК-секвенс, дал доказательства потенциальной диагностической значимости SNRNP70. SMD -1,07 подчеркнул постоянную понижение SNRNP70 в тканях ОА, что повышает вероятность его использования как диагностического кандидата. Анализ кривой ROC дополнительно подчеркнул этот потенциал с AUC 0,92, что свидетельствует о устойчивой дискриминационной силе. Кроме того, совокупные значения чувствительности и специфичности подтверждают предположение, что SNRNP70 может позволить более раннюю и точную диагностику ОА. Помимо диагностического потенциала, SNRNP70 остаётся интересным кандидатом в контексте управления ОА. Патогенез ОА — это многофакторный процесс, включающий механическую перегрузку, старение, генетическую предрасположенность и воспаление31,32. Среди этих факторов воспаление становится всё более признанным как ключевой фактор прогрессированияОА 33,34. Он организует цепь событий, включая деградацию хряща, воспаление синовиума и изменённый гомеостаз суставов.
В этом исследовании изучался противовоспалительный потенциал SNRNP70, обусловленный его ролью компонента сплайсеосомы35,36. С помощью модели in vitro хондроциты обрабатывались рекомбинантным крысом IL-1β для имитации воспалительной микросреды в суставах ОА. Эти данные свидетельствуют о том, что SNRNP70 может играть роль в модулировании воспаления в хондроцитах, стимулируемых IL-1β. IF-анализы дополнительно подтвердили противовоспалительные свойства SNRNP70. Хондроциты, обработанные IL-1β, демонстрировали повышенную экспрессию воспалительных белков, которые были ослаблены oe-SN. Эта модуляция экспрессии воспалительных белков SNRNP70 выявляет потенциальную связь с воспалительным каскадом, связанным с патогенезом ОА.
Хотя это исследование предоставляет наблюдательные доказательства диагностического и терапевтического потенциала SNRNP70 при ОА, точные механизмы, лежащие в основе его эффекта, остаются предметоминтереса 37. SNRNP70 является критически важным компонентом сплайсеосомы, комплекса, участвующего в сплайсинге РНК, фундаментальном процессе регуляции экспрессии генов. РНК-сплайсинг играет ключевую роль в экспрессии генов, удаляя некодируемые области (интроны) и соединяя кодирующие области (экзоны) молекул мРНК, в конечном итоге формируяпротеом 38,39,40. Вполне возможно, что участие SNRNP70 в сплайсинге РНК может влиять на экспрессию генов, связанных с патогенезом ОА. Специфические мишени РНК и события сплайсинга, регулируемые SNRNP70 в тканях, поражённых ОА, остаются невыясненными. Понимание этих механизмов может дать ценные сведения о молекулярных основах ОА и кандидатов для дальнейшего изучения. Кроме того, будущие исследования должны изучать взаимодействие SNRNP70 с другими молекулами, вовлечёнными в патогенез ОА. Изучение его перекрёстного взаимодействия с сигнальными путями, участвующими в воспалении, деградации хряща и ремоделировании ткани суставов, может дать более полное понимание его многогранных эффектов.
У этого исследования есть определённые ограничения, которые заслуживают рассмотрения. Хотя мета-анализ включал значительное количество наборов данных, различия в дизайне исследования, демографии пациентов и обработке данных могут привести к гетерогенности. Кроме того, включённые наборы данных различались по происхождению тканей (например, хрящ против синовии) и по платформам обработки, что частично объясняет наблюдаемую гетерогенность между исследованиями (I2 = 73,3%). Кроме того, этот интегративный анализ основывался на общедоступных людских наборах данных, тогда как функциональные эксперименты использовали хондроциты, изолированные от неонатальных крыс. Это различие между видами ограничивает степень, в которой результаты in vitro могут быть напрямую экстраполированы на патофизиологию остеоартрита человека. Ещё одно предостережение — опора на модель острой стимуляции IL-1β, которая фиксирует только ранний воспалительный ответ и не полностью отражает хроническую, прогрессивную и многофакторную природу ОА у человека. Кроме того, функциональные эксперименты ограничивались методами усиления функции (SNRNP70 переэкспрессии); Эксперименты по потере функции (например, SNRNP70 knockdown) не проводились, что является ограничением текущего исследования. Наконец, хотя корреляционные анализы указывают на SNRNP70 в фокальной адгезии, события FAK-сплайсинга не были непосредственно изучены, и экспериментальные доказательства того, что сигнализация фокальной адгезии изменяется ниже SNRNP70 , не были представлены. Поэтому валидация в более крупных когортах пациентов и животных моделях необходима для укрепления надёжности этих результатов. Кроме того, эксперименты in vitro использовали модель клеточной культуры, которая может не полностью воспроизводить комплексную in vivo микросреду ОА-суставов. Будущие исследования должны изучить влияние SNRNP70 на животных моделях ОА, чтобы оценить его терапевтический потенциал в более физиологически значимом контексте.
Раскрытие информации
У авторов нет конфликтов интересов.
Благодарности
Это исследование было профинансировано Guangxi Key Research, China (GuiKe AB22035014), Специальным фондом инновационной команды Первой аффилированной больницы Гуансийского медицинского университета (YYZS2022003), а также совместным проектом инноваций в области науки и технологий здравоохранения провинции Хайнань (WSJK2026QN087) 2026 года.
Материалы
```html
```
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Anti-aggrecan (ACAN) antibody | Abcam | ab36861 | Первичное антитело, разведение 1:1000 |
| Anti-collagen type II alpha 1 (COL2A1) antibody | Abcam | ab34712 | Первичное антитело, разведение 1:1000 |
| Anti-IL6 antibody | Proteintech | 21865-1-AP | Антибиотики для культуры клеток |
| Anti-MMP13 antibody | Proteintech | 18165-1-AP | Первичное антитело, разведение 1:1000 |
| BCA protein assay kit | Thermo Fisher Scientific | 23225 | Определение общей концентрации белка |
| CFX96 Real-Time PCR Detection System | Bio-Rad | 1855195 | Система детекции в реальном времени ПЦР |
| ChemiDoc XRS+ imaging system | Bio-Rad | 1708265 | Система хемилюминесцентного имэйджи |
| Collagenase type II | Sigma-Aldrich | C6885 | Переваривание хрящевой ткани, 2 мг/мл |
| DAPI | Thermo Fisher Scientific | 62248 | Контрастное окрашивание ядер |
| Dulbecco’s Modified Eagle Medium/F12 | Gibco | 11320033 | Базальная среда для культивирования клеток |
| ECL reagent | Thermo Fisher Scientific | 34580 | Реагент для усиленной хемилюминесценции |
| Fetal bovine serum | Gibco | 10082147 | Концентрация 10% в качестве добавки в культуру |
| Fluorescent microscope | Olympus | BX53 | Иммунофлюоресцентное исследование (увеличение 20x) |
| GEO database | NCBI | N/A | Общедоступные наборы данных РНК-сэк и микрочипов |
| GraphPad Prism 8.0 | GraphPad | N/A | Анализ кривой ROC |
| HRP-conjugated secondary antibodies | Santa Cruz Biotechnology | sc-516102 | Вторичное антитело |
| ImageJ software | NIH | N/A | Программное обеспечение для денситометрического анализа |
| LipoFiter 3.0 | Hanbio | HB-TF3001 | Реагент для трансфекции |
| NanoDrop 2000 | Thermo Fisher Scientific | ND-2000 | Измерение чистоты и концентрации РНК (отношение A260/280) |
| oe-SNRNP70 | Hanbio | HB-OV5101 | Плазмида для переэкспрессии |
| Penicillin | Thermo Fisher Scientific | 15140122 | Антибиотик для культуры клеток |
| Primer-BLAST | NCBI | N/A | Разработка гена-специфичных праймеров |
| Primers (synthesized) | Sangon Biotech | N/A | Коммерческий синтез ПЦР-праймеров |
| protease and phosphatase inhibitor cocktails | Roche | 4693159001 | Коктейль ингибиторов протеаз и фосфатаз |
| PVDF membrane | Millipore | IPVH00010 | Мембрана для переноса белков |
| ReverTra Ace qPCR RT Kit | TOYOBO | FSQ-101 | Синтез первой цепи комплементарной ДНК |
| RIPA buffer | Beyotime | P0013B | Буфер для лизиса клеток с ингибиторами протеаз и фосфатаз |
| Recombinant rat interleukin-1β | PeproTech | 400-01B | Индуктор воспалительного ответа в хондроцитах |
| Sangerbox platform | http://vip.sangerbox.com/ | N/A | Анализ кривой ROC |
| Simple Western Automated Western Blot System | ProteinSimple Jess | Jess (model 004-600) | Автоматизированная система обнаружения экспрессии белков |
| Stata 14.0 | Stata | N/A | Мета-анализ |
| Streptomycin | Thermo Fisher Scientific | Антибиотик для культуры клеток | |
| SYBR® Premix Ex Taq™ Kit | Takara | QPK-201 | Реальная квантитативная ПЦР |
| The RNAfast200 kit | Fastagen Biotech | 220010-100 | Извлечение общей РНК из хондроцитов |
| Trypsin-EDTA | Gibco | 25200072 | Отделение клеток, 0,25% трипсин-ЭДТА |
Ссылки
- David, J. H., Lyn, M., Mabel, C. Osteoarthritis in 2020 and beyond: a Lancet Commission. Lancet. 396 (10264), 1711-1712 (2020).
- Leifer, V. P., Katz, J. N., Losina, E. The burden of OA-health services and economics. Osteoarthritis Cartilage. 30 (1), 10-16 (2022).
- Long, H., et al. Prevalence Trends of Site-Specific Osteoarthritis From 1990 to 2019: Findings From the Global Burden of Disease Study 2019. Arthritis Rheumatol. 74 (7), 1172-1183 (2022).
- Loeser, R., Collins, J., Diekman, B. Aging and the pathogenesis of osteoarthritis. Nat Rev Rheumatol. 12 (7), 412-420 (2016).
- Tang, Y., Wang, Z., Cao, J., Tu, Y. Bone–brain crosstalk in osteoarthritis: pathophysiology and interventions. Trends Mol Med. 31 (3), 281-295 (2025).
- Chen, M., et al. Remodeling the Proinflammatory Microenvironment in Osteoarthritis through Interleukin-1 Beta Tailored Exosome Cargo for Inflammatory Regulation and Cartilage Regeneration. ACS Nano. 19 (4), 4924-4941 (2025).
- Murphy, M., et al. Articular cartilage regeneration by activated skeletal stem cells. Nat Med. 26 (10), 1583-1592 (2020).
- Zhang, H., et al. Mechanical overloading promotes chondrocyte senescence and osteoarthritis development through downregulating FBXW7. Ann Rheum Dis. 81 (5), 676-686 (2022).
- MacMullan, P., McCarthy, G. The meniscus, calcification and osteoarthritis: a pathologic team. Arthritis Res Ther. 12 (3), 116(2010).
- Jarraya, M., et al. Meniscus morphology: Does tear type matter? A narrative review with focus on relevance for osteoarthritis research. Semin Arthritis Rheum. 46 (5), 552-561 (2017).
- Fu, X., et al. Erythropoietin enhances meniscal regeneration and prevents osteoarthritis formation in mice. Am J Transl Res. 12 (10), 6464-6477 (2020).
- Li, C., et al. Integrated Analysis of Transcriptome Changes in Osteoarthritis: Gene Expression, Pathways, and Alternative Splicing. Cartilage. 14 (2), 235-246 (2023).
- Liu, H., et al. Regulation of Chondrocyte Metabolism and Osteoarthritis Development by Sirt5 Through Protein Lysine Malonylation. Arthritis Rheumatol. 77 (9), 1216-1227 (2025).
- Zhou, H., et al. FTO-mediated SMAD2 m6A modification protects cartilage against Osteoarthritis. Exp Mol Med. 56 (10), 2283-2295 (2024).
- Li, Y., et al. A Wnt-induced lncRNA-DGCR5 splicing switch drives tumor-promoting inflammation in esophageal squamous cell carcinoma. Cell Rep. 42 (6), 112542(2023).
- Mann, M., et al. Bromodomain-containing Protein 4 regulates innate inflammation via modulation of alternative splicing. Front Immunol. 14, 1212770(2023).
- Zhang, L., et al. RNF213 loss of function reshapes vascular transcriptome and spliceosome leading to disrupted angiogenesis and aggravated vascular inflammatory responses. J Cereb Blood Flow Metab. 42 (11), 2107-2122 (2022).
- Yan, C., Wan, R., Shi, Y. Molecular Mechanisms of pre-mRNA Splicing through Structural Biology of the Spliceosome. Cold Spring Harb Perspect Biol. 11 (1), (2019).
- Borisek, J., et al. Atomic-Level Mechanism of Pre-mRNA Splicing in Health and Disease. Acc Chem Res. 54 (1), 144-154 (2020).
- Pala, D., et al. Focal adhesion kinase/Src suppresses early chondrogenesis: central role of CCN2. J Biol Chem. 283 (14), 9239-9247 (2008).
- Kim, Y. H., Lee, J. W. Targeting of focal adhesion kinase by small interfering RNAs reduces chondrocyte redifferentiation capacity in alginate bead culture with type II collagen. J Cell Physiol. 218 (3), 623-630 (2009).
- Byun, S., et al. Response splicing quantitative trait loci in primary human chondrocytes identify putative osteoarthritis risk genes. Nat Commun. 16 (1), 1-17 (2025).
- Yang, B., Li, X., Su, Y. Single-cell sequencing and machine learning-based prediction of spliceosome-associated factor 2 may represent potential targets for osteoarthritis. Osteoarthritis Cartilage Open. 8 (2), (2026).
- Will, C., Lührmann, R. Spliceosome structure and function. Cold Spring Harb Perspect Biol. 3 (7), (2011).
- Nakaya, T. Dissection of FUS domains involved in regulation of SnRNP70 gene expression. FEBS Lett. 594 (21), 3518-3529 (2020).
- Zhou, C., et al. Microenvironmental stiffness mediates cytoskeleton re-organization in chondrocytes through laminin-FAK mechanotransduction. Int J Oral Sci. 14 (1), 1-13 (2022).
- Shin, H., et al. Focal Adhesion Assembly Induces Phenotypic Changes and Dedifferentiation in Chondrocytes. J Cell Physiol. 231 (8), 1822-1831 (2016).
- Li, G., et al. Zyxin-involved actin regulation is essential in the maintenance of vinculin focal adhesion and chondrocyte differentiation status. Cell Prolif. 52 (1), 1-14 (2018).
- Bowden, J., et al. Core and adjunctive interventions for osteoarthritis: efficacy and models for implementation. Nat Rev Rheumatol. 16 (8), 434-447 (2020).
- Chen, S., et al. Epidemiological trends and characteristics of osteoarthritis in China during 1990–2021. J Orthop Translat. 51, 218-226 (2025).
- Luo, P., et al. The role of cells and signal pathways in subchondral bone in osteoarthritis. Bone Joint Res. 12 (9), 536-545 (2023).
- Ming, L., Nafiza, H., Jingyi, H., Guangju, Z. Osteoarthritis year in review 2023: metabolite and protein biomarkers. Osteoarthritis Cartilage. 31 (11), 1437-1453 (2023).
- Zeyu, H., Ketao, W., Shenglong, D., Mingzhu, Z. Cross-talk of inflammation and cellular senescence: a new insight into the occurrence and progression of osteoarthritis. Bone Res. 12 (1), 1-17 (2024).
- Ma, J., et al. GYY4137-induced p65 sulfhydration protects synovial macrophages against pyroptosis by improving mitochondrial function in osteoarthritis development. J Adv Res. 71, 173-188 (2025).
- Kiebler, M., Ninkovic, J. RNA biology: Alternative splicing hits synaptic function and behavior. Curr Biol. 32 (23), R1314-R1316 (2022).
- Nikolaou, N., et al. Cytoplasmic pool of U1 spliceosome protein SNRNP70 shapes the axonal transcriptome and regulates motor connectivity. Curr Biol. 32 (23), 5099-5115.e8 (2022).
- Hu, Z., et al. U1 snRNP proteins promote proximal alternative polyadenylation sites by directly interacting with 3' end processing core factors. J Mol Cell Biol. 14 (8), (2022).
- Jobbins, A., et al. Pre-RNA splicing in metabolic homeostasis and liver disease. Trends Endocrinol Metab. , (2023).
- Zheng, Y., Zhong, G., He, C., Li, M. Targeted splicing therapy: new strategies for colorectal cancer. Front Oncol. 13, 1222932(2023).
- Zhang, Y., Hu, W., Li, H. RNA modification-mediated translational control in immune cells. RNA Biol. 20 (1), 603-613 (2023).