Этот протокол устанавливает динамическую систему совместной культуры лёгких на чипе, объединяющую эпителиальные клетки первичных дыхательных путей и эндотелиальные клетки лёгочных микрососудистых для двух моделей: здоровой и модели ХОБЛ. Система воспроизводит взаимодействия дыхательных путей и сосудистых процессов на интерфейсе и потоке воздуха и жидкости, а также обеспечивает оценку барьера, фенотипирование клеток и анализ РНК.
Методическая статья
Создание эпителиально-эндотелиального ко-культурного лёгкого на чипе для исследования при здоровых и ХОБЛ состояниях
В этой статье
Краткое содержание
Аннотация
Были разработаны две динамические модели совместной культуры лёгких на чипе для воссоздания интерфейса дыхательных путей и сосудистых путей с использованием первичных эпителиальных и лёгочных микроваскулярных эндотелиальных клеток. Одна модель использует коммерчески доступные клетки здоровых доноров, а другая — клетки, полученные от пациентов с хронической обструктивной болезнью лёгких (ХОБЛ), что позволяет напрямую сравнивать здоровые и больные заболевания при одинаковых культурных условиях. Обе модели поддерживают эпителиальную дифференцировку при непрерывной перфузии и условиях интерфейса воздух–жидкость (ALI), что приводит к формированию физиологически значимого эпителиального барьера, поддерживаемого подлежащим эндотелиальным слоем. Рабочий процесс включает покрытие внеклеточного матрикса, засев клеток, установку ALI, оценку барьерной функции, фенотипирование клеток и экстракцию РНК по типу клеток. Тесты на проницаемость продемонстрировали надёжную целостность барьера в обеих системах, а иммунофлуоресценция подтвердила непрерывную локализацию Zonula Occludens-1 (ZO-1) и сосудистого эндотелиального кадгерина (VE-кадгерина) в клеточных соединениях. Эпителиальная дифференцировка была подтверждена β-тубулином IV окрашиванием и визуализацией биения ресничков. Высококачественная РНК получалась отдельно из каждого компартмента, что поддерживало молекулярные анализы, специфичные к типу клеток. Модель ХОБЛ повторила ключевые особенности болезни, в частности увеличив выработку слизи, не нанося ущерба функции барьера или жизнеспособности клеток. Использование эпителиальных и эндотелиальных клеток, полученных пациентами, сохраняет индивидуальные патологические характеристики, что позволяет исследовать межклеточные механизмы при ХОБЛ. Этот подход предоставляет физиологически значимую альтернативу статическим in vitro и животным моделям и поддерживает доклинические исследования ингаляционных препаратов, воздействия патогенов и эпителийно-эндотелиальных взаимодействий. Важно, что здоровые модели лёгких на чипе с ХОБЛ могут использоваться как в комбинации для прямых сравнительных исследований, так и независимо для механистических исследований, терапевтических испытаний и открытия лекарств. Система также может быть адаптирована к другим респираторным заболеваниям, связанным с изменёнными эпителиальными или эндотелиальными отделениями, предоставляя универсальную и трансляционную платформу для респираторных исследований.
Введение
Взаимодействие между эпителиальными клетками дыхательных путей и эндотелиальными клетками лёгких и микрососудистыми эндотелиальными клетками крайне важно для поддержания гомеостаза лёгких и координации реакций на повреждения, инфекции и воспаление. Вместе эти типы клеток образуют функциональный барьер, регулирующий газообмен, иммунный надзор и сосудистую проницаемость. Их динамическое перекрёстное взаимодействие включает паракринную сигнализацию, прямое взаимодействие между клетками и реакции на механические стимулы, что критически важно для функции лёгких и структурнойцелостности 1.
При хронической обструктивной болезни лёгких (ХОБЛ), прогрессирующем заболевании лёгких, характеризующемся хроническим воспалением, ремоделированием дыхательных путей и разрушением границы альвеолярно-капиллярной линии, барьерная функция как эпителия дыхательных путей, так и эндотелия лёгочных сосудов, нарушена и сопровождается аномрантным высвобождением цитокинов и нарушением механизмов восстановлениятканей 2,3. Однако взаимодействие между эпителиальными клетками дыхательных путей и лёгочной микрососудистой эндотелиальной клетками остаётся плохо изученным. Это ограничение частично связано с недостатками существующих моделей in vitro и in vivo. Хотя животные модели дали важные сведения о респираторной физиологии и патологии, их значение ограничено межвидовыми различиями в иммунной работе, архитектуре лёгких, клеточной сигнализации и метаболизме лекарств, что может затруднять трансляцию в биологию человека.
Традиционные in vitro системы, такие как двумерные (2D) культуры увековеченных эпителиальных клеток дыхательных путей, не могут воссоздать ключевые особенности эпителия дыхательных путей, включая правильную дифференцировку и биомеханическую реакцию. Хотя трёхмерные (3D) монокультуры первичных эпителиальных клеток дыхательных путей повышают физиологическую значимость, они остаются статичными и не взаимодействуют с другими типами клеток и механическими стимулами4. Лёгкое — это динамический орган, постоянно подвергающийся воздействию воздействия воздействия воздуха, сдвигового напряжения, внеклеточной жесткости матрикса и циклического растяжения, возникающего при дыхании. Эти факторы сильно влияют на поведение клеток и ремоделированиетканей 5. Поэтому статические модели недостаточны для воспроизведения таких процессов, как адгезия лейкоцитов, трафик иммунных клеток и реальные реакции на воздействие лекарств в реальном времени.
Для решения этих ограничений появились платформы organ-on-a-chip как передовые системы моделирования сложных клеточных взаимодействий. Модели лёгких на чипе интегрируют микрофлюидные технологии с клетками, полученными от человека, чтобы воспроизвести ключевые структурные и механические особенности микросреды лёгких. Эти платформы позволяют совместно культивировать эпителиальные и лёгочные сосудистые эндотелиальные клетки в динамической, трёхмерной среде, которая более близко имитирует условия in vivo 6. Включение физиологических движений дыхания, потока жидкости и мониторинга в реальном времени улучшает изучение эпителиально-эндотелиальной коммуникации как в нормальных, так и при болезненныхусловиях 7–9.
Несмотря на эти достижения, большинство существующих систем лёгких на чипе полагаются на клетки, полученные от здоровыхдоноров 10, что ограничивает их способность моделировать специфические взаимодействия, связанные с заболеваниями. Кроме того, многим платформам не хватает гибкости для включения клеток, полученных от пациентов, или воссоздания сложной микросреды ХОБЛ. Кроме того, подробные протоколы совместной культуры эпителиальных эпителиальных и лёгочных микроваскулярных эндотелийных клеток — будь то из коммерческих источников или пациентов с ХОБЛ — с использованием клеточно-специфических внеклеточных матриксов (ECM) покрытий остаются ограниченными.
В этом исследовании была использована коммерчески доступная двухканальная микрофлюидная платформа лёгких на чипе для создания двух моделей ко-культуры, включающих первичные эпителиальные клетки дыхательных путей и лёгочные микрососудистые эндотелиальные клетки. Была создана здоровая модель с использованием коммерчески доступных клеток, полученных от разных доноров, тогда как модель ХОБЛ была создана с использованием эпителиальных и эндотелиальных клеток дыхательных путей, полученных у одного и того же пациента. Обе модели используют специфическое для типа клеток покрытие ЭБМ, чтобы лучше имитировать микросреду легких in vivo. Эти системы позволяют исследовать эпителиально-эндотелиальные взаимодействия при физиологических и патологических условиях. Здоровые модели и ХОБЛ могут использоваться как в комбинации для прямых сравнительных исследований, так и независимо для механистических исследований и терапевтических испытаний.
Эта система совместной культуры отражает анатомическую организацию эпителия дыхательных путей и лёгочных сосудов, которые функционируют как интегрированный эпителийно-эндотелиальный блок. Эпителий дыхательных путей — это псевдостратифицированный слой, состоящий из базальных, секреторных и ресничных клеток, расположенный над сосудистой соединительной тканью (lamina propria) и отделённый от эндотела базальной мембраной. В этой модели покрытие ECM (коллаген типа I, фибронектин и ламинин) приближает состав эпителиальных и эндотелиальных базальных мембран. Пористая мембрана, разделяющая два канала, имитирует субэпителиальную соединительную ткань, хотя ей не хватает сосудистой сложности. В эпителиально-эндотелиальное общение участвует множество механизмов, включая паракринные сигналы, координированную регуляцию проницаемости, набор иммунных клеток и реакции на механические стимулы, такие как растяжение, вызванное дыханием, которые влияют на сосудистое сопротивление и механотрансдукции.
Это методологическое исследование описывает этапы, необходимые для создания полностью дифференцированного эпителия дыхательных путей, культивируемого в условиях интерфейса воздух–жидкость (ALI) с подлежащим лёгочным микроваскулярным эндотелием. Система позволяет качественно и функционально оценивать целостность барьера, достигая воспроизводимых значений кажущейся проницаемости (Papp) ≤ 1 × 10⁻6 см/с. Кроме того, предусмотрены протоколы для фенотипирования клеток, а также для экстракции и количественной оценки РНК из каждого компарата, что стабильно даёт высококачественную РНК (число целостности РНК > 7). Этот метод не предназначен для количественного анализа мРНК или детальной оценки образования слизи, а также не исследует влияние механического растяжения, хотя такие применения возможны с помощью этой системы.
Протокол
Любое использование первичных человеческих клеток было одобрено Местным этическим комитетом по исследованию UZ Leuven (S51577/S57114/S70453). Коммерчески доступные первичные человеческие бронхиальные эпителиальные клетки (HBEC) и лёгочные микроваскулярные эндотелиальные клетки (HPMEC) были получены от двух некурящих доноров (дополнительные таблицы 1, 2). Первичные клетки для модели ХОБЛ были выделены из эксплантированной легкой ткани трёх пациентов с ХОБЛ с историей курения (Дополнительная таблица 3) согласно хорошо установленному протоколу (этическое одобрение S51577) и хранятся в биобанке BREATHE. И HBEC, и HPMEC были получены у одного и того же пациента с ХОБЛ.
Для установления здоровой модели лёгких на чипе использовались коммерческие HBEC и HPMEC. Для модели ХОБЛ первичные бронхиальные эпителиальные и лёгочные микроваскулярные эндотелиальные клетки были выделены из экстраватированной легочной ткани, полученной у одного и того же пациента после пересадки лёгких. Система лёгких на чипе, использованная в этом исследовании, представляет собой микрофлюидную двухканальную платформу, состоящую из параллельных дыхательных путей (верхний) и сосудистых (нижних) микроканалов, разделённых пористой мембраной, покрытой внеклеточной матрицей (рисунок 1). Один и тот же протокол использовался для создания как здоровых, так и моделей ХОБЛ. Химикаты, реагенты и наборы, используемые в протоколе, перечислены в Таблице материалов.
1. Создание моделей ко-культуры лёгких на чипе при ламинарном потоке
- Подготовка чипов
- Поместите колыбель для чипов в 120-мм квадратную чашу для культуры клеток, углы направлены вверх, чтобы обеспечить правильную ориентацию, затем положите щепки в люльку. Убедитесь, что все чипы правильно размещены перед этапом активации (рисунок 2).
- Приготовьте активационный раствор, растворив порошок активационного реагента в соответствующем буфере, оба предоставленных производителем, чтобы получить окончательную концентрацию 0,5 мг/мл.
- Активируйте внутренние поверхности каналов чипа для стимулирования прикрепления внеклеточного матрикса (ECM), аккуратно вводя примерно 35 мкл раствора активации через вход нижнего канала. Пипет, пока раствор не начнёт выходить из выхода нижнего канала. Повторите процедуру, введя примерно 50 мкл раствора в верхний вход канала.
ПРИМЕЧАНИЕ: Порошок активационного реагента светочувствительный. Подготовьте раствор для активации непосредственно перед использованием и выбросьте оставшийся раствор через 1 час после восстановления. - Удалите весь избыточный раствор активации с поверхности чипа с помощью мягкой аспирации. Обязательно убирайте только раствор активации с поверхности чипа — не аспирируйте его из каналов.
ПРИМЕЧАНИЕ: Перед активацией ультрафиолетового (УФ) осмотрите каналы под микроскопом, чтобы обнаружить пузырьки. Если они есть, аккуратно промыйте активационным раствором, пока все пузырьки не будут удалены. - Подвергите чипы воздействию УФ-лампы на 10 минут, затем промыйте каждый канал дважды с помощью 200 мкл соответствующего буфера.
- Нанесите свежий раствор для активации в оба канала, как описано выше, и подвергайте чипы воздействию ультрафиолета на 5 минут дополнительно.
- Полностью аспирировать раствор из обоих каналов, промыть каждый канал дважды с помощью 200 мкл соответствующего буфера, затем один раз промыть каждый канал 200 мкл стерильного холодно-фосфатно-буферного физиологического раствора без Ca2⁺ иMg 2⁺ (DPBS -/-).
- Приготовьте раствор для покрытия ECM в DPBS (-/-), содержащий человеческий коллаген типа I (100 мкг/мл), человеческий фибронектин (50 мкг/мл) и человеческий ламинин (50 мкг/мл). Используйте 100 мкл раствора в качестве опорного объёма на каждый чип.
- Добавьте 50 мкл в верхний канал и 35 мкл в нижний канал, одновременно вдувая выходной поток через выходные порты.
ПРИМЕЧАНИЕ: Осмотрите каналы под микроскопом, чтобы обнаружить пузырьки. Если есть, аккуратно промыйте раствором ECM, чтобы их удалить. - Оставляйте небольшие капли раствора ECM на входных и выходных портах канала, чтобы предотвратить испарение во время ночной инкубации (ON).
- Инкубировать чипсы ВКЛЮЧЕНО при 37 °C с 5% CO₂. На следующий день аспирируйте раствор ECM и промыйте оба канала 200 мкл предварительно нагретого DPBS (-/-) при 37 °C.
- Клеточное засевение и погружённая культура
Расширить HBEC в колбах размером T25см 2 , покрытых человеческим коллагеном IV типа (150 мкг/мл в DPBS (-/-)) с использованием среды расширения эпителиальных клеток дыхательных путей до достижения совпадения 60–70%.
Параллельно расширяйте HPMEC в колбах размером T75см 2 , покрытых желатином (2 мг/мл в DPBS (-/-)) с использованием среды роста эндотелиальных клеток (EC) до достижения соединения 90–100%.
См. дополнительную таблицу 4 для состава ключевых реагентов и культурных сред. - Посев HPMEC
- Аспирируйте среду. Промывайте ячейки с 10 мл DPBS (-/-).
- Добавьте 3 мл 0,25% трипсина-ЭДТА (1 раз). Инкубировать 30 секунд при комнатной температуре (RT).
- Добавьте 12 мл среды для роста EC (4× объёма используемого трипсина), чтобы инактивировать трипсин. Добавьте 5 мл среды для роста EC для сбора остаточных клеток (конечный объём = 20 мл).
- Подтвердите полное отслоение клеток под микроскопом.
- Посчитайте живые клетки с помощью трипан-синего на ~20 мкл.
- Центрифугуйте суспензию оставшейся ячейки при 900 × г в течение 5 минут при RT в конической трубке объёмом 50 мл.
- Суспензируйте гранулу в среде для роста EC. Настройте на 7 × 10⁶ элементов/мл.
- Посеять HPMEC (проход 5) в нижний канал (~20 мкл; 1,4 × 10⁵ клеток/канал).
- Немедленно инвертируйте чипсы и инкубируйте 2 часа при 37 °C с 5% CO₂ (см. рисунок 3).
- Верните чипы в исходное положение.
- Промывайте с 200 мкл тёплой среды для роста EC.
- Проверьте прикрепление под микроскопом. При необходимости продлите инкубацию.
- Посев HBEC
- Аспирируйте среду. Мойте с 5 мл тёплого DPBS (-/-).
- Добавьте 1 мл трипсина. Инкубировать 5 минут при 37 °C с 5% CO₂.
- Наблюдайте за отслоением под микроскопом.
- Добавьте 1 мл определённого ингибитора трипсина (DTI) в соотношении 1:1 для инактивации трипсина.
- Добавьте 8 мл среды расширения эпителиальной клетки дыхательных путей (конечный объём = 10 мл).
- Переведите на трубку на 50 мл.
- Возьмите ~20 мкл для подсчёта клеток с использованием трипан-синего.
- Центрифугуйте оставшуюся ячейку при 200 × г в течение 5 минут при RT.
- Отбросьте супернатант.
- Суспензировать гранулу в среде расширения эпителиальной клетки дыхательных путей. Отрегулируйте до 3,5 × 10⁶ элементов/мл.
- Дополните среду расширения эпителиальной клетки дыхательных путей синтетической светлостабильной ретиноевой кислотой с 50 нМ и рекомбинантным эпидермическим фактором роста человека (rhEGF) 10 нг/мл.
- Семена HBEC (проход 2) в верхний канал (~35 мкл; 1,2 × 10⁵ ячеек/канал).
- Инкубировать 4 часа при 37 °C с 5% CO₂ (рисунок 4).
- Замените носитель в обоих каналах.
- Инкубировать в течение ночи (ON) при статических условиях при 37 °C с 5% CO₂.
ПРИМЕЧАНИЕ: С этого этапа используйте только дегазированную среду для всех этапов. Дегазация должна выполняться с помощью блока Steriflip, подключённого к вакуумной системе, чтобы минимизировать риск образования пузырьков в чипе.
- Связь с потоком
- Добавьте тёплую (37°C) эпителиальную расширяющую среду дыхательных путей, дополненную синтетической светоустойчивой ретиноевой кислотой и rhEGF в верхний входной резервуар.
- Добавьте тёплую (37°C) почву для роста EC в нижний впускной резервуар.
- Заполните каждый входной резервуар средой 3 мл и каждый выходной резервуар — 300 мкл.
- Поместите портативные модули в модуль культуры (рисунок 5).
- Нажмите на ручку, чтобы выбрать цикл «Прайм» с помощью вращающегося диска.
- Нажмите на ручку, чтобы запустить цикл.
- Позвольте циклу запуститься (~1 минута).
- Осмотрите нижнюю часть каждого модуля на наличие капель во всех четырёх жидкостных портах.
- Повторите цикл «Прайм», если капли не видны.
- Промой оба канала чипа один раз соответствующей средой.
- Оставьте каплю на каждом входном и выходном порте, чтобы предотвратить образование пузырей.
- Держите чип в доминирующей руке, а портативный модуль — в другой.
- Вставьте чип в рельсы, пока он полностью не сядет.
- Поместите собранный модуль в модуль культуры.
- Установите расход на 30 мкл/ч для обоих каналов с помощью вращающегося диска.
- Поддерживать условия интерфейса жидко-жидкость (LLI).
- Микросхемы сохраняются в модуле под интерфейсом жидкость-жидкость (LLI), чтобы обеспечить равномерное образование эпителиального и эндотелиального слоёв
- Меняйте среднюю жидкость каждые 3 дня. Аспирированная среда из выходных резервуаров. Добавьте 3 мл свежей среды в каждый впускной резервуар.
ПРИМЕЧАНИЕ: Следите за пузырьками под микроскопом. Если он есть, отключите чип, промите каналы с носителем и снова подключите.
- Дифференциация эпителиальных клеток и культура интерфейса жидкости воздуха
- Ежедневно контролируйте клетки под микроскопом.
- Подтвердить формирование однородного эпителиального клеточного слоя без щелей (обычно 3–5 дней).
- Установите интерфейс воздух–жидкость (ALI).
- Аспирируйте среду из верхних входных и выходных резервуаров.
- Промывать остаточную среду из верхнего канала путём увеличения расхода до 600 мкл/ч с помощью вращающегося диска
- Быстро аспирировать среду из верхних выходных резервуаров.
- Аспирированная среда из нижних входных резервуаров.
- Добавьте 3 мл среды для дифференцировки эпителия, дополненную 10 нг/мл сосудистого эндотелиального фактора роста (VEGF) и 1 мкг/мл витамина C.
- Установите верхний канал на «воздух» с помощью поворотного диска.
- Установите расход нижнего канала на 30 мкл/ч.
- Поддерживайте культуру АЛИ в течение 2 недель.
- Наблюдайте развитие эпителиальной дифференцировки под микроскопом.
- Подтвердить формирование псевдостратифицированного эпителия. Следите за биением реснички и выделением слизи.
- Отслеживайте морфологию эндотелиальных клеток в области входа и выхода.
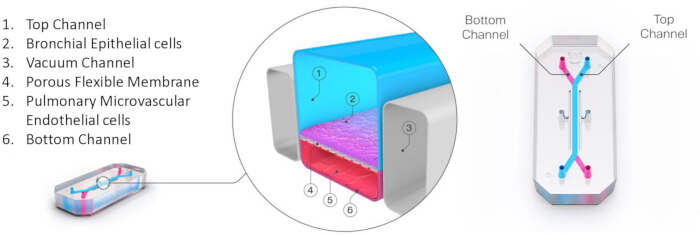
Рисунок 1: Микрофлюидная платформа лёгких на чипе. Поперечное сечение (слева) и вид сверху (справа) двухканального микрофлюидного устройства лёгких на чипе. Схемные иллюстрации предоставлены исключительно для иллюстративных целей. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
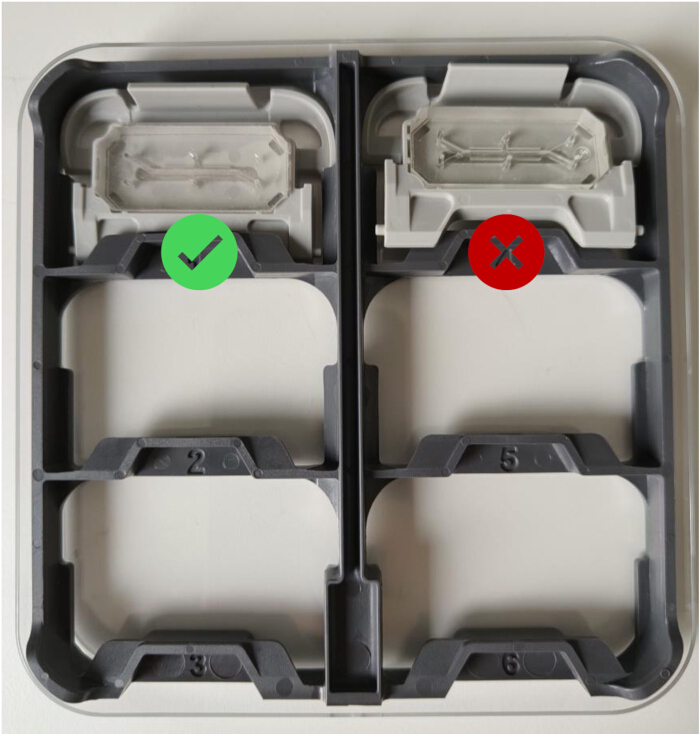
Рисунок 2: Расположение чипа в колыбели чипа .Репрезентативное изображение, показывающее правильную ориентацию колыбели чипа и её расположение. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
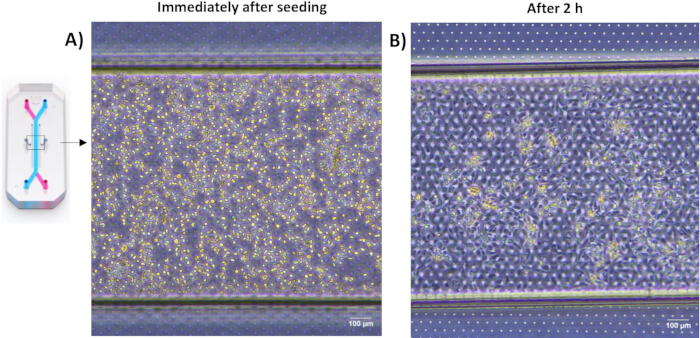
Рисунок 3: Засев эндотелиальных клеток в микрофлюидном чипе. Репрезентативные яркие изображения эндотелиальных клеток лёгочных микрососудистых сразу после посева (A) и после 2 часа инкубации (B). Шкала масштаба: 100 мкм. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
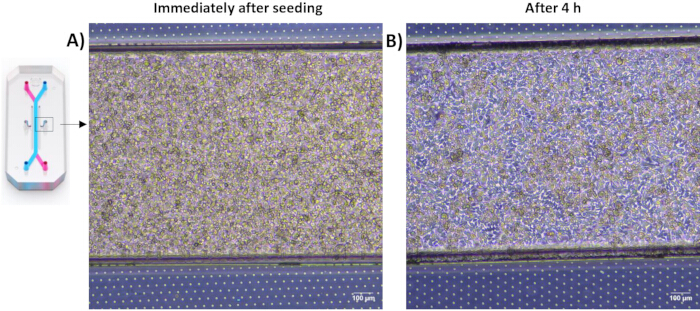
Рисунок 4: Засев эпителиальных клеток дыхательных путей в микрофлюидном чипе.
Репрезентативные яркие изображения эпителиальных клеток дыхательных путей сразу после посева (A) и после 4 часа инкубации (B). Шкала масштаба: 100 мкм. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
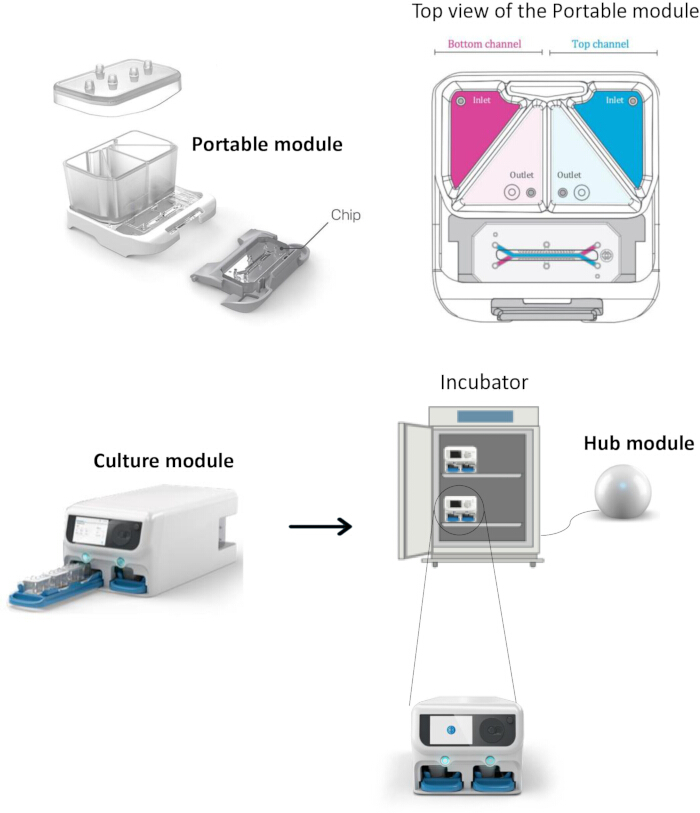
Рисунок 5: Конфигурация микрофлюидной системы лёгких на чипе.
В верхней части рисунка изображен переносной модуль с четырьмя резервуарами (двумя входами и двумя выходами), используемыми для подачи среды и сбора сточных газов. Микрофлюидное устройство подключено к культурному модулю, регулирующему расход, и к модулю хаба, который обеспечивает газ, воздух и питание. Схематическое изображение предоставлено исключительно для иллюстративных целей. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
2. Оценка целостности барьера
Целостность барьера оценивалась двумя способами: во-первых, функционально, путем оценки проницаемости к флуоресцентно меченному декстрану со временем (до ALI и после 10 дней ALI), а во-вторых, качественно — по иммунодетекции Zonula Occludens-1 (ZO-1) в бронхиальном эпителии и сосудистого эндотелиального кадгерина (VE-cadherin) в эндотелии лёгочных сосудистых органов.
- Функция барьера
- Под ламинарным потоком добавьте 1 мл эпителиальной дифференциационной среды, дополненную VEGF и витамином C, содержащей 100 мкг/мл флуоресцентно маркированного декстрана в верхний входной резервуар дыхательного канала. Одновременно добавьте 1 мл среды без трассеров в нижний входной резервуар сосудистого канала.
- Введите среду с трассером в верхний канал. Используя вращательный диск, установите расход в обоих каналах на 600 мкл/ч на 3 минуты, затем аспирируйте среду из верхнего и нижнего выходных резервуаров.
- Поместите чип, подключённый к портативному модулю, обратно в модуль культуры. Используя вращательный циферблат, установите расход обоих каналов на 45 мкл/ч и поддерживайте этот расход в течение 3 час.
- Соберите 100 мкл среды из верхнего и нижнего выходных резервуаров и измерьте интенсивность флуоресценции с помощью считывателя пластин.
- Вычислите кажущуюся проницаемость (Papp) с помощью уравнения проницаемости:
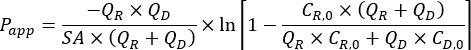
где SA обозначает площадь поверхности кокультурного канала (0,17см²), QR иQ D обозначают скорость потока жидкости в дозирующем и приемном каналах соответственно (см 3/с), а CR,0 и CD,0 соответствуют восстановленным концентрациям в дозировочном и приемном каналах соответственно.
ПРИМЕЧАНИЕ: Значение Паппа ниже 1 x 10⁻⁶ см/с указывает на сильную целостность барьера, что отражает низкую проницаемость эпителиального слоя для трассера. Этот порог устанавливается производителем системы как внутренняя мера контроля качества.
- Иммунодетекция узких и адгеренных соединений
- После двух недель ALI аккуратно выньте чип из портативного модуля.
- Фиксируйте клетки, добавив 50 мкл 4% параформальдегида (PFA) в оба канала на 20 минут при RT.
ВНИМАНИЕ: PFA токсична; Выполняйте все этапы в сертифицированной химической вытяжке. - Промыйте оба канала дважды с помощью 200 мкл DPBS (-/-) и храните стружки при 4 °C до появления окраски.
- Проницать клетки, добавив 50 мкл 0,1% тритона X-100 в DPBS (-/-) на 5 минут при RT. Затем заблокируйте 50 мкл 0,1% Triton X-100 в DPBS (-/-), содержащее 10% козьей сыворотки, на канал в течение 1 часа при RT.
- Инкубировать верхний (бронхиальный эпителийный) канал 50 мкл моноклонального антитела ZO-1 (1:100) у мыши (1:100), а нижний (лёгочно-сосудистый эндотелиальный) канал с 50 мкл моноклонального антитела к VE-кадгерина (1:600).
- Разбавить оба антитела в растворе антител (0,1% тритон X-100 в PBS (-/-) с 1% козьей сывороткой) и инкубировать ON при 4°C при статических условиях.
- Промой чипы три раза с 200 мкл DPBS (-/-). Затем инкубировать каждый канал в течение 1 часа в RT с 50 мкл соответствующих вторичных антител, конъюгированных фторофором, разбавленных в растворе антител (1:500): козье антимышиное вторичное антитело в верхнем канале и козье антикроликовое вторичное антитело в нижнем канале.
- Промыйте оба канала три раза с 200 мкл DPBS (-/-). Проведите ядерное окрашивание с 50 мкл для каждого канала 4′,6-диамидино-2-фенилиндола (DAPI, 1 мкг/мл в DPBS (-/-)) в течение 10 минут при RT.
- Проведите финальную промывку с 200 мкл DPBS (-/-) и храните чип в DPBS (-/-) при температуре 4°C в темноте до начала изображения.
- Сфотографируйте чипы на накладках (20x60 мм толщиной 0,16–0,19 мм) с помощью инвертированного флуоресцентного микроскопа с вращающимся диском, высокочувствительной камерой и объективом 20X (NA 0,8). Используйте соответствующее программное обеспечение для получения и анализа изображений для постобработки.
3. Фенотипирование
- Подготовка срезов чипа
- Фиксируйте чипы с 4% PFA, как описано в разделе 2.2.2.
- Отрежьте окружающий полидиметилсилоксан (PDMS) с чипа с помощью лезвия бритвы.
- Заполните оба канала 50 мкл 2% низкоплавящей агарозы в DPBS (-/-) и дайте агарозе затвердеть при RT.
- Разрежьте щепу поперечно на две половины с помощью лезвия бритвы, вставьте каждую половину в материал с оптимальной температурой резки (OCT) и храните при −80 °C до разрезания.
- Криосекция
- Подготовьте криостат и вырежьте криосекции диаметром 200 мкм с половинок чипов.
- Соберите срезы с помощью пинцета в колодцы с 48-ядренной пластиной, заполненной DPBS (-/-), и храните их при температуре 4 °C до иммунного окрашивания.
- Иммунофлуоресцентное окрашивание
ПРИМЕЧАНИЕ: Выполняйте каждый шаг на пластине с 48 ямецами, используя 400 мкл в качестве опорного объёма.- Пермеабилизировать клетки и блокировать неспецифическое связывание, как описано ранее в разделе 2.2.4.
- Инкубировать каждую секцию ON при 4°C первичными антителами, специфичными для эпителиальных ресничных клеток (β-тубулин IV, 1:2000) или для эндотелиальных клеток (CD31, 1:25), разбавленных раствором антител (0,1% Triton X-100 в DPBS с 1% козьей сывороткой).
- Промывайте секции три раза с помощью DPBS (-/-).
- Инкубировать секции в течение 1 часа в RT с соответствующими вторичными антителами, конъюгированными с фторофором у коз (1:500) для β-тубулина IV и CD31, разбавленными раствором антител, защищёнными от света.
- Промыйте секции три раза DPBS (-/-) и проведите ядерное окрашивание DAPI (1 мкг/мл в DPBS (-/-)) в течение 10 минут при RT.
- Промыйте секции один раз DPBS (-/-) перед монтажом.
- С помощью пинцета поставьте по одной прокладке на каждое стекло микроскопа, затем разместите секцию посередине. Добавьте 1–2 капли крепежного материала и уложите круглый накладочный слой.
- Дайте им высохнуть в темноте на RT, затем запечатайте края покрытия прозрачным лаком.
- Храните стекли при температуре 4°C в темноте до проведения визуализации.
- Снимите секции чипов с помощью инвертированного флуоресцентного микроскопа, оснащённого вращающимся диском, высокочувствительной камерой и объективом 40X (NA 1.25). Обрабатывайте изображения с помощью соответствующего микроскопического программного обеспечения.
4. Экстракция и количественная оценка РНК
- Сбор элементов из чипов под ламинарным течением
- После 2 недель ALI-культуры отсоедините чипы от портативных модулей и дважды промите оба канала 200 мкл DPBS (-/-), предварительно подогревшей при 37 °C.
- Добавьте 35 мкл 0,25% трипсина-ЭДТА (1X) в эндотелиальные клетки нижнего канала и инкубировать примерно 30 секунд при RT.
- Осмотрите клетки под микроскопом, чтобы подтвердить полное отслоение. Затем соберите суспензию ячейки в трубку и центрифугите при 900 × г в течение 5 минут при RT.
- Суспензировать клеточную гранулу в 50 мкл реагента для изолирования РНК на основе фенолов и хранить при -80 °C до извлечения РНК.
- Добавьте 50 мкл реагента для изоляции РНК на основе фенолов непосредственно в верхний канал, чтобы лизировать эпителиальные клетки, герметизировать порты кончиками и инкубировать на льду в течение 3–4 минут.
- Аккуратно натирайте пипетку для полного лизиса, соберите лизат в пробирку и храните при -80 °C до извлечения РНК.
- Осмотрите оба канала под микроскопом, чтобы подтвердить полный сбор клеток.
- Экстракция РНК
- Добавьте хлороформ (0,2 объёма на 1 объём реагента для выделения РНК на основе фенолов, используемого для лизиса; 10 мкл на образец), тщательно перемешайте пробирки, встряхивая и инкубируйте на льду в течение 2-3 минут.
- Центрифугите при 12 000 × г в течение 15 минут при 4 °C для разделения фаз и аккуратного переноса верхней водной фазы в новую трубку, не нарушая межфазу. Затем добавить 5 мкг гликогена без РНК в водную фазу в качестве носителя.
- Добавьте изопропанол (0,5 объёма на 1 объём лизисного реагента; 25 мкл на образец), инкубировать образцы при 4 °C в течение 10 минут и центрифугу при 12 000 × г в течение 10 минут при 4 °C.
- Сбросьте супернатант, сохранив РНК-гранулу.
- Промывка и ресуспензия РНК
- Промыть РНК-гранулу 75% этанолом (1 объём на 1 объём лизисного реагента; 50 мкл на образец), кратковременно проработать вихрь и центрифугировать при 7 500 × г в течение 5 минут при 4 °C.
- Сбросьте супернатант и дайте грануле высохнуть на воздухе 5–10 минут.
- Ресуспендировать РНК в 30 мкл воды без РНазы с помощью мягкой пипеты и хранить РНК при -80 °C до дальнейшего использования.
- Оценить целостность и количественную оценку РНК с помощью системы разделения нуклеиновых кислот на основе микрофлюидного чипа.
Результаты
Создание моделей совместной культуры лёгких на чипе
Визуализация Brightfield показала сцепление и рост клеток со временем в системе кокультуры лёгких на чипе. Эпителиальные клетки бронха дыхательных путей размножались в погружённой культуре на границе жидкость и жидкость (ЛЛИ), образуя равномерный слой вдоль верхнего канала (рисунок 6A), в то время как эндотелиальные клетки лёгочных сосудов расширялись, покрывая весь нижний канал, образуя слияющийся монослой (рисунок 6B).
После установления совместной культуры эндотелиальные клетки контролировались на входных и выходных участках нижнего канала, которые являются единственными доступными для микроскопического осмотра. Как показано на рисунке 7, эндотелиальные клетки оставались жизнеспособными и имели удлинённую морфологию, соответствующую направлению течения. После 14 дней культуры ALI эпителиальный слой как у здоровых, так и у ХОБЛ моделей показал видимое биение ресничной арки (дополнительное видео). Как и ожидалось, модель ХОБЛ показала заметное увеличение выработки слизи по сравнению со здоровой моделью (рисунок 8), повторяя ключевые особенности патологии ХОБЛ.
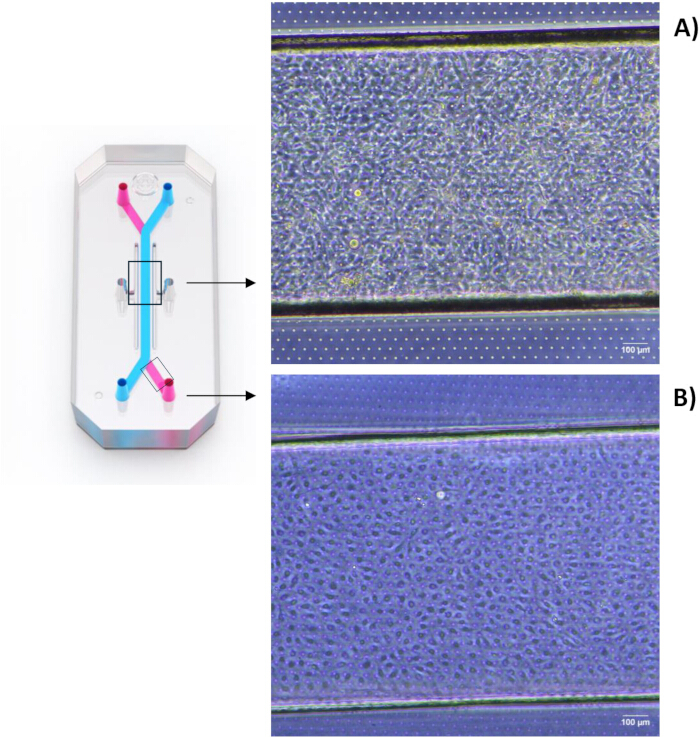
Рисунок 6: Кокультура эпителиальных и эндотелиальных клеток дыхательных путей в микрофлюидном устройстве.
Репрезентативные изображения первичных бронхиальных эпителиальных клеток на верхней поверхности (A) и первичных лёгочных микрососудистых эндотелиальных клеток на нижней поверхности (B) пористой мембраны при условиях жидко-жидкого интерфейса (LLI). Шкала масштаба: 100 мкм. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
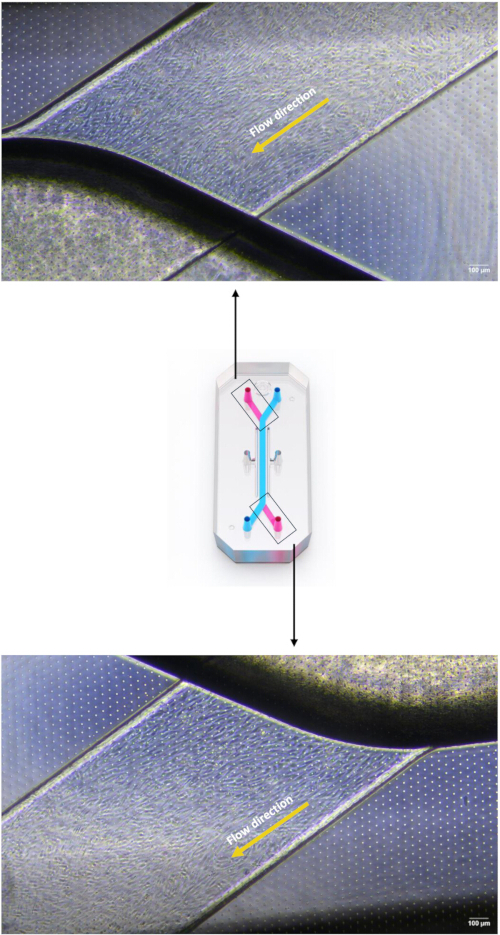
Рисунок 7: Эндотелиальные клетки в нижнем микрофлюидном канале во время интерфейса воздух–жидкость.
Репрезентативные яркие изображения, показывающие эндотелиальные клетки лёгочных микрососудистых на входе (верхний) и выходе (нижний) нижний канал во время интерфейса воздух–жидкость (ALI). Шкала масштаба: 100 мкм. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
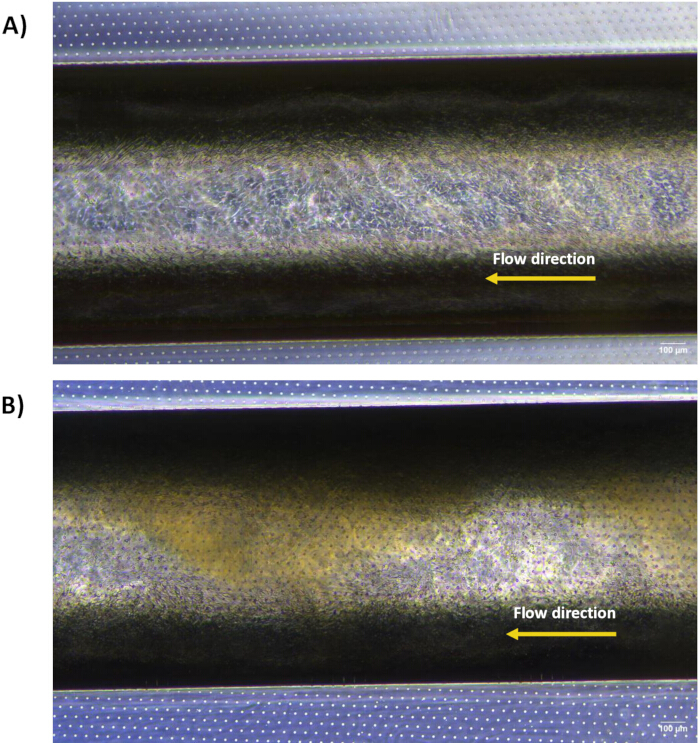
Рисунок 8: Скопление слизи в дыхательных путях.
Репрезентативные изображения, показывающие образование слизи после 14 дней на пересечении воздуха и жидкости (ALI) в здоровых (A) и ХОБЛ (B) кокультурных моделях. Коричневый слой в дыхательных путях представляет собой накопившуюся слизь. Шкала масштаба: 100 мкм. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
Количественная оценка целостности барьера
Функциональная оценка целостности барьера показала более низкую кажущуюся проницаемость (Papp) как в здоровых, так и в моделях с ХОБЛ по сравнению с положительным контролем (чип с покрытым РЭБ без клеток) (рисунок 9).
При отсутствии клеток высокие значения Паппа указывали на минимальное образование барьеров. В отличие от этого, при наличии эпителиальных и эндотелиальных слоёв флуоресцентный декстран-трассер не пересекал ЭКМ, что приводило к заметному снижению проницаемости и указывало на сильный барьер. Этот эффект наблюдался как до ALI, так и после 10 дней ALI, демонстрируя, что барьерная функция формируется на ранних этапах дифференцировки.
Как показано на рисунке 10, в здоровой модели средние значения Papp до ALI уже были ниже порога, указывающего на устойчивую целостность барьера (1 × 10⁻6 см/с) и ещё больше снижались во время культуры ALI. В модели ХОБЛ средние значения Papp также находились в пределах диапазона сильного барьера до ALI и, хотя после 10 дней ALI они немного выросли, целостность барьера оставалась устойчивой.
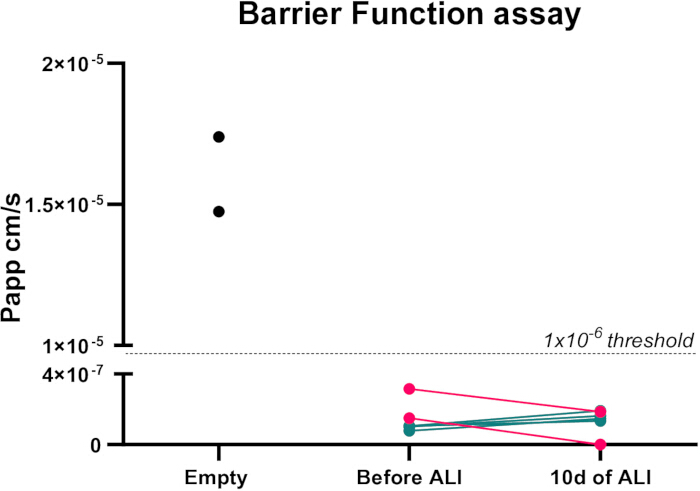
Рисунок 9: Оценка барьерной функции в модели лёгких на чипе.
Видимая проницаемость (Papp) измеряется в чипах с покрытием ECM без клеток (положительный контроль на утечку; чёрный), а также в здоровых (розовый) и ХОБЛ (зелёный) моделях совместной культуры до и после 10 дней взаимодействия воздух–жидкость (ALI). Каждая точка представляет отдельный чип. Здоровая модель включает клетки отдельных доноров, тогда как модель ХОБЛ использует клетки, полученные от одного пациента. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
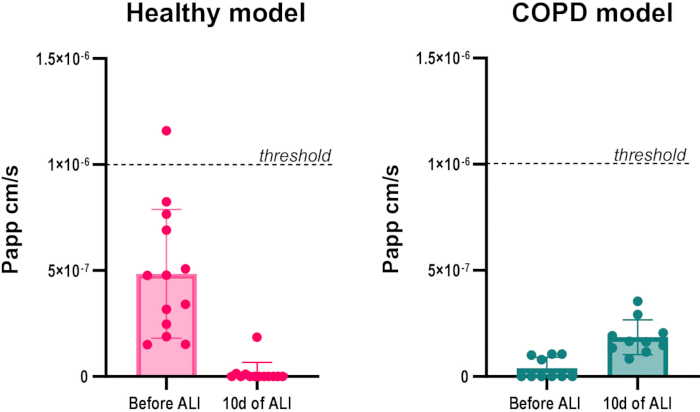
Рисунок 10: Сравнение барьерной функции в здоровых и ХОБЛ-моделях.
Видимая проницаемость (Papp), измеряемая до и после 10 дней взаимодействия между воздухом и жидкостью (ALI) в здоровых (слева) и ХОБЛ (справа) моделях совместной культуры. Каждая точка представляет отдельный чип. Значения средние ± SD. Модель ХОБЛ включает клетки трёх пациентов, тогда как здоровая модель объединяет клетки разных доноров. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
Иммунодетекция узких и адгеренных соединений
Иммунофлуоресцентный анализ подтвердил структурную организацию соединительных белков. ZO-1 демонстрировал непрерывную локализацию вдоль границ бронхиальных эпителиальных клеток, что указывает на целостный эпителиальный барьер (рисунок 11A). Аналогично, окрашивание VE-кадгерином выявило равномерное распределение в эндотелиальных соединениях, что соответствует сливающемуся эндотелиальному монослою. Эндотелиальные клетки имели удлинённую морфологию, совпадающую с направлением течения (рисунок 11B).
Различий между здоровой и ХОБЛ моделями в локализации белков плотного и адхеренского соединения не наблюдалось. Эти результаты согласуются с данными функционального барьера, подтверждая наличие физиологически значимой эпителиально-эндотелиальной границы с сохраненной целостностью соединения в обеих моделях.
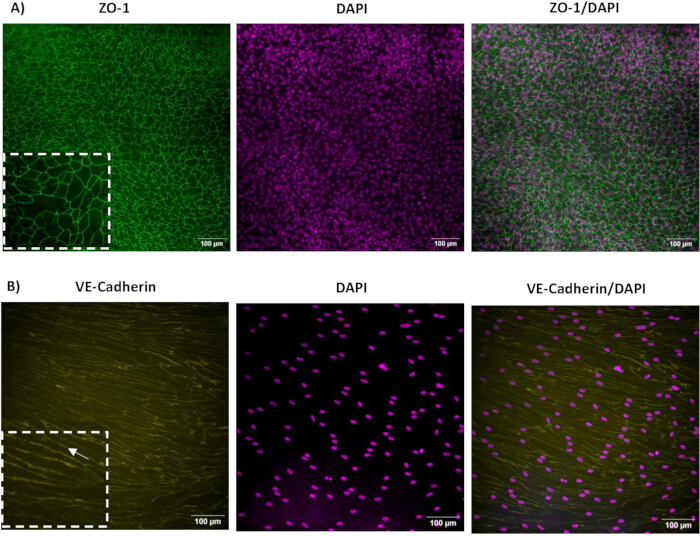
Рисунок 11: Экспрессия соединительного белка в модели кокультуры лёгких на чипе.
Изображения иммунофлуоресценции сверху, полученные через 14 дней на пересечении воздух-жидкость (ALI), показывающие локализацию ZO-1 в эпителиальном компартменте дыхательных путей (A) и локализацию VE-кадгерина в эндотелиальном компартменте (B). Ядра окрашивают DAPI. Стрелка указывает направление потока. Шкала масштаба: 100 мкм. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
Фенотипирование
Иммунофлуоресцентное окрашивание чип-криосекций выявило β-тубулин IV-положительные клетки на апикальной стороне мембраны, что указывает на дифференцировку эпителиальных клеток дыхательных путей в ресниччатые клетки — отличительная черта зрелого бронхиального эпителия (рисунок 12A). Окрашивание CD31 подтвердило наличие сливающегося эндотелиального монослоя вдоль базальной стороны мембраны (рисунок 12B). Эти результаты показывают, что система ко-культуры поддерживает формирование физиологически значимых эпителиальных и эндотелиальных фенотипов в обеих моделях.
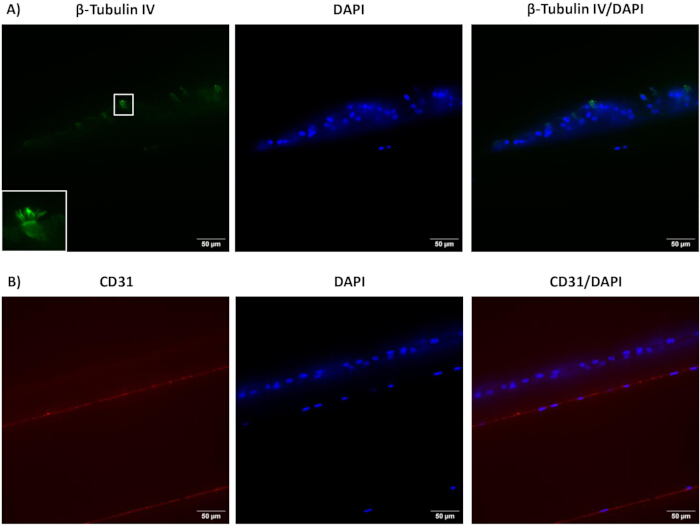
Рисунок 12: Иммунофлуоресцентные изображения сечений лёгких на чипе. Репрезентативное иммунофлюоресцентное окрашивание сечений чипа после 14 дней взаимодействия воздуха с жидкостью (ALI), демонстрирующее экспрессию β-тубулина IV в эпителиальном компартменте дыхательных путей (A) и экспрессию CD31 в эндотелиальном компартменте (B). Ядра окрашивают DAPI. Шкала масштаба: 50 мкм. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
Экстракция и количественная оценка РНК
РНК, выделенная из эпителиальных клеток дыхательных путей, дала концентрации от 59 до 135 нг/мкл, при этом целостность РНК (RIN)11 составляла от 7,4 до 9,6, тогда как РНК из микроваскулярных эндотелиальных клеток варьировалась от 12 до 46 нг/мкл с значениями RIN 9,6–10 в обеих моделях. Данные показали, что обе модели достигли достаточного количества высококачественной РНК, подходящей для дальнейших молекулярных анализов.
Дополнительная таблица 1: Информация о доноре для эпителиальных клеток бронхов дыхательных путей. Таблица представляет эпителиальные клетки бронхиальных дыхательных путей, используемые в здоровой модели. Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительная таблица 2: Информация о доноре для эндотелиальных клеток лёгочных микрососудистых мышц.Информация о доноре для эндотелиальных клеток лёгочных микрососудистых эндотелиев, используемых в здоровой модели. Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительная таблица 3: Информация о пациентах. В таблице представлена информация о эпителиальных и лёгочных микроваскулярных эндотелиальных клетках, используемых в модели ХОБЛ. Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительная таблица 4: Обзор ключевых реагентов и культурных сред, используемых в протоколе.Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительное видео 1: Пульсация цилиарного канала в дыхательных каналах (здоровая модель).
Репрезентативное видео, показывающее биение ресничной арии после 14 дней взаимодействия между воздухом и жидкостью (ALI). Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительное видео 2: Биение цилиарных каналов в дыхательных каналах (модель ХОБЛ).
Репрезентативное видео, показывающее биение ресничной арии после 14 дней взаимодействия между воздухом и жидкостью (ALI). Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Обсуждение
В этом исследовании представлен подробный протокол создания системы совместной культуры лёгких на чипе для создания как здоровой модели с использованием коммерчески доступных бронхиальных эпителиальных и лёгочных микрососудистых эндотелиальных клеток, так и модели ХОБЛ с использованием клеток, полученных пациентами из экстравагированных лёгких. В обеих моделях два типа клеток разделены пористой, эластичной мембраной, покрытой специфическим для типа клеток внеклеточным матриксом (ЭКМ), что обеспечивает микроокружение, более похожее на лёгкое in vivo . Протокол также включает методы оценки целостности барьера, фенотипирования клеток и экстракции РНК из каждого компартмента. Обе модели успешно поддерживались в условиях динамической перфузии и интерфейса воздух–жидкость (ALI), что привело к формированию физиологически значимого эпителиально-эндотелиального барьера с полностью дифференцированным псевдостратифицированным эпителием дыхательных путей. Эндотелиальные клетки выровнялись с направлением течения, как наблюдалось in vivo, и из обоих компартментов получалась высококачественная РНК.
Для успешного создания этой системы совместной культуры необходимо выполнить несколько ключевых шагов. Для достижения равномерного покрытия требуется точное засевение эпителиальной ячейкой, так как неравномерное распределение может привести к неполному покрытию поверхности и нарушению образования барьеров. В таких случаях апикальный компартмент следует аккуратно аспирировать, а эпителиальные клетки заново засеять. Установление ALI следует проводить только после образования непрерывных монослоев между эпителиальными и эндотелиальными слоями, так как преждевременное воздействие ALI может привести к протечению сосудистой среды в дыхательные пути и ухудшению дифференцировки. Если совпадение не достигнуто, создание ALI следует отложить.
Неполное удаление апикальной среды или непостоянное воздействие АЛИ может привести к гетерогенному созреванию эпителия. Остаточную среду в верхнем канале можно удалить, увеличив расход до 600 мкл/ч на 3–4 минуты. Образование пузырей, которое нарушает перфузию и влияет на жизнеспособность клеток, может происходить из-за недостаточного равновесия. Пузырьки можно удалить, временно увеличив поток до 600 мкЛ/ч на 3-4 минуты или, если они сохраняются, отсоединив чип и вручную их сдвинув с помощью пипетки. В модели ХОБЛ чрезмерное выделение слизи может блокировать дыхательные пути и ухудшать перфузию; в таких случаях рекомендуется мягкое промывка с применением DPBS с последующим восстановлением ALI.
Большинство существующих систем совместной культуры, объединяющих эпителиальные и лёгочные эндотелиальные клетки, основаны на коммерчески доступных первичных клетках и универсальных покрытиях ЭКМ, таких как коллаген или фибронектин 10,12. Хотя они поддерживают адгезию, они лишь частично воспроизводят биохимические и механические свойства интерфейса дыхательных путей и сосудистых путей. В отличие от этого, нынешняя система использует клеточно-специфические покрытия ЭКМ, обеспечивая микросреду, более близкую к ткани лёгких человека.
Функция барьера обычно оценивается с помощью трансэпителиального/трансэндотелиального электрического сопротивления (TEER), хотя этот метод может зависеть от эпителиальной многослойнойорганизации 14. В этом исследовании для оценки функциональной целостности использовалась проницаемость декстранов. Наблюдаемые значения Паппа были ниже порога для сильной целостности барьера (1 × 10⁻6 см/с), что указывает на устойчивый эпителий–эндотелиальный интерфейс. Эпителий дыхательных путей демонстрировал особенности дифференцировки, включая биение ресничек и образование слизи, а также непрерывную локализацию ZO-1 и VE-кадгерина в клеточных соединениях. Кроме того, высококачественная РНК была стабильно получена из обоих компартментов, что позволило проводить анализы по типу клеток в дальнейшем потоке.
Ключевым достижением этой работы стало создание модели лёгких на чипе при ХОБЛ, в которой эпителиальные и эндотелиальные клетки получаются от одного и того же пациента. По недавним данным, подобная совместимость с пациентом ранее не была зарегистрирована. Ранние исследования включали эпителиальные клетки, полученные отХОБЛ 7,8, но опирались на коммерчески полученные эндотелиальные клетки, что ограничивало изучение специфических для заболевания эпителиево-эндотелиальных взаимодействий. Текущая модель преодолевает это ограничение, сохраняя специфические для каждого пациента клеточные взаимодействия.
Модель ХОБЛ повторяла ключевые признаки заболевания, включая увеличение выработкислизи, 3, при сохранении выравнивания эндотелия и целостности соединения при потоке. Важно, что совместная культура эпителиальных и эндотелиальных клеток, полученных пациентами, не нарушила функцию барьера или жизнеспособность, несмотря на повышенное образование слизи. Система оставалась стабильной при условиях ALI и непрерывной перфузии, что поддерживало её использование для долгосрочных исследований. Кроме того, платформа обеспечивает механическое растяжение, что ещё больше повышает её физиологическую значимость.
Важной сильной стороной этого рабочего процесса является возможность оценивать здоровые и ХОБЛ состояния на одной платформе по сопоставимым экспериментальным параметрам. Это позволяет напрямую оценить различия, связанные с заболеванием, в дифференцировке эпителия, функции эндотелия и целостности барьера. Модели также могут использоваться независимо, в зависимости от исследовательского вопроса. Здоровая модель подходит для механистических исследований и модуляции путей, тогда как модель ХОБЛ предоставляет платформу для терапевтической оценки и тестирования лекарств. Возможность отдельно извлекать высококачественную РНК из каждого компартмента дополнительно позволяет проводить молекулярное профилирование, специфическое к типу клеток. Использование клеток, сопоставленных с пациентом, в модели ХОБЛ сохраняет взаимодействия, связанные с болезнью, которые в противном случае были бы утрачены при объединении несвязанных клеточных источников.
Несмотря на эти преимущества, следует учитывать ряд ограничений. Использование систем лёгких на чипе требует специализированного оборудования и технической экспертизы, что может ограничивать доступность. Кроме того, модель в настоящее время не включает другие релевантные типы клеток лёгких, такие как иммунные или стромальные клетки, которые могут влиять на реакцию на патогены и лекарства. Однако платформа может быть адаптирована для включения циркулирующих иммунных клеток, что позволяет исследовать их взаимодействие с эпителиальными и эндотелиальными компартментами. Доступ к материалам ХОБЛ, полученному от пациентов, также может быть ограничен, а межпациентная вариабельность может влиять на воспроизводимость. Кроме того, чрезмерное выделение слизи может мешать перфузии.
Влияние циклического механического растяжения не было изучено в этом исследовании, но представляет собой важное направление будущего. Растягивающаяся мембрана позволяет моделировать механические силы, связанные с дыханием, которые известны тем, что влияют на функцию клеток, восстановление и гомеостаз 15,16. Предыдущие исследования показали, что механическое напряжение может ускорять поглощение и транспортировку наночастиц через эпителиальныйбарьер 10.
В заключение, представленные здесь здоровые модели лёгких и ХОБЛ на чипе предоставляют физиологически значимую платформу для изучения эпителиево-эндотелиальных взаимодействий в области здоровья и болезни. Динамический характер системы позволяет точно контролировать условия потока и поддерживает такие применения, как тестирование лекарств и исследования воздействия патогенов. Этот протокол представляет собой надёжную альтернативу традиционным in vitro и животным моделям и представляет собой ценный инструмент для развития трансляционных респираторных исследований.
Раскрытие информации
Ни у одного автора нет конфликта интересов.
Благодарности
Эта работа была профинансирована исследовательским грантом (G065221N) от Исследовательского фонда Фландрии.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| 0.25% trypsin-EDTA (1X) (for endothelial cells) | Gibco | 25200-056 | Используется для ферментативного отсоединения легочных микрососудистых эндотелиальных клеток. |
| 120 мм x 120 мм квадратная чаша для культуры клеток | VWR | 688161 | Используется для удерживания чип-картриджа во время подготовки и обработки чипов. |
| 2100 Bioanalyzer | Agilent | G2939A | Используется для оценки качества и целостности РНК. |
| 2-пропанол | Sigma-Aldrich | I9516 | Используется для осаждения РНК во время экстракции. |
| 4',6-диамидино-2-фенилиндол (DAPI) | Invitrogen | D1306 | Используется для окрашивания клеточных ядер во время иммунофлюоресценции. |
| 50 мл конические пробирки | Cellstar | 227261 | Используются для сбора клеток, центрифугирования и приготовления клеточных суспензий. |
| Agilent RNA 6000 Nano Kit | Agilent | 5067-1511 | Используется для анализа качества РНК с помощью Bioanalyzer. |
| Амфотерицин B | Gibco | 15290-026 | Используется для предотвращения грибковой контаминации во время культивирования клеток. |
| Автоматический счетчик клеток | NanoEntek | EVE PLUS | Используется для определения концентрации и жизнеспособности клеток перед посевом. |
| Многокамерные пластинки для культуры клеток, 48 колодцев, стерильные | Falcon | 353078 | Используются для удерживания поперечных сечений во время процедур окрашивания. |
| Центрифуга | Hettich | 320R | Используется для отделения клеток перед посевом. |
| Чип-картридж | Emulate | support@emulatebio.com | Используется для поддержки и удержания чипов во время активации поверхности, покрытия и посева клеток. |
| Хлороформ | Sigma-Aldrich | 366927 | Используется для разделения фаз во время экстракции РНК. |
| Модуль Cicero для вращающегося диска | CrestOptics S.p.A. | Используется для выполнения конфокальной флуоресцентной микроскопии с высокой скоростью. | |
| Покрышки | Epredia | BB02400600AC13MNZ0 | Используются для поддержки чипов во время конфокальной визуализации. Описание: 24 x 60 мм, #1.5 |
| Криостат | Thermo Fisher Scientific | NX70 | Используется для секционирования образцов, вложенных в OCT. |
| Модуль культуры (Zoë-CM) | Emulate | support@emulatebio.com | Используется для контроля условий окружающей среды для культуры клеток в микрофлюидной системе. |
| Ингибитор трипсина Define (DTI) | Thermo Fisher | R007100 | Используется для нейтрализации активности трипсина после отсоединения эпителиальных клеток. |
| Декстран Каскадный Синий 3 кДа | Thermo Fisher | D7132 | Используется в качестве флуоресцентного маркера для оценки проницаемости барьера. |
| Комплект среды для роста эндотелиальных клеток MV2 | PromoCell | C-22022 | Используется для поддержания и расширения легочных микрососудистых эндотелиальных клеток. |
| ER-1 реагент для активации поверхности (светочувствительный реагент для активации в порошковой форме) | Emulate | support@emulatebio.com | Используется для активации поверхностей чипов для последующего покрытия. |
| ER-2 реагент для активации поверхности (буфер) | Emulate | support@emulatebio.com | Используется в качестве буфера во время активации поверхности чип. |
| Абсолютный этанол | Thermo Fisher Scientific | 437433T | Используется для промывания пеликсов РНК во время экстракции. |
| Флуоресцентный пластинковый анализатор | Agilent | BioTek Sinergy H1 микропластиковая анализатор | Используется для измерения интенсивности флуоресценции для исследований проницаемости. |
| Желатин из бычьей кожи | Sigma-Aldrich | G9391 | Используется для покрытия поверхностей культуры для стимулирования адгезии эндотелиальных клеток. |
| Коза Anti-Mouse Alexa Fluor 488 (для ZO-1 и β-tubulin IV) | Thermo Fisher | A11001 | Используется для обнаружения первичных антител мыши с зеленой флуоресценцией. |
| Коза Anti-Mouse Alexa Fluor 594 (для CD31) | Thermo Fisher | A11005 | Используется для обнаружения первичных антител мыши с красной флуоресценцией. |
| Коза Anti-Rabbit Alexa Fluor 555 (для VE-cadherin) | Thermo Fisher | A21429 | Используется для обнаружения первичных антител кролика с оранжево-красной флуоресценцией. |
| Модуль шлюза (Orb-HM) | Emulate | support@emulatebio.com | Используется для подачи газа и питания модуля культуры. |
| Человеческие бронхиальные эпителиальные клетки (HBEC) | Lonza | CC-2540S | Используются в качестве эпителиальных клеток дыхательных путей для создания здоровой модели сокультивирования. |
| Человеческий Коллаген IV | Sigma | C5533 | Используется |
Ссылки
- Blume, C., et al. Cellular crosstalk between airway epithelial and endothelial cells regulates barrier functions during exposure to double-stranded RNA. Immun Inflamm Dis. , (2017).
- Sakao, S., Voelkel, N. F., Tatsumi, K. The vascular bed in COPD: pulmonary hypertension and pulmonary vascular alterations. Eur Respir Rev. , (2014).
- Shaykhiev, R., Crystal, R. G. Early events in the pathogenesis of chronic obstructive pulmonary disease: smoking-induced reprogramming of airway epithelial basal progenitor cells. Ann Am Thorac Soc. , (2014).
- Blume, C., Davies, D. E. In vitro and ex vivo models of human asthma. Eur J Pharm Biopharm. , (2013).
- Lin, C., et al. Mechanotransduction regulates the interplays between alveolar epithelial and vascular endothelial cells in lung. Front Physiol. , (2022).
- Shrestha, J., et al. Lung-on-a-chip: the future of respiratory disease models and pharmacological studies. Crit Rev Biotechnol. , (2020).
- Benam, K. H., et al. Small airway-on-a-chip enables analysis of human lung inflammation and drug responses in vitro. Nat Methods. , (2016).
- Benam, K. H., et al. Matched-comparative modeling of normal and diseased human airway responses using a microengineered breathing lung chip. Cell Syst. , (2016).
- Plebani, R., et al. Modeling pulmonary cystic fibrosis in a human lung airway-on-a-chip. J Cyst Fibros. , (2022).
- Huh, D., et al. Reconstituting organ-level lung functions on a chip. Science. , (2010).
- Schroeder, A., et al. The RIN: an RNA integrity number for assigning integrity values to RNA measurements. BMC Mol Biol. , (2006).
- Stucki, A. O., et al. A lung-on-a-chip array with an integrated bio-inspired respiration mechanism. Lab Chip. , (2015).
- Burgstaller, G., et al. The instructive extracellular matrix of the lung. Eur Respir J. , (2017).
- Srinivasan, B., et al. TEER measurement techniques for in vitro barrier model systems. J Lab Autom. , (2015).
- Fang, Y., Wu, D., Birukov, K. G. Mechanosensing and mechanoregulation of endothelial cell functions. Compr Physiol. , (2019).
- Santus, P., et al. The airways' mechanical stress in lung disease: implications for COPD pathophysiology and treatment evaluation. Can Respir J. , (2019).