Процесс микроинъекций CRISPR/Cas9 для эндогенного флуоресцентного метирования в зародышевой линии Caenorhabditis elegans с целью получения гомозиготных «knock-in» линий для анализа локализации белков in vivo.
Для просмотра этого контента требуется подписка на JoVE. Войдите или начните свой бесплатный пробный период.
Методическая статья
Эндогенное флуоресцентное метирование генов, специфичных для зародышевой линии, опосредованное CRISPR/Cas9 у Caenorhabditis elegans
* These authors contributed equally
В этой статье
Краткое содержание
Аннотация
Локализация белка в зародышевой линии Caenorhabditis elegans (C. elegans) играет ключевую роль в интерпретации функции генов во время гаметогенеза, однако традиционные методы трансгенов часто дают вариальную экспрессию и могут быть заглушены в зародышевых клетках. Здесь описан практический рабочий процесс CRISPR/Cas9, при котором флуоресцентная метка вставляется в эндогенный локус, что позволяет создавать стабильные knock-in аллели, сообщающие о распределении белков при нативной регуляции. Протокол охватывает ключевые этапы процедуры: выбор стратегии маркировки, подходящей для целевого белка, доставку реагентов CRISPR с помощью гонадных микроинъекций молодым взрослым гермафродитам и восстановление инъекционных животных для скрининга. Кандидаты на knock-in определяются с помощью генотипирования на основе ПЦР в двух поколениях для выделения гомозиготных червей и проверки редактированного аллеля. Наконец, конфокальная микроскопия используется для подтверждения флуоресценции зародышевой линии и оценки субклеточной локализации in vivo. Рабочий процесс разработан так, чтобы быть воспроизводимым и широко применимым к генам, обогащённым зародышевой линией, обеспечивая простой путь к установлению гомозиготных маркированных штаммов для развития и клеточно-биологических анализов.
Введение
Caenorhabditis elegans (C. elegans) — хорошо зарекомендовавшая себя модель для изучения репродуктивного развития и гаметогенеза благодаря короткому жизненному циклу, прозрачному телу и высокой генетическойуправляемости 1. C. elegans существует в основном как самооплодотворяющиеся гермафродиты, у которых гонада сначала проходит сперматогенез, а затем переходит в ооогенез. Этот репродуктивный режим упрощает поддержание штамма и облегчает получение гомозиготныхлиний 2. Недавняя пространственная транскриптомика значительно расширила список генов, обогащённых в гонаде, и выявила выраженные характерные по полу паттерны экспрессии по всей репродуктивной системе у C. elegans3. В последнее время секвенирование одноклеточной РНК позволило восстановить траектории развития зародышевых клеток и сделать выводы о генетических регуляторных сетях, управляющихсперматогенезом 4. Вместе эти наборы данных создают богатые списки кандидатов, но функциональная интерпретация часто требует наблюдения за поведением белков in vivo — в частности, определения времени и места локализации соответствующих белков и того, как меняются их паттерны на протяжении развития зародышевой линии.
Традиционный трансгенез у C. elegans часто основывается на гонадном микроинъекции плазмидной ДНК, что легко генерирует мультикопированные экстрахромосомныемассивы 5. Однако в зародышевой линии эти массивы часто надёжно заглушаются — механизм, который, как считается, помогает поддерживать целостность зародышевой линии, ограничивая экспрессию повторяющейся ДНК, сохраняя тем самым функцию зародышевой линии и стабильность генетической информации на протяжениипоколений 6,7. В результате конструкции экспрессии трансгенов, которые легко экспрессируются в соматических тканях, могут быть слабыми или непоследовательными в зародышевой линии. Даже когда экспрессия обнаруживаема, эффекты количества копий и инженерные регуляторные элементы могут изменять дозировку и время работы белков, что потенциально приводит к запутанным выводам о нативной локализации и динамике. Для устранения этих ограничений широко используются микрочастицная бомбардировка и Mos1-опосредованная Single Copy Insertion (MosSCI) для генерации интеграционных трансгенных линий с низкой или одиночнойкопией 8,9,10. Эти подходы могут улучшить экспрессию в зародышевой линии, но отличаются по стоимости, пропускной способности и эффективности эндогенной регуляции. Редактирование генома CRISPR/Cas9 предлагает более прямой путь, вставляя флуоресцентную метку в эндогенный локус с помощью гомологическо-ориентированного ремонта, создавая стабильные аллели knock-in, которые сообщают о локализации и динамике белков под нативнымрегуляторным контролем 11,12,13,14.
Здесь описан практический рабочий процесс для эндогенного флуоресцентного метирования с помощью CRISPR/Cas9 у C. elegans , применяемый к генам, отобранным на основе описанных паттернов экспрессии, обогащённой зародышевой линией. Протокол описывает выбор мишеней, шаблон донора и руководство по проектированию РНК, гонадную микроинъекцию и дальнейший скрининг для выделения гомозиготных «knock-in» линий, после чего проводится валидация с помощью генотипирования. Этот подход широко применим к генам, экспрессируемым зародышевой линией на разных этапах развития, и позволяет проводить количественный анализ локализации и динамики белков in vivo. Этот рабочий процесс предоставляет практическую стратегию маркирования генов, экспрессированных в зародышевой линии, а также анализа локализации и динамики белков in vivo под нативным регуляторным контролем.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Протокол
Все эксперименты с Caenorhabditis elegans проводились в соответствии с институциональными рекомендациями по уходу и использованию лабораторных организмов Пекинского педагогического университета.
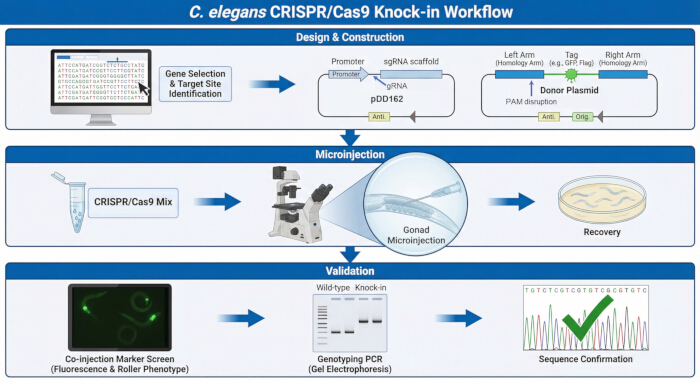
Рисунок 1: Обзор эндогенного флуоресцентного метирования, опосредованного CRISPR/Cas9, у C. elegans. Схематический рабочий процесс, иллюстрирующий основные этапы генерации и валидации эндогенного флуоресцентного knock-in. На этапе проектирования и создания выбираются ген-мишень, обогащённые зародышевой линией, и место вставки, pDD162 используется в качестве плазмиды CRISPR/Cas9 для экспрессии Cas9 и направляющей экспрессию РНК, а pPD95.75 — как донорский картенок, в который субклонируются флуоресцентная метка (например, GFP) и левая и правая гомологические руки. На этапе микроинъекции инъекционная смесь CRISPR/Cas9 (включая плазмиду gRNA/Cas9, донорский шаблон и маркеры совместной инъекции) вводится в гонаду молодых взрослых гермафродитов, после чего происходит извлечение на засеянных пластинах. На этапе валидации отбираются маркерно-положительные потомки для дальнейшего генотипирования, включая идентификацию событий knock-in с помощью ПЦР и подтверждение с помощью секвенирования ДНК, а успешные линии knock-in затем исследуются флуоресцентной микроскопией для оценки экспрессии зародышевой линии и субклеточной локализации маркированного белка. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
1. Выберите ген-мишень, обогащённый зародышевой линией
- Идентифицировать кандидат-гены с преобладающей экспрессией в гонаде или герминальных клетках с помощью публичных баз данных и опубликованной литературы.
- Выберите подходящий сайт для маркировки, исходя из признаков белка. Запишите выбранную изоформу и позицию вставки метки для дальнейшего проектирования направляющей РНК и шаблона донора (рисунок 1).
2. Разработайте шаблон РНК и донора
- Определите последовательность направляющей РНК (gRNA) размером 20 нт выше соседнего мотива протоспейсера (PAM; NGG), последовательности, необходимой для распознавания Cas9, и разместить её как можно ближе к месту вставки тега.
- Оценить кандидатные gRNA с помощью онлайн-инструмента проектирования (например, инструмента проектирования IDT CRISPR) с выбранным геномом C. elegans. Выберите руководство с высокой прогнозируемой эффективностью резки в цель и отсутствием высокорисковых нецелевых участков.
- Клонируйте последовательность gRNA в область между промотором U6 и гРНК-каркасом внутри плазмидного каркаста экспрессии CRISPR.
ПРИМЕЧАНИЕ: Проектные праймеры включают последовательность gRNA в виде навесов. Выполнить амплификацию ПЦР, а затем сборку на основе гомологичной рекомбинации — метод клонирования, независимый от лигации, который исключает расщепление ферментов рестрикции и позволяет одноступенчатое клонирование напрямую в экспрессионныйвектор 15. - Подтвердите правильную вставку с помощью секвенирования Сэнгера.
- Сконструировать донорскую плазмиду с помощью флуоресцентной метки, окружённой примерно 1 000 ударных пор слева и 1 000 ударных пор правой гомологии, полученной из целевого локуса.
ПРИМЕЧАНИЕ: Амплифицируйте гомологические руки из геномной ДНК N2, подготовленной в виде лизата червя с использованием пищеварения протеиназы K. Проектные праймеры с 15–20 п.п. перекрываются с линеаризованным векторным и флуоресцентным меткой. Соберите гомологические руки и подключите их к позвоночнику посредством гомологичной рекомбинации в одной реакции. Вставьте флуоресцентную метку сразу после стартового кодона ATG для маркировки N-терминала или перед стоп-кодом для маркировки C-терминала. Включите линкерную последовательность между целевой геном и флуоресцентной меткой для поддержания правильного сворачивания и функции белка. Используйте линкер для снижения стерических помех между партнёрами по слиянию и убедитесь, что и линкер, и тег вставлены в кадр вместе с последовательностью кодирования. Тщательно выбирайте место вставки, чтобы не нарушать известные или предсказанные функциональные домены, сигнальные пептиды или трансмембранные области (Дополнительный файл 1). - Вводите тихие замещения в донорскую гомологичную шаблонную последовательность для нарушения PAM или связывающей последовательности с направляющим без изменения белковой последовательности и предотвращения повторного удаления Cas9 после интеграции.
ПРИМЕЧАНИЕ: Включите синонимические точечные мутации в праймеры, используемые для амплификации гомологической руки, нацеленные на кодоны в области PAM. - Подтвердите целостность донорской последовательности как в гомологических рукавах, так и на меченых соединениях с помощью секвенирования Сэнгера.
ПРИМЕЧАНИЕ: Храните подтверждённые плазмиды при −20 °C для краткосрочного хранения или при −80 °C для длительного хранения.
3. Приготовьте инъекционную смесь
- Собрать инъекционную смесь, объединив плазмиду экспрессии CRISPR, донорскую плазмиду (построенную на основе pPD95.75) и маркеры для совместной инъекции в стерильном ddH₂O до конечного объёма 10 мкл при концентрациях, указанных в Таблице 1.
ПРИМЕЧАНИЕ: Эмпирически оптимизируйте концентрации для баланса читаемости маркеров, восстановления кандидатов и выживаемости после инъекции. - Центрифугуйте инъекционную смесь при 10 000 × г в течение 10–20 минут, чтобы гранулировать частицы и предотвратить закупорку капилляра микроинжекции.
| Компонент | Функция | Рабочая концентрация (ng/μL) |
| pDD162 | Плазмида CRISPR/Cas9 (экспрессия Cas9 и gRNA) | 50-100 |
| Донорская плазмида (позвоночник pPD95.75) | Шаблон донора HDR с флуоресцентной меткой, по бокам которой расположены гомологические руки размером ~1 кб | 50-100 |
| pRF4 | Маркер ко-инъекции (фенотип ролика) | 50-100 |
| pPD122.11 | Маркер ко-инъекции (экспрессия GFP) | 5-10 |
| СтерильныйddH 2O | Довести к финальному тому | – |
Таблица 1: Состав инжекционной смеси и функции плазмид. Инъекционная смесь содержит плазмиду CRISPR экспрессии, донорную плазмиду, pRF4 и pPD122.11 в указанных концентрациях, что обеспечивает общий объём 10 мкл.
4. Загрузить и подготовить иглу для инъекции
- Втягивайте стеклянные капилляры в микроинъекционные иглы с помощью иголочного вытягивателя, настроенного на длинный конус с острым концем, подходящим для гонадных инъекций.
ПРИМЕЧАНИЕ: Оптимизируйте параметры пуллера эмпирически. Примеры начальных параметров: тепло = 540, натяжение = 20, скорость = 100.
ВНИМАНИЕ: Обращайтесь с вытянутыми иглами аккуратно, чтобы избежать проколов. Используйте щипцы при работе с иглами и утилизируйте использованные иглы в контейнере для острого изделия. - Нагрейте микрокапиллярную пипетку и разломите её на две части, чтобы создать инструмент для загрузки.
ПРИМЕЧАНИЕ: Коммерческие насадки для загрузки могут использоваться в качестве альтернативы. - Прикрепите резиновую лампу аспиратора к широкому концу укороченной микрокапиллярной пипетки.
- Аспирировать примерно 1 мкл очищенной инъекционной смеси супернатант в погрузчик.
ПРИМЕЧАНИЕ: Точная объёмность не критична. Убедитесь, что раствор заполняет кончик иглы. - Вставьте загрузчик в заднюю часть иглы и аккуратно раздайте смесь для инъекций.
- Поставьте загруженную иглу горизонтально на 10 минут, чтобы раствор оседл ближе к кончику и подтвердил непрерывную колонку.
- Закрепите иглу на инъекционном микроскопе и приведите кончик в фокус с помощью яркой оптики.
- Откройте кончик иглы, аккуратно коснувшись его краем накладки в галоуглеродном масле, и проверьте поток.
ПРИМЕЧАНИЕ: Отрегулировать давление впрыска (30–80 psi), чтобы получить пузырь, примерно равный диаметру гонады, в пределах 1с 16.
5. Подготовьте червей к инъекции
ПРИМЕЧАНИЕ: Подготовьте пластины для среды роста нематод (NGM) и буфер M9, как было описановыше 17. Содержать червей на пластинах, засеянных Escherichia coli OP50 (далее OP50), и проводить инъекции на фоне N2.
- Отбирайте гермафродитов L4 из здоровой пластины и инкубируют при 20 °C в течение 10 часов, чтобы получить молодых взрослых людей с хорошо развитыми зародышевой линиями.
- Перенесите червей на незасеянную пластину, чтобы уменьшить перенос бактерий.
- Подготовьте сухую 2% агарозу на стеклянном стекле и нанесите каплю галоуглеродного масла.
- Перенесите червяка на подушечку агарозы с помощью щипателя ресниц.
- Обездвижите червя и ориентируйте гонаду для инъекции.
ВНИМАНИЕ: Завершите инъекции в течение 20–30 минут, чтобы предотвратить высыхание.
6. Проведите микроинъекцию гонады
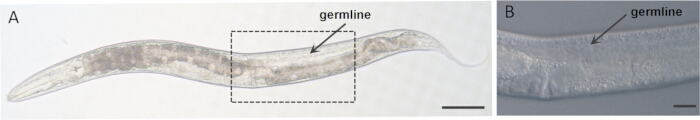
Рисунок 2: Локализация синцития дистальной гонады для микроинъекции у молодых взрослых C. elegans hermaphrodites. (A) Изображение с низким увеличением смонтированного молодого взрослого гермафродита. Видны обе гонады; Место инъекции указано для одной руки (стрелка) в качестве примера. Коробчатая область отмечает область, показанную при большем увеличении в панели B. (B) Вид дистальной гонады с большим увеличением DIC в панели A. Стрелка показывает положение инъекции в дистальной гонадальной синцитии, куда подаётся инъекционная смесь. Шкалы: 100 мкм (A) и 20 мкм (B). Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
- Найдите обездвиженного червя и идентифицируйте гонаду с помощью объекта с низким увеличением.
- Поместите иглу с помощью микроманипуляторных органов управления.
- Ориентируйте червя под углом 20–40° относительно иглы.
- Сосредоточьтесь на дистальной зародышевой линии с помощью увеличения.
- Продвигайте червя к игле и размещайте кончик внутри гонадального синцития (рисунок 2).
- Введите раствор и подтвердите появление по видимому отёку гонады.
ПРИМЕЧАНИЕ: Оптимизировать давление впрыска (30–80 psi), давление компенсации (0,1–0,5 psi) и длительность впрыска (0,1–0,3 с).
ВНИМАНИЕ: Избыточное давление или объём могут вызвать разрыв червя. - Вынимите иглу и переместите её для последующих инъекций.
ПРИМЕЧАНИЕ: Выполните одностороннюю инъекцию для максимизации выживаемости или двустороннюю инъекцию для повышения эффективности редактирования. - Добавьте буфер M9 для выпуска червей и перенесите каждого червя на отдельную пластину для восстановления.
- Повторные инъекции для 20–25 червей.
ПРИМЕЧАНИЕ: Замените иглу, если она засорится или повредится. - Инкубировать введённых червей при 20 °C в течение 2–3 дней для восстановления.
7. Проверьте кандидатов F1 для выявления положительных линий
- Проводите скрининг потомства F1 на коинъекционные маркеры и выбирайте животных, положительных к маркерам.
ПРИМЕЧАНИЕ: Примеры альтернативных флуоресцентных маркеров для совместной инъекции с разной специфичностью тканей и спектральными свойствами приведены в Дополнительной таблице 1.
ПРИМЕЧАНИЕ: Выбирайте животных, экспрессирующих оба маркера, для повышения надёжности. Отдавайте приоритет выводкам с высокой частотой маркеров («jackpot broods»). - Переложите каждого червя F1 на отдельную тарелку и дайте яйцам откладывать 1–2 дня.
- Лизируйте каждого червя F1 в буфере протеиназы K для подготовки ПЦР-шаблонов.
ПРИМЕЧАНИЕ: Сохраняйте лизаты при −80 °C, если не перерабатываются сразу. - Проведите ПЦР с переходом с использованием одного геномного праймера вне гомологического рукава и одного внутреннего праймера с меткой.
ПРИМЕЧАНИЕ: Сохраняйте соответствующие пластины животных с ПЦР-положительным F1.
8. Провести скрининг потомства F2 для выделения гомозиготных линий выбивания и подтверждения интеграции
- Изолировать потомство F2 из ПЦР-положительных линий F1 на отдельные пластины.
- Позволить червям F2 производить потомство и лизировать взрослых особей для генотипирования.
ПРИМЕЧАНИЕ: При необходимости храните лизаты при −20 °C. - Проведите ПЦР с использованием праймеров, расположенных по бокам гомологических рукавов, чтобы различать аллели дикого типа и knock-in по размеру продукта.
- Подтвердите правильную интеграцию с помощью секвенирования Сэнгера по обоим вставленным соединениям.
- Проверьте экспрессию и локализацию зародышевой флуоресценции с помощью флуоресцентной микроскопии.
- Расширяйте подтверждённые гомозиготные линии и поддерживайте запасы.
ПРИМЕЧАНИЕ: Cryopreserve верифицировали линии для долгосрочного хранения.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Результаты
Согласно протоколу, молодым взрослым гермафродитам гонадально вводились микроинъекции плазмиды CRISPR/Cas9 (pDD162), донора плазмиды с кодированием GFP-метки knock-in, окружённой гомологическими рукавами около 1 кб (pPD95.75), а также маркерами для совместной инъекции (pRF4 и pPD122.11). Ген-мишень, обогащённый зародышевой линией, был использован в качестве репрезентативного примера для создания стабильного, гомозиготного knock-in аллеля, который сообщает о локализации белка под нативным...
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Обсуждение
Этот рабочий процесс предназначен для генерации стабильных, гомозиготных линейных «knock-in», в которые на эндогенном локусе вводится флуоресцентная метка для отчёта о локализации белков под нативнымрегуляторным контролем 5,6,7,8,9,10. На практике успех лучше всего оценивать по последовательн...
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Раскрытие информации
Авторам нечего раскрывать.
Благодарности
Эта работа была поддержана грантами от Национальной программы ключевых исследований и разработок Китая (2023YFA1801100 — L.M.), Фонда естественных наук Китая (32400698 до П.В., 32270774 до Л.М.).
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Агар | Beijing Lablead Biotech Co., Ltd. | QZ02 | Компонент для приготовления агар-агар блюд с низким содержанием гепа (NGM) |
| Агароза | NOVON | ZZ14011 | Приготовление 2% агарозных подложек |
| Caenorhabditis elegans штамм N2 | Caenorhabditis Genetics Center (CGC) | Штамм для инъекций | |
| Центрифуга | Eppendorf | 5425 | Очистка смеси для инъекции |
| Холестерин | Beijing Chemical Reagents Company | 57-88-5 | Компонент для приготовления агар-агар блюд с низким содержанием гепа (NGM) |
| Ко-инъекционный маркерный плазмид rol-6 (su1006) (pRF4) | Guangshuo Ou Lab | Маркер роллера для обогащения кандидатов | |
| Конфокальный микроскоп | ZEISS | LSM880 + Airyscan | Проверка экспрессии/локализации GFP |
| Ди-калий фосфат (K2HPO4) | Sinapharm | CAS: 7758-11-4 | Компонент для приготовления агар-агар блюд с низким содержанием гепа (NGM) |
| Ди-натрий фосфат (Na2HPO4) | Sinapharm | CAS: 7558-79-4 | Компонент для приготовления буфера M9 |
| Молекула ДНК-лестницы | Mei5 Biotechnology, Co., Ltd. | MF288-01 | Размерная шкала для агарозных гелевых электронфорезов |
| Донорная плазмидная основа (pPD95.75) | Addgene | 1494 | Основа для построения донора HDR |
| Электрофорезная система | Beijing Liuyi Biotechnology Co., Ltd. | 112-0630 | Разделение ампликонов ПЦР на агарозных гелях для скрининга соединений и генотипирования зиготности |
| Escherichia coli OP50 штамм | Caenorhabditis Genetics Center (CGC) | Питание для червей | |
| Флуоресцентный маркерный плазмид для ко-инъекции (pPD122.11) | Fire Lab | GFP со-маркер для обогащения кандидатов | |
| Флуоресцентный стереоскопический микроскоп | SOPTOP | SZX12-HT | Просмотр живых червей на наличие флуоресцентных маркеров для ко-инъекции |
| GelRed окраска нуклеиновых кислот для гелевого электронфореза | Mei5 Biotechnology, Co., Ltd. | MF079-plus-01 | Визуализация ДНК-полос |
| Стеклянные капилляры | World Precision Instruments | 1B100F-4 | Используются с пуллером для изготовления игл для инъекции |
| Галоуглеродное масло 700 | Sigma-Aldrich | H8898-50ML | Предотвращение высыхания во время инъекции |
| Инкубатор | Wuhan Ruihua Instrument & Equipment Co., Ltd. | HP400S | Поддержание червей при стандартной температуре |
| Сульфат магния (MgSO4) | Sinapharm | CAS: 7487-88-9 | Компонент для приготовления агар-агар блюд с низким содержанием гепа (NGM) и буфера M9 |
| Микропипетки | KIMBLE | 71900-50 | Нагреваются и разламываются для создания инструмента загрузки |
| Микроинжектор | Eppendorf | FemtoJet 4i | Подача управляемых импульсов давления смеси для инъекции в дистальную гонаду через иглу для микроинъекции (запуск с помощью педали) |
| Крышки для микроскопа | Fisherbrand | 12545A 22×30-1 | Приготовление 2% агарозных подложек для монтирования и иммобилизации червей во время микроинъекции; открытие кончиков игл для инъекции против края предметного стекла |
| Микроскоп для микроинъекции | ZEISS | Axio Observer.A1 | Инъекционный микроскоп |
| Пуллер для изготовления игл | Sutter Instrument Company | Model P97 | Изготовление стеклянных капилляров в иглы для инъекции |
| Термоциклер для ПЦР | Bio-Rad | C1000 Touch Thermal Cycler | Амплификация ПЦР |
| pDD162 (Peft-3::Cas9 + Пустая sgRNA) | Addgene | 47549 | Экспрессия Cas9 + sgRNA |
| Пептон | Gibco | 308723 | Компонент для приготовления агар-агар блюд с низким содержанием гепа (NGM) |
| Дикалий фосфат (KH2PO4) | Sinapharm | CAS: 7778-77-0 | Компонент для приготовления агар-агар блюд с низким содержанием гепа (NGM) и буфера M9 |
| Натрий хлорид (NaCl) | Sinapharm | CAS: 7647-14-5 | Компонент для приготовления агар-агар блюд с низким содержанием гепа (NGM) и буфера M9 |
| Стереоскоп | Motic | K400L | Подбор и монтирование червей на агарозных подложках и выполнение шагов восстановления после инъекции |
Ссылки
- Corsi, A. K., Wightman, B., Chalfie, M. A transparent window into biology: a primer on Caenorhabditis elegans. Genetics. 200 (2), 387-407 (2015).
- Pazdernik, N., Schedl, T. Introduction to germ cell development in Caenorhabditis elegans. Adv Exp Med Biol. 757, 1-16 (2013).
- Ebbing, A., et al. Spatial transcriptomics of C. elegans males and hermaphrodites identifies sex-specific differences in gene expression patterns. Dev Cell. 47 (6), 801-813.e6 (2018).
- Li, L., et al. Spatiotemporal single-cell architecture of gene expression in Caenorhabditis elegans germ cells. Cell Discov. 11 (1), 26 (2025).
- Mello, C. C., Kramer, J. M., Stinchcomb, D., Ambros, V. Efficient gene transfer in C. elegans: extrachromosomal maintenance and integration of transforming sequences. EMBO J. 10 (12), 3959-3970 (1991).
- Kelly, W. G., Fire, A. Chromatin silencing and the maintenance of a functional germline in Caenorhabditis elegans. Development. 125 (13), 2451-2456 (1998).
- Robert, V. J., Sijen, T., van Wolfswinkel, J., Plasterk, R. H. A. Chromatin and RNAi factors protect the C. elegans germline against repetitive sequences. Genes Dev. 19 (7), 782-787 (2005).
- Merritt, C., Seydoux, G. Transgenic solutions for the germline. WormBook. , 1-21 (2010).
- Frøkjær-Jensen, C., et al. Single-copy insertion of transgenes in Caenorhabditis elegans. Nat Genet. 40 (11), 1375-1383 (2008).
- Vallin, E., et al. A genome-wide collection of Mos1 transposon insertion mutants for the C. elegans research community. PLoS One. 7 (2), e30482 (2012).
- Dickinson, D. J., Ward, J. D., Reiner, D. J., Goldstein, B. Engineering the Caenorhabditis elegans genome using Cas9-triggered homologous recombination. Nat Methods. 10 (10), 1028-1034 (2013).
- Friedland, A. E., et al. Heritable genome editing in C. elegans via a CRISPR-Cas9 system. Nat Methods. 10 (8), 741-743 (2013).
- Nance, J., Frøkjær-Jensen, C. The Caenorhabditis elegans transgenic toolbox. Genetics. 212 (4), 959-990 (2019).
- Wang, P., et al. Protocol for CRISPR-Cas9-mediated genome editing to study spermatogenesis in Caenorhabditis elegans. STAR Protoc. 4 (4), 102720 (2023).
- Khan, A. A., et al. A highly efficient ligation-independent cloning system for CRISPR/Cas9-based genome editing in plants. Plant Methods. 13, 86 (2017).
- Ghanta, K. S., Ishidate, T., Mello, C. C. Microinjection for precision genome editing in Caenorhabditis elegans. STAR Protoc. 2 (3), 100748 (2021).
- Rieckher, M., Tavernarakis, N. Caenorhabditis elegans microinjection. Bio Protoc. 7 (19), e2584 (2017).
- Medley, J. C., Hebbar, S., Sydzyik, J. T., Zinovyeva, A. Y. Single nucleotide substitutions effectively block Cas9 and allow for scarless genome editing in Caenorhabditis elegans. Genetics. 220 (1), iyab199 (2022).
- Berkowitz, L. A., Knight, A. L., Caldwell, G. A., Caldwell, K. A. Generation of stable transgenic C. elegans using microinjection. J Vis Exp. (18), e833 (2008).
- Shaner, N. C., et al. A bright monomeric green fluorescent protein derived from Branchiostoma lanceolatum. Nat Methods. 10 (5), 407-409 (2013).
- Bajar, B. T., et al. Improving brightness and photostability of green and red fluorescent proteins for live cell imaging and FRET reporting. Sci Rep. 6, 20889 (2016).
- Bindels, D. S., et al. mScarlet: a bright monomeric red fluorescent protein for cellular imaging. Nat Methods. 14 (1), 53-56 (2017).
- He, S., Cuentas-Condori, A., Miller, D. M. NATF (native and tissue-specific fluorescence): a strategy for bright, tissue-specific GFP labeling of native proteins in Caenorhabditis elegans. Genetics. 212 (2), 387-395 (2019).
- Paix, A., Folkmann, A., Seydoux, G. Precision genome editing using CRISPR-Cas9 and linear repair templates in C. elegans. Methods. 121-122, 86-93 (2017).
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Перепечатки и разрешения
