Этот протокол описывает рекомбинантное производство и очистку гидрофобина SC16 из Escherichia coli и предоставляет флуоресцентные анализы для мониторинга его самосборки.
Методическая статья
Рекомбинантное производство и очистка гидрофобина SC16 из Escherichia coli и мониторинг его самосборки с помощью флуоресцентных анализов
В этой статье
Краткое содержание
Аннотация
Гидрофобины — это небольшие амфипатические белки, которые самособираются на гидрофобно-гидрофильных границах, образуя стабильные водонепроницаемые покрытия на грибковых спорах. Гидрофобины класса I образуют особенно устойчивые «стержни», содержащие упорядоченные амилоидные структуры, покрывающие поверхности. Эта необычная поверхностная химия даёт им потенциальные применения в доставке лекарств, стабилизации пенопласта, эмульгации и модификации поверхности. Для получения гидрофобинов необходимы комплексные, высокоэффективные протоколы из простых экспрессионных систем. Кроме того, необходимо предоставить простые методы характеристики функции гидрофобина после производства и очистки рекомбинантов. Здесь мы описываем протоколы производства и характеристики SC16 — гидрофобина класса IB, вырабатываемого грибом Schizophyllum commune, который может рекомбинантно экспрессироваться в Escherichia coli и затем очищаться в нередуцирующих, естественных условиях. Это включает преобразование экспрессионной плазмиды, кодирующей SC16, сросшейся с N-терминальным синтезным белком, в E. coli, индукцию экспрессии белков, лизис клеток в нативных условиях, аффинитную хроматографию и расщепление протеазы для выделения гидрофобина при выходе ≥5 мг. Самосборка SC16 затем может контролироваться с помощью конечной точки или кинетических флуоресцентных анализов с использованием тиофлавина T. Оба анализа включают инкубацию SC16 с продолжительным смешиванием для стимулирования самосборки на границах воздух–вода и контролируются с помощью флуоресцентных измерений. Вместе эти подходы обеспечивают упрощённые протоколы очистки SC16 и мониторинга его самосборки и могут быть распространены на другие системы с аналогичной самосборкой белков.
Введение
Гидрофобины — это поверхностно активные амфипатические белки, выделяемые грибами и которые самособираются на гидрофобно-гидрофильных границах (например, на интерфейсах воздух–вода на грибных структурах). В природе их роль заключается в покрывании спор и плодовыхтел 1,2, делая их водостойкими, предотвращая затопление воздушных каналов и способствуяраспространению 1. Благодаря своей необычной поверхностной химии гидрофобины имеют разнообразные промышленные применения, включая покрытия для повышения биосовместимости имплантатов ипротезов 3,4,5, биосовместимые поверхностно-активные вещества для доставки лекарств и медицинских процедур 6,7,8,9,10, а также кандидатов для захвата нанопластика11.
Гидрофобины можно разделить на классы I и класс II, оба из которых самособираются на границах гидрофобных и гидрофильных связей, включая интерфейсы воздух–вода, масло–вода 12,13,14 и пластик–вода 15,16,17. Определяющей особенностью гидрофобинов класса I является их высокоустойчивые структуры типа «палочки» на интерфейсах, содержащие упорядоченные амилоидные (β-слойно-насыщенные) особенности18, что делает их особенно подходящими для приложений, связанных с модификацией или защитой поверхности. В отличие от этого, гидрофобины класса II не образуют амилоидные структуры, а образуют пленки, которые легко диссоциируются 1,18. Интересно, что существует и третий класс гидрофобинов, с структурными особенностями, сохранившимися из классов I и IIклассов 18,19. Из-за этих различий мониторинг самосборки гидрофобина важен для классификации и оценки правильного сворачивания и функции рекомбинантно образующихся гидрофобинов.
Самосборка гидрофобинов легко контролируется флюорометрическими методами с использованием амилоидно-связывающих красителей, таких как тиофлавин T (ThT), который связывается с перекрёстными β структурами, присутствующими вамилоидах 20. ThT содержит одну ковалентную связь, разделяющую два ароматических кольца, которые обычно свободно вращаются. При связывании с перекрёстными β структурами это вращение становится ограниченным, что приводит кфлуоресценции 20. Благодаря своей селективной флуоресценции ThT широко используется для мониторинга самосборки гидрофобина на границах воздух–вода 21, 22, 23, 24, 25, 26, 27, 28. ThT-анализы предоставляют кинетическую информацию, зависящую от времени, о самосборкегидрофобина 23,27,28, что даёт преимущества по сравнению с такими методами, как атомно-силовая микроскопия (AFM) и измерения углов контакта, которые имеют меньшую пропускную способность и менее подходят для анализа, зависящего от времени. Кроме того, ThT демонстрирует сильное усиление флуоресценции при связывании с перекрестными β структурами, с минимальным флуоресценцией в свободнойформе 20. Эти свойства делают ThT-анализы простыми и чувствительными методами мониторинга самосборки гидрофобина, что может быть дополнено более интенсивными структурными методами.
Учитывая разнообразие применений гидрофобинов, необходимы доступные протоколы для мониторинга их самосборки. В частности, данный протокол предоставляет основу для оптимизации очистки и функциональной характеристики рекомбинантных гидрофобинов. Ранее Моррис и Сунде (2013) изложили протоколы рекомбинантной экспрессии у Escherichia coli, очистки и мониторинга гидрофобина на основе ThTсамосборки 21. Эта работа расширяет эти методы, описывая модифицированную процедуру очистки гидрофобина SC16. SC16 — это гидрофобин класса I (из Schizophyllum commune), который легко очищается от E. coli без необходимости денатурации, восстановления или повторного окисления дисульфидных связей. Полученный белок SC16 является функциональным, что демонстрируется в анализах на основе концевой точки и кинетической самосборки на основе ThT, контролирующих формирование стержнецов. Цель этой статьи — подробно изложить комплексный и упрощённый протокол для рекомбинантного производства, очистки и функциональных анализов на основе ThT класса IB гидрофобина SC16.
Протокол
В данном исследовании не участвуют люди, позвоночные животные или отбор образцов тканей. Поэтому этическое одобрение не требовалось.
1. Экспрессия гидрофобина SC16 в E. coli
- Трансформировать клетки SHuffle T7 Express E. coli с помощью теплового шока при 42°C в течение 45 секунд с использованием плазмиды pET-21, кодирующей домен B1 белка G, помеченный гексахистидином, слившийся с SC16 (H-GB1-SC16).
ПРИМЕЧАНИЕ: Клетки SHuffle T7 Express были выбраны за их способность способствовать правильному формированию дисульфидныхсвязей 29. Плазмида H-GB1-SC16 может быть сгенерирована путем рестрикционного клонирования ферментов, как описановыше 30. - Инокуляция 2 мл лизогенного бульона (LB), содержащего 100 мкг мл−1 ампициллина с одной колонией. Инкубировать на ночь при 37°C с встряхиванием.
- Инокулятируйте 1 л LB (в колбу с круглым дном объёмом 2,8 л) 1 мл ночной культуры. Выращивайте культуру при 37°C с встряхиванием (~120–135 об/мин, круговая орбита 19 мм) до достижения оптической плотности на 600 нм до 0,6 ± 0,1.
- Добавьте изопропил-β-D-1-тиогалактопиранозид к конечной концентрации 0,5 мМ для индуцирования экспрессии H-GB1-SC16. Инкубировать ночь при 20°C с встряхиванием.
ПРИМЕЧАНИЕ: Эта температура была выбрана для снижения риска формирования инклюзивного тела и неправильногоскладывания 31. - Собирайте клетки центрифугой при 4000 × г в течение 20 минут. Вылейте супернатант.
ТОЧКА ПАУЗЫ: Храните клеточную гранулу при −20°C до 3 недель перед очисткой. Избегайте повторяющихся циклов заморозки и оттаивания.
2. Очистка гидрофобина SC16
- Ресуспендировать клеточную гранулу в 30 мл буфера лизиса (20 мМ трис(гидроксиметил)аминометан [Tris], pH 8, 250 мМ NaCl).
- Лизируйте клетки, инкубировав суспензию в водяной бане при температуре 80°C в течение 15 минут. Аккуратно перемешивайте каждые 5 минут во время инкубации.
ПРИМЕЧАНИЕ: Этот этап основан на термостабильности SC16 и может быть неподходящим для других белков.
ВНИМАНИЕ: Используйте термостойкие перчатки при работе с трубками и водяными банями при 80°C. Избегайте разбрызгивания горячей жидкости во время смешивания и снятия трубки. - Центрифугуйте лизат клетки при 25 000 × г в течение 20 минут при 4°C. Загрузите супернатант на гравитационный столб, содержащий смолу иммобилизированной металлической хроматографии (IMAC) с зарядом Ni2+ объемом 2–3 мл.
- Промыйте колонку лизисным буфером с содержанием имидазола 30 мм. Элютный белок с использованием 10 мл лизисного буфера, содержащего 300 мМ имидазола.
- Диализировать элюированную фракцию с 1 л буфера с Tris (pH 8; 20 мМ) и NaCl (50 мМ) в течение 3 часов с использованием трубки молекулярного среза диализа с 3500 кДа, перемешивая при 100 об/мин.
ПРИМЕЧАНИЕ: Скорость перемешивания во время диализа может варьироваться в зависимости от конфигурации (например, объёма трубки и геометрии стаканов). Перемешивайте на минимальном обороте, необходимом для аккуратного вращения сумки для диализа. - Добавьте тромбин-протеазу (20 U мг−1 синтезный белок) непосредственно в диализную сумку (общий объём реакции 10 мл), чтобы расщепить белок. Замените буфер.
ТОЧКА ПАУЗЫ: После добавления протеазы и замены буфера продолжайте диализ ночью при 4°C. На следующий день возобновляю очищение. Проверьте завершение расщепления SDS-PAGE (ожидается исчезновение диапазона ~18 кДа и появление полос на ~10 и ~8 кДа). - Перезагрузите диализованный образец на колонку IMAC с Ni2⁺. Промывайте и элюируйте примерно по 12 мл буфера, содержащего 30 мМ и 300 мМ имидазола соответственно.
- Анализировать собранные фракции с помощью электрофореза гель натрия додецилсульфата и полиакриламида (SDS-PAGE) в редукционных условиях (с использованием β-меркаптоэтанола в буфере нагрузки). Определите SC16 по наличию полосы в фракции промыва при ожидаемой молекулярной массе (~10 кДа). Полностью диализировать фракцию промывки, содержащую SC16, с 1 л буфера, содержащего Tris (pH 8; 20 мМ) и NaCl (50 мМ) в течение 3 часов, чтобы удалить остаточный имидазол.
ПРИМЕЧАНИЕ: SC16 обычно обнаруживается в фракции промывания, тогда как H-GB1 обычно обогащается элуатом. В элуате также может присутствовать небольшое количество остаточного SC16. - Количественно оценить SC16 выбранным методом (например, анализ аминокислот с помощью высокоэффективной жидкостной хроматографии, анализ Брэдфорда или поглощение при 280 нм). При этом методе ожидается урожайность ≥5 мг SC16 с литра культуры.
ПРИМЕЧАНИЕ: Наша группа регулярно количественно оценивает SC16 с помощью поглощения на 280 нм, используя прогнозируемый коэффициент вымирания 3480 М−1 см−1 32 . Это предпочтительный метод количественной оценки SC16 благодаря своей простоте. - Собирайте образцы на протяжении всей очистки для анализа SDS-PAGE.
3. Флуоресцентный анализ концевой точки самосборки SC16
- Приготовьте тройные реакционные смеси, содержащие 50 мкг мл−1 SC16, 50 мМ NaCl и 20 мМ каждая из 2-(N-морфолино)этансульфоновой кислоты (MES), трис и натриевого фосфата. Заранее подготовьте запасной буфер, содержащий MES, Tris и фосфат натрия, отрегулированный до итогового pH 6,5 путём капельного добавления концентрированного HCl или 1 M NaOH. Добавьте белок и NaCl непосредственно перед началом анализа.
ПРИМЕЧАНИЕ: На этом этапе можно подготовить органы управления. Например, включите положительные элементы управления, содержащие SC16, которые не подвергаются вращению от конца к концу, и отрицательные элементы, содержащие только буфер. Были протестированы концентрации SC16 от 25 до 100 мкг мл−1 , наиболее стабильные результаты составляли 50 мкг мл−1. Оптимизируйте этот параметр по необходимости. - Переложите смеси в трубки объёмом 2–5 мл.
ПРИМЕЧАНИЕ: Убедитесь, что пробирка заполнена до 50% для правильного смешивания при инверсии. - Поворачивайте лампы с концом в сторону на 20 об/мин в течение 2 часа. Переложите 100 мкл каждого образца в чёрную 96-колодную пластину с непрозрачным дном и круглыми дымоходными колодцами.
- Добавьте фильтрованный ThT к конечной концентрации 20 мкм во все образцы.
- Установите считыватель микропластин на длины волн возбуждения и излучения в соответствующем диапазоне для флуоресценцииThT: 33,34,35,36. Установить коэффициент усиления на 55, а время интеграции — на 20 мкс. Измерьте интенсивность флуоресценции для каждого образца сразу после двухчасового периода вращения.
ПРИМЕЧАНИЕ: Заявленные максимумы возбуждения и излучения ThT составляют соответственно 450 нм и 490 нм37. В этом эксперименте использовались значения возбуждения и излучения 438 и 494 нм соответственно, исходя из доступности оптического фильтра. Вращение от конца до конца осуществлялось с помощью искусственного устройства вращения.
4. Кинетический флуоресцентный анализ самосборки SC16
- Приготовьте тройные реакционные смеси по 100 мкл в чёрной пластине на 96 лунок.
- Включайте 50 мкг мл−1 SC16, 50 мМ NaCl, 20 мкм фильтрованного ThT и по 20 мМ MES, Tris и фосфата натрия. Подготовьте отрицательные контроли, содержащие только ThT и буфер (без SC16).
- Отрегулировать pH буфера (содержащего Tris, MES и фосфат натрия) до 5,5, 6,5, 7,5 или 8,5 с использованием концентрированного HCl или 1 M NaOH перед добавлением SC16 и ThT. Система смешанного буфера позволяет корректировать pH без изменения идентичности буфера.
- Поставьте пластину в считыватель микропластин.
- Установите длины волн возбуждения и излучения в соответствующем диапазоне для флуоресценцииThT: 33,34,35,36.
- Запрограммируйте считыватель для циклических измерений каждые 70 секунд.
- Включайте 60 секунд орбитального колебания при 432 об/мин, затем 10 секунд отдыха за цикл.
- Установите время интеграции на 20 мкс, а усиление — на 55.
- Проведите анализ в течение 120 циклов, чтобы отслеживать изменения флуоресценции в течение 2 часов встряхивания.
ПРИМЕЧАНИЕ: Убедитесь, что выбрано орбитальное встряхивание; Линейное встряхивание может привести к непоследовательным или неоптимальным результатам самосборки.
Результаты
На рисунке 1 представлен гель SDS-PAGE с окрашенным Кумасси, отслеживающий очистку SC16. Коды представляют маркер (M), до индукции (B), после индукции (A), растворимую фракцию (S), проток через воду (F), промывку (W), элуат (E) и диализированную (D). В первом элюате IMAC полоса с оценочной молекулярной массой ~18 кДа соответствует белку H-GB1-SC16 до расщепления тромбина. После расщепления с тромбином во второй проточной фракции IMAC нет белка, а в прошивке есть полоса ~10 кДа, соответствующая SC16. Во втором IMAC-элюате содержится остаток SC16 и меньший белок с объёмом ~8 кДа, соответствующий H-GB1. Очищенный SC16 затем использовался для анализов на конечную и кинетическую самосборку. Эти результаты подтверждают успешную очистку SC16, что подтверждается наличием ожидаемой зоны молекулярной массы и отделением партнёра по слиянию H-GB1 после расщепления тромбина.
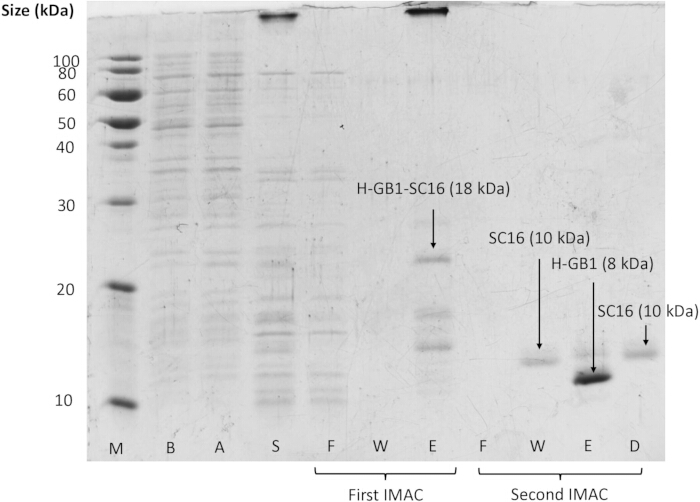
Рисунок 1. Анализ SDS-PAGE очистки SC16 для первого (до расщепления тромбина) и второго (после расщепления тромбина) разделений IMAC . Показан маркер молекулярной массы (M), образцы, собранные до индукции (B), после индукции (A), клеточный лизисный супернатант (S), проток (F), промывка (W) и элуат (E), а также диализованный образец (D). Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
Конечный анализ ThT-анализа самосборки SC16, представленный в таблице 1, показывает 11-кратное увеличение интенсивности флуоресценции ThT после 2 часа вращения на столе по сравнению с белксодержащими контролями, которые не были вращены. Аналогично, мы не наблюдаем значительных изменений интенсивности флуоресценции при вращении буферных образцов. Это увеличение флуоресценции ThT при возбуждении SC16 свидетельствует о формировании амилоидных β-листов, которые свидетельствуют о самосборке SC1624,25. Эти результаты показывают, что описанный флуоресцентный анализ эффективно контролирует самосборку SC16 в испытанных условиях.
| Образец | ThT флуоресценция (считает ± SD) |
| SC16 без вращения | 2679 ± 177 |
| SC16 после ротации | 30315 ± 2141 |
| Буфер после вращения | 665 ± 888 |
Таблица 1. Измерения флуоресценции ThT, собранные после вращения образцов SC16 от конца до конца. Образцы SC16 (50 мкг мл−1) либо инкубировали без перемешивания, либо подвергались вращению в течение 2 часа. ThT (20 мкм) был добавлен до проведения флуоресцентных измерений. Флуоресценция измерялась на длинах волн возбуждения и излучения 438 и 494 нм соответственно и сообщается как исходные подсчёты. Значения представлены как среднее ± стандартное отклонение (SD).
Кинетический самосборочный анализ SC16 при перемешивании в различных буферах в течение нескольких часов представлен на рисунке 2. Типичные S-образные кинетические самосборочные кривые для амилоидной фибрилляции включают характерные периоды задержки, роста иплато 38. Для SC16 значительного периода задержки при начальных показаниях не наблюдается, хотя такое поведение зафиксировано и для других гидрофобинов, таких какEAS 21,23. Кривые самосборки для каждого pH сопоставимы, с сильными, положительными наклонами, соответствующими формированию родлетов. Примерно через 20 минут перемешивания интенсивность флуоресценции застывает, а затем постепенно сужается. В контрольных образцах без SC16 в ходе эксперимента не наблюдается существенных изменений флуоресценции.
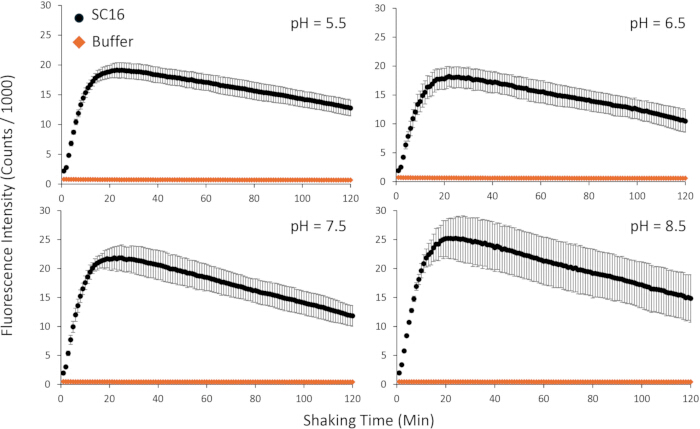
Рисунок 2. Кривые самосборки SC16 измерялись с помощью кинетического ThT-флуоресцентного анализа. SC16 был подготовлен с концентрацией 50 мкг мл−1 в многокомпонентном буфере, содержащем 20 мкм ThT, 50 мМ NaCl, 20 мМ фосфата натрия, 20 мМ MES и 20 мМ Tris. Измерения проводились после 60 секунд орбитального колебания и 10 секунд периода отдыха. Ось x обозначает время встряхивания (всего 2 ч). Флуоресценция измерялась с использованием длин волн возбуждения и излучения 438 нм и 494 нм соответственно, и сообщается × 10−3. Полоски ошибки обозначают стандартное отклонение (n = 3). Панели соответствуют pH 5,5 (верхний левый), 6,5 (верхний правый), 7,5 (внизу слева) и 8,5 (внизу справа). Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
Рисунок 3 показывает пример субоптимальных результатов для кинетического самосборочного теста. В данном случае анализ был выполнен так, как описано в разделе протокола, но с использованием «линейной» встряхивания вместо «орбитальной» встряхивания.
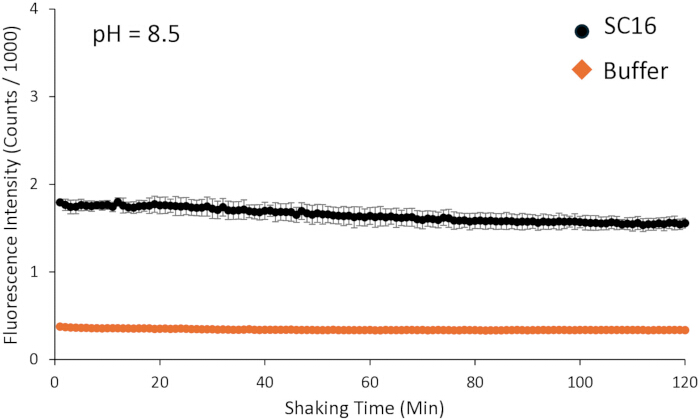
Рисунок 3. Пример данных о субоптимальной кинетической самосборке SC16, полученных с помощью кинетического флуоресцентного анализа ThT. В этом случае встряхивание осуществлялось с помощью линейной настройки вместо орбитального встряхивания. Образцы были подготовлены так, как описано для рисунка 2. Измерения проводились после 60 секунд линейного встряхивания и 10 секунд периода отдыха. Ось x обозначает время встряхивания (всего 2 ч). Флуоресценция измерялась с помощью длин волн возбуждения и излучения 438 нм и 494 нм соответственно, и сообщается × 10−3. Полоски ошибки обозначают стандартное отклонение (n = 3). Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
Обсуждение
Здесь мы обобщаем протоколы экспрессии и очистки гидрофобина SC16, а также низкопроизводительных и высокопроизводительных флуоресцентных тестов самосборки SC16, каждый из которых имеет свои преимущества и недостатки. Эти рабочие процессы могут применяться к смежным системам для мониторинга самосборки белка. В этом протоколе тепло используется для лизирования клеток перед очисткой SC16, в отличие от большинства протоколов, которые используют более традиционные методы лиза E. coli. Мы обнаружили, что H-GB1-SC16 растворим и термоустойчив до 80°C, а тепловой лизис служит начальным этапом очистки образца путём осаждения нетермоустойчивых протеаз и других загрязняющих белков внутри лизатаклетки 39. Однако SC16 представляет собой особый случай, так как гидрофобины часто экспрессируются нерастворимо в включающихтелах 12,21,40. При выражении в виде тел включения обычно требуются условия денатурирования, после чего следует повторное сворачивание по установленнымпротоколам 21,40,41.
В этом протоколе SDS-PAGE используется для оценки очистки SC16 на каждом этапе, включая клеточную гранулу до и после индукции, растворимую фракцию после лизиса клетки и все последующие столбчатные дроби. Это иллюстрируется на рисунке 1; однако по сравнению с H-GB1 диапазон, соответствующий SC16, относительно слабый. Мы обнаружили, что для многих гидрофобинов, включая SC16, достижение регулярного и интенсивного окрашивания Coomassie является сложной задачей. SC16 обычно проявляется как полоса средней интенсивности, когда β-меркаптоэтанол используется в качестве восстанавливающего агента (см. рисунок 1). В некоторых случаях может потребоваться серебряное окрашивание для более чёткого визуализации гидрофобинов.
Для мониторинга самосборки SC16 можно использовать тесты на конечную и кинетическую флуоресценцию. Анализ ThT на конечной точке полезен, поскольку обеспечивает быструю и простую оценку самосборки. Помимо усиления флуоресценции после 2 часа вращения на столе, самосборка часто сопровождается видимой белой мутностью в реакционной трубке. В этом анализе используется простой настольный ротатор для смешивания, что минимизирует износ компонентов считывателя микропластин. По нашему опыту, этот анализ относительно нечувствителен к инструментальным параметрам, таким как настройки встряхивания в считывателе микропластин.
Кинетический ThT-анализ даёт более подробную информацию о самосборке. Например, самосборка SC16 не сильно зависит от буферныхусловий 24, хотя при более высоких значениях pH наблюдается большая вариация между репликатами. Однако такое поведение не является универсальным среди гидрофобинов, и такие факторы, как концентрация соли,pH 24,27,42 и добавки (например, моющие средства или спирты), влияют на самосборку гидрофобина 27,28. Например, гидрофбин SLH4 демонстрирует более эффективную самосборку при низкой ионной прочности и низкомpH 24, тогда как самосборка HFBII сообщается как независимая от pH и концентрацииэлектролита 42, аналогично SC16. Другие исследования коррелировали влияние добавок на образование стержней с изменениями поверхностногонатяжения 27,28. Учитывая эти различия, важно учитывать состав буфера и pH для каждой системы, а также отслеживать их влияние на кривую самосборки, включая фазу задержки, рост и плато.
Важным ограничением является то, что кинетический ThT-анализ очень чувствителен к инструментальным параметрам считывателя микропластин и может варьироваться в зависимости от прибора. Например, наблюдается существенная разница в самосборке SC16 между орбитальными (круговое движение) и линейными (вперёд-назад) настройками тряски (рисунок 2 и рисунок 3 соответственно). Хотя тесты на основе ThT обеспечивают эффективный метод моделирования самосборки гидрофобина, они имеют врождённые ограничения из-за переменной селективности, что может приводить к ложноположительным или ложноотрицательнымсигналам 43. Кроме того, рассеяние света от гидрофобинных агрегатов может влиять на измеренную флуоресцентнуюинтенсивность 44, снижая точность измерений. Разбавление образца и уменьшение длины пути могут помочь смягчить эти эффекты.
Изложенные здесь протоколы предоставляют эффективные методы очистки и мониторинга самосборки SC16. Конечный анализ прост и менее зависит от инструментов, тогда как кинетический анализ предоставляет подробную временную информацию, хотя и с большей чувствительностью к инструментальным параметрам. Этот протокол описывает простой подход к очистке SC16 и может быть применим к другим правильно свернутым гидрофобинам, экспрессируемым в E. coli. Хотя описанные ThT-анализы имеют врождённые ограничения, они предоставляют доступную временно-зависимую информацию о самосборке по сравнению с такими методами, как AFM или только измерения контактного угла. Эти рабочие процессы могут быть адаптированы для родственных белков и особенно актуальны для приложений в разработке биоматериалов, доставке лекарств и других областях, где важно понимание самосборки белка.
Раскрытие информации
Авторы не заявляют о конкурирующих финансовых или нефинансовых интересах.
Благодарности
Авторы признают финансирование от Фонда New Frontiers in Research (Exploration Stream; NFRFE-2023-00322) и Совета по естественным наукам и инженерным исследованиям Канады (NSERC; Discovery Grant; RGPIN-2024-06440). IED поддерживается стипендией Канады для выпускников — магистерской программой (NSERC). RH получает поддержку от доноров Molly Appeal через программу аспирантуры Медицинского факультета Далхаузи 2024 года и стипендию для аспирантов Новой Шотландии (докторская степень).
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| 2-(N-морфолино)этансульфоновая кислота (MES) | Sigma-Aldrich | 145224-94-8 | Компонент буфера для анализов самосборки |
| 5 мл круглодонная полистирольная пробирка | Falcon | 352054 | Используется для анализов самосборки с низкой пропускной способностью |
| 96-лунная черная полистирольная микропластина | Grenier | 655076 | Используется для флуоресцентных измерений в микропластиночном считывателе |
| Раствор акриламид/бисакриламид (29:1) (40%) | BioShop | ACR004.500 | Используется для приготовления гелевых систем SDS-PAGE |
| Агар | BioShop | AGR002.1 | Агар, используемый для изготовления LB-пластин, устойчивых к ампициллину |
| Ампициллин | IBI Scientific | IB02040 | Антибиотик, используемый в LB-агарных пластинках |
| 2,8-литровые колбы Фернбаха с балластами | Fisher Scientific | 955239 | Используется для роста культур бактерий в больших объемах |
| β-меркаптоэтанол | TCI Chemicals | 60-24-2 | Восстановитель, используемый при подготовке образцов для SDS-PAGE |
| Колонка (гравитационная колонка с диаметром 1,5 см) | Bio-Rad | 7371522 | Используется для очистки по никелю |
| Диализный шланг (MWCO 3500 кДа) | BioDesign | D302 | Используется для обмена буфера при очистке |
| Фильтр эмиссии | Edmund Optics | 84080 | Используется для анализов ThT (494 нм, полоса пропускания 20 нм) |
| Фильтр возбуждения | Edmund Optics | 67012 | Используется для анализов ThT (438 нм, полоса пропускания 24 нм) |
| Флуоресцентный микропластиночно-считывающий прибор | Tecan | Infinite F200 Pro | Используется для измерения интенсивности флуоресценции ThT |
| Микроволновая плита | Lab Fish | HS5C | Используется для настройки водяной бани с контролем температуры |
| Соляная кислота (HCl) | Fisher Chemical | A144-212 | Используется для корректировки pH буферов |
| Имидазол | TCI Chemicals | 288-32-4 | Используется в очистке IMAC (буфера промывания и элюции) |
| Изопропил β-D-1-тиогалактопиранозид (IPTG) | Sigma-Aldrich | 367-93-1 | Индуцирует экспрессию белка в E. coli |
| LB-питательный бульон (Леннокс) | BioShop | LBL405.5 | Питательная среда для культуры бактерий |
| Низкоскоростный охлаждаемый центробежный аппарат | Beckman Coulter | 360291 | Используется для осадка клеток перед хранением |
| Никакелевые NTA агарозовые перлы | GoldBio | H-350-50 | Смола, используемая для аффинной очистки белков с тегом His |
| Плазмида SC16 | BioBasic | N/A | Индивидуальная ДНК-конструкция, кодирующая белковую фузию H-GB1-SC16 |
| SHuffle T7 Express компетентные E. coli | New England Biolabs | C3029J | Штамм-хозяин, используемый для экспрессии рекомбинантного белка |
| Хлорид натрия (NaCl) | BioShop | SOD001.5 | Компонент буфера и регулятор ионной силы |
| Гидроксид натрия (NaOH) | Fisher Chemical | SS255-1 | Используется для корректировки pH буферов |
| Фосфат натрия | BioShop | SPD579.1 | Компонент буфера для поддержания pH |
| Спектрофотометр | Pharmacia Biotech | 5096 | Используется для количественного определения SC16 |
| Тиофлавин T (ThT) | Acros Organics | 2390-54-7 | Флуоресцентный краситель, используемый для мониторинга самосборки белков |
| Тромбин-протеаза | Sigma-Aldrich | 04-04-9002 | Используется для расщепления белковой фузии H-GB1-SC16 |
| Трис(гидроксиметил)аминометан (Трис) | BioShop | TRS001.5 | Буфер, используемый в очистке и растворах для анализов |
| Высокоскоростный охлаждаемый центробежный аппарат | Sorvall | 46915 | Используется для очистки лизата после лизиса клеток |
| Комплект для SDS-PAGE | Bio-Rad | 1658000EDU | Используется для приготовления и проведения гелевых систем SDS-PAGE |
Перепечатки и разрешения
