Устойчивость к антибиотикам при инвазивных штаммах Escherichia coli создаёт трудности при оценке бактериального вторжения с помощью традиционного анализа защиты гентамицина. Описан усовершенствованный метод количественной оценки бактериальной инвазии путём перечисления колониообразующих единиц и качественной визуализации инфицированных клеток с помощью иммунофлуоресцентной конфокальной микроскопии.
Методическая статья
Анализ защиты амикацина для количественной оценки и визуализации инвазии клеток Escherichia coli
В этой статье
Краткое содержание
Аннотация
Инвазия эпителиальных клеток является ключевым фенотипом для многих кишечных патогенов, включая сальмонеллу, шигеллу и вибрио. Возникающим инвазивным патогеном является адгезентно-инвазивная Escherichia coli (AIEC), которая участвует в патогенезе воспалительных заболеваний кишечника (ВЗК). Штаммы AIEC не имеют факторов вирулентности, характерных для других инвазивных патогенов, что затрудняет генетическую идентификацию. В результате штаммы AIEC классифицируются как фенотипические на основе их способности проникать в эпителиальные клетки с помощью стандартного теста защиты от гентамицинов. Однако, поскольку штамы AIEC часто изолируются у пациентов с ВЗК, получающих различные антибиотики в рамках лечебной схемы, рост количества гентамицинорезистентных изолятов сделал этот анализ менее надёжным для классификации AIEC. Чтобы обойти эту проблему, был разработан альтернативный защитный тест на основе амикацина для количественной оценки и визуализации инвазии клеток AIEC. В этом анализе используется амикацин — широкоспектральный полусинтетический аминогликозид, который эффективно наследует штаммы, устойчивые к другим аминогликозидам, оставаясь при этом внеклеточным для эукариотических клеток хозяина. Таким образом, внеклеточные бактерии погибают во время инфекции, а внутриклеточные бактерии «защищены». Это служит основой количественного анализа для сравнения инвазивности штамма, измеряемого как процентный показатель инвазии с использованием колониоформирующих единиц (CFU), восстановленных после заражения. Этот анализ также может использоваться как качественное измерение инвазии путём иммунокрашивки инфицированных эпителиальных клеток и визуализации этих клеток с помощью конфокальной микроскопии. Этот метод служит диагностическим инструментом для скрининга пациентов с ВЗК на AIEC, который также может применяться к другим мультилекарственно-устойчивым патогенам для оценки вторжения клеток — прокси вирулентности и патогенности.
Введение
Воспалительное заболевание кишечника (ВЗК), включающее болезнь Крона (КД) и язвенный колит, — это хроническое воспалительное заболевание желудочно-кишечного тракта, которое затрагивает миллионы людей повсему миру. 1. Несмотря на рост глобальной заболеваемости ВЗК, его точная этиология остаётся неясной из-за сложного взаимодействия генетических, экологических, микробных и иммунологическихфакторов 2,3. Отличительной чертой ВЗК является изменённый состав микробов кишечника, который часто обусловлен факторами окружающей среды, такими как диета с высоким содержанием сахара и жиров, распространённая в индустриально развитыхстранах 4,5. Микробиота пациентов с ВЗК часто характеризуется снижением микробного разнообразия, обогащением патогенных гаммапротеобактерий и истощением защитныхFirmicutes 6,7. У пациентов с КД Escherichia coli (E. coli) обогащается микробиотой кишечника, ассоциируется с слизистой кишечника и проникает в неё, а также положительно коррелирует с активным и тяжёлым заболеванием8,9. Этот возникающий патотип E. coli, ассоциирующий с ЦД, называется адхерентно-инвазивной Escherichia coli (AIEC).
AIEC — это грамотрицательные оппортунистические патогены, которые колонизируют подвздошную слизистую слизистую у пациентов с КД с большей вероятностью, чем здоровые группы10. Штаммы AIEC, выделенные у пациентов с ЦД, генетически разнообразны и часто охватывают все филогруппы E. coli , включающие как коменсальные, так и патогенные E. coli11. В отличие от патогенов, таких как Shigella и Salmonella, которые используют системы секреции типа III для облегчения вторжения в клетки хозяина, AIEC отсутствуют эти консервативные системы вирулентности12. Поэтому наше понимание вирулентности AIEC во многом основано на её in vitro фенотипе, который характеризуется способностью прилипать к эпителиальным клеткам, проникать в них, а также выживать внутримакрофагов 10.
Вторжение эпителиальных клеток AIEC опосредовано несколькими факторами вирулентности, включая пилус типа 1 и длинные полярные фимбрии. FimH, расположенный на кончике пилуса типа 1, опосредует адгезию к остаткам маннозы на сильно гликозилированном рецепторе хозяина CEACAM613. Это связывание способствует проникновению AIEC в энтероциты и поддерживает его внутриклеточнуюрепликацию 14. AIEC также прилипает к микрофолдным (M) клеткам — специализированным эпителиальным клеткам, расположенным над участками Пейера, через взаимодействие между длинными полярными фимбриями и гликопротеином поверхности М-клетки 215,16. Эта адгезия позволяет AIEC транслироваться через М-клетки, достигать подлежащих макрофагов и запускать экспрессию провоспалительных цитокинов, таких как TNF-α, что не только способствует воспалению, но и поддерживает размножение бактерий внутримакрофагов 17,18. Предполагается, что эти патогенные механизмы способствуют поддержанию хронического воспаления у хозяина, как это наблюдается при CD.
AIEC определяются своим in vitro фенотипом, что делает анализ защиты от гентамицинов незаменимым для классификации штаммов и обнаружения факторов вирулентности8. Этот подход может осложняться изолатами, устойчивыми к гентамицину, что может привести к их ошибочной классификации какинвазивных 11. Чтобы обойти эту проблему, были протестированы альтернативные антибиотики, которые эффективно уничтожают гентамицинорезистентные изоляты без проникновения в мембраны клеток хозяина. Благодаря этому подходу амикацин был идентифицирован как подходящая замена гентамицину, обеспечивая сопоставимую эффективность и совместимость со стандартными инвазионными анализами, а также минимальную цитотоксичность, что подтверждается окрашиванием трипаном в предыдущих исследованиях и дополнительно подтверждено здесь с помощью теста на высвобождение лактатдегидрогеназы (дополнительный рисунок 1)11. Амикацин — это полусинтетический аминогликозид, полученный из канамицина, который подавляет рост бактерий, нарушая синтезбелка 19. Амикацин особенно эффективен против мультилекарственно устойчивых грамотрицательных бактерий, включая Pseudomonas, Acinetobacter и Escherichia species 19. В частности, структурные модификации канамицинового позвоночника делают амикацин менее восприимчивым к бактериальным аминогликозид-инактивирующимферментам 19. В результате амикацин представляет собой надёжную альтернативу гентамицину для воздействия на мультилекарственно-устойчивые бактерии в инвазионных анализах. Следующие протоколы описывают, как оценивать инвазионный фенотип E. coli с использованием как эталонного штамма NRG857c, так и клинических изолятов с помощью защитного теста амикацина.
Протокол
ПРИМЕЧАНИЕ: Этот протокол описывает метод оценки способности штаммов AIEC проникнуть в эпителиальные клетки Caco-2. Концентрация амикацина, используемая в этом протоколе (240 мкг/мл), соответствует 10× минимальной концентрации ингибитора (MIC), как было определено с помощью тест-полосок амикацина MIC в панели из 32 представительных клинических изолятов AIEC у 13 пациентов с воспалительными заболеваниямикишечника 11. Исследователям следует определить MIC для своих собственных изолятов AIEC до проведения анализа (см. Таблицу материалов), так как чувствительность к антибиотикам может варьироваться между изолятами. Раздел 1 подробно описывает тест защиты от амикацинов для количественной оценки процентной инвазии, а раздел 2 описывает тест защиты от амикацина для конфокальной микроскопии.
1. Анализ защиты амикацина для количественной оценки процента враждения
- Коллагеновое покрытие 24-колодцевых пластин
- Разведите 35,29 мкл стерильной ледниковой уксусной кислоты (см. Таблицу материалов) в 30 мл по 1× PBS (см. Таблицу материалов) в конической трубке объёмом 50 мл.
- Пипетка 300 мкл коллагена (см. Таблицу материалов) в 1× PBS с раствором уксусной кислоты.
- Раствор вихря на 10 секунд для хорошего смешивания.
- Введите 250 мкл разбавленного раствора коллагена в каждую яме стерильной 24-луночной тканевой культивированной пластины.
ПРИМЕЧАНИЕ: Раствор коллагена объемом 30 мл достаточно для покрытия примерно пяти пластин с 24 лунками. - Наклоните пластину во всех направлениях, чтобы раствор равномерно покрыл дно каждой скважины.
- Инкубировать пластины при 37 °C в течение 2 часов, чтобы коллаген прилип к пластиковой поверхности.
- После завершения инкубации аспирируете раствор коллагена из каждой ямы.
- Пипетка 1 мл 1× PBS в каждую яму, чтобы смыть остатки коллагена и аспирировать каждую скважину. Повторите этот шаг ещё 2 раза (всего 3 раза).
- Сушите пластины внутри биологического защитного шкафа, чтобы вся видимая влага испарилась.
ПРИМЕЧАНИЕ: Пластины можно сразу использовать для посева клеток или хранить при комнатной температуре. При хранении тарелок герметизируйте внешний периметр стерильной парапленкой или помещайте их в стерильный пакет с зип-локом.
- Приготовление растворов амикацина
- Взвесьте 240 мг амикацина дисульфата (см. Таблицу материалов) и перенесите в микроцентрифугную трубку объёмом 1,5 мл.
- Пипетте 1 мл стерильной воды и растворяют амикацин путём вихря, давая конечную концентрацию 240 мг/мл (1000× бульона).
- Сделайте 20 мкл аликвотов раствора амикацина и храните при -20 °C.
ПРИМЕЧАНИЕ: Амикацин стабилен при -20 °C в течение 6–12 месяцев. Приготовьте одноразовые аликвоты, чтобы минимизировать повторяющиеся циклы заморозки и оттаивания.
- Подготовка ячеек Caco-2
- Оттаивание клеток Caco-2 из замороженного запаса
- Подготовьте полноценную массу для роста, дополнив высококачественную глюкозную среду Dulbecco Modified Eagle Medium (DMEM, см. Таблицу материалов) сывороткой плода 10% бычьей сыворотки плода (FBS, см. Таблицу материалов) и 1% антибиотиково-антимикотическим раствором (см. Таблицу материалов).
- Предварительно подогрейте материал в водяной бане при 37 °C в течение 30 минут.
- Поместите замороженный флакон с клетками Caco-2 в водяную ванну при температуре 37 °C и инкубуйте 1–2 минуты, пока клетки полностью не оттают.
- Вынимите флакон из водяной бани и распылите его снаружи 70% этанолом.
- Внутри биологического защитного шкафа пипетить клетки в коническую трубку объёмом 15 мл, содержащую 9 мл полной среды роста.
- Центрифугные элементы при 500 × г в течение 5 минут при комнатной температуре.
- Аспирируйте супернатант и ресуспензируйте клеточную гранулу в 5 мл полноценной ростовой среды.
- Переместить клетки в колбу для культуры тканей (T75) размером 75см 2 см, содержащую 10 мл тёплой среды полного роста.
- Покрутите пластину 3 раза, чтобы ячейки равномерно распределялись по нижней части пластины.
- Инкубировать клетки при 37 °C с 5%CO2 , пока клетки не достигнут ~90% слияния (6–7 дней).
ПРИМЕЧАНИЕ: Слияние оценивается с помощью визуализации клеток с помощью светового микроскопа. Меняйте среду каждые 3 дня, пока клетки восстанавливаются.
- Посев клеток Caco-2
- Предварительное нагревание полного роста и 0,25% (с в/в) трипсина-ЭДТА (см. Таблицу материалов) в водяной бане при температуре 37 °C.
- Когда клетки Caco-2 достигнут ~90% слияния, аспирируйте клеточную культуру и добавляйте 2 мл трипсина-ЭДТА. Наклоните колбу, чтобы раствор трипсина покрыл всю нижнюю поверхность колбы, чтобы все следы FBS были неактивированы.
- Аспирируйте раствор трипсина-EDTA и добавьте 3 мл трипсина-ЭДТА. Инкубировать клетки при 37 °C с 5%CO2 в течение 5–15 минут. Визуализируйте клетки с помощью светового микроскопа в разные моменты инкубационного периода, чтобы наблюдать округление клеток, что указывает на отделение.
ПРИМЕЧАНИЕ: Избегайте удара по боковой части колбы, чтобы облегчить отслоение клеток, так как это может привести к скуплению клеток. - Пипетта 6 мл полного ростового среды для деактивации раствора трипсина-ЭДТА и смешивания, аккуратно пипетируя вверх и вниз для повторного суспензия клеток.
- Пипетные клетки в коническую трубку объёмом 15 мл и центрифугу при 500 × г в течение 5 минут до гранулированных клеток.
- Аспирировать среду и реуспензировать клетки в 3 мл полноценной среды роста.
- Перенесите 10 мкл подвешенных клеток Caco-2 в микроцентрифугную трубку объемом 1,5 мл. Добавьте 10 мкл синего красителя Trypan (см. Таблицу материалов) в микроцентрифуговую трубку объемом 1,5 мл и перемешайте, несколько раз поднимая и опуская трубку.
- Пипетта 10 мкл смеси Caco-2/Trypan blue на стекло ячейки (см. таблицу материалов). Перечислите количество живых клеток для расчёта жизнеспособности клетки.
ПРИМЕЧАНИЕ: При перечислении количества присутствующих клеток Caco-2 учитывайте только количество живых ячеек, а не общее количество ячеек для посева. - Засеять клетки Caco-2 в пластину на 24 лунки или колбу T75.
- Для пластины с 24 лунками следуйте следующим шагам:
- Семя ячеек Caco-2 в концентрации 1 x 10⁵ клеток/мл с использованием приведённого ниже уравнения:
[(1 × 10⁵ ячеек)(Количество посева колодцев + 2)] / [Жизнеспособная концентрация ячеек (клетки/мл)] = ячейки (мл) - Извлеките вычисленный выше объём клеток из подвешенных клеток Caco-2 на шаге 3.2.6 в коническую трубку объёмом 15 мл. Рассчитайте объём полного растительного материала для добавления к клеткам с помощью приведённого ниже уравнения:
(Количество посевов колодцев + 2 колодца) - ячейки (мл) = среда (мл)
ПРИМЕЧАНИЕ: «+2 скважины» в расчёте предназначены для учёта ошибки пипетирования. - Пипетировать объём среды, рассчитанный выше, в 15 мл конической формы, содержащей клетки Caco-2, и смешивать путём пипетирования вверх и вниз несколько раз.
- Пипетте 1 мл клеток Caco-2 в полной среде роста (конечная концентрация 1 x 10⁵ клеток/мл) в каждую яме покрытой коллагеном 24-луночной пластины.
- Инкубировать пластину при 37 °C с 5%CO2 до достижения слияния клеток (3–4 дня).
- Семя ячеек Caco-2 в концентрации 1 x 10⁵ клеток/мл с использованием приведённого ниже уравнения:
- Для колбы T75 следуйте следующим шагам:
- Перенесите 7,5 x10 5 жизнеспособных ячеек в колбу T75 с помощью следующего уравнения:
[(7,5 × 10⁵ клеток)] / [жизнеспособная концентрация количества клеток (клетки/мл)] = клетки (мл)
ПРИМЕЧАНИЕ: Количество жизнеспособных клеток для добавления в колбу T75 было определено на основе рекомендаций ATCC по культуре клеток Caco-2. - Удалите объём ячеек, рассчитанный выше, и перенесите в колбу T75. Рассчитайте объём полного растительного материала для добавления к клеткам с помощью приведённого ниже уравнения:
15 мл - объём ячеек, добавленных в колбу = среда (мл) - Пипетте объём материала, рассчитанный выше, к колбе T75.
- Мягко покрутите пластину несколько раз, чтобы равномерно распределить клетки по дну колбы. Инкубировать при 37 °C с 5%CO2 до достижения слияния клеток (3–4 дня).
- Перенесите 7,5 x10 5 жизнеспособных ячеек в колбу T75 с помощью следующего уравнения:
- Оттаивание клеток Caco-2 из замороженного запаса
- Анализ защиты амикацина
ПРИМЕЧАНИЕ: Убедитесь, что все среды для клеточной культуры предварительно нагреты до 37 °C перед началом эксперимента.- Подготовка бактерий
- Используя стерильную деревянную палочку или стерильный наконечник пипетки, аккуратно соскрестите бактерии из замороженного бактериального глицеролового запаса, хранящегося при -80 °C, и проведите полоски на пластине ЛБ агара для отдельных колоний. Инкубировать тарелку при 37 °C ночью.
- Используя стерильную деревянную палочку или стерильный наконечник пипетки, возьмите одну колонию из агаровой пластины и инокулятируйте в 3 мл бульона LB. Инкубировать культуру при 37 °C с встряхиванием при 200 об/мин ночью.
- Проведите ночное разбавление культуры в соотношении 1:10 в бульоне массой 1 мл и измерьте оптическую плотность при 600 нм (OD 600) культуры с помощью спектрофотометра.
- Расчёт множественности инфекций (MOI)
- Переведите 100 мкл ночной культуры в микроцентрифугную трубку объёмом 1,5 мл и центрифугуйте при температуре 6000 × г в течение 10 минут при 4 °C.
- Аккуратно аспирируйте супернатант, чтобы не навредить клеточной гранулы. Суспензировать гранулу в 1 мл сыворотки и антибиотико-антимикотических сред.
ПРИМЕЧАНИЕ: Это разбавление бактериальной культуры в пропорции 1:10 за ночь. Для расчёта MOI используйте исходное значениеOD 600 , рассчитанное для разбавленной ночной культуры на шаге 4.1.3, а не значениеOD 600 , скорректированное для коэффициента разбавления. - Вычислите объём бактериальной суспензии для добавления с шага 4.2.2 для заражения клеток Caco-2 при MOI 10, используя следующий вычисление:
[1 единица ОД/2,4 × 109 бактерий] × [10 бактерий/клетка] × [1 мл × ОД 1:10] × 1 ×105 ×103 = объём (uL)
ПРИМЕЧАНИЕ: Тщательно записывайте рассчитанный объём для каждого образца, так как это значение будет использовано позже для расчёта CFU/mL. Этот объём бактериальной суспензии относится только к одной яме внутри 24-колодной пластины. - Подготовьте инфекционную среду, передав рассчитанный объём бактериальной суспензии с шага 4.2.3 в стерильную микроцентрифугную трубку объёмом 1,5 мл. Добавьте 1 мл сыворотки и антибиотико-антимикотических свободных сред. Аккуратно перемешивайте, несколько раз поднимая и опуская трубу.
- Инфекция клетками Caco-2
- Удалите 24-ямочную пластину, содержащую монослои клеток Caco-2, из инкубатора и аспирируйте всю среду.
- Пипетта 1 мл сыворотки и антибиотико-антимикотических свободных сред в каждую яму, а затем аспирировать для удаления следов сывороточной среды. Повторите этот шаг ещё один раз (всего 2 раза).
ПРИМЕЧАНИЕ: Уменьшайте вакуумное давление при аспирировании, чтобы не нарушать монослой ячейки. - Пипетта 1 мл инфекционной среды с шага 4.2.4 в каждую яме 24-луночной пластины, содержащей клетки Caco-2.
- Центрифугировать 24-ядровую пластину при 500 × г в течение 15 минут при комнатной температуре для синхронизации контакта бактерий с эпителиальными клетками.
- Инкубировать пластину с 24 лунками при 37 °C с 5%CO2 в течение 3 часов для бактериального вторжения.
- В течение инкубационного периода определите CFU/mL разбавленной ночной культуры с шага 4.2.2, выполняя 10-кратное последовательное разбавление в стерильной 1× PBS с использованием пластины с 96 лунками.
- Для подготовки каждого разбавления передаёте 200 мкл разбавленной ночной культуры из шага 4.2.2 в первую скважину в тарелке.
- Пипетта — 20 мкл культуры в следующий ряд, который содержит 180 мкл 1× PBS. Смешивайте, прокручивая пипеты вверх и вниз 10 раз. Повторяйте до тех пор, пока разбавление не достигнет 10-6 , используя новый наконечник пипетки для переноса каждый раз.
- Пластина 10 мкл пятнистого разбавления в тройной части от 10-2 до 10-6 разбавлений на пластины LB агар. Дайте пятнам впитаться в агар под пламенем.
- Инкубировать пластины на ночь при температуре 27–30 °C, чтобы предотвратить чрезмерный рост колоний и обеспечить чистые, отдельные отдельные колонии.
ПРИМЕЧАНИЕ: Точечное покрытие в тройном экземпляре повышает точность количественной оценки и позволяет обнаруживать различные концентрации бактерий. Более низкая температура инкубации замедляет рост бактерий, что позволяет более точно оценивать КФУ по образцам высокой концентрации.
- Подготовьте среду с антибиотиками, добавив амикацин 240 мкг/мл в предварительно нагретую сыворотку и свободную среду антибиотико-антимикотиков.
- После завершения 3-часовой инфекции аспирируете среду из монослоев клеток Caco-2. Добавьте по 1 мл сыворотки и свободной среды без антибиотиков и антимикотов в каждую яму. Повторите этот шаг ещё один раз (всего 2 раза).
- В каждую скважину вводят 1 мл среды 240 мкг/мл амикацина и инкубируют при 37 °C с 5% CO2 в течение 1 часа для уничтожения внеклеточных бактерий.
- Аспирируйте среду из каждой скважины и добавьте 1 мл 1× PBS, чтобы смыть приклеенные бактерии, уничтоженные амикацином. Повторите этот шаг ещё один раз (всего 2 раза).
- Пипетт 200 мкл 1% Triton-X-100 (см. таблицу материалов) разведён в 1× PBS в каждую скважину. Инкубировать на орбитальном шейкере со скоростью 90 об/мин в течение 10 минут для лизирования эпителиальных клеток.
- Отсоединять ячейки от 24-колодной пластины, проводя пипеты примерно 30 раз на каждую скважину.
ПРИМЕЧАНИЕ: Поскольку покрытие пластин коллагеном улучшает сцепление клеток, важно убедиться, что монослой отделился от пластины. Это можно подтвердить визуально, сравнив лизированную скважину относительно нелизированной и скважину без клеток Caco-2, которые будут выглядеть чистыми. - Проведите 10-кратное последовательное разбавление клеточных лизатов в пластине с 96 лунками с использованием 1× PBS.
ПРИМЕЧАНИЕ: Проводите серийное разбавление до 10-3 разбавления. - Пластинка 10 мкл пятневых разбавлений в тройной форме, от неразбавленных до 10-3 разбавлений, на пластины LB агар. Дайте пятнам впитаться в агар под пламенем. Инкубировать пластины на ночь при температуре 27–30 °C, чтобы предотвратить чрезмерный рост колонии и обеспечить чистые, отдельные отдельные колонии.
- Подсчёт колоний и расчёт процента вторжения
- После ночной инкубации посчитайте количество колоний в каждом участке, разбавленной ночной культурой и извлеченного лизата. Выберите разбавление, в котором каждое пятно содержит более 7 изолированных колоний. Используйте одинаковое разбавление по тройным копиям, чтобы рассчитать среднее количество бактериальных колоний, полученных для этого разбавления.
ПРИМЕЧАНИЕ: Считайте пятнистые разбавления, содержащие хорошо изолированные одиночные колонии, и избегайте подсчёта разбавлений, содержащих колонии, которые соприкасаются. - Рассчитайте уровень инокуля CFU/mL, полученный CFU/mL и процентную инвазию с помощью следующих уравнений ниже:
Инокулум КФУ (КФУ/мл):
Инокулум КФУ = (среднее количество колоний) (коэффициент разбавления) (объём инфекционной среды (мкл) x 100
Получено CFU (CFU/mL):
КФУ извлечено = (среднее количество колоний)(коэффициент разбавления) x 100
Процент вторжения (%):
Вторжение (%) = [(КФУ извлечено)/(КФУ инокулум)] × 100
- После ночной инкубации посчитайте количество колоний в каждом участке, разбавленной ночной культурой и извлеченного лизата. Выберите разбавление, в котором каждое пятно содержит более 7 изолированных колоний. Используйте одинаковое разбавление по тройным копиям, чтобы рассчитать среднее количество бактериальных колоний, полученных для этого разбавления.
- Подготовка бактерий
2. Анализ защиты амикацина для конфокальной микроскопии
- Подготовка стерильных покрытий с поли-L-лизиновым покрытием
- В шкафу биологической безопасности используйте стерильные щипцы для размещения покрытий поли-L-лизином (см. таблицу материалов) на бумажное полотенце, пропитанное 70% этанолом.
- Опрыскивайте обе стекли покрытия 70% этанолом, используя стерильные щипцы, чтобы перевернуть накладку в обе стороны.
- Дайте накладным слоям высохнуть под ультрафиолетовым светом в биологическом защитном шкафу до полного высыхания.
- Посев ячеек Caco-2 в пластину с 6 колодцями
- В биологическом защитном шкафу поместите по одному покрытию с поли-L-лизиновым покрытием в каждую скважину пластины с 6 луками.
- Повторите шаги 3.2.1–3.2.8 из раздела «Засев ячеек Caco-2».
- Засеяли клетки Caco-2 в концентрации 1 x 10⁵ клеток/мл в пластине с 6 ячеями, используя приведённое уравнение:
[(1 × 10⁵ ячеек)(Количество посевов колодцев + 2)] / [Жизнеспособная концентрация клеток (клетки/мл)] × 2 = ячеек (мл)
ПРИМЕЧАНИЕ: Это значение умножается на 2, чтобы учесть добавление 2 мл среды на каждую скважину при использовании пластины с 6 колодцами. - Удалите объём ячеек, рассчитанный выше, в коническую трубку объёмом 15 мл. Рассчитайте объём полного растительного материала для добавления к клеткам с помощью приведённого ниже уравнения:
(Количество посевов колодцев + 2 колодца) x 2 - ячейки (мл) = среда (мл) - Пипетировать объём среды, рассчитанный выше, в 15 мл конической формы, содержащей клетки Caco-2, и смешивать путём пипетирования вверх и вниз несколько раз.
- Добавьте 2 мл клеток Caco-2 в полной среде роста в каждую яме пластины с 6 лунками (конечная концентрация 1 × 10⁵ клеток/мл).
- Инкубировать пластину при 37 °C с 5%CO2 до достижения слияния клеток ~90% (2–3 дня).
- Анализ защиты от амикацина
- Проведите анализ защиты от амикацинов согласно Разделу 1, шагам 4.1-4.3.10
- Иммунофлуоресцентное окрашивание
- Фиксация и проницаемость клеток Caco-2
- Фиксируйте ячейки, добавляя 1 мл 4% параформальдегида, разбавленный в 1X PBS (см. таблицу материалов) в каждую скважину. Инкубировать 10 минут при комнатной температуре в темноте.
- Аспирируйте каждую колодцу и добавьте 1 мл 1× PBS для промывки клеток. Повторите этот шаг ещё 2 раза (всего 3 раза).
ПРИМЕЧАНИЕ: Клетки можно хранить несколько дней в 1X PBS при 4 °C. - Добавьте 1 мл 0,1% Triton-X-100 в каждую скважину и инкубируемые 10 минут при комнатной температуре для проникновения клеток.
- Аспирируйте раствор Triton-X-100 и добавьте 1 мл 1× PBS в каждую скважину. Инкубировать клетки с 1× PBS в течение 5 минут. Повторите этот шаг ещё 2 раза (всего 3 раза).
- Блокировка и окрашивание антител
- Чтобы предотвратить связывание неспецифических антител, приготовьте блокирующий раствор с использованием 1% бычьего сывороточного альбумина (BSA), 22,52 мг/мл глицина в 1× PBS + 0,1% Tween20 (см. таблицу материалов).
- Добавьте 1 мл блокирующего раствора в каждую колодцу и инкубуйте 1 час при комнатной температуре.
ПРИМЕЧАНИЕ: Этап блокировки также может выполняться при 4 °C в течение 16 часов. - Аспирируйте блокирующий раствор и инкубируйте клетки первичным антителом против Rabbit E. coli (см. Таблицу материалов), разбавленных (рекомендуемое разбавление 1:500) в блокирующем растворе в течение 1 часа при комнатной температуре.
ПРИМЕЧАНИЕ: Инкубация с первичным антителом также может проводиться при 4 °C в течение 16 часов. - Аспирировать первичный раствор антител и добавить 1 мл 1× PBS + 0,1% Tween20. Инкубировать клетки в 1× PBS + 0,1% Tween20 в течение 5 минут. Повторите этот шаг ещё 2 раза (всего 3 раза).
- Инкубировать клетки вторичным антителом Alexa Fluor 488 (см. таблицу материалов), разбавленной (рекомендуемое разбавление 1:1000) в блокирующем растворе в течение 1 часа при комнатной температуре. Обмотайте пластину алюминиевой фольгой, чтобы защитить флуорофор от света.
- Аспирируйте вторичный раствор антител и добавьте 1 мл 1× PBS + 0,1% Tween20. Инкубировать клетки в 1× PBS + 0,1% Tween20 в течение 5 минут. Повторите этот шаг ещё 2 раза (всего 3 раза).
- Контрокраска и монтаж накладки
- Для окрашивания ДНК хозяина и бактерий и актина хозяина подготовьте комбинированное разбавление с использованием 10 мг/мл Hoechst (рекомендуемое разбавление 1:2000, см. Таблицу материалов) и родамино-фаллоидина (рекомендуемое разбавление 1:1000, см. Таблицу материалов) в 1× PBS.
- Добавьте 1 мл раствора красителя в каждую скважину и инкубуйте 10 минут.
- Удалите раствор красителя и добавьте 1 мл 1× PBS в каждую скважину. Повторите этот шаг ещё один раз (всего 2 стирки).
- Добавьте 1 мл 1× PBS и оставьте клетки погружёнными в раствор.
- Нанесите одну каплю монтажного материала (см. таблицу материалов) на разметочный слайд.
- Аккуратно поднимите накладку с пластины с 6 ямок с помощью согнутой иглой и переверните её так, чтобы сторона с ячейками была обращена к затвору с монтажным материалом.
- Положите обложку на монтажный материал. Убедитесь, что монтажные материалы равномерно распределены по всему покрытию.
- Инкубировать установленные слайды при комнатной температуре ночью в темноте.
- Запечатайте края покрытия прозрачным лаком для ногтей и храните слайды при 4 °C в коробке для затвора.
- Снимите установленные образцы с помощью соответствующих каналов, соответствующих красителям/флуорофорам, используемым в конфокальном микроскопе.
- Фиксация и проницаемость клеток Caco-2
Результаты
Для оценки эффективности терапии амикацином в уничтожении внеклеточных бактерий и визуализации внутриклеточного вторжения мы проводили эксперименты с использованием монослоев клеток Caco-2. Как показано на рисунке 1, лечение гентамицином или амикацином после заражения E. coli NRG857c (положительный контроль) или E. coli DH5α (отрицательный контроль) приводило к аналогичным профилям инвазии. Эти результаты показывают, что амикацин так же эффективен, как гентамицин, в уничтожении внеклеточных бактерий и точно отражает внутриклеточную бактериальную нагрузку, что поддерживает его использование в качестве альтернативного антибиотика для инвазионных анализов. Диапазон восстановления ~4-10% восстановления NRG857c и <1% для E. coli DH5α считается приемлемым для точной интерпретации фенотипов инвазии относительно мутантных штаммов или других клинических изолятов, что соответствует предыдущимнаблюдениям 11. Если процентные показатели инвазии для положительных и отрицательных контролей выходят за пределы ожидаемого диапазона восстановления, результаты следует интерпретировать с осторожностью, и анализ следует повторять.
Чтобы показать, что амикацин эффективно воздействует на клинические изоляты E. coli, устойчивые к гентамицину, параллельно проводились анализы защиты гентамицина и амикацина, а также изучены профили инвазии изолятов. Как показано на рисунке 2, обработка гентамицинорезистентных изолятов гентамицином приводила к сильно варьирующим значениям восстановления — от 21,52% до 2788,50%. В отличие от этого, лечение амикацином значительно снизило восстановление во всех изолятах, что подчёркивало его эффективность и позволило проводить более точные и надёжные измерения инвазии.
Наконец, для оценки внутриклеточного фенотипа AIEC во время инвазии клетки Caco-2 были инфицированы E. coli NRG857c. На рисунке 3 показано репрезентативное изображение инфицированной клетки Caco-2 с бактериями (зелёными), окрашенными иммунофлуоресценцией, актином хозяина (красным) и ДНК (синий), визуализированными путём контрокрашивания родамином-фаллоидином и Hoechst соответственно. Через 4 часа после заражения наблюдается размножение NRG857c в цитоплазме, локализуясь вблизи ядра и в пределах актиновых, что подтверждает внутриклеточную природу этих бактерий.
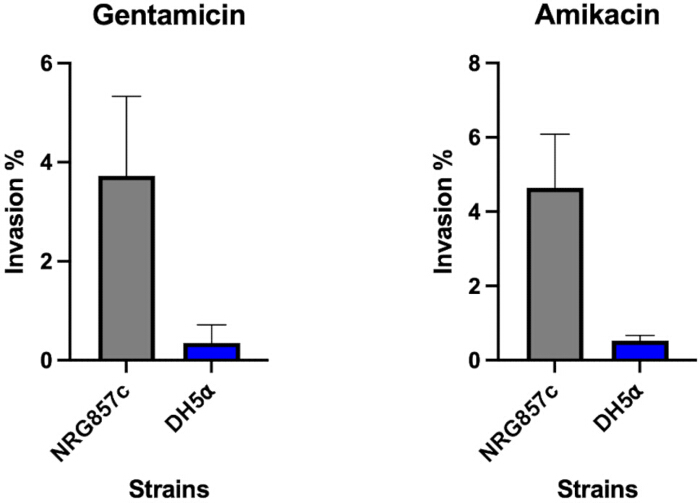
Рисунок 1: Добавление гентамицина или амикацина в клетки Caco-2, инфицированные штаммом AIEC NRG857c, приводит к сопоставимым профилям инвазии. Монослои клеток Caco-2 были инфицированы штаммом AIEC NRG857c и E. coli DH5α при MOI 10. После 3 часов инфекции клетки лечили в течение 1 часа гентамицином (100 мкг/мл) или амикацином (240 мкг/мл) для уничтожения внеклеточных бактерий. Клетки затем лизировали с 1% тритона-X-100, а гомогенаты серийно разбавлены и покрыты на LB-агаре для перечисления КФУ. Инвазия выражалась в проценте восстановленных бактерий относительно первоначального инокулума. Данные представляют собой три независимых эксперимента (n = 3); Полоски ошибок указывают на стандартное отклонение среднего значения. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
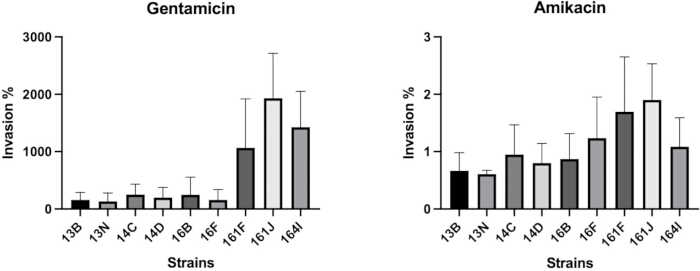
Рисунок 2: Амикацин эффективно нацелен на гентамицино-устойчивые штаммы кишечной палочки . Монослойные клетки Caco-2 были инфицированы штаммами E. coli , выделенными у пациентов с ВЗК, при MOI 10. После 3 часов инфекции клетки лечили в течение 1 часа гентамицином (100 мкг/мл) или амикацином (240 мкг/мл) для уничтожения внеклеточных бактерий. Клетки затем лизировали с 1% тритона-X-100, а гомогенаты серийно разбавлены и покрыты на LB-агаре для перечисления КФУ. Инвазия выражалась в проценте восстановленных бактерий относительно первоначального инокулума. Данные представляют собой три независимых эксперимента (n = 3); Полоски ошибок указывают на стандартное отклонение среднего значения. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
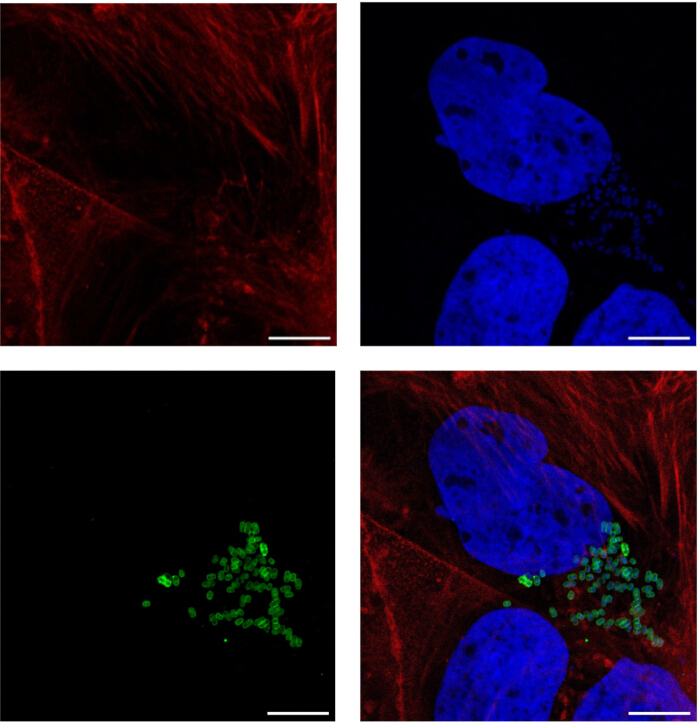
Рисунок 3: Визуализация вторжения эпителиальных клеток E. coli. Репрезентативные конфокальные микрофотографии клеток Caco-2 инфицировали E. coli NRG857c. Клетки Caco-2 были инфицированы в течение 3 часа, после чего следовала инкубация амикацином (240 мкг/мл). Актин хозяина был окрашён родамином-фаллодином (красным), а ДНК хозяина и бактерий — Hoechst (синим). E. coli (зелёный) был обнаружен с помощью первичного антитела к E. coli и вторичного антитела Alexa Fluor 488 против козлих. Изображения были получены на объективе 63× с увеличением 3× с помощью конфокального микроскопа Leica. Шкалы = 10 мкм. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
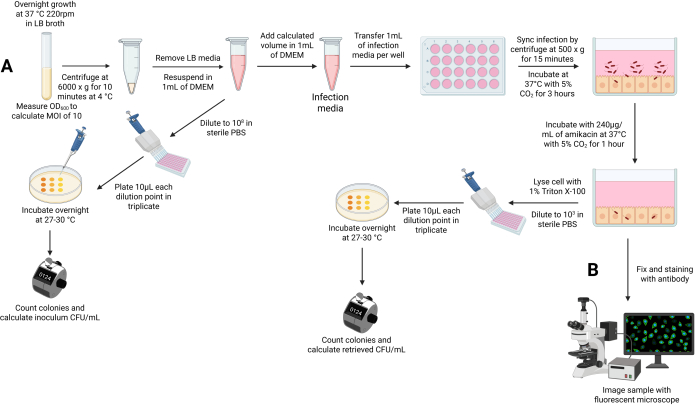
Рисунок 4: Блок-схема исследования. (A)Сорта AIEC выращивались за ночь, промывались и добавлялись в монослои Caco-2 при MOI 10. После 3 часов инфекции и 1 часа обработки амикацином внутриклеточные бактерии были извлечены и количественно оценены путём серийного разбавления в тройной пластине. (B) Инфицированные монослои фиксировались, окрашивались антителами и снимались с помощью флуоресцентной микроскопии. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
Дополнительный рисунок 1: Терапия амикацином приводит к минимальной цитотоксичности эпителиальных клеток . Клетки Caco-2 обрабатывались гентамицином (100 мкг/мл) или амикацином (240 мкг/мл) в течение 1 часа. Цитотоксичность определялась путём измерения лактатдегидрогеназы, высвобождаемой в культурной среде. Полоски ошибок указывают на стандартное отклонение среднего значения (n = 3). Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Обсуждение
Тест защиты амикацина — это модифицированный подход к оценке инвазии E. coli в эпителиальные клетки. Для успешного проведения теста критически важны несколько этапов, включая покрытие пластин коллагеном, поддержание целостности монослоя и эффективное лизисирование клеток. Клетки Caco-2 — это клеточная линия, которая может прикрепляться к пластику, обработанному в тканях культуры, и образовыватьмонослои 20. Однако во время инфекции использование среды без сыворотки и многократное промывка могут влиять на отслоение клеток, что приводит к недостаточному представлению бактериальноговторжения 21. Для устранения этой проблемы покрытие пластин внеклеточными матриксовыми компонентами, такими как коллаген IV типа, может способствовать прикреплению клеток и формированию стабильного, слияющегося монослоя во времяинфекции 21. Это важно, поскольку штамм AIEC LF82 нарушает узкие соединения во время инвазии, а неполное формирование монослоя может обойти этот этап, приводя к искажённымрезультатам 22. Наконец, эффективный лизис клеток — ещё один ключевой этап, влияющий на восстановление бактерий, поскольку неполный лизис может скрывать инвазивность, запутывая результатыанализов 23. Чтобы обойти это, важно тщательно повторно суспензировать лизат клетки после инкубации с помощью Triton-X-100.
Помимо технических трудностей, которые могут способствовать вариативности инвазионного анализа, процент восстановленного после заражения инокуля для штамма AIEC LF82 составляет от 0,61 до 17,25%8. Эта вариабельность может быть обусловлена отсутствием определённых факторов окружающей среды, таких как желчные соли, муцин и другие кишечные метаболиты в этом in vitro тесте, которые известны как способствующие вирулентностиAIEC 24,25,26. В частности, было показано, что желчные соли индуцируют экспрессию длинных полярных фимбрий, которые увеличивают прикрепление и транслокацию AIEC черезM-клетки 27. Другие желудочно-кишечные патогены, такие как Vibrio и Shigella, известны тем, что регулируют свои системы секреции типа III в ответ на желчь для опосредования инвазии эпителиальныхклеток 28,29. Субкультурирование с использованием желчных солей для индуцирования экспрессии фактора вирулентности является стандартом в протоколах защиты гентамицинов для других патогенов, и выращивание AIEC с учётом этих факторов окружающей среды может стабилизировать инвазию и дать более согласованныепрофили 30,31.
Ещё одним ограничением этого анализа является то, что бактериальное вторжение оценивается в одну точку времени, что, хотя и стандартно в этой области, вероятно, упрощает процессинвазии 12. Бактериальное вторжение — это динамический процесс, включающий прикрепление, интернализацию, внутриклеточную репликацию и выход изклетки-хозяина 32. Поскольку выявление новых генов, способствующих вторжению AIEC, было сложно идентифицировать, использование анализа с одной временной точкой может недооценивать количество генов, участвующих в этомпроцессе 12. Поэтому анализы временного вторжения были использованы для оценки того, как конкретные гены способствуют инвазии, а также для изучения репликации AIEC в клетках I-407 игепатита-2 8,33. Хотя использование временного анализа инвазии ценно для характеристики вклада отдельных генов в инвазию, оно требует много труда, особенно при скрининге многих клинических изолятов. По этой причине для оценки вторжения используется одна временная точка.
Кроме того, внутриклеточный образ жизни AIEC был плохо изучен. Большинство исследований используют процентное вторжение как основной показатель для выявления изменений в CFU различных мутантов с фактором делециивирулентности 14,34. Визуализация инфицированных клеток хозяина может дать уникальные представления о биологии AIEC, которые упускаются при использовании только перечисленияCFU 35. Поэтому для всесторонней оценки роли различных генов в вторжении клеток необходимо проводить иммунофлуоресцентную микроскопию инфицированных клеток параллельно с перечислением КФУ. Это важно, поскольку может привести к выявлению генов, которые участвуют в эндосомном выживании и выходе, нацелены на цитоскелет хозяина или проявлять различия в бактериальной нагрузке на клетку, что может быть упущено только при восстановлении КФУ. Важно отметить, что использование протокола иммунофлуоресцентного окрашивания, описанного здесь, для обнаружения внутриклеточных бактерий не позволяет различать действительно интернализированные бактерии от тех, что прилипли к поверхности клетки. Дифференциальный подход к окрашиванию, при котором внеклеточные бактерии маркируются отдельным вторичным антителом перед пермеабилизацией, а внутриклеточные бактерии окрашиваются после пермеабилизации, мог бы решить это ограничение и быть внедрён в будущих исследованиях для более точного различия этихпопуляций 36.
Значимость этого метода во многом заключается в возможности скрининга мультилекарственно-резистентных изолятов E. coli у пациентов с ВЗК, проходящих разнообразное лечениеантибиотиками 11. Гентамицин используется для лечения пациентов с ранним началом ВЗК и может применяться для лечения других бактериальныхинфекций 37. Появление гентамицино-устойчивых изолятов исключит использование стандартного теста, что делает амикацин более надёжнойальтернативой 11. Использование протоколов, изложенных в этой статье, позволит более подробно охарактеризовать биологию инфекции AIEC и поможет выявить новые гены, способствующие инвазии. Эти методы важны в контексте бактериального патогенеза и исследований взаимодействия хозяина с патогеном, поскольку позволяют открыть новые факторы вирулентности, охарактеризовать внутриклеточный жизненный цикл бактерий и исследовать пути хозяина, нацеленные во время инфекции. Кроме того, они широко применимы для изучения других инвазивных патогенов с использованием моделей эпителиальных клеток in vitro .
Раскрытие информации
Авторы не заявляют о конфликтах интересов.
Благодарности
Эта работа была поддержана Инициативой по возникающим патогенам Медицинского института Говарда Хьюза (K.O., J.N.), ГРАНТОМ ФОНДА УЭЛЧ 1-561 (K.O.), Фондом Once Upon a Time (K.O.), NIH грантом R35 GM134945 (K.O.), грантом NIH NIDDK K08-DK-123316 (J.N.), Burroughs Wellcome Fund Career Awards for Medical Scientists - 1020904 (J.N.) и NIH T32 AI007520 (S.F.).
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| 75 см2 Флакон для культуры тканей | Fisher Scientific | FB012937 | |
| Амикацин дисульфат | Research Products International | A20540-25.0 | |
| Антибиотик-антимикотик (100x) | Gibco | 15240062 | |
| Анти-E.coli антитело | Abcam | ab137967 | |
| Микроблёстовые пластинки BioLite - 6 блоков | Fisher Scientific | 12-556-004 | |
| Бычий сывороточный альбумин | Sigma-Aldrich | A7906 | |
| Коллаген I, Хвост крысы, 100 мг | Corning | 354236 | |
| Слайд для подсчета клеток Countess | Invitrogen | C10312 | |
| DMEM с высоким содержанием глюкозы | Gibco | 11965118 | |
| Фета́льная бычья сыворотка | Corning | 35-011-CV | |
| Глицериновая уксусная кислота | Sigma-Aldrich | A6283 | |
| Глицин ультрачистый | USBiological | G8165 | |
| Козиное анти-кроликовое IgG (H + L) перекрестно адсорбированное вторичное антитело, Alexa Fluor 488 | Invitrogen | A-11008 | |
| Хоэхст 33342, тригидрохлорид тригидрат | Invitrogen | H3570 | |
| Liofilchem MTS амикацин [AK] 0,016-256 μг/мл | Fisher Scientific | 22-777-704 | Полосы для определения MIC амикацина |
| Параформальдегидный раствор, 4% в PBS | Fisher Scientific | J19943.K2 | |
| PBS, 1x | Corning | 21-040-CV | |
| Покрытые поли-L-лизином стерильные немецкие стеклянные покровные стекла для культуры клеток | Neuvitro | NC1327375 | |
| Монтирующий антифаде агент ProLong Gold | Invitrogen | P36934 | |
| Родаминовый фаллоидин | Invitrogen | R415 | Красно-оранжевый 540/565 нм |
| Поверхностно обработанные стерильные пластинки для культуры тканей | Fisher Scientific | FB012929 | 24-блочные пластинки |
| Тритон X-100 (Электрофорез) | Fisher Scientific | BP151-100 | |
| Трипановый синий | Invitrogen | T10282 | |
| Трипсин-ЭДТА (0,25%), фенол красный | Gibco | 25200056 | |
| Твeэн-20 | Fisher Scientific | BP337-100 |
Ссылки
- Bruner, L. P., White, A. M., Proksell, S. Inflammatory bowel disease. Prim Care. 50 (3), 411-427 (2023).
- Richard, N., Savoye, G., Leboutte, M., Amamou, A., Ghosh, S., et al. Crohn's disease: Why the ileum?. World J Gastroenterol. 29 (21), 3222-3240 (2023).
- Hracs, L., et al. Global evolution of inflammatory bowel disease across epidemiologic stages. Nature. 642 (8067), 458-466 (2025).
- Lewis, J. D., Abreu, M. T. Diet as a trigger or therapy for inflammatory bowel diseases. Gastroenterology. 152 (2), 398-414.e6 (2017).
- Khan, S., et al. Dietary simple sugars alter microbial ecology in the gut and promote colitis in mice. Sci Transl Med. 12 (567), (2020).
- Ma, X., et al. Gut microbiota in the early stage of Crohn's disease has unique characteristics. Gut Pathog. 14 (1), 46 (2022).
- Vester-Andersen, M. K., et al. Increased abundance of proteobacteria in aggressive Crohn's disease seven years after diagnosis. Sci Rep. 9 (1), 13473 (2019).
- Boudeau, J., Glasser, A. L., Masseret, E., Joly, B., Darfeuille-Michaud, A. Invasive ability of an Escherichia coli strain isolated from the ileal mucosa of a patient with Crohn's disease. Infect Immun. 67 (9), 4499-4509 (1999).
- Darfeuille-Michaud, A., et al. High prevalence of adherent-invasive Escherichia coli associated with ileal mucosa in Crohn's disease. Gastroenterology. 127 (2), 412-421 (2004).
- Barnich, N., et al. Adherent-invasive Escherichia coli in Crohn's disease: the 25th anniversary. Gut. , (2025).
- Kim, J., et al. Genetic and microbial analysis of invasiveness for Escherichia coli strains associated with inflammatory bowel disease. Cell Mol Gastroenterol Hepatol. 19 (4), 101451 (2025).
- Camprubi-Font, C., Martinez-Medina, M. Why the discovery of adherent-invasive Escherichia coli molecular markers is so challenging?. World J Biol Chem. 11 (1), 1-13 (2020).
- Barnich, N., et al. CEACAM6 acts as a receptor for adherent-invasive E. coli, supporting ileal mucosa colonization in Crohn disease. J Clin Invest. 117 (6), 1566-1574 (2007).
- Boudeau, J., Barnich, N., Darfeuille-Michaud, A. Type 1 pili-mediated adherence of Escherichia coli strain LF82 isolated from Crohn's disease is involved in bacterial invasion of intestinal epithelial cells. Mol Microbiol. 39 (5), 1272-1284 (2001).
- Hase, K., et al. Uptake through glycoprotein 2 of FimH(+) bacteria by M cells initiates mucosal immune response. Nature. 462 (7270), 226-230 (2009).
- Chassaing, B., et al. Crohn disease--associated adherent-invasive E. coli bacteria target mouse and human Peyer's patches via long polar fimbriae. J Clin Invest. 121 (3), 966-975 (2011).
- Glasser, A. L., Boudeau, J., Barnich, N., Perruchot, M. H., Colombel, J. F., et al. Adherent invasive Escherichia coli strains from patients with Crohn's disease survive and replicate within macrophages without inducing host cell death. Infect Immun. 69 (9), 5529-5537 (2001).
- Bringer, M. A., Billard, E., Glasser, A. L., Colombel, J. F., Darfeuille-Michaud, A. Replication of Crohn's disease-associated AIEC within macrophages is dependent on TNF-alpha secretion. Lab Invest. 92 (3), 411-419 (2012).
- Ristuccia, A. M., Cunha, B. A. An overview of amikacin. Ther Drug Monit. 7 (1), 12-25 (1985).
- Sambuy, Y., De Angelis, I., Ranaldi, G., Scarino, M. L., Stammati, A., et al. The Caco-2 cell line as a model of the intestinal barrier: influence of cell and culture-related factors on Caco-2 cell functional characteristics. Cell Biol Toxicol. 21 (1), 1-26 (2005).
- Vllasaliu, D., Falcone, F. H., Stolnik, S., Garnett, M. Basement membrane influences intestinal epithelial cell growth and presents a barrier to the movement of macromolecules. Exp Cell Res. 323 (1), 218-231 (2014).
- Wine, E., Ossa, J. C., Gray-Owen, S. D., Sherman, P. M. Adherent-invasive Escherichia coli, strain LF82 disrupts apical junctional complexes in polarized epithelia. BMC Microbiol. 9, 180 (2009).
- Jamur, M. C., Oliver, C. Permeabilization of cell membranes. Methods Mol Biol. 588, 63-66 (2010).
- Delmas, J., et al. Metabolic adaptation of adherent-invasive Escherichia coli to exposure to bile salts. Sci Rep. 9 (1), 2175 (2019).
- Zhang, S., et al. Mucosal metabolites fuel the growth and virulence of E. coli linked to Crohn's disease. JCI Insight. 7 (10), (2022).
- Viennois, E., et al. Dietary emulsifiers directly impact adherent-invasive E. coli gene expression to drive chronic intestinal inflammation. Cell Rep. 33 (1), 108229 (2020).
- Chassaing, B., Etienne-Mesmin, L., Bonnet, R., Darfeuille-Michaud, A. Bile salts induce long polar fimbriae expression favouring Crohn's disease-associated adherent-invasive Escherichia coli interaction with Peyer's patches. Environ Microbiol. 15 (2), 355-371 (2013).
- Gotoh, K., et al. Bile acid-induced virulence gene expression of Vibrio parahaemolyticus reveals a novel therapeutic potential for bile acid sequestrants. PLoS One. 5 (10), e13365 (2010).
- Bajunaid, W., et al. The T3SS of Shigella: Expression, structure, function, and role in vacuole escape. Microorganisms. 8 (12), (2020).
- Poore, K., Lenneman, B. R., Faherty, C. S. Epithelial cell infection analyses with Shigella. J Vis Exp. (204), e66426 (2024).
- Chimalapati, S., Lafrance, A. E., Chen, L., Orth, K. Vibrio parahaemolyticus: Basic techniques for growth, genetic manipulation, and analysis of virulence factors. Curr Protoc Microbiol. 59 (1), e131 (2020).
- Rodrigues, E., Marzook, N. B., Pallett, M. A., Sateriale, A. Convergent mechanisms of epithelial cell structure manipulation by intestinal pathogens. PLoS Pathog. 21 (7), e1013367 (2025).
- Jaishankar, J., et al. A critical role for Vibrio parahaemolyticus LPS to mediate evasion of host immune response during infection. Proc Natl Acad Sci U S A. 122 (33), e2426547122 (2025).
- Cieza, R. J., Hu, J., Ross, B. N., Sbrana, E., Torres, A. G. The IbeA invasin of adherent-invasive Escherichia coli mediates interaction with intestinal epithelia and macrophages. Infect Immun. 83 (5), 1904-1918 (2015).
- Liu, H., Semino-Mora, C., Dubois, A. Mechanism of H. pylori intracellular entry: an in vitro study. Front Cell Infect Microbiol. 2, 13 (2012).
- Heesemann, J., Laufs, R. Double immunofluorescence microscopic technique for accurate differentiation of extracellularly and intracellularly located bacteria in cell culture. J Clin Microbiol. 22 (2), 168-175 (1985).
- Lev-Tzion, R., Ledder, O., Shteyer, E., Tan, M. L. N., Uhlig, H. H., et al. Oral vancomycin and gentamicin for treatment of very early onset inflammatory bowel disease. Digestion. 95 (4), 310-313 (2017).
Перепечатки и разрешения
