В данной работе представлены подробные протоколы содержания лабораторной колонии Carausius morosus, включая основные процедуры по уходу за животными, обращению с яйцами, уходу за вылупившимися особями, репрезентативные показатели эффективности, а также обзор продолжительности жизни и биологических характеристик данного вида.
Методическая статья
Стандартизированный протокол разведения Carausius morosus (Phasmatodea, Insecta) в лабораторных условиях
В этой статье
Краткое содержание
Аннотация
Carausius morosus, индийский палочник, представляет собой стройное, напоминающее ветку насекомое, эндемичное для Индии. Несмотря на широкое распространение в условиях неволи по всему миру и частое использование в лабораториях или в качестве домашних питомцев, стандартизированные лабораторные протоколы по содержанию этих животных отсутствуют. В данной работе мы приводим подробное описание условий лабораторного культивирования для C. morosusМы храним запасы при 23 °C, относительной влажностью воздуха 70% и световым циклом 12:12 ч (свет/темнота). Данная культура успешно поддерживается в этих условиях более двух лет с применением стандартизированных протоколов по режиму кормления и обустройству клеток. Мы также описываем методы ухода за яйцами и вылупившимися особями для обеспечения текущих экспериментов с C. morosusПри наших условиях культивирования 105 контролируемых партий яиц, отложенных в течение одного и того же 24-часового периода, вылупились в течение стабильного 12-дневного интервала, и 13,9% вылупившихся особей успешно достигли взрослого состояния. Эти стандартизированные методы повышают воспроизводимость и доступность, что позволяет более широко использовать C. morosus в качестве лабораторной модельной системы для проведения широкого спектра исследований, включая анализ развития, поведения и физиологии.
Введение
По мере роста интереса к альтернативным немлекопитающим модельным системам, насекомые предоставляют возможность изучить широкий спектр биологического разнообразия, предлагая при этом более доступные с точки зрения затрат модели для исследований, более простые требования к содержанию и меньшее количество регуляторных барьеров по сравнению с моделями млекопитающих1. Появление новых модельных систем на насекомых позволяет исследовать уникальные биологические явления, включая, например, партеногенез у палочников, таких как Carausius morosus (Sinéty, 1901)2. В то время как плодовая мушка Drosophila melanogaster с начала XX века формировала наше понимание процессов развития и генетики3, другие модельные системы насекомых, такие как C. morosus, открывают уникальные возможности не только для биологии развития, но и для изучения моторного контроля, локомоции и систем, регулируемых нейрогормонами4.
Кроме того, в области эволюционной биологии развития насекомые с неполным превращением (гемиметаболы, развивающиеся прямо) остаются недостаточно представленными, при этом наиболее изученной моделью насекомого служит D. melanogaster с полным превращением (голометаболы, развивающиеся косвенно или проходящие метаморфоз). Изучение видов насекомых с прямым развитием, таких как C. morosus, которые проходят несколько нимфальных стадий (линьок) до достижения половой зрелости5, позволяет восполнить ключевые филогенетические пробелы в исследованиях эволюционной биологии развития. Это делает возможным сравнение насекомых с неполным и полным превращением, которые разошлись на ранних этапах эволюции насекомых, но представлены в современных лабораторных модельных системах неравномерно. Широкое использование C. morosus в качестве лабораторного организма было ограничено нестабильными, невоспроизводимыми условиями содержания и отсутствием четких критериев развития и выживаемости. В данной работе мы представляем пошаговый протокол с определенными условиями культивирования и ожидаемыми результатами, который может быть применен в различных лабораториях и поддерживать множество задач, включая отслеживание эмбриогенеза, лонгитюдные исследования развития и эксперименты по репродуктивной функции.
C. morosus легко разводят в неволе, что делает их подходящими как для лабораторных исследований, так и для образовательных целей. Их способность к партеногенетическому размножению6 исключает необходимость в сложных схемах скрещивания, что снижает затраты на содержание и упрощает управление популяцией. Хотя успешное разведение требует контролируемых условий окружающей среды, уход за ними остается простым и экономически эффективным по сравнению со многими другими лабораторными моделями. C. morosus охотно питаются обычным растительным материалом, таким как плющ (Hedera helix), ежевика (Rubus fruticosus) или листья розы (Rosa spp.). Другие преимущества данной системы включают автотомию, способность к регенерации конечностей7, крупные размеры тела и возможность питания на различных растениях-хозяевах. Однако у этого вида есть и ограничения, включая отсутствие общедоступной последовательности генома, относительно длительный период развития и плотный эмбриональный экзохорион, который может затруднить проведение инъекций8. Несмотря на эти ограничения, C. morosus представляет собой практичную и эффективную модель как для исследовательских, так и для учебных целей.
Стандартизированные протоколы разведения C. morosus имеют решающее значение для получения стабильных и воспроизводимых результатов в исследовательских работах. Несмотря на то, что в литературе описано множество лабораторных исследований C. morosus6,9,10,11,12, по имеющимся у нас данным, на сегодняшний день не было опубликовано подробных протоколов по лабораторному разведению C. morosus. В данной работе мы успешно разработали комплексный набор стандартизированных протоколов для лабораторного культивирования C. morosus, включая выращивание яиц, личинок и репродуктивно зрелых взрослых особей. С помощью этих методов мы стремимся сделать данного насекомого более доступным для широкого сообщества биологов-исследователей.
Протокол
1. Условия выращивания в окружающей среде
- Поддерживайте лабораторную культуру в помещении с контролируемым климатом или в инкубаторе со следующими условиями окружающей среды: 23 °при температуре C, относительной влажности 70%, световом режиме 12:12 ч (свет-темнота)
ПРИМЕЧАНИЕ: При этих условиях, C. morosus ожидается, что яйца вылупятся примерно через 74–80 дней после откладки
2. Создание и поддержание сетчатых ограждений
ПРИМЕЧАНИЕ: для содержания рекомендуются мелкоячеистые насекомые в вольерах с тканевой сеткой для вентиляции с трех сторон C. morosusКоробка размером 61 x 61 x 91,5 см подходит для содержания до 50 взрослых особей или, при создании новой колонии, до 500 молодых особей.
- Выберите сетчатую емкость подходящего размера. Перед помещением животных убедитесь, что контейнер чист и не содержит посторонних загрязнений.
- Для создания новой колонии с использованием взрослых особей поместите 25–50 взрослых самок в чистое сетчатое помещение размером 61 см x 61 см x 91,5 см.
ПРИМЕЧАНИЕ: размер отверстий сетки должен находиться в диапазоне 0,2–1,0 мм, чтобы предотвратить выход мелких личинок первого возраста. - Для создания новой колонии с использованием вылупившихся особей перенесите до приблизительно 500 вылупившихся особей в чистый сетчатый вольер размером 61 см x 61 см x 91,5 см.
3. Кормление и содержание
- Во время уборки клетки оставляйте насекомых внутри вольера; аккуратно снимайте их с растительности и помещайте на дно сетчатого вольера, производя уборку вокруг них.
ПРИМЕЧАНИЕ: Ожидайте, что очистка займет примерно 10–20 мин на клетку. - Еженедельно обеспечивайте свежую листву, например, плющ, ежевику или розу. Убедитесь, что все растительные материалы не содержат пестицидов. Промывайте листву водой из-под крана перед добавлением в клетки для удаления поверхностных загрязнений и контаминантов.
- Подрежьте стебли так, чтобы они поместились в ёмкости (небольшие банки или бутылки), наполненные водопроводной водой, для поддержания влажности листьев. Поместите подготовленные листья внутрь инсектария, следя за тем, чтобы листья находились на возвышении и были доступны насекомым. Аккуратно закройте инсектарий после размещения.
- Во время еженедельной уборки клеток удаляйте увядшие или засохшие листья и скопившиеся экскременты со дна вольера.
ПРИМЕЧАНИЕ: Заменяйте листву, когда листья демонстрируют признаки обезвоживания, такие как сухость, хрупкость, увядание или изменение окраски. Поддержание чистоты окружающей среды имеет важнейшее значение для здоровья и благополучия колонии. - Ежедневно слегка опрыскивайте каждое помещение с помощью 1–2 распыления воды из-под крана из распылителя объёмом 250 мл для обеспечения надлежащего увлажнения.
ПРИМЕЧАНИЕ: Это особенно важно при первый день после вылупления. Уменьшите плотность, если наблюдается быстрое исчерпание корма.
4. Сбор и содержание Carausius morosus птенцы
ПРИМЕЧАНИЕ: В данном исследовании мы используем “птенец” для обозначения особей сразу после вылупления из яйца (первый возраст) “нимфа” относится к ювенильные стадии после постэмбриональных линек
- Соберите вылупившихся личинок в чашки Петри диаметром 6 см.
- С помощью тупых пластиковых пинцетов аккуратно перенесите не более 500 личинок в чистый сетчатый контейнер размером 61 см × 61 см × 91,5 см.
ПРИМЕЧАНИЕ: Собирайте только полностью вышедших и распрямившихся нимф, завершивших расширение экзоскелета. Нарушение покоя нимф до их полного выхода из яйца может нарушить вытягивание тела и привести к преждевременной гибели. По аналогичным причинам постарайтесь свести к минимуму прямое прикосновение к нимфам после их переноса в сетчатый вольер. - Предоставьте свежую листву, как описано в разделе 3.
- Маркируйте новые контейнеры с колониями следующей информацией: дата(ы) сбора яйцевых кладок, дата вылупления или диапазон дат вылупления, а также количество добавленных молодых особей.
ПРИМЕЧАНИЕ: Этот показатель отражает возраст содержания и позволяет прогнозировать начало половой зрелости. - Опрыскайте каждый контейнер тонким слоем воды сразу после перемещения вылупившихся детенышей, а затем ежедневно–2 распыления воды из-под крана из распылителя объёмом 250 мл для обеспечения надлежащего увлажнения.
ПРИМЕЧАНИЕ: Это особенно важно в первый день после вылупления. Молодые особи могут оставаться в одном и том же помещении на протяжении всего периода развития до взрослого состояния. При лабораторных условиях, описанных в разделе 1, примерно 13% вылупившихся особей доживают до взрослого состояния за 4–5 месяцевТаблица 1). - Удаляйте мёртвых или повреждённых детёнышей во время еженедельной уборки клеток, чтобы предотвратить загрязнение.
5. Сбор и содержание C. morosus яйца
- Откройте вольер, содержащий взрослых самок.
- С помощью перчатки аккуратно сдвиньте субстраты со дна клетки, содержащие как яйца, так и экскременты, к переднему отверстию.
- Осторожно перенесите материал в чашку Петри диаметром 15 см для получения яиц, используя перчатку.
6. Умерщвление насекомых и утилизация отходов из вольера
ПРИМЕЧАНИЕ: Когда C. morosus больше не требуются для экспериментов, погибли или яйца не нужны:
- Эвтаназия/утилизация насекомых: Перенесите живых или мёртвых насекомых, которые больше не требуются для культивирования или экспериментов, в автоклавируемый пакет для отходов и храните при температуре -20 °при температуре -80 °C не менее 72 ч
- Уничтожение яиц: Для предотвращения перенаселения удаляйте все яйца не используемые для экспериментов из клеток или чашек Петри, поместите их в автоклавируемый пакет для отходов и храните при -20 °при 4 °C не менее 72 ч.
- Обработка отходов: Поместите зараженные отходы из вольеров или материалов, использованных для сбора яиц или насекомых, в автоклавируемый пакет для отходов и храните при -20 °С °при 4 °C не менее 72 ч.
- После замораживания материалов перенесите пакет для автоклавируемого отхода в контейнер для биоопасных отходов для правильной утилизации.
ПРИМЕЧАНИЕ: Как C. morosus является инвазивным видом за пределами Индии, поэтому крайне важно, чтобы все материалы утилизировались надлежащим образом, как описано выше, для предотвращения их случайного попадания в окружающую среду.
7. Извлечение яйцеклеток
- С помощью тупых пластиковых пинцетов осторожно возьмите каждое яйцо и поместите его в чистую чашку Петри диаметром 6 см.
ПРИМЕЧАНИЕ: Зрелые яйца защищены затвердевшим экзохорием и имеют тёмно-коричневый цвет, напоминая семена растений. При сортировке использовать белый фон, чтобы легче различать экскременты и яйца. - Подпишите чашку с указанием даты и времени сбора материала для целей отслеживания. Во время инкубации оставьте крышку открытой для обеспечения вентиляции.
ПРИМЕЧАНИЕ: Для хранения до 200 яиц достаточно чашки Петри диаметром 6 см. - Примерно за 1 неделю до ожидаемого периода вылупления (74–80 дней после откладки яиц; Ковачикова & Extavour, неопубликованные данные), замените крышку чашки Петри.
- Начните ежедневный контроль за ёмкостями с яйцами до предполагаемой даты вылупления, чтобы наблюдать за появлением птенцов.
8. Продолжительность жизни
- После вылупления отслеживайте особей в процессе пяти-шести линек до достижения репродуктивной зрелости, которая при описанных в разделе 1 лабораторных условиях в среднем наступает через 139 дней после вылупления (Таблица 1).
- Чтобы следовать данному протоколу, определите временные рамки развития при указанных условиях культивирования следующим образом: продолжительность эмбриогенеза (от откладки яиц до вылупления) составляет 74–80 дней; время от вылупления до половой зрелости (начала откладки яиц) составляет приблизительно 135 дней, что соответствует примерно 200 дням от откладки яиц до половой зрелости, а общая продолжительность жизни от откладки яиц до смерти составляет приблизительно 9,5 месяца.
Результаты
Мы собрали данные, документирующие успешное лабораторное разведение C. morosus от яиц до репродуктивно зрелых взрослых особей в период с сентября 2024 г. по ноябрь 2025 г. В течение этого 14-месячного периода мы создали, содержали и контролировали пять клеток по одному или нескольким из следующих показателей: смертность взрослых особей, количество отложенных яиц, сроки вылупления из яиц и выживаемость вылупившихся особей до достижения взрослого состояния. Наш метод обеспечивает долгосрочное содержание колонии без явных признаков заболеваний, вызванных патогенами, или снижения репродуктивной функции, что в противном случае считалось бы субоптимальными результатами. За более чем два года непрерывного культивирования мы не наблюдали явных массовых смертей, связанных с патогенами, а производство яиц и вылупление особей оставались стабильными на протяжении нескольких поколений.
Данные, представленные в Рисунок 1 и Рисунок 2 представлены данные наблюдений за пятью контролируемыми клетками с момента установки до достижения вылупившимися особями взрослого состояния, включая количество отложенных яиц и смертность взрослых особей в каждой клетке. После того как особи-основатели в каждой клетке достигли половой зрелости и начали откладывать яйца, мы зафиксировали количество взрослых особей в каждой клетке для определения исходной численности популяции на момент начала яйцекладки. Изменение количества взрослых особей в каждой клетке с течением времени показано на Рисунок 1 и Таблица 1Мы интерпретируем постепенное снижение выживаемости как возрастную смертность.
Мы параллельно контролировали яйценоскость в тех же пяти клетках, в которых отслеживали выживаемость взрослых особей (Рисунок 1 и Рисунок 2). Ежедневное количество яиц на одну клетку было максимальным в течение первых 30–50 дней яйцекладки, после чего постепенно снижалось. Несмотря на то, что общая яйценоскость варьировалась между клетками (Таблица 2), эта общая закономерность была единообразной во всех пяти повторностях в клетках. Мы наблюдали за динамикой вылупления яиц в течение 50-дневного периода для 105 партий яиц в целом, где каждая партия представляет собой группу яиц, отложенных в одной клетке в течение 24 часов. Для анализа размера партий, представленного в Рисунок 375 партий были разделены на категории: малые, средние и большие. Было установлено, что после вылупления первого яйца в партии 90% завершенность вылупления достигалась в течение 12 дней с момента появления первого птенца (Рисунок 3D), независимо от размера партии (Рисунок 3B). Используя термин «завершение вылупления» для описания доли яиц в кладке, которые вылупились к определенному моменту времени после появления первой особи из данной кладки, мы отмечаем, что распределение кладок по дню 90-процентного завершения вылупления указывает на то, что большинство кладок достигли этого порога в период между 10-м и 14-м днями вылупления (Рисунок 3C) после появления первого вылупившегося зародыша.
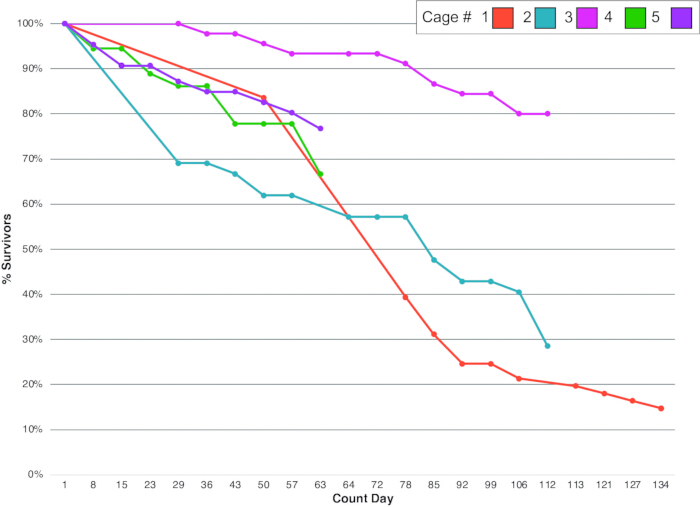
Рисунок 1. Динамика смертности взрослых особей. Траектории выживаемости в пяти повторностях экспериментальных клеток с C. morosus с течением времени. Процент выживаемости отложен по времени для особей в каждой контролируемой клетке. Сводные показатели приведены в таблице 1. Нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
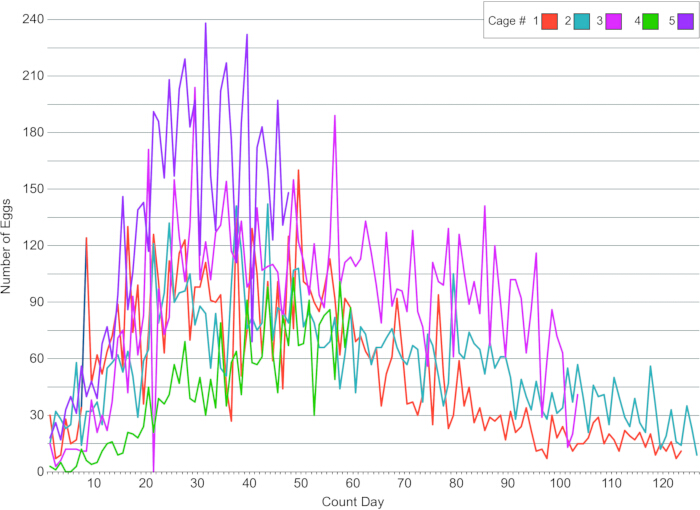
Рисунок 2Динамика производства яиц. Количество яиц, собранных из тех же пяти клеток, за которыми велось наблюдение в Рисунок 1Клетки с 1-й по 5-ю контролировали ежедневно в течение 47, 58, 106, 129 и 132 дней соответственно. На графике представлены данные за первые 126 дней откладки яиц. Сводные показатели см. в Таблица 2. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
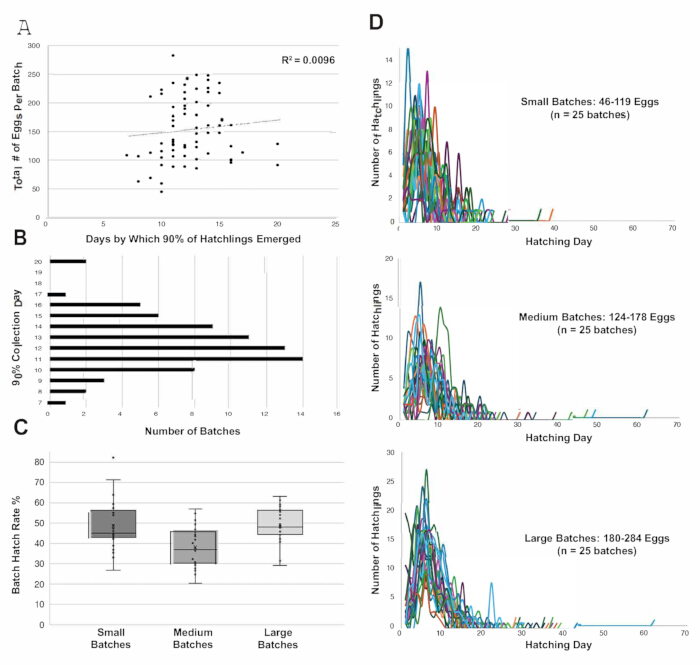
Рисунок 3. Динамика вылупления яиц. (A) Зависимость между общим количеством яиц в кладке и числом дней, необходимых для достижения 90% вылупления. (B) Распределение кладок яиц по дню достижения 90% вылупления в интервале с 7-го по 20-й день. (C) Распределение интенсивности вылупления в кладках малого, среднего и большого размера. n = 25 кладок для каждой категории размера. (D) Траектории вылупления в течение 70-дневного периода сбора для 75 кладок яиц, использованных в анализе размера кладок. Всего было проанализировано 105 кладок яиц; для представленных здесь анализов 75 кладок были разделены по общему количеству яиц с использованием терцильных разделителей. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
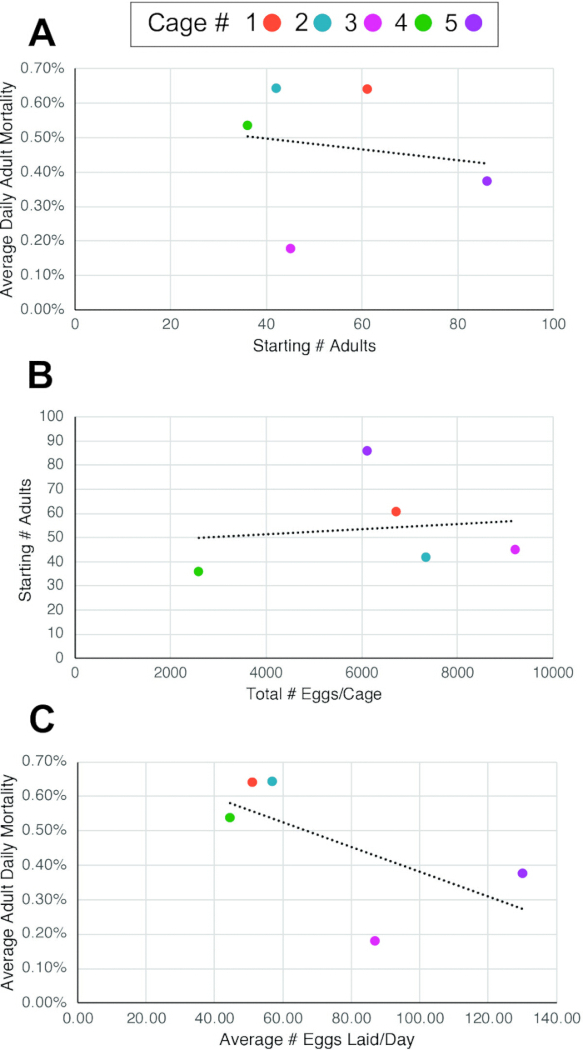
Рисунок 4. Взаимосвязь между количеством взрослых особей, смертностью взрослых особей и производством яиц на одну клетку. (A) Значимой взаимосвязи (R2 = 0.025) между средней ежедневной смертностью взрослых особей и количеством взрослых особей, помещенных в клетку изначально, не обнаружено. (B) Значимой взаимосвязи (R2 = 0.017) между общим количеством произведенных яиц и количеством взрослых особей, помещенных в клетку изначально, не обнаружено. (C) Наблюдается умеренная отрицательная корреляция (R2 = 0.411) между средним ежедневным производством яиц и средней ежедневной смертностью взрослых особей. Средняя ежедневная смертность взрослых особей = (% общей смертности) / (общее количество дней мониторинга). Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
| Номер клетки | номер старой клетки | Первый день вылупления помещены в клетку к основателям | Последний день вылупления помещение потомства в клетку к основателю | # Инкубация помещены в клетку | Интервал дней вылупления были добавлены | Среднее время между началом опыта в клетке и подсчетом взрослых особей | Первый день подсчета взрослых особей | Первый день, когда взрослые особи начали откладывать яйца | Время, прошедшее между вылуплением и достижением взрослого состояния | Время, прошедшее между вылуплением и откладкой яиц | Исходное количество взрослых особей | Выживаемость вылупившихся особей до взрослого состояния вытяжной шкаф | Последний день подсчета взрослых особей | Конечное число взрослых особей | Продолжительность наблюдения за взрослыми особями (кол-во) [дни] | Средняя смертность взрослых за период мониторинга [%] | Среднесуточная смертность взрослых [%] |
| 1 | 7 | 12/7/ 2024 | 12/21/ 2024 | НД | 14.00 | 166.00 | 5/29/ 2025 | 5/29/ 2025 | 173.00 | 173.00 | 61.00 | НД | 10/9/ 2025 | 9.00 | 133.00 | 85.25% | 0.64% |
| 2 | 8 | 2/10/ 2025 | 3/9/ 2025 | НД | 27.00 | 130.00 | 7/17 /2025 | 7/17/ 2025 | 157.00 | 157.00 | 42.00 | НД | 11/5/ 2025 | 12.00 | 111.00 | 71.43% | 0.64% |
| 3 | 9 | 4/5/ 2025 | 4/12/ 2025 | НД | 7.00 | 110.00 | 7/17/ 2025 | 7/27/ 2025 | 103.00 | 113.00 | 45.00 | НД | 11/5/ 2025 | 36.00 | 111.00 | 20.00% | 0.18% |
| 4 | 10 | 5/8/ 2025 | 5/22/ 2025 | 350 | 14.00 | 121.00 | 9/4/ 2025 | 9/13/2 025 | 119.00 | 128.00 | 36.00 | 10.29% | 11/5/ 2025 | 24.00 | 62.00 | 33.33% | 0.54% |
| 5 | 11 | 5/23/ 2025 | 6/6/ 2025 | 536 | 14.00 | 117.00 | 9/4/ 2025 | 9/24/ 2025 | 104.00 | 124.00 | 86.00 | 16.04% | 11/5/ 2025 | 66.00 | 62.00 | 23.26% | 0.38% |
| Средние значения | 15.20 | 128.80 | 131.20 | 139.00 | 54.00 | 13.17% | 29.40 | 95.80 | 46.65% | 0.48% |
Таблица 1: Динамика выживаемости и смертности взрослых особей в экспериментальных клетках.Показатели выживаемости взрослых особей для пяти повторностей экспериментальных клеток. Для каждой клетки указаны: диапазон дат создания клетки, количество вылупившихся личинок, использованных для заселения каждой клетки (для 2 из 5 клеток), выживаемость личинок до достижения взрослого состояния (для 2 из 5 клеток), интервал времени между созданием клетки, началом подсчета взрослых особей и началом откладки икры, продолжительность мониторинга взрослых особей, начальный и конечный размер популяции взрослых особей, смертность взрослых особей за период мониторинга и средняя ежедневная смертность. Выживаемость личинок до достижения взрослого состояния рассчитывалась только для клеток с известным начальным количеством личинок.
| № клетки | Дата начала сбора яиц | Дата окончания сбора яиц | Продолжительность сбора яиц [дней] | Общее кол-во яиц на клетку | Среднее кол-во отложенных яиц в день | Начальное кол-во взрослых особей | Общее кол-во яиц на одну взрослую особь | Среднее кол-во яиц на одну взрослую особь в день |
| 1 | 5/29/2025 | 10/8/ 2025 | 132.00 | 6721.00 | 50.92 | 61.00 | 110.18 | 0.83 |
| 2 | 7/4/2025 | 11/10/2025 | 129.00 | 7333.00 | 56.84 | 42.00 | 174.60 | 1.35 |
| 3 | 7/27/2025 | 11/10/2025 | 106.00 | 9198.00 | 86.77 | 45.00 | 204.40 | 1.93 |
| 4 | 9/13/2025 | 11/10/2025 | 58.00 | 2583.00 | 44.53 | 36.00 | 71.75 | 1.24 |
| 5 | 9/24/2025 | 11/10/2025 | 47.00 | 6104.00 | 129.87 | 86.00 | 70.98 | 1.51 |
| Средние значения | 94.40 | 6387.80 | 73.79 | 54.00 | 126.38 | 1.37 |
Таблица 2: Производство яиц в экспериментальных клетках. Показатели яйцекладки в пяти повторяющихся экспериментальных клетках со взрослыми особями. Для каждой клетки указаны даты начала и окончания сбора яиц, общая продолжительность сбора, суммарное количество отложенных яиц на клетку и среднее количество яиц, откладываемых в день.
Обсуждение
Описанные здесь методы содержания обеспечивают простую и воспроизводимую основу для поддержания лабораторных популяций C. morosus. Хотя C. morosus давно содержится в лабораториях или в качестве домашних животных, протоколы содержания для лабораторных исследований различались в разных работах6,9,10,11,12. Обеспечение стабильных условий окружающей среды и практики кормления важно для того, чтобы C. morosus оставался надежным лабораторным модельным организмом для исследований в области развития, физиологии и эволюции.
Сроки развития C. morosus в сравнении с другими модельными насекомыми
По сравнению с насекомыми с полным превращением (голометабольными), такими как дрозофила Drosophila melanogaster, C. morosus характеризуется более медленными темпами развития и более продолжительной ювенильной фазой. В то время как D. melanogaster завершает эмбриогенез примерно за 24 h и достигает репродуктивной зрелости в течение 10–12 дней при 25 °C13, в наших условиях содержания C. morosus требуется 74–80 дней для эмбриогенеза и приблизительно 135–139 дней после вылупления для достижения репродуктивной зрелости, что в сумме составляет около 200 дней от момента откладки яиц до репродуктивной зрелости при 23 °C (данные не представлены). Столь длительные сроки отражают фундаментальные физиологические и эволюционные различия между неполным (гемиметабольным) и полным превращением насекомых14,15 и неоднократно встречаются у представителей отряда Phasmatodea16,17,18. Хотя другие насекомые с неполным превращением, такие как сверчок Gryllus bimaculatus, завершают эмбриогенез и достигают половой зрелости за более короткий срок (десять дней и шесть недель соответственно при 29 °C19), замедленное развитие C. morosus предоставляет уникальную возможность для проведения воспроизводимых исследований и детального лонгитюдного изучения эмбриогенеза и ювенильного развития.
Источник листвы и методы кормления
В данном протоколе мы описываем использование плюща (Hedera helix) в качестве основного источника пищи для нашей колонии C. morosus, при этом листва собиралась круглый год в одном и том же месте на территории кампуса. Хотя плющ может быть доступен не во всех лабораториях, сообщалось о пригодности нескольких альтернативных растительных источников пищи для поддержания колоний C. morosus, включая ежевику (Rubus spp), бирючину (Ligustrum spp.), пираканту (Pyracantha spp.), розу (Rosa spp.), боярышник однопестичный (Crataegus monogyna), дуб (Quercus spp) и лещину (Corylus spp.)20. Важным аспектом при использовании листвы, собранной из внешних источников, является то, что ее питательный состав контролируется меньше, чем в лабораторных системах, основанных на стандартизированных диетах (например, для Drosophila melanogaster), что может привести к вариативности питания. Чтобы ограничить этот фактор, мы использовали один и тот же вид растений из одного и того же места в течение всех сезонов и предоставляли листву во все клетки раз в неделю во время планового обслуживания клеток. Ветви плюща, используемые для кормления, обычно содержали смесь молодых и зрелых листьев; мы не отбирали ветви с определенной стадией развития листьев. Все листья промывались перед помещением в клетки. График еженедельной замены, предусматривающий удаление всей листвы и ее обновление в один и тот же день, был введен для обеспечения единообразия и управления масштабом колонии. Срезанная листва плюща содержалась в сосудах с водой внутри клеток для поддержания гидратации в течение недели. В большинстве случаев листья оставались в хорошем состоянии в течение всей недели, хотя иногда могло произойти высыхание или истощение, в таких случаях мы заменяли листву чаще, чем раз в неделю.
Размер колонии, показатели выживаемости и репродукция взрослых особей
Правильное создание колонии и тщательный контроль плотности популяции имели ключевое значение для поддержания здоровья животных. Содержание не более чем примерно 500 вылупившихся особей или 50 взрослых особей в вольере размером 61 cm x 61 cm x 91.5 cm обеспечивало стабильные условия, эффективное обслуживание колонии и воспроизводимость наблюдений за развитием.
Сравнение средней ежедневной смертности с количеством взрослых особей-основателей в клетке (Рисунок 4A и Таблица 1) не выявило предсказуемой взаимосвязи между этими двумя параметрами. Аналогичным образом, не было обнаружено сильной прогностической связи между общим количеством взрослых особей-основателей и общим количеством отложенных яиц (Рисунок 4B, Таблица 1 и Таблица 2). Напротив, в клетках с более низкой средней ежедневной смертностью взрослых особей наблюдалась слабая тенденция к более высокому среднему ежедневному выходу яиц (Рисунок 4C). Однако различия между клетками указывают на то, что продуктивность яиц варьировалась среди взрослых особей (Таблица 1 и Таблица 2), что может означать, что на закономерности плодовитости влияют факторы, помимо выживаемости взрослых особей, и что количество яиц, откладываемых ежедневно, может различаться у отдельных самок.
Производство яиц во всех контролируемых клетках в целом снижалось в ходе эксперимента (Рисунок 2). В большинстве клеток самые высокие показатели ежедневной яйцекладки наблюдались в начале репродуктивного периода (первые 50 дней), после чего производство постепенно сокращалось (Рисунок 2). Эта закономерность согласуется с нашим наблюдением о том, что особи обычно достигают половой зрелости и начинают откладывать яйца примерно через 135 дней после вылупления, а смертность начинается примерно через 90 дней после этого (~225 дней после вылупления; данные не представлены).
Сроки и динамика вылупления
В большинстве контролируемых партий яиц вылупление происходило в течение стабильного 12-дневного периода после начала появления первых особей (Рисунок 3D). Аналогичным образом, не было выявлено корреляции между размером партии и временем завершения вылупления 90% особей (Рисунок 3A), при этом в большинстве партий 90% вылупление завершалось в период между 10-м и 14-м днями после появления первого личиночного экземпляра (Рисунок 3B). Столь предсказуемый период вылупления является полезной особенностью при содержании колоний C. morosus, так как позволяет объединять вылупившихся особей в когорты одного возраста, что улучшает стадирование развития и снижает экспериментальную вариабельность. Знание сроков массового вылупления также позволяет более эффективно планировать смену террариумов и распределение ресурсов, включая своевременную подготовку вольеров, растительности и материалов для маркировки, что особенно важно для крупномасштабных или долгосрочных исследований. Несмотря на то, что были изучены как половые, так и партеногенетические виды Phasmatodea, нам не известно о данных, свидетельствующих о том, что один только способ размножения определяет различия в сроках эмбриогенеза. Напротив, сообщалось, что вариации в развитии зависят от конкретного вида и подвержены влиянию условий окружающей среды2.
Работа с яйцами и особенности подбора субстрата
Наш метод работы с яйцами включает сбор яиц непосредственно с пола вольера и их инкубацию в вентилируемых чашках Петри. Такой подход делает яйца легко наблюдаемыми, в отличие от систем разведения сверчков, где яйца собираются в таких субстратах, как кокосовое волокно или хлопковые фитили21. Твердый экзохорион яиц C. morosus обеспечивает защиту при манипуляциях и предотвращает высыхание, что позволяет безопасно проводить инкубацию в чашках Петри без дополнительного субстрата в наших условиях культивирования. В совокупности эти стандартизированные процедуры обеспечивают структурированный подход к поддержанию здоровых популяций C. morosus для воспроизводимых исследований развития, поведения, генетики или физиологии. Стабильный контроль условий окружающей среды (23 °C, 70% RH, 12:12 LD), регулярный уход за вольерами и предсказуемые сроки развития делают C. morosus доступной и недорогой модельной системой. Важно отметить, что, в отличие от некоторых систем с сверчками, где скученность, каннибализм или нагрузка патогенами могут быстро дестабилизировать колонии22, C. morosus легко содержать, что делает их подходящими для крупномасштабных экспериментов и исследований, охватывающих несколько поколений. По мере того как C. morosus будет шире внедряться в качестве модельного вида гемиметабольных насекомых, использование стандартизированных методов должно способствовать воспроизводимости и сопоставимости результатов исследований в различных областях биологии насекомых.
Выживаемость от вылупления до взрослого состояния
Выживаемость от стадии вылупления до достижения взрослого состояния в нашем исследовании (~13%) существенно ниже, чем показатели, представленные в другом количественном исследовании C. morosus выживаемость нимф в контролируемых лабораторных условиях, при которых 68% особей достигли взрослой стадии при ограничении калорийности рациона и до 87% при ad libitum кормление23Мы полагаем, что более низкая выживаемость, наблюдаемая в нашей колонии (~13%) по сравнению с данными предыдущего отчета, обусловлена различиями в условиях содержания животных, что, в свою очередь, отражает разные цели нашего разведения и целей предыдущего исследования. Наш протокол был разработан для поддержания крупных, непрерывно воспроизводящихся колоний, а не для максимизации выживаемости отдельных групп. Таким образом, мы содержали животных при относительно высокой плотности, в отличие от предыдущего исследования, в котором изолированных особей выращивали от икринки до взрослого состояния в индивидуальных клетках.23Мы предполагаем, что описанный здесь метод культивирования с высокой плотностью может привести к повышению смертности по сравнению с индивидуальным содержанием, особенно на ранних стадиях развития нимф, когда особи могут быть более чувствительны к скученности или конкуренции. В наших клетках большего размера также могла сыграть роль вариативность качества растений по сравнению с методом индивидуального выращивания, при котором особей кормили дисками листьев растений строго определенного размера.23Однако, несмотря на сравнительно более низкий уровень выживаемости, наша колония стабильно производила большое количество яиц и оставалась устойчивой с течением времени (Рисунок 1, Рисунок 3, Таблица 1, и Таблица 2). Это свидетельствует о том, что описанный нами подход эффективен для поддержания долгосрочной лабораторной культуры.
Факторы, влияющие на выживаемость, и ограничения протокола
Несколько факторов в данном протоколе могут повлиять на выживаемость и должны тщательно контролироваться. Важным параметром является плотность популяции, так как чрезмерная скученность может снизить выживаемость, особенно на ранних стадиях развития личинок. Другим параметром, влияющим на выживаемость, является адекватная гидратация, особенно на ранних стадиях развития. Все процедуры и временные интервалы, описанные в протоколе, основаны на конкретных условиях окружающей среды, использованных в данном исследовании. Однако изменения влажности, температуры, интенсивности воздушного потока или типа растений могут повлиять на частоту опрыскивания водой, периодичность замены листвы, время вылупления из яиц и общую выживаемость. Например, в более сухих условиях культивирования может потребоваться более частое опрыскивание водой и замена растений для поддержания гидратации. Различные виды растений также могут влиять на питание и развитие. Эти факторы следует корректировать в зависимости от условий разведения и целей эксперимента. Для приложений, требующих высокой выживаемости молоди, индивидуального отслеживания или поведенческих анализов, предпочтительнее использовать более низкую начальную плотность.
Раскрытие информации
Авторы заявляют об отсутствии конфликта интересов.
Благодарности
Этот проект был поддержан грантом Национального научного фонда (National Science Foundation) IOS 22207477, предоставленным CGE, который является исследователем Медицинского института Говарда Хьюза (Howard Hughes Medical Institute). Мы подтверждаем, что Carausius morosus, как полагают, происходит из Тамил-Наду, Индия, и что лабораторные культуры этого вида содержатся за пределами Индии по меньшей мере с 1908 года. Мы искренне благодарим Станислава Горба и Тиса Бюшера (Кильский университет) за предоставление первой группы взрослых особей, использованных для создания нашей культуры, а также всех сотрудников лаборатории Extavour за поддержку, включая бывшего сотрудника лаборатории доктора Упендру Бхаттараи (нынешнее место работы: Брауновский университет), который основал начальную колонию.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Автоклавируемые полипропиленовые пакеты, 30.5 cm × 61 cm | VWR | 95042-554 | Для утилизации насекомых, яиц и отходов из инсектариев |
| Контейнер для биоопасных отходов | N/A | N/A | Для утилизации после замораживания |
| Пластический тупой пинцет | Amazon | B07YZ5FB27 | Для сбора и манипуляций с яйцами и личинками |
| Помещение с климат-контролем или инкубатор | N/A | N/A | Для поддержания 23 °C, 70% RH и фотопериода 12:12 ч свет-темнота |
| Одноразовые перчатки | N/A | N/A | Для сбора яиц и работы с отходами |
| Одноразовые чашки Петри, 150 × 15 mm | VWR | 25384-326 | Для сбора яиц |
| Одноразовые чашки Петри, 60 × 15 mm | VWR | 25384-092 | Для инкубации яиц |
| Свежая листва (листья плюща, ежевики или розы) | N/A | N/A | Источник пищи, не содержащий пестицидов |
| Морозильная камера, -20 °C | N/A | N/A | Для эвтаназии/утилизации, а также замораживания яиц или отходов перед утилизацией |
| Сетчатые инсектарии | Amazon | B09GS2CH1G | Для содержания насекомых |
| Пульверизатор, 250 mL | Amazon | B000H88PCU | Для опрыскивания сетчатых инсектариев |
| Высокий стеклянный контейнер, высота 18–23 cm | N/A | N/A | Для размещения воды и стеблей растений |
| Водопроводная вода | N/A | N/A | Для опрыскивания и поддержания гидратации листвы |
| Белая поверхность или лоток для сортировки | N/A | N/A | Для дифференциации яиц и экскрементов при сортировке |
Ссылки
- Adamski Z, et al. Beetles as model organisms in physiological, biomedical and environmental studies: a review. Front Physiol. 2019;10:319.
- Schwander T, et al. On the repeated evolution of parthenogenesis in stick insects. Evolution. 2026;80(3):513-24.
- Arias AM. Drosophila melanogaster and the development of biology in the 20th century. Methods Mol Biol. 2008;420:1-25.
- Dürr V, König Y, Kittmann R. The antennal motor system of the stick insect Carausius morosus: anatomy and antennal movement pattern during walking. J Comp Physiol A Neuroethol Sens Neural Behav Physiol. 2001;187(2):131-44.
- Roth HL. XIX. Observations on the growth and habits of the stick insect, Carausius morosus, Br.; intended as a contribution towards a knowledge of variation in an organism which reproduces itself by the parthenogenetic method. Trans R Entomol Soc Lond. 1917;64(3-4):345-86.
- Pijnacker LP. The maturation divisions of the parthenogenetic stick insect Carausius morosus Br. (Orthoptera, Phasmidae). Chromosoma. 1966;19(1):99-112.
- Browaeys-Poly E. Extracellular matrix of the regeneration chamber and plasma membranes of the epidermis during leg regeneration in an insect Carausius morosus. Tissue Cell. 1991;23(1):41-55.
- Di Cristina G, et al. Pioneering genome editing in parthenogenetic stick insects: CRISPR/Cas9-mediated gene knockout in Medauroidea extradentata. Sci Rep. 2025;15(1):2584.
- Cavallin M. [“Substitutive polyembryony” and the problem of germinal line origin in the phasma Carausius morosus Br]. C R Acad Hebd Seances Acad Sci D. 1971;272(3):462-5.
- Giorgi F, Cecchettini A, Masetti M. Changes in the patterns of proteins stored and synthesized by developing embryos of the stick insect Carausius morosus Br. Comp Biochem Physiol B. 1990;95(1):107-13.
- Pijnacker LP, Godeke J. Development of ovarian follicle cells of the stick insect, Carausius morosus Br. (Phasmatodea), in relation to their function. Int J Insect Morphol Embryol. 1984;13(1):21-8.
- Pijnacker LP. Effect of centrifugation of the eggs on the sex of Carausius morosus Br. Nature. 1966;210(5041):1184-5.
- Hales KG, Korey CA, Larracuente AM, Roberts DM. Genetics on the fly: a primer on the Drosophila model system. Genetics. 2015;201(3):815-42.
- Truman JW, Riddiford LM. The evolution of insect metamorphosis: a developmental and endocrine view. Philos Trans R Soc Lond B Biol Sci. 2019;374(1783):20190070.
- Truman JW, Riddiford LM. The origins of insect metamorphosis. Nature. 1999;401(6752):447-52.
- Bedford GO. Description and development of the eggs of two stick insects (Phasmatodea: Phasmatidae) from New Britain. Aust J Entomol. 1977;15(4):389-93.
- Kim MJ, et al. Development of a phenology model for egg hatching of walking-stick insect, Ramulus mikado (Phasmatodea: Phasmatidae) in Korea. Forests. 2023;14(9):1710.
- Lee J, et al. Temperature-dependent development and oviposition models of Ramulus irregulariterdentatus (Phasmida: Phasmatidae). J Asia Pac Entomol. 2018;21(3):903-13.
- Donoughe S, Extavour CG. Embryonic development of the cricket Gryllus bimaculatus. Dev Biol. 2016;411(1):140-56.
- Conle O, Hennemann F, Riquelme PV, Kneubühler B. Phasmatodea [Internet]. 2000. Available from: https://www.phasmatodea.com/
- Ventura MK, Stull VJ, Paskewitz SM. Maintaining laboratory cultures of Gryllus bimaculatus, a versatile orthopteran model for insect agriculture and invertebrate physiology. J Vis Exp. 2022; (184):e63277.
- de Miranda JR, et al. Virus diversity and loads in crickets reared for feed: implications for husbandry. Front Vet Sci. 2021;8:642085.
- Roark AM, Bjorndal KA. Bridging developmental boundaries: lifelong dietary patterns modulate life histories in a parthenogenetic insect. PLoS One. 2014;9(11):e111654.
Перепечатки и разрешения
