В данном протоколе описывается метод таймлапс-визуализации живых клеток для наблюдения за антителозависимым фагоцитозом макрофагами клеток трижды негативного рака молочной железы, меченных зеленым флуоресцентным белком, с использованием макрофагов, полученных из мононуклеарных клеток периферической крови, и автоматизированного микроскопа.
Для просмотра этого контента требуется подписка на JoVE. Войдите или начните свой бесплатный пробный период.
Методическая статья
Тайм-лапс визуализация антитело-опосредованного фагоцитоза клеток трижды негативного рака молочной железы, меченных зеленым флуоресцентным белком, макрофагами
* These authors contributed equally
В этой статье
Краткое содержание
Аннотация
Антителозависимый клеточный фагоцитоз представляет собой ключевой механизм, с помощью которого макрофаги поглощают опсонизированные антителами раковые клетки. В данном протоколе описывается метод таймлапс-визуализации живых клеток для наблюдения за антителозависимым фагоцитозом макрофагами клеток трижды негативного рака молочной железы, экспрессирующих CD24 и меченных зеленым флуоресцентным белком. Макрофаги получают из мононуклеарных клеток периферической крови человека, дифференцируют с помощью колониестимулирующего фактора макрофагов и поляризуют с использованием интерферона гамма и липополисахарида для создания провоспалительного фенотипа. Раковые клетки опсонизируют моноклональным антителом к CD24 перед совместным культивированием с макрофагами при определенном соотношении эффекторных клеток к мишеням. Процессы фагоцитоза регистрируют в течение 16 h с помощью автоматизированного микроскопа, оснащенного системой контроля окружающей среды для поддержания физиологических условий. Визуализация проводится в светлом поле и в каналах флуоресценции, что позволяет идентифицировать раковые клетки и контролировать их интернализацию макрофагами. Репрезентативные таймлапс-изображения демонстрируют постепенное поглощение флуоресцентных раковых клеток с течением времени. Для проведения количественной оценки в параллельном конечном анализе при идентичных условиях совместного культивирования неинтернализированные раковые клетки удаляют перед визуализацией, что позволяет точно измерить количество актов фагоцитоза. Данный метод представляет собой стандартизированный и воспроизводимый подход к визуализации антителозависимого фагоцитоза макрофагами in vitro. Важно, что интеграция таймлапс-визуализации с количественным анализом по конечной точке позволяет дополняюще оценивать кинетику и выраженность фагоцитоза. Этот протокол применим для оценки терапевтических антител и иммунотерапии рака, направленной на макрофаги, в контролируемых условиях in vitro.
Введение
Рак молочной железы является наиболее часто диагностируемым злокачественным новообразованием среди женщин во всем мире, составляя примерно 2,3 миллиона новых случаев ежегодно1. Заболевание клинически гетерогенно и классифицируется как минимум на четыре основных молекулярных подтипа в зависимости от статуса гормональных рецепторов — рецептора эстрогена (ER) и рецептора прогестерона (PR) — и экспрессии онкогена рецептора эпидермального фактора роста человека 2 (HER2)2. Люминальные опухоли типа A экспрессируют ER и/или PR без гиперэкспрессии HER2 (ER/PR+ и HER2−); люминальные опухоли типа B коэкспрессируют ER/PR и HER2 (ER/PR+ и HER2+); HER2+-опухоли характеризуются высокой экспрессией HER2 независимо от статуса гормональных рецепторов; а трижды негативный рак молочной железы (ТНРМЖ) характеризуется отсутствием экспрессии всех трех маркеров (ER−, PR− и HER2−)2,3. Среди этих подтипов ТНРМЖ представляет собой наиболее сложную с клинической точки зрения форму и составляет примерно 15%–20% всех случаев рака молочной железы. Пациенты с ТНРМЖ демонстрируют наиболее агрессивное течение болезни с наихудшим прогнозом и самым коротким показателем 5-летней общей выживаемости из-за слабого ответа на традиционную химиотерапию и отсутствия эффективных методов таргетной терапии3,4. Кроме того, ТНРМЖ обладает значительно более высокой склонностью к висцеральному метастазированию, особенно в легкие в течение 5 лет после постановки диагноза, а медиана выживаемости пациентов с распространенным или метастатическим ТНРМЖ (мТНРМЖ) редко превышает 2 года5,6. Эти статистические данные подчеркивают критическую и неудовлетворенную потребность в новых терапевтических стратегиях лечения ТНРМЖ.
Микроокружение опухоли (TME) играет ключевую роль в прогрессировании рака молочной железы и уклонении от иммунного ответа. Опухоль-ассоциированные макрофаги относятся к числу наиболее многочисленных иммунных клеток в TME и в последнее время признаны критическими медиаторами врожденного противоопухолевого иммунитета7,8,9. Хотя исторически TAM разделяли на провоспалительные состояния «M1» и проопухолевые «M2», эта бинарная модель не отражает истинной степени гетерогенности макрофагов. Вместо этого TAM занимают динамический функциональный спектр, эволюционируя в ответ на разнообразные биохимические сигналы внутри TME. В этом сложном ландшафте раковые клетки активно подавляют активность макрофагов с помощью различных стратегий уклонения от иммунного ответа, в частности, за счет гиперэкспрессии сигналов «не ешь меня». Ось CD47/SIRPα стала первым идентифицированным контрольным пунктом врожденного иммунитета в данном контексте6,10, а недавно CD24 проявил себя как новый и мощный антифагоцитарный сигнал11,12. CD24 представляет собой небольшой и сильно гликозилированный гликопротеин муцинового типа, прикрепленный к клеточной мембране посредством гликозилфосфатидилинозитольной связи13. В физиологических условиях он экспрессируется различными линиями иммунных клеток, но часто гиперэкспрессируется в солидных опухолях, включая рак молочной железы, яичников, поджелудочной железы и колоректальный рак14. На опухолевых клетках CD24 взаимодействует с ингибирующим рецептором сиалокислот-связывающим иммуноглобулиноподобным лектином 10 (Siglec-10), экспрессируемым на макрофагах. Это взаимодействие запускает фосфорилирование доменов иммунорецепторного тирозин-содержащего ингибирующего мотива в цитоплазматическом хвосте Siglec-10, активируя фосфатазы SHP-1 и SHP-2, которые подавляют нижележащие фагоцитарные сигнальные пути11. Было показано, что блокада взаимодействия CD24/Siglec-10 с помощью моноклонального антитела значительно усиливает фагоцитоз экспрессирующих CD24 опухолей человека макрофагами. Наше недавнее исследование также показало, что нокаут CD24a в клетках рака молочной железы повышает их восприимчивость к фагоцитозу макрофагами в мышиной модели трижды негативного рака молочной железы9.
Антителозависимый клеточный фагоцитоз (ADCP) является ключевым механизмом, посредством которого антитела направляют макрофаги на фагоцитоз опухолевых клеток15,16. После связывания с экспрессируемыми опухолью антигенами Fc-фрагмент антитела взаимодействует с Fcγ-рецепторами (FcγRs) на макрофагах, запуская внутриклеточные сигнальные каскады, которые приводят к перестройке цитоскелета, формированию фагоцитарной чаши и поглощению клетки-мишени17.
В данном исследовании мы разработали и валидировали протокол тайм-лапс визуализации живых клеток для измерения антитело-зависимого фагоцитоза клеток рака молочной железы макрофагами. В методе используются макрофаги, полученные из мононуклеарных клеток периферической крови (PBMC) здоровых доноров человека, дифференцированные с помощью колониестимулирующего фактора макрофагов (M-CSF) и впоследствии стимулированные липополисахаридом (LPS) и интерфероном гамма (IFN-γ). Анализ методом проточной цитометрии подтвердил повышение экспрессии CD80 в популяции CD11b⁺ после стимуляции (Рисунок 1), что свидетельствует о классически активированном фенотипе. Такое состояние активации обеспечивает высокую антитело-опосредованную фагоцитарную способность, что делает его подходящим для оценки антитело-зависимого клеточного фагоцитоза (ADCP). В качестве клеток-мишеней используются GFP-меченные CD24-положительные клетки рака молочной железы, которые перед совместным культивированием опсонизируются терапевтическим моноклональным антителом к CD24. Процессы фагоцитоза регистрируются в течение 16 ч с помощью автоматизированного микроскопа в контролируемых условиях окружающей среды. Для обеспечения количественной оценки параллельно с динамической визуализацией проводится отдельный конечный анализ в идентичных условиях совместного культивирования, что позволяет точно измерить фагоцитоз после удаления неинтернализованных клеток-мишеней. Данный протокол представляет собой стандартизированную, воспроизводимую и визуально информативную платформу для оценки ADCP, опосредованного антителом к CD24. Важно отметить, что интеграция тайм-лапс визуализации с дополнительной стратегией количественного определения по конечной точке позволяет одновременно оценивать кинетику и величину фагоцитоза. Метод может быть адаптирован для исследования других иммунотерапевтических мишеней, воздействующих на макрофаги. Этот протокол наиболее подходит для оценки ADCP, опосредованного терапевтическими моноклональными антителами против поверхностных антигенов раковых клеток. Он оптимален для сравнительного скрининга антител-кандидатов, характеристики зависимости «доза-эффект» и изучения механизмов взаимодействия Fc–FcγR, включая эффекты блокады сигналов «не ешь меня» (например, CD47–SIRPα). Поскольку в анализе используются первичные макрофаги человека, он также подходит для трансляционных исследований, требующих оценки вариабельности между донорами перед началом клинической разработки.
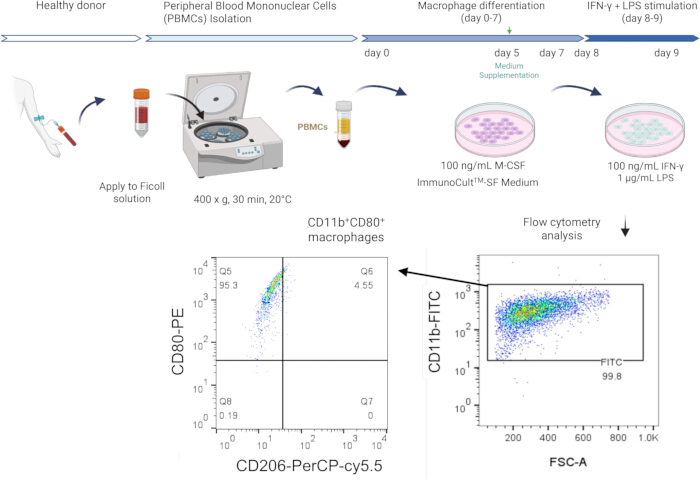
Рисунок 1. Получение и валидация с помощью проточной цитометрии макрофагов, полученных из мононуклеарных клеток периферической крови и стимулированных IFN-γ/LPS. Верхняя панель: Мононуклеарные клетки периферической крови (PBMCs) выделяют из крови здоровых доноров методом центрифугирования в градиенте плотности с использованием раствора Ficoll при 400 × g в течение 30 мин при 20°C, при этом все реагенты предварительно доводят до температуры 20°C ± 2°C. Выделенные PBMCs культивируют в среде ImmunoCult-SF с добавлением 100 ng/mL макрофагального колониестимулирующего фактора (M-CSF) в течение 7 дней для стимуляции дифференцировки макрофагов (дни 0–7) с дополнением среды на 5-й день. На 8-й день дифференцированные макрофаги стимулируют 100 ng/mL IFN-γ и 1 µg/mL LPS в течение 48 ч (дни 8–10). Затем клетки подвергают анализу методом проточной цитометрии. Нижняя панель: Анализ макрофагов методом проточной цитометрии. Клетки окрашивали панелью поверхностных маркеров, состоящей из CD11b-FITC, CD80-PE и CD206-PerCP-Cy5.5, с последующим добавлением DAPI перед сбором данных для исключения мертвых клеток. Стратегия гейтирования: Сначала проводили отбор живых клеток (DAPI⁻), затем идентифицировали CD11b⁺ клетки на графике CD11b-FITC против FSC-A для подтверждения идентичности макрофагов. Живые CD11b⁺ события затем анализировали на точечном графике CD80 против CD206 для подтверждения популяции CD80⁺CD206⁻, индуцированной стимуляцией IFN-γ/LPS. Справа: Репрезентативный точечный график CD11b-FITC против FSC-A, показывающий, что 99,8% отобранных клеток были CD11b⁺, что подтверждает идентичность макрофагов. Слева: Большинство CD11b⁺ клеток попали в гейт CD80⁺CD206⁻ (Q1: 95,2%), что указывает на ожидаемый провоспалительный фенотип при примененных условиях стимуляции. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
При применении данного метода пользователям следует учитывать несколько ограничений. Во-первых, вариабельность доноров при использовании макрофагов, полученных из PBMC, может привести к существенным различиям в показателях фагоцитоза; поэтому мы рекомендуем использовать нескольких доноров (n ≥ 3) с представлением индивидуальных данных по каждому донору наряду с обобщенными результатами. Во-вторых, формат 2D-сокультивирования не воспроизводит микроокружение опухоли, и полученные результаты следует подтвердить в 3D-моделях или in vivo перед формулированием клинических выводов. В-третьих, 16-часовое окно визуализации позволяет зафиксировать ранние события фагоцитоза, но не отражает более длительные процессы, такие как презентация антигена или вторичная иммунная активация. Таким образом, комбинированное использование визуализации в реальном времени и количественного анализа конечной точки создает взаимодополняющую основу, которая повышает как интерпретируемость, так и воспроизводимость измерений ADCP.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Протокол
Данный протокол предполагает использование первичных макрофагов, полученных из образцов крови здоровых доноров. Сбор и обработка образцов проводились в соответствии с рекомендациями Институционального наблюдательного совета (IRB) Медицинского университета Китая.
1. Подготовка макрофагов, полученных из PBMC
ПРИМЕЧАНИЕ: Все процедуры с использованием крови человека должны проводиться при наличии одобрения институционального наблюдательного совета (IRB) (например, IRB CMUH). Перед сбором крови необходимо получить информированное согласие от здоровых доноров.
ПРЕДОСТЕРЕЖЕНИЕ: Все манипуляции с продуктами человеческой крови следует проводить в условиях 2-го уровня биобезопасности (BSL-2), соблюдая универсальные меры предосторожности.
- Забор крови
- Соберите цельную кровь от здорового донора в вакутейнеры объемом 10 mL, содержащие этилендиаминтетрауксусную кислоту (EDTA).
- Разбавление крови
- Разбавьте цельную кровь в соотношении 1:1 ледяным фосфатно-солевым буферным раствором (PBS; без Ca2⁺/Mg2⁺) (например, 10 mL крови + 10 mL PBS).
- Перемешайте путем переворачивания пробирки от трех до пяти раз.
ПРИМЕЧАНИЕ: Храните PBS на льду перед использованием. Низкая температура помогает сохранить жизнеспособность клеток в процессе обработки.
- Наслоение градиента плотности
- Осторожно наслоите разбавленную кровь на Ficoll–Paque PLUS в соотношении объемов 2:1 (v/v) в конической пробирке (например, 8 mL крови на 4 mL Ficoll в пробирке объемом 15 mL или 30 mL на 15 mL в пробирке объемом 50 mL).
- Перед наслоением доведите температуру как разбавленной крови, так и Ficoll–Paque PLUS до 20°C ± 2°C.
- Извлеките Ficoll–Paque PLUS из условия хранения при 4°C минимум за 30 мин до использования или кратковременно прогрейте на водяной бане при 20°C ± 2°C.
- Не используйте холодные реагенты, так как плотность Ficoll откалибрована для 20°C ± 2°C, и отклонения приведут к снижению эффективности разделения и выхода PBMC.
ПРИМЕЧАНИЕ: Наклоните пробирку под углом 45° и медленно вносите кровь пипеткой по стенке, чтобы сохранить четкую границу раздела. Не нарушайте слой Ficoll.
- Центрифугирование
- Центрифугируйте при 400 × g в течение 30 мин при 20°C с выключенным торможением (Рисунок 1).
ПРИМЕЧАНИЕ: Торможение нарушит градиент плотности и снизит выход PBMC.
- Центрифугируйте при 400 × g в течение 30 мин при 20°C с выключенным торможением (Рисунок 1).
- Сбор PBMC
- Осторожно аспирируйте только слой лейкоцитарного ободка (белесоватый интерфейс между слоями плазмы и Ficoll), не затрагивая плазму сверху или слой Ficoll снизу, используя серологическую пипетку.
- Перенесите собранный слой в новую коническую пробирку объемом 50 mL.
- Промывка PBMC
- Добавьте PBS, чтобы довести общий объем до 25 mL в конической пробирке объемом 50 mL.
- Используйте пробирку объемом 50 mL для обеспечения правильного центрифугирования и балансировки.
- Центрифугируйте при 300 × g в течение 10 мин.
- Лизис эритроцитов
- Удалите супернатант.
- Ресуспендируйте осадок в 5 mL буфера для лизиса эритроцитов (RBC), аккуратно перемешивая содержимое серологической пипеткой вверх-вниз до полного диспергирования осадка и исчезновения видимых комков.
- Инкубируйте при комнатной температуре в течение 5 мин.
ПРЕДОСТЕРЕЖЕНИЕ: Для обеспечения равномерного лизиса требуется полное диспергирование; при этом избегайте интенсивного пипетирования или вортексирования, которые могут повредить PBMC. Не превышайте время инкубации с буфером для лизиса RBC более 5 мин, так как длительное воздействие может снизить жизнеспособность PBMC.
- Осаждение PBMC
- Центрифугируйте при 500 × g в течение 5 мин для осаждения PBMC и удаления остатков лизированных эритроцитов.
- Финальное ресуспендирование
- Удалите супернатант.
- Ресуспендируйте осадок в 5 mL среды для макрофагов ImmunoCult-SF.
ПРИМЕЧАНИЕ: В стандартных условиях 10 mL цельной крови обычно дают 1,5–2,0 × 10⁷ PBMC.
2. Дифференцировка макрофагов (дни 0–7)
ПРИМЕЧАНИЕ: Используйте чашки Петри без специальной обработки для культур тканей (non-TC-treated), чтобы отобрать дифференцированные макрофаги, полученные из моноцитов путем адгезии. Неадгезивные лимфоциты будут удалены при последующем промывании культуры.
- День 0: Посев клеток
- Проведите подсчет клеток и посейте 1 × 10⁷ PBMC в чашку Петри диаметром 10 см без TC-обработки.
- Доведите общий объем до 10 mL, используя среду для макрофагов ImmunoCult-SF, дополненную M-CSF в концентрации 100 ng/mL (приготовленной путем добавления стокового раствора M-CSF непосредственно в полную среду перед использованием и перемешивания путем осторожного переворачивания).
ПРИМЕЧАНИЕ: Протокол можно масштабировать пропорционально в зависимости от выхода PBMC от донора, используя в качестве базовой плотности посева 1 × 10⁶ клеток/mL.
- Инкубация и мониторинг
- Инкубируйте при 37°C и 5% CO₂ в увлажненном инкубаторе.
- Ежедневно контролируйте образование плавающих кластеров моноцитов и появление адгезивных клеток.
ПРИМЕЧАНИЕ: По мере дифференцировки моноциты будут постепенно увеличиваться в размере и образовывать кластеры. Некоторые моноциты начнут прикрепляться к поверхности чашки. На этом этапе никакие дополнительные действия не требуются.
- День 5: Добавление среды
- Осторожно добавьте в чашку 5 mL свежей среды для макрофагов ImmunoCult-SF, дополненной M-CSF в концентрации 100 ng/mL, стараясь не беспокоить адгезивные макрофаги.
- Продолжайте культивирование еще в течение 2 дней (до 7-го дня).
ПРЕДОСТЕРЕЖЕНИЕ: Добавляйте свежую среду осторожно по стенке чашки, чтобы избежать смещения адгезивных макрофагов, так как механическое воздействие может повлиять на эффективность дифференцировки и выход клеток.
ПРИМЕЧАНИЕ: Избегайте полной замены среды, чтобы сохранить автокринные/паракринные факторы, поддерживающие дифференцировку макрофагов.
- День 7: Морфологическая оценка
- Оцените эффективность дифференцировки макрофагов с помощью инвертированного микроскопа.
- Адгезивные клетки характеризуются типичной морфологией макрофагов: они крупные, уплощенные, неправильной формы с видимыми псевдоподиями.
- К 7-му дню должны быть видны хорошо дифференцированные макрофаги.
ПРЕДОСТЕРЕЖЕНИЕ: Морфологическая оценка на 7-й день является критически важным условием для последующей валидации методом проточной цитометрии. Хорошо дифференцированные макрофаги должны быть четко видны под микроскопом; большая доля адгезивных клеток с морфологией макрофагов свидетельствует о более высокой эффективности дифференцировки (примерно 70% конфлюэнтности адгезивных макрофагов с характерной морфологией считается показателем успешной дифференцировки). Культуры с низкой адгезией, преобладанием округлых клеток или в целом плохой морфологической дифференцировкой вряд ли дадут надежные результаты проточной цитометрии, поэтому их не следует использовать для стимуляции и окрашивания.
3. Поляризация макрофагов (дни 8–10)
- Сбор и осветление кондиционированной среды
- На 8-й день осторожно аспирируйте 15 mL среды из культуральной чашки, не тревожа адгезивные макрофаги, и перенесите ее в стерильную коническую пробирку объемом 50 mL.
- Центрифугируйте собранную среду при 400 × g в течение 5 min для осаждения клеточного дебриса.
- Сохраните осветленный супернатант для следующего этапа.
- Стимуляция интерфероном гамма (IFN-γ) и липополисахаридом (LPS)
- Перенесите осветленный супернатант объемом 15 mL в новую стерильную пробирку и добавьте 100 ng/mL IFN-γ и 1 µg/mL LPS.
- Тщательно перемешайте путем осторожного пипетирования (5–10 раз), чтобы обеспечить равномерное распределение цитокинов, не создавая пузырьков воздуха.
- Верните все 15 mL среды с добавлением цитокинов в исходную культуральную чашку, осторожно пипетируя вдоль внутренней стенки, чтобы не повредить адгезивные макрофаги.
- Инкубируйте при 37°C в атмосфере 5% CO₂ в течение 48 h (с 8-го по 10-й день).
ПРИМЕЧАНИЕ: Используйте кондиционированную (старую) среду для сохранения автокринных/паракринных факторов. Данная комбинация IFN-γ и LPS используется для поляризации макрофагов в провоспалительный фенотип. В условиях стимуляции IFN-γ (100 ng/mL) и LPS (1 µg/mL), используемых в данном протоколе, макрофаги проявляют характерные морфологические изменения, включая удлиненные ламеллиподии, соответствующие активированному провоспалительному состоянию, а также экспрессию CD11b и CD80.
ПРЕДОСТЕРЕЖЕНИЕ: Работайте с LPS в соответствии с правилами лабораторной безопасности, так как он является биоактивным эндотоксином, который может вызвать воспалительные реакции при контакте.
4. Подтверждение маркеров воспалительного фенотипа макрофагов, стимулированных IFN-γ и LPS, методом проточной цитометрии
- Сбор клеток
- На 10-й день соберите часть поляризованных макрофагов для фенотипирования.
- Добавьте 10 mM EDTA в PBS и инкубируйте в течение 10–15 мин при 37°C.
- Отделите клетки осторожным пипетированием.
ПРИМЕЧАНИЕ: Если клетки остаются адгезивными, продлите инкубацию с EDTA еще на 30 мин при 37°C, затем повторите осторожное пипетирование. Избегайте интенсивного пипетирования или механического соскабливания, чтобы сохранить жизнеспособность клеток и целостность поверхностных маркеров.
- Подготовка к окрашиванию антителами
- Окрасьте клетки флуорохром-конъюгированными антителами против CD11b (маркер всей линии макрофагов), CD80 (маркер воспаления) и CD206 (противовоспалительный маркер, используемый в качестве отрицательного исключающего маркера для идентификации воспалительного фенотипа).
- Процедура окрашивания
- Перенесите 5 × 10⁵ отделенных макрофагов в пробирку для проточной цитометрии, содержащую 100 µL холодного PBS.
- Добавьте антитела CD11b-FITC, CD80-PE и CD206-PerCP-Cy5.5 до конечной концентрации 1 µg/mL для каждого.
- Перемешайте клеточную суспензию осторожным пипетированием.
- Инкубируйте образцы на льду в течение 1 ч в защищенном от света месте.
- Центрифугируйте образцы при 300 × g в течение 1 мин при 4°C.
- Осторожно аспирируйте супернатант.
- Добавьте 0.5 mL холодного PBS для промывки клеточного осадка.
- Центрифугируйте образцы при 300 × g в течение 1 мин при 4°C.
- Удалите супернатант.
- Ресуспендируйте клеточный осадок в 200 µL холодного PBS.
- Добавьте DAPI до конечной концентрации 1 µg/mL.
ПРИМЕЧАНИЕ: Используйте соответствующие изотипические контроли и краситель для определения жизнеспособности (например, DAPI или Viobility 405/452 Fixable Dye).
- Анализ методом проточной цитометрии
- Проанализируйте окрашенные образцы с помощью проточного цитометра.
- Подтвердите экспрессию CD11b и CD80 в популяции макрофагов.
- Приступайте к анализу фагоцитоза только после подтверждения экспрессии маркеров, соответствующей воспалительному фенотипу.
- Сбор данных и настройка проточного цитометра
- Настройка прибора
- Настройте проточный цитометр, используя следующие каналы: Pacific Blue/V450 (DAPI), FITC (CD11b), PE (CD80) и PerCP-Cy5.5 (CD206).
- Установите параметр сбора данных для регистрации 10 000 событий на образец в пределах определенного родительского гейта.
- Калибровка порога и усиления
- Откройте четыре точечных графика, где по оси x отложен FSC, а по оси y — один из каналов флуорофоров.
- Подготовьте клетки, окрашенные соответствующими изотипическими контрольными антителами для каждого флуорофора.
- Соберите данные для образцов с изотипическим контролем.
- Отрегулируйте усиление для каждого канала так, чтобы популяция изотипического контроля находилась ниже 101 по логарифмической шкале.
- Используйте этот порог для определения уровней фонового сигнала.
ПРИМЕЧАНИЕ: Используйте диапазон логарифмической шкалы от 101 до 101·5 для обеспечения надежного разделения между фоновым и специфическим сигналами.
- Компенсация
- Добавьте одну каплю компенсационных бусин в микроцентрифужную пробирку объемом 1.5 mL.
- Добавьте соответствующее флуорохром-конъюгированное антитело до конечной концентрации 1 µg/mL.
- Инкубируйте в течение 30 мин на льду в защищенном от света месте.
- Центрифугируйте при 400 × g в течение 1 мин.
- Удалите супернатант.
- Ресуспендируйте бусины в 200 µL холодного PBS.
- Соберите данные для одноцветных контролей.
- Примените спектральную компенсацию для коррекции перекрытия спектров флуорофоров.
- Стратегия гейтирования
- Отбор живых клеток
- Отобразите Pacific Blue/V450 (DAPI) по оси y и FSC по оси x.
- Установите гейт на DAPI-отрицательные события (ниже 101) для отбора живых клеток.
- Идентификация макрофагов
- Установите популяцию живых клеток в качестве родительского гейта.
- Отобразите FITC (CD11b) по оси y и FSC по оси x.
- Установите гейт на события CD11b⁺ (выше 101).
- Идентификация воспалительного фенотипа
- Установите популяцию CD11b⁺ в качестве родительского гейта.
- Отобразите PE (CD80) по оси y и PerCP-Cy5.5 (CD206) по оси x.
- Примените квадрантное гейтирование на уровне 101.5 по обеим осям.
- Идентифицируйте клетки CD80⁺CD206⁻ в верхнем левом квадранте (Q1).
- Отбор живых клеток
- Настройка прибора
- Критерии приемлемости
- Подтвердите, что ≥90% клеток в родительском гейте CD11b⁺ являются CD80⁺CD206⁻.
- Приступайте к анализу фагоцитоза только при достижении этого порога.
- Повторите выделение PBMC, дифференцировку с помощью M-CSF и стимуляцию IFN-γ/LPS, если образцы не соответствуют этому критерию.
5. Анализ антителозависимого фагоцитоза
ПРИМЕЧАНИЕ: Перед подготовкой к анализу убедитесь в стабильной экспрессии GFP в раковых клетках. Перед началом анализа подтвердите экспрессию CD24 на клетках-мишенях. Для достижения оптимальных результатов используйте раковые клетки с 50%–100% позитивностью по CD24. Клетки MDA-MB-468, используемые в данном протоколе, характеризуются 100% позитивностью по CD24.
- Посев макрофагов
- Высейте макрофаги, стимулированные IFN-γ и LPS (согласно валидации в шаге 4), в 24-луночный планшет для культура тканей из расчета 2 × 10⁵ клеток на лунку.
- Инкубируйте планшет при 37°C в статическом режиме при 5% CO₂ в течение 12–16 ч для обеспечения адгезии клеток (Рисунок 2A).
ПРИМЕЧАНИЕ: Перед переходом к следующему этапу убедитесь в прочной адгезии макрофагов. Плохо прикрепившиеся макрофаги могут отслоиться во время визуализации, что исказит результаты.
- Подготовка раковых клеток
- Культивируйте CD24-положительные GFP-меченые клетки рака молочной железы (MDA-MB-468) до достижения конфлюэнтности 70%–80%.
- Аспирируйте культуральную среду.
- Однократно промойте монослой клеток PBS.
- Открепление раковых клеток
- Добавьте в чашку с культурой 10 mM EDTA в PBS.
- Инкубируйте клетки при 37°C в течение 5–10 мин.
- Открепите клетки путем осторожного пипетирования до полного высвобождения клеток.
ПРИМЕЧАНИЕ: Избегайте использования трипсина для открепления клеток. Ферментативное расщепление может привести к отрыву CD24 от поверхности клеток, что нарушит связывание антител.
- Сбор и подсчет раковых клеток
- Соберите открепленные клетки в центрифужную пробирку.
- Центрифугируйте клетки при 300 × g в течение 5 мин.
- Удалите супернатант.
- Ресуспендируйте осадок клеток в полной среде RPMI .
- Подсчитайте количество жизнеспособных клеток.
- Опсонизация раковых клеток антителами
- Ресуспендируйте раковые клетки с плотностью 2 × 10⁵ клеток/мл в 0,5 мл полной среды RPMI .
- Добавьте моноклональные антитела к CD24 до конечной концентрации 1 µg/mL.
- Смешайте клеточную суспензию осторожным пипетированием для обеспечения равномерного распределения антител.
- Инкубируйте клетки при 37°C в течение 30 мин в статическом режиме.
ПРИМЕЧАНИЕ: В качестве отрицательного контроля антителозависимого фагоцитоза используйте изотипически соответствующий контроль IgG в той же концентрации.
- Подготовка к совместному культивированию
- Не промывайте клетки после опсонизации.
- Переходите непосредственно к совместному культивированию, чтобы сохранить слой антител на поверхности клеток.
- Постановка совместного культивирования
- Добавьте 1 × 10⁵ опсонированных антителами GFP-меченых клеток рака молочной железы в каждую лунку с макрофагами.
- Поддерживайте соотношение эффекторных клеток к клеткам-мишеням 2:1.
ПРИМЕЧАНИЕ: Скорректируйте соотношение эффекторных клеток к мишеням в соответствии с дизайном эксперимента. Используйте более высокие соотношения макрофагов к раковым клеткам, чем описанные 2:1 (например, 3:1 или 5:1), чтобы увеличить частоту межклеточных контактов и улучшить детектирование актов фагоцитоза.
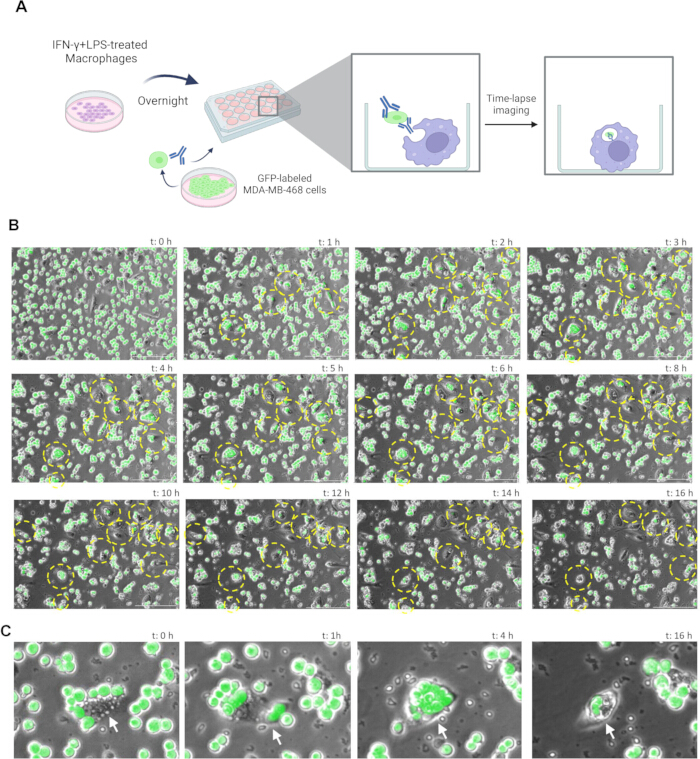
Рисунок 2. Таймлапс-визуализация антителозависимого клеточного фагоцитоза. (A) Схематический обзор системы совместного культивирования и настройки таймлапс-визуализации. Параметры съемки включали интервал 10 min в течение общего времени захвата 16 h (97 кадров) с использованием 10× объектива с фазово-контрастным каналом и каналом GFP. (B) Репрезентативные таймлапс-изображения от 1 h до 16 h, демонстрирующие акты фагоцитоза, характеризующиеся интернализацией GFP-положительных раковых клеток макрофагами с течением времени. Желтые пунктирные круги выделяют репрезентативные акты фагоцитоза. В фазово-контрастном канале поглощенные раковые клетки выглядят как фазово-яркие внутриклеточные структуры в цитоплазме макрофага (белые стрелки). В канале GFP флуоресценция, локализованная внутри макрофагов, подтверждает интернализацию. (C) Увеличенные изображения репрезентативных актов фагоцитоза через 0, 1, 4 и 16 h, иллюстрирующие последовательный процесс макрофаг-опосредованного поглощения GFP-меченых раковых клеток. Последовательность изображений была выбрана как репрезентативная на основании четкой визуализации макрофаг-опосредованных фагоцитарных событий. Белые стрелки указывают на макрофаги, взаимодействующие с таргетными клетками и интернализирующие их. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
6. Таймлапс-визуализация (Автоматизированная система визуализации живых клеток)
ПРИМЕЧАНИЕ: Перед проведением анализа настройте протокол визуализации с помощью автоматизированной системы визуализации живых клеток Lionheart и программного обеспечения для автоматизированной визуализации живых клеток Gen5. Пройдите соответствующий инструктаж перед работой с системой визуализации для обеспечения правильной настройки, оптимальной производительности и безопасного использования.
- Подготовка прибора
- Включите систему визуализации, модуль контроля окружающей среды и подачу газа CO₂ минимум за 1 ч до начала съемки.
- Откройте панель управления окружающей средой (Environment Control) в программном обеспечении для автоматизированного имиджинга живых клеток.
- Установите температуру 37°C и уровень CO₂ 5%.
- Перед установкой планшета убедитесь, что температура в камере стабилизировалась в пределах ± 0.2°C, а уровень CO₂ составляет 5.0% ± 0.1%.
- Подготовка планшета
- Поместите 24-луночный планшет в камеру системы визуализации.
- Начальная конфигурация
- Откройте диспетчер задач (Task Manager) программного обеспечения для автоматизированного имиджинга живых клеток.
- Выберите [Imager manual mode] (ручной режим имиджера).
- Нажмите [Capture now] (снять сейчас) для инициализации параметров визуализации.
- Выберите объектив 10×.
- В настройках фильтра выберите microplate (микропланшет).
- Выберите 24-луночный планшет из библиотеки планшетов программного обеспечения для автоматизированного имиджинга живых клеток.
- Настройка фокусировки и изображения
- Выберите канал фазового контраста (Phase Contrast).
- Выберите репрезентативную лунку (например, A1).
- Активируйте автофокус перед началом таймлапс-съемки.
- Сделайте снимок, используя иконку камеры.
- Подтвердите морфологию клеток и качество фокусировки.
- Перейдите в раздел [Process/Analyze] (обработка/анализ).
- Выберите [Create experiment from an image set] (создать эксперимент из набора изображений) для настройки эксперимента.
- Параметры таймлапс-съемки
- Откройте панель настроек [Procedure] (процедура).
- Установите температуру 37°C и уровень CO₂ 5%.
- В разделе [Start Kinetic] установите время работы 16:00:00.
- Установите интервал съемки 0:10:00.
- Установите общее количество чтений 97.
- Используйте интервал съемки 10–15 мин, чтобы сбалансировать временное разрешение и фототоксичность при фиксации ранних фагоцитарных событий.
- Конфигурация каналов визуализации
- Настройте канал 1 (Channel 1) на фазовый контраст.
- Настройте канал 2 (Channel 2) на GFP (Ex 469/35, Em 525/39).
- Выберите объектив 10× для оптимального поля зрения и разрешения.
- Установите освещение, время интеграции и усиление в режим [Auto] или отрегулируйте их вручную.
- Используйте типичное время экспозиции для GFP 100–300 ms, чтобы избежать насыщения сигнала.
- Применяйте идентичные настройки визуализации для всех лунок.
- Настройка позиций визуализации
- Откройте меню [Define beacons] (определение маяков).
- Отключите сбор Z-стеков (Z-stack acquisition).
- Отключите сбор монтажей (montage acquisition).
- Выполняйте съемку в одной фокальной плоскости.
- Определите позиции съемки вручную, выбирая репрезентативные неперекрывающиеся области в каждой лунке с помощью иконки микроскопа.
- Соблюдайте идентичность позиций съемки для всех временных точек.
- Выберите не менее 4–6 полей зрения на одну лунку.
- Таймлапс-съемка
- Нажмите [Play] для запуска автоматизированной таймлапс-визуализации.
- Экспорт и визуализация данных
- После завершения съемки откройте сохраненный файл эксперимента.
- Выберите позиции визуализации.
- Экспортируйте данные таймлапса в формате MP4.
- Откройте [Process Tool] (инструмент обработки).
- При необходимости примените [Image Deconvolution] (деконволюция изображения) для улучшения визуализации и идентификации репрезентативных событий фагоцитоза.
ПРИМЕЧАНИЕ: Используйте таймлапс-визуализацию только для качественного анализа. Непоглощенные GFP-положительные раковые клетки могут перекрываться или временно взаимодействовать с макрофагами, что приведет к ложноположительным сигналам. Проводите количественный анализ с помощью отдельного конечного анализа (endpoint assay).
7. Количественное определение конечного уровня фагоцитоза
- Удаление неинтернализованных клеток
- Проведите анализ в идентичных условиях совместного культивирования.
- Завершите эксперимент через 4 h.
- Удалите культуральную среду.
- Добавьте 10 mM EDTA в PBS.
- Инкубируйте при 37°C в течение 5 min.
- Осторожно промойте PBS, чтобы удалить неинтернализованные GFP-положительные клетки.
- Добавьте свежую среду для макрофагов.
- Получение изображений для количественного анализа
- Получите изображения, используя фазово-контрастный канал и GFP-канал.
- Зафиксируйте не менее 4–6 полей зрения на одну лунку.
- Проанализируйте минимум три лунки для каждого условия.
- Определение случаев фагоцитоза
- Идентифицируйте макрофаги, содержащие GFP-положительные сигналы, которые полностью находятся внутри клеточной границы.
- Анализ изображений
- Откройте изображения в программном обеспечении ImageJ.
- Используйте плагин Cell Counter.
- Подсчитайте общее количество макрофагов.
- Подсчитайте макрофаги, содержащие интернализованные GFP-положительные клетки.
- Расчет индекса фагоцитоза
- Рассчитайте:
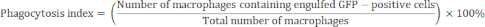
- Проведите анализ «слепым» методом.
- Повторите в трех независимых экспериментах.
- Рассчитайте:
- Представление данных
- Представьте репрезентативные изображения тайм-лапс микроскопии в хронологическом порядке (Рисунок 2B и Рисунок 2C).
- Представьте репрезентативные конечные изображения (Рисунок 3A и Рисунок 3B).
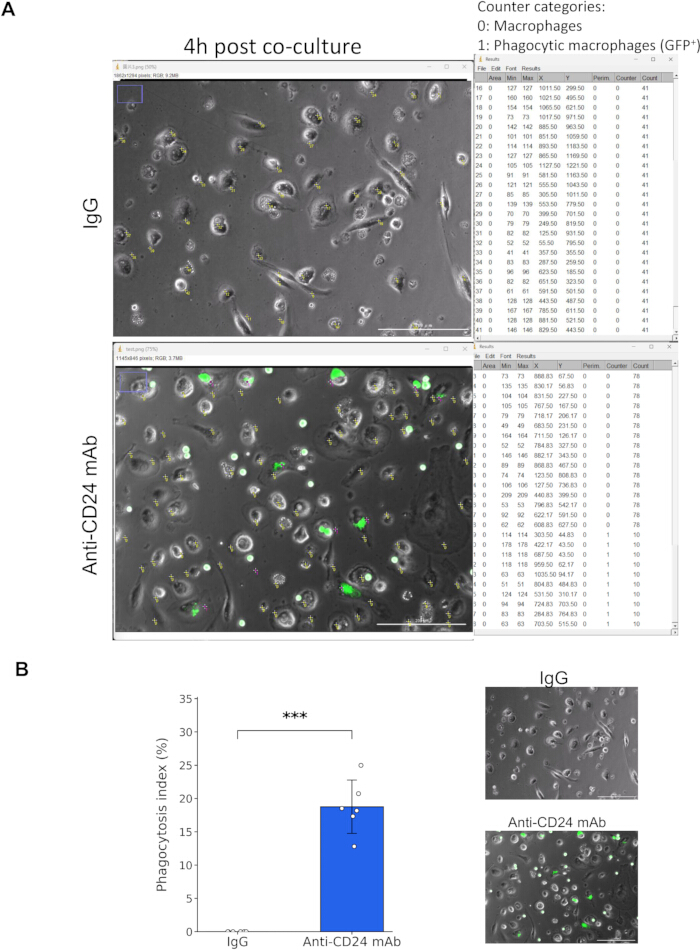
Рисунок 3Количественное определение антителозависимого фагоцитоза макрофагами с помощью конечного анализа. (A) Репрезентативные изображения в фазовом контрасте и GFP-флуоресценции макрофагов, культивируемых совместно с клетками рака молочной железы, меченными GFP, в течение 4 ч, с последующим удалением не поглощенных клеток путем обработки EDTA. Каналы фазового контраста и GFP были совмещены для идентификации макрофагов и интернализованных GFP-положительных мишеней. Количество макрофагов (счетчик 0) и GFP-положительных фагоцитирующих макрофагов (счетчик 1) определяли с помощью плагина Cell Counter в программе ImageJ. В контрольной группе с IgG актов фагоцитоза не наблюдалось, тогда как обработка моноклональными антителами к CD24 приводила к появлению четких внутриклеточных GFP-положительных сигналов в макрофагах, что свидетельствует об активном фагоцитозе. Масштабная линейка = 200 µm(B) Количественная оценка индекса фагоцитоза, определенного как процент макрофагов, содержащих интернализированные GFP-положительные клетки, по отношению к общей популяции макрофагов. Моноклональное антитело к CD24 значительно увеличило индекс фагоцитоза по сравнению с контролем IgG (0.00 ± 0,00% против 18,76% ± 4,01%, среднее значение ± SD; n = 6 полей на группу; ***p < 0,001, непарный t-критерий Уэлча). Данные являются репрезентативными для как минимум трех независимых экспериментов. Пожалуйста, нажмите здесь, чтобы просмотреть эту иллюстрацию в увеличенном виде.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Результаты
Успешная генерация и поляризация макрофагов из PBMC были подтверждены с помощью морфологической оценки и анализа методом проточной цитометрии (Рисунок 1). PBMC, выделенные путем центрифугирования в градиенте плотности, культивировали в среде с добавлением M-CSF, что к 7-му дню привело к появлению адгезивных клеток с характерной морфологией макрофагов. После стимуляции IFN-γ и LPS клетки продемонстрировали фенотип, соответствующий активации в заданных условиях. Анализ методом проточной цитоме...
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Обсуждение
Несколько этапов данного протокола имеют решающее значение для получения надежных и воспроизводимых результатов. Во-первых, качество и чистота выделения PBMC напрямую влияют на выход макрофагов и эффективность их дифференцировки. Для сохранения интерфейса лейкоцитарного слоя крайне важно осторожно наслоить разведенную кровь на градиент Ficoll и проводить центрифугирование с выключенным тормозом. Неполный лизис эритроцитов или чрезмерная инкубация с лизирующим буфером приведут к снижению жизнеспособности PBMC. Во-вторых, ...
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Раскрытие информации
Авторы заявляют об отсутствии конфликта интересов.
Благодарности
Данная работа была поддержана Центром биологии рака и прецизионной терапии Медицинского университета Китая в рамках программы исследовательских центров приоритетных направлений проекта «Росток высшего образования» Министерства образования (MOE) Тайваня (CBPTC-PROJ-5-2).
Мы благодарим Центр биологии рака и прецизионной терапии за предоставление финансирования и академическую поддержку.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Стоковый раствор этилендиаминтетрауксусной кислоты (ЭДТА) 0,5 M | Sigma-Aldrich (или эквивалент) | E7889 (или эквивалент) | Используется для приготовления 10 мМ рабочего раствора ЭДТА в PBS для отсоединения клеток |
| 24-луночные планшеты для культивирования тканей (с TC-обработкой) | Corning (или эквивалент) | 3524 | Используется для совместного культивирования макрофагов и раковых клеток при проведении анализа фагоцитоза |
| Антитела к CD206 человека (проточная цитометрия) | BioLegend (или эквивалент) | 321122 (или эквивалент) | Маркер альтернативного фенотипа макрофагов |
| Моноклональное антитело к человеческому CD24 | Thermo Fisher Scientific (или эквивалент) | MA1-91384 (или эквивалент) | Используется для опсонизации раковых клеток с целью обеспечения антителозависимого фагоцитоза |
| Автоматизированная система визуализации живых клеток с камерой контроля окружающей среды (например, Lionheart FX) | Agilent Technologies (или эквивалент) | Автоматизированный микроскоп BioTek Lionheart FX | обеспечивает возможность проведения длительной таймлапс-визуализации при контролируемой температуре и 2 условия |
| Программное обеспечение для автоматизированной визуализации живых клеток (например, Gen5) | Agilent Technologies (или эквивалент) | Нет данных | Используется для получения и анализа данных таймлапс-визуализации |
| Центрифуга (с ротором с поворотными стаканами) | Thermo Fisher Scientific (или эквивалент) | Центрифуга Multifuge X4R Pro с ротором TX-1000 (или эквивалентом) | Используется для выделения PBMC и этапов промывки клеток |
| 2 инкубатор (37°C, 5% 2) | Thermo Fisher Scientific (или эквивалент) | Forma Direct Heat 2 Инкубатор (или аналог) | Обеспечивает физиологические условия для культивирования клеток |
| 2 газовая подача с регулятором давления | Agilent Technologies (или эквивалент) | Нет данных | Материалы и оборудование 2 для контроля параметров окружающей среды в инкубаторе и системе визуализации |
| Конические пробирки (15 мл и 50 мл) | Corning (или эквивалент) | 352070 (или эквивалент) | Используется для выделения, промывки и центрифугирования мононуклеарных клеток периферической крови (МНКПК) |
| Пробирки для сбора крови с ЭДТА-покрытием (вакутайнеры) | BD Biosciences (или эквивалент) | 367863 (или эквивалент) | Используется для забора образцов цельной крови у доноров |
| Ficoll-Paque PLUS | Cytiva (или эквивалент) | 17144003 (или эквивалент) | Среда с градиентом плотности для выделения мононуклеарных клеток периферической крови (МНКПК) |
| Проточный цитометр (например, FACSCanto II) | BD Biosciences (или эквивалент) | BD FACSCanto II | Используется для фенотипического анализа макрофагов |
| Компенсационные бусины (проточная цитометрия) | Biolegend (или эквивалент) | 424602 | Используется для контролей одноцветной компенсации |
| антитела к CD11b человека, конъюгированные с FITC (проточная цитометрия) | BioLegend (или эквивалент) | 101205 (или эквивалент) | Маркер, используемый для идентификации макрофагов |
| антитела к CD80 человека, конъюгированные с PE (проточная цитометрия) | BioLegend (или эквивалент) | 375410 (или эквивалент) | Маркер, ассоциированный с фенотипом активированных макрофагов |
| Линия клеток рака молочной железы, экспрессирующая GFP (MDA-MB-468) | ATCC (или эквивалент) | HTB-132 (или эквивалент) | Клетки-мишени, используемые в анализе фагоцитоза; GFP обеспечивает визуализацию |
| среда для макрофагов ImmunoCult-SF | STEMCELL Technologies (или эквивалент) | 10961 (или эквивалент) | Бессывороточная среда, используемая для дифференцировки макрофагов |
| Дульбекко’модифицированная среда Игла в Дулозе (DMEM) | Thermo Fisher Scientific (или эквивалент) | 12100046 | Используется для культивирования и ресуспендирования раковых клеток |
| Изотипический контрольный антитело (IgG) | Bio X Cell (или эквивалент) | BE0297 (или эквивалент) | Отрицательный контроль для анализа антителозависимого фагоцитоза |
| Липополисахарид (ЛПС) | Sigma-Aldrich (или эквивалент) | L2630 (или эквивалент) | Стимул, используемый для активации макрофагов в сочетании с IFN-γ |
| Рекомбинантный интерферон гамма человека (IFN-γ) | STEMCELL Technologies (или аналог) | 78020 (или эквивалент) | Цитокин, используемый для активации макрофагов |
| Рекомбинантный человеческий макрофагальный колониестимулирующий фактор (M-CSF) | STEMCELL Technologies (или аналог) | 78057 (или эквивалент) | Фактор роста, используемый для дифференцировки макрофагов |
| Пипетки Пастера или градуированные пипетки | Jetbiofil (или эквивалент) | GSP010010 (или эквивалент) | Используется для работы с жидкостями при выделении PBMC и культивировании клеток |
| ФСБ (без Ca2+)2+-/Mg2+-свободный) | Thermo Fisher Scientific (или эквивалент) | BP399-500 (или эквивалент) | Буфер, используемый для промывки клеток и стадий разведения |
| Чашки Петри (100 мм, нестерильные)–(обработанный для культивирования тканей) | Corning (или эквивалент) | 430591 | Используется для дифференцировки макрофагов методом селекции по адгезии |
| Буфер для лизиса эритроцитов | BioLegend (или эквивалент) | 420301 (или эквивалент) | Используется для удаления эритроцитов при выделении мононуклеарных клеток периферической крови (МНКПК) |
| Фиксируемый краситель Viability 405/452 | Miltenyi Biotec (или эквивалент) | 130-130-404 (или эквивалент) | Используется для оценки жизнеспособности клеток при проведении проточного цитометрического анализа |
| DAPI | Sigma-Aldrich (или эквивалент) | D9542 (или эквивалент) | Используется для исключения мертвых клеток при проточной цитометрии |
Ссылки
- Sung, H., et al. Global cancer statistics 2020: GLOBOCAN estimates of incidence and mortality worldwide for 36 cancers in 185 countries. CA Cancer J Clin. 71 (3), 209-249 (2021).
- Perou, C. M., et al. Molecular portraits of human breast tumours. Nature. 406 (6797), 747-752 (2000).
- Foulkes, W. D., Smith, I. E., Reis-Filho, J. S. Triple-negative breast cancer. N Engl J Med. 363 (20), 1938-1948 (2010).
- Dent, R., et al. Triple-negative breast cancer: Clinical features and patterns of recurrence. Clin Cancer Res. 13 (15 Pt 1), 4429-4434 (2007).
- Lin, N. U., et al. Sites of distant recurrence and clinical outcomes in patients with metastatic triple-negative breast cancer: High incidence of central nervous system metastases. Cancer. 113 (10), 2638-2645 (2008).
- Bianchini, G., De Angelis, C., Licata, L., Gianni, L. Treatment landscape of triple-negative breast cancer - expanded options, evolving needs. Nat Rev Clin Oncol. 19 (2), 91-113 (2022).
- Lecoultre, M., Dutoit, V., Walker, P. R. Phagocytic function of tumor-associated macrophages as a key determinant of tumor progression control: A review. J Immunother Cancer. 8 (2), (2020).
- Mantovani, A., Allavena, P., Marchesi, F., Garlanda, C. Macrophages as tools and targets in cancer therapy. Nat Rev Drug Discov. 21 (11), 799-820 (2022).
- Chan, S. H., Lin, C. Y., Tseng, H. J., Wang, L. H. Cd24a knockout results in an enhanced macrophage- and cd8⁺ t cell-mediated anti-tumor immune responses in tumor microenvironment in a murine triple-negative breast cancer model. J Biomed Sci. 32 (1), 73 (2025).
- Majeti, R., et al. CD47 is an adverse prognostic factor and therapeutic antibody target on human acute myeloid leukemia stem cells. Cell. 138 (2), 286-299 (2009).
- Barkal, A. A., et al. CD24 signalling through macrophage siglec-10 is a target for cancer immunotherapy. Nature. 572 (7769), 392-396 (2019).
- Wang, X., et al. CD24-siglec axis is an innate immune checkpoint against metaflammation and metabolic disorder. Cell Metab. 34 (8), 1088-1103.e6 (2022).
- Chan, S. H., et al. Identification of the novel role of CD24 as an oncogenesis regulator and therapeutic target for triple-negative breast cancer. Mol Cancer Ther. 18 (1), 147-161 (2019).
- Huang, S., Zhang, X., Wei, Y., Xiao, Y. Checkpoint CD24 function on tumor and immunotherapy. Front Immunol. 15, 1367959 (2024).
- Weiskopf, K., Weissman, I. L. Macrophages are critical effectors of antibody therapies for cancer. MAbs. 7 (2), 303-310 (2015).
- Cao, X., et al. Promoting antibody-dependent cellular phagocytosis for effective macrophage-based cancer immunotherapy. Sci Adv. 8 (11), eabl9171 (2022).
- Aderem, A., Underhill, D. M. Mechanisms of phagocytosis in macrophages. Annu Rev Immunol. 17, 593-623 (1999).
- Flannagan, R. S., Jaumouille, V., Grinstein, S. The cell biology of phagocytosis. Annu Rev Pathol. 7, 61-98 (2012).
- Denardo, D. G., Ruffell, B. Macrophages as regulators of tumour immunity and immunotherapy. Nat Rev Immunol. 19 (6), 369-382 (2019).
- Horsthemke, M., Wilden, J., Bachg, A. C., Hanley, P. J. Time-lapse 3d imaging of phagocytosis by mouse macrophages. J Vis Exp. (140), e57566 (2018).
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Перепечатки и разрешения
