Применение CAR-T-клеток при солидных опухолях ограничено сложностью ex vivo вопросы производства и безопасности. В данном протоколе описывается метод для in situ генерация транзиентных CAR-T клеток посредством Доставка мРНК, кодирующей CAR, с помощью липидных наночастиц (ЛНЧ), обеспечивающая воспроизводимую платформу, адаптируемую для других применений в области инженерии иммунных клеток на основе мРНК.
Для просмотра этого контента требуется подписка на JoVE. Войдите или начните свой бесплатный пробный период.
Методическая статья
Генерация CAR-T клеток, специфичных к Claudin18.2, in situ посредством доставки мРНК с помощью липидных наночастиц
* These authors contributed equally
В этой статье
Краткое содержание
Аннотация
Терапия Т-клетками с химерным антигенным рецептором (CAR) достигла значительных клинических успехов при лечении гематологических злокачественных новообразований; однако ее более широкое применение ограничено высокой стоимостью производства и недостаточной эффективностью против солидных опухолей. Для решения этих проблем была разработана стратегия генерации CAR-T клеток in situ на основе доставки мРНК CAR, нацеленной на Claudin18.2, с помощью липидных наночастиц (LNP), что позволяет осуществлять транзиторную продукцию CAR-T клеток непосредственно в тканях опухоли. После трансфекции LNP активированные Т-клетки продемонстрировали эффективную поверхностную экспрессию CAR. Эти транзиторные CAR-T клетки проявили мощную цитотоксическую активность в отношении линий клеток рака желудка, положительных по Claudin18.2, включая NUGC4 и NCI-N87, и обеспечили значительную противоопухолевую эффективность на моделях мышей с опухолями. В данном протоколе подробно описаны процедуры транскрипции мРНК CAR in vitro, формулирования LNP, активации и трансфекции Т-клеток, анализа экспрессии CAR, а также функциональной оценки CAR-T-опосредованной цитотоксичности in vitro и in vivo. В совокупности эта стратегия представляет собой экономически эффективную и универсальную платформу для генерации транзиторных CAR-T клеток и предлагает перспективный подход к лечению солидных опухолей.
Введение
Заболеваемость и смертность от рака стремительно растут во всем мире, что представляет угрозу для выживания человечества и общественного развития. Рак желудка является третьей ведущей причиной смерти от онкологических заболеваний в мире и характеризуется высокой распространенностью1. Из-за низких показателей ранней диагностики у значительной части пациентов заболевание выявляется на поздних стадиях. Традиционные методы лечения включают хирургическое вмешательство, лучевую и химиотерапию. Хирургическая резекция у пациентов с раком желудка на средних и поздних стадиях или при сложных формах заболевания может быть неполной. Кроме того, значительная хирургическая травма и длительный послеоперационный восстановительный период могут отрицательно сказаться на качестве жизни пациентов и потенциально привести к осложнениям. Лучевая и химиотерапия серьезно повреждают здоровые ткани, вызывая многочисленные побочные эффекты в процессе лечения. В противоположность этому, таргетная и клеточная терапия обеспечивают точность и эффективность. Эти методы стали важнейшими современными модальностями медицинской помощи и представляют собой превалирующую тенденцию в выборе будущих терапевтических стратегий.
Появление терапии Т-клетками с химерным антигенным рецептором (CAR-T) привело клеточную терапию к знаковому прорыву. Она продемонстрировала высокую эффективность в лечении гематологических злокачественных новообразований2,3. Терапия CAR-T использует собственные Т-клетки пациента, которые генетически модифицируются in vitro путем вставки специфического химерного антигенного рецептора (CAR). Этот рецептор распознает специфические антигены на поверхности опухолевых клеток и активирует Т-клетки для атаки раковых клеток. В последние годы продвинулись исследования в области применения CAR-T терапии при раке желудка. Выбор терапевтических мишеней имеет критическое значение, так как он определяет точность воздействия и эффективность CAR-T клеток. После HER2 в качестве еще одной перспективной терапевтической мишени при раке желудка выделился Claudin18.2, показатели экспрессии которого у пациентов составляют от 40% до 87%. Обычно Claudin18.2 скрыт внутри слизистой оболочки желудка. Когда злокачественные опухоли разрушают плотные контакты, отвечающие за межклеточный молекулярный обмен, Claudin18.2 экспрессируется на поверхности опухолевых клеток. Это делает его специфической терапевтической мишенью для данных опухолей4.
Как правило, стандартный процесс производства CAR-T клеток включает сбор клеток, селекцию и обогащение T-клеток, активацию T-клеток, конструирование гена CAR, трансдукцию гена, экспансию, контроль качества, хранение и транспортировку с последующим введением пациенту. Весь процесс подготовки CAR-T клеток крайне сложен, требует стерильных условий и строгого соблюдения спецификаций к окружающей среде и оборудованию. Это приводит к высокой стоимости CAR-T терапии, что ограничивает ее клиническое применение. Для решения проблем, связанных со сложностью производства CAR-T клеток ex vivo, была предложена концепция подготовки CAR-T клеток in vivo. Этот подход предполагает прямое программирование CAR-T клеток в организме пациента, что устраняет необходимость в сборе, модификации и экспансии клеток ex vivo. Данная стратегия направлена на снижение затрат, повышение безопасности и доступности, а также на расширение возможностей применения при лечении заболеваний5.
Ключом к подготовке CAR-T-клеток in vivo является выбор оптимального вектора доставки. В настоящее время векторы подразделяют на вирусные и невирусные. Среди вирусных вариантов преимущественно используются лентивирусные (LV) и аденоассоциированные вирусные (AAV) векторы. Однако значительные риски и ограниченная емкость полезной нагрузки, связанные с вирусными векторами, создают серьезные препятствия для клинических исследований6. Основным недостатком вирусных векторов для доставки in vivo является их способность к геномной интеграции, что может привести к генетической токсичности и инсерционным мутациям. В предыдущих случаях у небольшой части пациентов после лечения были задокументированы летальные иммунные ответы или развитие рака. Кроме того, присущая вирусам токсичность и иммуногенность серьезно ограничивают их применение при повторном введении in vivo. Еще одной проблемой является ограниченная емкость полезной нагрузки вирусных векторов, что препятствует одновременной доставке нескольких генов.
Невирусные системы доставки мРНК эффективно решают эти недостатки. Они не интегрируются в геном хозяина и, таким образом, позволяют избежать многих рисков. Их транзиторное действие предотвращает нецелевую токсичность, обеспечивая краткосрочную контролируемую экспрессию CAR-T клеток, что снижает побочные эффекты и риски для безопасности. Среди невирусных систем липидные наночастицы (LNPs) предлагают более безопасный подход. Они преодолевают ограничения по размеру, характерные для вирусных векторов. LNPs также решают проблемы инсерционных мутаций и иммуногенности. Это делает их перспективными кандидатами для CAR-T клеточной терапии с потенциалом снижения токсичности, повышения безопасности и уменьшения затрат7.
Современные исследования в области иммунотерапии солидных опухолей сосредоточены преимущественно на оптимизации состава липидных наночастиц (ЛНЧ), их таргетной модификации и инженерии последовательностей мРНК на различных моделях рака, включая меланому.8, рак молочной железы и колоректальный рак9Также были предприняты усилия по созданию макрофагов с химерным антигенным рецептором (CAR-M).10 и дендритные клетки с химерным антигенным рецептором (CAR-DC)11 через Системы доставки на основе липидных наночастиц (ЛНЧ) для преодоления сложных физических барьеров и иммуносупрессивного микроокружения опухоли (МОО) солидных опухолей. Представленная здесь платформа обеспечивает универсальную невирусную систему доставки мРНК, характеризующуюся высокой модульностью. Путем простой замены последовательности мРНК данная платформа может быть быстро адаптирована для моделей солидных опухолей с таргетированием других антигенов или расширена на неонкологические терапевтические области, такие как аутоиммунные, сердечно-сосудистые и фиброзные заболевания.
Тем не менее, в методах лечения рака желудка с использованием этих платформ сохраняется технический пробел: предыдущие исследования были преимущественно сосредоточены на редактировании миелоидных клеток, в то время как стратегии высокоэффективного перепрограммирования Т-клеток in vivo остаются в значительной степени экспериментальными. Чтобы восполнить этот пробел, в данном протоколе подробно описывается метод получения транзиторных CAR-T клеток via LNP-опосредованной доставки мРНК. Этот подход направлен на преодоление ограничений, присущих традиционной CAR-T клеточной терапии, включая непомерно высокую стоимость, сложные процессы производства и системную токсичность, предлагая тем самым более эффективную и доступную терапевтическую альтернативу для пациентов. Продемонстрировано, что трансфекция Т-клеток оптимизированной последовательностью мРНК, кодирующей специфический CAR, нацеленный на Claudin18.2, обеспечивает стабильную экспрессию CAR на поверхности клеток, что заставляет модифицированные Т-клетки проявлять направленную цитотоксическую активность против специфических опухолевых клеток. Данный протокол разделен на пять отдельных разделов: in vitro транскрипция мРНК CAR, приготовление и характеристика LNP, активация и трансфекция Т-клеток, детекция экспрессии CAR, а также оценка цитолитической эффективности CAR-T клеток in vitro и in vivo.
По сравнению с существующими технологиями доставки мРНК-ЛНЧ, основное методологическое новшество данного протокола заключается в кинетической оптимизации транзиентной экспрессии. Была проведена синергетическая оптимизация 5'-UTR, 3'-UTR, 5'-кэпа и поли(A)-хвоста длиной 120 bp. Этот специализированный дизайн модулирует период полураспада мРНК в микроокружении опухоли, обеспечивая высокоэффективную трансляцию в определенном терапевтическом окне с последующей безопасной деградацией. Благодаря быстрому и транзиентному формированию CAR, данная платформа служит "готовым к применению" препаратом для немедленного использования, что предотвращает прогрессирование заболевания в течение длительного периода производства, необходимого для традиционных методов терапии. Кроме того, такой профиль транзиентной экспрессии обеспечивает контролируемое преимущество в безопасности при воздействии на антигены с потенциальной "целевой внеопухолевой" токсичностью или для пациентов, которые не могут перенести тяжелый синдром выброса цитокинов (CRS), связанный с традиционной CAR-T терапией.
Несмотря на значительные преимущества генерации CAR-T клеток in vivo in situ, а именно устранение сложного ex vivo производства и снижение экономических затрат, сохраняются определенные ограничения. В системном кровотоке ЛНЧ склонны к неспецифическому накоплению в печени и быстрому поглощению макрофагами и дендритными клетками. Без специфических таргетирующих фрагментов, направленных на Т-клетки, эффективность трансфекции целевой популяции Т-клеток неизбежно снижается. Более того, при попадании в опухолевую ткань CAR-T клетки, созданные in situ, подвергаются воздействию враждебного TME; в условиях гипоксии, закисления и иммуносупрессии эти Т-клетки крайне подвержены иммунному истощению, что ограничивает их цитотоксическую активность. Кроме того, хотя транзиторный характер экспрессии мРНК повышает безопасность, он ограничивает продолжительность терапевтического окна. Для достижения устойчивого противоопухолевого эффекта часто требуются периодические и повторные введения. Следовательно, будущие исследования будут сосредоточены на устранении этих ограничений путем повышения эффективности доставки ЛНЧ для обеспечения точного, линейно-специфического таргетинга.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Протокол
Все эксперименты на животных были одобрены Комитетом по этике работы с лабораторными животными Десятой народной больницы Шанхая (номер одобрения: SHDSYY-2025-P0085; дата одобрения: 1 января 2025 г.). Данное исследование соответствует местным законам, правилам и институциональным требованиям. Использовались самки мышей линии NSG в возрасте 6–8 недель. Мононуклеарные клетки периферической крови (МКПК), использованные в данном исследовании, были получены из коммерческого источника. Реагенты и оборудование, использованные в данном исследовании, перечислены в Таблица материалов.
1. Приготовление мРНК CAR
- Подготовка линеаризованных ДНК-матриц
ПРИМЕЧАНИЕ: Плазмида, содержащая последовательность CAR, была линеаризована с помощью рестриктазы BspQI. Выбранный фермент рестрикции должен осуществлять разрез ДНК ниже области промотора с правой стороны и не иметь сайтов распознавания внутри вставленного фрагмента ДНК.- Добавьте дважды дистиллированную воду (ddH2O), 10× буфер, ДНК-матрицу и фермент BspQI в порядке, указанном в Таблице 1. Инкубируйте при 50 °C в течение 2 ч, затем инактивируйте фермент при 80 °C в течение 20 мин. Линеаризованную плазмиду можно хранить при 4 °C.
- Подготовьте реакцию рестрикции в стерильной микроцентрифужной пробирке. Добавьте дважды дистиллированную воду, буфер для рестриктазы, плазмидную ДНК-матрицу и рестриктазу BspQI в строгом порядке и объемах, указанных в Таблице 1.
- Аккуратно перемешайте реакционную смесь, используя дозирование из пипетки вверх-вниз, затем кратковременно центрифугируйте. Инкубируйте смесь при 50 °C в течение 2 ч в амплификаторе для полного переваривания. Инактивируйте рестриктазу, инкубируя смесь при 80 °C в течение 20 мин.
ПРИМЕЧАНИЕ: Дополнительно — храните линеаризованную плазмиду при 4 °C для краткосрочного использования или сразу переходите к контролю качества.
- Приготовьте 1% агарозный гель: взвесьте 0,25 г агарозы и растворите ее в 25 мл 1× Трис-ацетатно-ЭДТА (TAE) буфера. Добавьте 2,5 µL Gel Green и тщательно перемешайте. Доведите до кипения, затем энергично встряхните. Повторите этот процесс трижды перед тем, как залить смесь в форму для отливки геля. Проведите электрофорез при 110 V в течение 10 мин, затем при 130 V в течение 20 мин.
- Выполните визуализацию в ультрафиолетовом (УФ) свете для подтверждения полного переваривания. При сравнении положения полос с маркерами ДНК и неразрезанной плазмидой линеаризованная плазмида показала только две четкие полосы, соответствующие ожидаемым молекулярным массам: целевая последовательность составила приблизительно 1,791 bp, а оставшийся фрагмент — приблизительно 2,535 bp.
- Очистите продукты рестрикции с помощью магнитных частиц для изоляции ДНК.
- Перемешайте магнитные частицы на вортексе для обеспечения полной гомогенизации. Перенесите указанный объем магнитных частиц в образец ДНК и аккуратно перемешайте. Инкубируйте при комнатной температуре (RT) в течение 10 мин для связывания ДНК с частицами.
- Поместите образец на магнитный штатив на 5 мин. Осторожно удалите супернатaнт. Добавьте 200 µL свежеприготовленного 80% этанола для промывки. Инкубируйте при RT в течение 30 с и осторожно удалите супернатант. Повторите этот шаг дважды.
- Оставьте образец на магнитном штативе при комнатной температуре с открытой крышкой на 5 мин для подсушивания. Снимите образец с магнитного штатива. Добавьте 11 µL не содержащей нуклеаз ddH2O. Тщательно перемешайте, используя дозирование из пипетки вверх-вниз. Инкубируйте при комнатной температуре в течение 2 мин. Оставьте раствор на магнитном штативе на 5 мин до полного осветления.
- Осторожно перенесите супернатант в новую пробирку для центрифугирования, не содержащую нуклеаз. С помощью спектрофотометра измерьте концентрацию ДНК; полученную ДНК следует немедленно использовать для транскрипции in vitro. Рассчитайте степень выхода, разделив количество очищенной ДНК на исходное количество добавленной ДНК.
- Добавьте дважды дистиллированную воду (ddH2O), 10× буфер, ДНК-матрицу и фермент BspQI в порядке, указанном в Таблице 1. Инкубируйте при 50 °C в течение 2 ч, затем инактивируйте фермент при 80 °C в течение 20 мин. Линеаризованную плазмиду можно хранить при 4 °C.
- Транскрипция in vitro (IVT)
- Разморозьте на льду все компоненты набора для транскрипции in vitro и кэпирования РНК на основе Т7-РНК-полимеразы (за исключением T7 RNA Polymerase Mix, которую следует хранить при -20 °C до использования). Кратковременно перемешайте буферы на вортексе и центрифугируйте.
- Соберите реакционную смесь для IVT в стерильной, не содержащей нуклеаз микроцентрифужной пробирке при комнатной температуре в объемах, указанных в Таблице 2. Добавляйте компоненты в перечисленном порядке, завершая смесью фермента Т7.
- Тщательно, но аккуратно перемешайте реакционную смесь, постукивая по пробирке или используя дозирование из пипетки вверх-вниз. Кратковременно центрифугируйте для сбора жидкости на дне. Инкубируйте смесь при 37 °C в течение 2 ч в амплификаторе.
- Добавьте 2 µL фермента DNase I непосредственно в реакционную смесь IVT для деградации остаточного матричного ДНК. Аккуратно перемешайте и инкубируйте при 37 °C еще в течение 15 мин. Немедленно переходите к этапу очистки.
- Очистите полученный продукт РНК с помощью магнитных частиц для изоляции РНК, следуя той же процедуре, что и при очистке продуктов переваривания ДНК.
- Растворите в 20 µL воды, не содержащей ферментов. Используйте спектрофотометр NanoDrop для измерения концентрации мРНК и отношения оптической плотности (OD). В качестве холостой пробы используйте 1 µL воды, не содержащей нуклеаз. Отношение OD260/280 должно быть в диапазоне от 1,8 до 2,1, а отношение OD260/230 — от 2,0 до 2,4.
ПРИМЕЧАНИЕ: Если значения выходят за эти пределы, это указывает на наличие загрязнений, и образец необходимо очистить повторно. - Используйте автоматизированную систему капиллярного электрофореза для анализа нуклеиновых кислот и белков, чтобы оценить длину и целостность синтезированной мРНК CAR. Профиль электрофореза должен показывать один резкий пик, соответствующий ожидаемому размеру полноразмерной мРНК CAR (приблизительно 1800 nt), без «хвоста» и с плоской чистой базовой линией. Не должно быть значимых диффузных полос с низкой молекулярной массой или множественных пиков; в противном случае это свидетельствует о деградации РНК.
- Разлейте валидированную мРНК CAR по аликвотам, чтобы избежать повторных циклов замораживания-оттаивания, и храните при -80 °C для длительного сохранения.
- Растворите в 20 µL воды, не содержащей ферментов. Используйте спектрофотометр NanoDrop для измерения концентрации мРНК и отношения оптической плотности (OD). В качестве холостой пробы используйте 1 µL воды, не содержащей нуклеаз. Отношение OD260/280 должно быть в диапазоне от 1,8 до 2,1, а отношение OD260/230 — от 2,0 до 2,4.
2. Приготовление и характеристика ЛНЧ
- Растворите SM102, холестерин, 1,2-дистеароил-sn-глицеро-3-фосфохолин (DSPC) и DMG-PEG2000 в безводном этаноле для приготовления стокового раствора с концентрацией 10 mg/mL. Приготовьте органическую фазу, используя соотношение 1:50:38.5:10:1.5.
- Рассчитайте необходимое количество мРНК, исходя из соотношения 8:1 положительно заряженного аминогруппового азота (N) к отрицательно заряженным фосфатным группам (P). Растворите мРНК в растворе цитрата натрия для приготовления водной фазы. Поддерживайте соотношение органической и водной фаз 1:3 при скорости потока 1.5 mL/min для каждой фазы. Приготовьте LNP с помощью микрофлюидного устройства с «елочковым» смесителем (herringbone mixer).
- Сначала один раз промойте трубки и микрофлюидный чип («елочковый» смеситель) безводным этанолом и раствором цитрата натрия. После перемешивания подготовленных органической и водной фаз путем продувки наберите их в шприц объемом 1 mL; соотношение органической фазы к водной составляет 1:3. Соответственно загрузите их в два канала шприцевого насоса.
- Установите скорость потока для органической и водной фаз. Добавьте 5 mL буфера цитрата натрия (50 mM) в центрифужную пробирку, подключенную к выходу. После вымывания остатков промывочного раствора из трубок запустите устройство и соберите элюат.
- Перенесите LNP, диспергированные в растворе цитрата натрия, в ультрафильтрационную трубку с порогом отсечения 100 kDa, центрифугируйте при 4000 × g в течение 5–10 min, затем добавьте 2.5 mL раствора цитрата натрия и 2.5 mL 1× TBS раствора для их редиспергирования и повторите центрифугирование один раз.
- Добавьте 1 mL раствора цитрата натрия и 4 mL 1× TBS раствора для редиспергирования частиц и снова центрифугируйте. Храните концентрированные LNP в 1 mL TBS раствора при 4 °C в течение короткого периода времени.
- Используйте набор для флуоресцентного количественного определения РНК для измерения содержания мРНК в LNP до и после демульсификации; разница между этими двумя значениями представляет собой эффективность инкапсуляции LNP.
- Приготовьте 1× TE буфер, рабочий раствор зонда и 2% Triton X-100. Разбавьте стандарт мРНК (100 µg/mL) до 2 µg/mL с использованием 1× TE буфера и постройте стандартную кривую с концентрациями: холостой образец, 10, 20, 100, 500 и 1000 ng/mL. Перемешайте на вортексе 4 µL раствора LNP с 16 µL 2% раствора Triton X-100, затем оставьте на 10 min.
- Добавьте 5 µL демульсифицированного раствора LNP к 95 µL 1× TE буфера. Добавьте 100 µL рабочего раствора зонда как в лунки для стандартной кривой, так и в лунки с образцами, тщательно перемешайте, защитите от света и перенесите в 96-луночный планшет с черным дном.
- После инкубации измерьте интенсивность флуоресценции (Ex480/Em520) с помощью микропланшетного ридера. Вычтите значения абсорбции холостых лунок из значений лунок стандартной кривой и лунок с образцами соответственно, чтобы построить стандартную кривую.
- Используя стандартную кривую, рассчитайте концентрации мРНК в растворе LNP до и после демульсификации, умножьте эти значения на 200, чтобы получить концентрации до разбавления, и подставьте их в формулу для расчета:
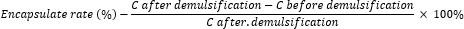
- Возьмите 10 µL LNP и разбавьте в 1 mL TBS раствора. Определите размер частиц, дзета-потенциал и индекс полидисперсности (PDI) с помощью анализатора размеров частиц Malvern.
3. Активация и трансфекция Т-клеток
- Сортировка Т-клеток
- Взять PBMC в концентрации 1 × 10⁷/mL, ресуспендировать при 37 °C, добавить 10 mL буфера для иммуномагнитного разделения клеток, тщательно перемешать, центрифугировать при 500 × g в течение 8 мин и провести подсчет.
- Ресуспендировать клетки и довести плотность до 5 × 10⁷ клеток/mL, добавить по 50 µL изоляционного коктейля (Isolation Cocktail) на 1 mL клеточной суспензии и инкубировать при комнатной температуре в течение 5 мин; добавить по 40 µL магнитных частиц для иммуномагнитного разделения клеток на 1 mL клеточной суспензии и перемешать; поместить пробирку на магнитную стойку и инкубировать при комнатной температуре в течение 10 мин.
- Осторожно перенести обогащенную клеточную суспензию в новую центрифужную пробирку с помощью пипетки. Снять пробирку с магнита, добавить 4 mL свежего буфера для иммуномагнитного разделения клеток и инкубировать еще 5 мин для второго раунда разделения.
- Промыть клетки культуральной средой для Т-клеток (RPMI 1640 GlutaMAX + 10% фетальной бычьей сыворотки + 1% пенициллина/стрептомицина + 100 IU/mL rhIL-2 + 5 ng/mL rhIL-7 + 5 ng/mL rhIL-15), затем центрифугировать и провести подсчет. Добавить культуральную среду для Т-клеток, чтобы довести плотность клеток до 1 × 10⁶/mL, и добавить 12,5 µL магнитных бусин-активаторов человеческих Т-клеток CD3/CD28. Инкубировать при 37 °C в инкубаторе с 5% CO₂ в течение 48 ч для активации клеток.
- Определение параметров активации Т-клеток
- Перенести 200 µL Т-клеток, активированных в течение 48 ч, в микроцентрифужную пробирку объемом 1,5 mL. Удалить магнитные бусины для активации CD3/CD28, добавить 1 mL FACS-буфера для промывки, аккуратно перемешать пипетированием, затем центрифугировать при 500 × g, 4 °C в течение 5 мин. Осторожно удалить супернатант и повторить процедуру 2–3 раза.
- Ресуспендировать клетки в 100 µL FACS-буфера. Добавить по 1 µL антител к человеческим CD3, CD25 и CD69. Аккуратно перемешать образцы и инкубировать на льду в темноте в течение 30 мин.
- Добавить 1 mL FACS-буфера для промывки клеток, центрифугировать, затем осторожно удалить супернатант, добавить 100 µL FACS-буфера и 0,1 µL фиксируемого красителя для мертвых клеток LIVE/DEAD и инкубировать на льду в темноте в течение 10 мин.
- Ресуспендировать клетки в 1 mL FACS-буфера и центрифугировать при 500 x g, 4 °C в течение 5 мин, затем осторожно удалить супернатант. Повторить 2–3 раза. Удалить супернатант и ресуспендировать клетки в 200 µL FACS-буфера. Проанализировать клетки с помощью проточной цитометрии.
- Отобрать целевые клетки по параметрам FSC-A и SSC-A, выделить одиночные клетки по FSC-A и FSC-H, а также идентифицировать живые клетки с помощью красителя для дифференциации живых и мертвых клеток (LIVE/DEAD). Сравнить соотношения CD25 и CD69 между неактивными и активированными Т-клетками.
- Трансфекция Т-клеток LNP
- Исходя из расчета эффективности инкапсуляции, взять необходимый объем LNP в соответствии с количеством мРНК. Сначала центрифугировать LNP, диспергированные в TBS, для их осаждения, затем перенести их в среду RPMI 1640.
- Через 48 ч с помощью магнитной стойки удалить магнитные бусины для активации CD3/CD28. Центрифугировать при 500 × g в течение 8 мин, провести подсчет и добавить культуральную среду для Т-клеток, чтобы довести плотность до 2 × 10⁶ клеток/mL. Добавить 1 µg LNP-мРНК на 1 × 10⁵ клеток. Аккуратно перемешать пипетированием и инкубировать при 37 °C в инкубаторе с 5% CO₂ в течение 4–6 ч.
4. Детекция экспрессии CAR
- Через 4–6 ч после трансфекции осторожно перемешайте CAR-T клетки с помощью пипетки. Перенесите не менее 2 × 10⁵ клеток в микроцентрифужную пробирку объемом 1,5 мл.
- Добавьте 1 мл FACS-буфера в микроцентрифужную пробирку объемом 1,5 мл. Перемешайте пипетированием, затем центрифугируйте при 500 x g в течение 5 мин при 4 °C. Осторожно удалите супернатант. Повторите этот шаг 2–3 раза.
- Ресуспендируйте осадок клеток в 100 µL FACS-буфера и разделите образец на контрольную и экспериментальную группы, по 50 µL в каждой. Добавьте 1 µL антитела для детекции CAR G4S-linker в суспензию клеток экспериментальной группы, осторожно перемешайте образец и инкубируйте на льду в темноте в течение 30 мин. В контрольную группу антитело не добавляйте; инкубируйте на льду.
- Отберите 0,2 µL фиксирующего красителя для мертвых клеток LIVE/DEAD (1000×) и разведите его в 100 µL FACS-буфера; затем внесите по 50 µL в контрольную и экспериментальную группы, осторожно перемешайте образец и инкубируйте на льду в темноте в течение 10 мин.
- Промойте клетки 1 мл FACS-буфера. Центрифугируйте при 500 x g в течение 5 мин при 4 °C. Осторожно удалите супернатант. Повторите 2–3 раза.
- Удалите супернатант и ресуспендируйте клетки в 200 µL FACS-буфера. Проанализируйте клетки с помощью проточной цитометрии.
- Оцените экспрессию CAR, используя следующую стратегию гейтирования: выделите целевые клетки с помощью графика FSC-A и SSC-A, выделите одиночные клетки с помощью графика FSC-A и FSC-H, и выделите живые клетки с помощью фиксирующего красителя LIVE/DEAD.
ПРИМЕЧАНИЕ: Процент, указанный для экспериментальной группы, представляет собой показатель позитивности по CAR, определенный на основе выделения клеток, окрашенных положительно антителом G4S-linker в крайнем правом столбце популяции живых клеток контрольной группы.
5. Анализ цитотоксичности CAR-T клеток in vitro
- Проведите трипсинизацию опухолевых клеток NUGC4 и NCl-N87, экспрессирующих люциферазу. Центрифугируйте при 300 x g в течение 5 мин. Добавьте 1 mL среды RPMI 1640, подсчитайте и доведите плотность клеток до 5 × 10⁴ клеток/mL. Распределите по 100 µL в каждую лунку 96-луночного планшета. В остальные лунки добавьте равный объем фосфатно-солевого буфера (PBS) для предотвращения испарения. Инкубируйте в инкубаторе при 37 °C с 5% CO₂ в течение 24 ч.
- Рассчитайте процент CAR-положительных клеток на основании результатов проточной цитометрии. Добавьте CAR-T или T-клетки в лунки с опухолевыми клетками (100 µL/лунку) в соотношениях эффекторных клеток к клеткам-мишеням 10:1, 5:1, 3:1, 1:1, 1:3 и 1:5. Инкубируйте при 37 °C с 5% CO₂ в течение 24 ч.
- С помощью набора для анализа репортерного гена люциферазы светлячка определите сигнал люциферазы от оставшихся опухолевых клеток согласно инструкции к продукту и рассчитайте скорость уничтожения: (1 - (значение RLU эффекторных клеток/значение RLU клеток-мишеней)) × 100%.
6. Функциональная валидация CAR-T клеток in vivo
- После одного недельного периода акклиматизации перед инокуляцией введите каждой мыши подкожно в подмышечную область 5 × 10⁶ Клетки NUGC4. Ежедневно измеряйте размер опухоли и вычисляйте объем опухоли по формуле: V (мм3) = L × W2/2 (где L — наибольший диаметр опухоли, а W — наименьший диаметр), пока размер опухоли не достиг 100 мм3.
- Случайным образом разделите мышей на четыре группы по три животных в каждой: три группы лечения, получающие различные дозы препарата, и контрольная группа, получающая PBS.
ПРИМЕЧАНИЕ: Закон о слепоте не был введен в действие. - После инкубации 10 µg мРНК в количестве 1 × 10⁶ активированные Т-клетки в течение 4 ч, подготовить дозы 5 × 10⁵ клеток/мышь, 1 × 10⁶ клеток/мыши и 2 × 10⁶ клеток на мышь. Введите смесь LNP и Т-клеток мышам посредством инъекция в хвостовую вену; каждой мыши вводили 100 µL объем клеток или PBS. Дозы вводили в 1-й, 4-й, 7-й и 10-й дни, всего четыре раза.
- Измеряйте размер опухоли у мышей в дни 0, 2, 4, 6, 8, 10, 12 и 14, рассчитывайте объем опухоли и постройте кривую роста. Представьте данные в виде среднего значения ± SD. Проанализируйте различия между группами с помощью двухфакторного дисперсионного анализа (ANOVA) в программе для статистической обработки и построения графиков в сочетании с тестом Тьюки для множественных сравнений. ns: статистически не значимо; *P < 0.05; **P < 0.01; ***P < 0.001; ****P < 0.0001.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Результаты
Была использована последовательность CAR, нацеленная на Claudin18.2, состоящая из одноцепочечного вариабельного фрагмента (scFv) гуманизированного моноклонального антитела к Claudin18.2, шарнирного участка CD8, трансмембранного участка CD28, костимулирующего домена и активационного домена CD3ζ. На основе этой последовательности была сконструирована ДНК-матрица, содержащая T7-промотор и поли-А хвост, для транскрипции мРНК CAR in vitro (Рисунок 1A). Длина мРНК CAR составила приблизите...
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Обсуждение
Данный протокол описывает невирусную систему доставки мРНК, которая исключает интеграцию в геном хозяина, тем самым сводя к минимуму многочисленные риски, включая иммунное отторжение. Транзиторный характер ее функционирования также предотвращает нецелевую токсичность, обеспечивая краткосрочную контролируемую экспрессию в CAR-T клетках для снижения побочных эффектов и рисков для безопасности.
Для регулирования эффективности трансляции и продолжительности экспрессии была проведена оптимизация ди...
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Раскрытие информации
Авторы заявляют об отсутствии конфликта интересов
Благодарности
Мы выражаем благодарность Шанхайскому университету и Центральной лаборатории Десятой народной больницы Шанхая за предоставление исследовательской базы для данной работы.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Абсолютный этанол | Sigma-Aldrich | 459836 | Органическая фаза |
| Агароза | Beyotime | ST004L | Гель-электрофорез |
| мАТ к G4S-линкеру (B02H1) PE | Hycells | GS-ARPE100 | Детекция CAR |
| Рестриктаза BspQI | NEB | R0712 | Линеаризация плазмиды |
| BV421 мышиные антитела к CD25 человека | BD Biosciences | 564033 | Маркер активации |
| Активирующие частицы CD3/CD28 | Thermo Fisher Scientific | 11161D | Активация Т-клеток |
| Холестерин | Sigma-Aldrich | C8667 | Структурный липид |
| Инкубатор для культивирования клеток с CO2 | Thermo Fisher / эквивалент | 250i | Для культивирования Т-клеток и опухолевых клеток |
| DMG-PEG2000 | Avanti Polar Lipids | 880151 | ПЭГилированный липид |
| Магнитные частицы для выделения ДНК | SYNTHGENE | 10501-005 | Очистка ДНК |
| ДНКаза I (без РНКаз) | NEB | M0303L | Удаление матрицы ДНК |
| DSPC | Avanti Polar Lipids | 850365 | Фосфолипид |
| Анализатор динамического рассеяния света | Malvern Panalytical | Zetasizer | Для определения размера LNP, PDI и дзета-потенциала |
| Буфер EasySep | STEMCELL Technologies | 20144 | Магнитная сепарация |
| Фетальная бычья сыворотка (FBS) | Gibco | 10099-141 | Добавка к среде культивирования |
| FITC мышиные антитела к CD3 человека | BD Biosciences | 555332 | Идентификация Т-клеток |
| Проточный цитофлуориметр | BD Biosciences / эквивалент | FACSCelesta / LSRFortessa | Для анализа CAR и маркеров активации |
| Краситель для нуклеиновых кислот GelGreen | Biotium | 41005 | Визуализация ДНК |
| Фиксируемый краситель LIVE/DEAD | Invitrogen | L34955 | Окрашивание на жизнеспособность |
| Набор для анализа люциферазы | Promega | E1500 | Оценка цитотоксичности |
| Стойка для магнитной сепарации | STEMCELL Technologies / эквивалент | 18000 | Для выделения PBMC и Т-клеток |
| Спектрофотометр Nanodrop | Thermo Fisher Scientific | NanoDrop 2000 | Для количественного определения ДНК/РНК |
| Самки мышей линии NSG (6–8 недель) | Jackson Laboratory | 5557 | Модель in vivo |
| PBMC | Shanghai Saili Biotechnology Company | ||
| ПЦР-термоциклер | Bio-Rad / эквивалент | T100 | Для амплификации ДНК |
| PE мышиные антитела к CD69 человека | BD Biosciences | 557050 | Ранняя активация |
| Пенициллин-стрептомицин | Gibco | 15140-122 | Антибиотики |
| Анализатор нуклеиновых кислот Qsep | BiOptic Inc. | Qsep100 | Для анализа размера и целостности мРНК |
| Набор Quant-iT RiboGreen RNA | Invitrogen | R11490 | Эффективность инкапсуляции |
| RapidSpheres | STEMCELL Technologies | 15061 | Магнитное мечение |
| Рекомбинантный человеческий IL-15 | PeproTech | 200-15 | Поддержание фенотипа памяти |
| Рекомбинантный человеческий IL-2 | PeproTech | 200-02 | Экспансия Т-клеток |
| Рекомбинантный человеческий IL-7 | PeproTech | 200-07 | Выживаемость Т-клеток |
| Охлаждаемая центрифуга | Eppendorf / эквивалент | 5425R | Для концентрирования LNP и обработки клеток |
| Маркер РНК 6000 (Ladder) | Thermo Fisher Scientific | AM7152 | Характеристика РНК |
| Набор картриджей для РНК (1 шт.) | Bioptic | C105110 | Контроль качества РНК |
| Магнитные частицы для выделения РНК | SYNTHGENE | 10511-005 | Очистка мРНК |
| Вода без РНКаз | Thermo Fisher Scientific | AM9937 | IVT и работа с РНК |
| RPMI 1640 GlutaMAX | Gibco | 61870-036 | Культивирование Т-клеток |
| SM-102 | MedChemExpress / эквивалент | HY-112563 | Ионизируемый липид |
| Коктейль для выделения Т-клеток | STEMCELL Technologies | 15061 | Выделение CD3+ Т-клеток |
| Набор T7 для ко-транскрипции и кэпирования | SYNTHGENE | 10111-3011 | Синтез мРНК путем IVT |
| Буфер TBS | Gibco | 3005 | Хранение LNP |
| Трипсин-ЭДТА | Gibco | 25200-056 | Открепление клеток |
| Система визуализации УФ-гелей | Syngene / эквивалент | NuGenius/NuGenius+ | Для проверки расщепления ДНК |
Ссылки
- Bray F, Ferlay J, Soerjomataram I, Siegel RL, Torre LA, Jemal A. Global cancer statistics 2018: GLOBOCAN estimates of incidence and mortality worldwide for 36 cancers in 185 countries. CA Cancer J Clin. 2018;68(6):394-424.
- Saez-Ibañez AR, Upadhaya S, Partridge T, Shah M, Correa D, Campbell J. Landscape of cancer cell therapies: trends and real-world data. Nat Rev Drug Discov. 2022;21(9):631-632.
- Dunbar CE, High KA, Joung JK, Kohn DB, Ozawa K, Sadelain M. Gene therapy comes of age. Science. 2018;359(6372):eaan4672.
- Jiang H, Shi Z, Wang P, Li X, Hou W, Zhang H, et al. Claudin18.2-specific chimeric antigen receptor engineered T cells for the treatment of gastric cancer. J Natl Cancer Inst. 2019;111(4):409-418.
- Baker DJ, Arany Z, Baur JA, Epstein JA, June CH. CAR T therapy beyond cancer: the evolution of a living drug. Nature. 2023;619(7971):707-715.
- Raguram A, Banskota S, Liu DR. Therapeutic in vivo delivery of gene editing agents. Cell. 2022;185(15):2806-2827.
- Khawar MB, Afzal A, Si Y, Sun H. Steering the course of CAR T cell therapy with lipid nanoparticles. J Nanobiotechnology. 2024;22(1):380.
- Hamilton AG, Thatte AS, Xu J, Mai D, Billingsley MM, Mitchell MJ, et al. High-throughput in vivo screening using barcoded mRNA identifies lipid nanoparticles with extrahepatic tropism for in situ immunoengineering. Adv Mater. 2026;38(13):e14370.
- Żak MM, Yoo J, Utrero-Rico A, Kim J, Smith R, Wang L, et al. A tumor-selective mRNA system enables precision cancer treatment. Mol Ther. 2026;34(2):1066-1083.
- Han JH, Fagan E, Yeom K, Park JH. In situ chimeric antigen receptor macrophage therapy via co-delivery of mRNA and immunostimulant. ACS Nano. 2025;19(48):40798-40816.
- Chen X, Li X, Yan Y, Wang J, Liu Y, Zhang Q, et al. Splenic dendritic cell-targeting mRNA transfection of H-type ionizable lipid-based LNPs for enhancing tumor immunotherapy. Bioact Mater. 2026;61:429-447.
- Roundtree IA, Evans ME, Pan T, He C. Dynamic RNA modifications in gene expression regulation. Cell. 2017;169(7):1187-1200.
- Ikeda RA, Richardson CC. Interactions of the RNA polymerase of bacteriophage T7 with its promoter during binding and initiation of transcription. Proc Natl Acad Sci U S A. 1986;83(11):3614-3618.
- Holtkamp S, Kreiter S, Selmi A, Simon P, Koslowski M, Huber C, et al. Modification of antigen-encoding RNA increases stability, translational efficacy, and T-cell stimulatory capacity of dendritic cells. Blood. 2006;108(13):4009-4017.
- Tada M, Abe N, Inagaki M, Sato K, Yamaguchi T, Tanaka H, et al. The effect of cap structure and poly(A) positioning on mRNA translation efficiency. Angew Chem Int Ed Engl. 2025;64(50):e202514124.
- Ye Z, Chen J, Zhao X, Li Y, Wang X, Zhang Y, et al. In vitro engineering chimeric antigen receptor macrophages and T cells by lipid nanoparticle-mediated mRNA delivery. ACS Biomater Sci Eng. 2022;8(2):722-733.
- Billingsley MM, Singh N, Ravikumar P, Zhang R, June CH, Mitchell MJ. Ionizable lipid nanoparticle-mediated mRNA delivery for human CAR T cell engineering. Nano Lett. 2020;20(3):1578-1589.
- Billingsley MM, Hamilton AG, Mai D, Singh N, Zhang R, Lee Y, et al. Orthogonal design of experiments for optimization of lipid nanoparticles for mRNA engineering of CAR T cells. Nano Lett. 2022;22(1):533-542.
- Zong Y, Lin Y, Wei T, Cheng Q. Lipid nanoparticle (LNP) enables mRNA delivery for cancer therapy. Adv Mater. 2023;35(51):e2303261.
- Sun D, Lu ZR. Structure and function of cationic and ionizable lipids for nucleic acid delivery. Pharm Res. 2023;40(1):27-46.
- Su FY, Zhao QH, Dahotre SN, Li X, Wang Y, Zhang Z, et al. In vivo mRNA delivery to virus-specific T cells by light-induced ligand exchange of MHC class I antigen-presenting nanoparticles. Sci Adv. 2022;8(8):eabm7950.
- Herrera-Barrera M, Ryals RC, Gautam M, Patel A, Kim S, Wilson J, et al. Peptide-guided lipid nanoparticles deliver mRNA to the neural retina of rodents and nonhuman primates. Sci Adv. 2023;9(2):eadd4623.
- Kheirolomoom A, Kare AJ, Ingham ES, Mahakian LM, Tam SM, Silvestrini MT, et al. In situ T-cell transfection by anti-CD3-conjugated lipid nanoparticles leads to T-cell activation, migration, and phenotypic shift. Biomaterials. 2022;281:121339.
- Tombácz I, Laczkó D, Shahnawaz H, Muramatsu H, Natesan A, Yadegari A, et al. Highly efficient CD4+ T cell targeting and genetic recombination using engineered CD4+ cell-homing mRNA-LNPs. Mol Ther. 2021;29(11):3293-3304.
- Rurik JG, Tombácz I, Yadegari A, Méndez Fernández PO, Shewale SV, Li L, et al. CAR T cells produced in vivo to treat cardiac injury. Science. 2022;375(6576):91-96.
- Shi D, Toyonaga S, Anderson DG. In vivo RNA delivery to hematopoietic stem and progenitor cells via targeted lipid nanoparticles. Nano Lett. 2023;23(7):2938-2944.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Перепечатки и разрешения
Эта статья была опубликована
Видео скоро будет доступно