Данный протокол представляет собой стандартизированный метод разреза внутри камеры для определения момента начала, времени достижения пика и кинетики эмиссии летучих веществ, индуцированной повреждением, в сочетании с одновременным измерением газообмена.
Методическая статья
Метод среза внутри камеры для количественного определения летучих веществ, выделяющихся при повреждении листьев, и газообмена в режиме реального времени
31 просмотров
⸱
11 сентября 2026 г.
В этой статье
Краткое содержание
Аннотация
Летучие органические соединения (ЛОС), выделяемые листьями растений, играют ключевую роль в передаче сигналов о стрессе, взаимодействиях растений с атмосферой и защитных механизмах растений. Среди них ЛОС, индуцируемые повреждением (wVOCs), эмитируются в течение нескольких секунд после механического повреждения, поедания насекомыми или воздействия факторов окружающей среды. Динамика их эмиссии сильно зависит от времени, степени тяжести и способа повреждения тканей. Тем не менее, точный количественный анализ остается сложной задачей из-за механических артефактов, переменных условий экспозиции и задержек между моментом повреждения и измерением. В данной работе представлен стандартизированный протокол иссечения листа внутри камеры для мониторинга wVOCs и газообмена в режиме реального времени. Хирургический резак был интегрирован в портативную камеру газообмена для обеспечения чистых контролируемых разрезов внутри герметичной камеры при стабильном освещении, влажности, уровне CO2 и температуре. Масс-спектрометр с временным пролетом и реакцией с переносом протона (PTR-TOF-MS) непрерывно измерял эмиссию летучих веществ на выходе из камеры, что минимизировало задержку и искажение сигнала. Данная установка позволяет с высокой временной точностью определять момент начала эмиссии, время достижения пика, максимальную скорость нарастания и общий объем выброса. Применение метода к Quercus rubra, Acer platanoides и Gossypium hirsutum продемонстрировало его способность выявлять различные паттерны эмиссии, индуцированной повреждением, у разных типов листьев. Устраняя задержки, характерные для традиционного отбора проб, этот метод позволяет восстановить полную кинетическую траекторию эмиссии, вызванной повреждением, и преодолеть основные ограничения предыдущих подходов. Он представляет собой надежную основу для изучения быстрых стрессовых реакций в физиологии растений, экологической биохимии и взаимодействиях растений с атмосферой.
Введение
Растения реагируют на повреждения путем быстрого выброса химического сигнала, однако точная регистрация этого сигнала остается технически сложной задачей. В течение нескольких секунд после поедания насекомыми, повреждения ветром или механического воздействия растения выделяют кратковременный всплеск летучих органических соединений (ЛОС), которые активируют внутренние механизмы защиты и подготавливают соседние растения1,2,3,4. Эти индуцированные ранением ЛОС (wVOCs) включают летучие вещества «зеленого листа» (GLVs), метанол, короткоцепочечные спирты и альдегиды, терпеноиды и производные оксилипинов. Они образуются либо в результате синтеза de novo в клетках мезофилла, либо при разрыве структур хранения, таких как смоляные ходы и трихомы. Будучи непосредственными сигналами стресса, wVOCs координируют физиологическую защиту, опосредуют взаимодействие между растениями и влияют на химические процессы в атмосфере1,5,6,7.
Поскольку естественное поедание растительноядными сочетает механическое повреждение с воздействием элиситоров слюны и микроорганизмов, в экспериментальных исследованиях используют имитацию повреждения, чтобы изолировать ответы только на физическую травму8. Однако кратковременный характер wVOC делает их захват крайне затруднительным. Традиционные методы, такие как статический отбор проб из надголовного пространства в сочетании с газовой хромато-масс-спектрометрией (GC-MS), часто упускают начальный всплеск эмиссии и искажают ее кинетический профиль9,10. Задержки уравновешивания, повышенные температуры инкубации и удлиненные линии отбора проб увеличивают время пребывания и искажают регистрируемый сигнал, особенно для реакционноспособных соединений, таких как сесквитерпены9,11,12. В совокупности эти артефакты снижают амплитуду сигнала и маскируют временную динамику эмиссии летучих веществ, индуцированной повреждением, что затрудняет интерпретацию реакций растений на стресс.
Во многих исследованиях процесс измерения прерывают, чтобы нанести повреждения листьям вне камеры. Такое прерывание дестабилизирует поток газа, изменяет время нанесения раны и снижает контроль над точностью разреза13,14,15. В результате первые минуты после повреждения часто теряются или искажаются13, именно тогда, когда скорость эмиссии достигает пика и проявляются характерные кинетические паттерны3,6,16,17. В некоторых подходах эксцизию листьев переносили внутрь камер большого объема, используя тефлоновые лезвия или механические пробойники12,18,19. Однако такие установки часто приводили к нестабильности герметизации, несоответствию длины срезов и неравномерности разрезов из-за смещения резака или различий в жесткости листьев. Большой объем камеры дополнительно замедлял обновление воздуха и расширял сигнал летучих веществ16. В совокупности эти экспериментальные ограничения препятствуют точной характеристике временной динамики эмиссий, вызванных повреждением, в стабильных физиологических условиях.
Для преодоления этих трудностей в данном исследовании представлен протокол нанесения повреждений непосредственно внутри камеры в режиме реального времени, в котором резак хирургического класса интегрирован в систему газообмена, соединенную с масс-спектрометрией времяпролетного типа с реакцией переноса протона (PTR-TOF-MS). Данный протокол обеспечивает синхронное повреждение листа и детектирование летучих веществ в контролируемых условиях окружающей среды с одновременным измерением потоков летучих соединений и газообмена с высоким временным разрешением. Выполнение иссечения листа внутри измерительной камеры минимизирует задержки при отборе проб, характерные для традиционных подходов, сохраняет временную динамику быстро выделяющихся индуцированных повреждением летучих веществ и демонстрирует стандартизированную процедуру резки для листьев с различными механическими свойствами. Такое временное разрешение позволяет напрямую охарактеризовать начало, время достижения пика и видоспецифическую кинетику эмиссии летучих веществ, индуцированных повреждением.
Протокол был оценен на трех видах с контрастными анатомическими и физиологическими характеристиками (Quercus rubra, Acer platanoides и Gossypium hirsutum), чтобы продемонстрировать его применимость к различным типам листьев. Применение идентичных условий измерения для всех видов показывает, что данный протокол позволяет разрешить динамику ЛОС, индуцированных повреждением, в широком диапазоне паттернов эмиссии при минимизации экспериментальной вариабельности. Этот подход широко применим в исследованиях, требующих измерений ЛОС, индуцированных повреждением, с высоким временным разрешением в контролируемых условиях окружающей среды. В совокупности эти особенности обеспечивают стандартизированную основу для изучения быстрых стрессовых реакций растений и облегчают применение протокола для различных видов и экспериментальных систем.
Протокол
Все растения выращивали в камерах роста в условиях контролируемой среды. Используемые реагенты и оборудование перечислены в Таблице материалов.
1. Изготовление и установка внутреннего резака для листьев
- Изготовьте вращающийся резак для листьев, рассчитанный на внутренние размеры (4 cm × 2 cm) стандартной измерительной головки.
- Прикрепите лезвие бритвы к стержню из нержавеющей стали (диаметром 1 mm) с помощью серебряного припоя для обеспечения механической стабильности.
ПРЕДОСТЕРЕЖЕНИЕ: Лезвия бритв очень острые. При работе используйте перчатки, устойчивые к порезам. После использования утилизируйте лезвия бритв в соответствии с правилами техники безопасности лаборатории по обращению с острыми предметами. Выполняйте пайку серебром в условиях надлежащей вентиляции и используйте защитные очки. - Вставьте стержень с лезвием в иглу шприца из нержавеющей стали (внешний диаметр 1.6 mm) для обеспечения свободного осевого вращения.
- Герметизируйте оба конца иглы с помощью политетрафторэтиленовых (PTFE) пробок с низким уровнем эмиссии для поддержания герметичности при сохранении возможности вращения.
- Установите ручку для вращения на проксимальном конце стержня для управления поворотом внутреннего резака.
- Прикрепите к внешней поверхности иглы две гибкие опоры из пружинной латуни (толщиной 0.2 mm), чтобы зафиксировать резак в нижней половине камеры.
- Сделайте треугольный надрез в прокладке нижней камеры, чтобы обеспечить введение лезвия без контакта с поверхностью листа.
- Загерметизируйте место ввода с помощью герметизирующей мастики с низким уровнем эмиссии для предотвращения утечки газа.
ПРИМЕЧАНИЕ: Перед продолжением убедитесь, что установка резака не нарушила герметичность камеры. Подтвердите, что камера закрывается полностью, термопара остается в контакте с поверхностью листа, а система газообмена указывает на стабильный поток воздуха без признаков утечки. Приступайте к работе только после подтверждения стабильных условий в камере. Выберите длину лезвия таким образом, чтобы срез составлял примерно 10 mm. Встроенный механизм резания и его расположение внутри камеры для листьев показаны на Рисунке 1B.
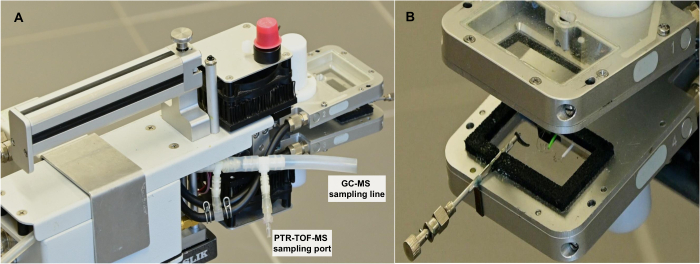
Рисунок 1Модифицированная система газообмена с интегрированным внутрикамерным резаком для листьев и линиями отбора проб летучих веществ. (A) Обзор модифицированной системы газообмена, на котором показаны порт отбора проб PTR-TOF-MS и линия отбора проб GC–MS, расположенные рядом с выходом из камеры для сбора летучих веществ. (B) Вид крупным планом открытой камеры, демонстрирующий встроенный режущий механизм и область, в которой располагается лист во время нанесения повреждений. Резак герметично интегрирован в камеру, что позволяет наносить повреждения листу без открытия корпуса во время измерений. Такая конфигурация обеспечивает мониторинг эмиссии летучих веществ и газообмена в режиме реального времени при контролируемых условиях окружающей среды. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
2. Конфигурация путей отбора проб летучих веществ
- Установите тефлоновый Т-образный переходник (внутренний диаметр 1/16″ или 1/8″) рядом с выходом из камеры (Рисунок 1A), чтобы минимизировать длину трубки между камерой и анализатором летучих соединений.
- Подсоедините выход к системе сбора ЛОС с помощью инертной трубки (например, из FEP или PTFE; внутренний диаметр 1,6 mm). Установите Т-образный переходник непосредственно рядом с выходом из камеры, чтобы максимально сократить длину трубки между камерой и анализатором летучих соединений, тем самым минимизировав внутренний объем, время удерживания и потери за счет адсорбции.
- Поддерживайте поток воздуха в камере на уровне 750 µmol s-1.
ПРИМЕЧАНИЕ: Короткие инертные трубки снижают адсорбцию и время удерживания реакционноспособных соединений.
3. Подготовка растительного материала
- Выращивайте Quercus rubra, Acer platanoides и Gossypium hirsutum в камере с контролируемыми условиями среды при температуре 25 °C днем / 20 °C ночью, относительной влажности 60%, интенсивности освещения 10 µmol m-2 s-1 и фотопериоде 16 ч / 8 ч в течение 4 месяцев.
- На протяжении всего эксперимента поддерживайте растения при атмосферной концентрации CO2 (~430 ppm).
- Поливайте все растения каждые два дня до достижения почвой полевой влагоемкости.
- Для проведения экспериментов выбирайте полностью развернутые несенисцентные листья сопоставимой стадии развития.
4. Эксперименты по повреждению листьев и сбору ЛОС
- Поместите лист в герметичную оболочку и установите условия окружающей среды
- Поместите полностью развернутый прикрепленный лист в кювету, оснащенную внутренним резаком.
- Установите температуру блока на 25 °C, относительную влажность воздуха до 60%, интенсивность актинического света до 1000 µmol м-2 s-1 (90% красного, 10% синего), а поток воздуха в 750 µmol s-1.
- Дайте листу адаптироваться к выбранным условиям окружающей среды до достижения стационарных значений чистой CO22 показатели ассимиляции, устьичной проводимости и базового уровня сигналов ЛОС достигаются, как правило, в течение 20–30 мин после помещения листа в камеру.
- Выполнение газообмена, мониторинга флуоресценции и летучих органических соединений (ЛОС)
- Начните одновременные измерения газообмена и ЛОС с разрешением 1 Гц.
- После завершения измерений газообмена зафиксируйте выход стационарной флуоресценции (Fs) а затем применить насыщающий импульс (8000 µmol м-2 s-1, 0,6 с) посредством камерный флуориметр (305-FL) для определения максимального выхода флуоресценции (Fм′) в листьях, адаптированных к свету.
- Выключите актинический свет и подвергните лист темновой адаптации в течение 20 мин.
- Зарегистрируйте темновой respiration листьев.
- Измерьте исходную флуоресценцию (F₀) с использованием слабого модулированного измерительного света (0.03 µmol м-2 s-1), после чего подается насыщающий импульс для получения максимальной флуоресценции в темновой адаптации листьев (Fм).
- Снова включите актинический свет.
- Продолжайте измерения летучих органических соединений (ЛОС) и газообмена при тех же условиях окружающей среды до тех пор, пока базовый уровень показателей до нанесения повреждений не стабилизируется.
ПРИМЕЧАНИЕ: Перед нанесением повреждений убедитесь, что выбранные условия окружающей среды остаются стабильными, а показатели чистой ассимиляции CO₂, транспирации и базовые сигналы ЛОС достигли стационарных значений. Приступайте к работе только после того, как данные условия будут поддерживаться при выбранных настройках измерения.
- Механическое повреждение листьев и сбор ЛОС
- Установите первый картридж для сбора летучих органических соединений (ЛОС) в выходную линию и подключите его к портативному насосу для отбора проб воздуха с постоянным расходом. Прокачайте воздух из камеры через картридж с постоянной скоростью потока 20 мл/мин.-1Используйте многослойный адсорбционный картридж из нержавеющей стали (длина 10,5 см, внутренний диаметр 3 мм), подходящий для улавливания летучих соединений C3–C17, заполненный сорбентами Carbotrap C 20/40 mesh (0,2 г), Carbopack B 40/60 mesh (0,1 г) и Carbotrap X 20/40 mesh (0,1 г), расположенными в направлении отбора пробы в порядке возрастания адсорбционной способности.
ПРИМЕЧАНИЕ: Перед отбором проб проведите кондиционирование картриджей, пропуская через них гелий высокой чистоты со скоростью 20 мл/мин.-1 в течение 3 ч при 250 °CОтбор проб с помощью картриджа позволяет в дальнейшем провести офлайн-анализ методом ГХ-МС для идентификации соединений, если этого требуют цели эксперимента. Несмотря на то что сбор проб в картриджи является частью описанного здесь рабочего процесса, репрезентативные результаты, представленные в данном исследовании, получены на основе непрерывных измерений методом PTR-TOF-MS. Выбор адсорбента должен соответствовать диапазону летучести и полярности целевых ЛОС, а также условиям отбора проб. - Соберите ЛОС до нанесения повреждений в течение 15 мин при скорости потока 20 мл/мин-1.
- Замените картридж и проводите сбор ЛОС в течение 2 мин.
- Поверните внутренний резак 360° для иссечения листа без открытия камеры и возвращения лезвия в исходное положение.
ПРИМЕЧАНИЕ: Расположите лист в камере таким образом, чтобы разрез был сделан в пределах замкнутой листовой пластинки при сохранении полной герметичности камеры. Если размер и морфология листа позволяют, избегайте повреждения главной жилки и максимально единообразно располагайте место разреза во всех образцах. Поскольку повреждение крупных жилок может существенно увеличить эмиссию летучих веществ, индуцированную ранением, единообразие расположения раны повышает воспроизводимость эксперимента.5.
ПРЕДОСТЕРЕЖЕНИЕ: Перед разрезанием убедитесь, что камера полностью герметизирована. - Продолжайте сбор ЛОС с использованием того же картриджа в течение 13 мин.
- Вставьте третий картридж и проводите сбор ЛОС в течение 15 мин.
- Обеспечьте непрерывную работу PTR-TOF-MS на протяжении всех периодов для детектирования в режиме реального времени.
ПРИМЕЧАНИЕ: До и после каждого измерения показателей растения необходимо собрать фоновую пробу при пустой камере в тех же условиях окружающей среды. Используйте эти фоновые измерения для коррекции базовой линии данных по эмиссии ЛОС в процессе анализа данных.
- Установите первый картридж для сбора летучих органических соединений (ЛОС) в выходную линию и подключите его к портативному насосу для отбора проб воздуха с постоянным расходом. Прокачайте воздух из камеры через картридж с постоянной скоростью потока 20 мл/мин.-1Используйте многослойный адсорбционный картридж из нержавеющей стали (длина 10,5 см, внутренний диаметр 3 мм), подходящий для улавливания летучих соединений C3–C17, заполненный сорбентами Carbotrap C 20/40 mesh (0,2 г), Carbopack B 40/60 mesh (0,1 г) и Carbotrap X 20/40 mesh (0,1 г), расположенными в направлении отбора пробы в порядке возрастания адсорбционной способности.
5. Детекция летучих соединений и работа с прибором
- Установите следующие параметры PTR-TOF-MS: температуру впуска и дрейфовой трубки — 80 °C, поток на впуске — 10 mL min-1, поток водяного пара — 4.0 mL min-1, ионный ток — 4.0 mA, давление в дрейфовой камере — 2.1 mbar, отношение плотности поля дрейфовой трубки — 15 Td, и давление в модуле TOF-MS — 1.2 × 10⁻⁷ mbar.
- Регистрируйте сигналы летучих соединений с временным разрешением 1 Hz и интервалом выборки 40 ps.
- Перед каждым экспериментом проводите калибровку PTR-TOF-MS, используя сертифицированную стандартную газовую смесь, содержащую репрезентативные ЛОС основных классов растительных летучих веществ. Обработайте калибровочные данные и рассчитайте концентрации ЛОС с помощью программного обеспечения PTR-MS Viewer согласно описанным процедурам13,16.
6. Офлайн-анализ образцов из картриджа методом ГХ-МС
ПРИМЕЧАНИЕ: В следующем разделе описан метод автономного анализа проб из картриджей, отобранных в ходе вышеуказанного рабочего процесса. Анализ ГХ-МС обеспечивает дополнительную идентификацию соединений, в то время как репрезентативные результаты, представленные в данном исследовании, основаны на данных непрерывных измерений PTR-TOF-MS.
- Проведите термическую десорбцию картриджей с использованием автоматического блока термической десорбции, соединенного с системой ГХ-МС, согласно процедуре, описанной Kännaste et al.20.
- Идентифицируйте соединения путем сравнения с аутентичными стандартами и масс-спектральной библиотекой NIST. Выполните масс-спектрометрическое детектирование с использованием ионизации электронным ударом (70 eV) и подтвердите идентичность соединений путем сопоставления времени удерживания и масс-спектров с аутентичными стандартами (при их наличии).
ПРИМЕЧАНИЕ: Отбор проб из картриджей проводится по модифицированному протоколу Kännaste et al.20 для захвата летучих соединений C3–C17.
7. Анализ данных
- Перед началом анализа вычтите фоновые значения пустой камеры из всех кривых эмиссии. Определите базовую линию до повреждения для каждой отслеживаемой массы как средний сигнал за фиксированный интервал непосредственно перед срезанием.
- Используйте время срезания в качестве общей точки отсчета для всех отслеживаемых масс. Определите начало эмиссии как первое обнаруживаемое увеличение сигнала ЛОС с поправкой на базовую линию после срезания листа.
ПРИМЕЧАНИЕ: Начало эмиссии определялось как первое последовательное увеличение сигнала выше базовой линии до повреждения, которое продолжалось в фазе нарастания всплеска эмиссии; таким образом исключались единичные колебания, вызванные инструментальным шумом. - Рассчитайте время достижения пика как интервал между моментом срезания и максимальным сигналом эмиссии. Рассчитайте максимальный наклон всплеска эмиссии по первой производной сигнала с поправкой на базовую линию, используя среднее значение прямого и обратного наклонов между соседними точками данных13. Определите амплитуду пика как максимальное наблюдаемое значение эмиссии во время всплеска.
Результаты
Чтобы оценить, влияет ли положение пробоотбора летучих веществ на детектирование сигнала, мы сравнили две конфигурации, используя контролируемые инъекции газа в камеру для листьев. В одном варианте пробоотбор летучих веществ осуществлялся непосредственно на выходе из модифицированной камеры газообмена (Рисунок 1). В другом же варианте воздух проходил через трубки анализатора газообмена перед попаданием в детектор. Одновременная запись обоих сигналов позволила напрямую сравнить их временную динамику.
Инъекция чистых летучих соединений вызывала быстрый отклик детектора с выраженными пиками эмиссии (Рисунок 2). При отборе проб непосредственно на выходе из камеры сигналы возрастали сразу после инъекции, достигали резких максимумов и быстро затухали. При отборе проб после трубки анализатора те же соединения вызывали задержанные и ослабленные отклики.
Для изопрена (m/z 69) временная задержка между позициями отбора проб была минимальной, а амплитуды пиков оставались схожими (Рисунок 2A). Для Z-3-гексен-1-ола (m/z 83) прохождение через трубку привело к уменьшению высоты пика и расширению кривой спада по сравнению с прямым отбором проб (Рисунок 2B). Этот эффект был наиболее выражен для α-пинена (m/z 137), при котором прохождение через трубку сильно ослабило пик по сравнению с сигналом, измеренным непосредственно на выходе из камеры (Рисунок 2C).
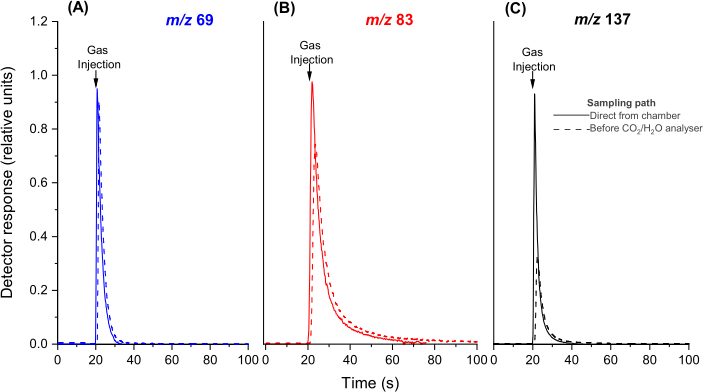
Рисунок 2Эффект влияния положения пробоотбора на временной отклик при детектировании летучих соединений. Отклики на инъекцию чистого (A) изопрена (m/z 69), (B) Z-3-гексен-1-ола, детектируемого преимущественно в виде фрагментного иона m/z 83, и (C) α-пинена (m/z 137) были зарегистрированы в двух точках отбора проб. Сплошные линии соответствуют отбору проб непосредственно после выхода из камеры, в то время как пунктирные линии соответствуют стандартной точке отбора проб перед анализаторами CO₂/H₂O после прохождения через трубки системы газообмена. Стрелками indicated инъекции газа. Отклики были нормированы по максимальному сигналу, зарегистрированному при отборе проб PTR-QMS рядом с камерой. Для визуализации различий в форме отклика временные кривые стандартного отбора проб были смещены на 0,9 с относительно прямого отбора. Данный рисунок был модифицирован из работы Rasulov et al..16. Нажмите здесь, чтобы просмотреть эту иллюстрацию в большем размере.
Срезание листьев вызвало быстрый выброс специфических летучих соединений у всех видов (Quercus rubra, Acer platanoides и Gossypium hirsutum), и система зафиксировала эти выбросы в течение нескольких секунд. Поскольку установка внутри камеры позволяла непосредственно определять как время начала эмиссии, так и момент достижения ее пика, это обеспечило возможность количественного анализа кинетики отдельных соединений без прерывания процесса измерения.
У всех видов доминирующий сигнал PTR-TOF-MS, индуцированный повреждением, был обнаружен при m/z 9 и предварительно отнесен к соединениям гексенального типа, производным LOX, на основании предыдущих исследований методом PTR-TOF-MS (Рисунок 3, Рисунок 4> и Рисунок 5>). Пиковые значения эмиссии у трех видов варьировались от 24–300 nmol m-2 s-1, что демонстрирует способность данного протокола разрешать динамику индуцированных повреждением ЛОС в широком диапазоне интенсивности эмиссии (Рисунок 3, Рисунок 4> и Рисунок 5>). Во всех случаях сигнал m/z 9 возрастал в течение нескольких секунд после среза, достигал пика примерно через 39–57 s и демонстрировал наиболее резкий рост среди всех отслеживаемых масс (Таблица 1), что позволяет идентифицировать его как доминирующий острый компонент всплеска при повреждении.
Эмиссия массы 69 оставалась незначительной до среза у A. platanoides (Рисунок 4B) и G. hirsutum (Рисунок 5B) и лишь слегка увеличилась после повреждения. Напротив, у Q. rubra наблюдались существенные фоновые выбросы до среза, за которыми следовало умеренное кратковременное увеличение и последующая стабилизация, что соответствует конститутивному высвобождению изопрена, на которое накладывается ответ на повреждение (Рисунок 3B).
Мониторинг других масс выявил четкую временную последовательность после срезания. У всех видов m/z 43, 57, 69 и 9 характеризовали раннюю фазу выброса, тогда как m/z 45 и 83 достигали пика позже (Рисунок 3, Рисунок 4 и Рисунок 5; Таблица 1). Эта закономерность была наиболее выражена у A. platanoides, где уровень m/z 45 начал расти сразу после срезания, но достиг пика только через ~15 s, что указывает на более медленный и продолжительный ответ по сравнению с ранними фрагментами, связанными с LOX (Рисунок 4A; Таблица 1). Аналогично, m/z 83 достигал пика позже ранних фрагментов у всех видов и был особенно задержан у G. hirsutum, достигнув максимума только через ~23 s (Рисунок 5A; Таблица 1).
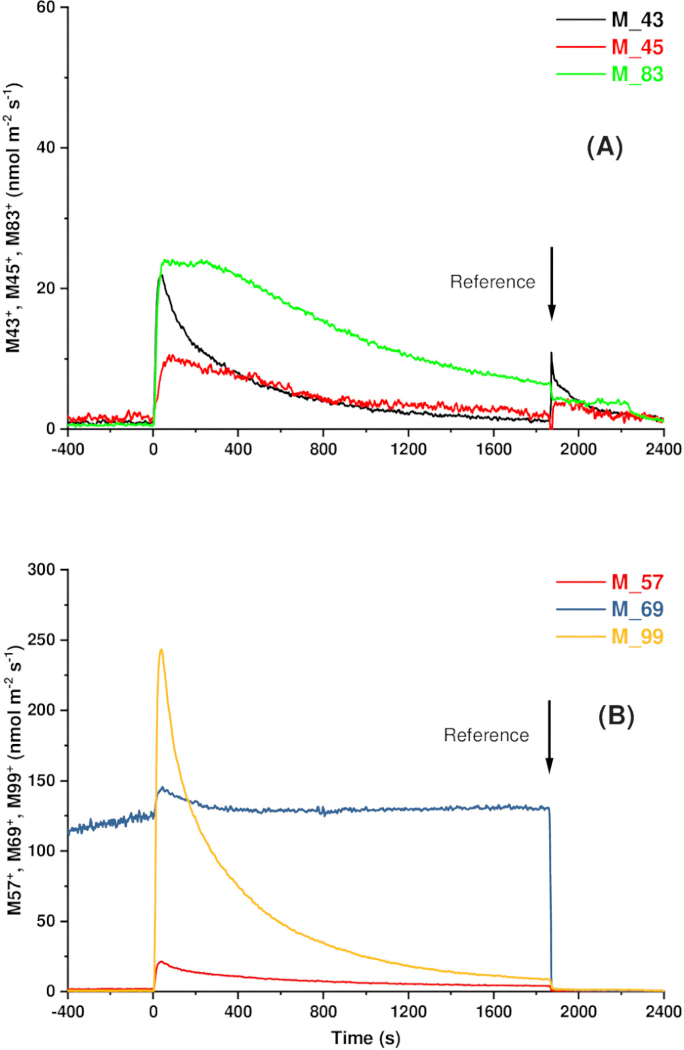
Рисунок 3Временнóе разрешение эмиссии летучих веществ, индуцированной повреждением, в репрезентативном листе Quercus rubra. (A) m/z 43, 45 и 83. (B) m/z 57, 69 и 9. В момент t = 0 лист был срезан с помощью встроенного в камеру резака для листьев, показанного на Рисунок 1после чего был выполнен разрез длиной 10 мм. Эмиссия летучих соединений непрерывно контролировалась с помощью масс-спектрометра времяпролетного типа с протонным переносом (PTR-TOF-MS), а скорость газообмена измерялась с использованием системы Walz GFS-30. Сигналы представлены в виде репрезентативных профилей эмиссии с поправкой на базовую линию, иллюстрирующих временное разрешение, достижимое при данном протоколе. См. Таблица 1 для репрезентативных кинетических дескрипторов, извлеченных из этих профилей эмиссии. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
Несмотря на эти общие черты, репрезентативные измерения показывают, что траектории эмиссии могут различаться между видами. У Q. rubra значения m/z 43 и 57 быстро росли, но разошлись в фазе спада, при этом m/z 57 снижалось медленнее, чем m/z 43 (Рисунок 3A,B). У A. platanoides наблюдалась противоположная закономерность: m/z 43 демонстрировало более медленное снижение на поздней фазе (Рисунок 4A). У G. hirsutum амплитуда всех сигналов была ниже, а профили эмиссии сочетали резкие начальные пики с более постепенным спадом. Примечательно, что m/z 45 продемонстрировало небольшой вторичный рост в фазе спада (Рисунок 5A).
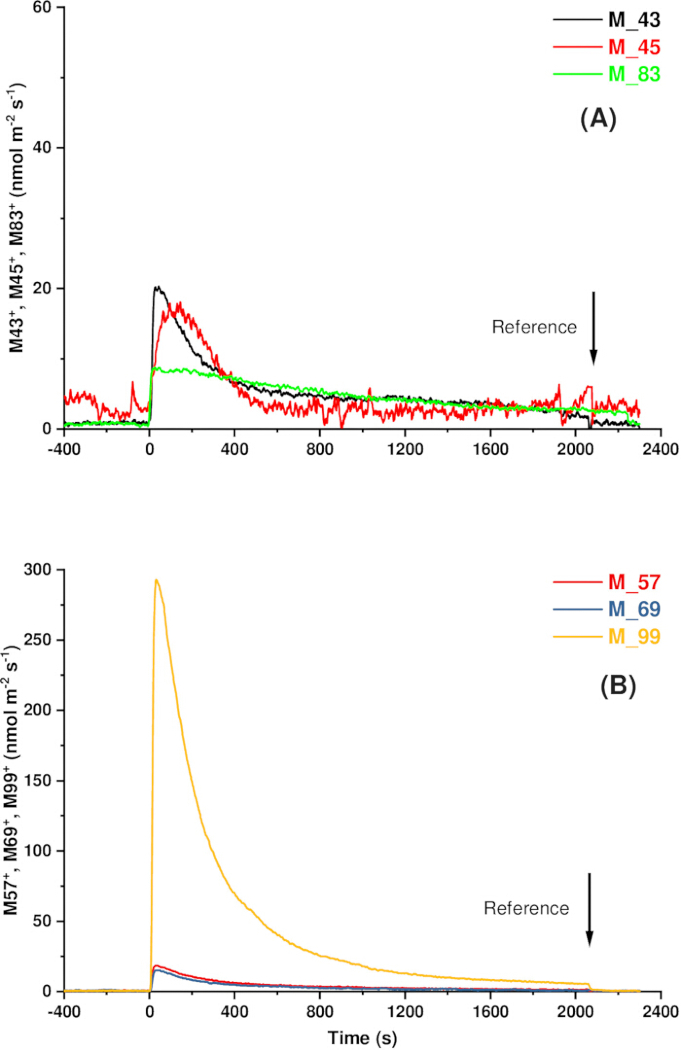
Рисунок 4: Временнóе разрешение эмиссии летучих веществ, индуцированной повреждением, в репрезентативном листе Acer platanoides. (A) m/z 43, 45 и 83. (B) m/z 57, 69 и 9. Лист был срезан при t = 0 с помощью встроенного в камеру резака (Рисунок 1; разрез 10 мм). Эмиссии летучих веществ непрерывно измеряли с помощью масс-спектрометра времяпролетного типа с протонным переносом (PTR-TOF-MS), а газообмен измеряли с помощью системы Walz GFS-30. Сигналы представлены в виде репрезентативных профилей эмиссии с поправкой на базовую линию, иллюстрирующих временное разрешение, достижимое при использовании данного протокола. См. Таблица 1 для репрезентативных кинетических дескрипторов, извлеченных из этих профилей эмиссии. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
В совокупности эти закономерности указывают на то, что эмиссии, вызванные повреждением, следуют специфическому для каждого соединения каскаду, а не представляют собой единый синхронный выброс, при этом резкие ранние компоненты сменяются более широкими отложенными ответами.
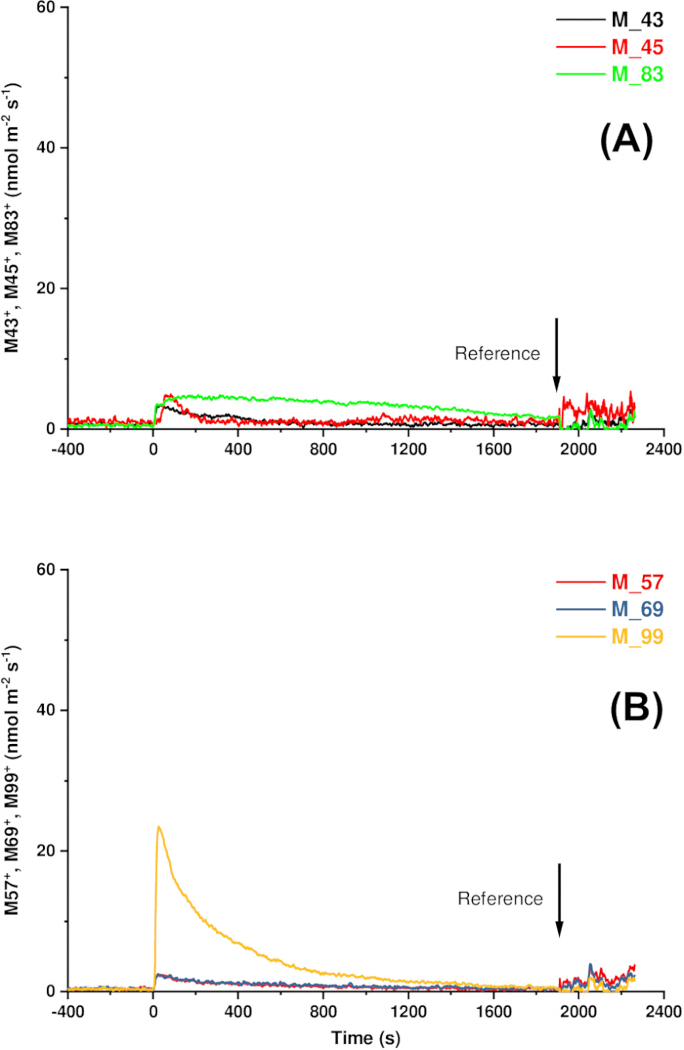
Рисунок 5Временнáя динамика эмиссии летучих веществ, индуцированной повреждением, в репрезентативном листе Gossypium hirsutum. (A) m/z 43, 45 и 83. (B) m/z 57, 69 и 9. Лист был срезан при t = 0 с помощью внутреннего резака камеры (Рисунок 1; разрез 10 мм). Эмиссии летучих веществ непрерывно измеряли с помощью масс-спектрометра времяпролетного типа с протонным переносом (PTR-TOF-MS), а газообмен измеряли с помощью системы Walz GFS-30. Сигналы представлены в виде репрезентативных профилей эмиссии с коррекцией базовой линии, иллюстрирующих временное разрешение, достижимое при использовании данного протокола. См. Таблица 1 для репрезентативных кинетических дескрипторов, извлеченных из этих профилей эмиссии. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
Обсуждение
Представленный здесь протокол позволяет проводить анализ эмиссии летучих веществ, индуцированной повреждением, с высоким временным разрешением в контролируемых экспериментах. Благодаря интеграции процесса нанесения разреза непосредственно в камеру для листа и непрерывному мониторингу сигналов летучих веществ (Рисунок 1), система фиксирует ответную эмиссию без искажений, вызванных задержкой отбора проб, открытием камеры или манипуляциями с листом вне измерительной установки. Такие возмущения могут сместить как кажущееся время, так и величину пиков эмиссии при измерениях в закрытых системах3,6,13,17. Совмещение нанесения повреждения и измерения в одной камере позволяет сохранить временную шкалу эмиссии и обеспечивает надежное количественное определение стресс-индуцированных ответов летучих веществ с временным разрешением.
| Вид | Протонированная молекулярная масса | Амплитуда пика (nmol m-2 s-1) | Время начала после среза (s) | Время пика (s) | Максимальный наклон (nmol m-2 s-2) |
| Quercus rubra | 43 | 21.91 | ~0.0 | 55.6 | 1.49 |
| 45 | 10.52 | 7 | 111.4 | 0.29 | |
| 57 | 21.27 | 20 | 55.6 | 1.37 | |
| 69 | 145.6 | 25 | 61 | 1.44 | |
| 83 | 24.13 | 21 | 71.8 | 1.39 | |
| 99 | 243.16 | 21 | 57.4 | 18.17 | |
| Acer platanoides | 43 | 20.26 | 5.4 | 54 | 1.59 |
| 45 | 18.06 | 1.8 | 154.8 | 0.55 | |
| 57 | 18.65 | 10.8 | 41.4 | 1.55 | |
| 69 | 15.15 | 10.8 | 41.4 | 1.13 | |
| 83 | 8.78 | 7.2 | 57.6 | 0.76 | |
| 99 | 292.86 | 10.8 | 43.2 | 23.62 | |
| Gossypium hirsutum | 43 | 3.5 | 5.4 | 48.6 | 0.19 |
| 45 | 4.98 | 9 | 95.4 | 0.29 | |
| 57 | 2.48 | 10.8 | 36 | 0.18 | |
| 69 | 2.42 | 12.6 | 37.8 | 0.17 | |
| 83 | 4.83 | 14.4 | 223.2 | 0.3 | |
| 99 | 23.47 | 12.6 | 39.6 | 1.95 |
Таблица 1: Репрезентативные значения амплитуды пика, начала эмиссии, времени достижения пика и максимального наклона, полученные в результате непрерывных измерений методом PTR-TOF-MS после повреждения листа.Значения включают амплитуду пика, начало эмиссии, время достижения пика и максимальный наклон. Эти значения иллюстрируют типы кинетических дескрипторов, генерируемых данным протоколом, и приведены в качестве примеров для подтверждения концепции, а не для статистического сравнения между видами. Начало эмиссии определялось как первое обнаруживаемое увеличение выше базовой линии до повреждения после среза, время достижения пика — как интервал между срезанием и максимальным сигналом, а максимальный наклон — как максимальная первая производная сигнала с поправкой на базовую линию.
Сравнение точек отбора проб показало, что конфигурация системы отбора значительно влияет на регистрируемый сигнал (Рисунок 2). Прямой отбор проб на выходе из камеры позволял сохранить быстрое формирование пика, тогда как отбор проб после соединительных трубок анализатора приводил к задержке формирования пика и снижению интенсивности сигнала. Этот эффект был незначительным для изопрена (m/z 69), умеренным для m/z 83 и наиболее выраженным для α-пинена (m/z 137), что согласуется с усилением искажений, связанных с транспортом, для более тяжелых или более реакционноспособных соединений10,21. Адсорбция на поверхностях трубок, задержка переноса по линии отбора проб и химические взаимодействия во время транспортировки могут приводить к уширению или затуханию пиков эмиссии, тем самым искажая интерпретацию кинетики летучих веществ9,12,21.
Основным преимуществом данного протокола является его способность регистрировать самую раннюю фазу эмиссии летучих веществ, индуцированную повреждением. У всех видов эта ранняя фаза проявлялась в течение нескольких секунд после среза и характеризовалась всплеском при m/z 99, который продемонстрировал как наибольшую амплитуду пика, так и самый крутой максимальный наклон (Рисунок 3, Рисунок 4 и Рисунок 5; Таблица 1). Максимумы пиков достигались примерно через 40–57 s после среза, что существенно раньше 100–280 s, обычно указываемых в предыдущих исследованиях13,19,22. Этот сдвиг, вероятно, отражает синхронизацию нанесения повреждения и детектирования внутри камеры, что сводит к минимуму задержки, вызванные манипуляциями с листом и транспортом по линии отбора проб.
Благодаря синхронизации нанесения повреждения и детектирования в пределах одной камеры, данный протокол также позволил выявить каскад на уровне фрагментов, при котором интенсивность сигналов m/z 43 и 57 возрастала сразу после среза, в то время как сигнал m/z 45 достигал пика позже и характеризовался более медленной динамикой затухания (Рисунок 3, Рисунок 4 и Рисунок 5; Таблица 1). Такая последовательность согласуется с предыдущими исследованиями на основе PTR, несмотря на отсутствие разделения на уровне соединений по сравнению с ГХ-МС, при котором в ранних эмиссиях преобладают C6-альдегиды, производные липоксигеназы, за которыми следуют нижестоящие спирты и родственные продукты19,22. Согласно предыдущим исследованиям методом PTR-TOF-MS, доминирующий сигнал m/z 99 соответствует соединениям гексенального типа, чей фрагмент дегидратации при m/z 81 был идентифицирован как основной ранний сигнал, в то время как m/z 83 отражает вклад гексенолов и гексаналя22. Эта последовательность дополнительно подтверждает иерархию, зависящую от размера и пути синтеза, при которой более мелкие, быстро образующиеся оксигенированные соединения высвобождаются раньше, чем более крупные или сложные молекулы13,23.
Помимо фрагментов, образованных под действием липоксигеназы, сигнал с m/z 69, предварительно отнесенный к изопрену, демонстрировал различные траектории эмиссии на представленных примерах (Рисунок 3, Рисунок 4и Рисунок 5). Q. rubra продемонстрировали значительные базовые уровни эмиссии, тогда как A. platanoides и G. hirsutum были обнаружены лишь в следовых количествах, что соответствует их известным характеристикам эмиссии24,25У разных видов ответ изопрена на повреждение был слабым, что согласуется с его de novo синтез посредством путь МЕП, который зависит от фотосинтетического метаболизма и поэтому лишь косвенно подвержен влиянию механических повреждений15.
Эта быстрая динамика отражает хорошо изученные биохимические реакции листьев на механическое повреждение. Механическое повреждение быстро активирует липоксигеназный путь, который приводит к кратковременным всплескам выброса летучих соединений C6 и родственных оксигенированных соединений, образующихся в результате окисления мембранных липидов5,7,17,22,23. Эти эмиссии характеризуются выраженной асимметричной динамикой с резким ростом после повреждения тканей и последующей фазой более медленного затухания16. В данной системе такой асимметричный паттерн разворачивается в интервале от нескольких секунд до минут, что иллюстрируют репрезентативные кинетические дескрипторы, приведенные в Таблице 1, в то время как в исследованиях, где повреждение листьев проводилось вне камеры, отмечаются отсроченные пики13. Такое более раннее разрешение позволяет зафиксировать сигнал с момента его возникновения, уменьшает временное размытие и обеспечивает прямую количественную оценку как фазы роста, так и фазы затухания. Совокупность этих кинетических особенностей определяет полную траекторию эмиссии, которая часто недооценивается при использовании методов дискретного или отсроченного отбора проб5,15.
Стандартизация процесса разреза внутри камеры дополнительно повышает воспроизводимость эксперимента, обеспечивая постоянство геометрии и степени тяжести повреждения, которые определяются длиной разреза и напрямую влияют на величину эмиссии ЛОС5,18,22. Тем не менее, поскольку режущее лезвие занимает фиксированное положение внутри камеры, на расположение разреза влияют размер и морфология листа, а также необходимость поддержания герметичности уплотнения. По возможности разрез следует располагать в межжилковой части пластинки листа, избегая центральной жилки и других крупных жилок. Однако полного исключения повреждения крупных жилок не всегда можно гарантировать, особенно в случае узких или маленьких листьев. Поскольку повреждение крупных жилок может существенно изменить эмиссию ЛОС, индуцированную повреждением5, положение разреза должно быть максимально единообразным для всех образцов в рамках одного эксперимента.
Поддержание стабильных условий окружающей среды не менее важно для получения воспроизводимых результатов измерений ЛОС, индуцированных повреждением. Поскольку на продукцию, высвобождение и транспорт ЛОС влияют условия среды, температура в камере, влажность, облученность, концентрация CO2 и поток воздуха поддерживались на постоянном уровне на протяжении всех измерений. Стандартизация этих переменных дополнительно минимизирует экспериментальную вариабельность и повышает воспроизводимость кинетики ЛОС, индуцированных повреждением. Кроме того, поскольку данный протокол полностью совместим с одновременными измерениями газообмена, в будущем эти методы позволят напрямую связать динамику эмиссии ЛОС с изменениями в фотосинтезе и транспирации при идентичных экспериментальных условиях26. Такие измерения могут помочь отличить биохимическую регуляцию продукции ЛОС от физических процессов, влияющих на высвобождение летучих веществ, включая усиленное испарение водорастворимых оксигенированных соединений из поврежденной ткани16. Соответственно, различия между вариантами обработки или видами следует интерпретировать только при условии стандартизации условий окружающей среды, геометрии повреждения и растительного материала, включая стадию развития листа, на протяжении всего эксперимента12.
Хотя предыдущие подходы с использованием камер продемонстрировали возможность измерения ЛОС, индуцированных повреждением, в реальном времени, они также выявили значительные технические ограничения. Неравномерные надрезы, несоответствие размеров повреждений и нарушения герметичности камеры приводили к вариабельности измерений18,19. Кроме того, в этих подходах часто использовались камеры относительно большого объема, что замедляло обновление воздуха, задерживало формирование пиков и расширяло профили летучих сигналов22,27. Такие эффекты становятся более выраженными для менее летучих соединений и могут варьироваться в зависимости от температуры21. Напротив, меньшая камера, используемая в настоящем протоколе (~8 mL внутреннего объема), сокращает время пребывания воздуха, что способствует более резкому началу сигнала, наблюдаемому в наших измерениях (Рисунок 1).
Данный протокол был разработан для контролируемых физиологических экспериментов, а не для прямого мониторинга лесных экосистем in situ. Измерения проводятся на прикрепленных листьях в строго определенных условиях окружающей среды, что сводит к минимуму экспериментальную вариативность и позволяет точно охарактеризовать кинетику эмиссии ЛОС, индуцированную повреждением. Применение в полевых условиях будет зависеть от доступности портативных систем газообмена и детектирования ЛОС. Тем не менее, поскольку интегрированный механизм среза может быть адаптирован к различным конфигурациям камер с минимальными модификациями, данный подход будет легко переносим на портативные платформы газообмена и другие экспериментальные установки по мере появления таких технологий. Эта гибкость расширяет возможности исследования быстрых стрессовых реакций растений при сохранении временного разрешения, необходимого для точного описания динамики эмиссии ЛОС, что способствует механистическому изучению самых ранних физиологических и биохимических реакций на повреждение листьев.
Раскрытие информации
Авторы заявляют об отсутствии конфликта интересов.
Благодарности
Мы выражаем благодарность за финансовую поддержку Эстонскому исследовательскому совету (PRG2207) и Министерству образования и науки Эстонии (Центр передового опыта Agro-CropFuture, «Агроэкология и новые культуры в климате будущего», TK200U1).
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Система ГХ-МС с термическим десорбером TD-20 | Shimadzu | GCMS-QP2010 Plus; TD-20 | Система ГХ-МС с термическим десорбером TD-20. www.shimadzu.com |
| Система газообмена GFS-3000 | Walz GmbH | GFS-3000 | Измерения газообмена в листьях. www.walz.com |
| Гелий высокой чистоты (99.999%) | Местный поставщик | N/A | Используется для кондиционирования адсорбционных картриджей и термической десорбции в ГХ-МС. www.airliquide.com (или эквивалентный поставщик). |
| Калибровочный стандарт изопрена | Sigma-Aldrich Chemie GmbH | Custom | Специальный калибровочный стандарт изопрена (3.43 ppm). www.sigmaaldrich.com |
| Герметизирующая шпаклевка с низким уровнем эмиссии | Местный поставщик | N/A | Используется для герметизации места ввода резака в камеру. |
| Многослойный адсорбционный картридж из нержавеющей стали | Supelco | Custom | Длина 10.5 cm × вн. диам. 3 mm; заполнен Carbotrap C (0.2 g, 20–40 mesh), Carbopack B (0.1 g, 40–60 mesh) и Carbotrap X (0.1 g, 20–40 mesh). Используется для опциональной оффлайн-идентификации ЛОС методом ГХ-МС. www.sigmaaldrich.com |
| Портативный насос для отбора проб воздуха с постоянным расходом | SKC Inc. | 210-1003MTX | Портативный насос для отбора проб воздуха с постоянным расходом. |
| Масс-спектрометр PTR-TOF 8000 | Ionicon Analytik GmbH | PTR-TOF 8000 | Детекция ЛОС. www.ionicon.com |
| Серебряный припой (проволока) | Местный поставщик | N/A | Используется для крепления лезвия бритвы к стержню из нержавеющей стали. |
| Пружинный латунный лист (толщина 0.2 mm) | Местный поставщик | N/A | Гибкие опоры, используемые для фиксации резака. |
| Стержень из нержавеющей стали (диаметр 1 mm) | Местный поставщик | N/A | Опорный стержень резака. |
| Игла шприца из нержавеющей стали (внешний диаметр 1.6 mm) | Местный поставщик | N/A | Корпус для вращающегося лезвия резака. |
| Тефлоновые пробки | Местный поставщик | N/A | Используются для герметизации корпуса резака с сохранением возможности вращения. |
| Тефлоновый Т-образный соединитель | Местный поставщик | N/A | Устанавливается рядом с выходом из камеры для уменьшения длины трубки. |
| Тефлоновая трубка (FEP или PTFE) | Местный поставщик | N/A | Линия отбора проб ЛОС между камерой и детекторами. |
| Калибровочная газообразная смесь ЛОС | Ionimed GmbH | Custom | 1 ppm каждого соединения в N2; используется для калибровки PTR-TOF-MS. www.ionimed.com |
Ссылки
- Bergman ME, Huang XQ, Baudino S, Caissard JC, Dudareva N. Plant volatile organic compounds: emission and perception in a changing world. Curr Opin Plant Biol. 2025;85:102706.
- Luo R, Lun X, Gao R, Wang L, Yang Y, Su X, et al. A review of biogenic volatile organic compounds from plants: research progress and future prospects. Toxics. 2025;13(5):1-35.
- Molleman F, Mandal M, Sokół-Łętowska A, Walczak U, Volf M, Mallick S, et al. Simulated herbivory affects the volatile emissions of oak saplings, while neighbourhood affects flavan-3-ols content of their leaves. J Chem Ecol. 2024;50(5-6):250-261.
- Huang PC, Berg-Falloure KM, Gao X, Meeley R, Kolomiets MV. Pentyl leaf volatiles promote insect and pathogen resistance via enhancing ketol-mediated defense responses. Plant Physiol. 2025;197(2):1-18.
- Portillo-Estrada M, Niinemets Ü. Massive release of volatile organic compounds due to leaf midrib wounding in Populus tremula. Plant Ecol. 2018;219(9):1021-1028.
- Engelberth M, Engelberth J. Leaf developmental stages strongly modulate indole emissions in response to simulated insect herbivory. Plants (Basel). 2025;14:3761.
- Matsui K. How and why plants came to smell green: the origins, biosynthesis, and roles of green leaf volatiles. J Exp Bot. 2025;76:1-14.
- Waterman JM, Cazzonelli CI, Hartley SE, Johnson SN. Simulated herbivory: the key to disentangling plant defence responses. Trends Ecol Evol. 2019;34(5):447-458.
- Tholl D, Boland W, Hansel A, Loreto F, Röse USR, Schnitzler JP. Practical approaches to plant volatile analysis. Plant J. 2006;45(4):540-560.
- Ormeño E, Goldstein A, Niinemets Ü. Extracting and trapping biogenic volatile organic compounds stored in plant species. TrAC Trends Anal Chem. 2011;30(7):978-989.
- Chang YY, Huang YM, Chang HT. Using headspace gas chromatography-mass spectrometry to investigate the volatile terpenoids released from the Liquidambar formosana leaf and its essential oil. Forests. 2024;15(9):1-12.
- Niinemets Ü, Kuhn U, Harley PC, Staudt M, Arneth A, Cescatti A, et al. Estimations of isoprenoid emission capacity from enclosure studies: measurements, data processing, quality and standardized measurement protocols. Biogeosciences. 2011;8(8):2209-2246.
- Portillo-Estrada M, Kazantsev T, Talts E, Tosens T, Niinemets Ü. Emission timetable and quantitative patterns of wound-induced volatiles across different leaf damage treatments in aspen (Populus tremula). J Chem Ecol. 2015;41(12):1105-1117.
- Waterman JM, Cofer TM, Von Laue OM, Mateo P, Wang L, Erb M. Leaf size determines damage- and herbivore-induced volatile emissions in maize. Plant Cell Environ. 2025;48(5):3766-3777.
- Yuan Y, Mao Y, Yuan H, Guo M, Zhou G, Niinemets Ü, et al. Impacts of mechanical injury on volatile emission rate and composition in 45 subtropical woody broad-leaved storage and non-storage emitters. Plants (Basel). 2025;14(5):1-40.
- Rasulov B, Talts E, Niinemets Ü. A novel approach for real-time monitoring of leaf wounding responses demonstrates unprecedentedly fast and high emissions of volatiles from cut leaves. Plant Sci. 2019;283:256-265.
- Portillo-Estrada M, Okereke CN, Jiang Y, Talts E, Kaurilind E, Niinemets Ü. Wounding-induced VOC emissions in five tropical agricultural species. Molecules. 2021;26(9):1-20.
- Mithöfer A, Wanner G, Boland W. Effects of feeding Spodoptera littoralis on lima bean leaves. II. Continuous mechanical wounding resembling insect feeding is sufficient to elicit herbivory-related volatile emission. Plant Physiol. 2005;137(3):1160-1168.
- Brilli F, Ruuskanen TM, Schnitzhofer R, Müller M, Breitenlechner M, Bittner V, et al. Detection of plant volatiles after leaf wounding and darkening by proton transfer reaction time-of-flight mass spectrometry (PTR-TOF). PLoS One. 2011;6(5):e20419.
- Kännaste A, Copolovici L, Niinemets Ü. Gas chromatography-mass spectrometry method for determination of biogenic volatile organic compounds emitted by plants. In: Rodríguez-Concepción M, editor. Plant Isoprenoids Methods and Protocols. New York (NY): Humana Press; 2014. p. 161-169.
- Schaub A, Blande JD, Graus M, Oksanen E, Holopainen JK. Real-time monitoring of herbivore-induced volatile emissions in the field. Physiol Plant. 2010;138(2):123-133.
- Fall R, Karl T, Hansel A, Jordan A, Lindinger W. Volatile organic compounds emitted after leaf wounding: on-line analysis by proton-transfer-reaction mass spectrometry. J Geophys Res Atmos. 1999;104(D13):15963-15974.
- Kaur D, Schedl A, Lafleur C, Martinez Henao J, van Dam NM, Rivoal J, et al. Arabidopsis transcriptomics reveals the role of Lipoxygenase2 (AtLOX2) in wound-induced responses. Int J Mol Sci. 2024;25(11):5898.
- Gentner DR, Ormeño E, Fares S, Ford TB, Weber R, Park JH, et al. Emissions of terpenoids, benzenoids, and other biogenic gas-phase organic compounds from agricultural crops and their potential implications for air quality. Atmos Chem Phys. 2014;14(11):5393-5413.
- Harley P, Deem G, Flint S, Caldwell M. Effects of growth under elevated UV-B on photosynthesis and isoprene emission in Quercus gambelii and Mucuna pruriens. Glob Chang Biol. 1996;2(2):149-154.
- Lobo-do-Vale R, Schenk HJ, Kübert A, Lintunen A. Gas phase in plants: integrating physiology, ecology and environmental sciences. Tree Physiol. 2026;46(13):1-4.
- Niinemets Ü. Whole plant photosynthesis. In: Flexas J, Loreto F, Medrano H, editors. Terrestrial Photosynthesis in a Changing Environment A Molecular Physiological and Ecological Approach. Cambridge: Cambridge University Press; 2012. p. 399-423.
Перепечатки и разрешения
Теги
Эта статья была опубликована
Видео скоро будет доступно