В данной статье представлен оптимизированный протокол обратной трансфекции для эффективной доставки нуклеозидно-модифицированной мРНК обратной транскриптазы теломеразы человека (hTERT mRNA) в сенесцентные фибробласты человека. Предварительное нанесение комплексов hTERT mRNA-липидов на поверхности для культивирования улучшает поглощение, обеспечивая активацию теломеразы, удлинение теломер и частичное омоложение. В конечном итоге культуры снова входят в состояние сенесценции или криза без бессмертия.
Методическая статья
Оптимизированный протокол обратной трансфекции для доставки мРНК теломеразы в ранне-сенесцентные фибробласты человека
* These authors contributed equally
В этой статье
Краткое содержание
Аннотация
Клеточное старение сопровождается глубокими изменениями физиологии клеток, включая снижение текучести мембран, нарушение эндосомального транспорта, снижение способности к эндоцитозу и повышение активности внеклеточных РНказ, что в совокупности препятствует эффективной доставке мРНК. Эти барьеры ограничивали применение подходов на основе РНК в стареющих клетках, особенно при доставке крупных терапевтических транскриптов. В данном протоколе описывается оптимизированный метод обратной трансфекции для эффективной доставки модифицированной матричной РНК (мРНК) в стареющие фибробласты человека. Хотя в качестве модельного транскрипта использовалась мРНК человеческой теломеразы обратной транскриптазы (hTERT), данный рабочий процесс в целом применим и к другим мРНК. В отличие от традиционных методов трансфекции, при которых РНК-липидные комплексы добавляются в культуральную среду после прикрепления клеток, обратная трансфекция предполагает нанесение комплексов на поверхность культуры до посева клеток, что обеспечивает прямое взаимодействие между прикрепляющимися клетками и трансфекционными комплексами. Для максимизации эффективности трансфекции в протоколе используются нуклеозидно-модифицированные мРНК, содержащие псевдоуридин и 5-метилцитидин, удлиненные поли(А)-хвосты, оптимизированное время формирования комплексов, ингибирование РНказ, кратковременное повышение pH эндосом с помощью хлорохина, повышенная плотность посева клеток и увеличенные периоды инкубации. С помощью этого подхода была достигнута эффективность трансфекции примерно 50%–80% в стареющих фибробластах после доставки транскрипта мРНК hTERT размером 5 kb. Пик активности теломеразы наблюдался через 24–48 h после трансфекции. Одиночный цикл трансфекции приводил к измеримому удлинению теломер, в то время как три последовательные трансфекции приводили к существенному, но ограниченному удлинению теломер. Частичное обращение фенотипов, связанных со старением, было заметно в течение 72–96 h, включая снижение активности β-галактозидазы, связанной со старением, снижение экспрессии p16 и p21, восстановление морфологии клеток и увеличение репликативного срока жизни. Доставленная мРНК hTERT деградировала в течение 72–96 h, и бессмертия клеток не наблюдалось. Данный протокол предлагает практический подход для транзиентной доставки мРНК в стареющие клетки и может быть адаптирован для широкого спектра типов клеток и видов.
Введение
Метод обратной трансфекции представляет собой критическую методологическую адаптацию для сенесцентных клеток, которая позволяет преодолеть фундаментальные барьеры, создаваемые этими клетками для стандартных методов трансфекции. В отличие от прямой трансфекции, при которой клетки предварительно высевают и дают им прикрепиться перед добавлением трансфекционных комплексов, обратная трансфекция предполагает добавление клеток в суспензии непосредственно на предварительно сформированные липидные комплексы с мРНК hTERT. Эта техника значительно повышает эффективность трансфекции сенесцентных клеток за счет максимизации воздействия трансфекционных комплексов в критической фазе адгезии, когда перестройка мембран наиболее активна.
Основной концептуальный сдвиг в данном протоколе заключается в том, чтобы рассматривать сенесцентные клетки как отдельную проблему доставки, а не просто как труднотрансфицируемые варианты молодых клеток. При сенесцентности глобальные изменения в составе липидов мембраны, включая фосфолипиды, сфинголипиды и холестерин, изменяют текучесть мембраны, ее кривизну и белково-липидные взаимодействия, одновременно способствуя развитию секреторного фенотипа, ассоциированного со старением1,2,3. Сенесцентные клетки также характеризуются снижением рецепторного эндоцитоза, опосредованного клатрином и кавеолами, а также изменением путей эндоцитоза, что частично обусловлено подавлением экспрессии amphiphysin-1 и компенсаторными изменениями экспрессии кавеолина, которые ослабляют рецепторно-опосредованный захват и передачу сигналов4,5,6. Параллельно с этим происходит дисрегуляция оси поздних эндосом и лизосом, регулируемой Rab7, а также более широкой эндосомально-автофагически-лизосомальной (EAL) сети, при этом Rab7 выступает в качестве главного контроллера созревания эндолизосом и слияния автофагосом с лизосомами, которые нарушаются при старении и нейродегенерации7.
Сенесцентные клетки обычно активируют экспрессию множества компонентов системы лизосомальной переработки и адаптации (LYPAS), включая лизосомальный биогенез под управлением TFEB/TFE3 и шаперон-опосредованную аутофагию, что приводит к увеличению лизосомальной массы. Однако отдельные лизосомы часто характеризуются повышенным pH просвета, повреждением мембран и измененной протеолитической активностью, что способствует развитию лизосомальной дисфункции, несмотря на их повышенное количество8,9,10,11. В совокупности эти изменения могут более эффективно направлять интернализованный материал в деградативные эндолизосомальные компартменты, повышая вероятность того, что доставленная РНК или белок будут подвергнуты деградации до их продуктивного высвобождения в цитозоль9,10,11. Обратная трансфекция напрямую воздействует на самый ранний период ремоделирования мембран во время адгезии, обеспечивая устойчивый высокоаффинный контакт между клетками и комплексами мРНК-липид, что позволяет частично обойти нарушенный стационарный эндоцитоз в полностью адгезивных сенесцентных клетках4,5,6,12.
Что касается дизайна РНК, протокол предполагает, что в контексте старения простого базового уровня «кэп + хвост» недостаточно: полная модификация нуклеозидов (например, псевдоуридина или N1‑метилпсевдоуридина вместе с 5‑метилцитидином) считается обязательным условием, чтобы разделить процесс трансляции и распознавание эндосомальными Toll-подобными рецепторами с последующей индукцией интерферона I типа. Основополагающие работы показали, что включение модифицированных нуклеозидов в РНК подавляет активацию TLR3, TLR7 и TLR8 и заметно снижает продукцию цитокинов дендритными клетками, что обеспечивает механистическую основу снижения врожденной иммуногенности современных платформ на основе нуклеозид-модифицированной мРНК13. В более современных обзорах вакцин на основе мРНК-ЛНП и препаратов на основе мРНК подчеркивается необходимость скоординированного проектирования 5′-кэпа, нетранслируемых областей (UTR), кодирующей последовательности и поли(A)-хвоста для повышения стабильности и трансляции in vivo при одновременной минимизации активации врожденного иммунитета14. В частности, длина и архитектура поли(A)-хвоста оказались ключевыми детерминантами стабильности и трансляционного выхода мРНК, транскрибированной in vitro, что обосновывает использование удлиненных или модифицированных конструкций поли(A)-хвоста в терапевтической мРНК15.
Кроме того, протокол в явном виде предусматривает защиту от внеклеточных и эндосомальных РНКаз во время формирования комплекса и его поглощения, а также определенное окно выхода из эндосом с использованием транзиторного лизосомотропного агента, такого как хлорохин16,17. Хлорохин давно используется в качестве функционального зонда эндосомальных барьеров; он может значительно повысить эффективность взаимодействия с мишенью и сайленсинга с помощью siRNA или антисмысловых олигонуклеотидов, способствуя деструкции мембран эндосом и выходу нуклеиновых кислот в цитозоль18. В то же время визуализация mRNA, доставленных с помощью LNP, на живых клетках и с суперразрешением показала, что эффективная доставка жестко ограничена редкими событиями выхода из ранних/рециклирующих эндосом, а не самим начальным поглощением, что подчеркивает важность намеренного проектирования этапа выхода из эндосом для препаратов на основе mRNA19.
В совокупности эти связанные со старением изменения в динамике мембран, эндоцитозном транспорте, лизосомальной обработке и активации врожденного иммунитета создают значительные барьеры для эффективной доставки мРНК. Описанная здесь стратегия обратной трансфекции была разработана для преодоления этих ограничений путем сочетания оптимизированного инжиниринга мРНК, защиты от РНказ, усиленного выхода из эндосом и прямого воздействия на прикрепляющиеся клетки предварительно сформированных комплексов мРНК и липидов. Хотя в качестве модельного груза используется мРНК hTERT, данный рабочий процесс широко применим для доставки других крупных терапевтических транскриптов мРНК в стареющие и труднотрансфицируемые популяции клеток20,21,22.
Протокол
1. Транскрипция мРНК hTERT in vitro
- In vitro транскрипция (IVT) с использованием ARCA и ΨUTP
- Подготовьте реакционную смесь для IVT объемом 20 µL согласно Таблице 1. При необходимости большего выхода увеличьте объем компонентов реакции линейно.
- Смешайте все компоненты реакции, кроме РНК-полимеразы T7, в пробирке, свободной от РНказ. Добавьте РНК-полимеразу T7 в последнюю очередь, осторожно перемешайте и кратковременно центрифугируйте пробирку.
- Инкубируйте реакционную смесь при 37 °C в течение 0,5–4 ч.
ПРИМЕЧАНИЕ: Отрегулируйте время инкубации в зависимости от длины матрицы. Реакции с короткими матрицами (приблизительно 500 bp) инкубируйте около 30 мин, а с более длинными матрицами (приблизительно 4 kb) — в течение 3–4 ч.
- Обработка ДНКазой
- Добавьте 1 µL DNase I, свободной от РНказ, непосредственно в реакционную смесь IVT.
- Инкубируйте реакционную смесь при 37 °C в течение 15 мин.
ПРИМЕЧАНИЕ: Обработку ДНКазой следует проводить непосредственно в смеси для IVT без предварительной очистки синтезированной мРНК.
- Очистка мРНК
- Добавьте 115 µL воды, свободной от нуклеаз, чтобы разбавить реакционную смесь.
- Очистите мРНК с помощью набора для очистки РНК согласно инструкциям производителя.
- Элюируйте очищенную мРНК в 20–30 µL воды, свободной от нуклеаз.
- Измерьте чистоту мРНК спектрофотометрически и проверьте целостность РНК методом электрофореза в 1,0–1,5% денатурирующем агарозном геле или в низкопроцентном полиакриламидном геле.
- Полиаденилирование (добавление poly(A)-хвоста)
- Подготовьте реакционную смесь для полиаденилирования объемом 50 µL согласно Таблице 2. Осторожно перемешайте компоненты реакции и инкубируйте при 37 °C в течение 30–60 мин.
ПРИМЕЧАНИЕ: Отрегулируйте время инкубации в зависимости от количества исходной РНК. - Остановите реакцию, добавив 2 µL 0,5 M EDTA (pH 8,0).
- Подготовьте реакционную смесь для полиаденилирования объемом 50 µL согласно Таблице 2. Осторожно перемешайте компоненты реакции и инкубируйте при 37 °C в течение 30–60 мин.
- Финальная очистка и контроль качества
- Очистите полиаденилированную мРНК с помощью набора для очистки РНК согласно инструкциям производителя.
- Элюируйте очищенную мРНК в 20–30 µL воды, свободной от нуклеаз.
- Оцените качество мРНК перед переходом к трансфекции
- Измерьте концентрацию мРНК при 260 nm и определите чистоту, используя соотношения A260/A280 и A260/A230. Используйте препараты мРНК со значениями A260/A280 приблизительно 2,0 и значениями A260/A230 более 2,0.
- Оцените целостность мРНК с помощью гель-электрофореза или системы анализа РНК согласно инструкциям производителя.
- Подтвердите длину poly(A)-хвоста методом ОТ-ПЦР или с помощью анализатора Bioanalyzer. Убедитесь, что длина poly(A)-хвоста составляет от 120 до 200 нуклеотидов.
- Разделите очищенную мРНК на аликвоты и храните их при −80 °C, чтобы минимизировать количество циклов замораживания-оттаивания.
2. Обратная трансфекция
- День −1: Подготовка к трансфекции
- Проверка сенесцентного фенотипа
- Провести окрашивание репрезентативного образца клеток на активность ассоциированной со старением β-галактозидазы (SA-β-gal). Убедиться, что более 70% клеток являются положительными.
- Подтвердить экспрессию маркеров старения (p16 и p21) с помощью qRT-PCR или иммунофлуоресценции.
- Определить жизнеспособность клеток и убедиться, что она превышает 90%.
- Подготовка реагентов
- Предварительно прогреть полную культуральную среду до 37 °C.
- Предварительно прогреть фосфатно-солевой буфер (PBS) до 37 °C.
- Приготовить свежую среду Opti-MEM I.
ПРИМЕЧАНИЕ: Не добавлять ингибитор РНказы в Opti-MEM I перед использованием.
- Проверка сенесцентного фенотипа
- День 0: День трансфекции
ПРИМЕЧАНИЕ: Интервал от подготовки реагентов до инкубации трансфецированных клеток должен составлять примерно 3 ч.- Подготовка мРНК hTERT
- Разморозить мРНК hTERT на льду. Измерить концентрацию мРНК и использовать препараты с концентрацией от 0,5 до 1,0 µg/µL.
- Развести необходимое количество мРНК hTERT в Opti-MEM I в соответствии с используемым форматом культуры (Таблица 3). Добавить ингибитор РНказы до конечной концентрации 0,5–1,0 U/µL и аккуратно перемешать.
- Хранить разведенную мРНК на льду до момента формирования комплексов.
ПРИМЕЧАНИЕ: Добавлять ингибитор РНказы непосредственно перед использованием. Не хранить мРНК с ингибитором РНказы, так как его активность снижается после замораживания.
- Подготовка реагента для трансфекции
- Смешать 6,0 µL реагента для трансфекции с 100 µL Opti-MEM I в стерильной пробирке, не содержащей РНказ. Аккуратно перемешать путем пипетирования.
- Инкубировать смесь при комнатной температуре в течение 5 мин.
ПРИМЕЧАНИЕ: Для крупных конструкций мРНК hTERT (~5 kb) оптимизировать соотношение реагента к мРНК в диапазоне от 0,4 до 0,6 µL реагента на 100 ng мРНК.
- Формирование мРНК-липидных комплексов
- Добавить разведенный раствор мРНК hTERT (100 µL) к разведенному раствору реагента для трансфекции (106 µL). Аккуратно перемешать, произведя пипетирование 5–6 раз.
- Инкубировать смесь при комнатной температуре в течение 15–20 мин.
- Время комплексообразования не должно превышать 30 мин.
- Убедиться в успешном формировании комплексов по появлению слегка мутного раствора.
ПРИМЕЧАНИЕ: Подготовку клеток проводить во время процесса комплексообразования.
- Подготовка клеток для обратной трансфекции
- Аспирировать культуральную среду из культур сенесцентных клеток.
- Однократно промыть клетки предварительно прогретым PBS (2 mL на лунку планшета на 6 лунок).
- Добавить 500 µL 0,05% раствора трипсина-ЭДТА в каждую лунку.
- Инкубировать клетки при 37 °C в течение 3–5 мин.
- Нейтрализовать трипсин, добавив 3 mL полной среды, содержащей сыворотку.
- Аккуратно тритурировать клетки до получения суспензии из единичных клеток.
- Определить количество клеток с помощью гемоцитометра или автоматического счетчика клеток.
- Приготовить суспензию в полной среде, содержащую 2,0–2,5 × 10⁵ клеток на лунку.
ПРИМЕЧАНИЕ: Избегать длительной трипсинизации, так как сенесцентные клетки крайне чувствительны к механическому стрессу. Содержать клетки в суспензии; не высевать их на подложку перед обратной трансфекцией.
- Обратная трансфекция
- Подготовка культурального планшета
- Добавить 500 µL 0,01% поли-L-лизина в каждую лунку планшета на 6 лунок и инкубировать 30 мин при комнатной температуре.
- Аспирировать раствор для покрытия непосредственно перед использованием.
- Добавить 200 µL мРНК-липидного комплекса hTERT в центр каждой лунки.
- Инкубировать планшет при 37 °C и 5% CO₂ в течение 30 мин.
ПРИМЕЧАНИЕ: Покрытие планшета следует проводить параллельно с формированием комплексов и подготовкой клеток.
- Подготовка клеточной суспензии
- Суспендировать 2,0–2,5 × 10⁵ клеток в 1800 µL полной среды без антибиотиков.
- Аккуратно ресуспендировать клетки для получения однородной суспензии единичных клеток.
ПРИМЕЧАНИЕ: Во время трансфекции использовать среду без антибиотиков.
- Посев клеток на комплексы
- Добавить 1800 µL клеточной суспензии непосредственно на предварительно сформированные мРНК-липидные комплексы hTERT.
- Осторожно наклонить планшет 2–3 раза в каждом направлении для равномерного распределения клеток.
ПРИМЕЧАНИЕ: Не перемешивать суспензию пипетой после добавления клеток, так как это может разрушить мРНК-липидные комплексы.
- Инкубация клеток
- Инкубировать клетки при 37 °C в увлажненном инкубаторе с содержанием 5% CO₂ в течение 6–8 ч.
- Контролировать прикрепление клеток с помощью световой микроскопии через 2–3 ч после трансфекции.
- Убедиться, что клетки равномерно распределены и начинают прикрепляться к поверхности культуры.
ПРИМЕЧАНИЕ: Избыточное количество плавающих клеток или клеточного детрита может указывать на цитотоксичность, связанную с трансфекцией.
- Подготовка культурального планшета
- Подготовка мРНК hTERT
3. Снижение цитотоксичности
- Сократите время экспозиции при трансфекции до 48 h, если гибель клеток превышает 20%.
- Для повышения выживаемости клеток в течение периода трансфекции дополните среды 10 µM ингибитора ROCK Y-27632.
- Через 6–8 h после трансфекции аккуратно аспирируйте среду для трансфекции, стараясь не потревожить частично прикрепившиеся клетки. Оставьте в каждой лунке примерно 100 µL остаточной среды.
- Добавьте в каждую лунку 1 mL свежей предварительно нагретой полной ростовой среды, дополненной 15% FBS.
- Сразу после замены среды добавьте хлорохин до конечной концентрации 10–20 µM.
- Инкубируйте культуры еще в течение 2 h при 37 °C в увлажненном инкубаторе с содержанием 5% CO₂.
- Замените среду, содержащую хлорохин, свежей полной ростовой средой.
- Верните культуры в инкубатор для дальнейшего роста.
ПРИМЕЧАНИЕ: Контролируйте морфологию и жизнеспособность клеток на протяжении всего периода восстановления. Чрезмерная отслойка клеток или появление клеточного детрита могут указывать на цитотоксичность, связанную с трансфекцией.
4. Анализ после трансфекции
- Оцените экспрессию белка TERT через 24–48 ч после трансфекции.
- Измерьте уровни белка TERT методом вестерн-блоттинга или иммунофлуоресцентного окрашивания в соответствии со стандартными лабораторными процедурами.
- Измерьте активность теломеразы в тот же интервал времени, используя подходящий анализ активности теломеразы.
ПРИМЕЧАНИЕ: Активность теломеразы обычно снижается через 48 ч из-за деградации транзиторно доставленной мРНК hTERT. - Оцените длину теломер через 48–72 ч после трансфекции с помощью монохромной мультиплексной количественной ПЦР (MMqPCR) или эквивалентного метода анализа длины теломер.
ПРИМЕЧАНИЕ: После успешной доставки мРНК hTERT может наблюдаться детектируемое удлинение теломер. - Оцените фенотипы, связанные со старением и омоложением, через 7 дней после трансфекции
- Измерьте активность ассоциированной со старением β-галактозидазы (SA-β-gal).
- Измерьте уровни экспрессии p16 и p21.
- Оцените экспрессию Ki67.
- Изучите морфологию клеток с помощью световой микроскопии.
ПРИМЕЧАНИЕ: Сравните обработанные культуры с необработанными или имитированными (mock) трансфектированными стареющими контролями для оценки изменений в фенотипах, связанных со старением, и пролиферативных характеристиках.
5. Протокол повторного введения доз (опционально)
- Выполните первичную трансфекцию, как описано в разделах 2–4.
- Повторяйте трансфекции согласно следующему графику: день 0: первая трансфекция; день 5: вторая трансфекция; дни 10–12: третья трансфекция.
- Поддерживайте клетки в виде адгезивных культур и не используйте трипсинизацию перед последующими трансфекциями.
- Приготовьте свежие липидные комплексы с мРНК hTERT, как описано в разделах 2.2.1–2.2.3.
- Аспирируйте культуральную среду из каждой лунки.
- Добавьте по 200 µL липидных комплексов с мРНК hTERT непосредственно в каждую лунку.
- Сразу после добавления комплексов добавьте 800 µL свежей полной среды F-10.
- Инкубируйте клетки в течение 4–6 h при 37 °C в увлажненном инкубаторе с содержанием 5% CO₂.
- Замените среду для трансфекции свежей полной средой.
ПРИМЕЧАНИЕ: Ограничьте обработку максимум тремя циклами трансфекции, чтобы минимизировать кумулятивную цитотоксичность, связанную с трансфекцией.
6. Протокол прямой трансфекции (2 µg/mL, формат 6-луночного планшета)
- День −1: Посев клеток
- Отделите сенильные или ранние сенильные фибробласты, используя 0,05% раствор трипсин-ЭДТА.
- Нейтрализуйте трипсин полной культуральной средой.
- Определите количество и жизнеспособность клеток.
- Рассейте клетки по 6-луночным планшетам с плотностью 2,0–2,5 × 10⁵ клеток на лунку.
- Инкубируйте клетки в течение ночи при 37 °C в увлажненном инкубаторе с содержанием 5% CO₂ до достижения конфлюэнтности примерно 60–80%.
- День 0: Приготовление комплексов мРНК hTERT с реагентом
- Разморозьте аликвоту нуклеозид-модифицированной мРНК hTERT на льду.
- Разведите мРНК hTERT в среде Opti-MEM до конечной концентрации 2 µg/mL в стерильной пробирке, свободной от РНказ (Пробирка А).
- Добавьте в Пробирку А ингибитор РНказы до конечной концентрации 0,5–1,0 U/µL и осторожно перемешайте.
- Разведите реагент для трансфекции в среде Opti-MEM во второй пробирке, свободной от РНказ (Пробирка B), используя 0,4–0,6 µL реагента на 100 ng мРНК.
- Покапельно добавьте содержимое Пробирки B в Пробирку A, осторожно перемешивая.
- Инкубируйте смесь при комнатной температуре в течение 15–20 мин.
- День 0: Прямая трансфекция
- Убедитесь, что конфлюэнтность клеток составляет 60–80% и они имеют здоровую морфологию.
- Аспирируйте культуральную среду.
- Однократно промойте клетки 1–2 mL предварительно подогретого PBS.
- Добавьте в каждую лунку 0,5 mL предварительно подогретой полной или среды с пониженным содержанием сыворотки.
- При необходимости добавьте хлорохин до конечной концентрации 10–20 µM.
- Добавьте в каждую лунку 0,5 mL комплексов мРНК hTERT с реагентом, приготовленных на этапе 6.2.6.
- Осторожно покачайте планшет для равномерного распределения комплексов.
- Инкубируйте клетки в течение 4–6 ч при 37 °C в увлажненном инкубаторе с содержанием 5% CO₂.
ПРИМЕЧАНИЕ: При необходимости увеличьте период инкубации для сенильных клеток до 6–8 ч. - Аспирируйте среду для трансфекции.
- Добавьте в каждую лунку 2,0 mL свежей полной среды.
- Проведите посттрансфекционный анализ, как описано в Разделе 4.
ПРИМЕЧАНИЕ: При сравнении условий прямой и обратной трансфекции используйте одну и ту же серию мРНК hTERT, один и тот же реагент для трансфекции и номинальную дозу.
Результаты
modРНК d2EGFP-T2A-hTERT была сконструирована как гибридная открытая рамка считывания, в которой репортер дестабилизированного EGFP (d2EGFP) был соединен с hTERT человека посредством саморасщепляющегося пептида T2A. Полные нуклеотидные и белковые последовательности всех конструктов представлены в Дополнительном файле 1. Кодирующая последовательность была фланкирована синтетической 5′-нетранслируемой областью (UTR) и 3′-UTR β-глобина человека для повышения эффективности трансляции и стабильности мРНК (Рисунок 1A). Экспрессионная кассета также содержала синтетическую последовательность стабилизатора фермента (Es) и синтетическую последовательность энхансера транскрипции (TEs), предназначенные для повышения процессивности T7-полимеразы и снижения частоты преждевременной терминации транскрипции. После клонирования ниже T7-промотора была проведена транскрипция in vitro с использованием антиреверсивного аналога кэпа (ARCA) и модифицированных нуклеотидов (m5CTP и ΨUTP) с последующим ферментативным полиаденилированием (приблизительно 120–200 nt) для получения кэпированной, полиаденилированной modРНК d2EGFP-T2A-hTERT высокой степени целостности (Рисунок 1A).
Автоматизированный электрофоретический анализ РНК подтвердил эффективность синтеза транскрипта, выявив преобладание видов РНК ожидаемого размера с минимальным количеством продуктов деградации при различных количествах исходного материала, что свидетельствует об успешном получении полноразмерной modRNA (Рисунок 1B). После трансфекции фибробластов LF1 на ранней стадии старения 2 µg/mL d2EGFP-T2A-hTERT modRNA белок hTERT стал обнаруживаться в течение 24 ч и оставался на повышенном уровне в течение 48–96 ч, что указывает на устойчивую трансляцию синтетического транскрипта (Рисунок 1C). Анализ связанного репортера d2EGFP продемонстрировал выраженную флуоресценцию после обратной трансфекции, тогда как после прямой трансфекции наблюдалась существенно более низкая флуоресценция (Рисунок 1D,E). Эти результаты указывают на улучшенную доставку и экспрессию hTERT modRNA при использовании метода обратной трансфекции в фибробластах LF1 на ранней стадии старения.
Повторная прямая трансфекция (FT) ранне-сенесцентных фибробластов LF1 модифицированной мРНК d2EGFP-T2A-hTERT с интервалом в 5 дней приводила к прогрессивному увеличению средней длины теломер (rT/S) по сравнению с контрольными клетками, подвергнутыми имитации трансфекции, что было измерено с помощью монохромной мультиплексной количественной ПЦР (MMqPCR) (Рисунок 2A). Отношение rT/S увеличивалось после каждого цикла FT, при этом статистическая значимость возрастала от *P < 0,05 до **P < 0,01.
Применение того же графика дозирования с использованием обратной трансфекции (RT) привело к более выраженному увеличению длины теломер. Отношение rT/S увеличивалось после каждого цикла RT и достигло высокозначимых различий по сравнению с контролем (имитация трансфекции) (*P < 0.05 — ****P < 0.0001) (Рисунок 2B). Прямое сравнение FT и RT после трех циклов обработки показало, что оба подхода значительно увеличивали значения rT/S по сравнению с контролем; однако RT обеспечивала более значительный прирост, чем FT, при идентичных условиях дозирования и сроках (*P < 0.05, ***P < 0.001, ****P < 0.0001) (Рисунок 2C).
Анализ долгосрочного роста дополнительно продемонстрировал, что повторное введение modRNA hTERT продлевало репликативный жизненный цикл (Рисунок 2D). Клетки, подвергшиеся одному, двум или трем циклам обработки, демонстрировали прогрессивно большее общее число удвоений популяции по сравнению с контролем, подвергшимся ложной трансфекции. Культуры, получившие три раунда обработки modRNA hTERT, особенно путем RT, показали наибольшее отклонение от кривых роста контроля на протяжении примерно 250 дней (до ****P < 0.0001). Расчеты удвоения популяции представлены в Дополнительном файле 2.
Ранние сенесцентные фибробласты LF1, трансфицированные modRNA d2EGFP-T2A-hTERT, демонстрировали выраженный лестничный паттерн TRAP через 48 ч после трансфекции, в то время как клетки ложнотрансфицированные или обработанные eGFP-modRNA проявляли только фоновый сигнал, что указывает на то, что теломеразная активность была вызвана экзогенной экспрессией hTERT (Рисунок 3A). Термическая предобработка устраняла лестничный паттерн, подтверждая специфичность анализа (Рисунок 3B).
Анализ временной динамики показал, что активность теломеразы достигла пика в интервале от 24 до 48 ч после трансфекции, а затем снизилась, вернувшись к уровням, близким к исходным, к 72–96 ч (Рисунок 3C). Увеличение концентрации modRNA hTERT с 50 до 3 000 ng/mL привело к соответствующему росту интенсивности сигнала TRAP, что свидетельствует о дозозависимой активации теломеразы (Рисунок 3D).
Функциональный анализ с использованием конструктов hTERT дикого типа, каталитически неактивного (CI) и с делецией сигнала ядерной локализации (ΔNLS) показал, что только hTERT дикого типа обеспечивал выраженную теломеразную активность. Оба варианта, CI и ΔNLS, не индуцировали сопоставимой активности, несмотря на аналогичные условия доставки (Рисунок 3E). В соответствии с этими данными, анализ методом MMqPCR выявил заметное увеличение средней длины теломер (rT/S ≈ 1,4) только в клетках, получивших modRNA hTERT дикого типа. В клетках, получивших CI-hTERT, ΔNLS-hTERT или имитацию лечения (mock), показатели оставались на базовом уровне (rT/S ≈ 0,3; ****P < 0,0001) (Рисунок 3F).
Три последовательных раунда обратной трансфекции modРНК hTERT с интервалом в 5 дней значительно снизили долю клеток, положительных по ассоциированной со старением β-галактозидазе. Процент положительных клеток снизился примерно с 85% в контрольных культурах (mock) до примерно 40% в культурах, обработанных hTERT, через 15 дней после финальной трансфекции (***P < 0.001) (Рисунок 4A).
Конфокальное иммуноокрашивание выявило повышенную экспрессию Ki67 в клетках, подвергшихся трем раундам обратной трансфекции hTERT, по сравнению с контрольной группой (имитация обработки), что свидетельствует о повышенной пролиферативной активности (Рисунок 4B). Анализ RT-qPCR дополнительно продемонстрировал снижение экспрессии маркеров старения p16 и p21 после обработки hTERT. По сравнению с клетками на ранней стадии старения из контрольной группы, экспрессия p16 снизилась примерно с 2,3-кратного до 0,7-кратного уровня, а экспрессия p21 — примерно с 11-кратного до 6-кратного уровня (**P < 0,01; ****P < 0,0001) (Рисунок 4C,D). Дополнительный рисунок 1 далее показывает, что обработка только хлорохином (CQ) или Y-27632 не привела к значимому изменению экспрессии p16 или p21 в контрольных клетках. Напротив, сочетание CQ и Y-27632 в течение трех раундов обратной трансфекции hTERT привело к наибольшему снижению экспрессии как p16, так и p21 по сравнению с обратной трансфекцией только hTERT или применением каждого агента в отдельности, в то время как монотерапия вызывала промежуточный эффект. Эти результаты указывают на то, что комбинированное использование CQ и Y-27632 усилило снижение экспрессии маркеров старения после обратной трансфекции мРНК hTERT. В совокупности эти данные демонстрируют, что повторная обратная трансфекция мРНК hTERT способствует удлинению теломер, снижает уровень маркеров старения и усиливает пролиферативные характеристики фибробластов LF1 на ранней стадии старения.
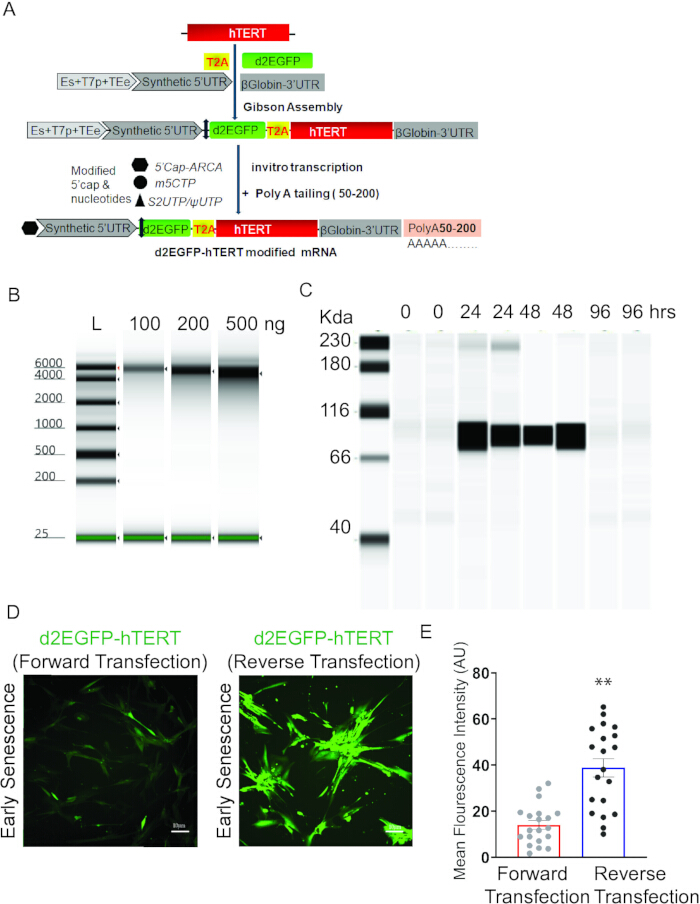
Рисунок 1: Разработка, синтез и функциональная валидация мРНК d2EGFP‑T2A‑hTERT в ранне-сенесцентных фибробластах LF1. (A) Схематическое изображение гибридной конструкции мРНК hTERT, содержащей кассету d2EGFP, связанную с пептидом T2A, для одновременной экспрессии hTERT и дестабилизированного EGFP. ОРФ d2EGFP-T2A-hTERT фланкирована 3’-UTR гена β-глобина человека (HBB) и синтетической 5’-UTR. мРНК была синтезирована с использованием модифицированных нуклеотидов, и в конце был добавлен поли(A)-хвост. (B) Эффективный синтез высокоцелостной мРНК d2EGFP-T2A-hTERT с помощью транскрипции in vitro, проанализированный методом автоматизированного электрофоретического анализа РНК. (C) Анализ динамики экспрессии белка hTERT с использованием автоматизированного капиллярного иммуноанализа после трансфекции 2 µg/mL мРНК d2EGFP-T2A-hTERT. (D) В ранне-сенесцентных первичных диплоидных фибробластах (LF1) оценивали эффективность и экспрессию при трансфекции мРНК d2EGFP-T2A-hTERT по экспрессии EGFP при прямой трансфекции (FT) и обратной трансфекции (RT). Масштабная линейка = 10 µm. (E) Количественное определение средней интенсивности флуоресценции (MFI) сигнала eGFP после прямой или обратной трансфекции. Для каждого условия было проанализировано в общей сложности 20 отдельных изображений, охватывающих 4 разные области из 5 биологических повторностей. Данные представлены как среднее значение ± SD. **P < 0.01; определено с помощью непарного t-критерия с поправкой Уэлча. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
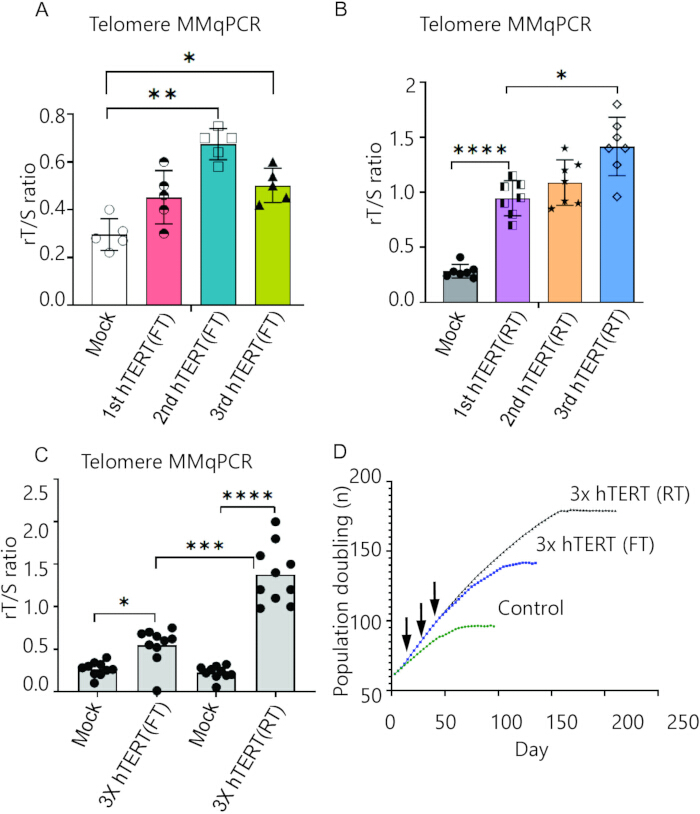
Рисунок 2: Динамика длины теломер и пролиферативный потенциал после повторной прямой по сравнению с обратной трансфекцией мРНК hTERT в ранне-сенесцентных фибробластах LF1. (A) Средняя длина теломер (rT/S) определялась с помощью метода Telomere MMqPCR. Ранне-сенесцентные фибробласты подвергались прямой трансфекции (FT) мРНК d2EGFP-T2A-hTERT три раза подряд с интервалом в 5 дней, начиная с удвоения популяции (PD) №76. Планка погрешности указывает SEM; n = 5 биологических повторностей; *P < 0.05, **P < 0.01 по сравнению с клетками, подвергнутыми только имитационной (mock) трансфекции. (B) Аналогично (A), rT/S оценивали при повторной трансфекции (RT) ранне-сенесцентных клеток мРНК d2EGFP-T2A-hTERT три раза подряд с интервалом в 5 дней, начиная с удвоения популяции (PD) №76. Планка погрешности представляет SEM; n = 7 биологических повторностей; *P < 0.05, ****P < 0.0001 по сравнению с клетками, подвергнутыми только имитационной трансфекцией. (C) Сравнение средней длины теломер (rT/S) после 3 последовательных прямых и обратных трансфекций с интервалом в 5 дней или только имитационной трансфекции. Планка погрешности представляет SEM; n = 10 биологических повторностей; *P < 0.05, ***P < 0.001, ****P < 0.0001. (D) Кривые роста фибробластов LF1, трансфецированных 2 µg/ml мРНК d2EGFP-T2A-hTERT или только имитационной трансфекцией один, два или три раза подряд с интервалом в 5 дней, начиная с PD# 76. Черные стрелки указывают время проведения процедур. Кривые роста воспроизводились трижды, при этом каждая популяция культивировалась в трех повторностях. По 3 технических повторности на биологический образец, данные представлены как среднее ± SD. *P < 0.05, **P < 0.01; ****P < 0.0001, согласно тесту Брауна-Форсайта и ANOVA Уэлча Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
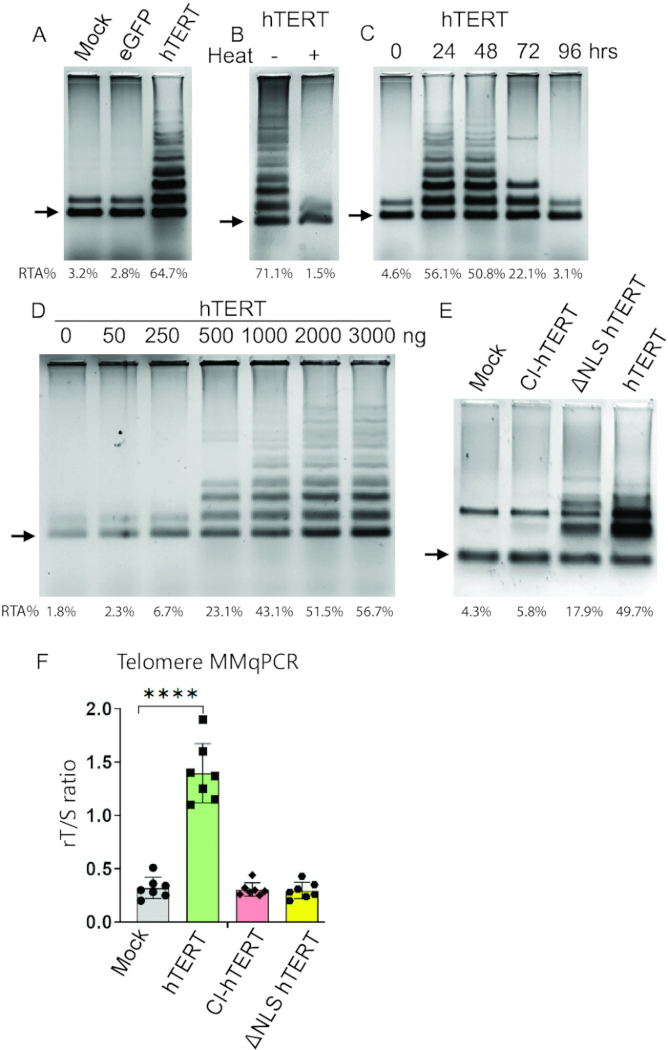
Рисунок 3: Каталитически активная мРНК hTERT с ядерной локализацией вызывает кратковременный дозозависимый всплеск активности теломеразы, которого достаточно для обеспечения измеримого удлинения теломер в ранне-сенесцентных фибробластах LF1. (A) Клетки на стадии раннего старения были трансфецированы контрольной (mock), eGFP или d2EGFP-T2A-hTERT мРНК. Через 48 ч после трансфекции из 20 000 клеток был получен клеточный экстракт, который подвергли анализу TRAP. Продукты реакции разделяли методом нативного PAGE и окрашивали красителем SYBR Green. (B) Инактивация теломеразы под воздействием температуры, измеренная с помощью анализа TRAP. (C) Анализ активности теломеразы во времени в ранне-сенесцентных клетках LF1 после трансфекции мРНК hTERT показал, что активность вернулась к исходному уровню в течение 72 ч, что указывает на транзиторную активацию фермента. (D) В ранне-сенесцентные клетки LF1 вводили различные количества мРНК d2EGFP-T2A-hTERT (0–3 000 ng/mL), что привело к увеличению активности теломеразы пропорционально дозе. (E) Доставка 2 µg/ml TERT повысила активность теломеразы в ранне-сенесцентных клетках LF1. ΔNLS частично увеличивал активность теломеразы без индукции удлинения теломер, так как он функционирует в цитоплазме, но не перемещается в ядро, в то время как CI TERT мРНК не вызывала этого эффекта, что свидетельствует о различных функциональных результатах. (F) Влияние обратной трансфекции функциональной TERT, TERT с делецией сигнала ядерной локализации (ΔNLS) и каталитически неактивной (CI) TERT на среднюю длину теломер (rT/S) в ранне-сенесцентных клетках LF1, что указывает на важность каталитически активной TERT с ядерной локализацией для удлинения теломер. Планка погрешности соответствует SD; n = 7 биологических повторностей; ****P < 0.0001 по сравнению с клетками, обработанными только контролем, согласно однофакторному ANOVA с поправкой Уэлча. RTA% — относительная активность теломеразы (% от контроля) указана в нижней части каждой дорожки. Отношение уровней интенсивности лестниц образцов TRAP и полосы ITAS (внутренний контроль — IC) для каждой дорожки рассчитывалось по следующей формуле: Активность норм. = Интенсивность лестницы / Интенсивность IC; каждый образец был нормирован по отношению к положительному контролю в процентах (положительный контроль: 2 500 клеток H1299) по следующей формуле: Относительная активность (%) = Активность норм. (образец) / Активность норм. (эталон). На каждом этапе выполнялось вычитание фона. Нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
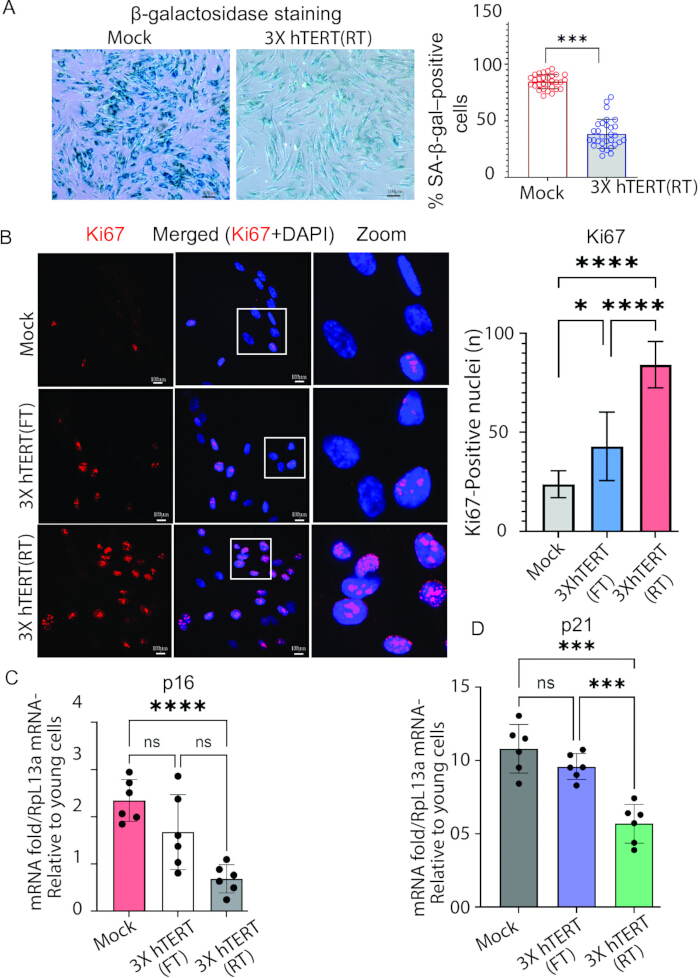
Рисунок 4Оптимизированная обратная трансфекция мРНК hTERT частично обращает фенотипы, связанные со старением, и восстанавливает пролиферативные маркеры в раннестареющих фибробластах линии LF1. (A) Репрезентативные изображения экспрессирующих β-гал ранних сенесцентных клеток LF1 после трех последовательных трансфекций модифицированной мРНК hTERT с интервалом в 5 дней. Масштабный отрезок = 100 µmЭкспрессию β-галактозидазы анализировали через 15 дней после последней трансфекции. Эксперименты проводили трижды с >В каждом образце вручную оценивали по 100 клеток.B) Репрезентативные изображения ранних сенесцентных клеток LF1, полученные с помощью конфокальной микроскопии (увеличение 20x), с окрашиванием на маркер пролиферации Ki67. Масштабный отрезок = 100 µmЗначительное увеличение экспрессии Ki-67 после 3 раундов обратной трансфекции hTERT. Процент Ki67-положительных ядер значительно возрастает после 3-кратной трансфекции hTERT (RT). На графике представлены среднее значение ± стандартное отклонение (SD) количества Ki67-положительных ядер, нормализованное относительно контрольной группы (Mock-трансфекция). Для каждого условия было изучено в общей сложности 18 изображений; из каждого биологического повтора были выбраны 6 отдельных полей зрения при общем количестве n = 3 биологических повтора. ****P < 0.0001. (C) Экспрессия маркеров старения после трехкратного частичного омоложения с помощью hTERT, определенная методом RT-qPCR (n = 6). Все данные представлены как среднее значение ± SD. **P < 0.01; ****P < 0,0001, согласно результатам непарного t-критерия с поправкой Уэлча. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
| Компонент | Объем/Конечная концентрация |
| ДНК-матрица для ПЦР | 200 –1000 ng |
| 10× буфер для IVT | 2 μL |
| ATP (100 mM) | 2 μL (конечная 10 mM) |
| GTP (100 mM) | 1.5 μL (конечная 7.5 mM) |
| CTP (100 mM) | 2 μL (конечная 10 mM) |
| m1Ψ-5′-TP (100 mM) | 2 μL (конечная 10 mM) (Степень включения псевдо-UTP можно увеличить, добавив обычный UTP в соотношении 1:4–2:2 (m1Ψ-5′-TP:UTP).) |
| ARCA (10 mM) | 4 μL (конечная 2 mM) |
| Ингибитор РНказы (40 U/μL) | 0.5 μL (20 U) |
| РНК-полимераза T7 (50 U/μL) | 2 μL (100 U) |
| Вода без нуклеаз H₂O | 20 μL |
Таблица 1: Состав реакции транскрипции in vitro (IVT) для синтеза модифицированной нуклеозидами мРНК hTERT. Приведены компоненты реакции и конечные количества, использованные для IVT-синтеза с ARCA-кэпированием.
| Компонент | Объем/конечная концентрация |
| Очищенная мРНК до 5 μg | ≤20 μL |
| 10-кратный буфер для поли(А)-хвостирования | 5 μL |
| АТФ (10 мМ | 5 μL (конечная концентрация 1 мМ) (Несмотря на то, что этот компонент уже содержится в буфере, дополнительное добавление способствует стабилизации поли-А). |
| Поли(А)-полимераза (5 ед./μL) | 1 μL (5 ед.) |
| Вода, свободная от нуклеаз | Суммарно 50 μL |
Таблица 2: Состав реакционной смеси для полиаденилирования, используемой для посттранскрипционной модификации мРНК hTERT. Представлены объемы реагентов и условия реакции для создания поли(А)-хвоста длиной 120–200 нуклеотидов.
| Параметр | Формат на 12 лунок | Формат с 6 лунками |
| Площадь поверхности роста | ~3,8 см² | ~9,5 см² |
| Объем среды на лунку | 1,0 мл | 2,0 мл |
| Число высева клеток | 5× 10⁴–6.5× 10⁴ кл./мл | 2,0–2,5 × 10⁵ |
| Среднее количество клеток (при 100% конфлюэнтности) | 5.7× 10⁴–7.2× 10⁴ Клеток/мл | 2,9–3 × 10⁵ |
| Количество мРНК для трансфекции | 750–1000 нг | 2000–3500 нг |
| агент для трансфекции мРНК | 1.5 – 3.0 µL | 4.75 – 7 µL |
| Конечный объем мРНК + трансфекционного агента в Opti-MEM | 50 µL | 200 µL |
Таблица 3: Рекомендуемые параметры трансфекции для доставки мРНК hTERT в культуральных форматах с 6 и 12 лунками. Приведены сводные данные по плотности посева клеток, количеству мРНК, объемам реагента для трансфекции и объемам для формирования комплексов, использованным в экспериментах по прямой и обратной трансфекции.
Дополнительный рисунок 1: Влияние хлорохина и Y-27632 на экспрессию ассоциированных со старением белков p16 и p21 после повторной обратной трансфекции мРНК hTERT. (A) Количественный анализ экспрессии мРНК p16 методом RT-PCR в фибробластах LF1 с имитацией трансфекции (mock) и после тройной обратной трансфекции (RT) мРНК hTERT после обработки хлорохином (CQ), Y-27632 или их комбинацией, как указано. (B) Количественный анализ экспрессии мРНК p21 при тех же экспериментальных условиях. Уровни транскриптов были нормализованы по RpL13a и выражены относительно молодых контрольных клеток (PD#12). Отдельные точки данных представляют собой биологические повторности. Данные представлены как средние значения ± SD для n = 2 биологических повторностей с 5 техническими повторностями для каждой биологической повторности. Статистическая значимость указана на рисунке; ns — недостоверно. *P < 0.05, **P < 0.01, ****P < 0.0001, определено с помощью критериев Брауна–Форсайта и ANOVA Уэлча. Сокращения: CQ — хлорохин; RT — обратная трансфекция; Y-27632 — ингибитор Rho-ассоциированной протеинкиназы (ROCK).Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительный файл 1: Последовательности ДНК и белков конструкций для экспрессии hTERT.Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительный файл 2: Расчет удвоения популяции (PD). Удвоения популяции (PD) рассчитывали по формуле PD = log₂ (Nf/N₀), где N₀ — количество высеянных клеток, а Nf — количество собранных жизнеспособных клеток. Кумулятивное значение PD определяли путем суммирования значений PD по всем пассажам.Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Обсуждение
В данном исследовании клеточное старение рассматривается не как незначительное отклонение физиологии пролиферации, а как специфическая проблема доставки, в связи с чем разрабатывается стратегия трансфекции мРНК теломеразы, адаптированная к биофизическим и иммунологическим ограничениям сенильного состояния. Сенесцентные клетки характеризуются ригидностью мембран, обогащенных холестерином, и сниженной эндоцитарной активностью, что создает значительный барьер для эффективной доставки нуклеиновых кислот. Используя метод обратной трансфекции, данный протокол задействует период транзиторной адгезии, в течение которого сенесцентные клетки проходят стадию ремоделирования мембран и демонстрируют повышенную пластичность мембраны, что позволяет синхронизировать контакт клеток с комплексом в период максимального потенциала поглощения3,4. Репрезентативные результаты показывают, что эта стратегия улучшает доставку и экспрессию modRNA hTERT по сравнению с традиционной прямой трансфекцией, что приводит к более выраженному удлинению теломер и более заметным фенотипам, связанным с омоложением.
Центральной особенностью метода является многоуровневая стратегия инженерии мРНК, разработанная для преодоления трех основных барьеров в сенесцентных клетках: повышенной сигнализации врожденного иммунитета, усиленной деградации РНК и нарушенной трансляционной способности23,24,25. Включение псевдоуридина и 5-метилцитидина снижает активацию сигнальных путей TLR3, TLR7/8 и RIG-I, одновременно повышая стабильность транскрипта и эффективность трансляции13,26. Использование ARCA-кэппирования и оптимизация поли(А)-хвоста дополнительно улучшают стабильность транскрипта и выход трансляции, обеспечивая устойчивую, но транзиторную экспрессию hTERT. В соответствии с предыдущими исследованиями, эти модификации поддерживают эффективную экспрессию теломеразы, сводя к минимуму активацию врожденного иммунитета, связанную с доставкой экзогенной РНК.
Данный протокол также учитывает особенности внеклеточной среды, богатой РНКазами, что характерно для стареющих культур27. Защита РНК усилена за счет модификации нуклеозидов, формирования липидных комплексов и непосредственного добавления ингибитора РНКазы перед трансфекцией. Кроме того, время проведения обратной трансфекции скорректировано с учетом более медленной кинетики прикрепления стареющих клеток, что обеспечивает более длительное взаимодействие между клетками и мРНК-липидными комплексами в процессе адгезии клеток. В совокупности эти модификации повышают вероятность успешного поглощения содержимого в популяции клеток, которые в иных условиях трудно поддаются трансфекции.
Выход из эндосом представляет собой второе критическое препятствие для доставки мРНК в стареющие клетки. Стареющие клетки характеризуются повышенным содержанием лизосом и усиленным транспортом эндоцитозированного груза в деградационные компартменты17,28. Кратковременное воздействие хлорохина в ранний послетрансфекционный период улучшает функциональную доставку, способствуя выходу из эндосом и снижая лизосомальную деградацию интернализированной мРНК. Хотя оптимальная доза и продолжительность воздействия могут варьироваться в зависимости от типа клеток, представленные здесь результаты показывают, что усиление выхода из эндосом существенно повышает эффективность доставки в стареющих фибробластах.
На функциональном уровне повторное введение modRNA hTERT приводило к кумулятивному увеличению относительной длины теломер, продлению репликативного срока жизни и уменьшению ряда фенотипов, связанных со старением. Клетки, подвергшиеся повторному воздействию hTERT, демонстрировали снижение активности SA-β-gal, снижение экспрессии p16 и p21, повышение экспрессии Ki67 и усиление пролиферативной способности по сравнению с контрольными клетками, прошедшими имитацию трансфекции. Важно отметить, что активность теломеразы оставалась транзиторной, возвращаясь к уровню, близкому к базовому, в течение нескольких дней после трансфекции. Такой профиль транзиторной экспрессии позволяет избежать постоянной генетической модификации, обеспечивая при этом достаточную активность теломеразы для достижения измеримых биологических эффектов. Следует, однако, заметить, что измерения относительной длины теломер, полученные методом MMqPCR, не позволяют напрямую количественно оценить абсолютное удлинение теломер. Будущие исследования с использованием анализа терминальных рестрикционных фрагментов, количественной флуоресцентной гибридизации in situ, Flow-FISH или методологий TeSLA позволят более точно оценить динамику длины теломер после доставки mRNA hTERT.
Необходимо учитывать ряд ограничений. Популяции стареющих клеток по своей природе гетерогенны, и их реакция на доставку мРНК может варьироваться в зависимости от метода индукции старения, источника донорского материала и истории культивирования. Следовательно, эффективность трансфекции и результаты омоложения могут различаться в разных экспериментальных системах. Кроме того, реактивация теломеразы в первую очередь воздействует на теломерозависимые аспекты клеточного старения и не устраняет напрямую все признаки сенесценции. Возрастные изменения, такие как эпигенетический дрейф, митохондриальная дисфункция, нарушение протеостаза и хроническая воспалительная сигнализация, могут сохраняться даже при успешном удлинении теломер29,30. Таким образом, данный протокол следует рассматривать как специализированный инструмент для изучения и частичного обращения теломерозависимого старения, а не как комплексную стратегию омоложения.
Параметры, описанные в данном протоколе, предназначены в качестве практических рекомендаций для стареющих клеток человека и были разработаны путем итеративной оптимизации на основе опубликованных исследований и экспериментального опыта. Такие факторы, как плотность клеток, соотношение реагента для трансфекции и мРНК, время комплексообразования и условия выхода из эндосом, могут потребовать корректировки для отдельных типов клеток и конкретных условий эксперимента. Таким образом, исследователям следует рассматривать указанные условия как отправную точку для оптимизации, а не как универсальные конечные параметры.
Таким образом, данный протокол представляет собой воспроизводимую основу для доставки модифицированной мРНК hTERT в стареющие клетки человека с использованием стратегии обратной трансфекции, оптимизированной с учетом физиологических характеристик старения. Этот подход обеспечивает транзиторную реактивацию теломеразы, измеримое удлинение теломер, увеличение репликативного срока жизни и частичное обращение фенотипов, связанных со старением. В будущих исследованиях следует оценить применимость данной стратегии к другим типам стареющих клеток, изучить комбинированные подходы с дополнительными омолаживающими воздействиями, а также исследовать возможность переноса метода на платформы доставки in vivo. Таким образом, данный метод является ценным инструментом для изучения биологии теломер, клеточного омоложения и механизмов старения в рамках исследований процесса старения.
Раскрытие информации
J.M.S. является сооснователем и председателем научно-консультативного совета компании Transposon Therapeutics.
Благодарности
Данная работа была поддержана грантами Национальных институтов здравоохранения (NIH) P01 AG051449, R01 AG016694 и R01 AG078925, предоставленными JS.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Питательная смесь Ham's F-10 | Thermo Fisher | 11550043 | Среда для культивирования клеток. |
| Аналог структуры кэпа РНК 3´-O-Me-m7G(5')ppp(5')G | New England Biolab | S1411L | Для большинства РНК структура кэпа повышает стабильность, снижает подверженность деградации экзонуклеазами и способствует формированию инициаторных комплексов мРНК. |
| 5-метилцитидин-5´-трифосфат (5-метил-CTP) | New England Biolab | N0432S | Модифицированные NTP обычно используются для снижения иммуногенности РНК, полученной путем транскрипции in vitro. |
| 6-луночный планшет | Corning | 351146 | Для выращивания и обработки средних и больших объемов адгезивных клеток или клеток в суспензии в независимых экспериментальных условиях. |
| Антитело к Ki67 (SP6) | abcam | ab16667 | Ki67 экспрессируется преимущественно в пролиферирующих клетках. |
| Набор для анализа клеточного старения (окрашивание на SA-бета-гал) | cellbiolabs | CBA-230 | Идентификация стареющих клеток с помощью анализа окрашивания на SA-β-гал |
| Пробирки DNA LoBind 0,5 мл | Eppendorf | 022431005 | Для эффективного восстановления ДНК и РНК без потерь |
| Пробирки DNA LoBind 1,5 мл | Eppendorf | 22431021 | Для эффективного восстановления ДНК и РНК без потерь |
| ДНКаза I, без РНКаз (1 U/μL) | Thermo Fisher | EN0521 | ДНКаза I без РНКаз представляет собой эндонуклеазу, которая расщепляет одно- и двухцепочечную ДНК. |
| Поли(А)-полимераза E. coli | New England Biolab | M0276S | У Escherichia coli поли(А)-полимераза I (PAP I) функционирует преимущественно как катализатор независимого от матрицы присоединения остатков аденозинмонофосфата (AMP) к 3'-концу молекул РНК. |
| Фетальная бычья сыворотка | Thermo Fisher | A5256701 | Добавка сыворотки для культивирования клеток |
| Набор HiScribe T7 ARCA mRNA | New England Biolab | E2065S | Набор HiScribe T7 ARCA mRNA (с достройкой хвоста) предназначен для быстрого получения мРНК с ARCA-кэпом и поли(А)-хвостом in vitro. Кэпированные мРНК синтезируются путем ко-транскрипционного включения антиреверсивного аналога кэпа (ARCA) с использованием Т7 РНК-полимеразы. |
| Набор HiScribe T7 mRNA с реагентом CleanCap AG | New England Biolab | E2080S | Наборы HiScribe T7 mRNA с реагентом CleanCap AG позволяют быстро и эффективно производить один или несколько транскриптов с типичным выходом ≥90 μg на реакцию, |
| ДНК-полимераза LongAmp Hot Start Taq | New England Biolab | M0534S | ДНК-полимераза LongAmp Hot Start Taq обеспечивает исключительные результаты при работе с длинными ампликонами. |
| Обратная транскриптаза M-MuLV | New England Biolab | M0253L | Обратная транскриптаза M-MuLV синтезирует комплементарную цепь ДНК, начиная с праймера, используя в качестве матрицы либо РНК (синтез кДНК), либо одноцепочечную ДНК. |
| Набор для очистки РНК Monarch Spin (50 μg) | New England Biolab | T2040L | Основная функция набора Monarch® Spin RNA Cleanup Kit (50 μg) заключается в очистке и концентрировании до 50 μg высококачественной РНК из ферментативных реакций или экстракционных смесей. |
| Мастер-микс для сборки ДНК NEBuilder HiFi | New England Biolab | E2621L | Мастер-микс для сборки ДНК NEBuilder HiFi позволяет осуществлять бесшовную сборку нескольких фрагментов ДНК независимо от длины фрагментов или совместимости концов. Он полезен для специалистов по синтетической биологии, а также для одностадийного клонирования нескольких фрагментов благодаря простоте использования, гибкости и удобному формату мастер-микса. |
| Среда Opti-MEM с пониженным содержанием сыворотки | Thermo Fisher | 31985070 | Для максимального повышения эффективности трансфекции клеток при формировании комплексов липид-груз. Она служит оптимизированной, химически определенной средой, которая поддерживает высокую жизнеспособность клеток млекопитающих, снижая необходимость в стандартном добавлении сыворотки |
| PBS, pH 7,4 | Thermo Fisher | 10010023 | Основное функциональное назначение фосфатно-солевого буфера (PBS) при pH 7,4 — поддержание стабильного pH и осмотического баланса для клеток млекопитающих и биологических молекул. |
| ПЦР-полоски | Thermo Fisher | AB0776 | Основное функциональное назначение ПЦР-полосок (обычно в формате 8 или 12 пробирок) — удержание жидкостей в малых объемах во время высокопроизводительного термального циклирования. |
| Гидробромид поли-L-лизина | Millipore Sigma | P4707-50ML | Основное функциональное назначение гидробромида поли-L-лизина (PLL) для адгезии клеток заключается в покрытии отрицательно заряженных твердых поверхностей (таких как стекло или пластик) для создания высокоадгезивного положительно заряженного субстрата. |
| Псевдоуридин-5´-трифосфат (Pseudo-UTP- ΨUTP) | New England Biolab | N0433S | Псевдоуридин-5´-трифосфат (Pseudo-UTP) обычно используется для снижения иммуногенности РНК, полученной путем транскрипции in vitro. |
| Набор растворов рибонуклеотидов | New England Biolab | N0450L | Четыре отдельных раствора ATP, GTP, CTP и UTP |
| Ингибитор ROCK Y-27632 (дигидрохлорид) | Stem cell technologies | 72302 | Y-27632 является проникающим в клетку, высокоэффективным и селективным ингибитором Rho-ассоциированной протеинкиназы с закрученным доменом (ROCK). Y-27632 ингибирует как ROCK1 (Ki = 220 nM), так и ROCK2 (Ki = 300 nM), конкурируя с ATP за связывание с каталитическим центром |
| Вода для RT-PCR | Thermo Fisher | AM9935 | Основное функциональное назначение воды для RT-PCR (часто маркируемой как вода без нуклеаз) — служить сверхчистым растворителем для чувствительных ферментативных анализов, где любое загрязнение может привести к деградации образца или ингибированию амплификации. |
| Ингибитор РНКаз SUPERase·In | Thermo Fisher | AM2694 | Ингибитор РНКаз SUPERase In — это белковый ингибитор нечеловеческого происхождения, который нековалентно связывает и ингибирует наиболее распространенные и проблемные РНКазы, включая РНКазы A, B, C, 1 и T1. |
| Краситель для нуклеиновых кислот в гелях SYBR Green I | Thermo Fisher | S7563 | Основное функциональное назначение красителя для нуклеиновых кислот SYBR™ Green I — визуализация и количественное определение двухцепочечной ДНК (дцДНК) в агарозных или полиакриламидных гелях. |
| Набор для трансфекции TransIT-mRNA | Mirusbio/ Millipore Sigma | MIR 2250 | Высокоэффективный реагент с низкой токсичностью для трансфекции крупных молекул РНК |
| Набор для определения теломеразы TRAPeze | Millipore Sigma | S7700 | Анализ TRAP (Telomeric Repeat Amplification Protocol) является широко используемым и чувствительным методом на основе ПЦР для обнаружения и измерения активности теломеразы в клетках млекопитающих и образцах тканей. Он включает три основных этапа: удлинение теломерных повторов теломеразой, амплификацию этих продуктов с помощью ПЦР и последующее детектирование. |
| Трипсин-ЭДТА (0,05%), феноловый красный | Thermo Fisher | 25300054 | Для открепления адгезивных клеток млекопитающих от сосудов для культивирования при рутинном пассировании (субкультивировании) и сборе клеток. |
Ссылки
- Millner A, Atilla-Gokcumen GE. Lipid players of cellular senescence. Metabolites. 2020;10(9):339.
- Hamsanathan S, Gurkar AU. Lipids as regulators of cellular senescence. Front Physiol. 2022;13:796850.
- Das UN. Cell membrane theory of senescence and the role of bioactive lipids in aging and aging-associated diseases and their therapeutic implications. Biomolecules. 2021;11(2):241.
- Shin EY, Soung NK, Schwartz MA, Kim EG. Altered endocytosis in cellular senescence. Ageing Res Rev. 2021;68:101332.
- Park JS, et al. Down-regulation of amphiphysin-1 is responsible for reduced receptor-mediated endocytosis in senescent cells. FASEB J. 2001;15(9):1625-1627.
- Park SC. Functional recovery of senescent cells through restoration of receptor-mediated endocytosis. Mech Ageing Dev. 2002;123(8):917-926.
- Stroupe C. This is the end: regulation of Rab7 nucleotide binding in endolysosomal trafficking and autophagy. Front Cell Dev Biol. 2018;6:129.
- Curnock R, et al. TFEB-dependent lysosome biogenesis is required for senescence. EMBO J. 2023;42(9):e111241.
- Guerrero-Navarro L, Jansen-Durr P, Cavinato M. Age-related lysosomal dysfunctions. Cells. 2022;11(12):1977.
- Tan JX, Finkel T. Lysosomes in senescence and aging. EMBO Rep. 2023;24(11):e57265.
- Rovira M, et al. The lysosomal proteome of senescent cells contributes to the senescence secretome. Aging Cell. 2022;21(10):e13707.
- Kilroy G, Burk DH, Floyd ZE. High-efficiency lipid-based siRNA transfection of adipocytes in suspension. PLoS One. 2009;4(9):e6940.
- Kariko K, Buckstein M, Ni H, Weissman D. Suppression of RNA recognition by Toll-like receptors: the impact of nucleoside modification and the evolutionary origin of RNA. Immunity. 2005;23(2):165-175.
- Freund I, Eigenbrod T, Helm M, Dalpke AH. RNA modifications modulate activation of innate Toll-like receptors. Genes (Basel). 2019;10(2):92.
- Chen H, et al. Branched chemically modified poly(A) tails enhance the translation capacity of mRNA. Nat Biotechnol. 2025;43(2):194-203.
- Alshehri A, Grabowska A, Stolnik S. Pathways of cellular internalisation of liposome-delivered siRNA and effects on siRNA engagement with target mRNA and silencing in cancer cells. Sci Rep. 2018;8(1):3748.
- Paramasivam P, et al. Endosomal escape of delivered mRNA from endosomal recycling tubules visualized at the nanoscale. J Cell Biol. 2022;221(2):e202110137.
- Pandey E, Harris EN. Chloroquine and cytosolic galectins affect endosomal escape of antisense oligonucleotides after Stabilin-mediated endocytosis. Mol Ther Nucleic Acids. 2023;33:430-443.
- Bettinger T, et al. Peptide-mediated RNA delivery: a novel approach for enhanced transfection of primary and post-mitotic cells. Nucleic Acids Res. 2001;29(18):3882-3891.
- Granados-Riveron JT, Aquino-Jarquin G. Engineering of the current nucleoside-modified mRNA-LNP vaccines against SARS-CoV-2. Biomed Pharmacother. 2021;142:111953.
- Hou X, Shi J, Xiao Y. mRNA medicine: recent progresses in chemical modification, design, and engineering. Nano Res. 2024;17(10):9015-9030.
- Ramunas J, et al. Transient delivery of modified mRNA encoding TERT rapidly extends telomeres in human cells. FASEB J. 2015;29(5):1930-1939.
- Majewska J, Krizhanovsky V. Immune surveillance of senescent cells in aging and disease. Nat Aging. 2025;5(8):1415-1424.
- Ajoolabady A, et al. Hallmarks and mechanisms of cellular senescence in aging and disease. Cell Death Discov. 2025;11(1):364.
- Lin J, et al. RNA and protein degradation in the aging process. Cell Signal. 2025;136:112166.
- Anderson BR, et al. Incorporation of pseudouridine into mRNA enhances translation by diminishing PKR activation. Nucleic Acids Res. 2010;38(17):5884-5892.
- Sugawara S, et al. RNaseH2A downregulation drives inflammatory gene expression via genomic DNA fragmentation in senescent and cancer cells. Commun Biol. 2022;5(1):1420.
- Chatterjee S, Kon E, Sharma P, Peer D. Endosomal escape: a bottleneck for LNP-mediated therapeutics. Proc Natl Acad Sci U S A. 2024;121(11):e2307800120.
- Li YY, Tay FR. The epigenetic rejuvenation promise: partial reprogramming as a therapeutic strategy for aging and disease. Ageing Res Rev. 2026;115:103009.
- Zhang W, Qu J, Liu GH, Belmonte JCI. The ageing epigenome and its rejuvenation. Nat Rev Mol Cell Biol. 2020;21(3):137-150.