Этот протокол направлен на оценку развития меланомы у ксенотрансплантатов данио-религии с использованием in vivo электронного парамагнитного резонанса (спектроскопии для обнаружения и анализа радикалов меланина), предлагая новый подход к доклиническим исследованиям и терапевтической оценке меланомы.
Методическая статья
Электронный парамагнитный резонанс X-диапазона для мониторинга радикальных изменений, связанных с меланином, у ксенотрансплантатов меланомы данио in vivo
В этой статье
Краткое содержание
Аннотация
Этот протокол представляет собой новое in vivo применение спектроскопии электронного парамагнитного резонанса X-диапазона (9,5 ГГц) для мониторинга радикальной динамики, ассоциированной с меланином, в моделях ксенотрансплантата данио-рерио (Danio rerio). Цель этого метода — обеспечить прямую, без меток и количественную оценку изменений редокс-окисления, связанных с меланином, во время эмбрионального развития, а также взаимодействия опухоли и хозяина в физиологически релевантной модели позвоночных.
Используя внутренние парамагнитные свойства меланина, этот подход предоставляет дополнительную биохимическую информацию, которую невозможно получить только с помощью традиционной флуоресцентной визуализации. Важно, что обнаруженный электронный парамагнитно-резонансный сигнал отражает окислительно-активную фракцию меланинового полимера и, следовательно, служит окислительно-чувствительным индикатором, а не прямой мерой общего содержания пигмента.
Эффективность метода была подтверждена через селективное обнаружение меланинов-ассоциированных радикалов в пигментированных эмбрионах дикого типа, отсутствие сигнала в альбиносных контролях, статистически значимые изменения развития нормализованного электронного парамагнитного резонансного сигнала в независимых биологических репликах, а также сопоставимые результаты, полученные с использованием альтернативных держателей образцов и замороженных образцов.
Сочетая X-диапазонную электронную парамагнитно-резонансную спектроскопию с моделями ксенотрансплантата данио, этот протокол предоставляет масштабируемую, этически выгодную и переносимую платформу для доклинических исследований меланомы, редокс-биологических исследований и оценки вмешательств, модулирующих меланогенез.
Введение
Общая цель данного исследования — разработать и подтвердить надежный метод in vivo для обнаружения и количественной оценки радикалов меланина в модели ксенотрансплантата эмбрионов данио-рериба (Danio rerio) в сочетании с спектроскопией электронного парамагнитного резонанса в X-диапазоне (9,5 ГГц). Этот подход направлен на то, чтобы обеспечить прямую, количественную оценку окислительно-восстановительных процессов, связанных с меланином, во время развития меланомы и в ответ на фармакологические вмешательства.
Меланин — это гетерогенная группа биополимеров, отвечающих за пигментацию кожи, волос и глаз у широкого спектра организмов. Среди его форм эумеланин и феомеланин играют особые роли в биологии. Эумеланин обладает антиоксидантными и фотопротекторными свойствами, тогда как феомеланин способствует образованию реактивных форм кислорода (ROS), особенно при воздействииультрафиолета 1,2,3. Как антиоксидантная, так и прооксидантная активность связана с образованием радикалов меланина. На молекулярном уровне меланин — это гетерогенный окислительно-активный полимер, состоящий из индолических и хинонсодержащих субъединиц, которые могут существовать в различных физико-химических состояниях, включая полностью окисленный хинон, частично восстановленный семихинон и полностью восстановленные гидрохинон-формы 4,5,6. Относительная численность радикальных видов семихинона динамична и зависит от местных физико-химических условий, включая доступность кислорода, реактивные кислородные формы (ROS), взаимодействие металлических ионов, pH, степень полимеризации и созреваниемеланосомы 7,8,9.
Таким образом, для лучшего понимания изменений в редокс-состоянии меланина необходимы методы, позволяющие количественно оценивать концентрации этих радикалов. При меланоме нарушение меланогенеза в меланоцитах способствует инициации и прогрессированию меланомы. Эта дисрегуляция часто связана с редокс-сдвигами состояния, зависящими от местных микроэкологических условий. Это делает активность меланина редокс важным фактором в биологииопухолей 10. Поэтому методы, позволяющие напрямую оценить радикалы меланина, необходимы для понимания патогенеза меланомы и терапевтического ответа.
Эмбрионы данио-религии представляют собой мощную модель in vivo для изучения пигментации и меланомы. До 5 дней после оплодотворения (120 часов после оплодотворения, HPF) они не классифицируются как охраняемые животные согласно Директиве 2010/63/EU, что позволяет проводить эксперименты с высокой производительностью без формального этического одобрения. Быстрая разработка, оптическая прозрачность и устоявшиеся протоколы делают данио-рерио очень подходящим для токсикологических и фармакологическихисследований 11,12. Важно, что эта рыба имеет значительные генетические и физиологические сходства с человеком, а ключевые пути, участвующие в меланогенезе,сохраняются 13. В то время как дикие данио преимущественно вырабатывают эумеланин и служат моделью физиологической пигментации, ксенотрансплантатные модели — основанные на имплантации клеточных линий меланомы, производящих эумеланин и феомеланин — позволяют исследовать прогрессирование опухолей у млекопитающих и ответы на лекарства в физиологически значимоймикросреде 14,15.
В настоящее время флуоресцентная визуализация является стандартным методом, используемым в исследованиях ксенотрансплантата меланомы данио-рерио. Этот подход позволяет в реальном времени визуализировать рост, миграцию и реакцию на лечение опухоли с помощью флуоресцентных красителей, например, дихлордигидрофлуоресцеинового диацетата (DCFDA) или трансгенных линий (Grx1-roGFP2, HyPer)16,17. Однако методы флуоресценции в основном предоставляют морфологическую и пространственную информацию и ограничены в их способности фиксировать биохимические и окислительно-восстановлённые процессы. Кроме того, их показания могут зависеть от фотоотбеливания, утечки красителей, вмешательства флуоресцентных лекарственных соединений и возможных изменений в физиологии клеток, вызванных маркировкой. Критично, что методы на основе флуоресценции не дают прямой информации о радикалах меланина или их динамическом окислительном поведении.
Электронная парамагнитно-резонансная спектроскопия предлагает уникальный и мощный аналитический подход, позволяя напрямую обнаруживать и количественно оценивать парамагнитные виды, включая стабильные меланин-ассоциированные радикалы. И эумеланин, и феомеланин содержат полухинонные частицы, которые генерируют характерные электронные парамагнитно-резонансные сигналы, и относительный вклад этих сигналов был изучен как биомаркер пигментационного состояния и прогрессиимеланомы 18,19. Важно, что поскольку только фракция редокс-активного семихинона напрямую влияет на обнаруженный сигнал, спектроскопия электронного парамагнитного резонанса предоставляет дополнительную информацию к традиционным анализам, связанным с меланогенезом, таким как количественное определение содержания меланина, активность тирозиназы или анализ пигментации. Соответственно, интенсивность электронного парамагнитного резонансного сигнала следует интерпретировать как окислительно-чувствительное показание функционального состояния меланина, под влиянием локальных физико-химических условий, а не как прямую меру общего содержания пигмента.
Хотя большинство исследований парамагнитного резонанса электронов in vivo проводились с использованием L-диапазонных систем (разновидность электронной парамагнитно-резонансной спектроскопии, использующая низкочастотные микроволны (около 1–2 ГГц) для изучения парамагнитных видов, особенно в больших образцах, где требуется более глубокое проникновение сигнала)20— X-диапазонный электронный парамагнитный резонанс обеспечивает более высокое спектральное разрешение и чувствительность для образцов малого объёма, что делает его особенно подходящим для эмбрионов данио-рерио. Кроме того, недавние технические разработки, включая системы мультигармонического обнаружения, значительно улучшают качество сигнала и позволяют проводить надёжные измерения в сложных (небольших и более гидратированных) биологическихобразцах 21,22. Размер резонатора X-диапазона соответствует правильному размеру для нескольких эмбрионов данио-рерио, что в сочетании с более высоким разрешением по сравнению с L-диапазонной системой позволяет сократить количество используемых животных. Это особенно важно при работе с моделями ксенотрансплантата.
Несмотря на эти преимущества, применение электронного парамагнитного резонанса X-диапазона к живым эмбрионам данио-религии и ксенотрансплантатам меланомы в этой модели остаётся в значительной степени неизученным. Исследования in vitro с использованием клеточных линий меланомы, таких как B16F10, дали ценные сведения о свойствах радикалов меланина; однако им не хватает сложного физиологического контекста живогоорганизма 23,24. В частности, микросреда данио-рерио вводит критические факторы — такие как градиенты кислорода, взаимодействие между клетками и динамическая метаболическая активность — которые могут существенно влиять на поведение радикаловмеланина 25,26. Поэтому существует явная необходимость разработать и подтвердить методологию in vivo, позволяющую напрямую измерять радикалы меланина в физиологически значимых условиях.
В этом исследовании мы представляем подробный протокол применения X-диапазонной электронной парамагнитно-резонансной спектроскопии к эмбрионам данио, включая модели ксенотрансплантата, содержащие линии меланомы B16F10 и B16F1. Этот метод обеспечивает дополнительный подход к флуоресцентной визуализации, позволяя количественно оценивать содержание радикалов меланина, что даёт представление о редокс-динамике. Интегрируя структурную и пространственную информацию из флуоресцентных технологий с биохимическими знаниями электронного парамагнитного резонанса, эта комбинированная стратегия повышает аналитическую мощь моделей данио-рерио-рерыо для доклинических исследований меланомы. Важно, что сигнал электронного парамагнитного резонанса, обнаруженный в этом протоколе, отражает окислительно-активную фракцию меланинового полимера. Соответственно, интенсивность сигнала следует интерпретировать как окислительно-чувствительный показатель, а не как прямую меру общего содержания меланина, и рассматриваться в сочетании с общим содержанием пигмента как признак сдвига редокс-сдвига, связанных с меланином. Из-за подхода к измерению всего организма и ограниченному числу инъекционных клеток меланомы, обнаруженный сигнал в первую очередь представляет глобальные радикальные изменения, связанные с меланином, на уровне всего эмбриона/личинки данио, а не специфичный для меланомы сигнал, исходящий исключительно от ксенотрансплантата. Это различие особенно актуально в динамических биологических системах, где изменения степени окисления меланина могут происходить независимо от изменений общего количества пигмента.
Протокол
Эмбрионы данио-рерио (Danio rerio) использовались в этом исследовании до 5 дней после оплодотворения (120 hpf). На данном этапе развития эмбрионы не считаются охраняемыми животными согласно Директиве 2010/63/ЕС, поэтому эксперименты не требуют официального одобрения этического комитета. Тем не менее, вся работа проводилась в соответствии с хорошими лабораторными практиками и институциональными рекомендациями по уходу и использованию данио.
1. Подготовка реагентов и поддержание клеточных линий меланомы у мышей B16F1 и B16F10
- Подготовка полного материала
- Добавьте 50 мл плодовой бычьей сыворотки (FBS) и 5,5 мл раствора пенициллина-стрептомицина к 500 мл модифицированной орлиной среды Dulbecco (DMEM).
- Прогрейте всю среду до 37 °C перед использованием.
ПРИМЕЧАНИЕ: Используйте предварительно нагретые растворы для минимизации теплового напряжения при работе с элементами.
- Размораживание и начало культуры из замороженных клеток
- Быстро разморозить замороженный флакон с клетками в водяной бане при температуре 37 °C (~1–2 мин).
- Продезинфицируйте наружную часть флакона 70% этанолом. Выполняйте все последующие шаги в асептических условиях.
- Переносите суспензию клетки в коническую трубку объёмом 15 мл с 9 мл предварительно нагретой полной среды. Оставьте небольшой аликвот оригинальной суспензии для тестирования на микоплазму.
- Центрифугные ячейки в центрифугной трубке при 200 × г в течение 5 минут при комнатной температуре.
- Аспирируйте супернатант для удаления остаточного диметилсульфооксида (DMSO; из замораживающей среды).
- Восстановите клеточную гранулу в 10 мл свежего и предварительно подогретого полного материала.
- Перенесите клетки в чашку Петри диаметром ⌀9 см и аккуратно покрутите фигурой восьмёрки, чтобы равномерно распределить клетки.
- Инкубировать клетки при температуре 37°C, 5% CO₂ и влажности ≥95% за ночь.
- Через 16–24 часа замените посевную среду свежей, предварительно нагретой полной средой.
- Продолжайте инкубацию, пока клетки не достигнут >80% слияния. Переходите к субкультурированию (см. шаг 1.3).
ПРИМЕЧАНИЕ: В качестве альтернативы чашкам Петри могут использоваться стерильные сосуды для культуры (например, термофляги). Если предпочитают небольшие тарелки или колбы, разделите клетки пропорционально, чтобы сохранить одинаковую относительную площадь поверхности культуры.
- Субкультурирование клеток
- Удалите культурную среду из монослоя клетки. Сохраняйте небольшой аликвот для тестирования микоплазмы.
- Добавьте 10 мл физиологического раствора с фосфатным буфером (PBS) в чашку для посевов.
- Дайте PBS постоять на клетках при комнатной температуре 3–5 минут, чтобы полностью удалять белоки сыворотки.
- Аккуратно аспирируйте PBS, стараясь не сдвинуть клетки.
- Добавьте 1 мл реагента для диссоциации клеток и инкубирайте при 37°C, пока клетки не округлятся и не отсоединятся (не превышайте 5 минут времени инкубации).
- Добавьте 1 мл предварительно нагретой полной среды, чтобы остановить ферментативную диссоциацию.
- Аккуратно пипетируйте подвеску ячейки вверх и вниз несколько раз, чтобы получить суспензию с одной ячейкой.
- Перенесите клетки в новую чашку Петри или Т-колбу с предварительно нагретой полной средой в соотношении разделения 1:4 к 1:10. Аккуратно покрутите фигурой восьмёрки, чтобы равномерно распределить клетки.
- Инкубировать клетки при 37 °C, 5% CO₂ и влажности ≥95%.
ПРИМЕЧАНИЕ: Используйте предварительно нагретые растворы (37 °C) и выполняйте все процедуры в асептических условиях в биологическом защитном шкафе класса II, надевая соответствующие средства индивидуальной защиты. Субкультура клеток каждые 2–3 дня или при слиянии 80–90%. Используйте клетки с низким проходом (
- Криоконсервация (банкинг) клеток
- Используйте здоровые, экспоненциально растущие клетки (~70%–80% слияния).
- Изберите клетки, как описано в шагах 1.3.1–1.3.7, и перенесите суспензию клетки в коническую трубку объёмом 15 мл.
- Центрифугуйте клетки при 300 × г в течение 2 минут.
- Удалить супернатант и снова суспензировать клетки в криоконсервационной среде при 1–5 × 10⁶ клеток/мл.
- Аликвотная суспензия клеток в маркированные криовиалы (клеточная линия, номер прохода, дата).
- Заморозьте флаконы на ночь при -80°C в контейнере с контролируемой скоростью заморозки.
- В качестве альтернативы используйте метод вложенной изоляции: вставьте флаконы в небольшой пенопластовый стеллаж, рассчитанный на трубы объёмом 1,5/2,0 мл, который затем размещается в большом пенистироловом ящике.
ПРИМЕЧАНИЕ: Эта двухслойная конфигурация разработана для обеспечения тепловой буферизации, необходимой для достижения постепенного охлаждения, что критически важно для успешного криоконсервирования.
ПРИМЕЧАНИЕ: Криогенные материалы должны использоваться в изолированных перчатках и средствах защиты лица. Следуйте институциональным рекомендациям по обращению с жидким азотом и опасными отходами.
- В качестве альтернативы используйте метод вложенной изоляции: вставьте флаконы в небольшой пенопластовый стеллаж, рассчитанный на трубы объёмом 1,5/2,0 мл, который затем размещается в большом пенистироловом ящике.
- После ночной инкубации при -80 °C переведите флаконы в жидкий азот для длительного хранения. Криовиалы могут храниться при -80 °C для краткосрочного хранения.
- Тестирование микоплазмы
- Соберите небольшой аликвот культурной среды или клеточной суспензии во время оттаивания, субкультурирования или криоконсервации.
- Оценить загрязнение микоплазмы с помощью проверенного ПЦР-или ферментативного набора для обнаружения микоплазмы согласно инструкциям производителя.
- Используйте культуры, отрицательные к микоплазме, для экспериментов или банкирования клеточных линий.
- Записывайте результаты и удаляйте или изолируйте все загрязнённые культуры до их очистки.
ПРИМЕЧАНИЕ: Регулярно проверяйте на наличие загрязнения микоплазмой.
2. Трансплантация раковых клеток личинкам данио-рерио.
- Подготовьте раковые клетки к трансплантации
- Выращивать клетки до ~80% совпадения.
- Собирайте клетки, как описано в шагах 1.3.1–1.3.7.
- Перенесите суспензию ячейки в микроцентрифугную трубку объемом 2 мл.
- Центрифугуйте клетки при 300 × г в течение 2 минут при комнатной температуре.
- Удалите супернатант и промойте клеточную гранулу 1 мл стерильного PBS.
- Повторите шаг 2.1.4–2.1.5 и снова подвесите ячейки в оставшейся PBS. Более плотная суспензия даст меньше осадконакопления.
- Аккуратно пипетировать подвеску вверх и вниз, пока не получится однородная суспензия с одной ячейкой.
ПРИМЕЧАНИЕ: Используйте кончик пипетки объёмом 200 мкл, предварительно увлажненный (загрунтованный) раствором 45% поливинилпирролидона (PVP), который помогает предотвратить оседание клеток внутри инъекционной микроиглы. - Держите суспензию клетки на льду до инъекции.
ПРИМЕЧАНИЕ: Если происходит скупление клеток, пропустите суспензию клетки через сито размером 35–40 мкм и/или обработайте клетки 0,01–0,05 мг/мл ДНКазой I.
- Производство икры данио-рерио.
- Вечером перед ожидаемым сбором яиц поместите взрослую данио-рерыю в резервуары с системной водой (подготовленные для нереста).
- Держите танки в полной темноте на ночь; Это гарантирует, что нерест запускается утром следующего дня, когда включают свет.
- Рыбы начнут нерест после заката света на следующий день. Собирайте яйца, заливая воду из аквариума через чайное сито.
- Тщательно промыйте яйца средним содержанием E3 (5 мМ NaCl, 0,17 мМ KCl, 0,33 мМ CaCl2, 0,33 мМ MgSO4).
- Переместить оплодотворённые яйца в чашки Петри диаметром 9 см с содержанием 20–25 мл среды E3. В каждую тарелку не помещайте более 50 эмбрионов.
- Инкубировать эмбрионы при 28 °C до дальнейшего использования.
ПРИМЕЧАНИЕ: Следите за тем, чтобы яйца всегда оставались влажными.
- Подготовка эмбриона данио-рерио.
- Ручное удаление хорионов из эмбрионов при примерно 36 hpf.
- Используйте две пары ультратонких щипцов Jewelry No. 5. Одной парой крепко, но аккуратно зажмите хорион, чтобы стабилизировать яйцо. Используйте вторую пару щипцов, чтобы схватить хорион рядом с первой парой.
- Аккуратно потяните щипцы в противоположные стороны, чтобы создать небольшой разрыв. Аккуратно расширяйте отверстие, пока эмбрион не выскользнёт.
- Анестезировать дехорионированные личинки свежеприготовленным раствором трикаина согласно установленным протоколамданио-рерио: 27.
ПРИМЕЧАНИЕ: Эмбрионы без хорионов хрупкие, липкие и должны быть предотвращены воздействием воздуха. Используйте стеклянные пипетки и чашки Петри с агарозой при работе с данио-рерио <3 dpf.
- Ручное удаление хорионов из эмбрионов при примерно 36 hpf.
- Подготовьте иглы для микроинъекций
- Вытягивайте стеклянные капилляры без нити с помощью механизма с параметрами, установленными в соответствии с рекомендациями производителя.
- С помощью тонкого щипца сломайте кончик иглы в два шага: сначала сделайте небольшой разрыв на тонком кончике иглы. Затем выполните второй разрыв именно там, где клетки застревают. Это создаёт оптимальное отверстие, которое достаточно большое, чтобы клетки могли пройти, при этом оставаясь максимально маленьким.
- Заполните иглу клеточной суспензией с помощью длинного микролейдера — наконечника для заполнения стеклянных микрокапилляров. Избегайте появления воздушных пузырьков.
- Используйте максимально возможную плотность ячеек (максимальную концентрацию) для суспензии; Конкретная доза клетки контролируется через настройки инжектора.
- Часто загружайте иглу маленькими аликвотами, ограничивая подвесную колонку внутри иглы максимальной высотой 2 мм. Это минимизирует осадкование, обеспечивая более однородное распределение и равномерную доставку во время инъекций.
- Закрепите заряженную иглу на держателе микроинъекционного аппарата.
- Регулировать давление инъекции и длительность импульса для доставки нужного количества клеток за одну инъекцию (общий объём суспензии инъекционной клетки не должен превышать размер глаза эмбриона данио-рериба на момент инъекции).
ПРИМЕЧАНИЕ: Подробные примеры методологии микроинъекций ксенотрансплантата данио-рерио были ранее описаны другимиавторами 28.
- Процедура микроинъекции
- Вводите суспензию клетки либо в желточный мешок, либо в кровообращение согласно экспериментальной конструкции.
- Выводить более 1000 клеток на эмбрион в условиях калибровки инъекций.
ПРИМЕЧАНИЕ: Включайте эмбрионы, введённые фосфат-буферным физиологическим раствором (PBS), в качестве отрицательных контрольных показателей.
- Обработка после инжекции
- Поддерживайте введённые эмбрионы/личинки при температуре 28-32 °C
- Ежедневно отслеживайте выживаемость и развитие личинок под прицелом вскрытия.
- Оценить пролиферацию и миграцию опухолевых клеток в выбранных экспериментальных временных точках.
- Проведите измерение электронного парамагнитного резонанса (EPR), как описано в разделе 3.1, или храните образец, как описано в разделе 2.7
ПРИМЕЧАНИЕ: Избрасывайте личинки при травме от инъекции или неправильной инъекции. Соблюдайте все институциональные рекомендации по биобезопасности и уходу за животными. Обращайтесь с трикаином и биологическими отходами в соответствии с протоколами безопасности. Утилизировать опасные материалы в соответствии с нормативами.
- Сбор образцов для заморозки
- Усыпить личинку, погрузив их в охлаждённый раствор трикаина минимум на 3 минуты.
- Группы из 10 личинок в микроцентрифугные трубки объёмом 1,5 мл. Удалите лишнюю среду из каждой тюбики.
- Храните образцы при -20 °C до анализа электронного парамагнитного резонанса.
3. Обнаружение радикалов меланина с помощью электронной парамагнитно-резонансной спектроскопии
- Обнаружение радикалов меланина у личинок данио-рерио , in vivo
- Включите X-диапазонный электронно-парамагнитно-резонансный спектрометр и дайте системе стабилизироваться согласно инструкциям производителя.
- Перенесите 20–30 личинок данио-рерио (через 3–5 дней после оплодотворения, dpf) в микроцентрифугную трубку объемом 1,5 мл.
- Заполните плоский капилляр для личинок данио-рерио 100 мкл средой E3.
- Запечатайте один конец капилляра пластиковой крышкой и убедитесь, что жидкий столб остаётся в плоской камере.
- Перенесите несколько личинок вместе с небольшим объёмом среды E3 в гематокритный капилляр объёмом 100 мкл.
- Аккуратно отложите личинки из гематокритного капилляра в верхнюю часть плоской части.
ПРИМЕЧАНИЕ: Следите за сохранением непрерывности решения. В плоской части или рядом с верхней частью не должно быть воздушных пузырьков. - Удалите лишнюю жидкость из внешней трубчатой части капилляра, сохраняя непрерывный контакт жидкости внутри плоской камеры.
- Повторяйте шаги 3.1.5–3.1.7, пока 20–30 личинок не будут загружаны в плоский капилляр.
- Удалите остаточную жидкость из трубчатых срезов капилляра.
- Вставьте капилляр в электронно-парамагнитно-резонансный спектрометр и разместите образец в центре резонатора.
- Параметры получения в программном обеспечении спектрометра установите следующим образом: центральное поле = 335 мТ; ширина стрелки = 10 мТ; амплитуда модуляции = 500 мкТ; мощность микроволновой волны = 1,6 мВт; количество сканирований = 32; Время прохождения = 11 с; временная константа = 0.
- Получите спектр электронного парамагнитного резонанса.
- Удалите капилляр из резонатора и отпустите личинок в свежую среду E3 в чашке Петри.
ПРИМЕЧАНИЕ: Избегайте появления воздушных пузырьков при загрузке образца, так как разрывы в жидкой колонке могут снизить воспроизводимость сигнала. Если мультигармоническое обнаружение недоступно, уменьшите амплитуду модуляции и оптимизируйте параметры приёма для максимизации интенсивности сигнала без спектральных искажений.
- Обнаружение радикалов меланина в личинках замороженных данио-рероиков
- Разморозить замороженный образец с 10 усыплёнными личинками данио-рерио, при комнатной температуре в течение 5–10 минут.
- Добавьте 100 мкл среды E3 в размораженный образец.
- Перенесите личинки вместе с средой в гематокритный капилляр объёмом 100 мкл.
- Удалите лишнюю жидкость из капилляра, пока образец не займёт только объём активного резонатора (примерно 1 см в длину).
- Запечатайте капилляр герметизационным составом.
- Вставьте капилляр в электронно-парамагнитно-резонансный спектрометр и разместите образец в центре резонатора.
- Параметры получения в программном обеспечении спектрометра установите следующим образом: центральное поле = 335 мТ; ширина стрелки = 10 мТ; амплитуда модуляции = 500 мкТ; мощность микроволновой волны = 1,6 мВт; количество сканирований = 32; Время прохождения = 11 с; временная константа = 0.
- Получить и сохранить спектр электронного парамагнитного резонанса.
ПРИМЕЧАНИЕ: Убедитесь, что верхний край образца остаётся ниже верхнего края резонатора, чтобы избежать искажений сигнала. Если мультигармоническое обнаружение недоступно, уменьшите амплитуду модуляции и оптимизируйте мощность микроволнов, чтобы максимизировать интенсивность сигнала без спектральных искажений.
- Извлечение данных электронного парамагнитного резонанса из программного обеспечения мультигармонического анализатора и постобработка спектров
- Откройте записанный электронный парамагнитно-резонансный спектр в программном обеспечении мультигармонического анализа.
- Включите двухканальную обработку сигнала, выбрав «Использовать два канала».
- Установите количество обработанных гармоник на 30.
- Регулировать параметр фазы/градуса микроволновой до получения симметричных компонентов поглощения и дисперсии.
- Отрегулировать параметр фазы/градуса модуляции до тех пор, пока канал 1 не отобразит чистый сигнал поглощения, а канал 2 — чистый дисперсионный сигнал.
- Настройте параметр амплитуды/g модуляции до получения самой узкой неискажённой спектральной линии.
- Установите параметр Low Pass/Hz для снижения высокочастотного шума при сохранении формы спектральной линии.
- Выберите вкладку «Шумоподавление » и нажмите «Включить шумоподавление». Отрегулируйте коэффициент сглаживания и параметры уточнения узкой линии , пока отношение сигнал/шум не улучшится без видимых искажений спектральной линии.
- Выберите вкладку артефактов и включите коррекцию выбросов и коррекцию пропускной способности.
- Сохраняйте спектры в формате, используемом программным обеспечением для анализа данных, для дальнейшего анализа.
- Вычислите интенсивность двойного интегрирования сигнала с помощью численной интеграции в подходящем программном обеспечении для анализа данных.
ПРИМЕЧАНИЕ: При работе с резонаторами с высоким уровнем Q коррекция полосы пропускания улучшает восстановление компонентов с высшими гармоническими компонентами. Мультигармоническая реконструкция позволяет восстановить неискажённые спектры из перемодулированных исходных данных и улучшает отношение сигнал/шум в биологических образцах низкой интенсивности.
Результаты
Схематический обзор экспериментального рабочего процесса представлен на рисунке 1. Эмбрионы данио-религии были собраны, пересадены клетками меланомы B16F10, инкубированы в контролируемых условиях и проследлены с помощью яркополевой или флуоресцентной микроскопии перед X-диапазонным электронным парамагнитно-резонансным анализом. Живые эмбрионы затем загружались в плоский капилляр/держатель образца для измерения электронного парамагнитного резонанса по всему организму, что позволяло неинвазивно обнаруживать радикальные сигналы, связанные с меланином. После получения электронного парамагнитного резонанса эмбрионы выпускались в свежую среду E3, что позволяло проводить продольные измерения в тех же биологических образцах.
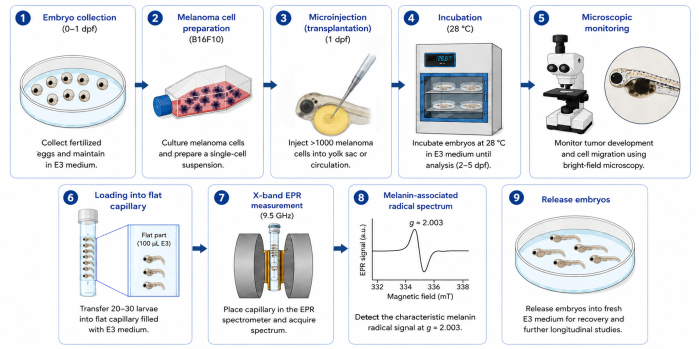
Рисунок 1: Графический обзор экспериментального рабочего процесса для in vivo мониторинга радикалов, связанных с меланином, у ксенотрансплантатов данио-религии с использованием спектроскопии электронного парамагнитного резонанса (EPR) в X-диапазоне. Эмбрионы данио-рерио собираются, пересаживают с клетками меланомы, инкубируют и микроскопически контролируются перед загрузкой в специализированный плоский капилляр для измерения EPR всего организма. После обнаружения характерного меланин-ассоциированного радикального сигнала (g ≈ 2.003) личинки выпускаются для продольных последующих измерений. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
Для подтверждения специфичности метода были проведены измерения на эмбрионах дикого типа (WT) и альбиносных данио-рерио. Эмбрионы WT начинают развивать видимую пигментацию примерно при 27 hpf. Соответственно, спектры электронного парамагнитного резонанса, полученные от эмбрионов WT, демонстрируют характерный однолинейный сигнал с центром в g ≈ 2.003, что соответствует радикалам семихинона, полученных на основе эвмеланина (например, DHI/DHICA). В отличие от этого, альбиносные эмбрионы, отсутствующие синтезу функционального меланина, не показывают обнаруживаемого парамагнитного сигнала электронного резонанса в той же спектральной области даже через 5 дней после оплодотворения (dpf). Это подтверждает, что наблюдаемый сигнал исходит именно от радикалов меланина и представляет собой отрицательную селективность метода валидации контроля (рисунок 2).
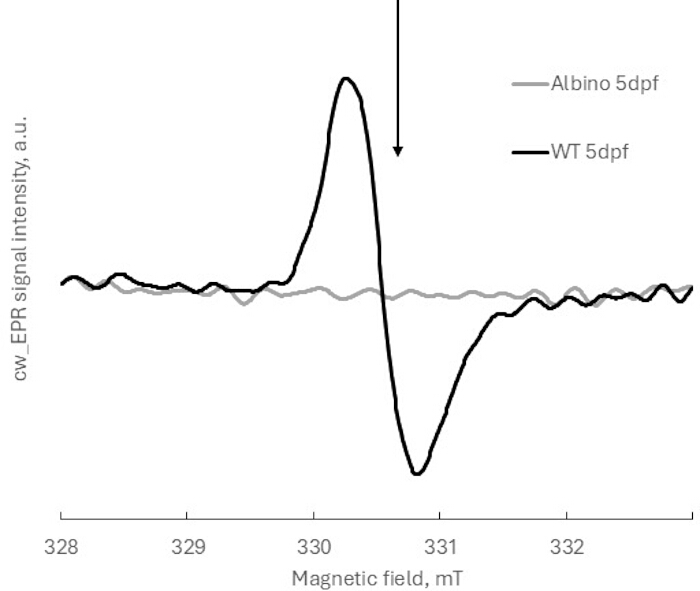
Рисунок 2: Репрезентативные спектры парамагнитного резонанса электронов в диапазоне X-диапазона для эмбрионов дикого типа (WT) и альбиносов данио-рериота при 5dpf. Стрелка указывает резонансное положение (g ≈ 2,003) меланин-ассоциированного радикального сигнала эмбрионов 5dpf WT. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
Метод позволяет количественно отслеживать образование радикалов меланина в процессе развития. По мере прогрессирования пигментации наблюдается явное увеличение интенсивности электронного парамагнитного резонансного сигнала. Сравнение эмбрионов WT с 2 dpf до 5 dpf показывает значительное увеличение двойного интегрирования электронного парамагнитного резонансного сигнала, нормализованного на эмбрион. Нормализация проводилась путём деления интенсивности исходного парамагнитного резонансного сигнала электронов на количество эмбрионов в образце перед вычислением двойного интеграла (см. рисунок 3A).
Статистический анализ проводился с использованием теста Крускаля–Уоллиса, за которым последовал тест множественных сравнений Данна. Анализ шести независимых биологических репликат (каждая из которых включает 7–10 эмбрионов) показал статистически значимые различия в нормализованном электронном парамагнитно-резонансном сигнале между этапами развития (p < 0,05), подтверждая чувствительность метода.
Двойной интеграл спектров электронного парамагнитного резонанса пропорционален количеству неспаренных спинов электронов. Таким образом, его рост указывает на увеличение популяции радикалов, связанных с меланином, в процессе развития. Важно, что это повышение, вероятно, связано с изменениями в меланин-редокс-равновесии, связанными с прогрессирующим меланогенезом, а не только с накоплением пигмента.
Воспроизводимость протокола дополнительно оценивалась путём сравнения репрезентативных электронных парамагнитно-резонансных спектров, полученных из образцов с разным количеством эмбрионов (7 против 10) на одной стадии развития (5 dpf). Как и ожидалось, сырые спектры показали различия в амплитуде сигнала, пропорциональные размеру выборки (см. рисунок 3B). После нормализации каждого спектра по количеству эмбрионов на образец спектры почти полностью перекрывались (рисунок 3C), а вариабельность между партиями оставалась ниже 10%. Эти результаты подчёркивают важность нормализации на эмбрион и подтверждают надёжность метода для сравнительных исследований.
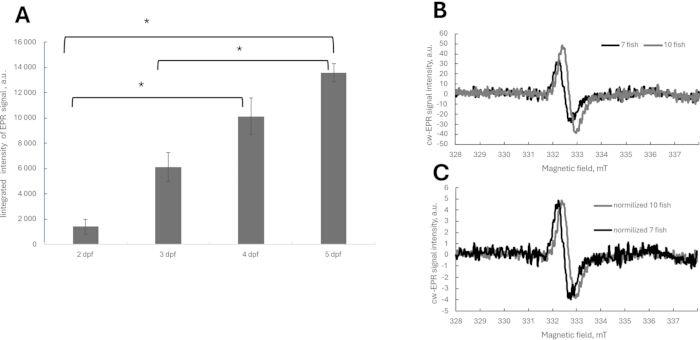
Рисунок 3: Количественный мониторинг динамики радикалов, связанных с меланином, и нормализации спектров электронного парамагнитного резонанса. (A) Двойной интегрированный электронный парамагнитный резонансный сигнал X-диапазона, полученный от эмбрионов дикого типа (WT) данио-рерио, через 2, 3, 4 и 5 дней после оплодотворения (dpf). Интенсивность сигнала была нормализована до количества эмбрионов на образец. Данные представляют собой среднее ± SD из шести независимых биологических репликатов, каждая из которых включает 7–10 эмбрионов. Статистически значимые различия — *p < 0,05. (B) Репрезентативные сырые электронно-парамагнитно-резонансные спектры, полученные из 5 dpf WT эмбрионов с использованием образцов, содержащих 7 и 10 эмбрионов. Амплитуда сигнала увеличивается пропорционально количеству эмбрионов в образце. (C) Те же спектры электронного парамагнитного резонанса, показанные в панели B после нормализации, то есть сырые спектральные интенсивности делятся на количество эмбрионов в капилляре. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
Чтобы оценить, зависит ли протокол от индивидуального плоского капилляра, используемого для измерений данио-рерио, меланин-ассоциированное обнаружение радикалов проводилось с использованием как специализированного плоского капилляра, так и стандартного коммерчески доступного капилляра для экс-виво анализа. Репрезентативные электронно-парамагнитно-резонансные спектры, полученные с помощью обоих держателей образцов, показали очень сопоставимую форму линии и резонансную позицию (рисунок 4A), что свидетельствует о надежном обнаружении радикалов, связанных с меланином, не ограничивается индивидуальной конструкцией капилляров. Сигналы от плоских капилляров, после нормализации на эмбрион, были в 2 раза ниже, чем пересчитанные из стандартного капилляра.
Для дальнейшей оценки гибкости обращения с образцами эмбрионы данио-рерио измерялись сразу после сбора и после заморозки, а затем экс-виво анализ с использованием стандартных капилляров. Статистически значимые различия между свежими и замороженные образцами в шести независимых биологических репликах не наблюдалось (рисунок 4B). Эти результаты показывают, что протокол можно адаптировать к широко доступным держателям образцов электронного парамагнитного резонанса и поддерживать отложенный экс-виво-анализ, значительно повышая доступность, гибкость и воспроизводимость метода в лабораториях с различными электронно-парамагнитно-резонансными спектрометрами.
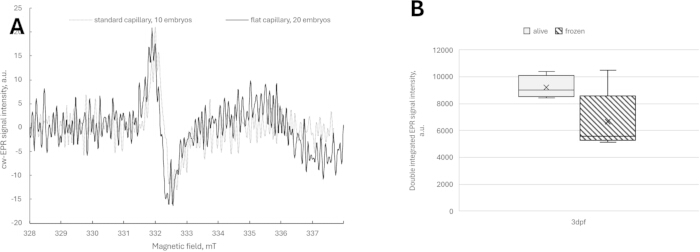
Рисунок 4: Совместимость протокола. (A) Сырые спектры электронного парамагнитного резонанса, измеряемые в стандартных и плоских капиллярах 2dpf WT данио. (B) Сравнение одних и тех же биологических репликат (3 dpf WT данио-рерио), измеренных живыми и замороженными в стандартных капиллярах. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
Чтобы определить, можно ли напрямую отнести обнаруженный электронный парамагнитно-резонансный сигнал к меланиновым радикалам, полученным от меланомы, эмбрионы альбинос-данио-рениора использовались в качестве фона без меланина и введены клетки меланомы B16F10. Измерения электронного парамагнитного резонанса проводились через 4 дня после оплодотворения (dpf) при тех же условиях присоединения, что и для эмбрионов дикого типа. Как и ожидалось, неинъекционные альбиносные эмбрионы не показали обнаруживаемого электронного парамагнитного резонансного сигнала в меланин-специфической спектральной области. Важно отметить, что у альбиносных эмбрионов с инъекционными клетками B16F10 не было обнаружено обнаруживаемого сигнала электронного парамагнитного резонанса, ассоциированного с меланином, несмотря на успешное приживление клеток, подтвержденное яркой микроскопией (рисунок 5B).
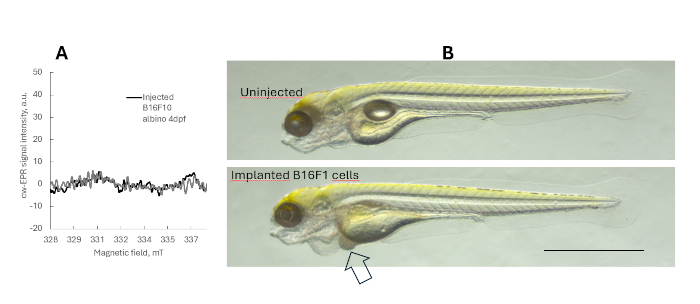
Рисунок 5: Оценка прямого обнаружения радикалов, связанных с меланиномой, у ксенотрансплантатов альбиносов данио B16F10. (A) Электронный парамагнитный резонансный сигнал в измерениях ксенотрансплантата 4df альбиносов и альбиносов B16F10, измеренных с помощью парамагнитно-резонансного спектрометра X-диапазона. Использовались три биологических реплики по 10 эмбрионов каждый. (B) Яркое изображение альбиносов и альбиносов с 4 dpf ксенотрансплантатом с B16F10 через три дня после имплантации раковых клеток. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
Эти результаты показывают, что при текущих экспериментальных условиях количество введённых клеток меланомы ниже прямого порога обнаружения парамагнитного электронного резонанса X-диапазона. Таким образом, сигнал, ассоциированный с меланином, обнаруженный при измерениях всего организма, в первую очередь отражает глобальные изменения в окислительном состоянии эмбриона/личинки данио-рерио, а не специфичный для меланомы сигнал, исходящий исключительно от ксенотрансплантата.
В экспериментах с ксенотрансплантатом эффективность прищепления и роста клеток меланомы сильно зависела от места инъекции. Инъекция в кровообращение (кровоток) приводила к более стабильному развитию опухоли и позволяла надёжно обнаруживать электронно-парамагнитно-резонансные сигналы, связанные с клетками меланомы. В отличие от этого, инъекция в желточный мешок приводила к нарушению развития эмбриона и плохому росту опухоли, что приводило к слабым или непоследовательным сигналам. Поэтому рекомендуется инъекции крови для получения надёжных и интерпретируемых результатов (см. рисунок 6).
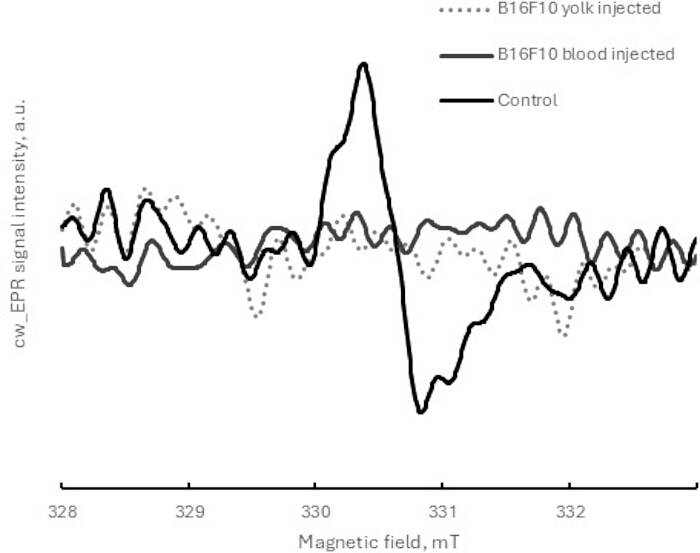
Рисунок 6: Влияние места инъекции клеток меланомы на развитие эмбриона 2 dpf данио-религии и ксенотрансплантата, измеренное с помощью парамагнитного электронного резонанса X-диапазона. Репрезентативные спектры электронного парамагнитного резонанса из эмбрионов данио, введённых клетками меланомы B16F10 в желточный мешок или кровообращение. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
Для дальнейшего подтверждения применимости метода в моделях меланомы мы сравнили электронный парамагнитный резонансный сигнал, полученный от эмбрионов дикого типа (WT) данио-ренио, и эмбрионов WT, введенных клетками меланомы B16F10, в разные периоды развития.
В эмбрионах WT сигнал электронного парамагнитного резонанса со временем постепенно увеличивался, отражая естественное накопление эумеланина в процессе развития. В отличие от этого, эмбрионы с ксенотрансплантатами B16F10 демонстрировали изменённую динамику сигнала, с модифицированным сигналом электронного парамагнитного резонанса по сравнению с WT в соответствующие временные точки (см. рисунок 7). Эти различия, вероятно, отражают опухолевой модуляцию меланогенеза хозяина и системных окислительно-окислительных состояний, а не только прямое обнаружение меланиновых, полученных от меланомы. Поскольку клетки B16F10 в основном производят эумеланин, сигнал феомеланина не был обнаружен.
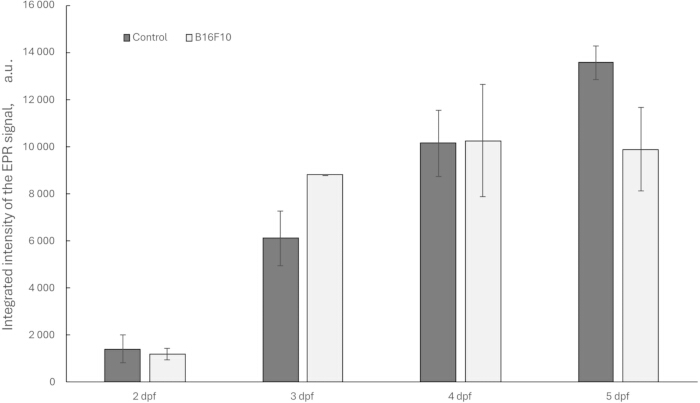
Рисунок 7: Репрезентативное сравнение динамики сигналов EPR всего организма в контрольных эмбрионах WT и WT B16F10, содержащих данио-рерио. Двойной интегрированный электронный парамагнитно-резонансный сигнал X-диапазона, полученный от контрольных диких (WT) данио и ксенотрансплантатов WT B16F10 через 2, 3, 4 и 5 дней после оплодотворения (dpf). Интенсивность сигнала была нормализована до количества эмбрионов на образец. Данные представляют собой среднее ± SD из шести независимых биологических репликат (для контроля) и трёх для ксенотрансплантатов B16F10, каждый из которых включает 7–10 эмбрионов. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
В целом, успешная реализация этого протокола подтверждается: (i) обнаружением четкого однолинейного парамагнитно-резонансного сигнала электрона на g ≈ 2 в пигментированных эмбрионах, (ii) отсутствием сигнала в альбиносных контролях, (iii) увеличением интенсивности сигнала на этапе развития и (iv) воспроизводимостью между биологическими реплицами после нормализации.
Обсуждение
В данном исследовании представлен надёжный и чувствительный протокол для in vivo обнаружения радикалов, связанных с меланином, в эмбрионах данио-религии с использованием X-диапазонной электронной парамагнитно-резонансной спектроскопии. Метод позволяет проводить неинвазивный, без маркировки мониторинг изменений редокс-окисления, связанных с меланином, во время физиологического меланогенеза, развития ксенотрансплантата меланомы и фармакологического вмешательства. Сочетая высокую чувствительность X-диапазонной электронной парамагнитно-резонансной спектроскопии с платформой ксенотрансплантата данио, этот подход расширяет аналитические возможности современных моделей меланомы данио-рерио, выходящие за рамки традиционной морфологической визуализации на прямую биохимическую характеристику видов меланинов, активных с редокс-репродукцией. В отличие от флуоресцентной визуализации, которая в основном предоставляет структурную и пространственную информацию, электронно-парамагнитно-резонансная спектроскопия напрямую обнаруживает стабильные парамагнитные радикалы семихинона, предоставляя дополнительное функциональное понимание биологии меланина-редокс-окисления.
Представленный рабочий процесс имеет широкое применение в исследованиях пигментации и меланомы. Возможные применения включают оценку противомеланомных терапий, изучение изменений редокс-баланса, вызванных лекарствами, оценку меланогенез-модулирующих соединений, таких как дегигментирование или УФ-реакции, а также анализ взаимодействий опухоли и хозяина in vivo. Кроме того, интеграция с флуоресцентной визуализацией и другими фенотипическими анализами может создать мультимодальную платформу, объединяющую пространственную, морфологическую и биохимическую информацию, тем самым повышая прогностическую ценность моделей данио-рерио-рерио.
Для получения надёжных результатов критически важны несколько экспериментальных параметров. В экспериментах с ксенотрансплантатом инъекция в кровообращение обеспечивала более последовательную пригаждаемость и воспроизводимые измерения электронного парамагнитного резонанса, чем инъекция желткового мешка, что соответствует предыдущимисследованиям 29,30. Выбор температуры инкубации играет важную роль. Хотя ксенотрансплантаты данио-рерио обычно поддерживаются при 32 °C для улучшения кинетики клетокмлекопитающих 31, линии меланомы мышей B16F10, использованные в этом исследовании, выглядят достаточно агрессивными, чтобы продемонстрировать сильные пролиферационные и миграционные способности при 28 °C. Поскольку среда при температуре 32 °C может значительно ускорить развитие данио-рерио, что потенциально может привести к самостоятельному кормлению до пятого дня после оплодотворения — поддержание личинок при 28 °C обеспечит сохранение организмов в незащищённых стадиях развития32. Следовательно, такой выбор температуры может позволить успешно наблюдать прогрессирование опухоли и метастазирование, сохраняя при этом соблюдение правил благополучия животных, защищающих личинок после достижения самостоятельной стадии питания. Ещё один важный момент — точная нормализация количества эмбрионов и согласованная стадия развития необходимы для минимизации биологической вариабельности. Слабые или непоследовательные сигналы могут быть вызваны недостаточной пигментацией, низкой опухолевой нагрузкой, неоптимальным положением образца внутри резонатора или неполной пломбой капилляров. В таких случаях увеличение количества эмбрионов на образец, оптимизация эффективности трансплантации и проверка размещения образца в активном резонаторном объёме могут улучшить обнаружение сигналов. Для измерений in vivo в плоском капилляре требуется большее количество эмбрионов из-за потерь диэлектрика и снижения коэффициента наполнения, связанного с измерениями целого организма в водных биологических образцах. Тем не менее, этот метод можно использовать со стандартными капиллярами ex vivo. Эти результаты демонстрируют, что протокол совместим с широко распространёнными конфигурациями парамагнитно-резонансной спектроскопии X-диапазона и поддерживает отложенный экс-виво анализ, повышая доступность и воспроизводимость в лабораториях с использованием различных приборов.
Несмотря на свои преимущества, у этого метода есть несколько ограничений. Важным биологическим соображением является то, что обнаруженный сигнал электронного парамагнитного резонанса отражает окислительно-активную фракцию меланина, а не только общее содержаниепигмента 15,21,33. Соответственно, изменения интенсивности электронного парамагнитного резонансного сигнала следует интерпретировать как изменения в меланиновом редокс-равновесии, а не как прямое суррогатное выражение содержания меланина. Эксперименты альбиносного ксенотрансплантата дополнительно показали, что в текущих экспериментальных условиях количество инъекционных клеток меланомы оставалось ниже порога прямого обнаружения X-диапазонной электронной парамагнитно-резонансной спектроскопии. Таким образом, сигнал целого организма, обнаруженный у личинок ксенотрансплантатов, в первую очередь отражает глобальные изменения в окислительно-восстановительном статусе, ассоциированном с меланином, вызванные взаимодействием опухоли и хозяина, а не специфичный для меланомы сигнал, исходящий исключительно от ксенотрансплантата. Важно отметить, что микросреда данио-религии вводит динамические градиенты кислорода, метаболические взаимодействия и условия окислительного стресса, которые могут дополнительно модулировать популяцию радикалов меланина in vivo19,20. В приложениях с ксенотрансплантатом метод в настоящее время ограничен высокопигментированными моделями меланомы, поскольку для надёжного обнаружения сигналов требуется достаточная концентрация меланина. Амеланотические или слабо пигментированные опухоли могут не вызвать обнаруживаемыхсигналов 27. Кроме того, клеточные линии меланомы, использованные в этом исследовании (B16F10), преимущественно производят эумеланин, что приводит к образованию одной электронной парамагнитно-резонансной линии. В моделях с значительным вкладом феомеланина спектральное перекрытиеможет происходить 13. В таких случаях потребуется продвинутое спектральное моделирование и деконволюция для различия между сигналами эумеланина и феомеланина.
Тем не менее, представленный рабочий процесс предлагает широкий потенциал для изучения биологии меланомы, медикаментозной модуляции меланогенеза, окислительного стресса и взаимодействий опухоли и хозяина in vivo. Интеграция электронно-парамагнитно-резонансной спектроскопии с флуоресцентной томографией, генетическими репортерами и другими фенотипическими анализами может дополнительно повысить прогностическую ценность моделей данио-рерыо в доклинических исследованиях и разработке терапии меланомы.
Раскрытие информации
Автор Миколай Барановский работает в компании Novilet, которая производит компоненты спектрометра, использованного в этом исследовании (мультигармонический анализатор). Оставшиеся авторы не заявляют о конкурирующих интересах.
Благодарности
Проект FENG.02.07-IP.05-0059/23 «Новый капилляр и метод определения радикала меланина» был реализован в рамках программы FENG POC Фонда польской науки, софинансируемой Европейским союзом в рамках Европейского фонда умной экономики 2021–2027 (FENG). Это исследование было поддержано Европейским союзом в рамках программы Smart Growth Operations (номер проекта POIR.01.02.00-00-0077/18).
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| 1.5 мЛ или 0.5 мЛ эппендорфовые пробирки | Eppendorf | 0030120086, 0030121023 | Для переноса личинок данионса в капилляры |
| 3 мЛ одноразовые пастеровские пипетки | Medlab Products | 76-1303-2 | Для сортировки и переноса эмбрионов и личинок |
| Настольный X-диапазонный спектрометр ЭПР MiniScope MS200 | Magnettech | Bruker.com | Регистрация спектров ЭПР |
| Хлорид кальция, дигидрат | Chempur | 363-118748706 | Для приготовления среды E3 |
| Слайды для подсчета клеток (например, EVE или EVE PLUS) | Nanoentek Inc | NC2200445 | Для счетчика клеток |
| CellTracker Green | Thermo Fisher | C2925 | Флуоресцентный краситель для маркировки клеток |
| CM-DiI | Thermo Fisher | C7000 | Флуоресцентный краситель для маркировки клеток |
| CO2-инкубатор ICO240med | Memmert | N/A | Для содержания клеток, установлен на 37°C, 5% CO2, ≥95% влажности |
| Автоматизированный счетчик клеток Countess II | Invitrogen | AMQAX1000 | Для подсчета клеток и плотности клеток |
| Криогенные хранилища CryoKING | Biologix | BGX-ID81 | Для хранения данионсов с ксеноимплантатами |
| Криоконсервационная среда CM-1 | Cytion | #800150 | Для замораживания раковых клеток |
| Измененное среда Дульбекко (DMEM), с высоким содержанием глюкозы, глутамином, без пирувата натрия | Gibco | #11965-092 | Для поддержания клеточной культуры |
| Среда E3 | Внутри лаборатории | N/A | Для содержания эмбрионов/личинок данионсов, приготовлена в соответствии с Cold Spring Harb Protoc 2011, doi: 10.1101/pdb.rec066449 |
| Яйцевой инкубатор | Incubato | 10130024 | Для инкубации эмбрионов/личинок данионсов, установлен на 28–32°C |
| Программное обеспечение eSpect+ | Novilet | https://novilet.eu/products/espect/ | Для многогармонического анализатора |
| Фетальный бычий сывороточный альбумин (FBS) | Gibco | A5256701 | Добавка для DMEM |
| Тонкие щипцы с керамическим покрытием, Dumont #5, 11 см | Dumont SA | 11252-50 | Для дехорионации эмбрионов данионсов |
| Плоские стеклянные капилляры, предназначенные для данионсов (Заявка №: 21 736) | N/A | N/A | Для измерений ЭПР эмбрионов данионсов |
| Стеклянные капиллярные иглы | Harvard Apparatus | GB100-10 | Без филамента, для микроинъекций |
| Гематокритные капилляры (BRAND одноразовые микропипетки BLAUBRAND), объем 50 и 100 µL | BRAND | 41121500 | Для измерений ЭПР или для переноса личинок данионсов в плоский капилляр |
| Хлорид магния, гексагидрат | Chempur | 363-116120500 | Для приготовления среды E3 |
| Система микроинъекции с микроманипулированием FemtoJet | Eppendorf | EPE5252000021 | Для загрузки клеток в микроиглы |
| Советчики Microloader для загрузки в иглы | Eppendorf | #5242956003 | Для системы микроинъекции |
| Линейка мышиных меланом B16-F1 | Cytion | CLS-400122 | Для ксеноимплантации |
| Линейка мышиных меланом B16-F10 | Cytion | 305157 | Для ксеноимплантации |
| Многогармонический анализатор eSpect+ | Novilet | https://novilet.eu/products/espect/ | Для спектрометра ЭПР, для повышения чувствительности |
| Раствор пенициллин-стрептомицин | Sigma | P0781-50ml | Необязательно, добавка для DMEM для клеточной культуры |
| Чаша Петри, 55 мм | Medlab Products | 51-0056-0A-NX | Для инкубации яиц, эмбрионов и личинок данионсов |
| Фосфатно-буферный раствор (PBS), без кальция и магния | Sigma | D8537-500ml | Для промывания клеток |
| Хлорид калия | Chempur | 363-117397402 | Для приготовления среды E3 |
| Комплект уплотнения для гематокритных капилляров - Critoseal | Noxygen | NOX-A.3-VPC | Для измерений ЭПР эмбрионов данионсов |
| Хлорид натрия | Chempur | 363-117941206 | Для приготовления среды E3 |
| Контейнер для хранения жидкого азота статического хранения | Biobase | YDS-47-127-FS | Для хранения клеточных культур |
| Стереоми |
Ссылки
- Karkoszka, M., Rok, J., Wrześniok, D. Melanin biopolymers in pharmacology and medicine–skin pigmentation disorders, implications for drug action, adverse effects and therapy. Pharmaceuticals. 17 (4), 521(2024).
- Song, W., et al. Melanin: Insights into structure, analysis, and biological activities for future development. J Mater Chem B. 11 (32), 7528-7543 (2023).
- Terranova, M. L. Physiological roles of eumelanin- and melanogenesis-associated diseases: A look at the potentialities of engineered and microbial eumelanin in clinical practice. Bioengineering. 11 (8), 756(2024).
- Mostert, A. B. Melanin, the what, the why and the how: An introductory review for materials scientists interested in flexible and versatile polymers. Polymers. 13 (10), 1670(2021).
- Mostert, A. B. On the free radical redox chemistry of 5,6-dihydroxyindole. Chem Phys. 546, 111158(2021).
- Sealy, R. C. Radicals in melanin biochemistry. Methods Enzymol. 105, 479-483 (1984).
- Seagle, B. -L. L., et al. Time-Resolved Detection of Melanin Free Radicals Quenching Reactive Oxygen Species. J Am Chem Soc. 127 (32), 11220-11221 (2005).
- Qin, W., et al. Evidence for the generation of reactive oxygen species from hydroquinone and benzoquinone: Roles in arsenite oxidation. Chemosphere. 150, 71-78 (2016).
- Slominski, R. M., et al. Melanoma, melanin, and melanogenesis: The yin and yang relationship. Front Oncol. 12, 842496(2022).
- Becker, A. L., Indra, A. K. Oxidative stress in melanoma: Beneficial antioxidant and pro-oxidant therapeutic strategies. Cancers (Basel). 15 (11), 3038(2023).
- Cassar, S., et al. Use of zebrafish in drug discovery toxicology. Chem Res Toxicol. 33 (1), 95-118 (2020).
- Horzmann, K. A., Freeman, J. L. Making waves: New developments in toxicology with the zebrafish. Toxicol Sci. 163 (1), 5-12 (2018).
- Van Rooijen, E., Fazio, M., Zon, L. I. From fish bowl to bedside: The power of zebrafish to unravel melanoma pathogenesis and discover new therapeutics. Pigment Cell Melanoma Res. 30 (4), 402-412 (2017).
- Tao, J., et al. Apoptosis-sensing xenograft zebrafish tumor model for anticancer evaluation of redox-responsive cross-linked pluronic micelles. ACS Appl Mater Interfaces. 14 (35), 39775-39786 (2022).
- Hason, M., Bartůněk, P. Zebrafish models of cancer–new insights on modeling human cancer in a non-mammalian vertebrate. Genes (Basel). 10 (11), 935(2019).
- Hamre, K., et al. Systemic and strict regulation of the glutathione redox state in mitochondria and cytosol is needed for zebrafish ontogeny. Biochim Biophys Acta Gen Subj. 1868 (6), 130603(2024).
- Gauron, G., et al. Hydrogen peroxide (H2O2) controls axon pathfinding during zebrafish development. Dev Biol. 414 (2), 133-141 (2016).
- Cesareo, E., et al. An endogenous electron spin resonance (ESR) signal discriminates nevi from melanomas in human specimens: A step forward in its diagnostic application. PLoS One. 7 (11), e48849(2012).
- Nakagawa, K., Minakawa, S., Sawamura, D., Hara, H. Characterization of melanin radicals in paraffin-embedded malignant melanoma and nevus pigmentosus using X-band EPR and EPR imaging. Anal Sci. 33 (12), 1357-1361 (2017).
- Mignion, L., et al. Noninvasive detection of the endogenous free radical melanin in human skin melanomas using electron paramagnetic resonance (EPR). Free Radic Biol Med. 190, 226-233 (2022).
- Wehbi, M., Mignion, L., Joudiou, N., Harkemanne, E., Gallez, B. Highly sensitive detection of melanin in melanomas using multi-harmonic low frequency EPR. Mol Imaging Biol. 26 (3), 484-494 (2024).
- Chlewicki, W., Baranowski, M., Czechowski, T., Szczepanik, P. Performance of image reconstrucion algorithms in electron paramagnetic resonance tomography with multiharmonic analysis. 2017 IEEE 37th International Conference on Electronics and Nanotechnology (ELNANO), , 292-295 (2017).
- Beaumont, K. A., Mohana-Kumaran, N., Haass, N. K. Modeling melanoma in vitro and in vivo. Healthcare (Basel). 2 (1), 27-46 (2014).
- Marconi, A., Quadri, M., Saltari, A., Pincelli, C. Progress in melanoma modelling in vitro. Exp Dermatol. 27 (5), 578-586 (2018).
- Yin, J., et al. Zebrafish patient-derived xenograft model as a preclinical platform for uveal melanoma drug discovery. Pharmaceuticals. 16 (4), 598(2023).
- Fazio, M., Ablain, J., Chuan, Y., Langenau, D. M., Zon, L. I. Zebrafish patient avatars in cancer biology and precision cancer therapy. Nat Rev Cancer. 20 (5), 263-273 (2020).
- The Zebrafish Information Network (ZFIN) Community. Tricaine. , ZFIN. Available from: https://zfin.atlassian.net/wiki/spaces/prot/pages/362220023/TRICAINE (2026).
- Martinez-Lopez, M., Póvoa, V., Fior, R. Generation of zebrafish larval xenografts and tumor behavior analysis. J Vis Exp. (172), e62373(2021).
- Vargas-Patron, L. A., et al. Xenotransplantation of human glioblastoma in zebrafish larvae: In vivo imaging and proliferation assessment. Biol Open. 8 (5), bio043257(2019).
- Schueler, J., et al. Impact of the injection site on growth characteristics, phenotype and sensitivity towards cytarabine of twenty acute leukaemia patient-derived xenograft models. Cancers (Basel). 12 (5), 1349(2020).
- Cabezas-Sáinz, P., Pensado-López, A., Sáinz, B. Jr, Sánchez, L. Modeling cancer using zebrafish xenografts: Drawbacks for mimicking the human microenvironment. Cells. 9 (9), 1978(2020).
- Miller, A., et al. Temperature-dependence of early development of zebrafish and the consequences for laboratory use and animal welfare. PLoS One. 20 (12), e0340193(2025).
- Godechal, Q., Ghanem, G. E., Cook, M. G., Gallez, B. Electron paramagnetic resonance spectrometry and imaging in melanomas: Comparison between pigmented and nonpigmented human malignant melanomas. Mol Imaging. 12 (4), 218-223 (2013).
Перепечатки и разрешения
Эта статья была опубликована
Видео скоро будет доступно