Диабетическая нефропатия (ДН) сопровождается митохондриальной дисфункцией. С помощью транскриптомики, сетевой фармакологии и машинного обучения мы определили CAT, FABP1, MAOA и MAOB в качестве потенциальных митохондриальных биомаркеров действия Ligustri Lucidi Fructus. У мышей линии db/db LLF повышал экспрессию CAT и MAOA, что служит основанием для дальнейшего изучения механизмов действия.
Исследовательская статья
Идентификация потенциальных биомаркеров, связанных с митохондриями, для Ligustri Lucidi Fructus при диабетической нефропатии
В этой статье
Краткое содержание
Аннотация
Митохондриальная дисфункция и избыточный окислительный стресс внутри митохондрий являются ключевыми патологическими факторами, вызывающими повреждение почечных канальцев при диабетической нефропатии (ДН). Несмотря на то, что Ligustri Lucidi Fructus (LLF) традиционно используется для лечения ДН, задействованные механизмы, особенно те, которые связаны с митохондриальными генами и путями, остаются малоизученными. В данном исследовании использовался анализ дифференциальной экспрессии набора данных GSE142025 для идентификации дифференциально экспрессируемых генов (ДЭГ), связанных с ДН. Характерные гены были отобраны путем перекрестного сопоставления результатов четырех моделей машинного обучения. Гены, которые продемонстрировали значительную дифференциальную экспрессию и согласованные паттерны экспрессии в обоих наборах данных, были дополнительно оценены с помощью анализа рабочих характеристик приемника (ROC-кривых). Гены с площадью под кривой (AUC) > 0,7 в обоих наборах данных были определены как потенциальные биомаркеры. Были проведены функциональный анализ обогащения, анализ иммунной инфильтрации, построение сети и молекулярный докинг. Модель мыши с ДН использовалась для оценки уровня глюкозы в крови, содержания микроальбумина в моче, гистопатологии и экспрессии потенциальных биомаркеров методом RT-qPCR. Экспрессия CAT и MAOA была значительно повышена in vivo. Потенциальные биомаркеры были обогащены в путях, связанных с функцией рибосом, деградацией валина, лейцина и изолейцина, взаимодействиями цитокин-цитокиновый рецептор и пероксисомами. Они отрицательно коррелировали с CD8+ T-клетками и активированными тучными клетками и положительно коррелировали с активированными NK-клетками и наивными B-клетками. Таксифолин, бета-ситостерол и эриодиктиол показали энергию связывания ниже -5 kcal/mol с потенциальными биомаркерами. CAT и MAOA являются перспективными кандидатами, требующими дальнейшего изучения механизмов их действия.
Введение
Диабетическая нефропатия (ДН), являющаяся ведущей причиной терминальной стадии почечной недостаточности во всем мире, представляет собой одно из наиболее распространенных осложнений сахарного диабета. Патологически она характеризуется избыточным накоплением внеклеточного матрикса как в гломерулярном, так и в тубулярном отделах, а также утолщением и склерозом внутрипочечных кровеносных сосудов2. ДН обычно сопровождается протеинурией и гипертензией3. Ее развитие тесно связано с повреждением эндотелиальных клеток сосудов, усиленным воспалительным ответом и повышенным окислительным стрессом вследствие длительной гипергликемии4. Заболеваемость ДН растет во всем мире, особенно среди лиц среднего и пожилого возраста с сахарным диабетом. По мере прогрессирования заболевания оно может привести к терминальной почечной недостаточности и даже к сердечно-сосудистым осложнениям, что значительно ухудшает качество жизни и прогноз пациентов5. Несмотря на успехи в диагностических и терапевтических подходах к ДН, ранние и точные потенциальные биомаркеры для диагностики остаются труднодоступными, а эффективные стратегии лечения для обращения патологических процессов все еще отсутствуют. Следовательно, существует острая необходимость в разработке новых таргетных противонефропатических препаратов.
Митохондрии имеют решающее значение для биоэнергетики клетки, синтеза метаболических предшественников, гомеостаза кальция, продукции активных форм кислорода (АФК), иммунного сигналинга и апоптоза — всех процессов, которые необходимы для поддержания стабильности клеток и организма в целом6. Являясь энергетическими станциями клетки, митохондрии играют ключевую роль в таких фундаментальных процессах, как гликолиз, цикл трикарбоновых кислот и окислительное фосфорилирование7. Ожирение нарушает цикл Кребса и работу митохондриальной дыхательной цепи, что приводит к митохондриальной дисфункции и усилению продукции АФК. Повышенный уровень АФК в митохондриальной дыхательной цепи может вызвать окислительный стресс, который усиливает воспалительную реакцию, связанную с ожирением, и стимулирует апоптоз8. Современные исследования подчеркивают значительную роль митохондриальной дисфункции в патогенезе и прогрессировании диабетической нефропатии (ДН), включая нарушения энергетического обмена, избыточную генерацию АФК и усиление сигналов апоптоза9. Хроническая митохондриальная дисфункция ускоряет прогрессирование заболевания почек10. Таким образом, улучшение функции митохондрий может стать важной стратегией защиты от ДН.
Ligustri Lucidi Fructus (LLF) представляет собой сушеные спелые плоды семейства Luteaceae, которые известны своими питательными свойствами для печени и почек, а также способностью затемнять волосы и улучшать зрение. Был идентифицирован природный гетерополисахарид, экстрагированный из LLF, который проявил потенциал в защите почек от фиброза11. В последние годы растет интерес к применению LLF при лечении диабетической нефропатии (ДН), при этом были продемонстрированы значительные ренопротективные эффекты11,12,13. Кроме того, была подробно изучена и подтверждена сложная взаимосвязь между LLF и митохондриями. В частности, исследование показало, что LLF оказывает благотворное воздействие путем модуляции функции митохондрий через активацию сигнального пути AMPK14. Этот механизм эффективно защищает митохондрии от повреждений, вызванных окислительным стрессом. Данные результаты дополнительно подчеркивают важную роль LLF в поддержании клеточного энергетического метаболизма и повышении устойчивости клеток к окислительному стрессу. Тем не менее, точный терапевтический механизм, особенно в отношении восстановления функции митохондрий, остается недостаточно изученным.
Целью данного исследования было выяснение биологических механизмов, лежащих в основе терапевтического эффекта LLF на митохондриальную функцию при диабетической нефропатии (ДН). С помощью биоинформатических инструментов был проведен поиск в общедоступных базах данных для идентификации потенциальных биомаркеров, связанных с ренопротекторным действием LLF, с интеграцией транскриптомных данных и информации об активных компонентах. Дальнейший анализ, включающий изучение иммунной инфильтрации, связь с клиническими признаками, модификацию м6A РНК, функциональный обогатительный анализ, построение регуляторной сети и молекулярный докинг, показал, что эти потенциальные биомаркеры играют ключевую роль в регуляции митохондриальной функции при лечении ДН. Валидация in vivo дополнительно подтвердила их значимость. Этот комплексный анализ углубляет наше понимание механизмов воздействия LLF при ДН и создает прочную основу для разработки новых терапевтических мишеней на базе коррекции митохондриальной дисфункции.
Протокол
Сбор данных
Матрица экспрессии генов и соответствующие клинические данные для наборов данных GSE142025 и GSE96804, относящихся к диабетической нефропатии (ДН), были получены из базы данных Gene Expression Omnibus (GEO) (https://www.ncbi.nlm.nih.gov/geo/)15. Обучающая выборка (GSE142025) включала образцы тканей почек 27 пациентов с ДН и девять контрольных образцов, секвенирование которых проводилось с использованием платформы GPL20301. Валидационная выборка (GSE96804) состояла из данных секвенирования 41 пациента с ДН и 20 контрольных образцов, обработанных с помощью платформы GPL17586. Оба набора данных сосредоточены на тканях почек; набор данных GSE96804 специально исследует клубочек — основной фильтрационного звено почки (Рисунок 1). Набор данных GSE142025 (обучающая выборка) включает образцы всей ткани почек и обеспечивает обширный обзор транскриптомного ландшафта ДН. С другой стороны, набор данных GSE96804 (валидационная выборка) сфокусирован конкретно на ткани клубочков, которая является основным местом повреждения при гломерулярной фильтрации. Поскольку эти два набора данных не объединялись напрямую из-за различий в платформах и типах тканей, коррекция эффекта партии не применялась. Вместо этого валидация между наборами данных проводилась независимо. Гены с согласованными направленными изменениями и площадью под кривой (AUC) более 0,7 в обоих наборах данных были выбраны в качестве надежных кандидатов, что подтверждает возможность обобщения результатов для различных отделов почек.
В общей сложности 1 136 генов, связанных с митохондриями (MRGs), были извлечены из базы данных MitoCarta3.0 (https://www.broadinstitute.org/mitocarta). Активные ингредиенты LLF были определены с помощью базы данных Traditional Chinese Medicine Systems Pharmacology (TCMSP) (http://sm.nwsuaf.edu.cn/lsp/tcmsp.php) на основе пороговых значений биодоступности при пероральном приеме (OB) ≥30% и лекарственности (DL) ≥0,18. Впоследствии потенциальные гены-мишени для активных компонентов были предсказаны с использованием базы данных Swiss Target Prediction (http://www.swisstargetprediction.ch/).
Анализ дифференциальной экспрессии
Анализ дифференциальной экспрессии GSE142025 (ДН против контроля) проводили с помощью пакета limma (v3.54.1), при этом критерии значимости были установлены как P.adj < 0.05 и |log2FoldChange| > 0.516 . Для визуализации графиков «вулкан» (volcano plots) и тепловых карт использовали пакеты ggplot2 (v 3.3.6) и ComplexHeatmap (v 2.14.0) соответственно17,18. Было выполнено пересечение дифференциально экспрессируемых генов (DEGs), генов, связанных с метаболизмом (MRGs), и потенциальных генов-мишеней активных ингредиентов; перекрывающиеся гены были определены как гены-кандидаты. Сеть, связывающую активные ингредиенты и гены-кандидаты, построили с помощью программного обеспечения Cytoscape (v 3.9.0)19.
Функциональный анализ обогащения и построение сети белок-белковых взаимодействий (PPI)
Анализ обогащения по Gene Ontology (GO) и Kyoto Encyclopedia of Genes and Genomes (KEGG) для исследуемых генов-кандидатов был выполнен с использованием пакета clusterProfiler (v 4.6.2) для изучения их биологических функций и связанных с ними сигнальных путей (P.adjust < 0.05). Затем список генов-кандидатов был введен в базу данных STRING (https://cn.string-db.org/) для получения данных о белок-белковых взаимодействиях (уровень достоверности ≥ 0.4), после чего с помощью Cytoscape (v 3.9.0) была построена сеть PPI20.
Машинное обучение
Четыре алгоритма машинного обучения, включая случайный лес (RF), k-ближайших соседей (KNN), метод частичных наименьших квадратов (PLS) и метод опорных векторов с радиально-базисной функцией ядра (SVM), были реализованы с помощью пакета caret (v6.0-93) на основе набора данных GSE142025. В качестве предикторов использовались гены-кандидаты, выявленные в ходе предыдущего анализа, а в качестве целевой переменной — статус заболевания (DN или контроль). Для модели KNN была применена 10-кратная перекрестная проверка с использованием функции trainControl при tuneLength = 10. Модель RF была построена с использованием 20 деревьев (ntree = 20); модели PLS и SVM были настроены согласно параметрам, реализованным в исходном рабочем процессе caret.
Распределения остатков модели оценивали с помощью пакета DALEX (v2.4.3). Затем была проведена оценка переменных на основе перестановок с использованием функции variable_importance пакета DALEX, где в качестве функции потерь была указана среднеквадратическая ошибка (RMSE). Полученное значение dropout_loss представляет собой RMSE, полученное после перестановки соответствующей переменной21,22. В исходном аналитическом рабочем процессе были сохранены переменные со значением dropout loss < 0.281 для всех моделей, а гены, общие для всех четырех моделей, были определены как консенсусные гены-признаки для последующей валидации.
Четыре модели машинного обучения использовались преимущественно для приоритизации признаков, а не для построения окончательного клинического классификатора. Соответственно, диагностическая разделительная способность впоследствии оценивалась на уровне отдельных генов с помощью ROC-анализа как в открывающем, так и в валидационном наборах данных.
Идентификация потенциальных биомаркеров
В наборах данных GSE142025 и GSE96804 различия в экспрессии исследуемых генов между образцами с диабетической нефропатией (ДН) и контрольными образцами оценивали с помощью критерия Вилкоксона. Для анализа рабочих характеристик приемника (ROC-кривых) отбирали только те гены, которые имели значимую дифференциальную экспрессию (P < 0.05) и согласованные тенденции экспрессии в обоих наборах данных. Для построения ROC-кривых и расчета площади под кривой (AUC) использовали пакет pROC (v1.18.0); гены, демонстрирующие AUC > 0.7 в обоих наборах данных, классифицировали как потенциальные биомаркеры23.
Анализ обогащения наборов генов (GSEA)
Биологические функции и сигнальные пути, связанные с кандидатными биомаркерами, были дополнительно изучены с помощью GSEA на наборе данных GSE142025. Сначала с использованием пакета psych (v2.2.9) был проведен корреляционный анализ Спирмена кандидатных биомаркеров со всеми остальными генами.24Коэффициенты корреляции были рассчитаны и ранжированы (от высокого к низкому). В качестве эталонного набора генов использовался c2.cp.kegg.v2023.1.Hs.symbols.gmt из базы данных молекулярных сигнатур (MSigDB, https://www.gsea-msigdb.org/gsea/msigdb/). Затем с помощью пакета clusterProfiler (v4.6.2) был проведен анализ GSEA для оценки обогащения ранжированных генов в фоновом наборе генов. Была применена поправка на множественное тестирование. посредством метод FDR и скорректированные P-значения (обозначенные как P.adjust) считались значимыми, если < 0.05.
Анализ модификации m6A
Для исследования модификаций метилирования РНК потенциальных биомаркеров использовалась база данных SRAMP (http://www.cuilab.cn/sramp/) для предсказания сайтов модификации m6A в последовательностях биомаркеров с акцентом на высокодостоверные позиции в их вторичных структурах. Затем с помощью базы данных ENCORI (https://starbase.sysu.edu.cn/) были идентифицированы белки, модифицированные m6A, которые взаимодействуют с потенциальными биомаркерами; для скрининга ключевых белков использовался параметр |HepG2 (shRNA)| > 1. Впоследствии использовалась база данных RPISeq (http://pridb.gdcb.iastate.edu/RPISeq/) для предсказания вероятности взаимодействий между ключевыми белками и потенциальными биомаркерами. Последовательности РНК обоих компонентов были загружены в формате простого текста для получения оценок предсказания классификаторами RF и SVM. Взаимодействие считалось значимым, если оценка превышала 0,525. Анализ SRAMP проводился с порогом «High» для предсказания сайтов m6A в режиме «Transcript» и с параметрами по умолчанию. Для анализа в ENCORI использовалась функция взаимодействия «miRNA-mRNA» с параметром «HepG2 (shRNA)» > 1. Анализ RPISeq проводился с использованием классификатора RF с параметрами по умолчанию; значения > 0,5 указывали на положительное взаимодействие. Данные результаты являются вычислительными предсказаниями, а не экспериментальными доказательствами модификации m6A или РНК-белковых взаимодействий в тканях почек. Критерий HepG2 shRNA был получен из предварительно рассчитанных наборов данных ENCORI и может не отражать специфическую регуляцию в почках.
Анализ иммунной инфильтрации
Для оценки пропорций 22 типов иммунных клеток в контрольных образцах и образцах с ДН из набора GSE142025 был применен алгоритм CIBERSORT, а визуализация была выполнена с помощью тепловой карты, созданной с использованием пакета ggplot2 (v3.3.6)26. CIBERSORT запускали с использованием сигнатурной матрицы LM22, 1000 перестановок и отключенной квантильной нормализацией (как рекомендуется для данных микрочипов). Для дальнейшего анализа были отобраны образцы с p < 0.05 по результатам CIBERSORT. CIBERSORT оценивает фракции иммунных клеток на основе экспрессии в общем объеме ткани почки, что не позволяет разделить инфильтрацию по компартментам (например, гломерулярную и тубулоинтерстициальную), а также отличить инфильтрирующие лейкоциты от резидентных иммунных клеток. Таким образом, сообщаемые корреляции относятся к уровню ткани и должны быть подтверждены пространственными методами. Корреляционный анализ Спирмена между иммунными клетками с дифференциальным содержанием и потенциальными биомаркерами проводили с использованием пакета psych.
Построение сетей и молекулярный докинг
МикроРНК (miRNAs), взаимодействующие с потенциальными биомаркерами, были предсказаны с использованием базы данных miRNet (https://www.mirnet.ca). Затем с помощью баз данных TarBase (http://www.diana.pcbi.upenn.edu/tarbase) и starbase (http://starbase.sysu.edu.cn/) были предсказаны длинные некодирующие РНК (lncRNAs), мишенями которых являются выявленные микроРНК. Для построения сети были выбраны lncRNAs, общие для обеих баз данных. После этого с помощью программного обеспечения Cytoscape была построена регуляторная сеть lncRNA-miRNA-mRNA. Потенциальные активные ингредиенты, воздействующие на потенциальные биомаркеры, были отобраны для построения сети «активный ингредиент — биомаркер». Кроме того, активные ингредиенты, потенциальные биомаркеры и пути, выявленные с помощью GSEA, были внесены в Cytoscape для создания сети «активный ингредиент — биомаркер — путь».
Для оценки аффинности связывания между потенциальными активными ингредиентами и кандидатными биомаркерами был проведен анализ молекулярного докинга. 3D-структуры белков-биомаркеров были получены из банка данных белков Research Collaboratory for Structural Bioinformatics Protein Data Bank (RCSB PDB, https://www.rscb.org/pdb) в формате PDB. 2D-структуры потенциальных активных ингредиентов были извлечены в формате SDF из базы данных PubChem (http://pubchem.ncbi.nlm.nih.gov). Молекулярный докинг выполняли с использованием платформы CB-Dock (http://clab.labshare.cn/cb-dock/php/blinddock.php). Значение энергии связывания менее -5 kcal/mol указывало на сильную аффинность связывания27.
Подготовка и аутентификация Ligustri Lucidi Fructus
В данном случае Ligustri Lucidi Fructus (LLF) представляет собой высушенные спелые плоды Ligustrum lucidum W. T. Aiton (Oleaceae). Ботанический материал был аутентифицирован в соответствии с Фармакопеей Китая; гербарные образцы № 20240506, 20240911, 20241103 были депонированы в Университете традиционной китайской медицины провинции Шаньси.
Для приготовления отвара 200 g соответствующих требованиям ломтиков LLF замачивали в 1,000 mL дистиллированной воды в течение 30 мин при комнатной температуре. Смесь доводили до интенсивного кипения, затем томили на слабом огне в течение 60 мин. Собирали фильтрат, а оставшийся растительный материал повторно кипятили с еще 1,000 mL дистиллированной воды в течение 60 мин. Два полученных фильтрата объединяли, фильтровали, центрифугировали и концентрировали при пониженном давлении до достижения конечной концентрации стока 1 g сырого лекарственного вещества/mL (общий объем 100 mL). Приготовленный отвар хранили при 4 °C для краткосрочного использования или при −20 °C для длительного хранения. Качество LLF и полученного отвара строго проверяли и подтверждали в соответствии со стандартами Фармакопеи Китайской Народной Республики для обеспечения надежности и воспроизводимости экспериментов.
Для качественной идентификации была проведена тонкослойная хроматография. Вкратце: соответствующий объем приготовленного отвара центрифугировали, а супернатант экстрагировали метанолом. После фильтрации раствор образца и раствор стандартного образца specnuezhenide наносили на одну и ту же пластину с силикагелем G. После проявления, высушивания и осмотра под ультрафиолетовым светом пятно раствора образца по цвету и положению совпало с пятном стандартного соединения, что подтвердило наличие характерного биоактивного компонента LLF.
Для количественного контроля качества была проведена детекция методом высокоэффективной жидкостной хроматографии. Анализ выполняли с использованием колонки C18, где в качестве подвижной фазы применяли смесь метанола и воды. Длина волны детектирования была установлена на уровне 224 nm. Содержание specnuezhenide в отваре определяли на основании стандартной кривой. Результаты продемонстрировали стабильный и однородный химический состав приготовленного отвара, что обеспечило постоянное качество препарата на протяжении всего эксперимента с применением животных.
Эксперименты на животных
Двенадцать самцов мышей линии db/db (возраст 8–9 недель), соответствующих стандарту SPF, и шесть контрольных самцов мышей линии db/m того же возраста содержались в SPF-виварии Шаньсийского университета традиционной китайской медицины. Перед началом экспериментов животные проходили период акклиматизации в течение 7 дней при 12-часовом цикле свет/темнота с ad libitum доступ к пище и воде. Исследование было одобрено Комитетом по этике Шаньсийского университета традиционной китайской медицины (номер одобрения 2022DW167). У животных, проявлявших >Животных с потерей массы тела на 20%, в состоянии агонии или при невозможности доступа к пище и воде гуманно усыпляли до достижения запланированной конечной точки исследования. По завершении исследования все оставшиеся мыши были усыплены путем внутрибрюшинного введения пентобарбитала натрия с последующим переломом шейных позвонков в соответствии с протоколами учреждения.
После периода акклиматизации создание модели диабетической нефропатии (ДН) у мышей db/db подтверждалось уровнем глюкозы в крови из хвостовой вены ≥ 16 mmol/L и микроальбуминурией, определяемой по положительному результату теста с тест-полоской на микроальбумин в моче. После успешного создания модели ДН мыши db/db были случайным образом разделены на две группы (n = 6 в каждой группе): группу модели ДН (DN) и группу лечения LLF (Treatment). Кроме того, мыши db/m (n = 6) использовались в качестве контрольной группы (Control). Дозировка была выбрана на основе предыдущих фармакодинамических исследований LLF на диабетических крысах и пересчитана на эквивалентную дозу для человека с использованием нормализации по площади поверхности тела28. Группам Control и DN вводили дистиллированную воду, тогда как группа лечения получала LLF в дозе 3,5 g/kg в течение 8 недель. После 8 недель введения всех мышей усыпляли для сбора сыворотки крови, мочи и тканей почек для последующих анализов.
Показатели крови и мочи
Уровни глюкозы в сыворотке крови анализировали с помощью полностью автоматического биохимического анализатора крови. Концентрацию микроальбумина в моче измеряли в соответствии с инструкцией к набору (Дополнительный файл 1).
Патологическое исследование тканей почек мыши
Ткани почек были подготовлены для гистопатологического исследования. После фиксации в 4% параформальдегиде ткани промывали, дегидратировали, заливали в парафин и нарезали на срезы. Затем проводили окрашивание гематоксилином и эозином (HE), после чего окрашенные срезы изучали под оптическим микроскопом для оценки патологических изменений.
Обратная транскрипция и количественная полимеразная цепная реакция (ОТ-кПЦР)
ОТ-кПЦР использовали для определения экспрессии потенциальных биомаркеров в ткани почек мыши. Тотальную РНК экстрагировали согласно инструкциям производителя, после чего оценивали концентрацию и качество РНК (Таблица 1). кДНК синтезировали из экстрагированной РНК с помощью набора для синтеза кДНК. Амплификацию проводили с использованием пар праймеров, перечисленных в Таблице 1>, используя GAPDH в качестве референсного гена. Относительные уровни экспрессии рассчитывали методом 2−ΔΔCt13,26.
Статистический анализ
Все статистические анализы были проведены с использованием программного обеспечения R (версия 4.2.2) совместно с ПО, необходимым для соответствующих экспериментальных процедур. Если не указано иное, все статистические тесты были двусторонними, а различия считались статистически значимыми при P < 0.05. Анализ дифференциальной экспрессии транскриптома выполнялся с использованием пакета limma. Гены с скорректированным значением P < 0.05 и абсолютным значением log2-кратного изменения более 0,5 были определены как дифференциально экспрессируемые.
Для сравнения экспрессии генов-кандидатов между независимыми образцами с DN и контрольными образцами использовались непараметрические критерии суммы рангов Уилкоксона, где это было указано в исходном аналитическом протоколе. Корреляции между биомаркерами-кандидатами и фракциями иммунных клеток оценивали с помощью ранговой корреляции Спирмена.
Экспериментальные данные представлены как среднее ± SD. Сравнения между тремя независимыми группами животных проводились с помощью однофакторного дисперсионного анализа при соблюдении условий параметрического анализа. Для апостериорных сравнений использовался критерий наименьшей значимой разности при условии гомогенности дисперсий, тогда как при неоднородности дисперсий применялся T3-тест Даннетта. Исходные фармакодинамические показатели и показатели на 8-й неделе анализировались и представлялись раздельно; выводы о взаимодействии факторов группы и времени не делались. Скрипты R и исходные данные, использованные для биоинформатического анализа и анализа с применением машинного обучения, представлены в Дополнительном файле 1.
Результаты
Для систематического изучения потенциальных кандидатных биомаркеров, связанных с митохондриями, для оценки LLF при лечении диабетической нефропатии (ДН), мы разработали аналитический рабочий процесс, состоящий из четырех этапов (Рисунок 1)На первом этапе мы интегрировали транскриптомные данные из набора GSE142025 (обучающая выборка, вся почка, n=36) и GSE96804 (валидационная выборка, клубочек, n = 61) с 1 136 генами, связанными с митохондриями, из базы данных MitoCarta 3.0, и 517 прогнозируемыми мишенями 9 активных ингредиентов из базы данных TCMSP. Пересечение этих трех наборов генов позволило выявить 9 генов-кандидатов. На втором этапе для приоритизации значимых генов с использованием среднеквадратической ошибки (RMSE) были применены четыре модели машинного обучения (RF, KNN, PLS и SVM). < 0,281 в качестве порогового значения. Кросс-датасетная валидация с помощью ROC-анализа (AUC > (0,7 в обоих наборах данных) были определены четыре потенциальных биомаркера: CAT, FABP1, MAOB и MAOA. На III этапе мы провели GSEA для выявления обогащенных путей KEGG, анализ иммунной инфильтрации с помощью CIBERSORT, прогнозирование модификации m6A, а также построили сети lncRNA-miRNA-mRNA, сети «активный ингредиент — биомаркер» и «активный ингредиент — биомаркер — путь» с последующим молекулярным докингом. На IV этапе на модели диабетической нефропатии у мышей db/db были оценены фармакодинамические эффекты LLF и изменения экспрессии мРНК четырех потенциальных биомаркеров.
Скрининг генов-кандидатов при лечении DN с помощью LLF
В наборе данных GSE142025 между группой с DN и контрольной группой было выявлено 3 810 дифференциально экспрессируемых генов (DEG), включая 1 904 гена с повышенной экспрессией и 1 906 генов с пониженной экспрессией (Рисунок 2A,B). С помощью базы данных TCMSP было предсказано тринадцать активных ингредиентов LLF, а именно: бета-ситостерол, кемпферол, таксифолин, люцидумозид D, Lucidumoside D_qt, (20S)-24-ene-3,20-diol-3-acetate, эриодиктиол, syringaresinol diglucoside_qt, люцидускулин, олиторизид, Olitoriside_qt, лютеолин и кверцетин (Таблица 2). Для четырех активных ингредиентов — Lucidumoside D_qt, (20S)-24-ene-3,20-diol-3-acetate, syringaresinol diglucoside_qt и Olitoriside_qt — не было предсказано никаких потенциальных генов-мишеней, тогда как для остальных девяти ингредиентов было предсказано 517 потенциальных генов-мишеней. Путем перекрытия 3 810 DEG, 1 136 MRG и 517 потенциальных генов-мишеней были выявлены девять генов-кандидатов: GPX1, BAX, CASP8, MAOA, MAOB, CAT, AKR1B10, ALDH2 и FABP1 (Рисунок 2C). Впоследствии была построена сеть «активный ингредиент — ген-кандидат» (Рисунок 2D). Эти девять генов-кандидатов были обогащены по 341 термину GO, включая ответ на воздействие токсических веществ, катаболический процесс органических гидроксисоединений и клеточная детоксикация (Рисунок 2E). Кроме того, они были связаны с 52 путями KEGG, такими как метаболизм триптофана, нейродегенеративные пути и метаболизм гистидина (Рисунок 2F).
Скрининг потенциальных биомаркеров для лечения диабетической нефропатии (ДН) при LLF
Сеть PPI выявила семь узлов и восемь ребер, при этом MAOA, ALDH2, MAOB и AKR1B10 взаимодействовали между собой (Рисунок 3A). В качестве характерных генов были определены гены со значениями RMSE менее 0,281 в четырех моделях машинного обучения: CAT, MAOB, MAOA, BAX и FABP1 (Рисунок 3B-E). Анализ экспрессии показал, что уровни CAT, FABP1, MAOB и MAOA значимо различались между группами с ДН и контрольной группой, что подтверждалось в обоих наборах данных GSE142025 и GSE96804 (Рисунок 3F,G). Кроме того, значения AUC для этих генов при анализе ROC-кривых превышали 0,7 в обоих наборах данных, что указывает на способность этих генов эффективно дифференцировать образцы с ДН от контрольных образцов и служить потенциальными биомаркерами для лечения ДН при LLF (Рисунок 4A-H).
Значительное обогащение путей воспалительных и иммунных реакций потенциальными биомаркерами
С помощью GSEA были выявлены четыре потенциальных биомаркера, которые были значительно обогащены в сигнальном пути хемокинов и в путях взаимодействия цитокинов с цитокиновыми рецепторами (Рисунок 5A-D). Среди них сигнальный путь пероксидазы продемонстрировал значимую связь с CAT, MAOA и MAOB.
Корреляция потенциальных биомаркеров с иммунными клетками
Между образцами DN и контрольной группой наблюдались заметные различия в экспрессии девяти типов иммунных клеток: наивных B-клеток, макрофагов M0, макрофагов M1, макрофагов M2, активированных тучных клеток, активированных NK-клеток, покоящихся CD4+ T-клеток памяти, наивных CD4+ T-клеток и CD8+ T-клеток (P < 0.05) (Рисунок 6A,B). Была обнаружена значимая положительная корреляция (cor = 0.6) между наивными B-клетками и активированными NK-клетками, в то время как значимая отрицательная корреляция (cor = -0.69) была выявлена между наивными B-клетками и активированными тучными клетками (Рисунок 6C). Все потенциальные биомаркеры продемонстрировали сильную отрицательную корреляцию с CD8+ T-клетками и активированными тучными клетками и положительную корреляцию с активированными NK-клетками и наивными B-клетками (Рисунок 6D).
Взаимодействие ключевых модифицированных белков m6A с потенциальными биомаркерами
Модификация m6A-метилирования РНК оказывает глубокое влияние на синтез и метаболизм РНК и участвует в патогенезе различных заболеваний29. Расположение сайтов модификации m6A в потенциальных биомаркерах и их высокодостоверные позиции во вторичных структурах показаны на Рисунке 7A-H. Дальнейший анализ выявил, что ключевые m6A-модифицированные белки, взаимодействующие с CAT, включали AQR и RBM22, в то время как FABP1 взаимодействовал как с SF3A3, так и с AQR. Было обнаружено, что MAOA взаимодействует с IGF2BP3 и IGF2BP2, а MAOB — с TIA1 (Таблица 3).
Благоприятный in silico прогнозы связывания таксифолина, бета-ситостерола и эриодиктиола в LLF при лечении диабетической нефропатии
В miRNet КТ (компьютерная томография) было предсказано взаимодействие с 24 микроРНК, в то время как FABP1 был связан с пятью микроРНК. Кроме того, МАО-Б и МАО-А были связаны с 29 и 26 микроРНК (miRNA) соответственно. Среди них 23 длинные некодирующие РНК (lncRNA) были идентифицированы в обеих базах данных — TarBase и Starbase. Затем была построена регуляторная сеть lncRNA-miRNA-mRNA, включающая четыре потенциальных биомаркера, 74 miRNA и 23 lncRNA. (Рисунок 8A)Потенциальные активные ингредиенты, воздействующие на кандидатные биомаркеры, включали лютеолин, бета-ситостерин, эриодиктиол, кемпферол, кверцетин и таксифолин. (Рисунок 8B)Кроме того, на основе активных ингредиентов, потенциальных биомаркеров и пяти наиболее значимых путей, выявленных с помощью GSEA, была построена сеть «активный ингредиент — биомаркер — путь». (Рисунок 8C)Например, таксифолин воздействовал на КТ (компьютерная томография) в пероксисомальном пути. Энергии связи между КТ (компьютерная томография) и таксифолин (-8,8 ккал/моль), FABP1 и бета-ситостерол (-8,1 ккал/моль), и МАО-Б и эриодиктиол (-9,8 ккал/моль) оказались ниже -5 ккал/моль, что указывает на высокое сродство между этими потенциальными биомаркерами и соответствующими активными ингредиентами27Таксифолин, бета-ситостерол и эриодиктиол были идентифицированы как потенциальные активные ингредиенты с благоприятными in silico прогнозирование связывания в LFL при лечении ДН (Рисунок 8D-F)Однако они представлены как компоненты, предсказанные базой данных, а не как подтвержденные биоактивные промежуточные соединения наблюдаемого in vivo эффекты.
Валидация потенциальных биомаркеров на мышиной модели ДН
Фармакодинамическая оценка влияния LLF при лечении мышей с ДН
В течение периода введения препаратов проводился мониторинг уровней глюкозы в крови и микроальбуминурии у мышей (Рисунок 9A-D). По сравнению с контрольной группой, уровни глюкозы в крови и микроальбуминурии в группе с моделью ДН были значительно повышены (P < 0,01); по сравнению с группой модели ДН, уровень глюкозы в крови у мышей в группе лечения значительно снизился после 4 недель введения (P < 0,01), а уровень микроальбуминурии у мышей в группе лечения значительно снизился после 8 недель введения (P < 0,05). Результаты свидетельствуют о том, что LLF может быть эффективен при лечении ДН.
Патологическая оценка LLF при лечении мышей с диабетической нефропатией (DN)
После окрашивания гематоксилином и эозином (HE) в тканях почек группы контроля наблюдались четкие структуры клубочков. Напротив, в группе модели DN по сравнению с нормальной группой наблюдались пикноз и гиперхромия ядер клубочков, а также инфильтрация воспалительными клетками вокруг клубочков. Терапия LLF уменьшила патологические повреждения почек у мышей db/db (Рисунок 9E).
RT-PCR анализ экспрессии потенциальных биомаркеров у мышей с ДН
После успешного создания модели диабетической нефропатии (ДН) у мышей и наблюдения значительного улучшения симптомов при лечении LLF, для анализа изменений потенциальных биомаркеров была использована RT-qPCR. По сравнению с контрольной группой, в группе ДН наблюдалось значительное снижение экспрессии CAT и MAOA (P < 0.05 или P < 0.001). Напротив, в группе лечения экспрессия CAT и MAOA была значительно выше, чем в группе ДН (P < 0.05). Однако статистически значимых различий в экспрессии MAOB и FABP1 между группами обнаружено не было (Рисунок 9F-I).
Доступность данных
Наборы данных экспрессии генов, проанализированные в данном исследовании, находятся в открытом доступе в базе данных Gene Expression Omnibus (GEO) под номерами доступа GSE142025 и GSE96804. Скрипты R, использованные для биоинформатического анализа, вместе с исходными экспериментальными данными (показатели глюкозы в крови, микроальбуминурии и данные RT-qPCR), представлены в Дополнительном файле 1. Все остальные базы данных, программное обеспечение и веб-ресурсы, использованные в этом исследовании, перечислены в Таблице материалов.
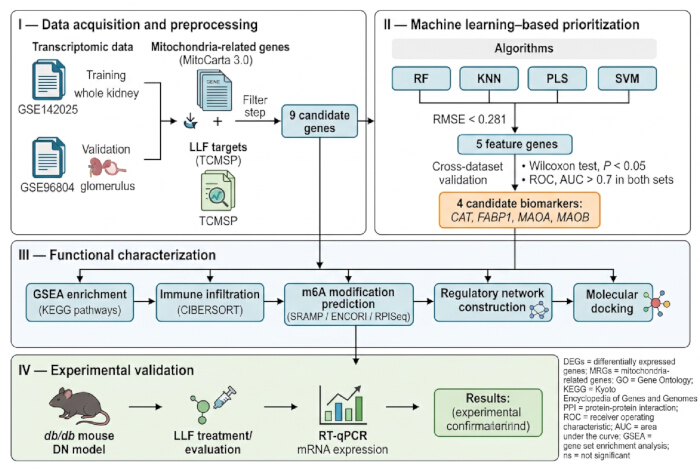
Рисунок 1: Схема исследования. Для идентификации генов-кандидатов были интегрированы транскриптомные наборы данных, гены, связанные с митохондриями, и прогнозируемые мишени Ligustri Lucidi Fructus. Затем для приоритизации значимых генов были использованы четыре алгоритма машинного обучения с последующей валидацией на разных наборах данных, функциональной характеристикой и экспериментальной проверкой на мышах линии db/db. Сокращения: DN = диабетическая нефропатия; DEGs = дифференциально экспрессируемые гены; MRGs = гены, связанные с митохондриями; LLF = Ligustri Lucidi Fructus; RF = случайный лес; KNN = k-ближайших соседей; PLS = метод частичных наименьших квадратов; SVM = метод опорных векторов; RMSE = среднеквадратичная ошибка; GSEA = анализ обогащения набора генов; RT-qPCR = количественная ПЦР с обратной транскрипцией. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
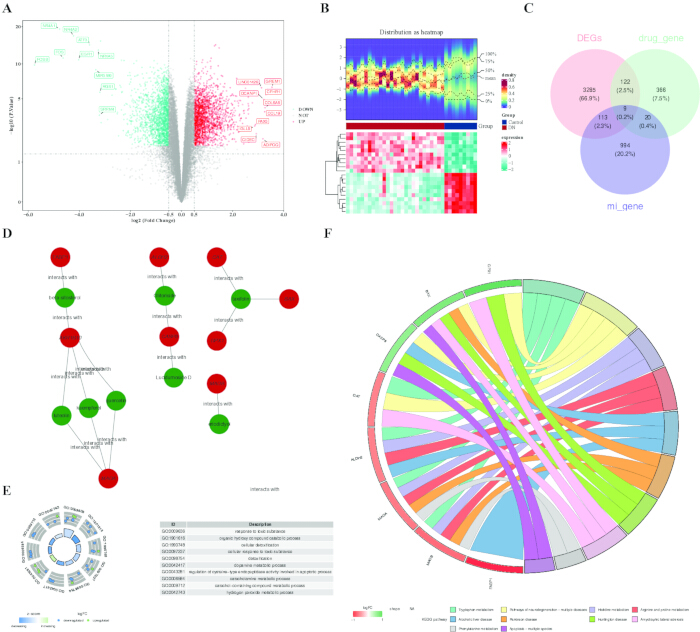
Рисунок 2: Скрининг и функциональная характеристика генов-кандидатов при лечении DN с помощью LLF. (A) График-вулкан, показывающий дифференциально экспрессируемые гены между образцами с DN и контрольными образцами в GSE142025. (B) Тепловая карта 10 наиболее активированных и 10 наиболее подавленных генов, ранжированных по |log2FC|. (C) Диаграмма Венна, показывающая пересечение DEGs, MRGs и прогнозируемых генов-мишеней LLF. (D) Сеть «активный ингредиент — ген-кандидат». (E) Анализ обогащения генного онтологического анализа (Gene Ontology) генов-кандидатов. Высота столбца соответствует значимости обогащения, а z-score указывает на прогнозируемое направление функциональной регуляции. (F) Анализ обогащения путей KEGG (Kyoto Encyclopedia of Genes and Genomes) для генов-кандидатов. Сокращения: DN = диабетическая нефропатия; LLF = Ligustri Lucidi Fructus; DEGs = дифференциально экспрессируемые гены; MRGs = митохондриально-связанные гены; GO = Gene Ontology; KEGG = Kyoto Encyclopedia of Genes and Genomes. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
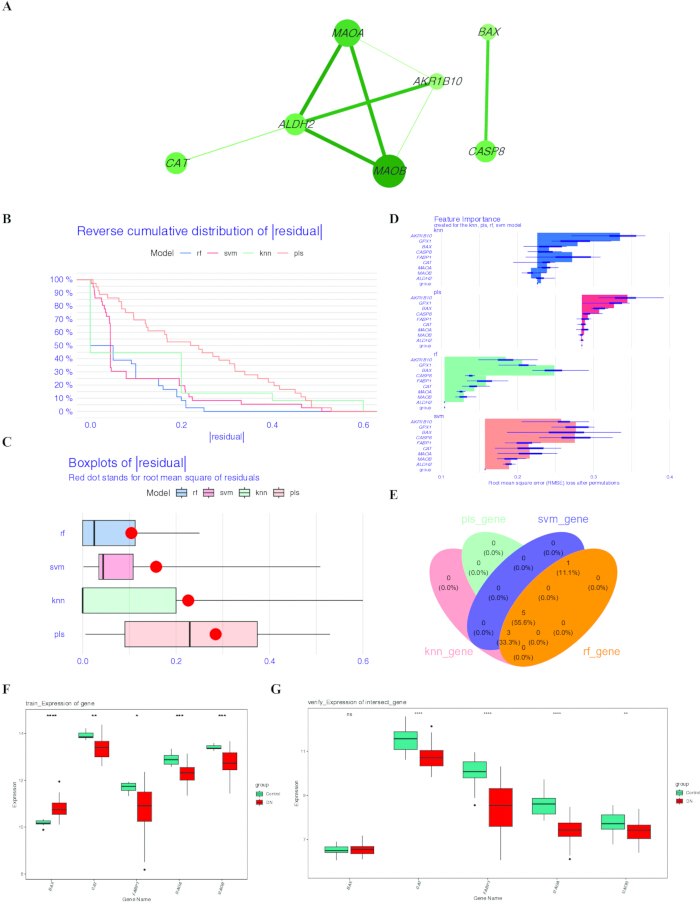
Рисунок 3: Идентификация потенциальных биомаркеров на основе машинного обучения. (A) Сеть белок-белковых взаимодействий белков, кодируемых генами-кандидатами. (B) Обратное кумулятивное распределение остатков для моделей RF, KNN, PLS и SVM. (C) Диаграммы размаха («ящики с усами»), демонстрирующие распределение остатков четырех моделей; красная точка указывает на среднеквадратичную ошибку. (D) Важность генов-кандидатов на основе RMSE в четырех моделях машинного обучения. (E) Пересечение признаков-генов, соответствующих критерию RMSE < 0.281 во всех четырех моделях. (F,G) Экспрессия выбранных признаков-генов в GSE142025 и GSE96804 соответственно. Сокращения: RF = случайный лес (random forest); KNN = метод k-ближайших соседей (k-nearest neighbor); PLS = метод частичных наименьших квадратов (partial least squares); SVM = метод опорных векторов (support vector machine); RMSE = среднеквадратичная ошибка (root mean square error). Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
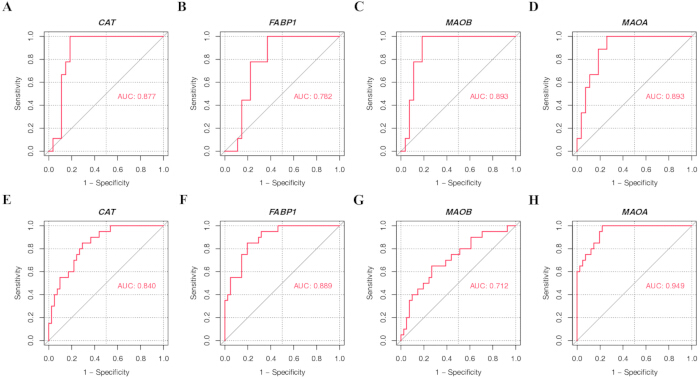
Рисунок 4: ROC-кривые четырех потенциальных биомаркеров. ROC-кривые для CAT, FABP1, MAOB и MAOA в (A-D) обучающем наборе данных GSE142025 и (E-H) валидационном наборе данных GSE96804. AUC представляет собой площадь под ROC-кривой. Сокращения: ROC = рабочая характеристика приемника; AUC = площадь под кривой. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
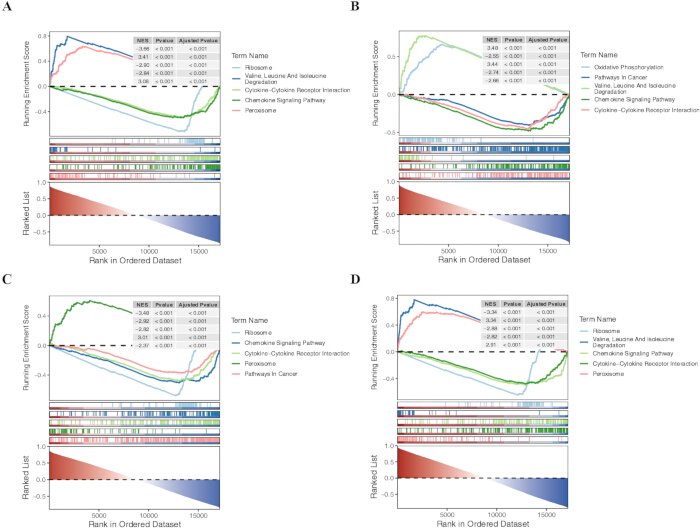
Рисунок 5: Анализ обогащения наборов генов для потенциальных биомаркеров. GSEA, демонстрирующий статистически значимо обогащенные пути KEGG, связанные с (A) CAT, (B) FABP1, (C) MAOA и (D) MAOB в наборе данных GSE142025. Сокращения: GSEA = анализ обогащения наборов генов; KEGG = Киотская энциклопедия генов и геномов. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
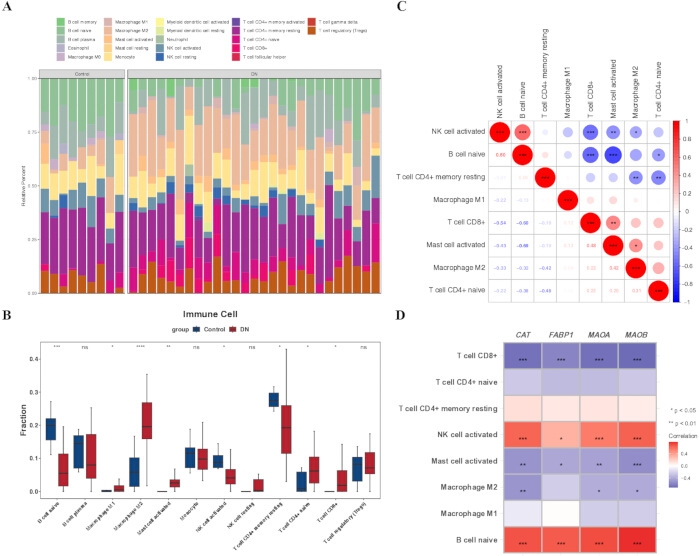
Рисунок 6: Инфильтрация иммунными клетками и её связь с потенциальными биомаркерами при ДН. (A) Относительная доля 22 типов иммунных клеток, рассчитанная с помощью CIBERSORT, в образцах при ДН и в контрольной группе. (B) Сравнение статистически значимых различий во фракциях иммунных клеток между группами ДН и контроля. (C) Матрица корреляции между типами иммунных клеток с дифференциальной численностью. (D) Корреляция по Спирмену между экспрессией CAT, FABP1, MAOA и MAOB и типами иммунных клеток с дифференциальной численностью. Сокращения: ДН = диабетическая нефропатия. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
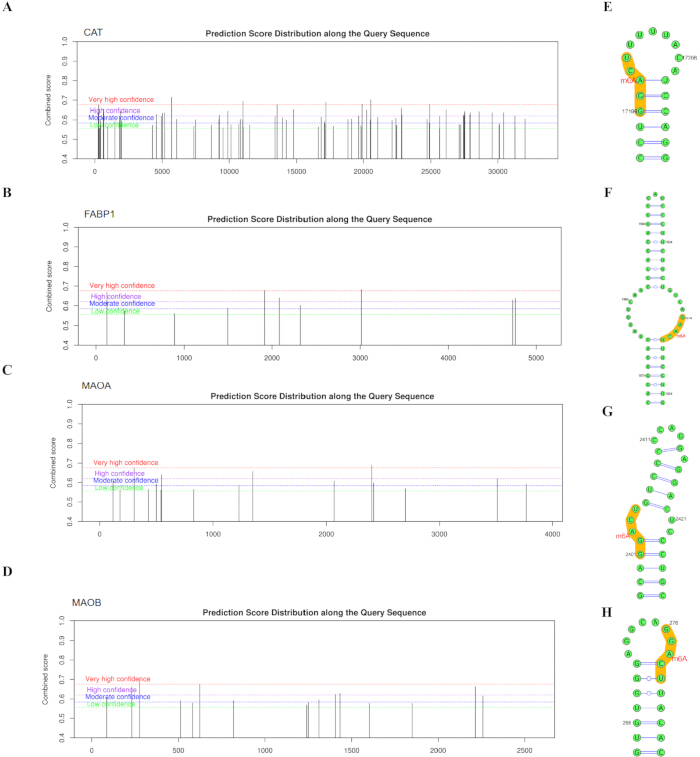
Рисунок 7: Прогнозируемые сайты модификации m6A и вторичные структуры РНК транскриптов кандидатных биомаркеров. Прогнозируемые сайты модификации m6A в (A>) CAT, (B>) FABP1, (C>) MAOA и (D>) MAOB. Прогнозируемые вторичные структуры РНК, демонстрирующие высокодостоверные области, связанные с m6A, для (E>) CAT, (F>) FABP1, (G>) MAOA и (H>) MAOB. Желтым цветом выделены прогнозируемые участки последовательности, содержащие сайты модификации m6A. Сокращение: m6A = N6-метиладенозин. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
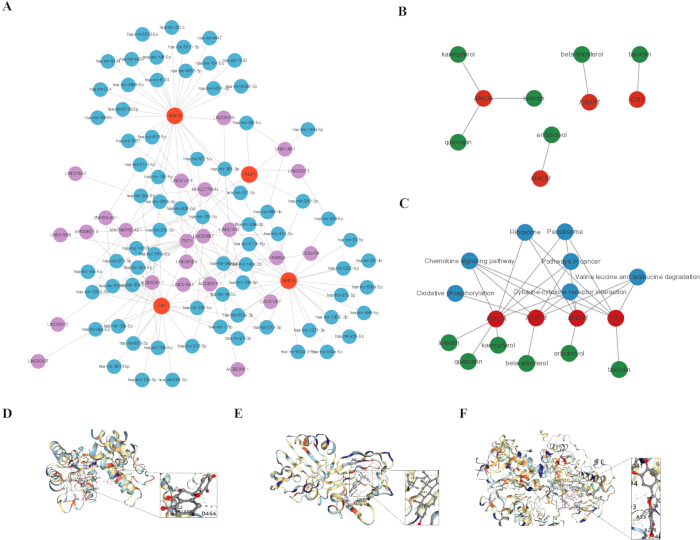
Рисунок 8: Регуляторные сети и молекулярный докинг потенциальных активных ингредиентов LLF. (A) Прогнозируемая регуляторная сеть lncRNA–miRNA–mRNA с участием кандидатных биомаркеров. (B) Сеть потенциальных активных ингредиентов LLF и кандидатных биомаркеров. (C) Сеть «активный ингредиент–биомаркер–путь», основанная на результатах GSEA. (D-F) Прогнозируемые конформации молекулярного докинга (D) CAT с таксифолином, (E) FABP1 с бета-ситостерином и (F) MAOB с эриодиктиолом. Сокращения: LLF = Ligustri Lucidi Fructus; lncRNA = длинная некодирующая РНК; miRNA = микроРНК; GSEA = анализ обогащения наборов генов. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
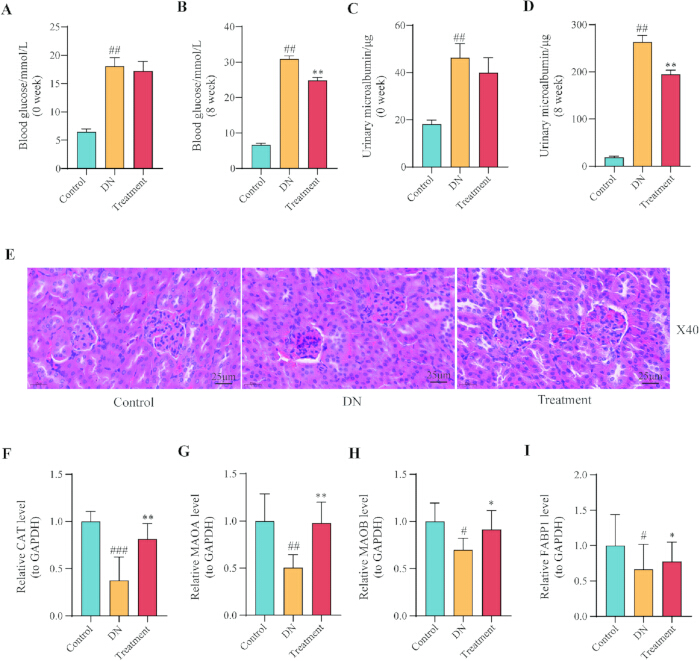
Рисунок 9: Влияние терапии LLF на биохимические показатели, гистопатологию почек и экспрессию потенциальных биомаркеров у мышей db/db. (A,B) Уровни глюкозы в крови в начале исследования и на 8-й неделе соответственно. (C,D) Уровни микроальбуминурии в начале исследования и на 8-й неделе соответственно. (E) Репрезентативные срезы почек, окрашенные гематоксилином и эозином, из групп Control, DN и Treatment (увеличение ×40; масштабный отрезок = 25 µm). (F-I) Относительные уровни экспрессии мРНК Cat, Maoa, Maob и Fabp1 в почках соответственно, измеренные методом RT-qPCR. #P < 0.05, ##P < 0.01 и ###P < 0.001 по сравнению с группой Control; *P < 0.05, **P < 0.01 и ***P < 0.001 по сравнению с группой DN. Сокращения: LLF = Ligustri Lucidi Fructus; DN = диабетическая нефропатия; RT-qPCR = количественная полимеразная цепная реакция с обратной транскрипцией. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
| праймер | последовательности |
| КТ (компьютерная томография) F | TCACTGACGAGATGGCACAC |
| КТ (компьютерная томография) R | ATCGAACGGCAATAGGGGTC |
| FABP1 F | CAATAGGTCTGCCCGAGGAC |
| FABP1 R | GTCATGGTCTCCAGTTCGCA |
| МАО-Б F | GCACTGAAACAGCCTCACAC |
| МАО-Б R | TCGTGCAGGGACATCCAAAG |
| МАО-А F | ACTTACCCATTCCGTGGTGC |
| МАОА R | ACCACAGGGCAGATACCTCA |
| M-GAPDH F | CCTTCCGTGTTCCTACCCC |
| M-GAPDH R | GCCCAAGATGCCCTTCAGT |
Таблица 1: Последовательности праймеров, использованные для RT-qPCR анализа тканей почек мыши. Сокращения: F = прямой праймер; R = обратный праймер; RT-qPCR = количественная полимеразная цепная реакция с обратной транскрипцией.
| ID молекулы | Название молекулы | ОБ (%) | Глубокое обучение | Целевое число |
| MOL000358 | бета-ситостерол | 36.91 | 0.75 | 100 |
| MOL000422 | кемпферол | 41.88 | 0.24 | 103 |
| MOL004576 | таксифолин | 57.84 | 0.27 | 92 |
| MOL005146 | Люцидумозид D | 48.87 | 0.71 | 104 |
| MOL005147 | Люцидумозид D_qt | 54.41 | 0.47 | 0 |
| MOL005169 | (20S)-24-ен-3,20-диол-3-ацетат | 40.23 | 0.82 | 0 |
| MOL005190 | эриodikтиол | 71.79 | 0.24 | 101 |
| MOL005195 | сирингарезинол диглюкозид_qt | 83.12 | 0.8 | 0 |
| MOL005209 | Люцидускулин | 30.11 | 0.75 | 105 |
| MOL005211 | Олиторизид | 65.45 | 0.23 | 100 |
| MOL005212 | Олиторизид_qt | 103.23 | 0.78 | 0 |
| MOL000006 | лютеолин | 36.16 | 0.25 | 102 |
| MOL000098 | кверцетин | 46.43 | 0.28 | 103 |
Таблица 2: Тринадцать активных ингредиентов Ligustri Lucidi Fructus, идентифицированных с помощью базы данных TCMSP. Сокращения: OB = пероральная биодоступность; DL = лекарственно-подобные свойства.
| мРНК | Белок | RF | SVM |
| CAT | AQR | 0.7 | 0.98 |
| CAT | RBM22 | 0.8 | 0.97 |
| FABP1 | AQR | 0.65 | 0.94 |
| FABP1 | SF3A3 | 0.7 | 0.8 |
| MAOA | IGF2BP2 | 0.75 | 0.97 |
| MAOA | IGF2BP3 | 0.75 | 0.97 |
| MAOB | TIA1 | 0.85 | 0.89 |
Таблица 3: Прогнозируемые взаимодействия между мРНК четырех митохондриальных биомаркеров и m6A-связанными РНК-связывающими белками. CAT, FABP1, MAOA и MAOB обозначают мРНК биомаркеров человека; AQR, RBM22, SF3A3, IGF2BP2, IGF2BP3 и TIA1 обозначают РНК-связывающие белки. Показатели RF и SVM > 0,5 указывают на прогнозируемые взаимодействия РНК–белок. Сокращения: RF = случайный лес (random forest); SVM = метод опорных векторов (support vector machine).
Дополнительный файл 1. Биоинформатические скрипты и исходные экспериментальные данные. Данный архив содержит R-скрипты, использованные для обработки данных, анализа дифференциальной экспрессии, функционального обогащения, машинного обучения, анализа рабочих характеристик приемника (ROC-анализа), анализа обогащения наборов генов (GSEA), корреляционного анализа Спирмена и анализа инфильтрации иммунных клеток с помощью CIBERSORT, а также исходные данные экспериментов по определению уровня глюкозы в крови, микроальбумина в моче и результатов RT-qPCR. Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Обсуждение
LLF представляет собой широко используемый препарат традиционной китайской медицины, применяемый преимущественно для укрепления печени и почек, а также для лечения сахарного диабета и его осложнений. В настоящее время специфических препаратов или методов терапии диабетической нефропатии (ДН) не существует, и ее лечение основывается главным образом на гипогликемической, гиполипидемической и антигипертензивной терапии30,31,32. Однако такие методы лечения способны замедлить прогрессирование повреждения почек лишь у небольшой части пациентов33. Было показано, что LLF оказывает ренопротекторное действие на моделях ДН у крыс путем коррекции нарушений глюкозного и липидного обмена, а также снижения окислительного стресса34. Примечательно, что почки, являясь органом с исключительно высоким содержанием митохондрий и интенсивным потреблением кислорода, подвержены влиянию аномальной митохондриальной динамики, которая играет ключевую роль в патогенезе ДН35. Данное исследование раскрывает новый механизм, посредством которого LLF может воздействовать на функцию митохондрий через специфические потенциальные биомаркеры (CAT, FABP1, MAOB и MAOA) при лечении ДН.
Предыдущие исследования показали, что каталаза (CAT), белок, связывающий жирные кислоты 1 (FABP1), моноаминоксидаза B (MAOB) и моноаминоксидаза A (MAOA) в разной степени вовлечены в развитие диабетической нефропатии (ДН). CAT участвует в системе антиоксидантной защиты, оберегая почки от повреждений, вызванных окислительным стрессом36. CAT, являясь основным антиоксидантным ферментом организма, участвует в регуляции возникновения и прогрессирования ДН посредством модуляции митохондриальных физиологических процессов37. CAT специфически катализирует разложение перекиси водорода (H₂O₂) на воду и кислород, эффективно утилизируя АФК, образующиеся в митохондриях. Это снижает повреждение структуры и функции митохондрий, вызванное окислительным стрессом, поддерживает стабильность мембранного потенциала митохондрий и эффективность окислительного фосфорилирования, тем самым смягчая повреждение клеток почек, индуцированное высокой концентрацией глюкозы, и замедляя прогрессирование ДН38. Кроме того, снижение экспрессии CAT приводит к недостаточному утилизированию митохондриальных АФК, что усугубляет фрагментацию митохондрий и разрушение крист. Это подавляет слияние митохондрий и стимулирует их деление, что еще больше дестабилизирует митохондриальную динамику. В результате в таких клетках, как мезангиальные клетки и подоциты, развиваются метаболические нарушения, что ускоряет фиброз почечной ткани39.
FABP1, как представитель семейства белков, связывающих жирные кислоты, в основном участвует в транспорте, метаболизме и внутриклеточной сигнализации длинноцепочечных жирных кислот. Было показано, что его аномальная экспрессия тесно связана с различными метаболическими заболеваниями и повреждением почек, играя важную регуляторную роль в развитии и прогрессировании диабетической нефропатии (ДН)40. Исследования указывают на то, что FABP1 модулирует прогрессирование ДН, нарушая липидный обмен. При диабете аномальная экспрессия FABP1 нарушает транспорт и метаболизм жирных кислот. В почечной ткани накапливаются избыточные свободные жирные кислоты и их метаболиты, что напрямую повреждает эндотелиальные клетки клубочков и эпителиальные клетки канальцев, тем самым усугубляя воспаление и фиброз почек41. Одновременно с этим FABP1 усиливает повреждение почечной ткани, опосредуя окислительный стресс и повреждения, вызванные гипоксией. Его экскреция с мочой может возрасти еще до появления аномальных уровней альбумина в моче, что представляет собой новую мишень для раннего скрининга и диагностики ДН41,42. Кроме того, FABP1 играет центральную регуляторную роль в митохондриальном метаболизме жирных кислот43. Исследования показывают, что повышение уровня FABP1 значительно повышает эффективность транспорта жирных кислот в митохондрии, увеличивает активность митохондриального β-окисления и активность ферментов цикла трикарбоновых кислот, улучшая тем самым клеточный энергетический обмен44. Однако механизм, посредством которого FABP1 влияет на патогенез ДН через участие в митохондриальных процессах, остается неясным. При других состояниях, связанных с ДН, MAOB и MAOA, как ферменты, участвующие в метаболизме нейромедиаторов, были ассоциированы с прогрессированием ДН, способствуя дисбалансу окислительно-восстановительного состояния тканей. Данное исследование дополнительно подтверждает ключевую роль этих четырех потенциальных биомаркеров при ДН, при этом уровни их экспрессии снижаются в группе с ДН. Предполагается, что модуляция экспрессии этих потенциальных биомаркеров может помочь уменьшить воспаление и окислительный стресс при ДН.
На основании анализа обогащения GSEA было выявлено четыре потенциальных биомаркера — CAT, FABP1, MAOB и MAOA, — которые были обогащены в нескольких путях, включая сигнальный путь хемокинов, взаимодействие цитокинов с цитокиновыми рецепторами и пероксисомальные пути. Хемокины являются ключевыми компонентами иммунного ответа, стимулирующими воспаление. Путь пероксидазы (POD) связан с окислительным стрессом45. Было сообщено, что байкалин облегчает течение диабетической нефропатии (ДН), снижая окислительный стресс и воспаление; его механизм может включать активацию антиоксидантного сигнального пути, опосредованного NrF2, и ингибирование воспалительного пути, опосредованного MAPK45. Кроме того, нарушение регуляции FABP1 в липидном обмене может способствовать развитию гломерулярного склероза и интерстициального фиброза при ДН9. Эти данные свидетельствуют о том, что потенциальные биомаркеры играют критическую роль в процессах воспаления и окислительного стресса при ДН. Воздействие на эти биомаркеры для модуляции путей, на которые они влияют, может уменьшить воспаление и окислительный стресс, связанные с ДН, тем самым замедляя ее прогрессирование.
Биоинформатический анализ показал, что уровни инфильтрации иммунных подмножеств, таких как CD8+ T-клетки, в ткани почек при диабетической нефропатии (ДН) значительно изменились, и увеличение количества CD8+ T-клеток достоверно и отрицательно коррелировало с экспрессией четырех кандидатов в биомаркеры, связанных с митохондриями (CAT, FABP1, MAOB, MAOA). Эти расчетные прогнозы согласуются с результатами патологических наблюдений в экспериментах на животных: срезы почек мышей группы с моделью ДН, окрашенные гематоксилином и эозином (HE), продемонстрировали явную инфильтрацию воспалительными клетками вокруг клубочков; после вмешательства с использованием LLF инфильтрация воспалительных клеток почек в группе лечения была значительно снижена, а патологические повреждения уменьшились. Это позволяет предположить, что усиление инфильтрации воспалительными клетками является ключевым признаком повреждения почек при ДН и что LLF может оказывать защитную роль, регулируя иммунную инфильтрацию. Данный вывод согласуется с предыдущими исследованиями: инфильтрация CD8+ T-клетками связана с развитием ДН, а подавление их ответа может облегчить течение заболевания46, что также усугубляет повреждение почек при адриамициновой нефропатии47. Кроме того, при патологии ДН изменяется состав различных иммунных клеток, таких как B-клетки, макрофаги M1/M2 и NK-клетки48. Биомаркер CAT может влиять на функцию иммунных клеток при ДН49, а MAOA также может воздействовать на иммунную микросреду, регулируя поляризацию макрофагов. Эти результаты указывают на то, что нефропротекторный эффект LLF тесно связан с его способностью регулировать аномальную иммунную инфильтрацию, включая CD8+ T-клетки, тем самым снижая воспалительное повреждение. Отрицательная корреляция между четырьмя биомаркерами-кандидатами, CD8+ T-клетками и активированными тучными клетками позволяет предположить, что эти гены могут модулировать иммунную микросреду почек. Экспрессия CAT была связана с поляризацией макрофагов и активностью T-клеток в метаболических тканях. Однако наши оценки CIBERSORT получены на основе транскриптомов всей ткани почек, что не позволяет дифференцировать подтипы иммунных клеток, инфильтрирующих клубочковый и тубулоинтерстициальный отделы. Наблюдаемые корреляции следует интерпретировать как ассоциации, формирующие гипотезы, а не как доказательства причинно-следственной иммунной регуляции. Для локализации этих взаимодействий между иммунными клетками и биомаркерами необходимы будущие исследования с использованием мультиплексной иммуногистохимии или секвенирования РНК единичных клеток (scRNA-seq).
В предыдущих исследованиях сообщалось о биомаркерах, связанных с митохондриями при диабетической нефропатии (ДН), включая OPA1, MFN2, DRP1, PGC-1α и SOD2. Наши данные о CAT и MAOA дополняют существующую литературу, подчеркивая роль пероксисомальных путей и путей моноаминоксидазы, которым уделялось меньше внимания в контексте митохондриальных нарушений при ДН. Примечательно, что в то время как SOD2 и GPX1 являются классическими ферментами, нейтрализующими АФК, CAT специфически воздействует на пероксисомальный H2O2, что указывает на наличие отдельного субклеточного компартмента регуляции окислительного стресса.
Как природный флавоноид, таксифолин (TA) продемонстрировал способность значительно снижать уровни глюкозы в крови, мочевой кислоты, креатинина и инсулина в сыворотке крови у крыс с диабетом, одновременно смягчая патологические изменения в почках этих животных50. β-ситостерол может косвенно улучшать состояние при диабетической нефропатии (ДН), регулируя липидный баланс и оказывая противовоспалительный эффект. Компоненты β-ситостерола в отваре Хуанци Гэгэнь (HGD) участвуют в путях, связанных с ДН, воздействуя на такие молекулы, как сосудистый эндотелиальный фактор роста А (VEGFA) и интерлейкин-6 (IL-6). Эти эффекты включают противовоспалительное, антиапоптотическое, антиоксидантное и аутофагическое действия, которые уменьшают фиброз почек и повреждение коркового слоя почек, а также улучшают функцию почек, что в конечном итоге замедляет прогрессирование ДН51. Эриодиктиол, другой природный флавоноид, продемонстрировал защитное действие при ишемическом инсульте (ИС) за счет балансировки окислительного стресса и воспаления52. Несмотря на ограниченное количество исследований эриодиктиола в контексте ДН, учитывая связь заболевания с воспалением и окислительным стрессом, выдвигается гипотеза, что он может облегчать течение ДН через аналогичные механизмы. Результаты прогнозирования лекарственных средств в данном исследовании также предполагают, что таксифолин, β-ситостерол и эриодиктиол обладают потенциальным терапевтическим эффектом при ДН. Молекулярный докинг позволяет предсказать возможные конформации и сродство связывания, но не устанавливает взаимодействие с мишенью in vivo, биодоступность или фармакологическую активность. Эти результаты следует интерпретировать как генерирующие гипотезы, а не подтверждающие.
Предыдущие исследования сетевой фармакологии диабетической нефропатии (ДН) были в основном сосредоточены на отдельных сигнальных путях (например, AGE-RAGE, PI3K-AKT и MAPK) и не учитывали митохондриальную дисфункцию или не использовали многомодельное машинное обучение для определения приоритетных биомаркеров. В нашем исследовании представлены три методологических и биологических достижения: (1) интеграция дифференциально экспрессируемых генов (DEGs) по всему транскриптому с наборами митохондриальных генов и прогнозами взаимодействия лекарство-мишень; (2) применение четырех различных моделей машинного обучения с перекрестной валидацией по наборам данных для выявления наиболее надежных кандидатов; и (3) идентификация пероксисомальных (CAT) и моноаминоксидазных (MAOA/MAOB) путей, которые менее изучены в контексте митохондрий при ДН, в качестве потенциальных терапевтических мишеней.
Отсутствие статистически значимых изменений в экспрессии MaoB и Fabp1 в почках мышей может быть обусловлено несколькими факторами. Во-первых, два набора данных Gene Expression Omnibus (GEO), использованных для приоритизации кандидатов, были получены из образцов почек человека (целой почки и клубочков соответственно), тогда как в нашем эксперименте на животных использовалась почечная ткань мыши. Видоспецифические различия в регуляции генов могут влиять на базовые уровни экспрессии и ответ на лекарственные препараты. Во-вторых, относительно небольшой размер выборки (n = 6 в группе) мог ограничить статистическую мощность, необходимую для обнаружения умеренных величин эффекта. В-третьих, ткань была собрана через 8 недель после лечения, что могло не совпасть с оптимальным окном для обнаружения транскриптомных изменений MaoB и Fabp1, так как эти гены могут регулироваться на уровне белков или активности, а не на уровне мРНК. В-четвертых, гетерогенность ткани — между всей почкой и отдельными ее отделами — может способствовать возникновению расхождений. Дальнейшее исследование этих возможностей обосновано.
В данном исследовании был использован комплексный биоинформатический подход и методы машинного обучения для идентификации CAT, FABP1, MAOA и MAOB как потенциальных митохондриальных генов-кандидатов для LLF при диабетической нефропатии (DN). Эксперименты in vivo подтвердили, что LLF значительно повышает экспрессию CAT и MAOA в тканях почек, что указывает на то, что эти гены являются перспективными мишенями для дальнейших механистических и терапевтических исследований. Напротив, для MAOB и FABP1 наблюдались незначимые тенденции в том же направлении, что подчеркивает важность экспериментальной валидации при определении приоритетности вычислительных прогнозов. Эти результаты обосновывают проведение будущих исследований по изучению терапевтических стратегий, связанных с митохондриями, при DN.
Раскрытие информации
Авторы заявляют об отсутствии конфликта интересов.
Благодарности
Мы хотели бы выразить нашу искреннюю благодарность всем частным лицам и организациям, которые поддерживали и помогали нам на протяжении всего этого исследования. Данная работа была поддержана Национальным фондом естественных наук Китая (№ 81973486 и 82173974), научно-исследовательскими проектами Администрации традиционной китайской медицины провинции Шаньси (№ 2024ZYYA021), профильным проектом Университета китайской медицины Шаньси (№ 2026XK24), а также проектом фонда научных исследований Университета китайской медицины Шаньдун (№ KYZK2024Q13). Мы благодарим доцента Цзиньцин Ли из Университета китайской медицины Шаньси, которая провела аутентификацию ботанического материала.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| 4% раствор параформальдегида для фиксации тканей | Saiyin Biotechnology Co., Ltd. | 71033600 | |
| Абсолютный этанол | Sinopharm Chemical Reagent Co., Ltd. | 10009218 | |
| Глюкометр | Sinocare Inc. | GA-3 | |
| Набор для определения азота мочевины крови (BUN) | Nanjing Jianwei Bioengineering Institute | C03-2-1 | |
| Мыши C57BLKS/J db/db | Changzhou Cavens Experimental Animal Co., Ltd. | SCXK (Su) 2021-0013 | |
| Мыши C57BLKS/J db/m | Changzhou Cavens Experimental Animal Co., Ltd. | SCXK (Su) 2021-0013 | |
| Центрифуга | Hunan Xiangyi Laboratory Instrument Development Co., Ltd. | HI650 | |
| Хлоралгидрат | Shanghai Aladdin Biochemical Technology Co., Ltd. | 302-17-0 | |
| Cytoscape (v3.9.0) | https://cytoscape.org | ||
| База данных для предсказания модификаций m6A | http://www.cuilab.cn/sramp/ | ||
| База данных активных ингредиентов традиционной китайской медицины | http://sm.nwsuaf.edu.cn/lsp/tcmsp.php | ||
| ENCORI / Starbase | https://starbase.sysu.edu.cn/ | ||
| Gene Expression Omnibus (GEO) | https://www.ncbi.nlm.nih.gov/geo/ | ||
| Набор для окрашивания гематоксилином и эозином (HE) | Servicebio | C0105S | |
| Высокоскоростная центрифуга | Labnet, USA | C2500-R-230V | |
| Инструмент для анализа иммунной инфильтрации | https://cibersort.stanford.edu/ | ||
| Ligustri Lucidi Fructus | Sichuan Quanyirun Biotechnology Co., Ltd. | 20240506 | |
| Магнитная мешалка | Jintan Zhongtian Instrument Factory, Jiangsu | T8-1 | |
| Микроскоп | Olympus | BX53 | |
| Микротом | Leica, Germany | RM 2016 | |
| Микрообъемный спектрофотометр | Hangzhou Aosheng Instrument Co., Ltd. | Nano-300 | |
| miRNet | https://www.mirnet.ca | ||
| MitoCarta 3.0 | https://www.broadinstitute.org/mitocarta | ||
| R-пакет для интерпретации моделей | https://cran.r-project.org/package=DALEX | ||
| Платформа для молекулярного докинга | http://clab.labshare.cn/cb-dock/ | ||
| ELISA-набор для определения микроальбуминурии у мышей | Fine Test | EM0632 | |
| Тест-полоска для определения микроальбуминурии у мышей | Guangzhou Huadu Gaoerbao Biotechnology Co., Ltd. | 20211203 | |
| ELISA-набор для определения креатинина в сыворотке крови мышей | Abmart | AB5990A | |
| MSigDB | https://www.gsea-msigdb.org/gsea/msigdb/ | ||
| Термоциклер для ПЦР | Roche | Roche LightCycler 480 | |
| Программное обеспечение R (v4.2.2) + R-пакеты | https://www.r-project.org / CRAN/Bioconductor | ||
| RCSB PDB | https://www.rcsb.org | ||
| Набор для экстракции РНК | Beijing Jumei Biotech Co., Ltd. | MF-036-01 | |
| RPISeq | http://pridb.gdcb.iastate.edu/RPISeq/ | ||
| Набор для RT-qPCR | Beijing Jumei Biotech Co., Ltd. | MF949-T | |
| Салидрозид | Sichuan Quanyirun Biotechnology Co., Ltd. | 20211009 | |
| Набор для определения креатинина в сыворотке крови | Nanjing Jianwei Bioengineering Institute | C011-2-1 | |
| Виварий для SPF-животных | Shanxi University of TCM | ||
| SRAMP | http://www.cuilab.cn/sramp/ | ||
| STRING | https://cn.string-db.org/ | ||
| SwissTargetPrediction | http://www.swisstargetprediction.ch/ | ||
| TCMSP | http://sm.nwsuaf.edu.cn/lsp/tcmsp.php | ||
| Tezhi Pigan | Sichuan Quanyirun Biotechnology Co., Ltd. | 20210602 | |
| Флотирующая ванна для тканей | Wuhan Junjie | JK-6 |
Ссылки
- Thipsawat S. Early detection of diabetic nephropathy in patient with type 2 diabetes mellitus: a review of the literature. Diabetes Vasc Dis Res. 2021;18(6):14791641211058856.
- Kanwar YS, Sun L, Xie P, Liu FY, Chen S. A glimpse of various pathogenetic mechanisms of diabetic nephropathy. Annu Rev Pathol. 2011;6:395-423.
- Santulli G, et al. Prediabetes increases the risk of frailty in prefrail older adults with hypertension: beneficial effects of metformin. Hypertension. 2024;81(7):1637-43.
- Jin Q, et al. Oxidative stress and inflammation in diabetic nephropathy: role of polyphenols. Front Immunol. 2023;14:1185317.
- Alicic RZ, Rooney MT, Tuttle KR. Diabetic kidney disease: challenges, progress, and possibilities. Clin J Am Soc Nephrol. 2017;12(12):2032-45.
- Harrington JS, et al. Mitochondria in health, disease, and aging. Physiol Rev. 2023;103(4):2349-422.
- Peña FJ, et al. An integrated overview on the regulation of sperm metabolism (glycolysis-Krebs cycle-oxidative phosphorylation). Anim Reprod Sci. 2022;246:106805.
- de Mello AH, Costa AB, Engel JDG, Rezin GT. Mitochondrial dysfunction in obesity. Life Sci. 2018;192:26-32.
- Shen Y, et al. Notoginsenoside Fc, a novel renoprotective agent, ameliorates glomerular endothelial cells pyroptosis and mitochondrial dysfunction in diabetic nephropathy through regulating HMGCS2 pathway. Phytomedicine. 2024;126:155445.
- Zhang PN, et al. Mitochondrial dysfunction and diabetic nephropathy: nontraditional therapeutic opportunities. J Diabetes Res. 2021;2021:1010268.
- Zhang JL, et al. Structural characterization and protective effect against renal fibrosis of polysaccharide from Ligustrum lucidum Ait. J Ethnopharmacol. 2023;302(Pt A):115898.
- Luan R, et al. The protective effect of ethyl acetate and n-butanol fractions of wine-steamed Ligustri Lucidi Fructus on diabetic nephropathy in rats. Evid Based Complement Alternat Med. 2021;2021:6512242.
- Luan R, et al. Pharmacodynamics, pharmacokinetics, and kidney distribution of raw and wine-steamed Ligustri Lucidi Fructus extracts in diabetic nephropathy rats. Molecules. 2023;28(2):791.
- Seo HL, et al. Liqustri lucidi Fructus inhibits hepatic injury and functions as an antioxidant by activation of AMP-activated protein kinase in vivo and in vitro. Chem Biol Interact. 2017;262:57-68.
- Yan M, et al. Identification of pyroptosis-related genes and potential drugs in diabetic nephropathy. J Transl Med. 2023;21(1):490.
- Ritchie ME, et al. limma powers differential expression analyses for RNA-sequencing and microarray studies. Nucleic Acids Res. 2015;43(7):e47.
- Gustavsson EK, et al. ggtranscript: an R package for the visualization and interpretation of transcript isoforms using ggplot2. Bioinformatics. 2022;38(15):3844-6.
- Gu Z, Eils R, Schlesner M. Complex heatmaps reveal patterns and correlations in multidimensional genomic data. Bioinformatics. 2016;32(18):2847-9.
- Shannon P, et al. Cytoscape: a software environment for integrated models of biomolecular interaction networks. Genome Res. 2003;13(11):2498-504.
- Wu T, et al. clusterProfiler 4.0: a universal enrichment tool for interpreting omics data. Innovation (Camb). 2021;2(3):100141.
- Dong H, et al. Identification through machine learning of potential immune-related gene biomarkers associated with immune cell infiltration in myocardial infarction. BMC Cardiovasc Disord. 2023;23(1):163.
- Pei B, et al. The development of prediction model for cuffed tracheal tube size from the middle finger in pediatrics: a concise and feasible approach. Transl Pediatr. 2023;12(12):2222-31.
- Robin X, et al. pROC: an open-source package for R and S+ to analyze and compare ROC curves. BMC Bioinformatics. 2011;12:77.
- Robles-Jimenez LE, et al. Worldwide traceability of antibiotic residues from livestock in wastewater and soil: a systematic review. Animals (Basel). 2021;12(1):60.
- Wang Y, et al. Bioinformatics analysis combined with clinical sample screening reveals that leptin may be a biomarker of preeclampsia. Front Physiol. 2022;13:1031950.
- Livak KJ, Schmittgen TD. Analysis of relative gene expression data using real-time quantitative PCR and the 2^−ΔΔCT method. Methods. 2001;25(4):402-8.
- Klejborowska G, et al. Synthesis, anticancer activity and molecular docking studies of N-deacetylthiocolchicine and 4-iodo-N-deacetylthiocolchicine derivatives. Bioorg Med Chem. 2021;32:116014.
- Reagan-Shaw S, Nihal M, Ahmad N. Dose translation from animal to human studies revisited. FASEB J. 2008;22(3):659-61.
- An Y, Duan H. The role of m6A RNA methylation in cancer metabolism. Mol Cancer. 2022;21(1):14.
- Mazzieri A, Porcellati F, Timio F, Reboldi G. Molecular targets of novel therapeutics for diabetic kidney disease: a new era of nephroprotection. Int J Mol Sci. 2024;25(7):3969.
- Breyer MD, Susztak K. The next generation of therapeutics for chronic kidney disease. Nat Rev Drug Discov. 2016;15(8):568-88.
- Leoncini G, et al. Blood pressure reduction and RAAS inhibition in diabetic kidney disease: therapeutic potentials and limitations. J Nephrol. 2020;33(5):949-63.
- Pofi R, et al. Diabetic nephropathy: focus on current and future therapeutic strategies. Curr Drug Metab. 2016;17(5):497-502.
- Arellano Buendía AS, et al. Immunomodulatory effects of the nutraceutical garlic derivative allicin in the progression of diabetic nephropathy. Int J Mol Sci. 2018;19(10):3107.
- Zhang X, Agborbesong E, Li X. The role of mitochondria in acute kidney injury and chronic kidney disease and its therapeutic potential. Int J Mol Sci. 2021;22(20):11253.
- Liu Y, et al. DsbA-L interacting with catalase in peroxisome improves tubular oxidative damage in diabetic nephropathy. Redox Biol. 2023;66:102855.
- Zhong Y, et al. Jujuboside A ameliorates high fat diet and streptozotocin induced diabetic nephropathy via suppressing oxidative stress, apoptosis, and enhancing autophagy. Food Chem Toxicol. 2022;159:112697.
- Zhong Y, et al. Dioscin relieves diabetic nephropathy via suppressing oxidative stress and apoptosis, and improving mitochondrial quality and quantity control. Food Funct. 2022;13(6):3660-73.
- Issac PK, et al. Protective effect of morin by targeting mitochondrial reactive oxygen species induced by hydrogen peroxide demonstrated at a molecular level in MDCK epithelial cells. Mol Biol Rep. 2022;49(6):4269-79.
- Abo El-Asrar M, Ismail EAR, Elnhrawy AM, Thabet RA. Fatty acid binding protein 1 (FABP1) and fatty acid binding protein 2 (FABP2) as a link between diabetic nephropathy and subclinical atherosclerosis in children and adolescents with type 1 diabetes. J Diabetes Complications. 2023;37(3):108414.
- Gholaminejad A, Fathalipour M, Roointan A. Comprehensive analysis of diabetic nephropathy expression profile based on weighted gene co-expression network analysis algorithm. BMC Nephrol. 2021;22(1):245.
- Tanaka M, et al. Urinary fatty acid-binding protein 4 is a promising biomarker for glomerular damage in patients with diabetes mellitus. J Diabetes Investig. 2025;16(4):670-9.
- Liu Y, et al. Gastric cancer adapts high lipid microenvironment via suppressing PPARG-FABP1 axis after arriving in the lymph node. Redox Biol. 2025;85:103759.
- Borús DL, et al. Fatty acid binding protein 1 (FABP1) depletion promotes an oxidative metabolic shift in Caco-2 colorectal cancer cells. Biochim Biophys Acta Mol Cell Biol Lipids. 2025;1870(7):159661.
- Chu Y, et al. Glutathione peroxidase-1 overexpression reduces oxidative stress, and improves pathology and proteome remodeling in the kidneys of old mice. Aging Cell. 2020;19(6):e13154.
- Zhang F, et al. Mesenchymal stem cells alleviate rat diabetic nephropathy by suppressing CD103+ DCs-mediated CD8+ T cell responses. J Cell Mol Med. 2020;24(10):5817-31.
- Cao Q, et al. Renal F4/80+ CD11c+ mononuclear phagocytes display phenotypic and functional characteristics of macrophages in health and in adriamycin nephropathy. J Am Soc Nephrol. 2015;26(2):349-63.
- Zhou W, et al. The landscape of immune cell infiltration in the glomerulus of diabetic nephropathy: evidence based on bioinformatics. BMC Nephrol. 2022;23(1):303.
- Bloch K, Shichman E, Vorobeychik M, Bloch D, Vardi P. Catalase expression in pancreatic alpha cells of diabetic and non-diabetic mice. Histochem Cell Biol. 2007;127(2):227-32.
- Zhao Y, et al. Taxifolin attenuates diabetic nephropathy in streptozotocin-induced diabetic rats. Am J Transl Res. 2018;10(4):1205-10.
- Ding S, Wang W, Song X, Ma H. Based on network pharmacology and molecular docking to explore the underlying mechanism of Huangqi Gegen Decoction for treating diabetic nephropathy. Evid Based Complement Alternat Med. 2021;2021:9928282.
- Guo S, et al. Correction: Eriodictyol: a review of its pharmacological activities and molecular mechanisms related to ischemic stroke. Food Funct. 2023;14(10):4949.