Этот протокол описывает лабораторную подготовку Ni-NTA-липидных монослойных сеток аффинности для криогенной электронной микроскопии (крио-ЭМ). Эта модификация поверхности сетки с помощью пропускающей электронной микроскопии (TEM) избирательно захватывает растворимые белковые комплексы с метками полигистидина, тем самым улучшая структурное определение за счёт концентрации разбавленных образцов и удерживания частиц от границы воздух–вода.
Методическая статья
Детальная подготовка Ni-NTA-липидных монослойных сеток аффинности для крио-ЭМ-структурного анализа растворимых полигистидин-маркированных белковых комплексов
В этой статье
Краткое содержание
Аннотация
Подготовка криообразцов остаётся серьёзной технической задачей для высокоразрешающего структурного определения белковых комплексов. Взаимодействия на границе воздух-вода могут индуцировать денатурацию белка или предпочитаемую ориентацию, что ограничивает достижимое разрешение. Кроме того, разбавленные образцы или мишени с низким количеством часто демонстрируют недостаточную плотность частиц, что мешает эффективному сбору данных. Липидные сетки аффинности предоставляют эффективную стратегию для устранения этих ограничений. В этой статье представлен пошаговый протокол подготовки Ni-NTA-липидных монослойных сеток аффинности для структурного анализа растворимых полигистидин-метированных белковых комплексов. Основные этапы протокола включают приготовление липидной смеси, отливку липидной смеси на поверхность резервуарного буфера, перенос полученного монослоя липидных слоев на TEM-сетки, по желанию сушку и хранение липидных сеток до 1 недели, а также крио-погружение липидных сеток вместе с образцом. Успешная реализация этого протокола позволяет создать крио-сетки, содержащие один слой хорошо рассеянных частиц с улучшенной плотностью частиц по сравнению с сетками, подготовленными без липидного монослоя. Процедуру можно завершить в течение нескольких часов в лаборатории, оснащённой крио-вантузом, химическим вытяжным аппаратом и стандартными инструментами, обычно используемыми для подготовки криообразцов. Сочетая подробные письменные инструкции с видеодемонстрациями, эта работа направлена на повышение доступности, воспроизводимости и широкого внедрения монослойных липидных сеток Ni-NTA в сообществе крио-ЭМ.
Введение
Экспериментальные методы определения структуры белков, включая рентгеновскую кристаллографию, ядерный магнитный резонанс (ЯМР) и криогенную электронную микроскопию (криогенную электронную микроскопию), все основаны на тщательной подготовке образцов. В крио-ЭМ-анализе отдельных частиц (SPA) качество образца часто является основным фактором, ограничивающим разрешение окончательной реконструкции. По мере того как технологический прогресс в крио-трансмиссионных электронных микроскопах (крио-ТЭМ) и детекторах прямых электронов продолжает повышать эффективность сбора данных и достижимое разрешение, основная задача высокоразрешающей крио-ЭМ всё больше смещается с получения изображений на подготовку образца иих качество 1,2,3,4,5,6,7.
Традиционная подготовка с помощью криосетки обычно предполагает нанесение нескольких микролитров образца на поверхность сетки пропускной электронной микроскопии (TEM), промывание сетки фильтровой бумагой и быстрое погружение в криоген, обычно жидкий этан или смесь пропана и этана. В идеале получившаяся криосетка содержит тонкий стекловидный лёд с монодисперсными частицами. На практике достижение такого результата часто сложно и может потребовать нескольких раундов оптимизации для создания сеток, подходящих для высокоразрешающей структурной определения. Распространённые проблемы включают денатурацию белков на границе воздух-вода (AWI)8,9, предпочтительнуюориентацию 10 и низкую плотность частиц внутри ледяногослоя 11,12. Последняя проблема особенно важна для белковых комплексов, которые очень динамичны, недолговечны или трудно выделяются при микромолярных концентрациях. Разработано несколько стратегий для устранения этих ограничений, включая непрерывный ультратонкийуглерод-14 с оксидом графена13 и наношарики с покрытием стрептавидина для захвата биотинилированныхцелей 15.
Альтернативный подход предполагает модификацию сеток TEM с поверхностями аффинности, предназначенными для селективного связывания целевых молекул. Эти сетки аффинности могут концентрировать частицы на поверхности сетки, снижая воздействие AWI, тем самым улучшая распределение частиц и сохраняя целостность конструкции. Кроме того, эффект концентрации может обогащать макромолекулярные комплексы с низким содержанием из разбавленных или гетерогенных образцов.
За последнее десятилетие было разработано несколько стратегий сетки аффинитета для крио-ЭМ SPA. Эти подходы можно классифицировать по модификации поверхности сетки TEM и соответствующей стратегии функционализации. Широко используемые поверхности включают ультратонкие аморфные углеродные14 графена или оксида графена 13,16 липидных монослоев или липидные нанотрубки17,18 и двумерные кристаллы стрептавидина, выращиваемые на липидныхмонослоях 19,20. Среди этих подходов двумерные сетки аффинности стрептавидина особенно успешно обеспечивали высокоразрешающее определение структурыбелка 21,22,23,24,25,26,27,28,29 . Связанные методологии включают использование монодисперсного одночасточного стрептавидина, связанного с липидными монослоями, который недавно был применён для определения структуры комплекса поддержания мини-хромосом, связанного с двухцепочечной ДНК (dsDNA)30.
Несмотря на эти достижения, доступные и воспроизводимые методы подготовки сетки аффинитности остаются ограниченными. Каждая методика имеет уникальные требования к образцам для селективного мишенного связывания, и ни одна из них не является коммерчески доступной, что требует специализированных протоколов изготовления и химических модификаций. Эти дополнительные шаги могут значительно повысить техническую сложность рабочих процессов SPA cryo-EM. Соответственно, в этой статье представлен подробный, пошаговый протокол, предназначенный для облегчения подготовки технологии аффинитной сетки, описанной здесь. Протокол Ni-NTA липидной монослойной сетки аффинности был регулярно реализован ранееи может легко применяться для структурных исследований крио-ЭМ растворимых белковых комплексов, помеченных полигистидином, охватывающих широкий молекулярный диапазон (97–470 кДа) (см. рисунок 1). Метод совместим с концентрациями белка от 0,05 до 0,2 мг/мл в буферах без моющих средств.
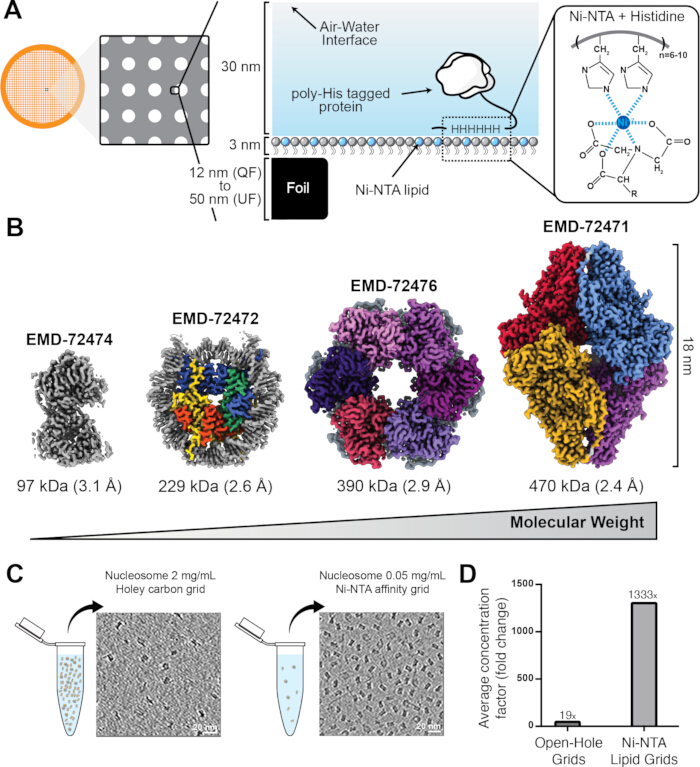
Рисунок 1: Обзор проектирования сетки липидов с аффинностью Ni-NTA. (A) Схема 20% Ni-NTA липидной крио-сетки. Криосетка показана слева с поперечным сечением липидного монослоя, иллюстрирующим размеры углеродной пленки, липидного монослоя, стекловидного льда и прикреплённых частиц (в центре). Взаимодействие между боковыми цепями гистидина и Ni-NTA-липидом показано справа. (B) Примеры белков, помеченных полигистидином, решённых с помощью липидных аффинных сеток. Карты составляются по масштабу друг относительно друга, с указанием молекулярного веса, размера, разрешения и номера присоединения EMDB. (C) Репрезентативные томографические срезы нуклеосом, маркированных полигистидином, подготовленные с использованием нелипидных крио-сетек при 2 мг/мл (справа) и Ni-NTA-липидных аффинных крио-сетек с 0,05 мг/мл (слева). (D) Средний коэффициент концентрации нелипидных крио-сетек по сравнению с Ni-NTA-липидными аффинитами крио-сетями, демонстрирующий способность липидной плёнки концентрировать белки, маркированные полигистидином, вдали от границы воздух-вода (AWI). Части этой фигуры были адаптированы из рисунков 1A, B и 2A,B в Skrajna et al.17 с разрешения Elsevier. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
Протокол
В этом исследовании не участвовали люди, клинические данные или живые животные. Реагенты и используемое оборудование перечислены в Таблице материалов.
ПРИМЕЧАНИЕ: DOPC относится к ПК 18:1 (Δ9-cis). Ni-NTA-липид относится к соотношению 18:1 DGS-NTA(Ni). Низкосолёный буфер относится к 10 мМ HEPES (pH 7,4) с 50 мМ NaCl. Буфер разбавления относится к 20 мМ HEPES (pH 7,4) с 150 мМ NaCl.
1. Стирка многоразовой стеклянной посуды (~30 мин)
- Соберите две маленькие чашки Петри, две маленькие крышки, одну объёмную колбу на 25 мл с пробкой и одну 1 мл с пробкой. Поставьте предметы рядом с раковиной.
- Растворите анионный порошок поверхностно-активного вещества в тёплой водопроводной воде в пластиковой бане объёмом 11,4 л.
- Аккуратно погрузите посуду в раствор поверхностно-активного вещества.
- При использовании нитриловых перчаток оттирайте все доступные поверхности стеклянной посуды лабораторной кистью. Тщательно смойте ультрачистой водой.
- Удалите остатки воды, аккуратно постукивая по бумажным полотенцам.
- Сушите посуду феном, пока не останется видимая влага.
ПРИМЕЧАНИЕ: Храните вымытую посуду в чистой, без пыли среде.
2. Уравновесение липидов до комнатной температуры (1–4 часа)
ПРИМЕЧАНИЕ: Если липидные запасы были подготовлены заранее, пропустите этот раздел.
- Поместите одну герметичную ампулу порошка 25 мг DOPC и одну герметичную ампулу порошка Ni-NTA липидного порошка 1 мг в химический выброс.
- Уравновесьте липиды до комнатной температуры не менее 1 часа.
3. Настройка станции очистки растворителем (~10 мин)
ВНИМАНИЕ: Хлороформ — это опасная и летучая жидкость, которая действует как депрессант центральной нервной системы, а также раздражает кожу, глаза и дыхательные дыхания. Выполните все этапы с содержанием более 100 мкл хлороформа в химической вытяжке с использованием средств индивидуальной защиты (СИЗ), включая перчатки, лабораторный халат и защиту для глаз. Снимите и выбросьте загрязнённые нитриловые перчатки в течение 1 минуты после воздействия, так как хлороформ быстро проникает в нитрил. Не смешивайте хлороформные отходы с другими потоками химических отходов.
- Соберите 99,8% хлороформа, одну бутылку с крышками для отходов, 99,5% этанола, одну бутылку с крышкой этанола, одну контейнер для острых блюд, две маленькие чашки Петри, две маленькие крышки для чашки Петри, одну большую чашку Петри с фильтрующей бумагой первого класса, три илиболее кусков самозапечатывающейся пленки размером 1–2 см² и бумажные полотенца. Разместите все материалы в химическом выхлопчике (рисунок 2).
- Промывайте чашки Петри 20–30 мл хлороформа. Выбросьте ополаскивание в соответствующую бутылку для отходов. Повторяйте с этанолом. Сушите посуду на воздухе.
- Наполните одну маленькую чашку Петри хлороформом, а другую — этанолом. Накройте обе тарелки, чтобы минимизировать испарение.
- Заполняйте чашки Петри в течение эксперимента, особенно когда хлороформ становится заметно мутным от загрязнений.
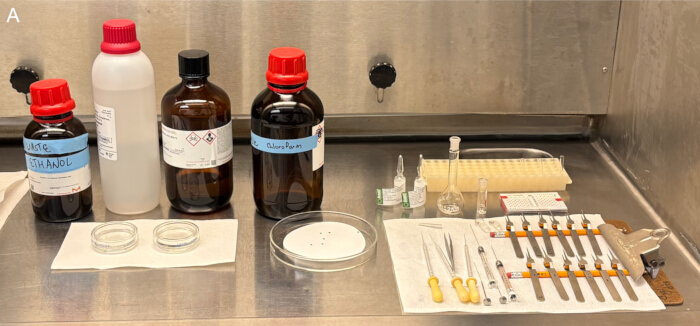
Рисунок 2: Химический вытяжка с инструментами и реагентами для приготовления липидных смесей. Изображение станции очистки растворителями и очищенных инструментов, стеклянной посуды и сеток TEM. Бутылки слева направо: отходы этанола, этанола, хлороформ и хлороформ. Чашки Петри слева направо: сетки этанола, хлороформа и TEM на фильтрующей бумаге. Дополнительные предметы слева направо и сверху вниз включают культурные пробирки в трубочной стойке, липидные ампулы, объёмные колбы с пробками, хранящиеся TEM-сетки, стеклянные пипеты с лампами, пинцет с мелким наконечником, стеклянные шприцы и антикапиллярные пинцеты с вставленными карандашными заголовками. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
4. Чистка инструментов, стеклянной посуды и TEM-сеток с помощью растворителей (~20 мин)
- Соберите одну пару пинцетов с мелким наконечником, двенадцать пар самозакрывающихся антикапиллярных пинцетов, три стеклянных пипетки, одну стеклянную шприц на 25 мкл, одну стеклянную шприц на 2,5 мкл, три стеклянные пробирки для культуры в стойке для трубок, одну объёмную колбу на 25 мл с пробкой, одну объёмную колбу на 1 мл с пробкой, двадцать до двадцати пяти резьбовых стеклянных флаконов по 3,7 мл с фенольными крышками, и двенадцать золотых сеток с отверстиями и углеродом TEM. Разместите материалы рядом со станцией очистки растворителями в вытяжной камере с химическим дымом.
ПРИМЕЧАНИЕ: В каждую пару антикапиллярных пинцетов, когда они не используются, держите проставку, например карандашную обрезку, чтобы предотвратить деформацию и смещение кончика. Выбросьте согнутые пинцеты. - Очистите пинцет, погрузив кончики в хлороформ несколько раз. Повторяйте с этанолом. Сушка на воздухе.
- Очистите стеклянные пипетки, аспирируя и раздавая хлороформ несколько раз. Повторяйте с этанолом. Сушка на воздухе.
- Очищайте шприцы, аспирируя и отпуская хлороформ, пока поршень не будет работать плавно. Повторяйте с этанолом. Снимите поршень из ствола шприца и высушите на воздухе.
- Очистите пробирки для посевов, добавляя и удаляя хлороформ несколько раз стеклянной пипеткой. Повторяйте с этанолом. Удалите остатки жидкости, перевернув трубки и аккуратно постучив ими по бумажным полотенцам. Сушка на воздухе.
- Очистите объёмные колбы, добавив хлороформ стеклянной пипеткой, задержав колбу и аккуратно перемешивайте, чтобы промыть внутренние поверхности. Выбросьте растворитель в бутылку для отходов. Повторяйте с этанолом. Оставьте фляжки открытыми и высохните на воздухе.
- Очистите флаконы, добавляя хлороформ стеклянной пипеткой, закрывая флакон и аккуратно перемешивая внутренние поверхности. Выбросьте растворитель. Повторяйте с этанолом. Оставьте флаконы открытыми и сушите на воздухе.
- Очистите сетки TEM, захватив усиленный внешний край с помощью тонкоконечного пинцета, при этом не повредив углеродную пленку. Погрузите сетки вертикально в хлороформ три раза, затем в этанол три раза.
- Положите TEM-сетки углеродной стороной вверх на фильтрующую бумагу и дайте им высохнуть на воздухе.
5. Охлаждение буфера для заклинания (>20 мин)
- Поставьте не менее 50 мл низкосолёного буфера на лёд.
- Охладите буфер минимум на 20 минут.
6. Подготовка отдельных хлороформных стоковых растворов 1 мг/мл липидов DOPC и Ni-NTA (~20 мин)
ПРИМЕЧАНИЕ: Если липидные запасы были подготовлены заранее, перейдите к разделу 8: «Подготовка смеси липидов 80% DOPC/20% Ni-NTA».
- Убедитесь, что липидные порошки DOPC и Ni-NTA сбалансированы до комнатной температуры.
ВНИМАНИЕ: Бритвы и разбитое стекло — острые опасности. Будьте осторожны при использовании бритвы и разбивающих стеклянные ампулы. - Чтобы улучшить видимость порошка DOPC, снимите этикетку ампулы, разрезав её бритвой и сняв её. Повторяйте это для липидной ампулы Ni-NTA.
- Используя обе руки и работая над контейнером для острых предметов, аккуратно вскрывайте ампулу с 25 мг DOPC. Выбросьте гриф ампулы в контейнер для остроты. Поместите ампулу рядом с хлороформной чашкой. Повторяйте это для липидной ампулы Ni-NTA 1 мг.
- Аккуратно счищайте осколки стекла с перчаток и рабочих поверхностей в контейнер для острых предметов. Немедленно замените повреждённые перчатки.
- Маркируйте одну стеклянную пипетку для хлороформа, одну для DOPC и одну для липидов Ni-NTA.
- Наполните небольшую чашку Петри, очищенную растворителем, хлороформом.
- Используйте пипетку DOPC для переноса 2–5 мл хлороформ в ампулу DOPC. Аспирируйте и раздайте раствор, пока липидный слой на нижней и боковой стороне полностью не растворится.
- Перенесите раствор DOPC в объёмную колбу объёмом 25 мл с помощью пипетки DOPC. Доведите флягу до конечного объёма 25 мл с помощью хлороформной пипетки.
- Выбросьте ампулу DOPC в контейнер для шарпсов.
- Перенесите менее 1 мл хлороформа в объёмную колбу объёмом 1 мл с помощью хлороформной пипетки.
- Используйте липидную пипетку Ni-NTA, чтобы перенести хлороформ из объёмной колбы объёмом 1 мл в липидную ампулу Ni-NTA. Аспирируйте и раздайте раствор, пока липидный слой на нижней и боковой стороне полностью не растворится.
- Переместите раствор Ni-NTA в объёмную колбу объемом 1 мл с помощью липидной пипетки Ni-NTA. Доведите колбу до конечного объёма 1 мл с помощью хлороформной пипетки.
- Выбросьте липидную ампулу Ni-NTA в контейнер для острых предметов.
7. Подготовка небольших аликвотов липидов для длительного хранения (~15 мин)
- Используйте пипетку DOPC, чтобы аликотировать 1–2 мл приклада DOPC в несколько стеклянных флаконов. Закрой и маркируй флаконы.
- Используйте липидную пипетку Ni-NTA, чтобы аликвотировать 0,2–0,5 мл липидного запаса Ni-NTA в несколько стеклянных флаконов. Закрой и маркируй флаконы.
ВНИМАНИЕ: Жидкий азот (LN2) — это криоген, который сначала может вызывать кратковременный эффект Лейденфроста, а затем вызывать сильную боль, онемение, волдыри и обморожение. Тяжесть травмы увеличивается с продолжительностью воздействия и может проходить от ожогов первой до четвёртой степени менее чем за 1 минуту. Объекты, охлаждённые LN2, могут вызывать аналогичные повреждения. Будьте внимательны к теплопроводности с помощью крио-образцов при работе с ними в LN2. Носите защитный щиток для защиты от брызг. Не погружайте руки в LN2, даже надевая криозащитные перчатки, так как запертый LN2 может оставаться в контакте с кожей. Не путайте конденсированный атмосферный водяной пар с паром LN2. LN2 увеличивается примерно на 700× в объёме при преобразовании в невидимый, беззапаховый газообразный асфиксант. Убедитесь, что все баки LN2 и дьюары хорошо вентилированы, чтобы предотвратить накопление давления. Используйте LN2 только в хорошо проветриваемых помещениях, а неиспользуемый LN2 испаряйте в химической вытяжке. - Заполните небольшой криогенный дьюар LN2.
- Снимите крышку с одного флакота с аликвотом, налейте в флакон азотный пар, закройте флакон и запечатайте её самозапечатывающейся пленкой. Повторяйте для всех флаконов аликвотов.
ПРИМЕЧАНИЕ: Храните запасы липидных аликвотов при −20 °C до 3 месяцев.
8. Подготовка липидной смеси 80% DOPC/20% Ni-NTA (~15 мин)
- Убедитесь, что липидные запасы DOPC и Ni-NTA были уравновешены до комнатной температуры.
- Маркируйте одну стеклянную культурную пробирку для DOPC, одну для липидов Ni-NTA и одну для липидной смеси.
- Используйте пипетку DOPC для переноса 50–100 мкл (2–3 капли) DOPC-бумажки в пробирку DOPC для культуры. Запечатайте трубку самозапечатывающей пленкой.
- Используйте липидную пипетку Ni-NTA, чтобы перенести 20–50 мкл (1–2 капли) липидного запаса Ni-NTA в трубку для культуры липидов Ni-NTA. Запечатайте трубку самозапечатывающей пленкой.
- Используйте шприц на 25 мкл, чтобы набрать 20 мкл DOPC аликвот в ствол шприца. Убедитесь, что в бочке нет пузырей, и при необходимости заново возьмите образец. Впустите аликвот в трубку липидной смеси. Повторите один раз для общего объёма 40 мкл.
- Очистите шприц хлороформом, затем этанолом.
- Используйте шприц, чтобы получить 10 мкл Ni-NTA липидного аликвота. Убедитесь, что в бочке нет пузырей, и при необходимости заново возьмите образец. Введите аликвот в трубку липидной смеси, доведя итоговый объём до 50 мкл.
- Смешайте липиды, аспирируя и раздавая раствор несколько раз. Запечатайте трубку самозапечатывающей пленкой.
- Очистите шприц хлороформом, затем этанолом. Сушка на воздухе.
9. Отливка липидного монослоя и перенос на сетки TEM (~10 мин)
- Убедитесь, что низкосолёный буфер охлаждён.
- Соберите одну маленькую светодиодную лампу, охлаждённый буфер с низким содержанием соли, одну буферную бутылку, реагент-этанол, одну бутылку для отходов этанола, одну бутылку касторового масла с пипеткой, липидную смесь, одну маленькую чашку Петри, одну шприц на 2,5 мкл, двенадцать пар антикапиллярных пинцетов, двенадцать ТЭМ-сеток и салфетки с низким уровнем ворса. Разместите материалы на хорошо освещённой чёрной столешнице (рисунок 3).
- Ориентируйте плоский рычаг каждой пары антикапиллярных пинцетов к углеродной стороне сетки TEM. Зажмите сетку вдоль усиленного внешнего края. Повторяйте для всех сеток.
- Наполните маленькую чашку Петри до краёв охлаждённым буфером с низким содержанием соли (рисунок 4A). Нанесите одну каплю касторового масла в центр буферной поверхности (рисунок 4B, 4C).
ПРИМЕЧАНИЕ: Быстро выполняйте следующие шаги, потому что липидный монослой постепенно отходит от центра касторового масла, снижая эффективность переноса. Колебания температуры и вибрации ускоряют этот процесс. - Используйте шприц объёмом 2,5 мкл, чтобы набрать 1 мкл липидной смеси. Опустите кончик иглы шприца к центру касторового масла. Нанесите липидную смесь в виде капли, висящей с скоса иглы чуть выше поверхности, затем аккуратно коснитесь каплей касторового масла (рисунок 4D).
- Используйте светодиодную лампу для подтверждения образования плоского липидного круга диаметром 2–3 см, окружённого кольцом касторового масла (рисунок 4E). Если эта морфология не соблюдается, сбросьте форму для отливки, сбросив буфер, промыв её реагентом этанолом, высушив с помощью салфеток с низким содержанием ворса и снова нанеся смесь с низкосолёным содержанием, касторовым маслом и липидной смесью.
ПРИМЕЧАНИЕ: Избыток касторового масла затрудняет формирование липидного монослоя, тогда как недостаток касторового масла не сдерживает монослой. Липидная текучесть зависит от температуры. Если буфер слишком холодный, липид не распространяется в монослой. Если буфер слишком тёплый, липидное и касторовое масло мигрируют к краю блюда и сжимаются. Вылейте охлаждённый буфер в чашку Петри комнатной температуры, чтобы добиться оптимального распространения липид. После каждого переноса сетки сбрасывает отливную тарелку по необходимости. Убедитесь, что чаша для отливки полностью очищена от масла, прежде чем добавлять свежий буфер. - Перенесите липидный монослой на TEM-сетку, опустив зажатую TEM-сетку к центру липидного отливка с углеродной стороной вниз. Аккуратно коснитесь всей поверхности углерода к липидному монослою, не погружая и не отпуская сетку (рисунок 4F).
- Проверьте липидную сетку для подтверждения полного покрытия жидкостью и отсутствия касторового масла (рисунок 5). Отбросьте маслянистые сетки.
- Повторите процедуру передачи для всех сеток TEM.
ПРИМЕЧАНИЕ: Зажатые липидные сетки могут высохнуть в течение 5–10 минут. Липидные решётки могут оставаться зажатыми на столе всю ночь перед регидратацией. В качестве альтернативы высушенные липидные сетки можно поместить в сетчатую коробку и хранить в десушателе при комнатной температуре до 1 недели перед повторным зажимом и регидратацией.
КРИТИЧНО: Продолжайте только если заморозка с погружением произойдёт в течение 2 часов. В противном случае отложите оставшиеся этапы.
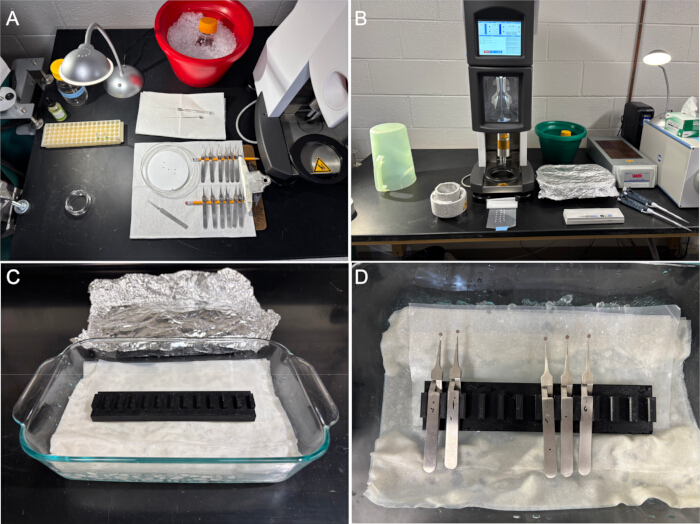
Рисунок 3: Установка на столе для литья липидных монослоев и заморозки с погружением. (A) Предметы, показанные слева направо и сверху вниз, включают бутылку с капельницей касторового масла, буферную буферную буферную лампу, светодиодную лампу, охлаждённый низкосолёный буфер на льду, трубочную стойку с липидными аликвотами и липидной смесью, стеклянный шприц объемом 2,5 мкл, пустую чашку Петри, чашку Петри с ТЭМ-сетками на фильтрующей бумаге, пинцет с мелким наконечником и антикапиллярные пинцет с вставленными прокладками. (B) Представленные предметы включают охлаждённый, увлажнённый крио-плунжер, собранный крио-плунжер, ведро со льдом с буфером и образцом для разбавления, камера для влажности, покрытая фольгой, герметичная самозапечатывающая пленка с линиями капель буфера разбавления, пинцет для крио-плунжера и микропипетки. (C) Настольная камера для влажности с льдом, влажными бумажными полотенцами, самозапечатывающейся пленкой и держателем для пинцета на столе. (D) Липидные решётки, зажатые антикапиллярными пинцетами внутри камеры влажности стола. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
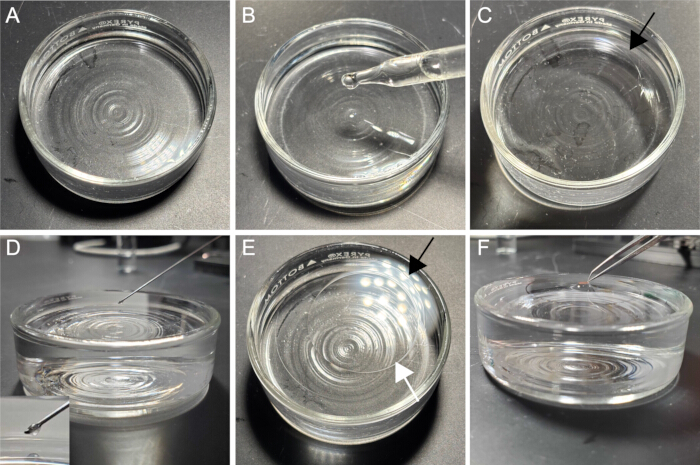
Рисунок 4: Отливка липидного монослоя и перенос его на TEM-сетки. (A) Чашка для литья, наполненная буфером с низким содержанием соли. (B) Разливание 1 капли касторового масла в чашу для литья. (C) Круг касторового масла, плавающий на поверхности буфера; Чёрная стрелка указывает границу касторового масла. (D) Игла для шприца расположена по центру над касторовым маслом с фаской вниз; 1 мкл капли липидной смеси, подвешенной на кончике иглы. (E) Липидная смесь, размещённая в кольце из касторового масла; Чёрная стрелка указывает границу касторового масла, а белая — границу липидного монослоя. (F) Перенос липидного монослоя на углеродную сторону TEM-сетки. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
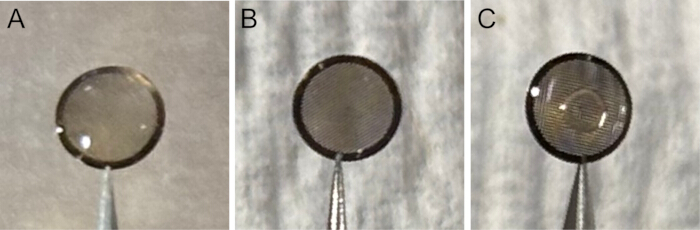
Рисунок 5: Примеры TEM-сеток после переноса липидного монослоя .(A) Успешный липидный перенос с буфером, распределённым по всей поверхности сетки. (B) Успешный липидный перенос после сушки на воздухе в течение 1 часа. (C) Липидный перенос, загрязнённый касторовым маслом, видимый в центре сетки. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
10. Инкубация бумаги для блот в крио-плунжере при 4 °C и влажности 100% (>1 ч)
- Установите камеру влажности крио-плунжера на 4 °C и 100% влажности.
- Наклейте промокающие подкладки для промокания матерской бумагой. Инкубировать бумагу для промок при высокой влажности не менее 1 часа.
11. Охлаждение буфера разбавления (~20 мин)
- Поставьте на лёд не менее 20 мл буфера разбавления.
- Охладите буфер минимум на 20 минут.
12. Инкубационный буфер разбавления на липидных сетках (>15 мин)
- Соберите одну форму для выпечки, одну версию 3D-печатного держателя для пинцета (дополнительные файлы 1–3), одну полоску самозапечатывающей пленки шириной 25–35 см, одну полоску алюминиевой фольги шириной 35–45 см шириной 30,4 см, лёд и бумажные полотенца. Разместите материалы рядом с крио-вантузом (рисунок 3).
- Поставьте форму для запекания вдоль рядом с крио-вантузом. Наполните блюдо наполовину льдом, затем накройте бумажными полотенцами. Слегка смочите бумажные полотенца водопроводной водой.
- Положите полоску самозапечатывающейся пленки вдоль на дальней половине формы прямо над влажными бумажными полотенцами.
- Поставьте держатель для пинцета, напечатанный 3D, вдоль центра формы для выпечки, прямо на влажные бумажные полотенца и самозапечатывающуюся пленку.
- Накройте форму для выпечки алюминиевой фольгой (рисунок 3).
- Заменяйте растаявший лёд на протяжении всего эксперимента.
- Разместите зажатые липидные сетки в камере влажности стола поверх самозапечатывающейся плёнки так, чтобы липидная сторона была обращена вверх (рисунок 3).
ПРИМЕЧАНИЕ: Избегайте перемещения настольной камеры для влажности и прикосновения к липидным решёткам наконечником пипетки, так как такие действия могут сместить решётку. Уберите любые решётки, которые попадут на самозапечатывающуюся плёнку, если решётки остаются неповреждёнными. - Нанесите 2 мкл буфера разбавления образца на каждую липидную поверхность. Накройте камеру фольгой, чтобы минимизировать испарение.
- Поддерживайте гидратацию каждой липидной сетки, применяя дополнительно 2 мкл буфера разбавления, когда на сетке остаётся менее 1 мкл жидкости.
- Уравновесьте гидратированные липидные сетки в охлаждённой камере влажности стола минимум на 15 минут.
13. Инкубация образца на липидных сетках (>15 мин)
- Убедитесь, что липидные сетки были увлажнены с буфером разбавления не менее 15 минут.
- Убедитесь, что буфер разбавления запаса полностью охлаждён.
- Нанесите 3 мкл образца с меткой полигистидина на каждую гидратированную липидную сетку. Накройте камеру фольгой, чтобы минимизировать испарение.
- Поддерживайте гидратацию каждой липидной сетки, добавляя дополнительно 2 мкл буфера разбавления, когда на сетке остаётся менее 2 мкл жидкости.
- Инкубировать сетки минимум 15 минут.
14. Подготовка крио-плунжерного горшка (>15 мин)
- Соберите крио-плунжерный горшок, включая шпиндель, используемый для косвенного охлаждения латунного стакана.
- Промаркируйте коробки с крио-сеткой и поместите их внутрь крио-плунжера.
- Заполните крио-плунжер LN2. Накройте кастрюлю, чтобы минимизировать загрязнение льдом.
- Поддерживайте уровень LN2 выше криосеточных коробок, периодически добавляя дополнительные LN2.
- Охладите металлические компоненты и крио-сеточные коробки до температуры LN2 минимум на 10 минут.
ВНИМАНИЕ: Жидкий пропан и этан — это высоковоспламеняющиеся криогены, вызывающие травмы, похожие на LN2, но не обладающие заметным эффектом Лейденфроста. В результате контакт может привести к немедленным и стойким травмам. Избегайте брызг во время обращения. Если пропан-этан загрязняет LN2, обращайтесь с загрязнённым LN2 с теми же повышенными мерами предосторожности, что и с жидким пропаном и этаном. После использования поместите крио-вантуз в химический вытяжку, чтобы криогены безопасно испарились. - Наполните латунный стакан жидкой смесью пропана и этана в соотношении 60:40.
- Уравновесить смесь пропана и этана до температуры LN2 не менее 5 минут.
15. Замораживание липидных сеток (~1 ч)
- Убедитесь, что бумага для промокателей выравнилась при температуре 4 °C и влажности 100% не менее 1 часа.
- Убедитесь, что липидные сетки инкубировали образец с полигистидином не менее 15 минут.
- Убедитесь, что температура пропана-этана ниже −190 °C, затем снимите шпиндель.
- Нанесите три капли буфера разбавления по 50 мкл по линии на закреплённый кусок самозапечатывающейся плёнки толщиной 10см 2 см (рисунок 3).
- Промыйте одну зажатую липидную сетку, последовательно касаясь липидной поверхности к каждой капле буфера разбавления и выпуская сетку на последней капле.
- Используйте крио-плунжерные пинцеты, чтобы подобрать плавающую липидную сетку. Вставьте сетку в крио-вантуз.
- Впитывайте использованные капли буфера с помощью безворсовой салфетки и выбрасывайте из них.
- Примените следующие настройки крио-плунжера к липидной сетке перед погружением в смесь пропана и этана: время ожидания — 0 с; полный пятно — 1; сила пятна −10; Время блот — 4 секунды; и время слива — 0 секунд.
- Перенесите крио-сетку из стакана с пропаном и этаном в свободный слот в криосетке.
- Повторите процедуру заморозки для всех липидных сеток.
Результаты
Для иллюстрации ожидаемых результатов этого протокола была проведена серия экспериментов. Отверстно-углеродные сетки R1.2/1.3 TEM с монослоями липидов Ni-NTA и без них, были заморажены с образцом и сфотографированы с помощью крио-TEM мощностью 200 кэВ. Для каждого условия было изображено 3–9 квадратов сетки. Толщина льда варьировалась в зависимости от отдельных сеток и квадратов сетки, при этом оптимальные области содержали тонкий стекловидный лёд и хорошо вложенные частицы, что подтверждалось характерными кольцами Тона в быстром преобразовании Фурье (FFT)31.
В первом эксперименте для демонстрации оптимальной подготовки и ожидаемой эффективности 20% Ni-NTA-монослойных монослойных липидных сеток (saGS) использовалась очищенная полигистидин-метированная Staphylococcus aureus glutamate synthase (Рисунок 6). Липидные монослои передавались на золотые сетки TEM. Липидные сетки сушили и хранили в десикаторе в течение недели перед регидратацией. После полной регидратации на сетках инкубировали saGS с концентрацией 0,1 мг/мл в течение 15–30 минут для обеспечения связывания частиц. Частицы saGS со средним количеством частиц 274 частицы на микрофотографию (N = 7), выглядели равномерно распределенными по липидному монослою с минимальным или отсутствующим перекрытием.
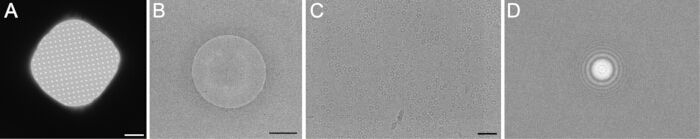
Рисунок 6: Репрезентативные крио-ТЕМ-изображения сетки липидов с 20% Ni-NTA. Липидный монослой сушился в течение 1 недели и регидратировался с низкосолёным буфером, как описано в протоколе. Репрезентативные изображения были собраны при минимальном (A), промежуточном (B) и высоком (C) увеличении, при этом соответствующие FFT отображались в (D). Частицы, со средним содержанием 274 частицы на микрофотографию (N = 7), равномерно распределяются по поверхности сетки в слое тонкого стекловидного льда. Масштабные планки: 10 мкм, 500 нм и 50 нм. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
Во втором эксперименте образцы saGS с наложением частиц использовались для демонстрации влияния липидных сеток на агрегацию белков (рисунок 7). Были изучены четыре крио-сеточных условия: saGS при 1,0 мг/мл на сетках из медной сетки без липидов, saGS 0,1 мг/мл на сетках из медной сетки без липидов, saGS 0,1 мг/мл на сетках из золотой сетки с никогда не высыхающим липидом и saGS при 0,1 мг/мл на сетках из золотой сетки с липидами, высушенными в течение недели перед регидратацией. Липидные сетки демонстрировали более высокую плотность частиц — в среднем 40 или 46 частиц на микрофотографию (N = 12) по сравнению с нелипидными сетками, подготовленными с той же концентрацией белка, которые в среднем составляли 2 частицы на микрофотографию (N = 12). Эти результаты показали явный эффект концентрации по сравнению с немодифицированными сетками TEM, подтверждая, что монослой липидов Ni-NTA с 20% остался целым. Хотя наложение частиц всё ещё наблюдалось, частицы на липидных сетках демонстрировали минимальное перекрытие и оставались в похожей фокальной плоскости. В отличие от этого, частицы на нелипидных сетках находились на существенно разных фокальных глубинах, при этом агрегированные частицы наблюдались при более высокой концентрации 1 мг/мл.
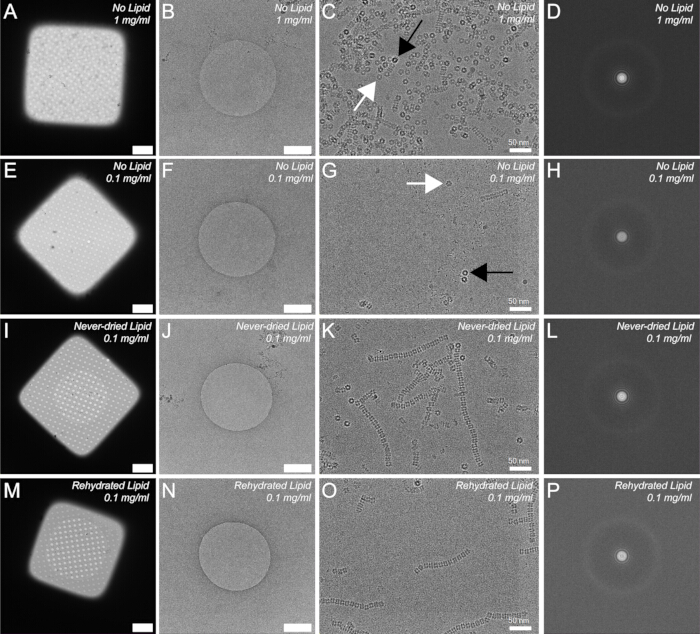
Рисунок 7: Крио-ТЭМ-изображения сложенных полигистидин-метированных saGS на 20% Ni-NTA-липидных и нелипидных сетках. (A–D) Нелипидная сетка, подготовленная с saGS при 1,0 мг/мл, показана при низком (A), промежуточном (B) и высоком (C) увеличении, с соответствующим FFT (D). (E–H) Нелипидная сетка, подготовленная с saGS при 0,1 мг/мл. (I–L) Никогда не высушенная липидная сетка, приготовленная с saGS в концентрации 0,1 мг/мл.
(М–П) Гидратированная липидная сетка, подготовленная с saGS в 0,1 мг/мл. Плотность частиц на нелипидных сетках была ниже, чем на соответствующих липидных сетках аффинности, составляя в среднем 2 частицы на микрофотографию по сравнению с 46 и 47 частицами на микрофотографию соответственно (N = 12). Чёрные стрелки указывают на сильно расфокусированные частицы. Белые стрелки указывают на частицы, близкие к фокусу. Масштабные планки: 10 мкм, 500 нм и 50 нм. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
В третьем эксперименте липидные сетки подвергались воздействию N-додецил-β-D-мальтозида (DDM). В качестве образца использовался очищенный SAGS с концентрацией 0,1 мг/мл. Моющее средство нарушило липидный монослой. Липидные крио-сетки с 0,05% DDM в буфере (рисунок 8) демонстрировали зазоры в липидном монослое, липидные мицеллы на поверхности сетки и сниженную плотность частиц относительно контролируемого состояния.
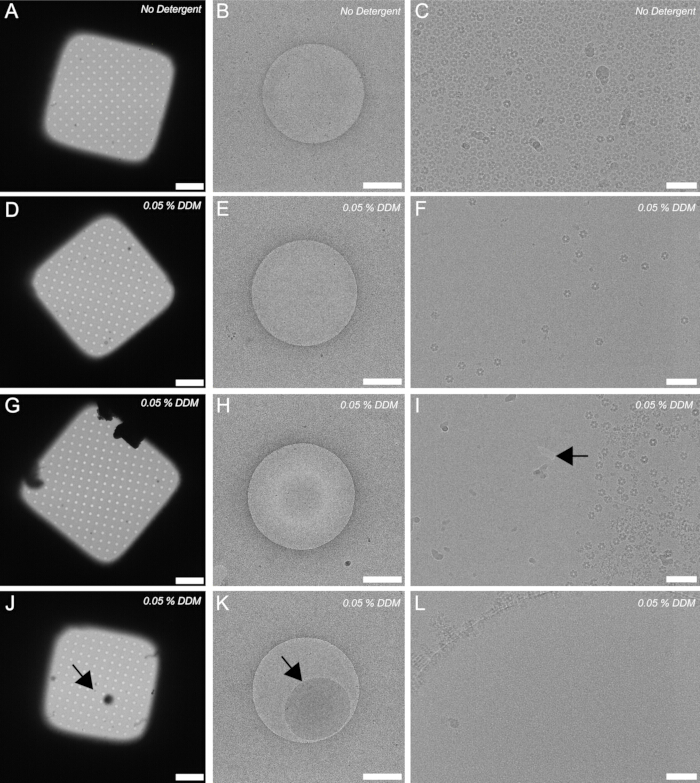
Рисунок 8: Репрезентативные изображения 20% Ni-NTA-липидных сеток, подвергшихся воздействию 0,05% N-додецил-β-D-мальтозида (DDM ).Крио-сетки снимались с минимальным, промежуточным и высоким увеличением. (A–C) Изображения сетки липидного аффинитета с Ni-NTA 20%, регидратированной с буфером разбавления образца. (Д–Л) Изображения сетки липидного аффинитета с Ni-NTA 20%, регидратированной буфером разбавления образца, содержащим 0,05% DDM. плотность частиц saGS была ниже на TEM-сетках, обработанных моющими средствами. Стрелка на панели I указывает на отверстие в липидном монослое. Стрелки на панелях J и K указывают на одну и ту же липидную мицеллу. Масштабные планки: 10 мкм, 500 нм и 50 нм. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
Толщина льда варьировалась как между сетками, так и внутри отдельных квадратов сетки. В некоторых случаях лёд был слишком тонким или отсутствовал на участках квадрата сетки (рисунок 9A), был неравномерно распределен (рисунок 9B) или чрезмерно толстым для изображения (рисунок 9C). В некоторых регионах толщина льда была меньше диаметра белкового комплекса. Сухие участки или области с очень тонким льдом, определяемые как тоньше диаметра частицы, следует избегать при сборе данных, поскольку белки в этих областях, вероятно, денатурированы. Основываясь на опыте использования этого протокола, примерно 25–50% криосеток должны содержать достаточно тонкий лёд, подходящий для сбора данных SPA на нескольких квадратах сетки. Толщину льда можно оптимизировать, регулировав время протирания или изменяя итоговый объём буфера на сетке перед заморозкой при погружении.
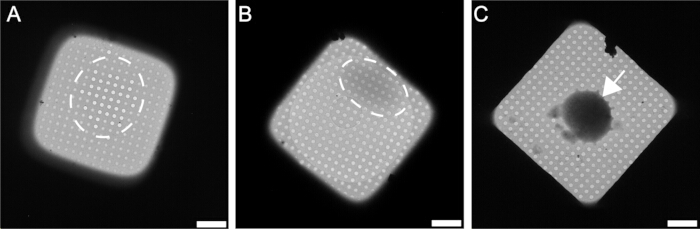
Рисунок 9: Примеры субоптимальных сеток аффинности Ni-NTA. Репрезентативные крио-TEM-микрофотографии неоптимальных крио-сетек с аффинностью Ni-NTA 20%. (A) Липидная пленка отсутствует в центре квадрата сетки, что обозначено белым пунктирным кругом вокруг пустых отверстий. (B) Квадрат сетки, содержащий неровный лёд, с более толстым льдом рядом с областью, обозначенной белым пунктирным кругом. (C) Квадрат сетки, содержащий лёд, слишком толстый для съёмки, обозначенный стрелкой. Шкалы: 10 мкм. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
При правильной подготовке сетки аффинности содержат липидный монослой с преимущественно одним слоем частиц, адсорбированных к пленке. Плотность частиц, как ожидается, превысит наблюдаемую на нелипидных сетках, подготовленных с использованием аналогичных концентраций образцов. Неспособность переносить липидный монослой на TEM-сетку приводит к появлению крио-сеток с пустыми отверстиями (рисунок 10A) или отверстиями с стекловидным льдом, не имеющим липидной пленки и с малым количеством или отсутствующими частицами (рисунок 10B, C).
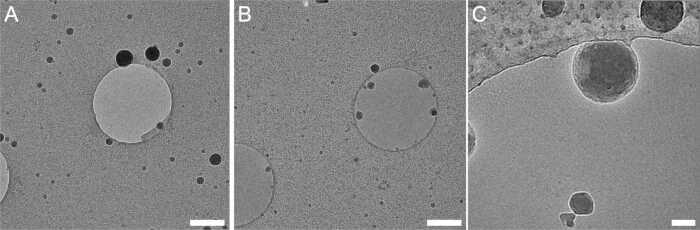
Рисунок 10: Пример TEM-сетки без липидного монослоя. Крио-ТЭМ-изображения, показывающие неудачный перенос липидного монослоя на поверхность сетки TEM. Нуклеосомы человека с полигистидин-метками адсорбируются на углеродной пленке. (A) Область квадрата сетки, содержащая пустые отверстия. (B) Разные области одной сетки, содержащие отверстия, заполненные стекловидным льдом, но без видимых частиц или липидной плёнки. (C) изображение с большим увеличением отверстия без липидной плёнки, но содержащее стекловидный лёд; Частицы видны на толстой углеродной опорной пленке. Масштабные планки: 1 мкм и 50 нм. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
Дополнительный файл 1: Инструкции по 3D-печати держателя пинцета. Этот дополнительный файл содержит подробные инструкции по 3D-печати индивидуальных держателей для пинцета, используемых при гидратации липидной сетки и инкубации образцов. Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительный файл 2: STL-файл для 3D-печати для держателя для настольного пинцета. Этот дополнительный файл содержит стереолитографию (STL) файл, необходимый для 3D-печати; версия с держателем пинцета, используемая для инкубации гидированных липидных сеток в настольной камере влажности (рисунок 3C, 3D). Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительный файл 3: STL-файл для 3D-печати, держатель для пинцета с крио-плунжером. Этот дополнительный файл содержит стереолитографию (STL), необходимый для 3D-печати — версия держателя пинцета, используемая для инкубации гидратированных липидных сеток в камере влажности крио-плунжера. Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Обсуждение
В этом исследовании представлен подробный пошаговый протокол подготовки Ni-NTA-липидных монослойных сеток аффинности и выделяется важные практические аспекты и преимущества этого подхода для рутинного крио-ЭМ-структурного определения растворимых полигистидин-метированных белковых комплексов. Несколько этапов протокола технически сложны и подвержены ошибкам пользователя, особенно для новых пользователей.
Модификация монослоя липидов может быть завершена примерно за 2 часа, а полученные липидные сетки можно высушить и сохранить для последующего использования. С дополнительными 2 часами и доступом к крио-плунжеру можно подготовить крио-сетки. Соответственно, этот метод хорошо подходит для многопользовательских объектов и крио-ЭМ-лабораторий. С помощью этого подхода были определены структуры растворимых белковых комплексов массой от 97 до 470 кДа с разрешением ниже 3Å 17. Эффективное связывание с Ni-NTA-липидным монослоем требует компонента с полигистидином, содержащий гибкий связующий элемент. Хотя для некоторых образцов, включая нуклеосомы и глутаматсинтазу, наблюдалась определённая степень предпочтительной ориентации относительно монослоя, эти ориентации не ограничивали разрешение и не добавляли артефакты растяжения в окончательные реконструкции. Взаимодействие между монослоем липидов Ni-NTA и белками, маркированными полигистидином, способствует эффективному захвату частиц на поверхности сетки TEM. Следовательно, структурный анализ может проводиться с использованием относительно разбавленных образцов и стандартных конвейеров крио-ЭМ-обработки, таких как RELION и cryoSPARC, без дополнительных этапов подготовки образцов.
Аккуратное обращение с TEM-сетками и подготовка липидных смесей необходимы для воспроизводимых результатов. Липидные монослои очень чувствительны к загрязнителям, включая остаточные моющие средства, масла и пыль. Поэтому тщательная очистка всей посуды крайне важна. Настоятельно рекомендуется мыть анионным поверхностно-активным веществом, затем интенсивное промывание ультрачистой водой и тщательно сушить на воздухе перед последующим промывкой хлороформом и этанолом непосредственно перед использованием.
Протокол использует сетки TEM из золотой сетки, поскольку они не реагируют на широкий спектр условий выборки и буфера. Для размещения различных образцов буферы, используемые при липидном отливке, регидратации по липидной сетке, инкубации образцов и промывке перед погружением в заморозку, могут быть изменены по необходимости. Буферы для образцов, содержащие глицерин или другие добавки, могут быть удалены на этапе промывки перед витрификацией. Буферы, содержащие дитиотрейтол (ДТТ), следует избегать, поскольку ДТТ снижает уровеньникеля-32 и мешает связыванию между белками, помеченными полигистидином, и монослоем липидов Ni-NTA. Моющие средства также не рекомендуются, поскольку 0,05% N-додецил-β-D-мальтозид (DDM) нарушает липидный монослой, а другие детергенты, обычно используемые для мембранно-белковых структурных исследований, ожидаются с аналогичными эффектами (рисунок 8D–L). Нарушают ли более низкие концентрации моющих средств или детергенты с низкой концентрацией мицелл аналогичным образом целостность монослоя.
Самая технически требовательная часть протокола — это отлив и перенос липидного монослоя на TEM-сетку. Этот этап очень чувствителен к температуре, вибрациям и технике обращения. Оптимальные результаты были получены путём литья липидных пленок при комнатной температуре (~22 °C) с использованием предварительно охлаждённого буфера. Механические нарушения следует минимизировать, так как вибрации могут дестабилизировать монослой. Соответственно, чашка Петри должна оставаться неподвижной после липидного отлива. Во время переноса монослой касторового масла и липидов могут постепенно мигрировать по поверхности буфера, увеличивая вероятность перемещения касторового масла вместо липидного монослоя (рисунок 5C). Правильное заполнение чашки Петри и тщательный контроль ориентации сетки необходимы для обеспечения полного и равномерного переноса монослой. Неспособность переносить липидную пленку на поверхность сетки TEM приводит к образованию гидрофобной поверхности сетки, из-за чего буфер слипывается на углеродной поверхности.
В этом исследовании оценивался только крио-вантуз с двусторонним протиранием. Однако другие методы промокания, включая ручное или одностороннее, ожидается, что дадут сопоставимые результаты при условии, что липидная пленка останется неповреждённой. При адаптации этого протокола липидные сетки следует обрабатывать аналогично стандартным TEM-сеткам, с учетом нескольких важных соображений. Следует избегать плазменной очистки, а липидные сетки должны оставаться непрерывно гидратированными не менее 15 минут до нанесения образца. Образцы следует инкубировать на липидной сетке минимум 15 минут для адсорбции поверхности, а затем контактировать с сеткой хотя бы одной каплей буфера разбавления перед протиранием для нормализации конечного объёма буфера на поверхности сетки. Поддержание гидратации монослоя липидов Ni-NTA на протяжении всей инкубации образца крайне важно, так как испарение может увеличить локальную концентрацию соли и потенциально изменить структуру белка или комплексную структуру. Более длительное время инкубации (>30 мин) может увеличить плотность частиц на сетке, хотя длительную инкубацию следует сбалансировать с возможной деградацией образца. Рекомендуется использовать жидкую смесь пропана и этана в соотношении 60:40, описанную в этом протоколе, но не строго обязательную. Альтернативные соотношения пропана и этана или чистый этан также могут использоваться вместе с крио-плунжером, оснащённым системой нагрева этана, чтобы поддерживать криоген в жидком состоянии на протяжении всего эксперимента. Наконец, распределение частиц зависит от толщины льда. В некоторых случаях частицы могут быть исключены из областей с особенно тонким льдом, особенно близко к центру квадратов сетки. Условия блотинга, возможно, потребуется оптимизировать для каждого витрификационного устройства. В целом, сетки аффинности липидных монослоёв Ni-NTA обеспечивают надёжную и доступную стратегию для структурного определения растворимых белковых комплексов, маркированных полигистидином. При тщательной реализации пошаговой процедуры, описанной здесь, этот метод легко интегрируется в стандартные рабочие процессы крио-EM.
Раскрытие информации
Ни одного.
Благодарности
Авторы благодарят Калеба Фишера, Роба Макгинти, Николаса Райта, Блейка Фордайса и Брайана Рота из Университета Северной Каролины в Чапел-Хилл за предоставление буферов, использованных в этих экспериментах. Core CryoEM Facility UNC-Chapel Hill и Комитет по адвокации основных объектов UNC отмечены технической и финансовой поддержкой. Центр биомолекулярной криоэлектронной микроскопии кафедры химии и биохимии Калифорнийского университета в Санта-Крузе (RRID: SCR_021755) отмечен за техническую помощь. Эта работа была поддержана Национальным институтом рака при Национальных институтах здоровья под номером P30CA016086 и грантом Национального института здоровья, R35GM150960 присуждённому Ричарду У. Бейкеру.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| 1 mL volumetric flask with stopper | Avantor | 10124-382 | VWR Volumetric Flask, clear glass, Class A, serialized, with penny-head glass stopper, 1 mL |
| 2.5 µL glass syringe | Hamilton | 7632-01 | 2.5 Microliter Syringe, removable needle (RN), no needle included |
| 3.7 mL threaded glass vial with phenolic cap | Fisher Scientific | 03338A | Fisherbrand Class B clear glass threaded vial with attached closure, 3.7 mL |
| 4-slot cryo-grid box | MiTeGen | 71166-10 | Cryo Grid Box Round With Lid |
| 11.4 L plastic tub | Sterilite 12 qt dishpan, multi-purpose plastic wash tub | ||
| 25 µL glass syringe | Hamilton | 80430 | 25 Microliter Syringe, removable needle (RN), includes 22s gauge, 52 mm curved beveled needle |
| 25 mL volumetric flask with stopper | Avantor | 10123-994 | VWR Volumetric Flask, clear glass, Class A, serialized, with penny-head glass stopper, 25 mL |
| 99.5% pure ethanol | Thermo Fisher Scientific | 615090040 | Ethanol, 99.5%, ACS reagent, absolute, 200 proof |
| 99.8% pure chloroform | Fisher Scientific | AA32614K2 | Chloroform, ACS, 99.8+% |
| Aluminum foil | Walmart | Aluminum foil, 30.4 cm width | |
| Anionic surfactant powder | Fisher Scientific | 50-997-492 | Electron Microscopy Sciences Alconox anionic powder detergent, 4 lb |
| Baking dish | Walmart | Pyrex 232-D 3-quart deep glass baking dish | |
| Blot paper | Ted Pella | 47000-100 | Standard Vitrobot filter paper, Ø55/20 mm, Grade 595 |
| Bottle of castor oil with dropper | Walmart | Organic castor oil with dropper, 1 fl oz | |
| Cryo-plunger | Thermo Fisher Scientific | 1151972 | FEI Vitrobot Mark IV |
| DOPC | Avanti Polar Lipids | 850375P-25mg | 18:1 (Δ9-Cis) PC (DOPC), 1,2-dioleoyl-sn-glycero-3-phosphocholine powder, 25 mg |
| Fine-tip tweezers | Ted Pella | 505 | DUMONT Biology Grade Tweezers, style 5, polished stainless steel |
| Glass culture tube | Fisher Scientific | 14958A | Fisherbrand disposable flint glass tube with plain end, 1 mL |
| Glass pipet | Fisher Scientific | 13-678-20A | Fisherbrand disposable borosilicate glass Pasteur pipet, 14.6 cm |
| Gold-mesh holey-carbon TEM grid | Quantifoil | N1-C14nAu30-01 | QUANTIFOIL R 1.2/1.3 Au 300 mesh |
| Grade 1 filter paper | Sigma-Aldrich | WHA1001150 | Whatman qualitative filter paper, Grade 1, 150 mm diameter |
| Large petri dish with cover | Fisher Scientific | 08747E | Corning PYREX reusable petri dish with cover, 150 mm diameter, 15 mm height |
| Low-lint tissues | Fisher Scientific | 06-666 | Kimtech Science Kimwipes delicate task wipers, 1-ply |
| Ni-NTA lipid | Avanti Polar Lipids | 790404P-5mg | 18:1 DGS-NTA(Ni), 1,2-dioleoyl-sn-glycero-3-[(N-(5-amino-1-carboxypentyl)iminodiacetic acid)succinyl] (nickel salt) |
| Pipet bulb | Fisher Scientific | S32325 | Fisherbrand rubber bulb, natural, 2 mL |
| Reagent ethanol | Sigma-Aldrich | 362808-1L | Reagent alcohol ≥89% (GC), contains 5% isopropyl alcohol and 5% methyl alcohol |
| Self-closing anti-capillary tweezers | Ted Pella | 510-5 | DUMONT anti-capillary reverse tweezers, Biology Grade, style 5ACN, stainless steel |
| Self-sealing film | Fisher Scientific | S47529 | Parafilm M wrapping film, 10 cm |
| Small petri dish with cover | Fisher Scientific | 08747A | Corning PYREX reusable petri dish with cover, 60 mm diameter, 15 mm height |
| Syringe needle | Hamilton | 7803-01 | 27 gauge small-hub removable needle (RN), beveled, 75 mm length, 45° angle |
Ссылки
- Chan, L. M., et al. High-resolution single-particle imaging at 100–200 keV with the Gatan Alpine direct electron detector. J Struct Biol. 216 (3), 108108(2024).
- Efremov, R. G., Stroobants, A. Coma-corrected rapid single-particle cryo-EM data collection on the CRYO ARM 300. Acta Crystallogr D Struct Biol. 77 (Pt 5), 555-564 (2021).
- Frechin, L., et al. High-resolution cryo-EM performance comparison of two latest-generation cryo electron microscopes on the human ribosome. J Struct Biol. 215 (1), 107905(2023).
- Herzik, M. A. Jr, Wu, M., Lander, G. C. High-resolution structure determination of sub-100 kDa complexes using conventional cryo-EM. Nat Commun. 10 (1), 1032(2019).
- Karia, D., et al. Sub-3 Å resolution protein structure determination by single-particle cryo-EM at 100 keV. Structure. 33 (10), 1717-1727.e4 (2025).
- McMullan, G., et al. Structure determination by cryoEM at 100 keV. Proc Natl Acad Sci U S A. 120 (49), e2312905120(2023).
- Peng, R., et al. Characterizing the resolution and throughput of the Apollo direct electron detector. J Struct Biol X. 7, 100080(2023).
- D’Imprima, E., et al. Protein denaturation at the air-water interface and how to prevent it. eLife. 8, (2019).
- Noble, A. J., et al. Routine single-particle cryoEM sample and grid characterization by tomography. eLife. 7, (2018).
- Tan, Y. Z., et al. Addressing preferred specimen orientation in single-particle cryo-EM through tilting. Nat Methods. 14 (8), 793-796 (2017).
- Snijder, J., et al. Vitrification after multiple rounds of sample application and blotting improves particle density on cryo-electron microscopy grids. J Struct Biol. 198 (1), 38-42 (2017).
- Cianfrocco, M. A., Kellogg, E. H. What could go wrong? A practical guide to single-particle cryo-EM: From biochemistry to atomic models. J Chem Inf Model. 60 (5), 2458-2469 (2020).
- Cheng, H., et al. Dual-affinity graphene sheets for high-resolution cryo-electron microscopy. J Am Chem Soc. 145 (14), 8073-8081 (2023).
- Yu, G., Li, K., Jiang, W. Antibody-based affinity cryo-EM grid. Methods. 100, 16-24 (2016).
- Arimura, Y., Konishi, H. A., Funabiki, H. MagIC-Cryo-EM, structural determination on magnetic beads for scarce macromolecules in heterogeneous samples. eLife. 13, (2025).
- Zhao, Q., et al. An immobilized antibody-based affinity grid strategy for on-grid purification of target proteins enables high-resolution cryo-EM. Commun Biol. 7 (1), 715(2024).
- Skrajna, A., et al. Nickel-NTA lipid-monolayer affinity grids allow for high-resolution structure determination by cryo-EM. J Struct Biol. 217 (4), 108253(2025).
- Esfahani, B. G., et al. SPOT-RASTR—A cryo-EM specimen preparation technique that overcomes problems with preferred orientation and the air/water interface. PNAS Nexus. 3 (8), pgae284(2024).
- Cookis, T., et al. Streptavidin-affinity grid fabrication for cryo-electron microscopy sample preparation. J Vis Exp. (202), e66197(2023).
- Han, B. G., et al. Long shelf-life streptavidin support-films suitable for electron microscopy of biological macromolecules. J Struct Biol. 195 (2), 238-244 (2016).
- Song, J., et al. Structural basis for inactivation of PRC2 by G-quadruplex RNA. Science. 381 (6664), 1331-1337 (2023).
- Cookis, T., et al. Structural basis for the inhibition of PRC2 by active transcription histone posttranslational modifications. Nat Struct Mol Biol. 32 (2), 393-404 (2025).
- Gillies, J. P., et al. Structural basis for cytoplasmic dynein-1 regulation by Lis1. eLife. 11, (2022).
- Sauer, P. V., et al. Structural and quantum chemical basis for OCP-mediated quenching of phycobilisomes. Sci Adv. 10 (14), eadk7535(2024).
- Sauer, P. V., et al. Activation of automethylated PRC2 by dimerization on chromatin. Mol Cell. 84 (20), 3885-3898.e8 (2024).
- Ciapponi, M., et al. Structural basis of the histone ubiquitination read-write mechanism of RYBP-PRC1. Nat Struct Mol Biol. 31 (7), 1023-1027 (2024).
- Dominguez-Martin, M. A., et al. Structures of a phycobilisome in light-harvesting and photoprotected states. Nature. 609 (7928), 835-845 (2022).
- Marechal, N., Serrano, B. P., Zhang, X., Weitz, C. J. Formation of thyroid hormone revealed by a cryo-EM structure of native bovine thyroglobulin. Nat Commun. 13 (1), 2380(2022).
- Kasinath, V., et al. JARID2 and AEBP2 regulate PRC2 in the presence of H2AK119ub1 and other histone modifications. Science. 371 (6527), (2021).
- Ma, J., et al. Open architecture of archaea MCM and dsDNA complexes resolved using monodispersed streptavidin affinity CryoEM. Nat Commun. 15 (1), 10304(2024).
- Kim, L. Y., et al. Benchmarking cryo-EM single-particle analysis workflow. Front Mol Biosci. 5, 50(2018).
- Zhou, Z., Jin, J., Deng, X., Jia, Z. Protein purification via consecutive histidine-polyphosphate interaction. Protein Sci. 33 (6), e5021(2024).
Перепечатки и разрешения
Эта статья была опубликована
Видео скоро будет доступно