Иммуноблоттинг LC3 является широко используемым методом мониторинга аутофагии, однако он требует тщательной оптимизации. В данном протоколе описывается надежный подход к детекции и количественному определению LC3-II в клетках рака поджелудочной железы, производных от линии KPC, включая ключевые технические аспекты и стандартизированный рабочий процесс денситометрического анализа с использованием программы Fiji.
Для просмотра этого контента требуется подписка на JoVE. Войдите или начните свой бесплатный пробный период.
Методическая статья
Вестерн-блот-анализ легкой цепи микротрубочко-ассоциированного белка 3 для мониторинга динамики автофагосом в клетках рака поджелудочной железы мыши
В этой статье
Краткое содержание
Аннотация
Аутофагия играет сложную роль при протоковой аденокарциноме поджелудочной железы (ПАКПЖ), способствуя прогрессированию опухоли, адаптации к стрессу и резистентности к терапии. Таким образом, точная оценка динамики аутофагосом имеет важное значение для исследований биологии рака. Среди доступных методов широко используется иммуноблоттинг белка LC3 (microtubule-associated protein light chain 3) для мониторинга динамики аутофагосом путем разграничения цитозольной (LC3-I) и липидированной, связанной с аутофагосомами (LC3-II), форм. Однако низкая молекулярная масса LC3 и минимальная разница в электрофоретической подвижности между этими изоформами создают технические трудности, требующие тщательной оптимизации. В данной работе представлен воспроизводимый протокол полуколичественного анализа уровней LC3-II методом вестерн-блоттинга в клетках рака поджелудочной железы мышей, полученных из линии KPC. Метод включает оптимизированные условия лизиса клеток, электрофореза, переноса белков и детекции с помощью антител для обеспечения надежного разделения и обнаружения изоформ LC3. Кроме того, представлен стандартизированный рабочий процесс денситометрического анализа полос LC3-II с использованием Fiji (ImageJ). Чувствительность метода продемонстрирована путем обнаружения повышенных уровней LC3-II в условиях индукции аутофагии (лечение гемцитабином) и нарушения аутофагического потока (нокдаун VMP1). Также рассмотрены критические технические параметры, влияющие на интерпретацию данных, включая состав буфера для лизиса и специфичность антител, а также распространенные экспериментальные ошибки. Хотя одного только иммуноблоттинга LC3 недостаточно для полного определения аутофагического потока, в сочетании с дополнительными анализами он представляет собой надежный и доступный подход к мониторингу аутофагической активности. Данный протокол может быть адаптирован к другим экспериментальным условиям, что облегчает механистические исследования аутофагии в моделях рака.
Введение
Макроаутофагия (в дальнейшем именуемая как аутофагия) представляет собой регулируемый путь деградации, посредством которого клетки расщепляют цитоплазматический материал, включая белки и дисфункциональные органеллы. Характерным признаком аутофагии является формирование двухмембранной структуры, называемой аутофагосомой, которая изолирует клеточный груз и впоследствии направляет его в лизосомы для деградации1,2,3. В нормальных клетках аутофагия способствует контролируемому обновлению белков и органелл, тем самым ограничивая окислительный стресс и снижая риск развития опухолей. Однако в раковых клетках этот процесс может быть использован для поддержания выживаемости в условиях высокого метаболического спроса, дефицита питательных веществ и гипоксии. Облегчая адаптацию к враждебной микросреде, аутофагия также способствует развитию устойчивости к химиотерапии, в частности, за счет смягчения вызванных лечением повреждений клеток4,5.
Рак поджелудочной железы занимает третье место среди основных причин смертности от онкологических заболеваний в Соединенных Штатах. Примерно 90% случаев рака поджелудочной железы классифицируются как протоковая аденокарцинома поджелудочной железы (PDAC). В отличие от многих других злокачественных новообразований, при которых ранняя диагностика и успехи в терапии улучшили выживаемость пациентов, в более чем 80% случаев PDAC диагностируется на поздней стадии. Такое позднее выявление в сочетании с агрессивной биологией опухоли и выраженной резистентностью к терапии приводит к тому, что общая пятилетняя выживаемость составляет примерно 11%6.
Мышиная модель KPC, основанная на специфической активации онкогенного Kras в поджелудочной железе и кондициональном делетировании Trp53 под действием Cre-рекомбиназы, является одной из наиболее широко используемых генетически модифицированных моделей протоковой аденокарциномы поджелудочной железы. У этих мышей спонтанно развиваются опухоли, которые очень напоминают заболевание у людей, прогрессируя от интраэпителиальной неоплазии поджелудочной железы (PanIN) до инвазивной карциномы. Важно отметить, что эта модель воспроизводит ключевые особенности рака поджелудочной железы, включая плотную десмопластическую строму и иммуносупрессивное микроокружение опухоли. Опухолевые клетки, выделенные из мышей KPC (клетки, производные от KPC), представляют собой дополнительную систему in vitro, которая сохраняет многие генетические и фенотипические характеристики исходных опухолей, что позволяет проводить механистические исследования и контролируемую оценку терапевтического ответа7,8.
VMP1 представляет собой важный белок, связанный с аутофагией, который инициирует этот процесс посредством взаимодействия с Beclin-1 и привлечения комплекса PI3KC39,10. Помимо инициации, VMP1 участвует в нескольких стадиях аутофагии, включая формирование аутофагосом10, их закрытие11, а также селективные процессы, такие как митофагия12 и зимофагия13. VMP1 остается задействованным на протяжении всего аутофагического потока и может выполнять дополнительные функции в качестве фосфолипидного скрамблазы14. В поджелудочной железе экспрессия VMP1 обычно низкая, но она резко индуцируется в условиях стресса, включая панкреатит и онкогенную трансформацию, при которых белок способствует аутофагии ниже по каскаду сигнализации мутантного KRAS15,16. VMP1 гиперэкспрессирован при раке поджелудочной железы17, и экспериментальные мышиные модели показали, что VMP1-зависимая аутофагия взаимодействует с KRAS, способствуя инициации опухоли и формированию PanIN18. Кроме того, VMP1 способствует развитию химиорезистентности, поскольку его ап-регуляция под воздействием таких препаратов, как гемцитабин19, стимулирует аутофагию19 и поддерживает выживаемость опухолевых клеток17, что подчеркивает его протуморигенную роль15.
Автофагосомы характеризуются наличием связанного с аутофагией белка — микротрубочко-ассоциированного белка легкой цепи 3 (LC3)20. В базальных условиях LC3 преимущественно присутствует в растворимой форме (LC3-I), распределенной по цитоплазме и ядру. При активации аутофагии LC3 подвергается липидированию путем конъюгации с фосфатидилэтаноламином, в результате чего образуется мембрано-ассоциированная форма LC3-II1,21. Хотя LC3-II имеет более высокую молекулярную массу, чем LC3-I, из-за этой модификации, он мигрирует быстрее при SDS-PAGE, вероятно, вследствие повышенной гидрофобности. Следовательно, превращение LC3-I в LC3-II отражает процесс липидирования, а не протеолитического расщепления; при этом LC3-I обычно детектируется при массе около 16 kDa, а LC3-II — около 14 kDa. Поскольку уровни LC3-II коррелируют с количеством автофагосом, иммуноблоттинг LC3 широко используется для мониторинга аутофагической активности22. Таким образом, точная оценка динамики LC3 имеет важное значение для интерпретации результатов экспериментов, связанных с аутофагией.
В данном исследовании подробно описаны стандартизация и техническая оптимизация классического протокола иммуноблоттинга LC3 в клеточной линии рака поджелудочной железы, производной от KPC. Оптимизация особенно важна, поскольку LC3 является низкомолекулярным белком, формы LC3-I и LC3-II различаются по электрофоретической подвижности всего на ~2 kDa, а LC3-II представляет собой липидированную форму21,22. Следовательно, незначительные отклонения в процедуре могут затруднить детекцию LC3 и привести к субоптимальным результатам. Кроме того, важным фактором для достижения оптимальной иммунореактивности является видовая принадлежность образцов. Оптимизированный протокол обладает достаточной чувствительностью для обнаружения повышенных уровней LC3-II после воздействия химиотерапевтического препарата гемцитибина и после нокдауна VMP1 — условий, которые, как известно, стимулируют аутофагию и нарушают аутофагический поток соответственно. Наконец, освещены две потенциальные технические ошибки, чтобы продемонстрировать их влияние на качество данных и интерпретацию результатов. Обзор данного экспериментального рабочего процесса представлен на рисунке 1.
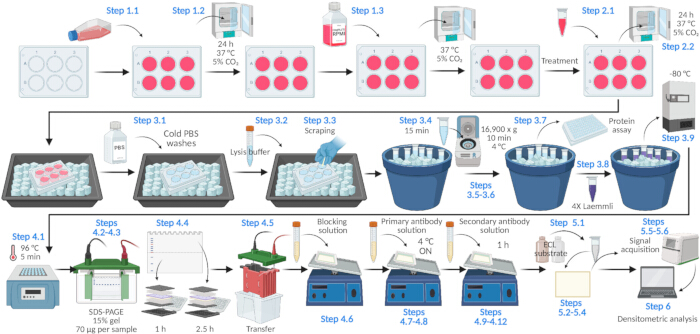
Рисунок 1: Схематическое изображение протокола иммуноблоттинга LC3 в клетках, производных от KPC. Схематический обзор протокола, используемого для обнаружения и количественного определения уровней LC3-II методом иммуноблоттинга. Клетки рака поджелудочной железы, производные от KPC, культивируют и подвергают экспериментальному воздействию, после чего проводят лизис клеток, количественное определение белков, SDS-PAGE, перенос на мембрану, обнаружение LC3 с помощью антител, регистрацию хемилюминесцентного сигнала и денситометрический анализ полос LC3-II, нормализованный по контролю загрузки. В рабочем процессе выделены основные процедурные этапы и критические стадии, необходимые для надежной оценки динамики LC3. Создано с помощью BioRender.com. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Протокол
Все процедуры с использованием животных проводились в соответствии с институциональными рекомендациями и были одобрены Институциональным комитетом по уходу и использованию животных (IACUC) Массачусетского общего госпиталя в рамках протокола №2019N000111. Линия клеток рака поджелудочной железы, производная от KPC, использованная в данном исследовании, была ранее создана в лаборатории Мостославского в соответствии с этим утвержденным протоколом. Список реагентов, химических веществ и оборудование представлен в Таблице материалов.
1. Подготовка клеток
- Высейте клетки опухоли поджелудочной железы с низким числом пассажей, производные линии KrasG12D; Trp53f/+; p48-Cre (далее именуемые KPC), в 6-луночный планшет в среду Roswell Park Memorial Institute (RPMI 1640), содержащую 10% фетальной бычьей сыворотки, 100 U/mL пенициллина и 100 µg/mL стрептомицина. Отрегулируйте плотность посева так, чтобы к дню лизиса достичь 70%–90% конфлюэнтности.
ПРИМЕЧАНИЕ: Плотность посева 3,5 × 10⁵ клеток на лунку обеспечила ~80% конфлюэнтности через 72 ч. Поскольку скорость роста может варьироваться в зависимости от лаборатории и моделей KPC, определите оптимальную плотность посева эмпирически перед проведением эксперимента.
ПРИМЕЧАНИЕ: Для создания стабильных клеточных линий с нокдауном VMP1 প্রস্তুতвьте лентивирусные частицы путем ко-трансфекции клеток HEK293T упаковочными плазмидами и соответствующим лентивирусным вектором с использованием полиэтиленимина (PEI). Соберите лентивирусные супернатанты через 72 ч после трансфекции, центрифугируйте при 300 × g в течение 10 мин при 4 °C для удаления клеточного дебриса и профильтруйте через шприцевой фильтр 0,45 µm. Проведите один раунд трансдукции клеток KPC собранными вирусными супернатантами. Выделите стабильно трансдуцированные клетки путем обработки пуромицином в концентрации 2,5 µg/mL (разведение 1:4 000 из стокового раствора 10 mg/mL) в течение 72 ч. - Культивируйте клетки при 37 °C в увлажненном инкубаторе с 5% содержанием диоксида углерода (CO₂).
- Замените среду на свежую и продолжайте инкубацию при тех же условиях.
2. Обработка 20 µM гемцитабином
- За один день до лизиса приготовьте 10 mM раствор гемцитабина в среде RPMI. Добавьте в каждую лунку по 4 µL 10 mM раствора для достижения конечной концентрации 20 µM.
- Инкубируйте клетки в течение 24 h при 37 °C в увлажненном инкубаторе с содержанием 5% углекислого газа (CO₂).
3. Клеточные лизаты
- Поместите планшет на лед и трижды промойте холодным фосфатно-солевым буфером (PBS; 137 mM NaCl, 2.7 mM KCl, 8 mM Na₂HPO₄ и 2 mM KH₂PO₄).
- Добавьте 80 µL буфера для лизиса (50 mM Tris-HCl, pH 8.0, 150 mM NaCl, 1% Triton X-100 и 0.1% SDS) с добавлением ингибиторов протеаз.
ПРИМЕЧАНИЕ: Если в лунках наблюдается разная степень конфлюэнтности, отрегулируйте объем буфера для лизиса для получения сопоставимых концентраций белка. В качестве рекомендации используйте ~10 µL буфера для лизиса на 10% конфлюэнтности (например, 70 µL для 70% конфлюэнтности и 90 µL для 90% конфлюэнтности). - Используя широкий (проксимальный) конец наконечника дозатора P200, тщательно соскребите содержимое поверхности каждой лунки, чтобы отделить и собрать клетки в буфере для лизиса.
- Перенесите лизат в микроцентрифужную пробирку и выдержите на льду в течение 15 min.
- Центрифугируйте образцы при 16,900 × g при 4 °C в течение 10 min.
- Перенесите супернатант в чистую микроцентрифужную пробирку.
- Отберите аликвоту для количественного определения белка и храните ее на льду до проведения анализа.
ПРИМЕЧАНИЕ: Для количественного определения белка разведите 2.5 µL лизата в 7.5 µL буфера для лизиса и смешайте с 200 µL бицинхонинового реагента. Также могут быть использованы альтернативные методы количественного определения белка. - Добавьте к лизатам 4× буфер Лаеммли для образцов (250 mM Tris-HCl, pH 6.8, 8% SDS, 40% глицерина, 0.04% бромфенолового синего и 20% β-меркаптоэтанола) и тщательно перемешайте. На 77.5 µL лизата добавьте 25.8 µL буфера Лаеммли.
- Храните образцы при −80 °C.
ПРИМЕЧАНИЕ: На этом этапе выполнение протокола можно приостановить. Образцы могут храниться при −80 °C до двух недель перед проведением SDS-PAGE.
4. Электрофорез в ПААГ с SDS и вестерн-блоттинг
- Нагревайте образцы при 96 °C в течение 5 мин.
- Нанесите по 70 µg каждого образца на 15% гель для SDS-PAGE (толщиной 1,5 мм) и проводите электрофорез при 90 V до тех пор, пока фронт красителя не войдет в разделяющий гель. Используйте самостоятельно приготовленный 15% полиакриламидный разделяющий гель, содержащий 15% акриламида/бисакриламида, 375 mM Tris-HCl (pH 8,8) и 0,1% SDS.
- Увеличьте напряжение до 120 V и продолжайте электрофорез до тех пор, пока фронт красителя не достигнет нижней части геля или не выйдет за ее пределы. Остановите разделение до того, как маркер 10 kDa молекулярно-массовой лестницы выйдет из геля.
- Разрежьте гель примерно на уровне 25 kDa, чтобы разделить его на верхнюю и нижнюю части.
- Перенесите белки на PVDF-мембрану 0,2 µm, предварительно активированную метанолом в трансферном буфере (25 mM Tris base, 192 mM глицин и 20% [v/v] метанол) при 200 mA в течение 1 ч для нижней части геля (<25 kDa) и 2,5 ч для верхней части геля (>25 kDa).
- Блокируйте мембрану в течение 1 ч в блокирующем буфере при осторожном перемешивании.
- Приготовьте раствор первичных антител к LC3 в разведении 1:1 000 в блокирующем буфере, содержащем 0,1% Tween-20.
ПРИМЕЧАНИЕ: Первичные антитела к LC3 использовались в разведении 1:1 000, а антитела к актину для контроля нагрузки — в разведении 1:4 000. - Инкубируйте мембрану в течение ночи при 4 °C с первичными антителами к LC3 при осторожном перемешивании.
- Промойте мембрану четыре раза по 5 мин в TBS-T (0,1% Tween-20 в TBS; 20 mM Tris-HCl, pH 7,6 и 150 mM NaCl).
- Приготовьте раствор вторичных антител к кролику, конъюгированных с пероксидазой хрена, в разведении 1:2 000 в блокирующем буфере.
- Инкубируйте мембрану со вторичными антителами в течение 1 ч при комнатной температуре при осторожном перемешивании.
- Промойте мембрану четыре раза по 5 мин в TBS-T.
- Промойте мембрану дважды в TBS.
5. Хемилюминесцентное детектирование
- Приготовьте двухкомпонентный субстрат для усиленной хемилюминесценции, смешав равные объемы реагента А (раствор люминола/усилителя) и реагента B (раствор пероксида) непосредственно перед использованием.
- Осторожно удалите излишки жидкости с мембраны с помощью лабораторной салфетки.
- Поместите мембрану в непрозрачный контейнер.
- Добавьте на мембрану раствор для усиленной хемилюминесценции, закройте контейнер и инкубируйте в течение 5 min.
- Дайте излишкам раствора стечь с мембраны и поместите мембрану в систему визуализации для детектирования сигнала.
- Получите изображения в соответствии с инструкциями производителя системы визуализации.
6. Денситометрический анализ с использованием Fiji
- Перетащите файл изображения в окно Fiji, чтобы открыть его.
- Преобразуйте изображение в 8-битный оттенок серого (Image → Type → 8-bit).
- При необходимости поверните изображение, чтобы полосы были расположены горизонтально (Image → Transform → Rotate).
- Включите предварительный просмотр (Preview) и установите сетку на подходящее количество линий (например, 20).
- Отрегулируйте угол поворота до тех пор, пока полосы не будут выровнены должным образом.
- Используйте инструмент прямоугольного выделения, чтобы определить область интереса (ROI) вокруг первой дорожки, захватив только полосу, соответствующую LC3-II.
ПРИМЕЧАНИЕ: Ширина выделения не должна превышать его высоты более чем в два раза. Используйте одинаковые размеры ROI для всех полос, включенных в анализ. - Выберите Analyze → Gels → Select First Lane.
- Переместите эту же область ROI на следующую дорожку и расположите ее вокруг соответствующей полосы.
- Выберите Analyze → Gels → Select Next Lane.
- Повторяйте шаги 6.6 и 6.7, пока не будет выбрана последняя дорожка.
- Сформируйте профили интенсивности (Analyze → Gels → Plot Lanes).
- Используйте инструмент прямой линии, чтобы определить базовую линию каждого пика, и количественно определите интенсивность полосы с помощью инструмента «волшебная палочка» (wand tool).
- Нормализуйте полученные значения по контролю нагрузки.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Результаты
В данном протоколе описан метод вестерн-блоттинга для мониторинга динамики LC3 в линии клеток рака поджелудочной железы, производной от KPC, при различных экспериментальных условиях. В результате выполнения протокола получаются хемилюминесцентные изображения LC3 и контроля загрузки. В настоящем исследовании в качестве контроля загрузки использовался актин.
Представлены два репрезентативных примера применения протокола. Во-первых, контрольные клетки KPC сравнивали с клетками KPC, обработанными ...
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Обсуждение
В данной статье описывается техническая оптимизация и стандартизация классического протокола иммуноблоттинга LC3 в клетках рака поджелудочной железы, производных от линии KPC. Учитывая все более признаваемую роль аутофагии и связанных с ней белков в развитии и прогрессировании рака поджелудочной железы23, этот стандартизированный рабочий процесс обеспечивает надежный подход к мониторингу динамики LC3. Протокол может быть применен для оценки пула аутофагосом при различных экспериментальных условиях...
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Раскрытие информации
Авторы заявляют об отсутствии конфликта интересов.
Благодарности
This work was supported by grants from the Consejo Nacional de Investigaciones Científicas y Técnicas (CONICET) [PIP 2021–2023 GI-11220200101549CO], the Agencia Nacional de Promoción de la Investigación, el Desarrollo Tecnológico y la Innovación (Agencia I+D+i) [PICT-2021-I-A-00328], the Universidad de Buenos Aires [UBACyT 2023–2025, 20020220300232BA], and the Fundación Norberto Quirno, Ciudad de Buenos Aires.
The authors gratefully acknowledge The Company of Biologists for financial support through a Traveling Fellowship awarded by Disease Models & Mechanisms. This support contributed to the work arising from the funded visit. Further information about the charity is available at https://www.biologists.com/.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Сканер для вестерн-блоттинга C-DiGit | LI-COR BioScience | 3600 | Используется для хемилюминесцентной детекции на этапе 5.6 |
| 10-кратный фосфатно-солевой буферный раствор (PBS) | Corning | 46-013-CM | Используется для приготовления стерильного 1x PBS для промывки клеток перед пассированием на этапе 1.1. |
| 2-меркаптоэтанол (β-меркаптоэтанол) | Sigma-Aldrich (Merck) | M3148 | Используется для приготовления 4× Буфер Лэммли для подготовки проб к электрофорезу в ПААГ с SDS на этапе 3.8. |
| 3D-шейкер | DLAB | SK-D1807-E | Используется для инкубации мембран в блокирующем растворе, растворах первичных и вторичных антител, а также на этапах промывки (шаги 4.6, 4.8, 4.9, 4.11, 4.12 и 4.13). |
| Планшет для культивирования клеток на 6 лунок | СОРФА | SCP-11-006 | Используется для посева клеток на этапе 1.1. |
| Акриламид | Sigma-Aldrich (Merck) | A8887 | Используется для приготовления 15%-го геля для SDS-PAGE, необходимого для шагов 4.2–4.5. |
| Антитела к глицеральдегид-3-фосфатдегидрогеназе, мышиные моноклональные, клон 6C5 | Merck Millipore | MAB374 | RRID:AB_2107445 Реактивность: человек, кошка, свинья, мышь, кролик, рыба, собака, крыса. Использовался в качестве контроля нагрузки для оценки эффективности нокдауна (рисунки 2C и 2D). |
| Антитела к IgG мыши, конъюгированные с HRP | Технологии клеточной сигнализации | 7076 | RRID: AB_330924. Используется для приготовления раствора вторичных антител на этапе 4.10. |
| Антитела к IgG кролика, конъюгированные с HRP | Cell Signaling Technology | 7074 | RRID: AB_2099233. Используется для приготовления раствора вторичных антител на этапе 4.10. |
| Анти-β-Антитело к актину (ACTB), мышиное моноклональное, AC-15 | Sigma-Aldrich (Merck) | A1978 | RRID:AB_476744 Реактивность: овца, карп, кошка, курица, крыса, мышь, Hirudo medicinalis, кролик, собака, свинья, человек, корова, морская свинка. Использовался в качестве контроля загрузки на рисунках 2A, 2B, 2E, 2F, 2G и 2H. |
| Бромфеноловый синий | Sigma-Aldrich (Merck) | B0126 | Используется для приготовления 4× Буфер для подготовки проб по Лэммли для SDS-PAGE, используемый на этапе 3.8. |
| Этилендиаминтетрауксусная кислота (ЭДТА) | Sigma-Aldrich (Merck) | E9884 | Использовался для приготовления лизирующего буфера с низким содержанием детергента (рисунки 2G и 2H). |
| Фетальная бычья сыворотка | NATOCOR | Lintc-634 | Используется для приготовления полной среды для культивирования клеток (шаги 1 и 2). |
| Fiji | Программное обеспечение с открытым исходным кодом | Поскольку исходный текст не был предоставлен, я не могу выполнить перевод. Пожалуйста, введите текст, который необходимо перевести на русский язык. | Программное обеспечение для анализа изображений |
| Глицерин | Sigma-Aldrich (Merck) | G5516 | Используется для приготовления 4× Буфер Лэммли для подготовки образцов к ЭСД-ПАГЕ на этапе 3.8. |
| Глицин | Sigma-Aldrich (Merck) | G7126 | Используется для приготовления трансфер-буфера для этапа 4.5. |
| Мембрана для иммуноблоттинга из ПВДФ, в рулоне, 0.2 µm, 26 см x 3,3 м | Bio-Rad | 1620177 | Используется для переноса на этапе 4.5. |
| Блокирующий буфер Intercept (TBS) | LI-COR BioScience | 927-60001 | Используется для блокировки на этапе 4.6, а также для приготовления растворов первичных и вторичных антител на этапах 4.7 и 4.10. |
| Кроличьи моноклональные антитела к LC3 A/B (D3U4C) | Технология клеточной сигнализации | 12741 | RRID: AB_2617131 Реактивность: человек, мышь, кролик. Используются для приготовления раствора первичных антител на этапе 4.7. |
| Кроличьи моноклональные антитела к LC3B (D11) | Технологии клеточной сигнализации | 3868S | RRID: AB_2137707 Реактивность: человек. Использовался в качестве первичного антитела к LC3 на рисунке 2H. |
| Метанол | Анедра | 6197 | Используется для активации ПВДФ-мембраны и приготовления трансферного буфера на шаге 4.5. |
| шприцевой фильтр Millex-HV, 0.45 μm ПВДФ | Merck Millipore | SLHV033RS | Используется для фильтрации среды, содержащей лентивирус (шаг 1.1). |
| Миниатюрный цифровой сухой термостат | Labnet International, Inc. | D 5060075 | Используется для нагрева образцов на этапе 4.1. |
| Система электрофореза Mini-PROTEAN Tetra | Bio-Rad | 1658025FC | Используется для SDS-PAGE и переноса на этапах 4.2, 4.3 и 4.5. |
| MISSION shRNA, нацеленная на ген Vmp1 мыши (TRCN0000279038) | Sigma-Aldrich (Merck) | SHCLND-NM_029478 | Используется для создания стабильных клеточных линий с нокаутом VMP1 (шаг 1.1). |
| N,N'-метиленбисакриламид (бисакриламид) | Sigma-Aldrich (Merck) | M7279 | Используется для приготовления 15%-го геля для электрофореза в ПААГ с SDS, необходимого для этапа 4.2–4.5. |
| Nabigem гемцитабин 1 г | Microsules Argentina | Поскольку вы предоставили только идентификационный номер (M3060584-3) без исходного текста, пожалуйста, отправьте текст, который необходимо перевести. Я готов приступить к профессиональному переводу вашего научно-образовательного контента JoVE на русский язык сразу после получения материалов. | Используется для терапии гемцитабином на этапе 2. |
| Раствор пенициллина-стрептомицина | Sartorius | 03-031-1B | Используется для приготовления полной среды для культивирования клеток (шаги 1 и 2). |
| Набор для определения концентрации белка методом BCA от Pierce | Thermo Fisher Scientific | 23227 | Используется для количественного определения белка (этап 3.7). |
| Таблетки с ингибиторами протеаз Pierce | Thermo Fisher Scientific | A32953 | Используется для приготовления лизирующего буфера на этапе 3.2. |
| Полиэтиленимин HCl MAX, линейный (PEI MAX), ММ 40 000 | Polysciences | 24765-1 | Используется для трансфекции лентивирусными плазмидами (Шаг 1.1). |
| Хлорид калия (KCl) | Sigma-Aldrich (Merck) | P9333 | Используется для приготовления PBS на этапе 3.1. |
| Монокалийфосфат (KH2PO4)2ПО4) | Sigma-Aldrich (Merck) | P5655 | Используется для приготовления ПСБ на этапе 3.1. |
| Лабораторный блок питания PowerPac Basic | Bio-Rad | 1645050 | Используется для SDS-PAGE и переноса на мембрану на этапах 4.2, 4.3 и 4.5. |
| преокрашенный маркер молекулярных масс белков | Genbiotech | PM201 | Используется для SDS-PAGE на этапах 4.2–4.4. |
| Пуромицин (раствор 10 мг/мл) | InvivoGen | ант-пр-1 | Используется для селекции стабильно трансдуцированных клеток (шаг 1.1). |
| RPMI 1640 | Genbiotech | MC2012L | Используется для приготовления полной среды для культивирования клеток (этапы 1 и 2). |
| Хлорид натрия (NaCl) | Sigma-Aldrich (Merck) | S9888 | Используется для приготовления PBS в шаге 3.1, лизисных буферов в шаге 3.2 и TBS в шаге 4.9. |
| Додецилсульфат натрия ( SDS ) | Sigma-Aldrich (Merck) | L3771 | Используется для приготовления буфера для лизиса на этапе 3.2 и 15%-го геля для SDS-PAGE, необходимого для этапа 4.2–4.5. |
| Фторид натрия (NaF) | Sigma-Aldrich (Merck) | S7920 | Используется для приготовления лизирующего буфера с низким содержанием детергента (рисунки 2G и 2H). |
| Дигидрат натрия фосфата (Na2HPO4)2HPO4) | Sigma-Aldrich (Merck) | S9763 | Используется для приготовления PBS на этапе 3.1. |
| Центрифуга Sorval ST 16R | Thermo Fisher Scientific | 75004380 | Используется для центрифугирования клеток на этапе 1.1 и лизатов на этапе 3.5. |
| Хемилюминесцентный субстрат SuperSignal West Pico PLUS | Thermo Fisher Scientific | 34577 | Используется для хемилюминесцентной детекции на этапе 5.1. |
| Бокс биологической безопасности Thermo Scientific серии 1300, класс II, тип A2 | Thermo Fisher Scientific | 1386 | Используется для стерильной работы с культурами клеток на этапах 1.1, 1.3 и 2.1. |
| Thermo Scientific BB 150 CO2 Инкубатор | Thermo Fisher Scientific | BB150-2TCS-L | Используется для культивирования клеток на этапах 1.2 и 2.2. |
| Кроличьи моноклональные антитела к TMEM49/VMP1 (D1Y3E) | Технологии клеточной сигнализации | 12929 | RRID: AB_2714018 Реактивность: человек, мышь, крыса. Использовалось в качестве первичного антитела для подтверждения эффективности нокдауна VMP1 на рисунках 2C и 2D. |
| Трис-основание | Sigma-Aldrich (Merck) | T1503 | Используется для приготовления трансферного буфера для этапа 4.5. |
| гидрохлорид триса (Tris-HCl) | Sigma-Aldrich (Merck) | T3253 | Используется для приготовления лизирующих буферов на этапах 3.2 и 4× буфер для образцов по Лэммли в шаге 3.8, 15%-й гель для SDS-PAGE, необходимый для шага 4.2–4,5, и TBS в шаге 4.9. |
| Triton X-100 | Sigma-Aldrich (Merck) | T8787 | Используется для приготовления лизирующих буферов на этапе 3.2. |
| Трипсин-ЭДТА | Gibco | 11570626 | Используется для пассажирования клеток на этапе 1.1. |
Ссылки
- Grasso D, Renna FJ, Vaccaro MI. Initial steps in mammalian autophagosome biogenesis. Front Cell Dev Biol. 2018;6:146.
- Galluzzi L, et al. Molecular definitions of autophagy and related processes. EMBO J. 2017;36(13):1811–1836.
- Wang Q, Sun Y, Li TY, Auwerx J. Mitophagy in the pathogenesis and management of disease. Cell Res. 2026;36(1):11–37.
- Debnath J, Gammoh N, Ryan KM. Autophagy and autophagy-related pathways in cancer. Nat Rev Mol Cell Biol. 2023;24(8):560–575.
- Altalbawy FMA, et al. Deciphering autophagy signaling in cancer: A paradigm shift from molecular classifications to clinical innovations. Semin Oncol. 2025;52(5):152397.
- Stoffel EM, Brand RE, Goggins M. Pancreatic cancer: Changing epidemiology and new approaches to risk assessment, early detection, and prevention. Gastroenterology. 2023;164(5):752–765.
- Kugel S, et al. SIRT6 suppresses pancreatic cancer through control of Lin28b. Cell. 2016;165(6):1401–1415.
- Hingorani SR, et al. Trp53R172H and KrasG12D cooperate to promote chromosomal instability and widely metastatic pancreatic ductal adenocarcinoma in mice. Cancer Cell. 2005;7(5):469–483.
- Molejon MI, Ropolo A, Re AL, Boggio V, Vaccaro MI. The VMP1-Beclin 1 interaction regulates autophagy induction. Sci Rep. 2013;3:1055.
- Ropolo A, et al. The pancreatitis-induced vacuole membrane protein 1 triggers autophagy in mammalian cells. J Biol Chem. 2007;282(51):37124–37133.
- Zhao YG, et al. The ER-localized transmembrane protein EPG-3/VMP1 regulates SERCA activity to control ER-isolation membrane contacts for autophagosome formation. Mol Cell. 2017;67(6):974–989.e6.
- Vanasco V, Ropolo A, Grasso D, Alvarez S, Vaccaro MI. VMP1-dependent selective mitophagy and mitochondrial fragmentation are protective cellular mechanisms in pancreatitis. Pancreatology. 2018;18(4 Suppl):S86–S87.
- Grasso D, et al. Zymophagy, a novel selective autophagy pathway mediated by VMP1-USP9x-p62, prevents pancreatic cell death. J Biol Chem. 2011;286(10):8308–8324.
- Ghanbarpour A, Valverde DP, Melia TJ, Reinisch KM. A model for a partnership of lipid transfer proteins and scramblases in membrane expansion and organelle biogenesis. Proc Natl Acad Sci U S A. 2021;118(16):e2101562118.
- Renna FJ, Gonzalez CD, Vaccaro MI. Decoding the versatile landscape of autophagic protein VMP1 in cancer: A comprehensive review across tissue types and regulatory mechanisms. Int J Mol Sci. 2024;25(7):3758.
- Lo Ré AE, et al. Novel AKT1-GLI3-VMP1 pathway mediates KRAS oncogene-induced autophagy in cancer cells. J Biol Chem. 2012;287(30):25325–25334.
- Gilabert M, et al. Novel role of VMP1 as modifier of the pancreatic tumor cell response to chemotherapeutic drugs. J Cell Physiol. 2013;228(9):1834–1843.
- Loncle C, et al. The pancreatitis-associated protein VMP1, a key regulator of inducible autophagy, promotes Kras(G12D)-mediated pancreatic cancer initiation. Cell Death Dis. 2016;7(7):e2295.
- Ropolo A, et al. A novel E2F1-EP300-VMP1 pathway mediates gemcitabine-induced autophagy in pancreatic cancer cells carrying oncogenic KRAS. Front Endocrinol (Lausanne). 2020;11:411.
- Tanida I, Ueno T, Kominami E. LC3 and autophagy. Methods Mol Biol. 2008;445:77–88.
- Kabeya Y, et al. LC3, a mammalian homologue of yeast Apg8p, is localized in autophagosome membranes after processing. EMBO J. 2000;19(21):5720–5728.
- Mizushima N, Yoshimori T. How to interpret LC3 immunoblotting. Autophagy. 2007;3(6):542–545.
- Li J, Chen X, Kang R, Zeh HJ, Klionsky DJ, Tang D. Regulation and function of autophagy in pancreatic cancer. Autophagy. 2021;17(11):3275–3296.
- Moresco P, et al. Signal peptide-independent secretion of keratin-19 by pancreatic cancer cells. Proc Natl Acad Sci U S A. 2025;122(27):e2426218122.
- Gonzalez CD, Resnik R, Vaccaro MI. Secretory autophagy and its relevance in metabolic and degenerative disease. Front Endocrinol (Lausanne). 2020;11:266.
- Klionsky DJ, et al. Guidelines for the use and interpretation of assays for monitoring autophagy (4th edition). Autophagy. 2021;17(1):1–382.
- Renna FJ, Herrera Lopez M, Manifava M, Ktistakis NT, Vaccaro MI. Evaluating autophagy levels in two different pancreatic cell models using LC3 immunofluorescence. J Vis Exp. 2023;(194):e65005. doi:10.3791/65005.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Перепечатки и разрешения
Эта статья была опубликована
Видео скоро будет доступно