Используя ex vivo эксплантную модель, небольшие участки ростральной части висцеральной белой жировой ткани у постных мышей культивируются в течение 7–10 дней, что позволяет индукцировать и изучать воспаление жировой ткани при его питании с высоким содержанием жиров.
Для просмотра этого контента требуется подписка на JoVE. Войдите или начните свой бесплатный пробный период.
Методическая статья
Ex vivo модель мыши для воспаления жировой ткани, похожей на жировую диету,
* These authors contributed equally
В этой статье
Краткое содержание
Аннотация
Этот протокол описывает модель мышей ex vivo , которая повторяет отдельные клеточные и воспалительные особенности, наблюдаемые в висцеральной жировой ткани (ПДС) после кормления с высоким содержанием жиров (HFD) без вмешательства диеты in vivo. Мелкие экспланты НДС у мышей, подвергающихся НДС, культивируются в течение 7–10 дней, в течение которых они спонтанно развивают воспалительный фенотип, очень похожий на фенотип НДС у животных, питаемых HFD. Важно, что модель сохраняет архитектуру жировой ткани (АТ), что позволяет исследовать воспалительные процессы в физиологически значимом контексте. Во время культуры выявляются ключевые признаки воспаления, связанного с ожирением, включая формирование коронообразных структур (CLS), накопление метаболически активированных макрофагов (MMe) и усиление выработки воспалительных цитокинов. Несмотря на гибель адипоцитов, в модели частично можно отразить другие факторы воспаления, связанные с ожирением, включая метаболические стрессоры, такие как насыщенные жирные кислоты, нарушение обращения с липидами, избыток глюкозы, окислительный стресс, гипоксия, дисбаланс адипокина и паракринные сигналы адипоцит–иммунная клетка. Система поддерживает широкий спектр дальнейших применений, включая живую визуализацию, проточную цитометрию, количественную ПЦР, ELISA, иммуноокрашивание и секвенирование объёмных или одноклеточных РНК. Кроме того, фармакологические и цитокиновые методы лечения могут применяться для изучения сигнальных путей и ответов, специфичных для типа клеток. Эта легко настраиваемая модель соответствует принципам 3R, снижая использование животных для диетических исследований in vivo . Модель воспроизводима, экономична и простая в реализации, предоставляя универсальную платформу для изучения гибели адипоцитов, динамики иммунных клеток и терапевтических стратегий при воспалении АТ.
Введение
Жировая ткань (АТ) — это метаболически активный орган, состоящий примерно из 20% адипоцитов и гетерогенной смеси иммунных клеток, фибробластов, предшественников и сосудистых клеток учеловека1. АТ классифицируется на унилокулярную белую жировую ткань (WAT), многолокулярную коричневую жировую ткань (BAT) и промежуточную бежевую жировую ткань, что отражает гетерогенность по составу, функции и анатомическому расположению. WAT распределён по подкожным (SCAT), висцеральным (VAT), периваскулярным и жировым депо костного мозга, которые различаются по происхождению развития, профилям экспрессии генов и метаболической функции. Помимо своей роли в накоплении липид, AT функционирует как эндокринный орган, выделяя цитокины, гормоны иадипокины 2. По сравнению с SCAT, НДС более метаболически активен и обогащается воспалительными клетками, что делает его особенно актуальным для изучения воспаления АТ и метаболических заболеваний, таких как сахарный диабет2 типа 3,4,5.
АТ является ключевым регулятором метаболического здоровья и играет центральную роль в ожирении, которое связано с многочисленными сопутствующими заболеваниями. Ожирение способствует гипертрофии, гиперплазии и пролиферацииадипоцитов 6, тогда как расширение и воспаление АТ тесно коррелируют с гипергликемией, гиперинсулинемией, гипертриглицеридемией и нарушенной толерантностью кглюкозе 3. Предполагается, что расширение АТ сопровождается увеличением гибели адипоцитов с примерно 10% клеточного оборота вгод 7, что запускает набор макрофагов, необходимый для клиренса тканей иремоделирования 8. Поскольку адипоциты значительно крупнее (100–200 мкм) макрофагов, эффективный фагоцитоз этими примерно пятикратно меньшими клетками затрудняется, что ухудшает гомеостаз тканей и способствует хроническому воспалениюАТ 9. Макрофаги жировой ткани (ATM) опосредуют очищение избыточных умирающих адипоцитов либо путём слияния в многоядерные гигантские клетки (MGC), либо формируя короноподобные структуры (CLS) вокруг мёртвых адипоцитов и их разрушают через лизосомныйэкзоцитоз 10,11,12. Изобилие CLS коррелирует с воспалением, связанным сожирением 11,13.
У здоровых АТ ATM преимущественно противовоспалительные, похожие на M2 макрофаги, тогда как ожирение способствует сдвигу к провоспалительному фенотипу, похожему на M1,14,15. Появляются дополнительные механистически отличающиеся подгруппы макрофагов, включая метаболически активированные макрофаги (MMes) и липидно-ассоциированные макрофаги (LAMs), которые играют важную роль в очищении мёртвых адипоцитов через лизосомный экзоцитоз 16,17,18.
Для изучения воспаления АТ в физиологически значимой многоклеточной среде протокол создал модель ex vivo мышей на основе органотипических эксплантных культур НДС, полученных от худощавых мышей. Экспланты, культивируемые в течение 7–10 дней, развивают воспалительный фенотип, сопоставимый с тем, что наблюдается после как минимум 12 недель кормления с высоким содержанием жиров (HFD) с точки зрения образования CLS, фенотипа макрофагов и выработки воспалительныхцитокинов 9,19. Важно, что такой подход снижает использование животных, устраняет необходимость одобрения диетических вмешательств и способствует реализации принципов 3R, снижая зависимость от долгосрочных исследований диетических вмешательств. По сравнению с традиционными двумерными (2D) системами культуры, такими как модели одноклеточной культуры (например, клетки 3T3-L1 или первичные культуры адипоцитов), этот метод сохраняет сложность тканей и клеточное разнообразие, что позволяет исследовать физиологические взаимодействия между клетками, включая взаимодействия между иммунными клетками и адипоцитами.
Культивированные АТ-экспланты совместимы с широким спектром аналитических подходов. Живое конфокальное изображение позволяет отслеживать накопление ATM, формирование CLS и формированиеMGC 9,19. Переваривание коллагеназы позволяет выделить стромальную сосудистую фракцию (SVF) для анализов потоковой цитометрии, включая пролиферационные анализы и определение M1-подобных, M2-подобных или MMe-фенотипов12. Анализ экспрессии генов, включая количественное ПЦР (qPCR) и секвенирование РНК, может проводиться на целых эксплантах, клетках SVF или отсортированныхмакрофагах 9. Экспрессию белков и ферментативную активность можно оценить с помощью вестерн-блотинга илиELISA 12,20,21, тогда как архитектура тканей и экспрессия маркеров визуализируются с помощью окрашивания целого крепления и иммунофлуоресценции 9,22. Кроме того, фармакологические и генетические вмешательства, включая истощение ATM и лечение цитокином, вполне возможны 21,23,24.
В итоге, эта ex vivo модель воспаления АТ, подобного HFD, у мыши позволяет изучать гибель адипоцитов, прямое in situ наблюдение за поведением клеток и фармакологические или генетические манипуляции, важные для иммунологии АТ (Рисунок 1).
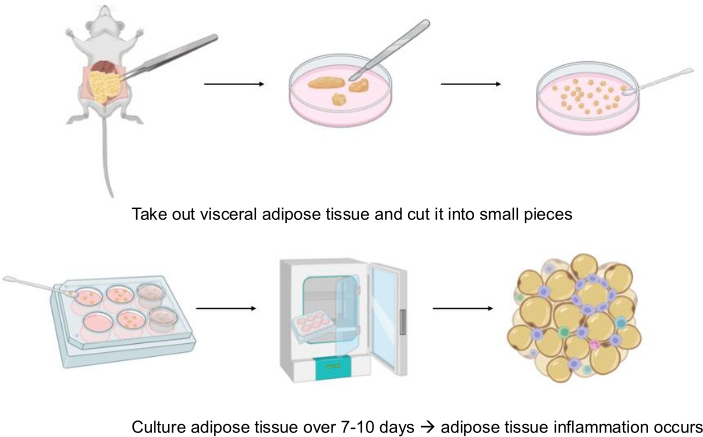
Рисунок 1: Графическое резюме рабочего процесса. Висцеральная жировая ткань (АТ) выделяется от мышей, разрезается на мелкие экспланты и культивируется в течение 7–10 дней. В период культуры экспланты развивают воспалительный фенотип, позволяющий изучать воспаление жировой ткани при контролируемых условиях ex vivo . Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Протокол
Эксперименты на животных проводились в соответствии с институциональными и национальными рекомендациями и были одобрены соответствующими регулирующими органами. Csf1r-eGFP-Adipoq-ERT2-Cre-CAG-tdТоматные мыши ("MacFat", RRID: Csf1r-eGFP: RRID:IMSR_JAX:018549, Adipoq-iCreERT2: RRID:IMSR_JAX:025124, CAG-tdTomato: RRID:IMSR_JAX:007914)27,28 использовались для репрезентативных микроскопических экспериментов. Эта репортерная линия позволяет визуализировать макрофаги с помощью экспрессии GFP и адипоцитов с помощью экспрессии tdTomato. Поскольку экспрессия tdTomato теряется после гибели адипоцита, жизнеспособность адипоцитов можно контролировать во время культуры. Для визуализации макрофагов и анализа потоковой цитометрии использовались репортерские мыши Csf1r-eGFP ("MacGreen", RRID:IMSR_JAX:018549)28. Мыши C57BL/6J (RRID:IMSR_JAX:000664) использовались для экспериментов без визуализации, включая анализ scRNA-seq и qPCR. Все трансгенные линии поддерживались как гетерозиготные мыши на фоне C57BL/6J.
Эксперименты на животных следовали «Принципам ухода за лабораторными животными» (публикация NIH No 85e23, пересмотренная 1985 года) и специальным национальным законам и были утверждены местными властями земли Саксония: Landesdirektion в Лейпциге, Германия (применение на животных: TV11-21-MEZ). По данным местных властей, описанные эксперименты не считаются испытаниями на животных, поскольку говорится: «Если позвоночный убивается исключительно с целью использования своих органов или тканей в научных целях, это не считается испытанием на животных согласно § 7(2) Закона о благополучии животных (TierSchG), а скорее убийством согласно § 4(3) Закона о благополучии животных (TierSchG).» Убийство животных должно быть сообщено в «отчёте о животных». Этот отчет включен в заявку на проведение экспериментов на животных. Этический комитет медицинского факультета Лейпцигского университета также одобрил исследовательские проекты. В соответствии с рекомендациями по экспериментальному применению на животных TV11-21-MEZ, мышей эвтаназируют передозировкой ингаляционного анестетика изофлурана. Эффективная концентрация газа (5% в O₂-носительном газе) подаётся через изофлуран-испаритель. Процедура эвтаназии завершается при подтверждении окончательной остановки кровообращения (отсутствие дыхания [тест на перо] и сердцебиение [пальпация]).
Мыши содержались в специализированном учреждении с контролируемой температурой (22 ± 2 °C) в Лейпцигском университете в братских группах из 3–5 животных в 12-часовом цикле свет/темнота. Животные имели ad libitive доступ к воде и стандартную пищу (9% ккал жира; Sniff GmbH, Германия). Репрезентативные эксперименты проводились с использованием самцов и самок мышей. Реагенты, химикаты и наборы, используемые в протоколе, перечислены в Таблице материалов.
1. Подготовка
- Подготовьте реагенты и оборудование
- Подготовьте культурную среду в стерильных условиях, добавив RPMI-1640 10% плодовой бычий сыворотки (FBS) и 1% антибиотиковый раствор.
- Нагрейте посевную среду и стерильно используйте PBS до 37 °C.
- Очистите всё оборудование и рабочую зону внутри вышка для культуры тканей 70% этанолом.
- Готовить животных
- Жертвуйте мышей согласно институциональным правилам. По желанию взвесьте животных.
- Поместите животных в стеклянный стакан с 70% этанолом.
- Протрите наружную часть стеклянного стакана этанолом и перенесите его в вытяжку для культуры тканей.
2. Изоляция жировой ткани (рисунок 2)
- Готовь мышь
- Положите мышь в положение на спине в стеклянной чаше с помощью тупых щипцов или приколойте её к доске для вскрытия.
- Добавьте тонкий слой предварительно подогретого PBS в чашку Петри.
- Переоденься на свежие перчатки.
- Поднимите нижнюю часть живота щипцами и сделайте небольшой горизонтальный разрез ножницами, чтобы открыть брюшную полость.
- Сделайте вертикальный разрез (~2 см от хвостового к ростральному), идущий от начального разреза, чтобы открыть внутренние органы.
- Изолируйте жировую подушечку
- С помощью маленьких острых ножниц и заострённых щипцов найдите и вырежьте белую жировую ткань. Используйте отдельный набор приборов для предотвращения загрязнения.
- Самцы мышей: Жир в гонадальном отделении прикрепляется только к эпидидимису и яичку. Аккуратно поднимите жировую подушечку и разрезайте выше эпидидимиса, либо вырежьте эпидидимис и яичок вместе с гонадным жиром, а затем удалите их.
- Самки мышей: Гонадальный жир прикреплён к рогу матки и яичникам и более выражен, чем у самцов. Аккуратно поднимите жировую подушечку и вырезайте вдоль рога матки и яичников.
- Поместите изолированные жировые подушечки в чашку Петри, наполненную PBS.
- Удалите остаточный эпидидим, яички, яичники или кровеносные сосуды с помощью лезвия бритвы.
- Переложите очищенную жировую подушечку во вторую чашку Петри с предварительно подогретой PBS. По желанию взвесьте жировые подушечки.
ПРИМЕЧАНИЕ: Взвешивание жировых подушечек перед посевом позволяет нормализовать массу тканей между экспериментальными условиями.
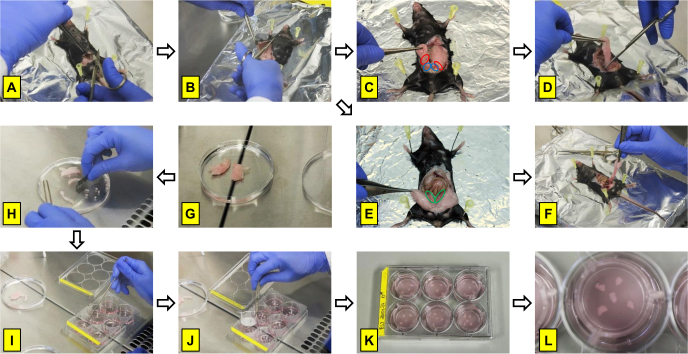
Рисунок 2: Выделение и культивирование висцеральных жировых тканей. (A,B) Открытие брюшной полости и обнажение висцеральной жировой ткани. (C, D) Выделение жировой ткани эпидидимальной отделки у самцов мышей, жир прикрепляется к эпидидимису (красные круги) и яичку (синие круги). (E, F) Выделение жировой ткани гонады у самок мышей, жир прикрепляется к рогу матки (зелёные круги) и яичникам. (G, H) Подготовка и обрезка эксплантов жировой ткани. (I, J) Перенос эксплантов в культурные колодцы и размещение вставок для клеточной культуры. (К, Л) Репрезентативные изображения эксплантов во время культуры на пластинах с шестью колодцами. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
3. Подготовка и культивирование экспланта
- Подготовьте экспланты
ВНИМАНИЕ: Лезвия бритвы острые и могут привести к травмам. Обращайтесь с лезвиями осторожно и утилизируйте их в соответствии с институциональными мерами безопасности.- Разрежьте жировую подушечку на полоски, а затем на кубики размером примерно 10мм 3 (~10 мг на эксплант) с помощью лезвия бритвы.
- Создание эксплантных культур
- Добавьте 1–1,5 мл посевной среды в каждую колодцу пластины на 6 колодц.
ПРИМЕЧАНИЕ: Для нормализации используйте примерно 50 мг жировой ткани на 1 мл посевной среды. - Переложите пять эксплантов в каждую яму, используя стерильную ложку или лопатку.
- Расположите экспланты равномерно по кругу.
- Накройте экспланты клеточной культурой с помощью стерильных щипцов.
ПРИМЕЧАНИЕ: Избегайте появления воздушных пузырьков при размещении вставок и убедитесь, что экспланты расположены по центру внутри них. - Инкубировать экспланты при 37 °C, 5% CO₂ и 21% O₂ в течение 7–10 дней.
ПРИМЕЧАНИЕ: Используйте предварительно нагретый PBS и посевную среду для повышения жизнеспособности тканей. Работайте быстро, чтобы минимизировать время, пока жировые подушечки остаются вне инкубатора. Избегайте загрязнения шерстью мыши. Если волосы прилипают к ткани, удалите их и прополосните тёплым PBS.
- Добавьте 1–1,5 мл посевной среды в каждую колодцу пластины на 6 колодц.
4. Нижний анализ
- После 7–10-дневного периода культуры собирайте эксплантаты, стромальные сосудистые фракционные клетки или культурные супернатанты для дальнейших анализов, включая микроскопию, проточную цитометрию, qPCR, ИФА или секвенирование РНК, в зависимости от необходимости экспериментальной конечной точки.
5. Статистический анализ
- Проведите статистический анализ с помощью GraphPad Prism 10.2. Наборы данных для выбросов с использованием теста ROUT (Q = 1%) и оценки нормальности с помощью теста Шапиро–Уилка (α = 0,05).
- Сравните две группы с помощью парных t-тестов Студента или тестов Уилкоксона с парами, если это уместно. Сравните несколько групп с помощью одностороннего ANOVA, затем следуйте пост-хок тесту Даннетта. Рассмотрим различия статистически значимыми при p < 0,05.
- Подавайте данные как среднее ± SEM. Если не указано иное, определите n как количество биологических репликат (отдельных мышей).
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Результаты
Общая жизнеспособность тканей поддерживалась на протяжении всего периода культуры и контролировалась с помощью нескольких дополнительных подходов. Жизнеспособность тканей может быть оценена с помощью конфокальной микроскопии с помощью красителей жизнеспособности, таких каккальцеин 25, окрашивание антител против перилипина для оценки целостности мембраны адипоцитов17,26 или экспрессии трансгенного репортерн...
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Обсуждение
Учитывая растущую глобальную распространённость метаболических заболеваний и диабета, понимание механизмов, лежащих в основе воспаления жировой ткани (АТ), остаётся важной исследовательской задачей. Для удовлетворения этой потребности была разработана система экс-виво эксплантативной культуры, позволяющая индукцировать и анализировать воспаление AT в контролируемых экспериментальных условиях.
Ключевым требованием этого метода является сохранение жизне...
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Раскрытие информации
Авторы не заявляют о конкурирующих интересах.
Благодарности
Авторы благодарят Констанс Хобуш и Флориана Кирмса за отличную техническую помощь. Анализ потоковой цитометрии проводился на Core Unit Fluorescence Technologies Лейпцигского университета при технической поддержке Катрин Йегер и Пии Глёкнер. Эта работа была поддержана Deutsche Forschungsgemeinschaft (DFG, Немецкий исследовательский фонд), проект No 209933838 – SFB 1052 (проект B09).
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| BD OptEIA Mouse TNF ELISA Kit | BD Biosciences | 560478 | |
| Bodipy 558/568 C12 | Цитометрия потока: 1:10000; Окрашивание: 1:2000 | Invitrogen | D3835 |
| Беловой альбумин быка | 3% | Sigma | A9647 |
| CD107a (LAMP1) – AF647 | Окрашивание: 1:100; Цитометрия потока: 1:200 | BioLegend | 121610 |
| CD11c – BV605 | Цитометрия потока: 1:100 | BioLegend | 117334 |
| CD16/32 | Цитометрия потока: 1:100 | Invitrogen | 14-0161-82 |
| CD301 – AF647 | Цитометрия потока: 1:50 | Bio-Rad | MCA2392A647 |
| CD36 – PE | Цитометрия потока: 1:400 | BioLegend | 102606 |
| CD45 – PE | Цитометрия потока: 1:100 | BD Pharmingen | 555483 |
| Click-iT Plus EdU Alexa Fluor 350 Flow Cytometry Assay Kit | EdU: 5 µM | Invitrogen | C10632 |
| Липосомные клодронаты | 500 µг/мл клодронатов | Liposoma | |
| Коллагеназ типа 2 | 1 мг/мл, 315 Ед/мг | Worthington | LS004176 |
| CyQUANT LDH Cytotoxicity Assay Kit | Invitrogen | C20301 | |
| DAPI | Цитометрия потока: 0.2 µг/мл | Thermo Fisher | 62248 |
| Этанол | 70% | Carl Roth | T913.1 |
| F4/80 – AF647 | Цитометрия потока: 1:100 | Invitrogen | MF48021 |
| F4/80 – PE-Cy7 | Цитометрия потока: 1:200 | Invitrogen | 25-4801-82 |
| Плодовая сыворотка телят | 1.10 | Gibco | 10270106 |
| Плодовая сыворотка телят | 1.20 | Gibco | 10270106 |
| HBSS (-Mg, -Ca) | Gibco | 14170138 | |
| HEPES | 13 мМ | Roth | HN77.2 |
| Хёхст 33342 | 1:10,000 | Life Technologies | H3570 |
| LysoTracker – AF647 | Цитометрия потока: 1:20000; Окрашивание: 1:10000 | Invitrogen | H34477 |
| MAC-2 | Окрашивание: 1:1000 | Cedarlane | CL8942AP |
| Millicell Cell Culture Insert, 30 мм, гидрофильный PTFE, 0.4 µм | Merck Millipore | PICM0RG50 | |
| PBS (-Mg, -Ca) | Gibco | 14190169 | |
| PBS (-Mg, -Ca) | Gibco | 14190169 | |
| Пенициллин/стрептомицин (10 000 Ед/мл) | 0.111111111 | Gibco | 11548876 |
| Пенициллин/стрептомицин (10 000 Ед/мл) | 0.111111111 | Gibco | 11548876 |
| Перилипин | 2 µг/мл | Abcam | ab3526 |
| Plexxicon 5622 | 40 µМ | Plexxicon Inc. | HY-114153 |
| RPMI-Media 1640 | с 11 мМ глюкозы | Sigma Aldrich | R8758 |
| RPMI-Media 1640 | Sigma | R8758 | |
| TC-Insert для 6-луночковых плиток | Sarstedt | 83.3930.040 | |
| Пластиковая 6-луночковая пробирка для культур тканей TPP | TPP | 92006 | |
| Triton X-100 | 1% | Carl Roth | 3051.2 |
| Хлорид цинка | 0.8 мМ | Sigma | Z0152 |
| Цинк формалина | Polyscience | 21516-3.75 |
Ссылки
- Massier L, et al. An integrated single cell and spatial transcriptomic map of human white adipose tissue. Nat Commun. 2023;14(1):1438. doi:10.1038/s41467-023-36983-2.
- Rosen ED, Spiegelman BM. What We Talk About When We Talk About Fat. Cell. 2014;156(1-2):20-44. doi:10.1016/j.cell.2013.12.012.
- Ibrahim MM. Subcutaneous and visceral adipose tissue: structural and functional differences. Obes Rev. 2010;11(1):11-18. doi:10.1111/j.1467-789X.2009.00623.x.
- Bruun JM, Lihn AS, Pedersen SB, Richelsen B. Monocyte chemoattractant protein-1 release is higher in visceral than subcutaneous human adipose tissue: implication of macrophages resident in adipose tissue. J Clin Endocrinol Metab. 2005;90(4):2282-2289. doi:10.1210/jc.2004-1696.
- Curat CA, et al. Macrophages in human visceral adipose tissue: increased accumulation in obesity and a source of resistin and visfatin. Diabetologia. 2006;49(4):744-747. doi:10.1007/s00125-006-0173-z.
- Wang QA, Tao C, Gupta RK, Scherer PE. Tracking adipogenesis during white adipose tissue development, expansion and regeneration. Nat Med. 2013;19(10):1338-1344. doi:10.1038/nm.3324.
- Spalding KL, et al. Dynamics of fat cell turnover in humans. Nature. 2008;453(7196):783-787. doi:10.1038/nature06902.
- Weisberg SP, McCann D, Desai M, Rosenbaum M, Leibel RL, Ferrante AW. Obesity is associated with macrophage accumulation in adipose tissue. J Clin Invest. 2003;112(12):1796-1808. doi:10.1172/JCI200319246.
- Lindhorst A, et al. Adipocyte death triggers a pro-inflammatory response and induces metabolic activation of resident macrophages. Cell Death Dis. 2021;12(6):579. doi:10.1038/s41419-021-03872-9.
- Braune J, et al. Multinucleated giant cells in adipose tissue are specialized in adipocyte degradation. Diabetes. 2021;70(2):538-548. doi:10.2337/db20-0293.
- Cinti S, et al. Adipocyte death defines macrophage localization and function in adipose tissue of obese mice and humans. J Lipid Res. 2005;46(11):2347-2355. doi:10.1194/jlr.M500294-JLR200.
- Wehr R, Lindhorst A, Arndt L, Krueger M, Raulien N, Gericke M. Lysosomal exocytosis by macrophages as a druggable mechanism for anti-inflammatory clearance of dead adipocytes in adipose tissue. Cell Death Dis. 2025. doi:10.1038/s41419-025-08334-0.
- Altintas MM, et al. Apoptosis, mastocytosis, and diminished adipocytokine gene expression accompany reduced epididymal fat mass in long-standing diet-induced obese mice. Lipids Health Dis. 2011;10(1):198. doi:10.1186/1476-511X-10-198.
- Lumeng CN, Bodzin JL, Saltiel AR. Obesity induces a phenotypic switch in adipose tissue macrophage polarization. J Clin Invest. 2007;117(1):175-184. doi:10.1172/JCI29881.
- Lumeng CN, DelProposto JB, Westcott DJ, Saltiel AR. Phenotypic switching of adipose tissue macrophages with obesity is generated by spatiotemporal differences in macrophage subtypes. Diabetes. 2008;57(12):3239-3246. doi:10.2337/db08-0872.
- Haka AS, et al. Exocytosis of macrophage lysosomes leads to digestion of apoptotic adipocytes and foam cell formation. J Lipid Res. 2016;57(6):980-992. doi:10.1194/jlr.M064089.
- Strissel KJ, et al. Adipocyte death, adipose tissue remodeling, and obesity complications. Diabetes. 2007;56(12):2910-2918. doi:10.2337/db07-0767.
- Xu R, et al. Lipid-associated macrophages between aggravation and alleviation of metabolic diseases. Trends Endocrinol Metab. 2024. doi:10.1016/j.tem.2024.04.009.
- Gericke M, Weyer U, Braune J, Bechmann I, Eilers J. A method for long-term live imaging of tissue macrophages in adipose tissue explants. Am J Physiol Endocrinol Metab. 2015;308(11). doi:10.1152/ajpendo.00075.2015.
- Gericke MT, et al. Receptors for NPY and PACAP differ in expression and activity during adipogenesis in the murine 3T3-L1 fibroblast cell line. Br J Pharmacol. 2009;157(4):620-632. doi:10.1111/j.1476-5381.2009.00164.x.
- Arndt L, et al. The role of IL-13 and IL-4 in adipose tissue fibrosis. Int J Mol Sci. 2023;24(6):5672. doi:10.3390/ijms24065672.
- Haase J, et al. Local proliferation of macrophages in adipose tissue during obesity-induced inflammation. Diabetologia. 2014;57(3):562-571. doi:10.1007/s00125-013-3139-y.
- Braune J, et al. IL-6 regulates M2 polarization and local proliferation of adipose tissue macrophages in obesity. J Immunol. 2017;198(7):2927-2934. doi:10.4049/jimmunol.1600476.
- Neugebauer J, et al. The Impact of Resident Adipose Tissue Macrophages on Adipocyte Homeostasis and Dedifferentiation. Int J Mol Sci. 2024;25(23):13019. doi:10.3390/ijms252313019.
- Schopow N, et al. Examination of ex vivo viability of human adipose tissue slice culture. PLoS One. 2020;15(5). doi:10.1371/journal.pone.0233152.
- Braune J, et al. Hedgehog signalling in myeloid cells impacts on body weight, adipose tissue inflammation and glucose metabolism. Diabetologia. 2017;60(5):889-899. doi:10.1007/s00125-017-4223-5.
- Van Rooijen N, Van Nieuwmegen R. Elimination of phagocytic cells in the spleen after intravenous injection of liposome-encapsulated dichloromethylene diphosphonate: an enzyme-histochemical study. Cell Tissue Res. 1984;238(2):355-358. doi:10.1007/BF00217308.
- Sasmono RT, et al. A macrophage colony-stimulating factor receptor-green fluorescent protein transgene is expressed throughout the mononuclear phagocyte system of the mouse. Blood. 2003;101(3):1155-1163. doi:10.1182/blood-2002-02-0569.
- Blüher M. Adipose tissue dysfunction in obesity. Exp Clin Endocrinol Diabetes. 2009;117(6):241-250. doi:10.1055/s-0029-1192044.
- Hotamisligil GS, Shargill NS, Spiegelman BM. Adipose expression of tumor necrosis factor-alpha: direct role in obesity-linked insulin resistance. Science. 1993;259(5091):87-91. doi:10.1126/science.7678183.
- Cohen M, et al. Adipose tissue explant culture using PDMS flow chambers: an alternative to static explant culture. Adipocyte. 2025;14(1):2578286. doi:10.1080/21623945.2025.2578286.
- Du ZY, et al. Depot-dependent effects of adipose tissue explants on co-cultured hepatocytes. PLoS One. 2011;6(6). doi:10.1371/journal.pone.0020917.
- Murano I, et al. Dead adipocytes, detected as crown-like structures, are prevalent in visceral fat depots of genetically obese mice. J Lipid Res. 2008;49(7):1562-1568. doi:10.1194/jlr.M800019-JLR200.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Перепечатки и разрешения
