В данном протоколе описаны методы выделения, очистки и культивирования высокочистых миелоидных клеток/микроглии человека из посмертных тканей головного мозга, полученных в ходе экспресс-аутопсии у людей с вирусом иммунодефицита человека 1-го типа (HIV-1) и без него. Этот метод представляет собой надежную платформу ex vivo для изучения биологии миелоидных клеток/микроглии, резервуаров HIV в головном мозге, нейровоспаления и стратегий лечения HIV.
Методическая статья
Выделение микроглии головного мозга для изучения персистенции вируса иммунодефицита человека-1
* These authors contributed equally
В этой статье
Краткое содержание
Аннотация
Нами был разработан и оптимизирован надежный протокол выделения, культивирования и изучения первичных миелоидных клеток головного мозга человека (BrMCs) из тканей мозга, полученных при экспресс-аутопсии посмертно от людей с ВИЧ-1 (ВИЧ) или без него, при котором >97,3% BrMCs представляют собой микроглию мозга (MG). Поэтому для более точного описания клеточных популяций мы называем эти изолированные BrMCs сокращенно MG или BrMCs/MG. Данный метод позволяет проводить комплексные исследования биологии микроглии ex vivo, включая ее роль в поддержании резервуаров ВИЧ в мозге, опосредовании нейровоспаления и возникновении повреждений нейронов, а также оценивать стратегии лечения ВИЧ.
Для сохранения жизнеспособности клеток и целостности РНК/белков образцы тканей мозга собирали в течение 6 ч после смерти, сразу после проведения экспресс-вскрытия в исследовательских целях. Несколько отделов, включая лобную, теменную и затылочную кору, гиппокамп и базальные ганглии, обрабатывали методом ферментативного переваривания и контролируемой механической диссоциации с последующим центрифугированием в градиенте плотности для получения жизнеспособных суспензий одиночных клеток с эффективным удалением миелинового детрита и лизисом эритроцитов. Затем BrMCs/MG очищали с помощью двухэтапного метода изоляции, состоящего из деплеции CD3⁺ Т-клеток с последующим обогащением магнитными бусинами CD11b⁺ для обеспечения чистоты и специфичности.
Очищенные миелоидные клетки культивировали в определенных условиях с добавлением M-CSF для поддержания жизнеспособности и функциональной целостности в течение длительного культивирования ex vivo. Эта оптимизированная платформа представляет собой надежную и масштабируемую систему для последующего молекулярного, иммунологического и вирусологического анализа резидентных в мозге резервуаров ВИЧ и связанных с ними механизмов в BrMCs/MG.
Введение
Миелоидные клетки головного мозга (BrMCs)/микроглия являются основными клетками врожденного иммунитета в центральной нервной системе (ЦНС)1,2,3. В здоровом состоянии они постоянно контролируют состояние мозга и участвуют в таких процессах, как синаптический прунинг, удаление клеточного дебриса и поддержка нейронов4,5,6. При возникновении заболевания микроглия иммунологически активируется, что приводит к нейровоспалению, которое играет важную роль в нейродегенерации при различных расстройствах ЦНС7,8,9. При инфекции ВИЧ-1 (ВИЧ) BrMCs/микроглия, наряду с T-клетками ЦНС и, возможно, астроцитами, являются основным резервуаром ВИЧ в мозге; при этом последние, вероятно, играют второстепенную роль в формировании резервуаров ВИЧ в ЦНС. В микроглии сохраняется латентно инфицированная интегрированная провирусная ДНК ВИЧ, однако экспрессия РНК ВИЧ остается на низком уровне, несмотря на эффективную антиретровирусную терапию (АРТ)10,11,12. Персистентная инфекция ВИЧ в BrMCs/микроглии приводит к хроническому воспалению и связана с ВИЧ-ассоциированным нейрокогнитивным расстройством (HAND) даже при современной АРТ, что проявляется когнитивными, поведенческими и двигательными симптомами у до 50% людей, живущих с ВИЧ (ЛЖВ)13,14,15,16. Таким образом, понимание функций персистентно инфицированной ВИЧ микроглии является одним из ключей к изучению молекулярных механизмов инфекции и латентности ВИЧ, взаимодействия микроглии с астроцитами и другими клетками ЦНС, повреждения нейронов и патогенеза HAND, что имеет решающее значение для поиска мишеней терапии против нейро-ВИЧ11,12,17.
Тем не менее, при изучении микроглии с использованием посмертных тканей головного мозга человека возникают определенные технические сложности. Высокое содержание миелина, особенно в белом веществе, может приводить к захвату клеток и засорению фильтров, что снижает выход клеток, если миелин не будет удален перед иммуномагнитным отбором18,19. После смерти пациентов с ВИЧ поверхностные маркеры клеток, такие как TMEM119 и P2RY12, могут подвергаться деградации, что затрудняет точную идентификацию микроглии20,21. Кроме того, в мозге инфицированных ВИЧ людей присутствуют миелоидные клетки, включая периферические моноциты и резидентные макрофаги тканей, которые имеют общие маркеры с микроглией; следовательно, требуются дополнительные этапы для обогащения чистой популяции BrMCs, в частности микроглии22,23.
Современные подходы к выделению микроглии человека плохо работают с посмертными тканями, инфицированными ВИЧ. Сортировка клеток с помощью флуоресцентно-активированной сортировки дает исчерпывающие результаты, но требует дорогостоящего оборудования, занимает больше времени и обеспечивает низкий выход клеток при использовании малых количеств ценных тканей головного мозга человека24,25. Иммунопаннинг является специфичным методом, однако он не позволяет обрабатывать образцы из многих областей мозга одновременно и требует длительного времени инкубации, что не подходит для посмертных тканей, которые нуждаются в быстрой обработке после доставки в течение ночи26,27. Кроме того, ни один из этих методов не позволяет выделить как Т-лимфоциты, так и миелоидные клетки из одного и того же образца, что необходимо для полного иммунного профилирования клеток ЦНС, инфицированных ВИЧ17,28.
Данный протокол представляет собой воспроизводимый, надежный и эффективный подход к выделению и обогащению микроглии и других иммунных клеток ЦНС из посмертных тканей головного мозга человека, инфицированных ВИЧ. Контролируемая механическая диссоциация в сочетании с мягким ферментативным перевариванием (например, с использованием TrypLE Express и DNase I) позволяет в значительной степени сохранить поверхностные антигены и минимизировать агрегацию клеток29,30. Миелин удаляется путем центрифугирования в градиенте плотности Percoll с последующим иммуномагнитным разделением CD3⁺ Т-клеток и CD11b⁺ миелоидных клеток31,32. Важно отметить, что использование мягких условий ферментативного воздействия сохраняет ключевые миелоидные маркеры, включая CD11b и CD68, а также специфические биомаркеры микроглии, такие как TMEM119 и P2RY12, что позволяет точно охарактеризовать клетки ЦНС и провести последующий анализ сигнальных путей33. Двухэтапный подход к селекции также позволяет получить высокочистую фракцию CD3⁺ Т-клеток, пригодную для вирусологических и иммунологических исследований, что особенно актуально для NeuroHIV, учитывая роль Т-клеток в вирусном резервуаре ЦНС и ассоциированное с ВИЧ неврологическое повреждение после инфильтрации Т-клеток в мозг34,35.
В целом, данный двухэтапный последовательный подход — первоначальное истощение CD3⁺ T-клеток с последующим обогащением CD11b⁺ миелоидных клеток из CD3-отрицательной фракции — повышает как чистоту клеток, так и выход клеток ЦНС, максимально используя эти ценные, ограниченные и важные образцы тканей. Изолированные клетки подходят для широкого спектра последующих приложений, включая массовое и одноклеточное секвенирование РНК, проточную цитометрию, функциональные тесты и вирусологические анализы, включая количественное определение ДНК/РНК ВИЧ и анализы по высеву вируса для определения резервуаров репликативно-компетентного вируса в резидентных иммунных клетках ЦНС17,36,37.
Данный протокол совместим с лабораториями, оборудованными для обработки посмертных тканей головного мозга в условиях BSL-2+, поскольку многие ЛЖВ (люди, живущие с ВИЧ) находятся на подавляющей АРТ или имели лишь краткосрочный перерыв в АРТ в конце жизни. Для подтверждения специфичности BrMCs/микроглии после изоляции требуются только стандартные платформы для иммуномагнитного разделения и проточной цитометрии. При внесении незначительных модификаций протокол может быть адаптирован для изучения заболеваний ЦНС, таких как болезнь Альцгеймера, рассеянный склероз, длительный COVID19 и черепно-мозговые травмы38,39,40. Этот протокол также был оптимизирован для выделения клеток мозга из приматов (NHPs), инфицированных SIVmac251 или SIVmac23912,41, а также из гуманизированных моделей мышей с ВИЧ-инфекцией или латентностью, что обеспечивает физиологически релевантную модель ВИЧ-инфекции в мозге. В отличие от человеческого мозга, эти животные модели более доступны и представляют собой ценный дополнительный ресурс для механистических и трансляционных исследований ВИЧ-инфекции, латентности ВИЧ и связанного с ней нейроВИЧ.
Протокол
ПРИМЕЧАНИЕ: Все манипуляции с тканями человека/НПГ (нечеловекообразных приматов) следует проводить в условиях BSL-2. Используйте соответствующие средства индивидуальной защиты, включая халат, перчатки, маску и защитный экран, при работе с Percoll, буфером ACK и DMSO. Утилизируйте химические и биологические отходы в соответствии с правилами вашего учреждения. Все одноразовое оборудование, использовавшееся при диссоциации тканей, такое как скальпели, пипетки и чашки Петри, перед утилизацией в пакеты для биоопасных отходов необходимо промыть 10% раствором гипохлорита натрия. Многоразовое оборудование, такое как пинцеты и ножницы, перед мытьем и автоклавированием следует промыть 10% раствором SDS.
1. Сбор тканей мозга
- Образцы человека
ПРИМЕЧАНИЕ: Ткани человека, использованные в данном исследовании, были получены в соответствии с протоколами, одобренными Институциональным наблюдательным советом (IRB) Калифорнийского университета в Сан-Диего (UCSD; IRB № 160563)12. Донорами были лица с ВИЧ, получавшие антиретровирусную терапию (АРТ). Основные характеристики доноров, включая возраст, пол, посмертный интервал (PMI) и статус АРТ, кратко приведены здесь; данные характеристики были подробно описаны в предыдущей публикации12.- Соберите ткани в течение ≤6 h после смерти для сохранения жизнеспособности клеток и целостности РНК и доставьте их в лабораторию по переработке в течение 24 h.
- Образцы НПЖ
ПРИМЕЧАНИЕ: Макаки-резус (Macaca mulatta) содержались в Национальном центре исследований приматов Эмори (ENPRC, PROTO201700286) или в Национальном центре исследований приматов Калифорнии (CNPRC, UCD IACUC #22832). Уход за животными и экспериментальные процедуры проводились в соответствии с правилами соответствующих Институциональных комитетов по уходу и использованию животных (IACUC) и соответствовали институциональным и федеральным руководствам. Все помещения по уходу за животными аккредитованы Министерством сельского хозяйства США и Международной ассоциацией по оценке и аккредитации ухода за лабораторными животными (AAALAC).- Соберите ткани непосредственно после некропсии12.
- Сбор тканей
ПРИМЕЧАНИЕ: Все манипуляции следует проводить в предварительно охлажденных лодочках для взвешивания, помещенных на лед.- Соберите от 2–20 g из каждого отдела мозга (например, фронтальной, теменной, затылочной коры, гиппокампа, базальных ганглиев) в зависимости от доступности ткани.
- Поместите ткани в ледяной DMEM/F12 с добавлением АРТ: 100 nM невирапина, 200 nM ралтегравира, 25 nM дарунавира. Храните ткани при 4 °C.
- Условия транспортировки
- Храните образцы в герметичных пробирках при 4 °C на льду.
- Транспортировка пробирок должна осуществляться сертифицированным персоналом в соответствии с правилами UN3373 для категории B12. Отправьте образцы на льду в лабораторию по переработке экспресс-доставкой (overnight).
2. Подготовка ткани
- Перенесите ткань в пробирки объемом 50 mL. Промойте ткань 10–15 раз, осторожно переворачивая пробирки с 20–40 mL холодного HBSS с DNase (10 U/mL), пока супернатант не станет прозрачным.
ПРИМЕЧАНИЕ: Эта процедура удаляет кровь, клеточный дебрис и загрязнения; убедитесь, что объема раствора достаточно для свободного перемещения фрагментов ткани при промывании. - Удалите и утилизируйте мозговые оболочки и крупные сосуды с помощью стерильного пинцета.
- Перенесите ткань в новую чашку Петри и зафиксируйте вес ткани (без учета контейнера) для каждой области мозга.
- Разорвите ткань на фрагменты размером ~1–2 mm с помощью стерильного пинцета в ~10 mL HBSS + DNase I (10 U/mL).
ПРИМЕЧАНИЕ: Измельчение можно проводить в чашке Петри с помощью скальпеля.
3. Ферментативное расщепление
- Подготовьте смесь для переваривания, смешав 10 mL 1x рекомбинантного фермента для диссоциации клеток и DNase I (конечная концентрация 10 U/mL).
- Предварительно прогрейте ротационный шейкер до 37 °C, а рекомбинантный фермент для диссоциации клеток с DNase I (конечная концентрация 10U/mL) — в инкубаторе при 37 °C.
- Перенесите ткань в смеси для переваривания из шага 3.1 в колбы (T150 при объемах > 50 mL; колбы меньшего объема, если < 50 mL) и инкубируйте в ротационных шейкерах при: 37 °C, 150 rpm, 30 min.
- Осторожно тритурируйте, используя пипетки объемом 10 mL, а затем 5 mL, перемещая жидкость вверх и вниз.
ПРИМЕЧАНИЕ: Избегайте интенсивного пипетирования. - Инкубируйте в течение 5 min при комнатной температуре, чтобы ткань осела.
- Сбор клеток
- Соберите супернатант в пробирку объемом 50 mL; это сбор №1. Добавьте в собранный супернатант 10% FBS для подавления активности фермента.
- Ресуспендируйте оставшуюся ткань в HBSS + DNase I (10U/mL) + 10% FBS (10 mL/г ткани). Осторожно тритурируйте и профильтруйте через сита с размером пор 70–100 µm.
ПРИМЕЧАНИЕ: При достаточном ферментативном переваривании вся ткань пройдет через сито. - Центрифугируйте при 500 × g при комнатной температуре в течение 10 min; это сбор №2.
ПРИМЕЧАНИЕ: Для максимального восстановления дайте суспензии осесть и перенесите только супернатант в новую пробирку.
- Заключительная обработка
- Центрифугируйте собранные фракции (C1 и C2) при 500 × g в течение 10 min.
- Удалите супернатанты. Объедините клеточные осадки из C1 и C2 в одну пробирку.
4. Удаление миелинового дебриса (градиент Percoll)
- Приготовьте изотонический раствор Percoll (SIP), смешивая 9 частей Percoll с 1 частью 10x HBSS. Приготовьте объем, достаточный для обеспечения ~2,5 mL/g ткани.
- Приготовьте рабочий раствор 35% Percoll, смешав 3,5 mL SIP с 5,5 mL 1x HBSS. Приготовьте объем, достаточный для обеспечения ~4,5 mL/g ткани.
- Центрифугирование в градиенте плотности
- Ресуспендируйте клеточный осадок, полученный на этапе 3.7.2, в 35% Percoll. Используйте примерно 4,5 ml 35% Percoll на грамм исходного веса ткани (т. е. веса ткани, измеренного до диссоциации).
- ПРИМЕЧАНИЕ: Ресуспендируйте клетки в 35% Percoll в пробирке объемом 50 mL (максимум 30 mL на пробирку). Если образцы тканей крупные, распределите клетки по нескольким пробиркам объемом 50 mL.
- Осторожно нанесите поверх каждого слоя 10 mL 1x HBSS. Инкубируйте в течение 5 min на льду или при 4 °C.
- Центрифугируйте при 800 × g в течение 45 min при 4 °C (без торможения при замедлении).
- Сбор фракций
- Осторожно удалите супернатант и миелиновый слой, не нарушая нижнюю интерфазу.
- Перенесите осадок и интерфазу (под миелиновым слоем, содержащую смесь клеток головного мозга и фракцию Percoll) в новую коническую пробирку объемом 50 mL, чтобы избежать переноса клеточного дебриса.
- Разбавление и промывка
- Добавьте HBSS в соотношении 3:1 (например, 30 mL HBSS на 10 mL собранной суспензии), чтобы разбавить Percoll (~3-кратное разбавление).
- Центрифугируйте при 1 000 × g в течение 10 min при 4 °C (используйте полный тормоз и ускорение).
- Полностью удалите супернатант.
- Лизис эритроцитов и подсчет клеток
- Обработайте клеточный осадок после этапа 4.5.3 буфером ACK (5 mL, 10 min, 37 °C).
- Подсчитайте количество жизнеспособных клеток, используя трипановый синий.
- ПРИМЕЧАНИЕ: Ожидаемый выход: ~0,1–1 × 10⁶ клеток ЦНС/g ткани, в зависимости от состояния тканей.
- Добавьте 10 mL PBS для инактивации лизирующего буфера ACK. Центрифугируйте при 500 × g в течение 5 min.
ПРИМЕЧАНИЕ: Дополнительный этап: Клетки можно культивировать в течение ночи перед сортировкой при плотности 0,5–1 × 10⁶ клеток/mL среды (DMEM/F-12, добавка глутамина с пируватом натрия (500 mL), 10% термоинактивированной FBS, 1x буферный раствор HEPES, 1x антибиотик-антимикотик (5,5 mL 100-кратного стока), 10 ng/mL MCSF (1 000-кратный сток).
После завершения диссоциации тканей, лизиса эритроцитов, подсчета клеток и возможной ночной культуры, описанных выше, популяции клеток CD3+ и CD11b+ были изолированы с использованием коммерчески доступных наборов для изоляции клеток согласно инструкциям производителя. Подробная информация о наборах, реагентах и полной процедуре изоляции приведена в Таблице материалов, а краткий обзор процесса изоляции представлен ниже.
5. Изоляция CD3⁺ T-клеток (положительная селекция)
ПРИМЕЧАНИЕ: Сначала выделите CD3+ из подготовленной суспензии одиночных клеток, используя набор для иммуномагнитного положительного отбора CD3 с возможностью высвобождения клеток (см. Таблицу материалов). Сохраните обе фракции, CD3+ и CD3-, полученные в этом разделе. Фракция CD3- потребуется для этапа 6.
- Приготовление буфера для высвобождения.
- В день использования приготовьте 1x буфер для высвобождения, разбавив 40x концентрат буфера для высвобождения буфером для сепарации клеток; храните его при температуре 4–6 °C или на льду.
ПРИМЕЧАНИЕ: Приготовьте по 2,5 mL 1x буфера для высвобождения для каждого образца, подлежащего обработке.
- В день использования приготовьте 1x буфер для высвобождения, разбавив 40x концентрат буфера для высвобождения буфером для сепарации клеток; храните его при температуре 4–6 °C или на льду.
- Подготовка образца клеток и маркировка селективным коктейлем.
- Ресуспендируйте осадок клеток, полученный на этапе 4.6.3, в буфере для сепарации клеток до концентрации 1 × 10⁸ клеток/mL в полистирольной пробирке с кругным дном объемом 5 mL.
- Добавьте в образец селективный коктейль CD3 из расчета 100 µL на 1 mL образца. Осторожно перемешайте образец и инкубируйте в течение 3 мин при комнатной температуре.
- Маркировка образца магнитными частицами.
- Непосредственно перед использованием перемешайте магнитные частицы на вортексе в течение 30 с. Добавьте магнитные частицы в образец из расчета 100 µL на 1 mL образца. Осторожно перемешайте образец и инкубируйте в течение 3 мин при комнатной температуре.
- Доведите общий объем образца до 2 mL с помощью буфера для сепарации клеток и перемешайте, осторожно пропипетировав суспензию вверх-вниз два или три раза.
- Изоляция фракции CD3+ методом магнитной сепарации.
- Поместите открытую пробирку с образцом в магнитный сепаратор клеток и инкубируйте в течение 5 мин при комнатной температуре.
- ПРИМЕЧАНИЕ: Клетки, связавшиеся с магнитными частицами, составляют фракцию CD3+ и остаются прикрепленными к стенке пробирки внутри магнитного поля; несвязанный супернатант представляет собой фракцию CD3-.
- Не вынимая пробирку из магнитного сепаратора, перенесите супернатант пипеткой в чистую маркированную коническую пробирку объемом 15 mL, предназначенную для фракции CD3-.
- Извлеките пробирку из магнитного сепаратора и осторожно ресуспендируйте оставшиеся клетки в 2 mL буфера для сепарации клеток.
- Повторите этапы с 5.4.1 по 5.4.3, чтобы провести в общей сложности три цикла магнитной сепарации по 5 мин, объединяя весь супернатант в одной пробирке с фракцией CD3-.
- Высвобождение фракции CD3+ из магнитных частиц.
- Добавьте 2,5 mL 1x буфера для высвобождения (приготовленного на этапе 5.1.2) к оставшимся клеткам и перемешайте, осторожно пропипетировав суспензию вверх-вниз два или три раза. Инкубируйте суспензию в течение 3 мин при комнатной температуре.
- Поместите открытую пробирку в магнитный сепаратор клеток и инкубируйте в течение 5 мин при комнатной температуре.
- Не вынимая пробирку из магнитного сепаратора, перенесите супернатант пипеткой в чистую маркированную коническую пробирку объемом 15 mL, предназначенную для фракции CD3+.
ПРИМЕЧАНИЕ: Буфер для высвобождения отсоединяет магнитные частицы от маркированных клеток: полученный супернатант является очищенной фракцией CD3+, в то время как остаточные магнитные частицы остаются связанными со стенкой пробирки в магнитном поле и удаляются.
- Подсчет клеток и криоконсервация
- Подсчитайте количество клеток и сохраните аликвоту CD3+, подвергнув аликвоты мгновенной заморозке при -80 °C после криоконсервации остальных клеток в криосмеси (90% FBS + 10% DMSO) в течение 24 ч в замораживающей среде на основе изопропанола, после чего перенесите образец в жидкий азот.
6. Изоляция CD11b⁺ миелоидных клеток (из фракции CD3⁻)
ПРИМЕЧАНИЕ: Фракция CD3-, сохраненная после этапа 5.4.4, была подвергнута второму этапу иммуномагнитного положительного отбора для изоляции миелоидных клеток CD11b+ с использованием магнитных микросфер анти-CD11b и магнитного сепаратора колоночного типа (см. Таблицу материалов).
- Приготовление буфера для разделения и определение количества клеток.
- Приготовьте 1x буфер для разделения на основе BSA, разбавив 20x концентрат изотоническим промывочным раствором; храните приготовленный буфер в охлажденном состоянии (4–8 °C) до использования.
- Определите общее количество клеток во фракции CD3 с помощью гемоцитометра или автоматического счетчика клеток.
- Маркировка клеток магнитными микросферами anti-CD11b.
- Центрифугируйте клеточную суспензию при 300 × g в течение 10 мин и полностью удалите супернатант.
- Ресуспендируйте клеточный осадок в 80 µL 1x буфера для разделения на основе BSA на каждые 1 × 10⁷ клеток.
- Добавьте 20 µL магнитных микросфер anti-CD11b на 1 × 10⁷ клеток, тщательно перемешайте и инкубируйте в течение 15 мин при 4–8 °C.
- ПРИМЕЧАНИЕ: При инкубации на влажном льду, а не в холодильнике, может потребоваться большее время инкубации. Инкубация при более высоких температурах или дольше рекомендованного времени может увеличить риск неспецифической маркировки клеток.
- Промойте маркированные клетки, добавив 1 mL 1x буфера для разделения на 1 × 10⁷ клеток, центрифугируйте при 300 × g в течение 10 мин и полностью удалите супернатант.
- Ресуспендируйте до 1 × 10⁸ клеток в 500 µL буфера для разделения.
- Проведение магнитного разделения на колонке.
- Поместите колонку для магнитного разделения в магнитный сепаратор и уравновесьте ее, промыв 500 µL 1x буфера для разделения (для колонки малого объема) или 1 mL 1x буфера для разделения (для колонки большого объема); удалите промывочный раствор.
ПРИМЕЧАНИЕ: Используйте колонку малого объема, если образец содержит небольшое общее количество клеток. Используйте колонку большого объема для образцов с большим общим количеством клеток, таких как препараты из селезенки или комбинированные иммунные препараты. - Поместите чистую полистирольную пробирку с круглым дном объемом 5 mL под уравновешенную колонку и нанесите 500 µL (колонка малого объема) или 1 mL (колонка большого объема) суспензии маркированных клеток на верхнюю часть колонки.
- После полного вхождения образца в колонку промойте ее трижды, добавляя по 500 µL 1x буфера для разделения при каждой промывке для колонки малого объема или по 1 mL для колонки большого объема. Добавляйте каждую последующую порцию промывочного раствора только после того, как резервуар колонки опустеет.
ПРИМЕЧАНИЕ: Суммарный элюат, собранный на этапах 6.3.2 и 6.3.3, представляет собой немаркированную фракцию CD11b-. - Извлеките колонку из магнитного сепаратора и поместите ее на чистую промаркированную полистирольную пробирку объемом 5 mL, предназначенную для фракции CD11b+.
- Нанесите пипеткой 1 mL (колонка малого объема) или 2 mL (колонка большого объема) 1x буфера для разделения на верхнюю часть колонки и немедленно вымойте маркированные клетки в пробирку, с силой нажав на поршень, поставляемый с колонкой.
- Поместите колонку для магнитного разделения в магнитный сепаратор и уравновесьте ее, промыв 500 µL 1x буфера для разделения (для колонки малого объема) или 1 mL 1x буфера для разделения (для колонки большого объема); удалите промывочный раствор.
- Количественное определение и дальнейшая обработка фракций CD11b+
- Подсчитайте количество клеток в обеих фракциях (CD11b+ и CD11b-). Сохраните аликвоту CD11b-, подвергнув ее мгновенному замораживанию при -80 °C после криоконсервации оставшихся клеток в криосмеси (90% FBS + 10% DMSO) в течение 24 ч в замораживающей среде на основе изопропанола, затем перенесите образец в жидкий азот.
- Используйте клетки CD11b+ для дальнейших экспериментов.
Результаты
Оптимизированный рабочий процесс, описанный в данном протоколе, позволяет воспроизводимо изолировать жизнеспособные, высокоочищенные T-клетки и BrMC/микроглию из посмертных тканей головного мозга человека, инфицированных ВИЧ. Успешное выполнение протокола подтверждается серией контрольных точек качества, включая оценку жизнеспособности клеток, количественное определение выхода и иммунофенотипическую характеристику на ключевых этапах. Ниже приведены репрезентативные результаты успешного эксперимента.
Диссоциация ткани и выделение клеток
Как показано на рисунке 1A, после механической диссоциации и центрифугирования в градиенте плотности правильно обработанный образец должен представлять собой визуально прозрачный осадок с минимальным количеством остаточного миелинового дебриса после центрифугирования в Percoll. В репрезентативных экспериментах с использованием тканей мозга, полученных при экспресс-аутопсии людей с ВИЧ (PWH), общий выход клеток до иммуномагнитного отбора обычно составляет от 8,0 × 10⁴ до 1,0 × 10⁶ клеток на грамм ткани мозга, что существенно ниже выхода из тканей селезенки (~5 × 10⁷ клеток/г) (Таблица 1), что отражает присущие этим тканям биологические различия.
Снижение выхода клеток или их жизнеспособности часто связано с длительным посмертным интервалом (>24 h), субоптимальными условиями хранения тканей или избыточным механическим воздействием при гомогенизации. В таких случаях слой миелина после центрифугирования в градиенте Percoll выглядит более толстым и диффузным, а интерфаза, содержащая клетки ЦНС, выражена менее четко. Неполное удаление слоя миелина (шаг протокола 4.4) может привести к загрязнению детритом миелина, который при подсчете методом исключения трипанового синего может быть ошибочно принят за погибшие клетки. Такое загрязнение также может препятствовать последующему мечению антителами, снижая тем самым эффективность магнитной сепарации. При подозрении на перенос миелина рекомендуется провести дополнительный этап центрифугирования в градиенте Percoll перед иммуномагнитной селекцией.
Фракция CD3+ T-клеток
Этап положительной селекции CD3⁺ Т-клеток служит двойной цели: обогащению фракции Т-клеток для параллельного анализа клеток ЦНС и одновременному удалению инфильтрирующих Т-лимфоцитов из фракции, обогащенной миелоидными клетками, чтобы исключить возможное загрязнение изолированных миелоидных клеток Т-клетками. В репрезентативных экспериментах доля CD3⁺ фракции составляла примерно 2–8% от общего количества изолированных клеток (приблизительно 1 × 10⁴ клеток/г ткани) (Таблица 1), что согласуется с предыдущими сообщениями, указывающими на ограниченный и низкий уровень инфильтрации Т-клеток в тканях ЦНС при ВИЧ-инфекции.
Обогащение, характеристика и культура ex vivo CD11b⁺ BrMC
После истощения CD3⁺ фракция CD3⁻ была подвергнута селекции CD11b⁺ с использованием магнитных микросфер. Как сообщалось ранее(12), эта процедура позволила обогатить пробу CD11b⁺ BrMCs до 95,2% по сравнению с 28,4% во фракции до селекции. Высокочувствительный RT-qPCR на маркер T-клеток CD3E (способный обнаружить одну T-клетку в одном миллионе BrMCs) не выявил детектируемых T-клеток в изолированных BrMCs/микроглии(12), что подтверждает высокую чистоту образца и исключает любое загрязнение T-клетками.
Очищенные CD11b⁺ BrMCs затем культивировали в среде для микроглиальных клеток в течение периода до 2 недель для восстановления клеток и их прикрепления с целью инициации клеточного роста. Как показано на Рисунке 1B, изолированные BrMCs человека сформировали монослой уже к 5-му дню после изоляции и имели биполярную морфологию. Теперь эти клетки готовы к измерениям ex vivo, характеристике и последующим функциональным анализам. Репрезентативный анализ чистоты фракции CD11b⁺, изолированной из мозга НПМ, с помощью проточной цитометрии показан на Рисунке 2A; он демонстрирует, что 97,3% клеток коэкспрессировали CD11b и TMEM119. Чистота препаратов BrMCs как человека, так и других НПМ была описана ранее12. В этих анализах фракция CD11b⁺ была обогащена с 28,4% до 95,5%, при этом клетки TMEM119⁺ составляли до 95,9% изолированной популяции из образцов человека. Мы называем эти клетки микроглией, хотя небольшая их часть может представлять другие резидентные популяции миелоидных клеток мозга.
Аналогичную процедуру можно применить для выделения Т-клеток CD3⁺ и миелоидных клеток CD11b⁺ (SMCs) селезенки (Таблица 1). Оценка чистоты показала, что доля CD3+ клеток составила ~98,9%, а CD11b+ клеток — 99,3% (Рисунок 2B,C). Эти популяции жизнеспособных клеток (Рисунок 2E,F) можно поддерживать в культуре, что позволяет проводить парный сравнительный анализ с выделенными клетками ЦНС (Рисунок 2D).
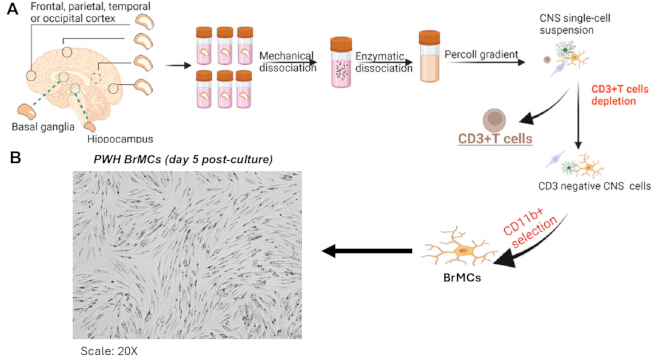
Рисунок 1. Двухэтапная последовательная процедура изоляции для очистки BrMCs. (A) Схема двухэтапной процедуры изоляции клеток ЦНС для получения очищенных CD11b⁺ BrMCs. (B) Морфология BrMCs (увеличение 100x) после 5 дней культивирования, демонстрирующая успешную адгезию MG к планшету. Сокращения: BrMCs = мозговые миелоидные клетки; ЦНС = центральная нервная система; MG = микроглия. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
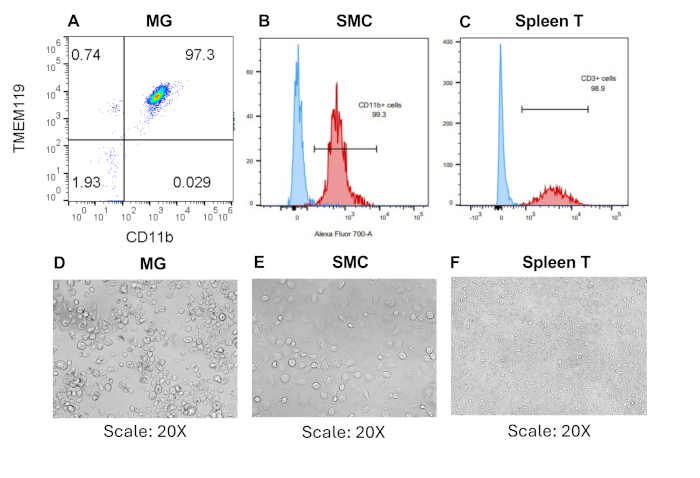
Рисунок 2. Успешное выделение Т-клеток и миелоидных клеток селезенки. (A-C) Анализ фракций CD3⁺ и CD11b⁺ методом проточной цитометрии с использованием указанных антител. (D-F) Репрезентативные изображения (снизу) микроглии, CD3⁺ Т-клеток и миелоидных клеток селезенки через 7 дней культивирования после выделения из мозга и селезенки (Масштаб: 20x). Сокращения: SMCs = миелоидные клетки селезенки; MG = микроглия. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
| Регион | Масса ткани (г) | Предварительная изоляция | CD3+ Т-клетки | CD11b+ BrMCs/SMC (ГКМС/ГМК) | |||
| ЛЖВ (люди, живущие с ВИЧ) | живые клетки | клеток/г ткани | живые клетки | клеток/г ткани | живые клетки | клеток/г ткани | |
| FCP | 18.25 | 8,82E+06 | 4,83E+05 | 7,30E+05 | 1,33E+04 | 2,82E+06 | 1,55E+05 |
| ПЦР | 4.1 | 3,53E+05 | 8,61E+04 | 1,20E+05 | 2,93E+04 | ||
| TCX | 16 | 4,15E+06 | 2,59E+05 | 2,79E+06 | 1,74E+05 | ||
| ОКК | 4.24 | 1,75E+06 | 4,13E+05 | 4,50E+05 | 1,06E+05 | ||
| CRB | 11.4 | 4,15E+06 | 3,64E+05 | 2,64E+06 | 2,32E+05 | ||
| H | 1 | 1,23E+06 | 1,23E+06 | 6,00E+04 | 6,00E+04 | ||
| SPL | 5.25 | 2,82E+08 | 5,37E+07 | 2,98E+07 | 5,68E+06 | 9,60E+06 | 1,83E+06 |
Таблица 1: Выход каждого типа клеток после двухэтапного выделения клеток ЦНС.
Обсуждение
Для получения воспроизводимых данных при использовании данного протокола важно тщательно соблюдать каждый этап. Пропуск или поспешное выполнение любого шага может привести к снижению выхода, жизнеспособности и чистоты клеток. Наиболее критическим фактором перед началом анализа является скорость обработки тканей после смерти42. Ткань головного мозга человека следует обрабатывать как можно скорее, в идеале в течение 6–12 h. Более длительное ожидание приводит к разрушению поверхностных антигенов микроглии, таких как TMEM119 и P2RY12, и снижает жизнеспособность клеток20. Чтобы избежать этого, крайне важно обеспечить оперативную транспортировку тканей и их немедленное хранение при 4 °C в HBSS с DNase I.
Механическую диссоциацию необходимо регулировать с осторожностью43. Чрезмерная гомогенизация приводит к разрушению клеток и высвобождению ДНК, что вызывает агрегацию и снижает как выход продукта, так и эффективность колонки44. Если ткани гомогенизированы недостаточно, живые клетки останутся запертыми внутри фрагментов ткани. Добавление ДНКазы I в среду для диссоциации помогает предотвратить агрегацию45. Обычно хорошим результатом дает проведение трех-четырех циклов измельчения с промывками между ними. При проведении центрифугирования в градиенте плотности Percoll важно строго соблюдать настройки центрифуги и не использовать тормоз, так как это приведет к перемешиванию слоев и нарушит разделение клеток45. При добавлении HBSS в суспензию Percoll раствор HBSS следует вливать медленно по стенке пробирки, чтобы сохранить разделение слоев. Если исследователь не имеет опыта в этой процедуре, рекомендуется потренироваться на цветных растворах перед использованием ценного биоматериала. Во время магнитного разделения на колонках для CD11b+ клетки и все буферы следует содержать при температуре 4–8 °C. Если во время инкубации с микросферами температура поднимется выше этого значения, это может вызвать неспецифическое мечение, «кэппинг» антител и поглощение сфер клетками, что значительно снизит чистоту и эффективность селекции33.
Данный протокол может быть адаптирован для различных типов тканей или условий лабораторного оснащения. Если ткань содержит большое количество эритроцитов, например, при неполной перфузии сердца, перед центрифугированием в градиенте Percoll можно добавить этап лизиса с помощью ACK-буфера для их удаления и улучшения качества разделения46. Инкубацию с ACK-буфером не следует проводить в течение длительного времени, так как это может снизить жизнеспособность лейкоцитов47. Если выход клеток остается низким, следует проверить остатки тканей на фильтре-сетке под стереомикроскопом. При наличии большого количества жизнеспособной ткани можно увеличить число циклов измельчения или нарезать ткани на кусочки массой менее 0,5 g на один фильтр. При сборе клеток из градиента Percoll желательно оставить небольшое количество Percoll над осадком, чтобы избежать потери интерфазы. Если в процессе сепарации MACS происходит засорение колонки, это обычно указывает на избыточное количество внесенных клеток или наличие клеточного детрита в суспензии.
Хотя данный протокол разработан для тканей головного мозга человека, инфицированных ВИЧ, при интерпретации результатов следует учитывать некоторые важные ограничения. Механическая диссоциация всегда вызывает клеточный стресс, который может временно изменить экспрессию генов микроглии и активировать воспалительные пути33,48. Другим ограничением является использование CD11b в качестве основного маркера селекции. CD11b обнаруживается на многих миелоидных клетках ЦНС, а не только на микроглии; он также присутствует на инфильтрирующих моноцитах и макрофагах, которые чаще встречаются в тканях, инфицированных ВИЧ, из-за нейровоспаления49. Для того чтобы отличить резидентную микроглию от инфильтрирующих клеток, необходим дальнейший анализ с использованием специфических маркеров микроглии, таких как TMEM119, P2RY12 и SALL120,50. Третьим ограничением является доступность тканей и различия между донорами. Посмертные образцы человеческого мозга незаменимы, что крайне затрудняет оптимизацию протокола с использованием технических повторов от одного и того же донора. Также наблюдаются различия между тканями по выходу клеток, жизнеспособности и активации микроглии, особенно у людей, живущих с ВИЧ (ЛЖВ), где нейрокогнитивный статус, история АРТ и другие проблемы со здоровьем сильно варьируют. Эти различия должны быть тщательно задокументированы и контролироваться в ходе экспериментов.
По сравнению с другими методами, изоляция с помощью FACS с использованием антител к CD11b, CD45, TMEM119 или P2RY12 позволяет достичь высокой чистоты, но требует дорогостоящего оборудования, занимает много времени и усиливает клеточный стресс33,51. Кроме того, этот метод обеспечивает меньший выход клеток, чем методы на основе магнитных микросфер52. Иммунопаннинг обладает высокой специфичностью, но также трудозатратен, требует специальной подготовки субстрата и плохо масштабируется при обработке тканей из нескольких областей53. Коммерческие наборы для ферментативной диссоциации могут увеличить выход единичных клеток и снизить механический стресс, однако они более дороги и могут изменять поверхностные маркеры клеток из-за активности протеаз, что снижает эффективность маркировки при последующих этапах иммуномагнитного разделения или проточной цитометрии54,55. Таким образом, данный протокол включает мягкое ферментативное переваривание на основном этапе диссоциации для сохранения поверхностных антигенов, что особенно важно для таких чувствительных маркеров, как CD11b, CD68 и TMEM119. Применяемый здесь поэтапный подход иммуномагнитного обеднения и обогащения, включающий удаление CD3+ T-клеток с последующей положительной селекцией CD11b+ клеток, дает реальное преимущество в рабочем процессе по сравнению с одноэтапными протоколами. Он позволяет восстанавливать T-клетки для параллельных иммунологических исследований, максимизируя при этом чистоту миелоидной фракции. Такое двойное восстановление особенно полезно при исследовании резервуаров ВИЧ, где для изучения важны как T-клетки, так и миелоидные клетки в ЦНС.
Изолированные клетки CD11b+ могут быть использованы для различных исследовательских целей. Для изучения вирусных резервуаров эта фракция подходит для измерения уровня антигена p24 ВИЧ, определения количества копий ДНК/РНК ВИЧ методом капельной цифровой ПЦР, а также для анализов вирусной экспансии ex vivo56,57. Все эти методы требуют жизнеспособных обогащенных миелоидных клеток и имеют важное значение для понимания природы резервуара в ЦНС, который сохраняется несмотря на АРТ58. Для транскриптомных исследований клетки, подготовленные по данному протоколу, подходят как для общего (bulk), так и для одноклеточного секвенирования РНК59,60. Это позволяет исследователям изучать активацию микроглии, специфические сигнатуры микроглии, связанные с заболеваниями, и ответы микроглии на ВИЧ-инфекцию на уровне отдельных клеток61. При внесении небольших изменений, таких как использование других наборов для селекции и корректировка объемов градиента, данный рабочий процесс может быть применен и к другим неврологическим заболеваниям, включая болезнь Альцгеймера, рассеянный склероз, постковидный синдром (long COVID19) и черепно-мозговые травмы, при которых также необходим анализ микроглии в посмертных тканях49,62.
Таким образом, данный протокол представляет собой надежный, масштабируемый, гибкий и воспроизводимый метод выделения миелоидных клеток/микроглии из тканей головного мозга человека и животных. Поскольку этот метод совместим со многими последующими аналитическими платформами и позволяет выделять несколько типов иммунных клеток из одного образца ткани, он является ценным инструментом для исследователей в области нейроиммунологии, вирусологии и нейропатологии.
Раскрытие информации
Авторы не заявляют о наличии конфликта интересов.
Благодарности
We thank Dr. Sara Gianella from the “Last Gift” cohort at UC San Diego for collecting human tissues. We also thank Dr. Ann Chahroudi at the Emory National Primate Research Center, Dr. Afam Okoye at Oregon Health & Science University, and Dr. Satya Dandekar at the University of California, Davis, for providing rhesus macaque tissues. This work was supported by R21MH128034, R01MH136852, R21AI167709, R01MH139446, and R01AI186609. The funders had no role in study design, data collection and analysis, decision to publish, or preparation of the manuscript.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| шприцы объемом 10 мл | VWR | Кат. № 76837-040 | |
| серологические пипетки на 25 мл | VWR | Кат. № 76201-710 | |
| лизирующий буфер ACK | Thermo Fisher Scientific | Кат. № A1049201 | |
| Антибиотик-антимикотик (100х) | Thermo Fisher Scientific | Кат. № 15240112 | |
| Промывочный раствор для системы autoMACS | Miltenyi Biotec | Кат. № 130-091-222 | |
| Бокс биологической безопасности (BSL-2) | |||
| Микросферы CD11b MicroBeads для человека и мыши – лиофилизированный | Miltenyi Biotec | Кат. № 130-097-142 | |
| CD11b MicroBeads, для приматов (не человека) | Miltenyi Biotec | Кат. № 130-091-100 | |
| Набор CD3 MicroBead, для приматов (non-human primate) | Miltenyi Biotec | Кат. № 130-092-012 | |
| Предметные стекла для подсчета клеток | Thermo Fisher Countess | Кат. № C10312 | Альтернатива VWR, кат. № 10228-0050 |
| Гермицидный отбеливатель Clorox | Essendant | Кат. № 50371500 | |
| Необработанные культуральные чашки Corning | Thermo Fisher Scientific | Кат. № 08-772-32 | |
| M-CSF макаки-крабоеда | Kingfisher Biotech | Кат. № RP1612Y-100 | |
| Одноразовые шприцы с наконечниками Luer-Lok | BD | Кат. № 14-829-45 | |
| DMEM/F-12 | Thermo Fisher Scientific | Кат. № 11320082 | |
| ДНКаза I, рекомбинантная, без РНКаз | Roche | Кат. № 4716728001 | |
| буфер EasySep | STEMCELL Technologies | Кат. № 20144 | |
| Набор для положительной селекции EasySep FITC Positive Selection Kit II | STEMCELL Technologies | Кат. № 17682 | |
| Набор для положительной селекции CD3-положительных клеток человека EasySep Release | STEMCELL Technologies | Кат. № 17751 | |
| клеточные фильтры Falcon, 70 µm и 100 µm | Corning | Кат. № 21008-950 | |
| Фетальная бычья сыворотка (ФБС) | VWR | Кат. №97068-091 | |
| Тонкий изогнутый пинцет | VWR | Кат. № 82027-410 | |
| Гентамицин | Thermo Fisher Scientific | Кат. № 15750060 | |
| Gibco RPMI 1640 | Thermo Fisher Scientific | Кат. № 11875-119 | |
| HBSS, 1x без кальция, магния и фенолового красного | Thermo Fisher Scientific | Кат. № 14175103 | |
| HBSS, 10x с кальцием, магнием и феноловым красным | Thermo Fisher Scientific | Кат. № 14060040 | |
| Гемоцитометр или автоматический счетчик клеток | |||
| Человеческий M-CSF | PeproTech | Кат. № 300-25 | альтернативный вариант, кат. № 78057 |
| Изотонический раствор для промывки/разведения при магнитном отделении | Miltenyi Biotec | 130-091-222 | |
| L-глутамин (200 мМ) | Thermo Fisher Scientific | Кат. № 25030-061 | |
| Стоковый раствор BSA для MACS (20x) | Miltenyi Biotec | Кат. № 130-091-376 | |
| Система магнитного разделения | EasySep или MACS | ||
| Колонки для МС | Miltenyi Biotec | Кат. № 130-042-201 | |
| Пенициллин-стрептомицин | Thermo Fisher Scientific | Кат. № 15140122 | |
| Percoll | Cytiva/GE Healthcare, | Кат. № GE17-0891-01 | |
| Защитные халаты | Kappler ProVent | Кат. № 17-988-497B | |
| Центрифуга с охлаждением | |||
| Пируват натрия (100 мМ) | Thermo Fisher Scientific | Кат. № 11360070 | |
| Пинцет для образцов | VWR | Кат. № 82027-440 | Альтернативный номер кат. 82027-438 |
| Стерильные одноразовые скальпели | Cardinal Health | Кат. № 11213-237 | Альтернатива VWR, кат. № 89140-800 |
| Фермент TrypLE Express (1x), феноловый красный | ThermoFisher | Кат. № 1250510 |
Ссылки
- Prinz M, Masuda T, Wheeler MA, Quintana FJ. Microglia and central nervous system-associated macrophages: from origin to disease modulation. Annu Rev Immunol. 2021;39:251-77.
- Labzin LI, Heneka MT, Latz E. Innate immunity and neurodegeneration. Annu Rev Med. 2018;69:437-49.
- Thompson KK, Tsirka SE. The diverse roles of microglia in the neurodegenerative aspects of central nervous system (CNS) autoimmunity. Int J Mol Sci. 2017;18(3):504.
- Cornell J, Salinas S, Huang HY, Zhou M. Microglia regulation of synaptic plasticity and learning and memory. Neural Regen Res. 2022;17(4):705-16.
- Konishi H, Kiyama H, Ueno M. Dual functions of microglia in the formation and refinement of neural circuits during development. Int J Dev Neurosci. 2019;77:18-25.
- Fujita Y, Yamashita T. Neuroprotective function of microglia in the developing brain. Neuronal Signal. 2021;5(1):NS20200024.
- Gao C, Jiang J, Tan Y, Chen S. Microglia in neurodegenerative diseases: mechanism and potential therapeutic targets. Signal Transduct Target Ther. 2023;8(1):359.
- Leng F, Edison P. Neuroinflammation and microglial activation in Alzheimer disease: where do we go from here? Nat Rev Neurol. 2021;17(3):157-72.
- Hickman S, et al. Microglia in neurodegeneration. Nat Neurosci. 2018;21(10):1359-69.
- Donoso M, et al. Identification, quantification, and characterization of HIV-1 reservoirs in the human brain. Cells. 2022;11(15):2379.
- Asahchop EL, et al. Reduced antiretroviral drug efficacy and concentration in HIV-infected microglia contributes to viral persistence in brain. Retrovirology. 2017;14(1):47.
- Tang Y, et al. Brain microglia serve as a persistent HIV reservoir despite durable antiretroviral therapy. J Clin Invest. 2023;133(12):e167417.
- Thompson LJP, et al. HIV-associated neurocognitive disorder: a look into cellular and molecular pathology. Int J Mol Sci. 2024;25(9):4697.
- Olivier IS, Cacabelos R, Naidoo V. Risk factors and pathogenesis of HIV-associated neurocognitive disorder: the role of host genetics. Int J Mol Sci. 2018;19(11):3594.
- Eggers C, et al. HIV-1-associated neurocognitive disorder: epidemiology, pathogenesis, diagnosis, and treatment. J Neurol. 2017;264(8):1715-27.
- Prates GS, et al. HIV expression persists in the cerebrospinal fluid of HIV-associated neurocognitive disorders despite effective ART. Emerg Microbes Infect. 2026;15(1):2616945.
- Ash MK, Al-Harthi L, Schneider JR. HIV in the brain: identifying viral reservoirs and addressing the challenges of an HIV cure. Vaccines (Basel). 2021;9(8):867.
- Andersen ND, Srinivas S, Piñero G, Monje PV. A rapid and versatile method for the isolation, purification and cryogenic storage of Schwann cells from adult rodent nerves. Sci Rep. 2016;6(1):31781.
- Flores-Obando RE, Freidin MM, Abrams CK. Rapid and specific immunomagnetic isolation of mouse primary oligodendrocytes. J Vis Exp. 2018;(135):e57543.
- Van Wageningen TA, et al. Regulation of microglial TMEM119 and P2RY12 immunoreactivity in multiple sclerosis white and grey matter lesions is dependent on their inflammatory environment. Acta Neuropathol Commun. 2019;7(1):206.
- Honarpisheh P, et al. Potential caveats of putative microglia-specific markers for assessment of age-related cerebrovascular neuroinflammation. J Neuroinflammation. 2020;17(1):366.
- Rai MA, et al. Comparative analysis of human microglial models for studies of HIV replication and pathogenesis. Retrovirology. 2020;17(1):35.
- Gumbs SB, et al. Human microglial models to study HIV infection and neuropathogenesis: a literature overview and comparative analyses. J Neurovirol. 2022;28(1):64-91.
- Ma Z, Zhou Y, Collins DJ, Ai Y. Fluorescence activated cell sorting via a focused traveling surface acoustic beam. Lab Chip. 2017;17(18):3176-85.
- Sutermaster BA, Darling EM. Considerations for high-yield, high-throughput cell enrichment: fluorescence versus magnetic sorting. Sci Rep. 2019;9(1):227.
- Simon M, et al. Loss of perivascular aquaporin-4 localization impairs glymphatic exchange and promotes amyloid β plaque formation in mice. Alzheimers Res Ther. 2022;14(1):59.
- Olah M, et al. A transcriptomic atlas of aged human microglia. Nat Commun. 2018;9(1):539.
- Nühn MM, et al. Shock and kill within the CNS: a promising HIV eradication approach? J Leukoc Biol. 2022;112(5):1297-315.
- Donlin LT, et al. Methods for high-dimensional analysis of cells dissociated from cryopreserved synovial tissue. Arthritis Res Ther. 2018;20(1):139.
- Montanari M, et al. Automated-mechanical procedure compared to gentle enzymatic tissue dissociation in cell function studies. Biomolecules. 2022;12(5):701.
- Galatro TF, et al. Isolation of microglia and immune infiltrates from mouse and primate central nervous system. In: Clausen BE, Laman JD, editors. Inflammation: Methods and Protocols. New York: Humana Press; 2017. p. 333-42.
- Grabert K, McColl BW. Isolation and phenotyping of adult mouse microglial cells. In: Rousselet G, editor. Macrophages: Methods and Protocols. New York: Humana Press; 2018. p. 77-86.
- Ocañas SR, et al. Minimizing the ex vivo confounds of cell-isolation techniques on transcriptomic and translatomic profiles of purified microglia. eNeuro. 2022;9(2):ENEURO.0348-21.2022.
- Subra C, Trautmann L. Role of T lymphocytes in HIV neuropathogenesis. Curr HIV/AIDS Rep. 2019;16(3):236-43.
- Farhadian SF, et al. HIV viral transcription and immune perturbations in the CNS of people with HIV despite ART. JCI Insight. 2022;7(13):e160267.
- Marsh SE, et al. Dissection of artifactual and confounding glial signatures by single-cell sequencing of mouse and human brain. Nat Neurosci. 2022;25(3):306-16.
- Jolly S, et al. Single-cell quantification of mRNA expression in the human brain. Sci Rep. 2019;9(1):12353.
- Schroeter CB, et al. One brain-all cells: a comprehensive protocol to isolate all principal CNS-resident cell types from brain and spinal cord of adult healthy and EAE mice. Cells. 2021;10(3):651.
- Swartzlander DB, et al. Concurrent cell type-specific isolation and profiling of mouse brains in inflammation and Alzheimer's disease. JCI Insight. 2018;3(13):e121109.
- Zhao J, et al. Single-cell RNA sequencing reveals the heterogeneity of liver-resident immune cells in human. Cell Discov. 2020;6(1):22.
- Li X, et al. Histone decrotonylation plays a distinct role in HIV latency. Sci Adv. 2026;12(15):eaec0149.
- Heng Y, et al. The effects of postmortem delay on mouse and human microglia gene expression. Glia. 2021;69(4):1053-60.
- Trujillo M, et al. Combined mechanical and enzymatic dissociation of mouse brain hippocampal tissue. J Vis Exp. 2021;(176):e63007.
- Herron S, Delpech JC, Madore C, Ikezu T. Using mechanical homogenization to isolate microglia from mouse brain tissue to preserve transcriptomic integrity. STAR Protoc. 2022;3(4):101670.
- STEMCELL Technologies. How to prepare a single cell suspension from a frozen cell sample. protocols.io. 2019. doi:10.17504/protocols.io.4umgwu6.
- Volovitz I, et al. A non-aggressive, highly efficient, enzymatic method for dissociation of human brain tumors and brain tissues to viable single cells. BMC Neurosci. 2016;17(1):30.
- Manglani M, Gossa S, McGavern DB. Leukocyte isolation from brain, spinal cord, and meninges for flow cytometric analysis. Curr Protoc Immunol. 2018;121(1):e44.
- Bakina O, et al. In situ Patch-seq analysis of microglia reveals a lack of stress genes as found in FACS-isolated microglia. PLoS One. 2024;19(7):e0302376.
- Narasipura SD, et al. Inflammatory responses revealed through HIV infection of microglia-containing cerebral organoids. J Neuroinflammation. 2025;22(1):36.
- Haage V, et al. Comprehensive gene expression meta-analysis identifies signature genes that distinguish microglia from peripheral monocytes/macrophages in health and glioma. Acta Neuropathol Commun. 2019;7(1):20.
- Pan J, Wan J. Methodological comparison of FACS and MACS isolation of enriched microglia and astrocytes from mouse brain. J Immunol Methods. 2020;486:112834.
- Bordt EA, et al. Isolation of microglia from mouse or human tissue. STAR Protoc. 2020;1(1):100035.
- Bohlen CJ, Bennett FC, Bennett ML. Isolation and culture of microglia. Curr Protoc Immunol. 2019;125(1):e70.
- MacMullan MA, et al. An enzyme-free, cold-process acoustic method for gentle and effective tissue dissociation. bioRxiv. 2023:2023.10.03.560704. doi:10.1101/2023.10.03.560704.
- Mattei D, et al. Enzymatic dissociation induces transcriptional and proteotype bias in brain cell populations. Int J Mol Sci. 2020;21(21):7944.
- Kuzmichev YV, et al. Application of ultrasensitive digital ELISA for p24 enables improved evaluation of HIV-1 reservoir diversity and growth kinetics in viral outgrowth assays. Sci Rep. 2023;13(1):10958.
- Ferreira EA, Clements JE, Veenhuis RT. HIV-1 myeloid reservoirs: contributors to viral persistence and pathogenesis. Curr HIV/AIDS Rep. 2024;21(2):62-74.
- León-Rivera R, et al. Central nervous system viral seeding by mature monocytes and potential therapies to reduce CNS viral reservoirs in the cART era. mBio. 2021;12(2):e03633-20.
- Alyaqoobi Z, He Y, Wang X. Single-cell and bulk transcriptome analysis reveals the impact of inflammatory microglia on prognosis and immunotherapy response in primary glioblastoma. Clin Transl Oncol. 2026;28(6):2314-34.
- Farhadian SF, et al. Single-cell RNA sequencing reveals microglia-like cells in cerebrospinal fluid during virologically suppressed HIV. JCI Insight. 2018;3(18):e121718.
- Spurgat MS, Tang SJ. Single-cell RNA-sequencing: astrocyte and microglial heterogeneity in health and disease. Cells. 2022;11(13):2021.
- Marsh SE, et al. Multi-modal analysis and modeling of human neurodegenerative disease to reveal disease mechanisms and biomarkers. Alzheimers Dement. 2022;18:e061905.