В данном протоколе описывается разработка репортерной аденовирусной системы на основе фибробластов под управлением промотора коллагена I типа мыши, предназначенной для лонгитюдного мониторинга активации фибробластов и проведения высокопроизводительного скрининга антифибротических соединений.
Для просмотра этого контента требуется подписка на JoVE. Войдите или начните свой бесплатный пробный период.
Методическая статья
Система аденовирусного репортера на основе фибробластов под управлением промотора коллагена I типа альфа-1 мыши для скрининга антифибротических препаратов
* These authors contributed equally
В этой статье
Краткое содержание
Аннотация
Фиброз миокарда, характеризующийся аберрантной активацией фибробластов и избыточным отложением внеклеточного матрикса, не имеет таргетной терапии, главным образом из-за отсутствия лонгитюдных, масштабируемых и неразрушающих in vitro платформ для скрининга. Традиционные анализы конечных точек и ресурсозатратные модели на стволовых клетках по своей сути исключают мониторинг прогрессирования фиброза в режиме реального времени. Для преодоления этих ограничений в данном протоколе описываются создание, оптимизация и валидация аденовирусной системы с флуоресцентным репортером mCherry под управлением промотора коллагена I типа альфа-1 (Col1a1) мыши (Ad-mCol1a1p-mCherry) в фибробластах NIH/3T3. Подробно описаны критические этапы упаковки рекомбинантного аденовируса, оптимизации трансдукции (множественности заражения) для минимизации цитотоксичности и создания надежной модели фиброза, индуцированного трансформирующим ростом фактором бета (TGF-β). Благодаря исключению необходимости фиксации клеток, эта система позволяет осуществлять прямой и лонгитюдный мониторинг транскрипции коллагена в живых клетках. Специфичность и надежность модели фармакологически подтверждены с использованием ингибитора рецептора I типа TGF‑β (ALK5) SB431542, при этом данные флуоресценции коррелировали с эндогенными маркерами фиброза, количественно определенными с помощью количественной полимеразной цепной реакции с обратной транскрипцией и иммуноферментного анализа. В конечном итоге эта экономически эффективная платформа представляет собой доступный инструмент для высокопроизводительного скрининга новых антифибротических агентов, что ускоряет трансляционные исследования в области сердечно-сосудистых заболеваний.
Введение
Лечение фиброза миокарда представляет собой серьезную клиническую проблему. Этот процесс, характеризующийся аберрантной активацией покоящихся фибробластов в миофибробласты и избыточным отложением внеклеточного матрикса (ВКМ), является необратимым терминальным путем, общим для сердечной недостаточности, инфаркта миокарда и других сердечно-сосудистых заболеваний1,2,3. Однако современные стратегии лечения имеют значительные ограничения. Традиционные методы вмешательства, такие как применение диуретиков, β-блокаторов и ингибиторов ренин-ангиотензин-альдостероновой системы, прежде всего облегчают системный гемодинамический стресс и смягчают нейрогуморальную активацию4,5,6,7. Эти виды терапии не позволяют напрямую воздействовать на активацию фибробластов или остановить продолжающееся отложение коллагена. Кроме того, несмотря на то, что данную патологию стимулируют такие сигнальные каскады, как путь трансформирующего ростового фактора бета (TGF-β)/Smad, окислительный стресс и метаболическое перепрограммирование, внедрение этих знаний в практику создания прямых антифиброзных препаратов остается затруднительным из-за системной токсичности и неспецифических механизмов доставки8,9,10. Таким образом, существует острая необходимость в новых, таргетных антифиброзных методах терапии. Основным препятствием для трансляции является отсутствие систем функциональной оценки, способных чувствительно и динамично регистрировать активацию фибробластов. Традиционные экспериментальные модели обладают существенными ограничениями, которые препятствуют эффективному фармакологическому скринингу11,12. В то время как модели животных in vivo воспроизводят глобальное ремоделирование сердца, они характеризуются межвидовыми различиями, длительными сроками экспериментов, высокой стоимостью и низкой пропускной способностью11.
Для преодоления этих препятствий были созданы различные платформы для скрининга in vitro, однако в них сохраняются критические методологические недостатки. Анализы с использованием высококонтентной иммунофлуоресценции требуют деструктивной фиксации клеток и трудоемкой обработки, обеспечивая лишь статичный снимок, а не фиксируя кинетику активации фибробластов в реальном времени. Аналогично, платформы, интегрирующие бесконтрастный импедансный мониторинг с масс-спектрометрией (MS/MS), страдают от неспецифичности и низкой масштабируемости, так как падение импеданса, вызванное общей клеточной токсичностью, может быть легко ошибочно принято за истинную антифибротическую эффективность. Кроме того, репортерные системы, созданные с помощью технологии коротких палиндромных повторов, регулярно расположенных группами (CRISPR), с использованием индуцированных плюрипотентных стволовых клеток (iPSCs) для отслеживания маркеров цитоскелета (например, альфа-гладкомышечного актина [α-SMA]/ACTA2), сталкиваются с серьезными трансляционными барьерами13. Эти модели на основе iPSCs чрезмерно дороги, технически сложны и в значительной степени недоступны для рутинного высокопроизводительного скрининга. Более того, опора на такие маркеры цитоскелета, как α-SMA, может неточно отражать патологический исход, поскольку их экспрессия не коррелирует строго с функциональной секрецией и избыточным отложением ECM14. Следовательно, эти системы недостаточны для лонгитюдного картирования клеточных ответов на ранних стадиях при фармакологическом вмешательстве.
В отличие от этого, в данном протоколе описывается система лонгитюдного функционального репортера под управлением промотора коллагена I типа альфа-1 (Col1a1), целью которой является создание неразрушающей и надежной платформы для мониторинга активации фибробластов. Поскольку коллаген I типа является основным компонентом внеклеточного матрикса, откладываемым в процессе ремоделирования миокарда, регистрация транскрипционной активации кодирующего его гена Col1a1 служит прямым и патологически значимым показателем активации фибробластов. Данная модель на основе промотора Col1a1 обеспечивает непрерывный мониторинг фиброзных процессов на молекулярном уровне, представляя собой чувствительную, лонгитюдную и количественно определяемую платформу, оптимизированную для механистического скрининга лекарственных препаратов.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Протокол
Мы подтверждаем, что все эксперименты проводились в соответствии с институциональными и национальными рекомендациями. Поскольку в данном исследовании использовались исключительно установленная линия эмбриональных фибробластов мышей NIH Swiss (NIH/3T3) и репортерная система mCol1a1p-mCherry, и в нем не принимали участия позвоночные животные, эмбрионы или люди, этическое одобрение институционального наблюдательного совета для процедур, описанных в данной статье, не требовалось.
Все процедуры с использованием рекомбинантных аденовирусных векторов проводились в соответствии с институциональными правилами биобезопасности и стандартными практиками уровня биобезопасности 2 (BSL-2). Работа с вирусом, трансдукция, хранение и утилизация отходов осуществлялись с использованием сертифицированных шкафов биологической безопасности и соответствующих средств индивидуальной защиты. Жидкие отходы, содержащие аденовирусный материал, перед утилизацией подвергались деконтаминации свежеприготовленным раствором гипохлорита натрия, а загрязненные расходные материалы автоклавировались согласно институциональным протоколам биобезопасности. Случайные проливы немедленно дезинфицировались с помощью одобренных вируцидных средств в соответствии с институциональными процедурами реагирования при проливе биоматериалов.
1. Обзор хода эксперимента
- Создание модели мыши Col1a1 рекомбинантный аденовирус под управлением промотора, описанный на этапе 2.
- Оптимизируйте условия вирусной трансдукции в фибробластах NIH/3T3, как описано в шаге 3.
- Создание системы с ответом на ТФ-β in vitro модель репортера фиброза, описанная на этапе 4.
- Подтвердите стабильность, специфичность и биологическую воспроизводимость модели, используя стимуляцию TGF-β в зависимости от времени и дозы, как описано в шаге 4.
- Проведите фармакологическое ингибирование с использованием SB431542, как описано в шаге 5.
- Проведите последующий анализ методом иммуноферментного анализа (ELISA) и количественной полимеразной цепной реакции в реальном времени (кПЦР), как описано в шаге 5.
ПРИМЕЧАНИЕ: См. Рисунок 1A для получения схематического обзора хода эксперимента. См. Таблица материалов для экспериментальной установки и реагентов.
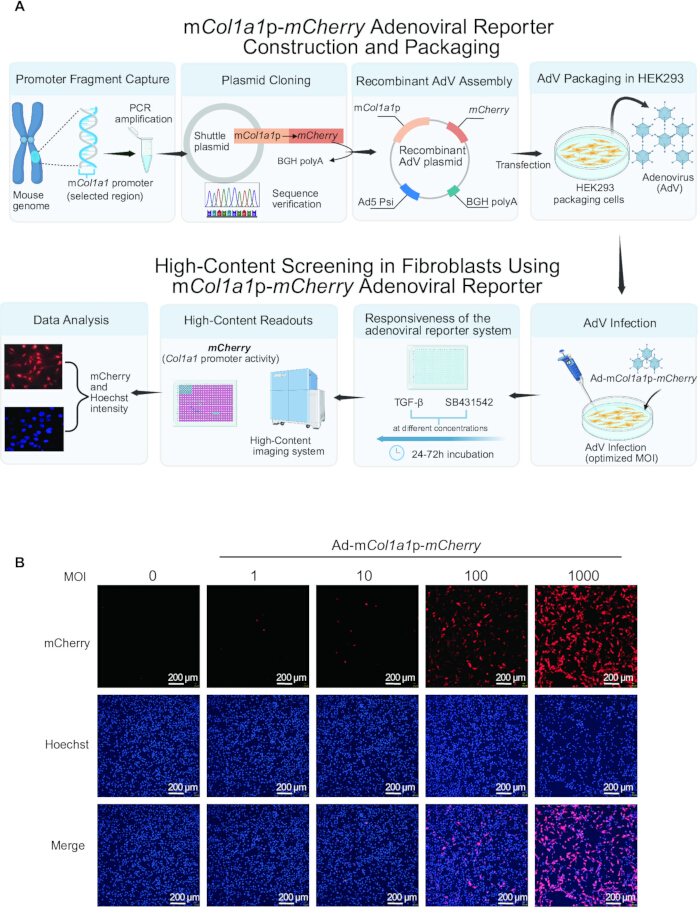
Рисунок 1Рабочий процесс создания и валидации mCol1a1p-mCherry аденовирусная репортерная система в фибробластах. (A) Схематический обзор конструкции аденовирусного (AdV) mCol1a1p-mCherry репортерная система и экспериментальный рабочий процесс для валидации модели в фибробластах NIH/3T3. Рабочий процесс включает клонирование промотора, сборку рекомбинантного аденовируса, упаковку вируса в клетках HEK293, оптимизацию множественности заражения (MOI) и последующий высокопроизводительный флуоресцентный скрининг.B) Репрезентативные изображения флуоресценции фибробластов NIH/3T3, инфицированных Ad-mCol1a1p-mCherry аденовирус с множественностью заражения (MOI), равной 0, 1, 10, 10 и 100. Ядра окрашивали красителем Hoechst 3342 (синий цвет), и mCherry флуоресценция (красная) указывает на Col1a1 активность промотора. Интенсивность флуоресценции количественно определяли с помощью высокопроизводительного имиджинга (high-content imaging) и нормировали по количеству ядер. Для последующих экспериментов была выбрана множественность заражения (MOI), равная 10, исходя из стабильной и однородной экспрессии репортера при минимальных морфологических изменениях. Масштабные отрезки = 200 µmДанный рисунок был создан с помощью BioRender.com с использованием утвержденных лицензий. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
2. Конструирование, упаковка и амплификация аденовируса с промотором mCol1a1
- Конструирование рекомбинантного аденовирусного вектора
- Клонируйте фрагмент промотора гена Col1a1 мыши длиной 2354 bp (геномные координаты: chr1:9482479–94827132; от −271 до +83 bp относительно сайта начала транскрипции [TSS]) выше репортерного гена mCherry в аденовирусный шаттл-вектор pDC315.
ПРИМЕЧАНИЕ: Полная последовательность промотора Col1a1 и детальная карта плазмиды pDC315-mCol1a1p-mCherry представлены в Дополнительном файле 1 и на Дополнительном рисунке 1. - Линеаризуйте вектор pDC315 с помощью BamHI и KpnI. Амплифицируйте вставку промотора, используя праймеры, содержащие плечи гомологии длиной 15–25 bp.
ПРИМЕЧАНИЕ: Используйте стратегию бесшовного клонирования на основе гомологичной рекомбинации для облегчения рекомбинации in vitro. - Проверьте полученную плазмиду с помощью ПЦР-скрининга и секвенирования по Сэнгеру.
ПРИМЕЧАНИЕ: Тщательно проверьте последовательность стыка промотора и репортера, чтобы убедиться в отсутствии сдвига рамки считывания или преждевременных стоп-кодонов. - Создайте рекомбинантный аденовирус с использованием системы AdMax посредством внутриклеточной Cre-опосредованной рекомбинации.
ПРИМЕЧАНИЕ: Плазмида-остов pBHGloxΔE1,3Cre содержит нерепликативный геном Ad5 с делециями E1/E3 и кассету экспрессии Cre-рекомбиназы, которая способствует сайт-специфической рекомбинации с сайтом loxP на шаттл-векторе. - Проведите ко-трансфекцию клеток HEK293 валидированным шаттл-вектором pDC315-mCol1a1p-mCherry и плазмидой-остовом аденовируса pBHGloxΔE1,3Cre.
- Клонируйте фрагмент промотора гена Col1a1 мыши длиной 2354 bp (геномные координаты: chr1:9482479–94827132; от −271 до +83 bp относительно сайта начала транскрипции [TSS]) выше репортерного гена mCherry в аденовирусный шаттл-вектор pDC315.
- Упаковка и амплификация аденовируса
- Культивируйте клетки HEK293 в модифицированной среде Игла в модификации Дульбекко (DMEM) с добавлением 10% фетальной бычьей сыворотки (FBS). Для упаковки аденовируса используйте клетки с низким числом пассажей (<20 пассажей).
- Посейте клетки HEK293 при конфлюэнтности 30%–40% за 24 ч до трансфекции, чтобы достичь конфлюэнтности 50%–60% к моменту трансфекции.
- Проведите ко-трансфекцию клеток HEK293 5 µg шаттл-плазмиды и 5 µg хелперной плазмиды pBHGloxΔE1,3Cre с использованием реагента для трансфекции Lipofectamine 200.
ПРИМЕЧАНИЕ: Поддерживайте соотношение ДНК к реагенту 1:1 (10 µg суммарно ДНК на 10 µL реагента для трансфекции). - Культивируйте трансфицированные клетки при 37°C в атмосфере с 5% CO₂ и ежедневно проверяйте их на наличие цитопатических эффектов.
ПРИМЕЧАНИЕ: Первые признаки ЦПЭ могут появиться через 7–14 дней. Если среда закисляется (становится желтой), проведите осторожную замену половины среды, не беспокоя клетки. - Соберите клетки и супернатант, когда будет наблюдаться типичный ЦПЭ, характеризующийся округлением и сморщиванием клеток, и как минимум 50% клеток открепятся от поверхности культуры.
ПРИМЕЧАНИЕ: Эта стадия обычно достигается через 10–15 дней после трансфекции. - Проведите три цикла замораживания-оттаивания, замораживая образцы при −70°C в течение 30 мин и оттаивая их в водяной бане при 37°C.
- После каждого этапа оттаивания перемешивайте суспензию на вортексе в течение 30 с для облегчения лизиса клеток.
ПРИМЕЧАНИЕ: Избегайте длительной инкубации при 37°C во время оттаивания для сохранения стабильности вируса. - Приготовьте 10-кратные серийные разведения вирусного лизата (от 10−1 до 10−13) в полной среде DMEM. Добавьте по 90 µL каждого разведения вируса к клеткам HEK293, посеянным в 96-луночные планшеты, используя 10 повторностей на каждое разведение.
ПРИМЕЧАНИЕ: Титр вируса ≥1 × 10⁹ PFU/mL был определен как достаточный конечный результат амплификации для последующей очистки. - Очистите 10 mL сырого вирусного лизата через фильтр 0,45 µm для удаления клеточного дебриса.
- Обработайте очищенный лизат нуклеазой Benzonase (10 U/mL) при 37°C в течение 30 мин.
- Очистите рекомбинантный аденовирус с помощью набора Adeno-X Virus Purification Kit в соответствии с инструкциями производителя.
ПРИМЕЧАНИЕ: Смешайте лизат с 1× буфером для разведения перед нанесением на предварительно уравновешенный очищающий фильтр. Промойте фильтр 1× промывочным буфером (Wash Buffer) и элюируйте очищенный вирус, используя 3 mL 1× буфера для элюции (Elution Buffer). - Инкубируйте планшеты в течение 10 дней и оцените цитопатические эффекты (ЦПЭ) под световым микроскопом. Оценивайте положительный ЦПЭ на основании характерного округления и открепления клеток. Рассчитайте инфекционный титр вируса методом Спирмена-Карбера на основе оценки ЦПЭ.
ПРИМЕЧАНИЕ: Убедитесь, что конечный сток вируса достигает как минимум 1 × 10¹¹ PFU/mL для последующего применения. - Разлейте очищенный аденовирус по аликвотам и храните вирусный сток при −80°C.
ПРИМЕЧАНИЕ: Храните очищенные аликвоты аденовируса при −80°C для длительной сохранности. Избегайте повторных циклов замораживания-оттаивания для сохранения инфекционности вируса.
3. Культивирование клеток и оптимизация условий вирусного заражения
- Культивируйте фибробласты NIH/3T3 в среде DMEM/Nutrient Mixture F-12 (DMEM/F12) с добавлением 10% FBS и 1% пенициллина-стрептомицина.
ПРИМЕЧАНИЕ: Для обеспечения стабильного состояния клеток используйте клетки от 3-го по 8-й пассаж, достигшие 70%–80% конфлюэнтности в исходной колбе. - Высейте фибробласты NIH/3T3 в 384-луночные планшеты с плотностью 4 × 10³ количество клеток на лунку в 40 µL полная питательная среда.
- Инкубируйте клетки при 37°C при 5% CO₂ в течение 12 ч для обеспечения адгезии клеток и их перехода в логарифмическую фазу роста.
ПРИМЕЧАНИЕ: Чтобы минимизировать неравномерное распределение клеток и краевые эффекты, перед инкубацией выдержите планшеты при комнатной температуре в течение 20–30 минут. Заполните самые крайние лунки стерильным фосфатно-солевым буферным раствором (PBS) или стерильной водой. - Заинфицируйте клетки рекомбинантным аденовирусом с множественностью заражения (MOI) в диапазоне от 1 до 10, используя также неинфицированный контроль.
ПРИМЕЧАНИЕ: Рассчитайте необходимый объем аденовируса по следующей формуле:
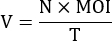
Здесь V — объем стока аденовируса (мл), N — количество высеянных клеток на лунку (4 × 10³), MOI — желаемая множественность заражения, а T — инфекционный титр вируса (БОЕ/мл). Вирусный сток, использованный в данном исследовании, имел инфекционный титр 1 × 10¹¹ БОЕ/мл, определенные методом Спирмена–Карбера, описанным в шаге 2.2.12. - Убедитесь, что объем добавляемого вирусного стока не превышает 10% от общего объема лунки.
ПРИМЕЧАНИЕ: Избыточный объем вирусного стока может изменить pH среды и вызвать неспецифическую цитоксичность. - Замените среду, содержащую вирус, на 40 µL свежая полная культуральная среда через 24 ч после инфицирования.
ПРИМЕЧАНИЕ: Используйте среду DMEM/F12 с добавлением 10% FBS и 1% пенициллина-стрептомицина, в соответствии с этапом 3.1. - Произведите замену среды с помощью автоматического дозатора жидкостей в режиме низкой скорости или, осторожно прислонив наконечники многоканального дозатора к верхней боковой стенке каждой лунки.
ПРИМЕЧАНИЕ: При работе с 384-луночными планшетами избегайте стандартного вакуумного аспирирования, чтобы минимизировать отрыв клеток. - Определите оптимальную множественность заражения (MOI) как наименьшую дозу вируса, вызывающую видимый и гомогенный mCherry флуоресценция при сохранении морфологии клеток и количества ядер на уровне, сопоставимом с показателями неинфицированных контрольных клеток.
ПРИМЕЧАНИЕ: Оценивайте экспрессию репортера, используя подсчет ядер, окрашенных Hoechst, и флуоресцентную визуализацию. Клетки должны сохранять характерную веретеновидную морфологию без округления или открепления. Избыточно высокая множественность заражения (MOI) может индуцировать базальную mCherry активация посредством клеточных стрессовых ответов. Приведены репрезентативные результаты флуоресценции при различных MOI в Рисунок 1B. - Выберите оптимальную множественность заражения (MOI) для всех последующих экспериментов.
ПРИМЕЧАНИЕ: В данном исследовании для последующих экспериментов была выбрана множественность заражения (MOI), равная 10.
4. Оценка стабильности модели с использованием стимуляции TGF-β
- Заинфицируйте фибробласты NIH/3T3 рекомбинантным аденовирусом с оптимизированной множественностью заражения (MOI) 10, определенной в шаге 3.9.
- Перед стимуляцией TGF-β подвергните фибробласты сывороточному голоданию в среде DMEM/F12 с содержанием 0,2% FBS в течение 12 ч.
ПРИМЕЧАНИЕ: Сывороточное голодание проводилось для синхронизации клеток и минимизации базальной активации Col1a1 промотор - Приготовьте стоковый раствор рекомбинантного TGF-β человека в концентрации 100 µg/mL с использованием 4 мМ HCl, содержащего 0,1% бычьего сывороточного альбумина (BSA).
ПРИМЕЧАНИЕ: Разделите исходный раствор TGF-β на небольшие аликвоты и храните при −80°C чтобы избежать повторных циклов замораживания-оттаивания. - Обработайте клетки градиентом концентраций TGF-β в диапазоне 0–40 нг/мл в шести независимых биологических повторах.
ПРИМЕЧАНИЕ: условие 0 нг/мл служило группой нестимулированного контроля. - Инкубируйте стимулированные клетки при 37°C при 5% CO₂ в течение 24, 48 или 72 ч. Для каждой временной точки визуализации используйте отдельные параллельные планшеты, чтобы минимизировать кумулятивную фототоксичность.
- Окрасьте клетки раствором Hoechst 342 с конечной рабочей концентрацией 2.5 µg/mL в течение 15 мин перед визуализацией.
ПРИМЕЧАНИЕ: Приготовьте окрашивающий раствор, разбавив исходный раствор Hoechst 342 (10 мг/мл) стерильным раствором PBS в соотношении 1:40. Проводите окрашивание в условиях защиты от света для минимизации фотовыцветания. - Выполните получение флуоресцентных изображений с использованием системы высокопроизводительного имиджинга, оснащенной сухим объективом с увеличением 10×.
- Для каждого экспериментального условия снимите изображения пяти неперекрывающихся полей в каждой лунке планшета формата 384.
ПРИМЕЧАНИЕ: Для обеспечения сопоставимости данных сохраняйте идентичные настройки визуализации для всех экспериментальных групп. Используйте автоматическую лазерную фокусировку и поддерживайте контролируемые условия окружающей среды при 37°C с 5% CO₂ при имиджинге живых клеток. - Получить mCherry флуоресцентные изображения, полученные при возбуждении длиной волны 561 нм, с использованием полосового эмиссионного фильтра 60/52 (BP60/52) и временем экспозиции 20 мс.
- Получите изображения флуоресценции Hoechst, используя возбуждение с длиной волны 405 нм, эмиссионный фильтр BP45/45 и время экспозиции 30 мс.
ПРИМЕЧАНИЕ: установите усиление камеры на значение 1,0 и выполняйте захват всех изображений при полном разрешении камеры с биннингом 1 × 1 для обеспечения линейности детектирования флуоресценции и максимального пространственного разрешения. - Проанализируйте полученные изображения с помощью программного обеспечения для анализа изображений CellPathfinder.
- Идентифицируйте ядра в канале Hoechst как первичные объекты, используя эталонный диаметр ядра, равный 20 µm и диапазон площадей от 20–400 µm2.
- Определите цитоплазматические области интереса (ROI) в mCherry канал путем расширения от границы ядра, используя эталонный диаметр клетки, равный 60 µm.
ПРИМЕЧАНИЕ: При сегментации примените фильтр «Exclude Edge» (исключить края), чтобы удалить частичные клетки, касающиеся границ изображения. - Вычислите среднюю интенсивность флуоресценции для каждой идентифицированной клетки и определите среднюю интенсивность флуоресценции на лунку по всем пяти захваченным полям.
5. Валидация надежности модели с помощью ИФА и количественной полимеразной цепной реакции в реальном времени
- Заинфицируйте фибробласты NIH/3T3 рекомбинантным аденовирусом при оптимизированной MOI 10, как описано в шаге 3.9.
- Проведите предварительную обработку клеток SB431542 в течение 30–60 мин перед стимуляцией TGF-β.
ПРИМЕЧАНИЕ: Приготовьте стоковый раствор SB431542 с концентрацией 20 mM в диметилсульфоксиде (DMSO) и храните аликвоты при −20°C. - Обработайте клетки TGF-β в концентрации 10 ng/mL и SB431542 в конечных концентрациях 1, 5, 10 и 15 µM. Включите группу контроля с растворителем, содержащую 0.1% (об/об) DMSO без обработки SB431542.
ПРИМЕЧАНИЕ: Поддерживайте конечную концентрацию DMSO на уровне 0.1% (об/об) во всех опытных группах. - Приготовьте рабочий раствор TGF-β методом двухступенчатого разведения.
ПРИМЕЧАНИЕ: Разведите стоковый раствор TGF-β (10 µg/mL, приготовленный в 4 mM HCl с содержанием 0.1% BSA) 1:10 в стерильном PBS перед дальнейшим разведением в полной культуральной среде для достижения конечной рабочей концентрации 10 ng/mL. - Инкубируйте обработанные клетки в 6-луночных планшетах в течение 24 ч при 37°C в атмосфере с 5% CO₂.
- Соберите по 2 mL супернатанта культуры из каждой лунки для анализа методом ELISA.
- Центрифугируйте собранные супернатанты при 1,0 × g в течение 5 мин при 4°C для удаления клеточного дебриса.
- Разлейте очищенные супернатанты по аликвотам и храните при −80°C до проведения анализа ELISA.
ПРИМЕЧАНИЕ: Очищенные супернатанты можно хранить при −80°C до анализа ELISA. - Осторожно промойте адгезивные клетки ледяным PBS после удаления супернатанта.
- Добавьте 1 mL реагента TRIzol непосредственно в каждую лунку для лизиса клеток.
ПРИМЕЧАНИЕ: Несколько раз пропипетируйте лизат для обеспечения полной гомогенизации перед переносом образцов в микроцентрифужные пробирки. Лизаты РНК можно хранить при −80°C до экстракции РНК. - Экстрагируйте общую РНК из лизатов для анализа методом количественной полимеразной цепной реакции с обратной транскрипцией (ОТ-кПЦР).
- Проведите обратную транскрипцию, используя 1 µg общей РНК.
ПРИМЕЧАНИЕ: Выполняйте обратную транскрипцию при следующих условиях реакции: 25°C в течение 10 мин, 42°C в течение 15 мин и 85°C в течение 2 мин. - Проведите количественную ПЦР, используя PerfectStart Green qPCR SuperMix. Приготовьте каждую реакцию в конечном объеме 20 µL, содержащем 5 µL матрицы комплементарной ДНК (кДНК).
- Проведите реакции кПЦР с использованием следующих условий циклирования: начальная денатурация при 94°C в течение 30 с, затем 40 циклов: 94°C в течение 5 с, 60°C в течение 15 с и 72°C в течение 10 с.
ПРИМЕЧАНИЕ: После амплификации проведите анализ кривых плавления для подтверждения специфичности продукта. - Нормализуйте экспрессию гена Col1a1 по 18S рРНК в качестве внутреннего контроля.
ПРИМЕЧАНИЕ: Все последовательности праймеров приведены в Дополнительной таблице 1. - Количественно определите уровни секретируемого белка коллагена I в очищенных супернатантах методом ELISA согласно инструкциям производителя. Диапазон стандартной кривой для анализа ELISA коллагена I типа мыши составляет 0.78–50 ng/mL при чувствительности обнаружения 0.37 ng/mL.
- Проанализируйте все стандарты и образцы в технических дублях и измерьте оптическую плотность (OD) при 450 nm с помощью микропланшетного ридера.
ПРИМЕЧАНИЕ: Используйте неразведенные очищенные супернатанты, чтобы максимизировать чувствительность анализа при определении секретируемого Col1a1.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Результаты
Схематический обзор конструкции и упаковки рекомбинантного аденовируса mCol1a1p-mCherry представлен на Рисунке 1A. Промотор Col1a1 мыши был клонирован выше репортерного гена mCherry и встроен в аденовирусный вектор с последующей упаковкой вируса и амплификацией в клетках HEK293. Рабочий процесс иллюстрирует основные экспериментальные этапы, включая вирусное заражение, стимуляцию фиброза, фармакологическое вмешательство и регистрацию флуоресцентного сигнала...
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Обсуждение
Фиброз миокарда способствует прогрессированию сердечной недостаточности, а разработка эффективных антифиброзных методов терапии ограничена отсутствием платформ для лонгитюдного скрининга2,13. Традиционные методы оценки антифиброзной эффективности, включая вестерн-блоттинг, RT-qPCR и иммунофлуоресцентное окрашивание, основаны на конечных измерениях, требующих лизиса или фиксации клеток. Такие подходы делают невозможным мониторинг прогрессирования фиброза в живых к...
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Раскрытие информации
Авторы заявляют об отсутствии конфликта интересов.
Благодарности
Данная работа была поддержана грантами Национального фонда естественных наук Китая (32371158 для H.X.), Национального ключевого R&программа #38;D (2023YFA1800902, грант H.X.), "Tianchi Talent" программа, Открытый проект Национальной ключевой лаборатории сосудистого гомеостаза и ремоделирования (Пекинский университет) (202404 для R.Z; 202403 для Y.M.W.), Открытый проект Ключевой лаборатории эндемических и этнических заболеваний Синьцзяна Министерства образования (Пекинский университет) (KF202404 для H.X.).
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Стекляннодонный микропланшет на 384 лунки | Cellvis, США | P384-1.5H-N | Стеклянный планшет на 384 лунки с плоским дном, используемый для посева клеток, вирусного заражения, окрашивания и флуоресцентной визуализации. |
| Плазмидный остов аденовируса | Microbix, Канада | pBHGloxΔE1,3Cre | Плазмида, используемая для создания полноразмерного рекомбинантного генома аденовируса. |
| Аденовирусный шаттл-вектор: pDC315-mCol1a1p-mCherry | GeneChem, Китай | Индивидуальный сервис | Рекомбинантный аденовирусный шаттл-вектор, содержащий промотор Col1a1 мыши длиной 2354 п.н., обеспечивающий экспрессию mCherry. |
| Нуклеаза Benzonase | Merck Millipore, США | 70664-3 | Эндонуклеаза, используемая при очистке аденовирусов для удаления контаминирующих нуклеиновых кислот. |
| Бокс биологической безопасности (класс II) | Esco Lifesciences Group, Сингапур | AC2-4S1 | Сертифицированный бокс биологической безопасности, используемый для работы с рекомбинантными аденовирусами и проведения процедур по стерильному культивированию клеток. |
| Среда для культивирования клеток (полная DMEM/F12) | HyClone, США | 12800-017 | Полная питательная среда, используемая для культивирования клеток NIH/3T3 и HEK293. |
| Программное обеспечение для анализа изображений CellPathfinder | Yokogawa Electric Corporation, Япония | Версия 3.08.01 | Программное обеспечение для анализа изображений, используемое для автоматизированного количественного анализа флуоресценции и сегментации клеток. |
| Система высокопроизводительного скрининга CellVoyager CV8000 | Yokogawa Electric Corporation, Япония | CV8000 | Система высококонтентного анализа изображений, используемая для регистрации флуоресценции mCherry и Hoechst. |
| CO2 Инкубатор для культивирования клеток | Thermo Fisher Scientific, США | 3111 | Влажный инкубатор, поддерживаемый при 37°C °C с 5% CO2 для культивирования клеток млекопитающих. |
| Диметилсульфоксид (ДМСО) | Sigma-Aldrich, США | D2650 | Растворитель, используемый для приготовления SB431542. |
| Далбеко’модифицированная среда Игла/питательная смесь F-12 (DMEM/F-12) | Servicebio, Китай | G4610 | Базальная питательная среда, используемая для фибробластов NIH/3T3. |
| фетальная бычья сыворотка (ФБС) | Озбиан, Австралия | VS500T | Сывороточная добавка, используемая в концентрации 10% (об/об) для приготовления полной питательной среды. |
| Флуоресцентный краситель Hoechst 33342 | Invitrogen, США | H3570 | Ядерный краситель, используемый для флуоресцентной визуализации и нормализации подсчета ядер. |
| Клетки HEK293 | ATCC, США | CRL-1573 | Упаковочная клеточная линия, используемая для продукции и амплификации аденовирусов. |
| Рекомбинантный TGF-бета человекаβ1 | MedChemExpress, Китай | HY-P78214 | Цитокин, используемый для индукции фиброзной активации в фибробластах NIH/3T3. |
| Программное обеспечение для сбора изображений | Yokogawa Electric Corporation, Япония | Версия 3.08.01.03 | Программное обеспечение, используемое для автоматизированного сбора флуоресцентных изображений и управления микроскопом. |
| Реагент для липидной трансфекции | Invitrogen, США | 11668-019 | Реагент для трансфекции, используемый для доставки аденовирусной плазмиды в клетки HEK293. |
| Микроцентрифужные пробирки | Axygen, США | MCT-150-C | Пробирки, используемые для хранения лизатов РНК и обработки образцов. |
| Микропланшетный ридер | Tecan, Швейцария | Разряд | Мультимодовый микропланшетный ридер, используемый для измерения абсорбции при проведении ИФА. |
| Набор для ИФА на коллаген I типа мыши | Meike Biotechnology, Китай | MK6778A | Набор для ИФА, используемый для количественного определения секретируемого коллагена I типа в супернатантах культур. |
| Фибробласты мыши линии NIH/3T3 | Procell Life Science, Китай | CL-0171 | Линия фибробластов мыши, использованная для создания и валидации репортерной модели. |
| Рестриктаза PacI | New England Biolabs, США | R0547S | Рестриктаза, используемая для линеаризации аденовирусной плазмиды. |
| Пенициллин–Раствор стрептомицина | Gibco, США | 15140-122 | Раствор антибиотика, добавляемый в концентрации 1% (об/об) для предотвращения бактериальной контаминации. |
| PerfectStart Green qPCR SuperMix | TransGen Biotech, Китай | AQ602 | Мастер-микс для количественной ПЦР на основе SYBR Green, используемый для количественного ПЦР-анализа. |
| Фосфатно-солевой буферный раствор (PBS) | Servicebio, Китай | G4202 | Буфер, используемый для промывки клеток и приготовления реагентов. |
| челночный вектор pDC315-EGFP | GeneChem, Китай | Н/П | Родительский аденовирусный шаттл-вектор, использованный для конструирования репортерной плазмиды. |
| Система qPCR | Applied Biosystems, США | QuantStudio 5 | Система ПЦР в реальном времени, используемая для количественного анализа экспрессии генов. |
| Рестриктазы (BamHI и KpnI) | Abclonal, Китай | RK21101, RK21104 | Рестриктазы, используемые для линеаризации челночного вектора. |
| Набор для обратной транскрипции | TransGen Biotech, Китай | AT311 | Набор для обратной транскрипции, используемый для синтеза кДНК перед проведением RT-qPCR. |
| Реагент для лизиса РНК | Invitrogen, США | 15596026 | Реагент, используемый для экстракции тотальной РНК из культур клеток. |
| SB431542 | MedChemExpress, Китай | 301836-41-9 | ТФР-β ингибитор рецептора I типа, используемый в экспериментах по фармакологическому ингибированию. |
| Услуги по секвенированию по Сэнгеру / реагенты | Shanghai Boshang Biotechnology Co., Ltd., Китай | Индивидуальное обслуживание | Сервис секвенирования/реагенты, использованные для верификации последовательности плазмиды. |
| Серологические пипетки | Corning, США | 4488 | Стерильные пипетки, используемые для работы с жидкостями при культивировании клеток. |
| Термоциклер T30 | LongGene Scientific Instruments, Китай | T30 | Амплификатор, используемый для обратной транскрипции и ПЦР-амплификации. |
| Раствор трипсина-ЭДТА | Gibco, США | 25200-056 | Реагент для диссоциации клеток, используемый при рутинном пассировании клеток. |
| Набор для очистки вирусов | Takara Bio USA | 631533 | Набор, используемый для очистки рекомбинантного аденовируса. |
| Водяная баня | Shanghai Yiheng Scientific Instruments, Китай | HWS-12 | Водяная баня с регулируемой температурой, используемая при замораживании аденовирусов–циклы замораживания-оттаивания |
Ссылки
- Frangogiannis NG. Cardiac fibrosis. Cardiovasc Res. 2021;117(6):1450–1488.
- Ghazal R, et al. Cardiac fibrosis in the multi-omics era: implications for heart failure. Circ Res. 2025;136(7):773–802.
- Kurose H. Cardiac fibrosis and fibroblasts. Cells. 2021;10(7):1716.
- Heidenreich PA, et al. 2022 AHA/ACC/HFSA guideline for the management of heart failure. J Am Coll Cardiol. 2022;79(17):e263–e421.
- Fang L, et al. A clinical perspective of anti-fibrotic therapies for cardiovascular disease. Front Pharmacol. 2017;8:186.
- Khalid A, et al. Breaking new ground in heart failure management: novel therapies and future frontiers. Front Cardiovasc Med. 2025;12:1643971.
- González A, et al. New targets to treat the structural remodeling of the myocardium. J Am Coll Cardiol. 2011;58(18):1833–1843.
- Tuleta I, et al. Fibroblast-specific TGF-β signaling mediates cardiac dysfunction, fibrosis, and hypertrophy in obese diabetic mice. Cardiovasc Res. 2024;120(16):2047–2063.
- Li C, et al. Mechanism of action of non-coding RNAs and traditional Chinese medicine in myocardial fibrosis: focus on the TGF-β/Smad signaling pathway. Front Pharmacol. 2023;14:1092148.
- Vistnes M. Hitting the target: challenges and opportunities for TGF-β inhibition for the treatment of cardiac fibrosis. Pharmaceuticals (Basel). 2024;17(3):267.
- Cardona-Timoner M, et al. Dressed in collagen: 2D and 3D cardiac fibrosis models. Int J Mol Sci. 2025;26(7):3038.
- Garvin AM, et al. Primary cardiac fibroblast cell culture: methodological considerations for physiologically relevant conditions. Am J Physiol Heart Circ Physiol. 2023;325(4):H869–H881.
- Zhang H, et al. Multiscale drug screening for cardiac fibrosis identifies MD2 as a therapeutic target. Cell. 2024;187(25):7143–7163.e22.
- Bollong MJ, et al. Small molecule-mediated inhibition of myofibroblast transdifferentiation for the treatment of fibrosis. Proc Natl Acad Sci U S A. 2017;114(18):4679–4684.
- Stepanenko AA, et al. Transient and stable vector transfection: pitfalls, off-target effects, artifacts. Mutat Res Rev Mutat Res. 2017;773:91–103.
- Tallquist MD. Cardiac fibroblast diversity. Annu Rev Physiol. 2020;82:63–78.
- Hofbauer P, et al. Modeling acute myocardial infarction and cardiac fibrosis using human induced pluripotent stem cell-derived multicellular heart organoids. Nat Commun. 2024;15:308.
- Li Q, et al. Human iPSC-based modeling of central nervous system disorders for drug discovery. Int J Mol Sci. 2021;22(3):1203.
- Icha J, et al. Phototoxicity in live fluorescence microscopy, and how to avoid it. Bioessays. 2017;39(8):1700003.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.