В данном протоколе пошагово описываются процедуры оценки устойчивости всего организма к тепловому стрессу, окислительному стрессу, стрессу эндоплазматического ретикулума (ЭР) и митохондриальному стрессу. Также представлены методы оценки того, играют ли нейроны роль в обеспечении стрессоустойчивости.
Методическая статья
Методы измерения устойчивости к множественным стрессорам у Caenorhabditis elegans
В этой статье
Краткое содержание
Аннотация
На протяжении всей своей жизни организмы подвергаются воздействию различных факторов средового и клеточного стресса. Способность противостоять различным стрессорам тесно коррелирует с периодом здоровой жизни и продолжительностью жизни организмов. Caenorhabditis elegans (C. elegans) является идеальным модельным организмом для измерения стрессоустойчивости, что облегчает исследование консервативных молекулярных механизмов, лежащих в основе этой способности. C. elegans также обладает упрощенной нервной системой, изучение которой имеет фундаментальное значение для понимания нейронных основ стрессоустойчивости. В данной работе мы представляем методы измерения стрессоустойчивости C. elegans в четырех различных условиях стресса: тепловом стрессе, стрессе эндоплазматического ретикулума (ЭР), митохондриальном стрессе и окислительном стрессе. Когорты червей помещают на твердые агаровые пластины и подвергают воздействию критических температур при тепловом стрессе или агара, содержащего различные дозы соединений, индуцирующих ЭР-стресс, митохондриальный или окислительный стресс. В качестве примера мы установили возрастающие дозы каждого стрессора и титровали оптимальную дозу для определения различий в стрессоустойчивости у линии с абляцией RIC-нейронов по сравнению с линией дикого типа. В условиях стресса выживаемость C. elegans контролируется ежечасно или ежедневно; строятся и сравниваются кривые выживаемости для выявления различных степеней стрессоустойчивости у разных линий C. elegans. Описанные методы обеспечивают воспроизводимый подход к оценке устойчивости к множеству стрессоров в диапазоне доз и временных интервалов у C. elegans дикого типа, мутантных или нейронно-модифицированных линий, а также помогают раскрыть молекулярные и нейронные механизмы, лежащие в основе ответов на различные стрессоры.
Введение
В течение своей жизни организмы подвергаются воздействию различных факторов стресса окружающей среды. Большинство стрессоров, включая тепло, гипоксию, радиацию, окислительный стресс, осмотический стресс и воздействие патогенов, вызывают клеточную дисфункцию и нарушение гомеостаза, что запускает внутриклеточные стрессовые реакции. Для преодоления динамических вызовов окружающей среды и воздействия стрессоров организмы выработали высококонсервативные пути стрессового ответа. К этим консервативным путям относятся ответ на тепловой шок (HSR)1, ответ на развертывание белков (UPR) в эндоплазматическом ретикулуме (ЭР) и митохондриях2, а также ответ на окислительный стресс3. Главные регуляторы различных путей стрессового ответа, обычно представляющие собой факторы транскрипции, индуцируют экспрессию ответных генов для восстановления протеостаза и обеспечения выживания клеток4. Эти реакции включают синтез шаперонов, которые восстанавливают структуру неправильно свернутых белков, и удаление поврежденных белков путем их деградации4. Неспособность активировать стрессовые ответы приводит к накоплению поврежденных белков в цитоплазме или органеллах, что вызывает дисфункцию клеток и тканей. Нарушение клеточного стрессового ответа связывают с различными хроническими заболеваниями, от нейродегенерации до метаболического синдрома5,6. Напротив, надлежащая активация путей стрессового ответа способствует улучшению периода здоровой жизни и существенному увеличению общей продолжительности жизни7. Таким образом, важно исследовать молекулярные механизмы стрессоустойчивости, чтобы использовать защитный стрессовый ответ для улучшения здоровья. В связи с этим необходимо разработать воспроизводимые методы и методики для точного количественного определения стрессоустойчивости у живых животных.
Открытия последних 15 лет продемонстрировали роль нейрональной сигнализации в повышении стрессоустойчивости у многих видов8. Первоначальные результаты показали, что HSR и ER UPR в нейронах достаточно для активации стрессового ответа в ненейрональных тканях, что заложило основу концепции клеточно-неавтономной регуляции стрессоустойчивости8,9,10. С момента этого открытия накопилось множество доказательств того, что различные пути обеспечения стрессоустойчивости реагируют на сигналы окружающей среды и способствуют повышению резистентности к стрессу посредством нейрональной сигнализации. В частности, HSR10,11, ER UPR12,13, митохондриальный ответ на развертывание белков (UPRmt) 14,15 и ответ на окислительный стресс3 — каждый из них способствует повышению стрессоустойчивости клеточно-неавтономным путем через нейроны. Механизм клеточно-неавтономной регуляции стрессоустойчивости консервативен у разных организмов, включая дрозофилу D. melanogaster16,17,18,19 и мышей20,21.
Для облегчения исследований роли нейронов в стрессоустойчивости при воздействии множественных стрессоров в данной работе представлен систематический протокол проверки устойчивости к четырем регулируемым нейронами стрессорам: тепловому стрессу, стрессу эндоплазматического ретикулума (ER-стрессу), митохондриальному стрессу и окислительному стрессу. Для измерения стрессоустойчивости к этим четырем факторам использовался удобный модельный организм C. elegans. Применение C. elegans в анализах стрессоустойчивости позволяет изучать активацию стрессовых ответов не только на клеточном, но и на организменном уровне.
Пути стрессового ответа, активируемые тепловым стрессом, стрессом ЭР, митохондриальным и окислительным стрессом, являются консервативными и функционально важными для многих организмов, включая человека22,23,24,25. Тепловой стресс приводит к неправильному сворачиванию и агрегации белков и активирует ответ на тепловой шок, который жизненно важен для поддержания белкового гомеостаза26. Физиологическая температура окружающей среды для C. elegans составляет 20 °C, а более высокая температура выше 25 °C вызывает тепловой стресс у C. elegans27. Мы индуцируем тепловой стресс при трех повышенных критических температурах: 30 °C, 35 °C и 37 °C.
ЭПР является основным местом синтеза и фолдинга белков28. Накопление развернутых или неправильно свернутых белков в просвете ЭПР активирует ответ на накопление нефолдированных белков для восстановления протеостаза29. Стресс ЭПР может быть индуцирован химическим веществом туникамицином, который блокирует N-гликозилирование и вызывает накопление неправильно свернутых белков в просвете ЭПР30. Повышенная устойчивость к стрессу, вызванному неправильным фолдингом белков в просвете ЭПР, проявляется в увеличении выживаемости12. Мы подвергаем червей воздействию различных доз туникамицина (25–200 µg/mL) и оцениваем их чувствительность путем измерения выживаемости.
Митохондрии представляют собой клеточный метаболический центр и «энергетические станции» клетки. Активные формы кислорода (АФК) и развернутые белки в митохондриях запускают митохондриальный ответ на развернутые белки и индуцируют митохондриальный стресс31. Митохондриальный стресс может быть индуцирован антимицином А — ингибитором митохондриального комплекса III, который блокирует перенос электронов и вызывает выработку АФК32. Мы используем различные дозы антимицина А (5–80 µg/mL), чтобы определить оптимальную дозу для анализа устойчивости к митохондриальному стрессу.
Окислительный стресс обычно индуцируется токсинами окружающей среды и клеточными свободными радикалами, образующимися в процессе метаболизма. Окислительный стресс вызывает повреждение белков, липидов и ДНК у всех организмов33. Паракват, гербицид, который переносит электроны на кислород и генерирует избыточное количество супероксидных радикалов, является сильным индуктором окислительного стресса34. Мы применяем четыре возрастающие дозы параквата (2.5–20 mM) и демонстрируем диапазон максимальной выживаемости от 3 до 12 дней у C. elegans.
Эти четыре стрессовых условия позволяют легко получить высоковоспроизводимые результаты стрессоустойчивости у C. elegans. Методы анализа стрессоустойчивости были описаны ранее35,36,37,38,39,40. По сравнению с ранее опубликованным обзором, суммирующим различные стрессоры и анализы выживаемости35, в данной статье представлены детальные, осуществимые пошаговые протоколы для проведения воспроизводимых и согласованных анализов стресса. Ряд ранее опубликованных протоколов был сосредоточен на одном конкретном виде стресса, таком как тепловой шок36 или окислительный стресс38; в то время как данный протокол демонстрирует все четыре различных анализа стресса: тепловой, стресс ЭР, митохондриальный и окислительный стресс. В ранее описанных протоколах анализа стресса также используются иные конечные точки анализа с применением флуоресцентных репортеров, таких как специфические для данного пути флуоресцентные транскрипционные репортеры стресса ЭР, митохондриального и окислительного стресса40 или ответа на тепловой шок39; в то время как в данном протоколе для эффективной оценки общего состояния здоровья C. elegans используются анализы выживаемости. Важно отметить, что в этом протоколе приведено титрование доз для всех четырех анализов, чтобы предоставить ориентиры эффективного диапазона доз, которые могут быть выбраны для анализа стресса; в протоколе оптимизированы временные интервалы (от часов до дней) для различных анализов стресса; кроме того, мы представили новую роль нейрона, регулирующего несколько стрессовых ответов, в качестве примера для проверки того, регулируют ли нейроны стрессоустойчивость.
Разработка анализа стрессоустойчивости требует выбора подходящего стрессора и надежного показателя оценки. Анализы выживаемости C. elegans являются эффективными инструментами для измерения физиологических процессов, включая продолжительность жизни, стрессоустойчивость и патологические инфекции. Одним из ключевых преимуществ использования C. elegans в анализах выживаемости является простота подготовки и тестирования синхронизированных червей одного возраста благодаря их самооплодотворению, большому размеру потомства и короткому циклу развития (три дня от яиц до молодых взрослых особей). Самцы редко встречаются в естественной популяции культивируемых C. elegans, поэтому они обычно не используются в анализах выживаемости, включая данный протокол, и применяются преимущественно для генетических скрещиваний35. По сравнению с другими методами оценки конечных точек (например, флуоресцентными репортерами, накоплением белков и липидов), анализы выживаемости эффективно позволяют оценить общее состояние здоровья C. elegans и требуют относительно короткого времени для завершения — обычно от нескольких часов до нескольких недель в зависимости от дозы стрессоров. Мы используем показатели выживаемости в качестве основного индикатора стрессоустойчивости у различных штаммов C. elegans. Выживаемость определяется по подвижности и ответу на мягкую механическую стимуляцию; отсутствие реакции на стимуляцию используется для определения гибели в анализах стресса C. elegans. Анализы выживаемости C. elegans могут проводиться как на твердых, так и на жидких средах с бактериальным кормом35. Однако жидкая среда не является естественной средой обитания червей, и они вынуждены постоянно совершать извивающиеся движения в жидкой культуре, что приводит к сокращению кривой выживаемости41. В данной работе мы используем твердую среду для оценки влияния различных концентраций стрессора на выживаемость червей дикого типа и мутантов с абляцией нейронов. Эти данные титрования концентраций могут служить руководством для других исследователей, проводящих аналогичные анализы стрессоустойчивости.
Протокол
Эксперименты с использованием C. elegans проводились в Канзасском государственном университете (Манхэттен, штат Канзас, США) в соответствии с институциональными руководствами по биобезопасности и лабораторной практике. Поскольку C. elegans является модельным организмом-беспозвоночным, одобрение комитета по этике работы с позвоночными животными для данного исследования не требовалось. Подробные сведения обо всех использованных реагентах, оборудовании, программном обеспечении и штаммах приведены в Таблице материалов.
1. Приготовление чашек с NGM (средой для выращивания нематод) и подготовка Escherichia coli OP50
- Приготовление чашек с NGM-агаром
- Взвесьте 3 g NaCl, 17 g агара (порошка) и 2.5 g пептона, добавьте 900 mL ультрачистой деионизированной (dd) H2O, доведите конечный объем до 1 L и стерилизуйте в автоклаве. Охладите среду примерно до 60 °C на водяной бане с температурой 60 °C.
- Добавьте 1 mL 1 M CaCl2 (приготовленного на ddH2O и стерилизованного фильтрованием), 1 mL холестерола в концентрации 5 mg/mL (приготовленного в этаноле и стерилизованного фильтрованием), 1 mL 1 M MgSO4 (приготовленного на ddH2O и стерилизованного фильтрованием) и 25 mL 1 M KP-буфера.
Для приготовления KP-буфера смешайте 130 mL 1 M K2HPO4 с 870 mL 1 M KH2PO4, приготовленных на ddH2O. После тщательного перемешивания доведите pH до 6.0. Обычно после приготовления измеренное значение pH близко к 6.0 и дополнительная корректировка не требуется. Допустимый диапазон pH для KP-буфера составляет 5.8–6.2 при целевом значении pH 6.0. Перед использованием убедитесь, что конечный pH составляет примерно 6.0. При необходимости доведите pH до 6.0 с помощью 1 M K2HPO4 или 1 M KH2PO4. - Тщательно перемешайте и разлейте среду (NGM) по чашкам (чашкам Петри). Для чашек диаметром 60 mm наливайте по 10 mL среды NGM на чашку; для чашек диаметром 35 mm — по 3 mL среды NGM на чашку. Оставьте чашки с NGM-агаром при комнатной температуре (22–25 °C) на ровной поверхности минимум на 24 ч перед посевом бактериального корма.
ПРЕДОСТЕРЕЖЕНИЕ: При приготовлении и разливе расплавленного NGM-агара используйте термостойкие перчатки и соответствующие средства индивидуальной защиты (СИЗ), чтобы избежать ожогов и контакта с горячей жидкостью.
- Приготовление бактериального корма Escherichia coli OP50 для Caenorhabditis elegans
- Высейте бактерии Escherichia coli OP50 штрихом на чашку с агаром Luria-Bertani (LB) и инкубируйте при 37 °C в течение ночи (приготовление LB-агара: добавьте 1 g NaCl, 1 g триптона, 0.5 g дрожжевого экстракта и 1.5-2.0 g порошка агара в 100 mL ddH2O, стерилизуйте в автоклаве в течение 20 мин, охладите до 50-60 °C и разлейте среду по чашкам. Поместите чашки на чистую ровную поверхность и дайте им высохнуть).
- Инокулируйте одну колонию в 100 mL жидкой среды LB (приготовление среды LB: добавьте 1 g NaCl, 1 g триптона и 0.5 g дрожжевого экстракта в 100 mL ddH2O, стерилизуйте в автоклаве в течение 20 мин. Перед инокуляцией охладите среду до температуры ниже 37 °C).
- Культивируйте бактерии в шейкере-инкубаторе при 37 °C до тех пор, пока оптическая плотность бактериальной суспензии при 600 nm (OD600) не достигнет примерно 0.3 в 10-кратном разведении суспензии (смешивание 100 µL бактериальной суспензии с 900 µL среды LB). Соберите бактериальную суспензию и храните ее при 4 °C. Бактериальный корм можно хранить до одной недели перед посевом на чашки NGM40.
- Используйте многоканальный дозатор для посева бактерий OP50 на чашки NGM. Вносите по 200 µL для чашек с агаром диаметром 60 mm и по 100 µL для чашек диаметром 35 mm. Оставьте посеянные чашки NGM при комнатной температуре (~22–25 °C) на ровной поверхности минимум на 24 ч перед использованием. Не оставляйте чашки при комнатной температуре более чем на 48 ч. Поместите посеянные чашки в чистый пластиковый контейнер и храните их при 4 °C.
ПРИМЕЧАНИЕ: При использовании невентилируемых чашек посеянным бактериям OP50 может потребоваться больше времени для высыхания.
ПРЕДОСТЕРЕЖЕНИЕ: Работайте с культурами E. coli OP50, соблюдая правила микробиологической безопасности; используйте лабораторный халат, перчатки и средства защиты глаз. Дезинфицируйте рабочие поверхности и утилизируйте бактериальные отходы в соответствии с требованиями учреждения по биобезопасности.
2. Содержание и синхронизация C. elegans
Рабочий процесс этого раздела обобщен на Рисунке 1A.
- Содержите червей при 20 °C на чашках с NGM, посеянных OP50, перенося взрослых особей на новые чашки с NGM с OP50 дважды в неделю, чтобы избежать голодания червей. С помощью платиновой петли перенесите 20–40 гравидных взрослых червей на свежую чашку NGM с OP50 и удалите любые личинки и яйца, которые были перенесены вместе с гравидными взрослыми особями с исходной чашки. Использование известного количества гравидных червей облегчает точный учет и обеспечивает их полное удаление на последующем этапе (раздел 1.2).
ПРИМЕЧАНИЕ: В общей сложности 20–40 гравидных червей достаточно для получения 80–120 яиц за 2 h, исходя из состояния штамма дикого типа (N2). Оптимальное окно откладки яиц наступает, когда гравидные взрослые особи находятся на первом дне (день 1) взрослого состояния. Для штаммов с более низкой или более высокой плодовитостью соответственно скорректируйте количество гравидных червей. Целью данного этапа является получение достаточного количества яиц, которые разовьются в синхронизированных червей для последующих стресс-тестов. - Примерно через 2 h удалите гравидных червей с чашки. Подсчитайте количество удаленных на этом этапе гравидных червей и убедитесь, что все 20–40 гравидных червей, помещенных на чашку, удалены.
- Инкубируйте чашки с яйцами при 20 °C до тех пор, пока черви не достигнут поздней стадии L4 для проведения стресс-тестов. Синхронизируйте червей до стадии L4, чтобы минимизировать вариабельность, вызванную различиями в возрасте взрослых особей и репродуктивном статусе12,35,37,38,40,42,43. При 20 °C черви штамма дикого типа достигают однородно синхронизированной поздней стадии L4 примерно через 54–58 h после откладки яиц на чашки с твердым агаром (по нашим наблюдениям и 36,40).
ПРИМЕЧАНИЕ: Для штаммов с задержкой развития скорректируйте время синхронизации до поздней стадии L4 в соответствии с их специфической скоростью развития.
ПРЕДОСТЕРЕЖЕНИЕ: Работайте с C. elegans, соблюдая надлежащие правила микробиологической техники; используйте лабораторный халат и перчатки, чтобы минимизировать контакт с биологическим материалом и предотвратить контаминацию.
3. Условия стресса и сбор данных
- Тест на тепловой стресс
Схема работы данного раздела представлена на рисунке 1B.- Синхронизируйте червей до поздней стадии L4 (раздел 2) и содержите их при 20 °C. Перенесите синхронизированных червей стадии L4 на 35-мм чашки с NGM-средой, засеянной OP50 (раздел 1), используя по 4 чашки на группу в качестве технических повторностей, по 30–35 червей на чашку. Настройку биологических повторностей см. в разделе 4.
- Поместите чашки с червями на поздней стадии L4 в инкубатор при 30, 35 или 37 °C. Убедитесь, что инкубатор достиг заданной температуры перед помещением внутрь чашек с исследуемыми червями. Средняя выживаемость червей дикого типа при 30, 35 или 37 °C составляет от примерно 4 ч до 3 дней (рисунок 2B–D) по сравнению со средней выживаемостью в физиологически нестрессовых условиях, которая составляет около 20 дней (рисунок 2A).
КРИТИЧЕСКИЙ ЭТАП: Поместите все тестовые чашки агаром вниз в один слой в инкубатор при 35 °C для быстрого и равномерного выравнивания температуры.
ПРИМЕЧАНИЕ: При проведении тестов на тепловой стресс при 30, 35 или 37 °C большинство червей не откладывают яйца. В редких случаях, когда яйца откладываются, их вылупления не наблюдается. Следовательно, перенос червей на свежие чашки не требуется. - Подсчитывайте количество погибших червей в каждой временной точке на каждой чашке технической повторности и заносите данные в лист учета. Выживаемость червей оценивается каждый час при тепловом стрессе 35 °C или 37 °C и один раз в день при тепловом стрессе 30 °C. Подсчет проводят с помощью стереомикроскопа при комнатной температуре. Во время подсчета извлекайте из инкубатора только одну исследуемую чашку; все остальные чашки должны оставаться при заданной температуре теплового стресса, чтобы минимизировать прерывание воздействия стресса. Такая практика помогает поддерживать стабильные экспериментальные условия для всех образцов.
КРИТИЧЕСКИЙ ЭТАП: Чтобы минимизировать прерывание воздействия теплового стресса, держите каждую чашку вне инкубатора не более 3 мин во время каждого сеанса подсчета. В зависимости от выживаемости червей в разные моменты стресс-теста, подсчет на одной чашке при комнатной температуре обычно занимает от 30 с до 3 мин. Порядок подсчета имеет значение с учетом времени, затрачиваемого на ручной учет. Мы рекомендуем подсчитывать по одной технической повторности для каждого условия, пока не будут завершены все технические повторности во всех условиях. Например, при наличии трех условий/групп (A, B и C) с 4 чашками технических повторностей установите следующий порядок подсчета: A1, B1, C1 → A2, B2, C2 → A3, B3, C3 → A4, B4, C4. - Оценивайте выживаемость червей на основе наличия какой-либо двигательной реакции на осторожную физическую стимуляцию. Активно двигающихся червей засчитывают как живых, физическая стимуляция в этом случае не требуется. Для червей, не проявляющих спонтанного движения, проведите осторожную стимуляцию, дважды коснувшись задней области тела платиновой петлей. Отсутствие двигательной реакции регистрируется как смерть, и погибший червь удаляется с чашки после записи. Примерно 2 с наблюдения после каждого касания достаточно для определения наличия двигательной реакции. Для записи количества живых и мертвых червей во время подсчета и снижения ошибок рекомендуется использовать ручной счетчик. Чтобы гарантировать, что все черви подсчитаны один раз и не повторно, поместите под чашку прозрачный пластиковый лист с сеткой или нарисуйте сетку на дне чашки, чтобы разделить её на сектора для подсчета.
ПРИМЕЧАНИЕ: Сразу после подсчета возвращайте чашки в инкубатор с заданным температурным режимом. - Контролируйте выживаемость червей через регулярные интервалы времени, пока все животные не погибнут или не будут цензурированы в соответствии с предопределенными критериями. Соберите записанные данные о выживаемости и используйте их для построения кривых выживаемости для последующего анализа.
- Тест на стресс ЭР
Схема работы данного раздела представлена на рисунке 1C.- Приготовьте чашки со средой для теста на стресс ЭР. Добавьте стоковый раствор туникамицина (10 mg/mL в диметилсульфоксиде (DMSO), хранить при –20 °C) в жидкую NGM-среду (из раздела 1.1.2) до конечной концентрации 25, 50, 100 или 200 µg/mL. Например, для 1 L среды для теста на стресс ЭР добавьте 2,5, 5, 10 или 20 mL стокового раствора туникамицина (10 mg/mL в DMSO), чтобы достичь конечной концентрации 25, 50, 100 или 200 µg/mL туникамицина в средах в чашках. Если в тесте предусмотрен необработанный контроль, добавьте такое же количество DMSO (2,5, 5, 10 или 20 mL) в соответствующую контрольную среду.
КРИТИЧЕСКИЙ ЭТАП: Охладите автоклавированную NGM-среду примерно до 55 °C при перемешивании и добавьте туникамицин до желаемой конечной концентрации. Тщательно перемешайте перед тем, как разлить по 3 mL NGM-среды с туникамицином в каждую 35-мм чашку. Засейте каждую 35-мм агариковую чашку 100 µL бактерий OP50 (раздел 1.2). NGM-чашки с туникамицином, засеянные OP50, можно хранить при 4 °C до одной недели перед использованием.
ПРЕДОСТЕРЕЖЕНИЕ: Туникамицин опасен; работа с ним должна проводиться в вытяжном шкафу с использованием лабораторного халата, перчаток и средств защиты глаз. Избегайте вдыхания, а также контакта с кожей или глазами. - Синхронизируйте червей до поздней стадии L4 (раздел 2) и содержите их при 20 °C. Перенесите синхронизированных червей стадии L4 на 35-мм NGM-чашки, засеянные OP50 и содержащие туникамицин, используя по 4 чашки на группу в качестве технических повторностей, по 30–35 червей на чашку. Настройку биологических повторностей см. в разделе 4.
- Инкубируйте все чашки при 20 °C. Ежедневно регистрируйте количество погибших червей. Средняя выживаемость червей дикого типа при воздействии 25, 50, 100 или 200 µg/mL туникамицина составляет от примерно 8 до 11 дней (рисунок 2E,F) по сравнению со средней выживаемостью в физиологически нестрессовых условиях, которая составляет около 20 дней (рисунок 2A).
ПРИМЕЧАНИЕ: В тесте на стресс ЭР, индуцированный туникамицином, яйца откладываются, но они не вылупляются на агариковых чашках, содержащих туникамицин. Следовательно, перенос червей на свежие чашки не требуется. - Ежедневно подсчитывайте количество погибших червей на каждой чашке технической повторности и заносите данные в лист учета. Подсчет проводится вручную с помощью стереомикроскопа на лабораторном столе при комнатной температуре. Активно двигающихся червей засчитывают как живых, физическая стимуляция не требуется. Для червей, не проявляющих спонтанного движения, проведите осторожную стимуляцию, дважды коснувшись задней области тела платиновой петлей. Отсутствие реакции регистрируется как смерть, и погибший червь удаляется с чашки после записи. Для обеспечения точности подсчета рекомендуется использовать ручной счетчик. Чтобы гарантировать, что все черви подсчитаны один раз и не повторно, поместите под чашку прозрачный пластиковый лист с сеткой или нарисуйте сетку на дне чашки, чтобы разделить её на сектора для подсчета.
ПРИМЕЧАНИЕ: Сразу после подсчета возвращайте чашки в инкубатор. Содержите червей в инкубаторе примерно 24 ч до следующего подсчета. - Контролируйте выживаемость червей ежедневно, пока все животные не погибнут или не будут цензурированы в соответствии с предопределенными критериями. Соберите записанные данные о выживаемости и используйте их для построения кривых выживаемости для последующего анализа.
- Приготовьте чашки со средой для теста на стресс ЭР. Добавьте стоковый раствор туникамицина (10 mg/mL в диметилсульфоксиде (DMSO), хранить при –20 °C) в жидкую NGM-среду (из раздела 1.1.2) до конечной концентрации 25, 50, 100 или 200 µg/mL. Например, для 1 L среды для теста на стресс ЭР добавьте 2,5, 5, 10 или 20 mL стокового раствора туникамицина (10 mg/mL в DMSO), чтобы достичь конечной концентрации 25, 50, 100 или 200 µg/mL туникамицина в средах в чашках. Если в тесте предусмотрен необработанный контроль, добавьте такое же количество DMSO (2,5, 5, 10 или 20 mL) в соответствующую контрольную среду.
- Тест на митохондриальный стресс
Схема работы данного раздела представлена на рисунке 1D.- Приготовьте чашки со средой для теста на митохондриальный стресс. Добавьте стоковый раствор антимицина А (5 mg/mL в DMSO, хранить при –20 °C) в жидкую NGM-среду (из раздела 1.1.2) до конечной концентрации 5, 10, 20, 40 или 80 µg/mL. Например, для 1 L среды для теста на митохондриальный стресс добавьте 1, 2, 4, 8 или 16 mL стокового раствора антимицина А (5 mg/mL в DMSO) для достижения конечной концентрации 5, 10, 20, 40 или 80 µg/mL антимицина А в средах в чашках. Если в тесте предусмотрен необработанный контроль, добавьте такое же количество DMSO (1, 2, 4, 8 или 16 mL) в соответствующую контрольную среду.
КРИТИЧЕСКИЙ ЭТАП: Охладите автоклавированную NGM-среду примерно до 55 °C при перемешивании и добавьте антимицин А до желаемой конечной концентрации. Тщательно перемешайте перед тем, как разлить по 3 mL NGM-среды с антимицином А в каждую 35-мм чашку. Засейте каждую 35-мм агариковую чашку 100 µL бактерий OP50 (раздел 1.2). NGM-чашки с антимицином А, засеянные OP50, можно хранить при 4 °C до одной недели перед использованием.
ПРЕДОСТЕРЕЖЕНИЕ: Антимицин А опасен; работа с ним должна проводиться в вытяжном шкафу с использованием лабораторного халата, подходящих перчаток и средств защиты глаз. Избегайте вдыхания, а также контакта с кожей или глазами. - Синхронизируйте червей до поздней стадии L4 (раздел 2) и содержите их при 20 °C. Перенесите синхронизированных червей стадии L4 на 35-мм NGM-чашки, засеянные OP50 и содержащие антимицин А, используя по 4 чашки на группу в качестве технических повторностей, по 30–35 червей на чашку. Настройку биологических повторностей см. в разделе 4.
- Инкубируйте все чашки при 20 °C. Ежедневно регистрируйте количество погибших червей.
КРИТИЧЕСКИЙ ЭТАП: Из-за вылупления яиц и проблем с развитием личинок переносите червей на свежие чашки каждые два дня в течение первых 10 дней. Прекратите перенос, когда на чашке больше не будут наблюдаться новые личинки или яйца. Все технические повторности должны подвергнуться одинаковому количеству переносов. Например, если перенос требуется только для одной чашки, все чашки в данной биологической повторности должны быть перенесены одновременно. Средняя выживаемость червей дикого типа при 5, 10, 20, 40 или 80 µg/mL антимицина А составляет от примерно 1,5 до 5 дней (рисунок 2G,H) по сравнению со средней выживаемостью в физиологически нестрессовых условиях, которая составляет около 20 дней (рисунок 2A).
ПРИМЕЧАНИЕ: Тест на митохондриальный стресс, индуцированный антимицином А, требует переноса червей на свежие чашки каждые два дня в течение первых 10 дней. Перенос выполняется для предотвращения скученности и голодания, а также для того, чтобы отличить экспериментальных червей от их потомства. - Ежедневно подсчитывайте количество погибших червей на каждой чашке технической повторности и заносите данные в лист учета. Подсчет проводится вручную с помощью стереомикроскопа на лабораторном столе при комнатной температуре. Активно двигающихся червей засчитывают как живых, физическая стимуляция не требуется. Для червей, не проявляющих спонтанного движения, проведите осторожную стимуляцию, дважды коснувшись задней области тела платиновой петлей. Отсутствие реакции регистрируется как смерть, и погибший червь удаляется с чашки после записи. Для обеспечения точности подсчета рекомендуется использовать ручной счетчик. Чтобы гарантировать, что все черви подсчитаны один раз и не повторно, поместите под чашку прозрачный пластиковый лист с сеткой или нарисуйте сетку на дне чашки, чтобы разделить её на сектора для подсчета.
ПРИМЕЧАНИЕ: Сразу после подсчета возвращайте червей в инкубатор. Содержите червей в инкубаторе примерно 24 ч до следующего подсчета. - Контролируйте выживаемость червей ежедневно, пока все животные не погибнут или не будут цензурированы в соответствии с предопределенными критериями. Соберите записанные данные о выживаемости и используйте их для построения кривых выживаемости для последующего анализа.
- Приготовьте чашки со средой для теста на митохондриальный стресс. Добавьте стоковый раствор антимицина А (5 mg/mL в DMSO, хранить при –20 °C) в жидкую NGM-среду (из раздела 1.1.2) до конечной концентрации 5, 10, 20, 40 или 80 µg/mL. Например, для 1 L среды для теста на митохондриальный стресс добавьте 1, 2, 4, 8 или 16 mL стокового раствора антимицина А (5 mg/mL в DMSO) для достижения конечной концентрации 5, 10, 20, 40 или 80 µg/mL антимицина А в средах в чашках. Если в тесте предусмотрен необработанный контроль, добавьте такое же количество DMSO (1, 2, 4, 8 или 16 mL) в соответствующую контрольную среду.
- Тест на окислительный стресс
Схема работы данного раздела представлена на рисунке 1E.- Приготовьте чашки со средой для теста на окислительный стресс. Добавьте стоковый раствор параквата (0,5 M в ddH2O, хранить при –20 °C) в жидкую NGM-среду (из раздела 1.1.2) до конечной концентрации 2,5, 5, 10 или 20 mM.
КРИТИЧЕСКИЙ ЭТАП: Охладите автоклавированную NGM-среду примерно до 55 °C при перемешивании и добавьте паракват до желаемой конечной концентрации. Тщательно перемешайте перед тем, как разлить по 3 mL NGM-среды с паракватом в 35-мм чашки. Засейте каждую 35-мм агариковую чашку 100 µL бактерий OP50 (раздел 1.2). Посев бактерий OP50 может быть выполнен за 2–3 дня до начала теста. NGM-чашки с паракватом, засеянные OP50, можно хранить при 4 °C до одной недели перед использованием.
ПРЕДОСТЕРЕЖЕНИЕ: Паракват высокотоксичен; работа с ним должна проводиться в вытяжном шкафу с использованием подходящих перчаток, лабораторного халата и средств защиты глаз. Избегайте вдыхания, проглатывания, а также контакта с кожей или глазами. - Синхронизируйте червей до поздней стадии L4 (раздел 2) и содержите их при 20 °C. Перенесите синхронизированных червей стадии L4 на 35-мм NGM-чашки, засеянные OP50 и содержащие паракват, используя по 4 чашки на группу в качестве технических повторностей, по 30–35 червей на чашку. Настройку биологических повторностей см. в разделе 4.
- Инкубируйте все чашки при 20 °C. Ежедневно регистрируйте количество погибших червей. Средняя выживаемость червей дикого типа при 2,5, 5, 10 или 20 mM параквата составляет от примерно 2,5 до 5 дней (рисунок 2I,J) по сравнению со средней выживаемостью в физиологически нестрессовых условиях, которая составляет около 20 дней (рисунок 2A).
ПРИМЕЧАНИЕ: В тесте на окислительный стресс, индуцированный паракватом, перенос червей на свежие чашки не требуется. На чашках с паракватом присутствует ограниченное количество личинок, развитие которых останавливается на стадии L2 или ранее на протяжении всего теста. Они не мешают идентификации синхронизированных когорт и не вызывают голодания. Учитывая физический стресс, который может быть вызван переносом червей, перенос во время теста не рекомендуется. - Ежедневно подсчитывайте количество погибших червей на каждой чашке технической повторности и заносите данные в лист учета. Подсчет проводится вручную с помощью стереомикроскопа на лабораторном столе при комнатной температуре. Активно двигающихся червей засчитывают как живых, физическая стимуляция не требуется. Для червей, не проявляющих спонтанного движения, проведите осторожную стимуляцию, дважды коснувшись задней области тела платиновой петлей. Отсутствие реакции регистрируется как смерть, и погибший червь удаляется с чашки после записи. Для обеспечения точности подсчета рекомендуется использовать ручной счетчик. Чтобы гарантировать, что все черви подсчитаны один раз и не повторно, поместите под чашку прозрачный пластиковый лист с сеткой или нарисуйте сетку на дне чашки, чтобы разделить её на сектора для подсчета.
ПРИМЕЧАНИЕ: Сразу после подсчета возвращайте червей в инкубатор. Содержите червей в инкубаторе примерно 24 ч до следующего подсчета. - Контролируйте выживаемость червей ежедневно, пока все животные не погибнут или не будут цензурированы в соответствии с предопределенными критериями. Соберите записанные данные о выживаемости и используйте их для построения кривых выживаемости для последующего анализа.
- Приготовьте чашки со средой для теста на окислительный стресс. Добавьте стоковый раствор параквата (0,5 M в ddH2O, хранить при –20 °C) в жидкую NGM-среду (из раздела 1.1.2) до конечной концентрации 2,5, 5, 10 или 20 mM.
4. Анализ данных
- Записывайте количество погибших червей на каждой планшете технического повтора в каждой временной точке. Данные о смертности заносятся в оценочный лист, организованный по временным точкам (часы или дни после начала воздействия стрессового фактора), экспериментальным группам (различные штаммы или различные условия обработки) и техническим повторам (планшет 1, 2, 3 или 4). В каждый интервал оценки (ежечасно или ежедневно, в зависимости от метода анализа) количество погибших червей фиксируется отдельно для каждого планшета, а кумулятивная смертность отслеживается до завершения анализа.
- Введите данные о смертности за каждый временной интервал оценки в OASIS 2 (online application for survival analysis 2)44 для построения кривых выживаемости Каплана — Майера и проведения статистического анализа с помощью лог-рангового критерия. В качестве альтернативы показатель смертности можно рассчитать как процент погибших червей в отдельные моменты времени и сравнить между группами, используя двухвыборочный двухсторонний t-критерий Стьюдента t-критерий (для двух групп) или однофакторный дисперсионный анализ (ANOVA) с последующим множественным тестом Тьюки (для трех и более групп).
ПРИМЕЧАНИЕ: Черви с разрывом кутикулы или матрицидным вылуплением (образованием «мешка») считаются погибшими в момент обнаружения для отражения общего показателя выживаемости. Черви с разрывами и «мешкообразным» вылуплением были включены в представленные ниже кривые выживаемости в репрезентативных результатах. Количество цензурированных червей для различных условий было зафиксировано в Дополнительная таблица 1. Черви, которые выбрались из планшета для анализа, высохли на стенке планшета или отсутствуют во время подсчета, рассматриваются как цензурированные наблюдения и исключаются из последующего анализа выживаемости. Животными, считающимися живыми, признаются особи с нарушением двигательной активности, но проявляющие реакцию на легкое прикосновение. Черви с дефектами яйцекладки, выявленными до начала анализа, исключаются из анализа выживаемости. - Все тесты на стрессоустойчивость следует проводить как минимум в трех независимых биологических повторностях в разные дни. Каждая биологическая повторность состоит из четырех технических повторностей (планшетов с червями). Данные технических повторностей внутри одной биологической повторности объединяются для построения одной кривой выживаемости. Независимые биологические повторности анализируются отдельно и представляются в виде отдельных наборов данных, а не в объединенном виде. Каждая биологическая повторность выполняется с использованием независимо приготовленных сред и свежих партий стресс-индуцирующих соединений. Описанные выше протоколы представляют собой этапы получения одной биологической повторности для каждого теста на стрессоустойчивость. Самцы исключаются; в данном протоколе используются и анализируются только гермафродиты.
ПРИМЕЧАНИЕ: В данном протоколе влажность в инкубаторах не контролируется, в то время как температура строго поддерживается на уровне, установленном для эксперимента. Описанные здесь эксперименты проводились без использования метода слепого тестирования; при оценке результатов экспериментатор знал генотип и условия обработки образцов. Для минимизации возможной систематической ошибки при оценке рекомендуется использовать слепой метод определения генотипа и условий обработки, если это представляется возможным.
Результаты
Используя описанные выше протоколы, мы сначала использовали червей дикого типа (WT) штамма N2, чтобы изучить их выживаемость при различных возрастающих дозах всех четырех стрессоров: теплового, стресса ЭР, митохондриального и окислительного стрессов. Затем мы использовали линию с абляцией нейронов, чтобы проверить роль интернейрона RIC в стрессоустойчивости по сравнению с червями WT.
Титрование дозы теплового стресса и сравнение устойчивости к тепловому стрессу у линии с абляцией RIC
При физиологической температуре 20 °C, черви дикого типа живут в среднем 20,67 дня (Рисунок 2A). После выполнения этапов анализа теплового стресса, описанных в разделе 3.1, мы измерили выживаемость WT при повышенных температурах 30, 35 и 37 °C при увеличении доз теплового стресса. Данные показали, что черви дикого типа (WT) живут в среднем 3,11 суток при 30 °C (Рисунок 2B); и черви дикого типа (WT) живут в среднем 5,36 ч при 35 °C и 4,89 ч при 37 °C (Рисунок 2C). Эти результаты указали на значительное снижение выживаемости при более высоких температурах. Статистический анализ и P подробные значения представлены в Дополнительная таблица 2 и подписи к рисункам. Эти данные предоставляют исследователям надежную информацию для выбора оптимальной температуры стресса и временного интервала при разработке анализа теплового стресса. Исследователи могут использовать 30 °C для изучения выживаемости червей в течение нескольких дней при использовании 35 °C или 37 °C для более быстрой оценки выживаемости червей в течение нескольких часов.
Затем мы использовали температуру 35 °C в качестве условия теплового стресса, чтобы оценить влияние абляции RIC-нейронов на выживаемость по сравнению с животными типа WT. Эта температура обеспечивает промежуточный уровень теплового стресса, позволяя избежать экстремальной тяжести при 37 °C и при этом вызывая более выраженный ответ, чем при 30 °C, что позволяет полностью провести анализ выживаемости примерно за 12 h.
Нейроны RIC представляют собой пару октопаминергических интернейронов, расположенных в головном отделе C. elegans9,10. Штамм с абляцией нейронов RIC был получен путем экспрессии гена caspase-3 под управлением промотора гена tbh-1 и использовался ранее45. Вкратце, промотор tbh-1 был встроен в донорные плазмиды mec-18p::caspase-3 (p12)::nz и mec-18p cz::caspase-3 (p17) для замены промотора mec-18. Три конструкта tbh-1p::caspase-3(p12)::nz (20 ng/µL), tbh-1p::cz::caspase-3(p17) (20 ng/µL) и tbh-1p::GFP (20 ng/µL, в качестве маркера нейронов RIC для подтверждения их абляции) совместно с флуоресцентным маркером ко-инъекции myo-3p::GFP (5 ng/µL) вводились в штамм дикого типа N2 для создания штаммов с генетической абляцией RIC. Три независимо полученные линии поддерживались как штаммы с абляцией нейронов RIC. Трансгенные линии поддерживались путем отбора червей с флуоресцентным маркером myo-3p::GFP. Результаты каждого стресс-теста были подтверждены на двух или трех независимых линиях. Успешная абляция нейронов RIC подтверждалась отсутствием флуоресценции tbh-1p::GFP в штамме с абляцией нейронов RIC, в то время как экспрессия GFP наблюдалась в нейронах RIC контрольного репортерного штамма tbh-1p::GFP (Supplementary Figure 1).
Используя этапы анализа теплового стресса, представленные в разделе 3.1, мы изучили выживаемость штаммов дикого типа (WT) и штаммов с абляцией RIC-нейронов при тепловом стрессе 35 °C (Рисунок 2D). Согласно этапам анализа данных, представленным в разделах 4.1–4.3, результаты показали, что при тепловом стрессе 35 °C значимых различий между штаммом с абляцией RIC-нейронов и контрольной группой дикого типа N2 не обнаружено (Рисунок 2D).
Все репрезентативные результаты анализов на тепловой стресс были получены с использованием трех независимых биологических повторов, проведенных в разные дни (Дополнительный рисунок 2). Количество животных (значение n указано в подписях к рисункам), принявших участие Кривая выживаемости, представленная на репрезентативных результатах и дополнительных рисунках, отображает объединенные данные четырех технических повторов в одном биологическом повторе.
Титрование дозы стресса ЭПР и сравнение устойчивости к стрессу ЭПР в линии с абляцией RIC
Используя этапы анализа стресса ЭР, представленные в разделе 3.2, мы измерили выживаемость WT при воздействии 25, 50, 100 или 200 µg/mL туникамицин для повышения доз стресса ЭР (Рисунок 2E). По сравнению со средней выживаемостью в отсутствие физиологического стресса, составляющей около 20 дней (Рисунок 2A), средняя продолжительность жизни червей дикого типа составляет 10,74 дня при 25 µg/mL, 9,13 суток при 50 µg/mL, 9,3 дня при 100 µg/mLи 8,93 дня при 200 µg/mL туникамицин (Рисунок 2E). Увеличение дозы туникамицина не привело к значимому изменению выживаемости при данных дозировках. Статистический анализ и P значения подробно представлены в Дополнительная таблица 2 и подписи к рисункам. Эти данные предоставляют исследователям достоверную информацию для выбора оптимальной дозы туникамицина при проведении анализа стресса эндоплазматического ретикулума.
Затем мы использовали туникамицин в концентрации 50 µg/mL, что является промежуточной дозой среди протестированных, в качестве условия ЭР-стресса для оценки влияния абляции RIC-нейронов на выживаемость по сравнению с животными дикого типа (WT). Используя этапы анализа ЭР-стресса, представленные в разделе 3.2, мы изучили выживаемость как штаммов WT, так и штаммов с абляцией RIC-нейронов в условиях ЭР-стресса, индуцированного туникамицином в концентрации 50 µg/mL (Рисунок 2F). Согласно этапам анализа данных, представленным в разделах 4.1–4.3, кривая выживаемости штамма с абляцией RIC-нейронов продемонстрировала значительный сдвиг вправо относительно контрольной группы WT N2, что указывает на увеличение продолжительности жизни при ЭР-стрессе. Этот результат позволяет предположить, что абляция RIC-нейронов повышает устойчивость к ЭР-стрессу (Рисунок 2F).
Все репрезентативные результаты анализов ЭР-стресса были получены в трех независимых биологических повторностях, проведенных в разные дни (Дополнительный рисунок 3)Количество животных (значение n указано в подписях к рисункам), принявших участие в исследовании Кривая выживаемости, представленная на репрезентативных результатах и дополнительных рисунках, отражает суммарное количество данных четырех технических повторностей в рамках одного биологического повтора.
Титрование дозы митохондриального стресса и сравнение устойчивости к митохондриальному стрессу у линии с абляцией RIC
Используя этапы анализа митохондриального стресса, представленные в разделе 3.3, мы измерили выживаемость WT при концентрациях 5, 10, 20, 40 или 80 µg/mL антимицин А в качестве источника возрастающего митохондриального стресса (Рисунок 2G). Кривые выживаемости червей дикого типа (WT) продемонстрировали значительные изменения дозозависимым образом. По сравнению со средней выживаемостью в условиях отсутствия физиологического стресса, составляющей около 20 дней (Рисунок 2A), средняя выживаемость червей дикого типа составляет 4,96 дня при 5 µg/mL, 3,77 суток при 10 µg/mL, 2,68 суток при 20 µg/mL, 1,65 суток при 40 µg/mLи 1,4 дня при 80 µg/mL антимицин А (Рисунок 2G). Статистический анализ и P подробные значения представлены в Дополнительная таблица 2 и подписи к рисункам. Эти данные предоставляют исследователям достоверную информацию для выбора оптимальной дозы антимицина А и временного интервала при разработке анализа митохондриального стресса. Исследователи могут выбрать 5 µg/mL для оценки выживаемости червей в течение примерно 10 дней или используйте более высокие концентрации антимицина А для получения результатов по выживаемости в течение нескольких дней. Обратите внимание, что более высокие концентрации ускоряют гибель, а более низкие концентрации приводят к более постепенному снижению выживаемости, что позволяет легче выявить незначительные различия между штаммами.
Затем мы использовали антимицин A в концентрации 5 µg/mL, который вызывал более постепенное снижение выживаемости при протестированных дозах, в качестве условия митохондриального стресса для оценки влияния абляции RIC-нейронов на выживаемость по сравнению с животными дикого типа (WT). Используя этапы анализа митохондриального стресса, представленные в разделе 3.3, мы изучили выживаемость штаммов WT и штаммов с абляцией RIC в условиях митохондриального стресса, индуцированного антимицином A в концентрации 5 µg/mL (Рисунок 2H). Применяя методы анализа данных, описанные в разделах 4.1–4.3, было установлено, что кривая выживаемости штамма с абляцией RIC-нейронов была значительно смещена вправо относительно контрольной группы WT N2, что указывает на увеличение продолжительности жизни при митохондриальном стрессе. Этот результат свидетельствует о том, что абляция RIC-нейронов повышает устойчивость к митохондриальному стрессу (Рисунок 2H).
Все репрезентативные результаты анализов митохондриального стресса были получены в трех независимых биологических повторностях, проведенных в разные дни (Дополнительная фигура 4). Количество животных (значение n указано в подписях к рисункам), принявших участие в исследовании Кривая выживаемости, представленная на репрезентативных результатах и дополнительных рисунках, отображает объединенные данные четырех технических повторностей в рамках одного биологического повтора.
Титрование дозы окислительного стресса и сравнение устойчивости к окислительному стрессу у штамма с абляцией RIC
Используя этапы анализа окислительного стресса, представленные в разделе 3.4, мы измерили выживаемость WT при воздействии параквата в концентрациях 2,5, 5, 10 или 20 мМ в качестве возрастающих доз окислительного стресса (Рисунок 2I). Кривые выживаемости червей дикого типа (WT) продемонстрировали значительные изменения дозозависимым образом. По сравнению со средней выживаемостью в отсутствие физиологического стресса, составлявшей около 20 дней (Рисунок 2A), средняя выживаемость червей дикого типа составляет 4,92 дня при концентрации параквата 2,5 мМ, 3,81 дня при 5 мМ, 2,93 дня при 10 мМ и 2,81 дня при 20 мМ (Рисунок 2I). Статистический анализ и P значения подробно представлены в Дополнительная таблица 2 и подрисунки. Эти данные предоставляют исследователям надежную информацию для выбора оптимальной дозы параквата и временного интервала при разработке анализа окислительного стресса. Для оценки выживаемости червей в течение примерно 10 дней можно выбрать концентрацию 2,5 мМ или использовать более высокие концентрации параквата для получения результатов выживаемости в течение нескольких дней. Следует отметить, что более высокие концентрации (10 мМ и 20 мМ) ускоряют гибель, а промежуточные и низкие концентрации (2,5 мМ и 5 мМ) приводят к более постепенному снижению выживаемости, что позволяет легче выявить незначительные различия между штаммами.
Затем мы использовали 5 mM параквата, промежуточную дозу из протестированных, в качестве условия окислительного стресса, чтобы оценить влияние абляции нейронов RIC на выживаемость по сравнению с животными дикого типа (WT). Используя этапы анализа окислительного стресса, представленные в разделе 3.4, мы исследовали выживаемость штаммов WT и штаммов с абляцией нейронов RIC в условиях окислительного стресса, индуцированного 5 mM паракватом (Рисунок 2J). Согласно методам анализа данных, представленным в разделах 4.1–4.3, результаты показали, что при окислительном стрессе, индуцированном 5 mM паракватом, значимых различий между штаммом с абляцией нейронов RIC и контрольной группой дикого типа N2 обнаружено не было (Рисунок 2J).
Все репрезентативные результаты анализов на окислительный стресс были получены с использованием трех независимых биологических повторностей, проведенных в разные дни (Дополнительный рисунок 5). Количество животных (значение n, указанное в подписях к рисункам), учитываемых при построении кривой выживаемости, представленной в репрезентативных результатах и дополнительных рисунках, представляет собой суммарное число животных из четырех технических повторностей в одной биологической повторности.
Устранение неполадок
Повторяющейся проблемой в анализах окислительного стресса, индуцированного паракватом, является побег червей с агариковых чашек, что приводит к потере животных и сокращению их количества, доступного для анализа. Для частичного подавления такого поведения можно добавить на чашки с анализом барьер из пальмитиновой кислоты или другой «забор»46,47, хотя улучшение будет незначительным и не устранит проблему полностью. После обработки пальмитиновой кислотой значимых различий в состоянии здоровья и продолжительности жизни C. elegans не наблюдалось48. Барьер из пальмитиновой кислоты действует как отталкивающий «забор» на чашках NGM, предотвращая бегство C. elegans вследствие стресса, голодания или воздействия патогенов. Чтобы минимизировать побег червей, нанесите 30 µL 10 mg/mL пальмитиновой кислоты в этаноле (добавьте 0,5 g пальмитиновой кислоты в 50 mL 100% EtOH) по краю 35-мм аналитической чашки и осторожно перемешайте содержимое чашки круговыми движениями для формирования непрерывного кольца. После испарения этанола кольцо из пальмитиновой кислоты будет служить физическим и химическим барьером, снижающим побег червей. Черви, погибшие при контакте с кольцом из пальмитиновой кислоты, цензурируются и исключаются из анализа выживаемости.
ПРЕДОСТЕРЕЖЕНИЕ: При работе с пальмитиновой кислотой и ее раствором необходимо использовать соответствующие средства индивидуальной защиты (СИЗ), включая перчатки, лабораторный халат и средства защиты глаз; следует соблюдать осторожность, чтобы избежать попадания вещества на кожу и в глаза.
ДОСТУПНОСТЬ ДАННЫХ
Данные по выживаемости, лежащие в основе рисунка 2 и дополнительных рисунков, включая данные по всем биологическим повторностям и результаты статистического анализа, представлены в Дополнительных рисунках 1–5, Дополнительных таблицах 1–2 и Дополнительном файле 1.
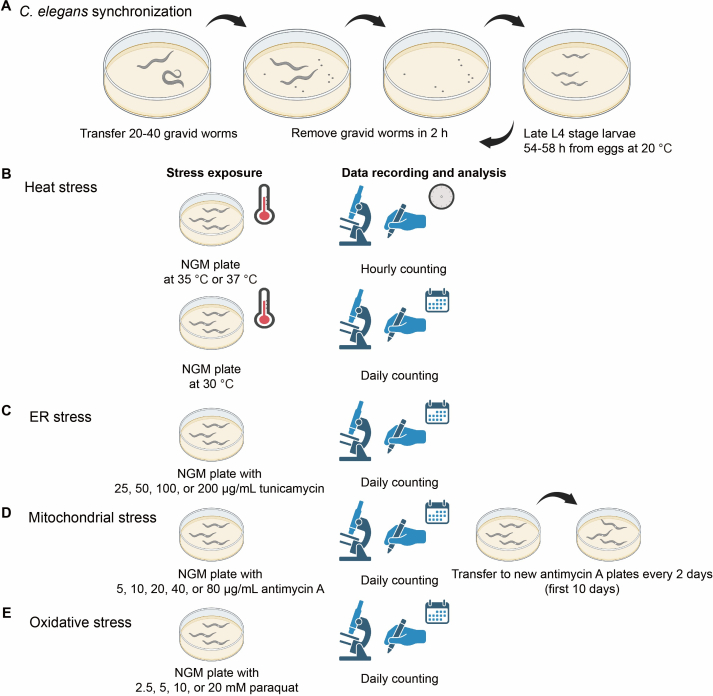
Рисунок 1: Схема проведения анализов на стрессоустойчивость. (A) Синхронизированные черви получают путем сбора яиц, отложенных гравидными червями в течение 2-часового периода. Синхронизированные черви используются для всех анализов на стрессоустойчивость и переносятся на стресс-пластины или в стрессовые условия на поздней стадии L4 после 54-58 ч развития из яиц при 20 °C. (B) В анализе на тепловой стресс синхронизированных червей переносят на пластины NGM в инкубатор при 35 °C или 37 °C, и количество погибших червей подсчитывают ежечасно. Для анализа на тепловой стресс в инкубаторе при 30 °C погибшие черви подсчитываются ежедневно. (C) В анализе на стресс эндоплазматического ретикулума (ЭР) синхронизированных червей переносят на пластины NGM, содержащие 25, 50, 100 или 200 µg/mL туникамицина. Погибшие черви подсчитываются ежедневно. (D) В анализе на митохондриальный стресс синхронизированных червей переносят на пластины NGM, содержащие 5, 10, 20, 40 или 80 µg/mL антимицина A, и выживаемость оценивают путем ежедневного подсчета. Чтобы предотвратить влияние потомства, червей каждые два дня в течение первых 10 дней анализа переносят на свежие пластины, содержащие антимицин A. (E) В анализе на окислительный стресс синхронизированных червей переносят на пластины NGM, содержащие 2.5, 5, 10 или 20 mM параквата, и выживаемость оценивают путем ежедневного подсчета. Стрессоустойчивость оценивают путем сравнения кривых выживаемости Каплана–Мейера, построенных на основе каждого анализа. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
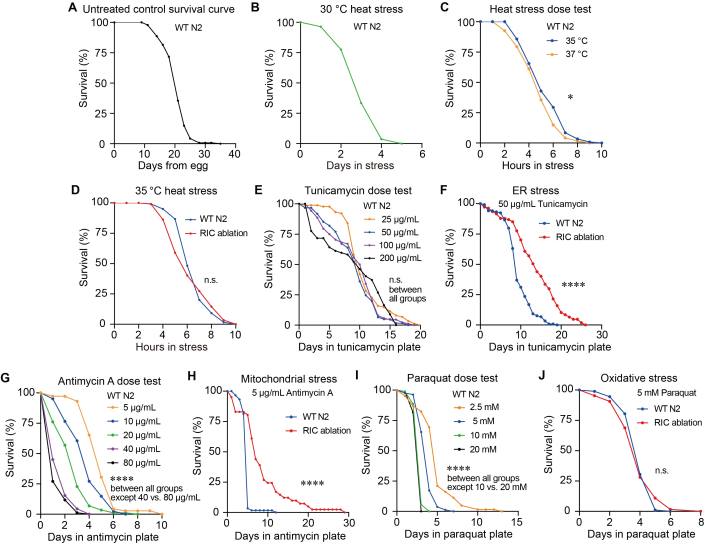
Рисунок 2: Титрование доз теплового, ЭР-, митохондриального и окислительного стрессов и сравнение стрессоустойчивости у штамма с абляцией RIC-нейронов . (A) Репрезентативная кривая выживаемости Каплана–Мейера для штамма WT N2 в условиях отсутствия стресса (n = 141, средняя выживаемость = 20,67 дня). (B) Репрезентативная кривая выживаемости Каплана–Мейера для штамма WT N2 при тепловом стрессе 30 °C (n = 111, средняя выживаемость = 3,11 дня). (C) Репрезентативная кривая выживаемости Каплана–Мейера для штамма WT N2 при тепловом стрессе 35 °C и 37 °C (n = 119, 121); лог-ранговый критерий, P = 0,0244, * означает P < 0,05. (D) Репрезентативная кривая выживаемости Каплана–Мейера для WT N2 и штамма с абляцией RIC-нейронов при тепловом стрессе 35 °C (n = 117, 120); лог-ранговый критерий, P = 0,4972, n.s. означает отсутствие значимых различий. В качестве контроля использовался WT N2. (E) Кривые выживаемости в зависимости от дозы для штамма WT N2 при воздействии возрастающих концентраций туникамицина (n = 88, 61, 88, 67); лог-ранговый критерий, P = 0,6472 (25 µg/mL против 100 µg/mL), P = 0,1473 (25 µg/mL против 50 µg/mL), P = 0,6581 (50 µg/mL против 200 µg/mL), P = 1 (25 µg/mL против 200 µg/mL; 50 µg/mL против 100 µg/mL; 100 µg/mL против 200 µg/mL), n.s. означает отсутствие значимых различий. (F) Репрезентативная кривая выживаемости Каплана–Мейера для WT N2 и штамма с абляцией RIC нейронов при ЭР-стрессе, индуцированном туникамицином в концентрации 50 µg/mL (n = 119, 107); лог-ранговый критерий, **** означает P < 0,0001. (G) Репрезентативные кривые выживаемости Каплана–Мейера для штамма WT N2, подвергнутого воздействию возрастающих концентраций антимицина А (n = 72, 81, 88, 91, 85); лог-ранговый критерий, P = 0,000038 (5 µg/mL против 10 µg/mL), P = 0,00002 (10 µg/mL против 20 µg/mL), P = 1,60 × 10⁻8 (20 µg/mL против 40 µg/mL), P < 0,0001 (5 µg/mL против 20 µg/mL; 5 µg/mL против 40 µg/mL; 5 µg/mL против 80 µg/mL; 10 µg/mL против 40 µg/mL; 10 µg/mL против 80 µg/mL; или 20 µg/mL против 80 µg/mL), P = 0,189 (40 µg/mL против 80 µg/mL), **** означает P < 0,0001. (H) Репрезентативная кривая выживаемости Каплана–Мейера для WT N2 и штамма с абляцией RIC-нейронов при митохондриальном стрессе, индуцированном антимицином А в концентрации 5 µg/mL (n = 59, 41); лог-ранговый критерий, P = 3,2 × 10⁻9, **** означает P < 0,0001. (I) Репрезентативные кривые выживаемости Каплана–Мейера для штамма WT N2 при различных дозах параквата (n = 62, 81, 88, 93); лог-ранговый критерий, P = 1,80 × 10⁻7 (2,5 mM против 5 mM), P < 0,0001 (2,5 mM против 10 mM; 2,5 mM против 20 mM; 5 mM против 10 mM; 5 mM против 20 mM), P = 0,1445 (10 mM против 20 mM), **** означает P < 0,0001. (J) Репрезентативные кривые выживаемости Каплана–Мейера для WT N2 и штамма с абляцией RIC-нейронов при окислительном стрессе, индуцированном паракватом в концентрации 5 mM (n = 92, 64); лог-ранговый критерий, P = 0,9817, n.s. означает отсутствие значимых различий. Все эксперименты были проведены в трех независимых биологических повторностях. На данном рисунке представлены репрезентативные результаты одной биологической повторности. Каждая биологическая повторность состоит из четырех технических повторностей (планшетов с червями). Количество животных (n), использованных для построения кривой выживаемости на данном рисунке, представляет собой суммарное число из четырех технических повторностей в одной биологической повторности. Независимые биологические повторности анализировались отдельно, а не совместно, и представлены в виде отдельных наборов данных в Дополнительных рисунках 2–5. Значимость оценивали с помощью лог-рангового критерия при сравнении распределений выживаемости. Подробные статистические значения P, средняя выживаемость и S. E. между техническими повторностями приведены в Дополнительной таблице 2. Нажмите здесь, чтобы просмотреть этот рисунок в большем размере.
Дополнительная фигура 1: Отсутствие флуоресценции tbh-1p::GFP в штамме с абляцией RIC-нейронов, в то время как экспрессия GFP наблюдалась в RIC-нейронах контрольного репортерного штамма tbh-1p::GFP. (A) Флуоресцентные изображения штамма с абляцией RIC-нейронов tbh-1p::caspase-3(p12)::nz; tbh-1p::cz::caspase-3(p17); tbh-1p::GFP; myo-3p::GFP и контрольного репортерного штамма tbh-1p::GFP OH16150 tbh-1p::GFP; tdc-1p::mCherry. Черви на поздней стадии L4 были сфотографированы при возбуждении 488 nm с временем экспозиции 800 ms для канала GFP и 176 ms для канала светлого поля. Желтые наконечники стрелок указывают на расположение RIC-нейронов в контрольном репортерном штамме tbh-1p::GFP или на ожидаемое расположение RIC-нейронов, которые отсутствуют в штамме с абляцией RIC-нейронов. Сигнал tbh-1p::GFP не был обнаружен в месте расположения RIC-нейронов в штамме с абляцией RIC-нейронов, в то время как сигнал tbh-1p::GFP наблюдался в RIC-нейронах контрольного репортерного штамма tbh-1p::GFP OH16150. Флуоресценция мышц стенки тела в штамме с абляцией RIC-нейронов обусловлена myo-3p::GFP, маркером ко-инъекции. (A) n = 14 для OH16150; n = 20 для штамма с абляцией RIC-нейронов. (B, C) Репрезентативные результаты двух других биологических повторов. Черви на поздней стадии L4 были сфотографированы при возбуждении 488 nm с временем экспозиции 1007 ms (B) или 1998 ms (C) для канала GFP и 176 ms (B и C) для канала светлого поля. (B) n = 8 для OH16150; n = 17 для штамма с абляцией RIC-нейронов. (C) n = 14 для OH16150; n = 13 для штамма с абляцией RIC -нейронов. Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительный рисунок 2: Биологические повторности кривых выживаемости в условиях отсутствия стресса или теплового стресса. (A, B) Кривые выживаемости Каплана-Мейера по двум независимым биологическим повторностям в условиях отсутствия стресса. (A) n = 123, средняя выживаемость = 20.52 days; (B) n = 130, средняя выживаемость = 22.74 days. (C, D) Кривые выживаемости Каплана-Мейера штамма WT N2 при тепловом стрессе 30 °C. Данные получены из двух независимых биологических повторностей. (C) n = 130, средняя выживаемость = 3.72 days. (D) n = 98, средняя выживаемость = 3.77 days. (E, F) Кривые выживаемости Каплана-Мейера в условиях теплового стресса при 35 °C или 37 °C. Данные получены из двух независимых биологических повторностей. (E) n = 118, 121; лог-ранговый критерий, P = 0.0409, * означает P < 0.05, (F) n = 122, 120; лог-ранговый критерий, P = 0.0251, * означает P < 0.05. (G, H) Кривые выживаемости Каплана-Мейера штаммов WT N2 и штаммов с абляцией RIC-нейронов в условиях теплового стресса при 35 °C. Данные получены из двух независимых биологических повторностей. (G) n = 79, 76; лог-ранговый критерий, P = 0.2217, n.s. означает отсутствие значимых различий. (H) n = 77, 81; лог-ранговый критерий, P = 0.1881, n.s. означает отсутствие значимых различий. Значимость оценивали с помощью лог-рангового критерия путем сравнения распределений выживаемости. Подробные статистические значения P, средняя выживаемость и S. E. для технических повторностей приведены в Дополнительной таблице 2. Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительный рисунок 3: Биологические повторности кривых выживаемости в условиях ЭР-стресса. (A, B) Кривые выживаемости Каплана-Мейера для штамма WT N2 при воздействии различных концентраций туникамицина. Данные получены из двух независимых биологических повторностей. (A) n = 110, 102, 100, 96; (B) n = 88, 77, 75, 69. Статистические P-значения для различных групп (A и B) указаны в Дополнительной таблице 2. (C, D) Кривые выживаемости Каплана-Мейера для штамма WT N2 и штамма с абляцией RIC-нейронов в условиях ЭР-стресса, индуцированного туникамицином в концентрации 50 µg/mL. Данные получены из двух независимых биологических повторностей. (C) n = 104, 55; логарифмический ранговый критерий, P = 0.012, * означает P < 0.05, (D) n = 85, 109; логарифмический ранговый критерий, P = 0.0001, *** означает P < 0.001. Значимость оценивали с помощью логарифмического рангового критерия путем сравнения распределений выживаемости. Подробные статистические P-значения, средняя выживаемость и стандартная ошибка (S. E.) для технических повторностей приведены в Дополнительной таблице 2. Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительный рисунок 4: Биологические повторности кривых выживаемости в условиях митохондриального стресса. (A, B) Кривые выживаемости Каплана-Мейера для штамма WT N2 при воздействии различных концентраций антимицина A. Данные получены из двух независимых биологических повторностей. (A) n = 71, 80, 81, 88, 90. (B) n=71, 85, 83, 88, 87. Статистические P-значения для различных групп (A и B) указаны в Дополнительной таблице 2. (C, D) Кривые выживаемости Каплана-Мейера для штамма WT N2 и штамма с абляцией RIC-нейронов при митохондриальном стрессе, индуцированном антимицином A. Данные получены из двух независимых биологических повторностей. (C) n = 105, 78; лог-ранговый критерий, P = 0.000004, **** означает P < 0.0001. (D) n = 89, 73; лог-ранговый критерий, **** означает P < 0.0001. Значимость оценивали с помощью лог-рангового критерия путем сравнения распределений выживаемости. Подробные статистические P-значения, средняя выживаемость и S. E. для технических повторностей приведены в Дополнительной таблице 2. Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительный рисунок 5: Биологические повторности кривых выживаемости в условиях окислительного стресса. (A, B) Кривые выживаемости Каплана-Мейера для штамма дикого типа N2 при воздействии различных концентраций параквата. Данные представлены результатами двух независимых биологических повторов. (A) n = 38, 63, 60, 31. (B) n = 55, 77, 86, 107. Статистический P значения между различными группами (A и B) указаны в Дополнительной таблице 2. (C, D) Кривые выживаемости Каплана-Мейера для дикого типа N2 и линии с абляцией RIC-нейронов в условиях окислительного стресса, индуцированного 5 мМ параквата. Данные получены из двух независимых биологических повторов. (C) n = 87, 82; лог-ранговый критерий, P = 0,2629, n.s. означает отсутствие статистически значимых различий. (D) n = 116, 118; лог-ранговый критерий, P = 0,1184; n.s. означает отсутствие статистически значимых различий. Значимость оценивали с помощью лог-рангового критерия путем сравнения распределений выживаемости. Подробный статистический P значения, средняя выживаемость и стандартная ошибка среднего для технических повторностей приведены в Дополнительной таблице 2. Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительная таблица 1: Сводка количества червей, включенных во все кривые выживаемости. В таблице приведены начальное количество червей, а также количество разорванных, погибших от забивания (bagged) и цензурированных особей. Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительная таблица 2: Подробный статистический анализ всех кривых выживаемости, включая значения P, среднюю выживаемость и стандартную ошибку (S. E.). Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительный файл 1: Данные, подтверждающие результаты этого исследования.
Включает подтверждение успешной абляции нейронов RIC и результаты всех биологических повторностей, на которых основаны данные, представленные на основных рисунках. Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Обсуждение
Здесь мы описали стандартизированные этапы для проведения воспроизводимых анализов стресса при тепловом, ЭР-, митохондриальном и окислительном стрессах у C. elegans (Рисунок 1). Мы изучили влияние ряда возрастающих доз всех четырех стрессоров на выживаемость червей дикого типа (Рисунок 2). Мы также представили пример исследования роли интернейрона в стрессоустойчивости ко всем четырем стрессорам с использованием линии с абляцией нейронов (Рисунок 2).
Для успешного применения представленного здесь протокола анализа стрессоустойчивости в процессе работы необходимо учесть несколько ключевых моментов. Из-за вариабельности между лабораториями, вызванной различиями в используемом агаровом порошке, среде, температуре окружающей среды и влажности, рекомендуется титровать каждое стрессовое воздействие или концентрацию стресс-индуцирующего соединения, следуя нашим рекомендациям по титрованию и этапам, изложенным в разделах «Протокол» и «Результаты». Подходящее стрессовое условие должно вызывать воспроизводимый промежуточный ответ по выживаемости у контрольных червей дикого типа, обеспечивая достаточный динамический диапазон для обнаружения как повышения, так и снижения стрессоустойчивости. Следует избегать условий, приводящих к почти полной выживаемости или почти полной летальности. Кроме того, крайне важно обеспечить синхронизацию червей по одной и той же стадии развития для всех биологических и технических повторностей. Синхронизацию червей можно осуществить с помощью процедуры, описанной в разделах 2.1–2.3. Рекомендуется синхронизация на поздней стадии L4. Начало анализа стресса на стадии L4 является общепринятой практикой в области исследований стрессового ответа C. elegans, и во многих работах синхронизированные животные стадии L4 использовались в анализах устойчивости к окислительному42, тепловому 40,43 и другим видам стресса35. Начало на стадии L4 обеспечивает синхронизацию развития, сводя к минимуму вариабельность, вносимую различиями в возрасте взрослых особей и репродуктивном статусе, включая начало откладки яиц и задержку эмбрионов, которые могут влиять на показатели стрессоустойчивости12,37,38,40. Поскольку все экспериментальные группы в нашем исследовании были синхронизированы и подвергнуты идентичной обработке, такой подход обеспечивает согласованную и надлежащую основу для сравнения стрессоустойчивости. Наконец, если черви подвергались голоданию или стрессу до начала анализа, их потомство следует восстанавливать в течение нескольких поколений в условиях кормления без стресса, прежде чем использовать их в качестве гравидных червей для получения синхронизированного потомства для анализов стресса.
Межэкспериментальная вариабельность между независимыми биологическими повторностями может быть вызвана различиями в подготовке и хранении чашек, включая продолжительность хранения чашек с соединениями, индуцирующими стресс, при 4 °C и время посева бактерий OP50. Для повышения воспроизводимости экспериментов, проводимых в разные дни, следует стандартизировать критические этапы подготовки чашек в соответствии с изложенным протоколом приготовления чашек с NGM в разделе 1.1, чашек для индуцирования стресса ЭР туникамицином в разделе 3.2.1, чашек для индуцирования митохондриального стресса антимицином A в разделе 3.3.1 и чашек для индуцирования окислительного стресса паракватом в разделе 3.4.1. В частности, после заливки агариковые чашки следует сушить при комнатной температуре примерно 24 h, а затем посеять OP50 после полного затвердевания агара. Чашки с NGM, посеянные OP50, должны сохнуть при комнатной температуре еще 24 h перед хранением при 4 °C. Оптимальное время сушки может варьироваться в зависимости от использования вентилируемых или невентилируемых чашек, а также местных условий окружающей среды, таких как температура и влажность. Следовательно, каждой лаборатории следует оптимизировать этот этап под свои условия и поддерживать постоянное время сушки для всех независимых биологических повторностей для обеспечения воспроизводимости. Чашки для анализа стресса следует использовать в течение одной недели после приготовления, чтобы минимизировать деградацию стресс-индуцирующих соединений и чрезмерный рост бактерий, так как оба этих фактора могут повлиять на стабильность результатов анализа.
В данном протоколе также представлен пример исследования роли интернейрона в стрессовом ответе на все четыре стрессора с использованием линии с абляцией нейронов (Рисунок 2). Промотор гена, экспрессируемого специфически в определенном нейроне, может быть использован для запуска экспрессии каспазы-3 и абляции целевого нейрона. В данной работе для абляции нейронов RIC мы использовали промотор tbh-1, который обеспечивает специфическую экспрессию генов в нейронах RIC. Промотор tbh-1 прошел широкую валидацию для генетических манипуляций, направленных на RIC, и регулярно используется для клеточно-специфической экспрессии, рескуэ, кальциевого имиджинга и сайленсинга нейронов45,49,50. В соответствии с опубликованными данными о характеристиках tbh-1, мы наблюдали экспрессию tbh-1p::GFP, ограниченную нейронами RIC, и не обнаружили флуоресценции в других тканях (Дополнительный рисунок 1). Мы не проводили специального анализа размера выводка или морфологии зародышевой линии в линии с абляцией нейронов RIC; тем не менее, явных физиологических дефектов у животных данной линии обнаружено не было. Было отмечено, что репортер tbh-1 может проявлять дополнительную экспрессию в соматических клетках оболочки гонад, которые являются соматическими клетками репродуктивной системы51,52. Хотя мы не можем полностью исключить возможность низкого уровня экспрессии вне нейронов RIC, мы считаем маловероятным, что экспрессия tbh-1 вне RIC обуславливает повышенную стрессоустойчивость, наблюдаемую у животных с абляцией нейронов RIC. Несмотря на то, что этот метод хорошо зарекомендовал себя49,50, он ограничен возможной экспрессией в клетках, не являющихся целевыми нейронами. Необходимы другие методологии подтверждения роли нейрона, например, мониторинг активности нейрона в ответ на стрессоры или оценка роли нейромедиаторов, высвобождаемых этим нейроном, в тестах на стресс.
C. elegans анализы на выживаемость являются мощными инструментами для измерения стрессоустойчивости благодаря тому, что относительно короткая продолжительность жизни червей (приблизительно от 20 до 30 дней, Рисунок 2) и быструю смертность, вызванную воздействием множественных стрессоров, которая обычно наступает в течение от нескольких часов до нескольких дней (Рисунок 2). Однако ограничением анализов на выживаемость является использование бинарной конечной точки «жив/мертв», вследствие чего они не позволяют зафиксировать прогрессирующее физиологическое ухудшение, происходящее при воздействии стресса. Дополнительные анализы, такие как тест на интенсивность движений («thrashing assay») или автоматизированные измерения локомоции (скорости), проводимые в нескольких временных точках, могут предоставить дополнительную информацию о постепенной потере нейромышечной функции при стрессе. Еще одним ограничением является то, что смерть определяется по отсутствию реакции на осторожную физическую стимуляцию, что может привести к недооценке жизнеспособности животных с тяжелыми нарушениями локомоции. Кроме того, ручная оценка вносит вариативность, зависящую от наблюдателя, и потенциальную предвзятость. Чтобы минимизировать эти эффекты, всю оценку в рамках одного независимого биологического повтора должен проводить один и тот же исследователь, который не должен знать генотипа и условий эксперимента (метод «слепого» тестирования). Постоянство условий оценки, включая использование одного и того же увеличения микроскопа и настроек освещения в каждой временной точке, также важно для снижения вариативности между планшетами и в разных экспериментах. В репрезентативных результатах мы представили пример, в котором штамм с аблированными RIC-нейронами показал повышенную стрессоустойчивость к стрессу эндоплазматического ретикулума и митохондриальному стрессу, но не к тепловому и окислительному стрессу по сравнению с червями дикого типа (Рисунок 2). Различие в выживаемости при воздействии двух из четырех стрессоров само по себе не доказывает специфическую роль нейрона в определенном пути; биологический вывод в данной рукописи представлен скорее как демонстрация метода и наблюдения, а не как утверждение о механизме действия.
Помимо описанных здесь тестов на выживаемость при стрессе, было разработано несколько автоматизированных платформ для измерения выживаемости C. elegans. Автоматизированная оценка существенно увеличивает пропускную способность, позволяет осуществлять непрерывный или высокочастотный мониторинг, а также снижает трудозатраты и субъективность, связанные с ручным подсчетом53,54,55. Такие системы особенно эффективны для крупномасштабных генетических или химических скринингов. Однако большинство автоматизированных методов определяют смерть по прекращению движения, что в зависимости от алгоритма обработки изображений и порога обнаружения может привести к ошибочной классификации червей, которые находятся в состоянии покоя или имеют серьезные нарушения локомоции при стрессе. На автоматическое обнаружение также могут влиять факторы окружающей среды, включая температуру, конденсацию, грибковое или бактериальное загрязнение, а также колебания условий культивирования, что может помешать обнаружению червей и повлиять на показатели выживаемости. Напротив, ручная оценка позволяет экспериментатору выявить аномальные фенотипы, такие как «bagging» (заполнение тела потомством), внутреннее вылупление или разрыв покровов животных, которые могут потребовать специфических критериев оценки или цензурирования. Хотя ручной подсчет более трудоемок и подвержен вариативности в зависимости от наблюдателя, эти ограничения можно свести к минимуму путем слепой оценки, использования стандартизированных критериев и проведения подсчета одним и тем же исследователем. Таким образом, ручные и автоматизированные тесты на выживаемость имеют свои преимущества и недостатки, и выбор метода должен основываться на целях эксперимента, требуемой пропускной способности и характере модели стресса.
В совокупности описанные здесь методы обеспечивают стандартизированную и воспроизводимую основу для оценки реакций C. elegans на несколько факторов стресса окружающей среды, включая тепловой, митохондриальный, стресс эндоплазматического ретикулума (ЭР) и окислительный стресс. Оценка устойчивости к различным стрессорам имеет важное значение, поскольку генетические или физиологические нарушения могут повышать устойчивость к одному типу стресса, одновременно увеличивая восприимчивость к другому, что позволяет выявить как специфические для конкретного стрессора, так и общие механизмы адаптации к стрессу. Эти анализы позволяют проводить количественные сравнения стрессоустойчивости у различных генотипов и в разных экспериментальных условиях, а также могут быть легко применены для исследования роли генов, нейронов и метаболических путей в поддержании устойчивости к стрессу и физиологического гомеостаза. В более широком смысле данные методы представляют собой надежную платформу для идентификации механизмов, способствующих здоровью и выживанию организма в неблагоприятных условиях окружающей среды.
Раскрытие информации
Авторы не заявляют о наличии конфликта интересов.
Благодарности
Исследование, представленное в данной публикации, было поддержано Канзасской сетью идей по биомедицинским исследованиям (Kansas Idea Network of Biomedical Research Excellence, K-INBRE, P20 GM103418), Центром биомедицинских исследований (Center of Biomedical Research Excellence, COBRE, P20 GM113109) и Центром исследований рака при Канзасском государственном университете (Cancer Research Expansion Award) в виде финансирования S.H.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Туникамицин | Sigma-Aldrich | T7765 | Индуктор стресса ЭПР |
| Антимицин А | Sigma-Aldrich | A8674 | Индуктор митохондриального стресса |
| Гидрат дихлорида метилвиологена (паракват) | Sigma-Aldrich | 856177 | Индуктор окислительного стресса |
| Пальмитиновая кислота | MP Biomedicals, LLC | 100905 | Подавить C. elegans выход поведение |
| Холестерин | MP Biomedicals, LLC | 101382 | Для NGM |
| Хлорид кальция | Thermo Fisher Scientific Inc. | C79-500 | Для NGM |
| Сульфат магния безводный | Mallinckrodt Pharmaceuticals plc | 6070 | Для NGM |
| Агар | Apex Chemicals Co., Ltd | 20-273 | Для NGM |
| Пептон | Apex Chemicals Co., Ltd | 20-260 | Для NGM |
| Монокалийфосфат | Thermo Fisher Scientific Inc. | P285-3 | Для NGM |
| Хлорид натрия | Thermo Fisher Scientific Inc. | S640-3 | Для NGM |
| Гидрофосфат калия | Allied Chemical, General Chemical Division | Код 2131 | Для NGM |
| Чашки Петри (35 мм) | Genesee Scientific, LLC | 32-103 | Планишки для анализа стресса |
| Чашки Петри (60 мм) | Genesee Scientific, LLC | 32-105 | Поддерживать C. elegans |
| mec-18p cz::caspase-3 (p17) | Addgene | TU#814 | |
| mec-18p::caspase-3 (p12)::nz | Addgene | TU#813 | |
| Инкубатор-шейкер с охлаждением New Brunswick Scientific (Eppendorf) C24KC | Eppendorf / New Brunswick Scientific | C24KC | 37 °C инкубатор |
| DigiTherm® Инкубатор с функцией нагрева и охлаждения объемом 38 литров | Tritech Research Inc. | DT2-MP-47L | 35 °C инкубатор |
| Низкотемпературный инкубатор Fisher Scientific Isotemp | Fisher Scientific | 146E | 30 °C инкубатор |
| Рефрижераторный инкубатор SHELab SRI20P | Sheldon Manufacturing Inc. | SRI20P | 20 °C инкубатор |
| Исследовательский стереомикроскоп Leica M165 FC | Leica Microsystems | M165 FC | Микроскоп для визуализации |
| Стереомикроскоп с зум-объективом ACCU-SCOPE 3075-DIA | ACCU-SCOPE Inc. | 3075-DIA | Микроскоп для манипуляций с червями и их оценки |
| Microsoft Excel 2019 | Microsoft Corporation | Построение графиков по необработанным данным | |
| GraphPad Prism 8.0.2 | GraphPad Software Inc. | Визуализация данных | |
| OASIS 2 | POSTECH, PMID: 27528229 | Статистический анализ | |
| BioRender | Science Suite Inc. | Схематическое изображение | |
| ImageJ | Национальные институты здравоохранения (NIH) | Обработка изображений | |
| Adobe Illustrator 2021 | Adobe Inc. | Сборка рисунка макет | |
| дикого типа | Центр генетики Caenorhabditis, CGC | N2 | |
| tbh-1p::caspase-3(p12)::nz; tbh-1p::cz::caspase-3(p17); tbh-1p::GFP; myo-3p::GFP | самодельный | РИК-абляция | |
| nIs107 [tbh-1::GFP] III. zfIs10 [tdc-1::mCherry] IV. Нейроны RIC маркированы и GFP, и mCherry | Центр генетики Caenorhabditis, CGC | OH16150 |
Ссылки
- Morimoto RI, Santoro MG. Stress-inducible responses and heat shock proteins: new pharmacologic targets for cytoprotection. Nat Biotechnol. 1998;16(9):833-838.
- Hetz C, Chevet E, Oakes SA. Proteostasis control by the unfolded protein response. Nat Cell Biol. 2015;17(7):829-838.
- Blackwell TK, et al. SKN-1/Nrf, stress responses, and aging in Caenorhabditis elegans. Free Radic Biol Med. 2015;88(Pt B):290-301.
- Lamech LT, Haynes CM. The unpredictability of prolonged activation of stress response pathways. J Cell Biol. 2015;209(6):781-787.
- Balch WE, Morimoto RI, Dillin A, Kelly JW. Adapting proteostasis for disease intervention. Science. 2008;319(5865):916-919.
- Powers ET, et al. Biological and chemical approaches to diseases of proteostasis deficiency. Annu Rev Biochem. 2009;78:959-991.
- Soo SK, et al. Biological resilience and aging: activation of stress response pathways contributes to lifespan extension. Ageing Res Rev. 2023;88:101941.
- Ma Z, et al. The integrated stress response protects against ER stress but is not required for altered translation and lifespan from dietary restriction in Caenorhabditis elegans. Front Cell Dev Biol. 2023;11:1263344.
- Horikawa M, Sakamoto K. Fatty-acid metabolism is involved in stress-resistance mechanisms of Caenorhabditis elegans. Biochem Biophys Res Commun. 2009;390(4):1402-1407.
- Prahlad V, Cornelius T, Morimoto RI. Regulation of the cellular heat shock response in Caenorhabditis elegans by thermosensory neurons. Science. 2008;320(5877):811-814.
- Prahlad V, Morimoto RI. Neuronal circuitry regulates the response of Caenorhabditis elegans to misfolded proteins. Proc Natl Acad Sci U S A. 2011;108(34):14204-14209.
- Taylor RC, Dillin A. XBP-1 is a cell-nonautonomous regulator of stress resistance and longevity. Cell. 2013;153(7):1435-1447.
- Ozbey NP, et al. Tyramine acts downstream of neuronal XBP-1s to coordinate inter-tissue UPR(ER) activation and behavior in C. elegans. Dev Cell. 2020;55(6):754-770.e6.
- Durieux J, Wolff S, Dillin A. The cell-non-autonomous nature of electron transport chain-mediated longevity. Cell. 2011;144(1):79-91.
- Berendzen KM, et al. Neuroendocrine coordination of mitochondrial stress signaling and proteostasis. Cell. 2016;166(6):1553-1563.e10.
- Shaposhnikov M, et al. Lifespan and stress resistance in Drosophila with overexpressed DNA repair genes. Sci Rep. 2015;5:15299.
- Jia J, et al. A pair of dopamine neurons mediate chronic stress signals to induce learning deficit in Drosophila melanogaster. Proc Natl Acad Sci U S A. 2021;118(42):e2023674118.
- Solovev I, et al. Neuron-specific overexpression of core clock genes improves stress-resistance and extends lifespan of Drosophila melanogaster. Exp Gerontol. 2019;117:61-71.
- Shuai Y, Zhang Y, Gao L, Zhong Y. Stress resistance conferred by neuronal expression of dominant-negative Rac in adult Drosophila melanogaster. J Neurogenet. 2011;25(1-2):35-39.
- Williams KW, et al. Xbp1s in Pomc neurons connects ER stress with energy balance and glucose homeostasis. Cell Metab. 2014;20(3):471-482.
- Kim JG, Ea JY, Yoon BJ. Orexinergic neurons modulate stress coping responses in mice. Front Mol Neurosci. 2023;16:1140672.
- Jovaisaite V, Mouchiroud L, Auwerx J. The mitochondrial unfolded protein response, a conserved stress response pathway with implications in health and disease. J Exp Biol. 2014;217(Pt 1):137-143.
- Richter K, Haslbeck M, Buchner J. The heat shock response: life on the verge of death. Mol Cell. 2010;40(2):253-266.
- Hetz C, Zhang K, Kaufman RJ. Mechanisms, regulation and functions of the unfolded protein response. Nat Rev Mol Cell Biol. 2020;21(8):421-438.
- Finkel T. Signal transduction by reactive oxygen species. J Cell Biol. 2011;194(1):7-15.
- Hu C, et al. Heat shock proteins: biological functions, pathological roles, and therapeutic opportunities. MedComm (2020). 2022;3(3):e161.
- Lithgow GJ, White TM, Hinerfeld DA, Johnson TE. Thermotolerance of a long-lived mutant of Caenorhabditis elegans. J Gerontol. 1994;49(6):B270-6.
- Krshnan L, van de Weijer ML, Carvalho P. Endoplasmic reticulum-associated protein degradation. Cold Spring Harb Perspect Biol. 2022;14(12):a041247.
- Naidoo N. ER and aging-protein folding and the ER stress response. Ageing Res Rev. 2009;8(3):150-159.
- Heifetz A, Keenan RW, Elbein AD. Mechanism of action of tunicamycin on the UDP-GlcNAc:dolichyl-phosphate Glc-NAc-1-phosphate transferase. Biochemistry. 1979;18(11):2186-2192.
- Guo Y, et al. Mitochondrial dysfunction in aging. Ageing Res Rev. 2023;88:101955.
- Murphy MP. How mitochondria produce reactive oxygen species. Biochem J. 2009;417(1):1-13.
- Xu X, Pang Y, Fan X. Mitochondria in oxidative stress, inflammation and aging: from mechanisms to therapeutic advances. Signal Transduct Target Ther. 2025;10(1):190.
- Bus JS, Gibson JE. Paraquat: model for oxidant-initiated toxicity. Environ Health Perspect. 1984;55:37-46.
- Park HH, Jung Y, Lee SV. Survival assays using Caenorhabditis elegans. Mol Cells. 2017;40(2):90-99.
- Zevian SC, Yanowitz JL. Methodological considerations for heat shock of the nematode Caenorhabditis elegans. . 2014;68(3):450-457.
- Keith SA, Amrit FR, Ratnappan R, Ghazi A. The C. elegans healthspan and stress-resistance assay toolkit. . 2014;68(3):476-486.
- Senchuk MM, Dues DJ, Van Raamsdonk JM. Measuring oxidative stress in Caenorhabditis elegans: paraquat and juglone sensitivity assays. Bio Protoc. 2017;7(1):e2086.
- Golden NL, Plagens RN, Kim Guisbert KS, Guisbert E. Standardized for measuring induction of the heat shock response in Caenorhabditis elegans. J Vis Exp. 2020;(161):e61030.
- Bar-Ziv R, et al. Measurements of physiological stress responses in C. elegans. J Vis Exp. 2020;(159):e61001.
- Rahman M, et al. NemaLife chip: a micropillar-based microfluidic culture device optimized for aging studies in crawling C. elegans. Sci Rep. 2020;10(1):16190.
- Rafikova A, Hu Q, Kubiseski TJ. The SEM-4 transcription factor is required for regulation of the oxidative stress response in Caenorhabditis elegans. G3 (Bethesda). 2020;10(9):3379-3385.
- Liang J, et al. Chloride intracellular channel proteins respond to heat stress in Caenorhabditis elegans. PLoS One. 2017;12(9):e0184308.
- Han SK, et al. OASIS 2: online application for survival analysis 2 with features for the analysis of maximal lifespan and healthspan in aging research. Oncotarget. 2016;7(35):56147-56152.
- Kitto ES, et al. The hypoxic response extends lifespan through a bioaminergic and peptidergic neural circuit. eLife. 2025;14:RP107651.
- Miller DL, Roth MB. C. elegans are protected from lethal hypoxia by an embryonic diapause. Curr Biol. 2009;19(14):1233-1237.
- Miller HA, et al. Serotonin and dopamine modulate aging in response to food odor and availability. Nat Commun. 2022;13(1):3271.
- Beydoun S, Sridhar A, Bhandari M, Kitto ES, Leiser SF. Polyethylene glycol as an improved barrier to prevent fleeing in C. elegans. MicroPubl Biol. 2024.
- Sellegounder D, et al. Octopaminergic signaling mediates neural regulation of innate immunity in Caenorhabditis elegans. mBio. 2018;9(5):e01645-18.
- Wang X, et al. Dimorphic neural network architecture prioritizes sexual-related behaviors in male Caenorhabditis elegans. eLife. 2026;14:RP102309.
- Alkema MJ, Hunter-Ensor M, Ringstad N, Horvitz HR. Tyramine functions independently of octopamine in the Caenorhabditis elegans nervous system. Neuron. 2005;46(2):247-260.
- Wang C, et al. A neurotransmitter atlas of C. elegans males and hermaphrodites. eLife. 2024;13:RP95402.
- Stroustrup N, et al. The Caenorhabditis elegans lifespan machine. Nat. 2013;10(7):665-670.
- Felker DP, Robbins CE, McCormick MA. Automation of C. elegans lifespan measurement. Transl Med Aging. 2020;4:1-10.
- Banse SA, et al. Automated lifespan determination across Caenorhabditis strains and species reveals assay-specific effects of chemical interventions. Geroscience. 2019;41(6):945-960.
Перепечатки и разрешения
Эта статья была опубликована
Видео скоро будет доступно