В данном протоколе описывается создание и валидация стабильного репортерного анализа люциферазы STAT6 в эпителиальных клетках дыхательных путей человека. Этот метод позволяет эффективно проводить скрининг компонентов загрязнения воздуха и токсикантов окружающей среды, которые модулируют активность STAT6 в контролируемых условиях in vitro.
Методическая статья
Разработка репортерного анализа STAT6 для скрининга экологических токсикантов, влияющих на аллергическое воспаление дыхательных путей
В этой статье
Краткое содержание
Аннотация
Аллергическое воспаление дыхательных путей, связанное с загрязнением воздуха, представляет собой растущую проблему общественного здравоохранения. Интерлейкин-4 (IL-4) и интерлейкин-13 (IL-13), которые активируют путь передатчика сигнала и активатора транскрипции 6 (STAT6), являющийся центральным медиатором аллергического воспаления дыхательных путей, могут модулировать респираторную токсичность загрязняющих веществ. В настоящем исследовании описывается создание и валидация стабильного люциферазного репортерного анализа STAT6 в эпителиальных клетках дыхательных путей человека для оценки экологических токсикантов, модулирующих сигнализацию STAT6. Клетки эпителия бронхов человека 16HBE14o− были трансдуцированы STAT6-зависимым люциферазным репортером с использованием лентивирусного вектора с последующей оптимизацией селекции пуромицином и множественности заражения, а также моноклональной изоляцией методом предельного разведения. Был отобран стабильный клон с сильной и воспроизводимой индукцией на протяжении нескольких пассажей. Реактивность репортера была подтверждена стимуляцией IL-4/IL-13, а зависимость от STAT6 — с помощью селективных ингибиторов STAT6, STAT5 и STAT3. Эффективность анализа была количественно определена с помощью анализа Z′-фактора, который показал воспроизводимое разделение сигналов. Кроме того, анализ был применен к отдельным компонентам загрязнения воздуха; бензо[b]флуорантен и твердые частицы значительно повышали активность репортера STAT6. Данный метод представляет собой масштабируемый подход для измерения активности STAT6 в эпителиальных клетках дыхательных путей и для приоритизации экологических токсикантов, модулирующих аллергическую сигнализацию в дыхательных путях.
Введение
Загрязнение воздуха представляет собой одну из наиболее острых глобальных проблем общественного здравоохранения, оказывая глубокое воздействие на здоровье людей и социально-экономическую ситуацию. В настоящее время оно занимает второе место среди основных факторов риска смертности, становясь причиной 8,1 миллиона смертей ежегодно1,2,3. Среди загрязнителей воздуха наибольшую опасность для здоровья представляют мелкодисперсные частицы диаметром менее 2,5 микрометра (PM2.5) благодаря их способности проникать глубоко в дыхательные пути4,5. Повышенное воздействие PM2.5 последовательно связывают с нарушением функции легких и ростом числа госпитализаций по причине респираторных заболеваний6. Распространенность аллергических воспалительных заболеваний, включая астму, аллергический ринит и атопический дерматит, растет во всем мире и непропорционально высока в сильно загрязненных мегаполисах4.
Аллергические заболевания дыхательных путей, такие как атопическая астма, опосредуются преимущественно воспалительным ответом 2-го типа, который характеризуется повышенным уровнем цитокинов интерлейкина‑4 (IL‑4) и интерлейкина‑13 (IL‑13), а также активацией сигнального пути белка-передатчика сигнала и активатора транскрипции 6 (STAT6)7. В эпителиальных клетках дыхательных путей фосфорилирование STAT6, индуцируемое IL-4 и IL-13, способствует гиперсекреции слизи и нарушению эпителиального барьера, что определяет STAT6 как центральный медиатор патологии аллергических заболеваний дыхательных путей и перспективную терапевтическую мишень8,9. Экспериментальные данные, полученные на мышиных моделях, указывают на то, что воздействие PM2.5 и диоксида серы усиливает передачу сигналов STAT6 и обостряет аллергическое воспаление дыхательных путей10,11. Однако вопрос о том, модулируют ли отдельные компоненты загрязнения воздуха непосредственно транскрипционную активность STAT6 в эпителиальных клетках дыхательных путей человека, систематически не изучался.
Загрязнение воздуха представляет собой химически сложную смесь компонентов, включая твердые микрочастицы, полициклические ароматические углеводороды (ПАУ), тяжелые металлы и неорганические соли, индивидуальный вклад которых в активацию STAT6 в дыхательных путях остается недостаточно изученным12,13. Современные методики измерения активности STAT6 в эпителиальных клетках дыхательных путей, такие как конечные анализы на фосфорилирование или репортерные системы на основе транзиентной трансфекции, не пригодны для крупномасштабного химического скрининга. Таким образом, стабильная клеточная репортерная платформа STAT6 в эпителиальных клетках дыхательных путей человека стала бы масштабируемым инструментом для идентификации соединений, содержащихся в загрязнениях воздуха, которые модулируют аллергическую сигнализацию в дыхательных путях. В данном протоколе описывается разработка и валидация стабильного люциферазного репортерного анализа STAT6 в эпителиальных клетках дыхательных путей 16HBE14o−, что позволяет проводить количественную оценку активации STAT6 для систематического скрининга образцов окружающей среды и отдельных химических токсикантов.
Протокол
Одобрение этического комитета по исследованиям с участием людей не требуется, так как в данной работе использовалась стандартная линия клеток эпителия бронхов человека 16HBE14o−.
1. Получение линии 16HBE14o− клетки со стабильной экспрессией репортера активности STAT6
ПРИМЕЧАНИЕ: На Рисунке 1 представлен общий обзор рабочего процесса.
- Культивирование клеток
ПРИМЕЧАНИЕ: Все процедуры следует проводить с соблюдением правил асептики в боксе биологической безопасности II класса. Перед использованием убедитесь, что клетки не контаминированы микоплазмой.- Поддерживайте культуру клеток 16HBE14o− в минимальной эссенциальной среде с добавлением 10% фетальной бычьей сыворотки и 1% пенициллина-стрептомицина. Инкубируйте клетки при 37 °C в увлажненной атмосфере с содержанием 5% CO2, заменяя культуральную среду через день.
- Дождитесь достижения клетками конфлюэнтности примерно 80%. Аспирируйте культуральную среду и один раз промойте монослой клеток фосфатно-солевым буферным раствором.
- Добавьте достаточное количество фосфатно-солевого буферного раствора, чтобы покрыть монослой клеток, и инкубируйте клетки в течение 20 мин при 37 °C. Полностью аспирируйте фосфатно-солевый буферный раствор.
ПРИМЕЧАНИЕ: Инкубация в фосфатно-солевом буферном растворе в течение 20 мин используется для облегчения разрушения плотных межклеточных контактов, характерных для данной клеточной линии. Данная продолжительность является оптимизированной модификацией, разработанной в нашей лаборатории. - Добавьте достаточное количество 0,25% раствора трипсина-этилендиаминтетрауксусной кислоты, чтобы покрыть монослой клеток. Инкубируйте клетки в течение 10 мин при 37 °C.
ПРИМЕЧАНИЕ: Контролируйте открепление клеток с помощью инвертированного светового микроскопа. При необходимости осторожно постукивайте по культуральному сосуду для облегчения открепления. - Для прекращения ферментативной активности добавьте примерно пять объемов полной культуральной среды по отношению к объему раствора трипсина-этилендиаминтетрауксусной кислоты. Осторожно перемешайте суспензию пипеткой для получения суспензии одиночных клеток.
- Перенесите клеточную суспензию в центрифужную пробирку объемом 15 mL. Центрифугируйте суспензию при 300 × g в течение 5 мин при 25 °C.
- Осторожно аспирируйте супернатант и ресуспендируйте клеточный осадок в свежей культуральной среде. Осторожно тритурируйте суспензию и подтвердите наличие суспензии одиночных клеток под инвертированным световым микроскопом.
- Посчитайте количество клеток с помощью гемоцитометра и доведите концентрацию клеток до плотности, необходимой для последующего эксперимента. Используйте стандартный коэффициент пересева 1:8.
ПРИМЕЧАНИЕ: См. Дополнительную таблицу 1 и Дополнительную таблицу 2 для определения площади роста культуральных сосудов и соответствующих объемов фосфатно-солевого буферного раствора и раствора трипсина-этилендиаминтетрауксусной кислоты.
- Определение цитотоксичности, индуцированной пуромицином
ПРИМЕЧАНИЕ: Выберите антибиотик в соответствии с геном резистентности, закодированным в лентивирусной конструкции.- Рассейте клетки 16HBE14o− с плотностью 2 × 10⁴ клеток на лунку в 96-луночный культуральный планшет, содержащий по 100 µL полной культуральной среды на лунку. Инкубируйте клетки в течение ночи.
- Замените культуральную среду на свежую среду, содержащую пуромицин в конечных концентрациях 0,5, 1, 2 или 4 µg/mL. Подготовьте отдельные планшеты для временных точек 24, 48 и 72 ч.
- Добавьте по 5 µL реагента для подсчета клеток в каждую лунку. Инкубируйте планшет в течение 1 ч при 37 °C.
ПРИМЕЧАНИЕ: Избегайте появления пузырьков воздуха в лунках, так как они могут помешать измерению абсорбции. - Измерьте абсорбцию при 450 nm, используя 650 nm в качестве референсной длины волны. Перед регистрацией абсорбции в конечном режиме встряхните планшет в течение 15 с.
- Рассчитайте жизнеспособность клеток14, используя уравнение 1.

где:


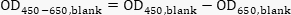
ПРИМЕЧАНИЕ: В качестве контроля используйте необработанные клетки, в качестве холостой пробы — среду без клеток, содержащую анализный реагент. Выберите минимальную концентрацию пуромицина, которая полностью уничтожает нетрансдуцированные клетки в течение 48–72 ч.
- Определение оптимальной множественности инфекции
ПРЕДОСТЕРЕЖЕНИЕ: Работа с лентивирусными частицами должна проводиться в условиях уровня биологической безопасности 2 (BSL-2) в зарегистрированном учреждении BSL-2 и в соответствии с институциональными правилами биологической безопасности. Все манипуляции с вирусом выполняйте в боксе биологической безопасности II класса. Контаминированные вирусом расходные материалы и места разливов следует обработать 10% раствором гипохлорита натрия в течение не менее 1 ч перед утилизацией в качестве биоопасных отходов.
ПРИМЕЧАНИЕ: Оптимизируйте множественность инфекции, так как она напрямую влияет на эффективность трансдукции.- Рассчитайте необходимый объем стокового раствора лентивируса15, используя уравнение 2.
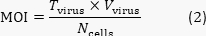
где:
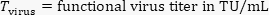

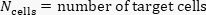
ПРИМЕЧАНИЕ: Функциональный титр стокового раствора лентивируса репортера люциферазы STAT6, использованного в данном протоколе, составлял 5 × 10⁷ трансдуцирующих единиц/mL. Для 2 × 10⁴ клеток-мишеней MOI 20 соответствует 8 µL стокового раствора лентивируса на лунку. Объем вируса следует пересчитать для вирусных препаратов с другими титрами. - Рассейте клетки 16HBE14o− с плотностью 2 × 10⁴ клеток на лунку в 96-луночный белый планшет с прозрачным дном, содержащий по 100 µL полной культуральной среды на лунку. Инкубируйте клетки в течение ночи до достижения конфлюэнтности примерно 80%.
- Замените культуральную среду на свежую среду, содержащую 5 µg/mL полибрена и лентивирус репортера люциферазы STAT6 при MOI 1, 5, 10 и 20. Включите лунку с ложным контролем (mock-control) без лентивируса.
ПРИМЕЧАНИЕ: Рассчитайте объем лентивируса, необходимый для каждого MOI, исходя из функционального титра стокового раствора. - Инкубируйте клетки с лентивирусными частицами в течение 48 ч. Замените среду для трансдукции на свежую культуральную среду и инкубируйте клетки еще 24 ч.
- Замените культуральную среду на свежую среду, содержащую интерлейкин-4 и интерлейкин-13 в концентрации по 10 ng/mL каждого. Инкубируйте клетки в течение 24 ч.
- Добавьте по 25 µL реагента для анализа люциферазы в каждую лунку16. Защитите планшет от света и инкубируйте в течение 20 мин при комнатной температуре.
- Линейно встряхните планшет в течение 20 с. Измерьте люминесценцию в конечном режиме, используя считывание всего планшета и настройку усиления (gain) 120.
ПРЕДОСТЕРЕЖЕНИЕ: Зарегистрируйте люминесценцию в течение 1 ч после добавления реагента для анализа люциферазы, чтобы зафиксировать максимальный сигнал. Соблюдайте инструкции производителя реагента по технике безопасности и обращению.
ПРИМЕЧАНИЕ: Используйте один и тот же мультимодальный микропланшетный ридер и одни и те же настройки сбора данных для всех измерений абсорбции и люминесценции.
- Рассчитайте необходимый объем стокового раствора лентивируса15, используя уравнение 2.
- Селекция трансдуцированных клеток
- Рассейте клетки 16HBE14o− с плотностью 2 × 10⁵ клеток/mL в 24-луночный культуральный планшет. Инкубируйте клетки в течение ночи.
- Замените культуральную среду на свежую среду, содержащую лентивирус репортера люциферазы STAT6 при MOI 20 и 5 µg/mL полибрена. Инкубируйте клетки в течение 48 ч.
- Замените среду для трансдукции на свежую культуральную среду. Инкубируйте клетки еще 24 ч.
- Аспирируйте культуральную среду и добавьте свежую среду, содержащую 1 µg/mL пуромицина. Инкубируйте клетки в течение 5 дней, заменяя селективную среду каждые 2 дня.
- Продолжайте селекцию пуромицином до полного уничтожения всех клеток в лунке с ложным контролем (mock-control).
ПРИМЕЧАНИЕ: Перед началом антибиотической селекции выждите не менее 24 ч после трансдукции, чтобы обеспечить экспрессию гена резистентности.
- Изоляция одноклеточных клонов методом предельного разведения
- Открепите и подсчитайте количество селектированных пуромицином клеток-репортеров STAT6. Приготовьте суспензию одиночных клеток с концентрацией 5 клеток/mL путем серийного разведения.
ПРИМЕЧАНИЕ: Предотвращайте агрегацию клеток при разведении. При необходимости пропустите суспензию через клеточный фильтр. - Разлейте по 200 µL клеточной суспензии в каждую лунку 96-луночного культурального планшета, чтобы получить среднюю плотность примерно одна клетка на лунку.
- В течение 24 ч исследуйте каждую лунку с помощью инвертированного микроскопа и выявите лунки, содержащие одну клетку. Исключите лунки, содержащие более одной клетки или несколько пространственно разделенных клеточных очагов.
- Наблюдайте за выбранными лунками в течение первой недели для подтверждения клонального роста. Заменяйте культуральную среду каждые 3 дня.
- Разращивайте каждый клон в исходном 96-луночном планшете примерно в течение 20 дней или до достижения клетками конфлюэнтности. Последовательно переносите каждый клон в 6-луночный планшет, а затем в культуральный флакон T-25.
ПРИМЕЧАНИЕ: Культивируйте клетки в 6-луночном планшете примерно 6 дней перед переносом во флакон T-25 или перенесите их при достижении соответствующей конфлюэнтности.
ТОЧКА ПРИОСТАНОВКИ: Продолжите разращивание клонов или криоконсервируйте их с плотностью 1 × 10⁶ клеток на флакон в 1 mL среды для криоконсервации, содержащей 90% фетальной бычьей сыворотки и 10% диметилсульфоксида. - Рассейте каждый разращенный клон с плотностью 2 × 10⁵ клеток/mL в 96-луночный белый планшет с прозрачным дном. Инкубируйте клетки в течение ночи.
- Замените культуральную среду на свежую среду, содержащую IL-4 и IL-13 в концентрации по 10 ng/mL каждого. Инкубируйте клетки в течение 24 ч.
- Измерьте активность люциферазы, как описано в пунктах 1.3.6–1.3.7. Сравните индуцированную активность репортера между отдельными клонами.
- Повторите анализ люциферазы при увеличении количества пассажей клеток. Выберите клоны, которые сохраняют стабильную индуцированную цитокинами активность репортера на протяжении пассажей.
ПРИМЕЧАНИЕ: Клон 3 был выбран из-за низкой базальной люминесценции и способности поддерживать стабильный сигнал активации, индуцированной цитокинами, при серийных пассажах.
- Открепите и подсчитайте количество селектированных пуромицином клеток-репортеров STAT6. Приготовьте суспензию одиночных клеток с концентрацией 5 клеток/mL путем серийного разведения.
2. Постановка и валидация репортерного анализа активности STAT6
ПРИМЕЧАНИЕ: На рисунке 2 представлен обзор рабочего процесса.
- Валидация репортерного анализа активности STAT6
- Рассейте репортерные клетки STAT6 в 96-луночный белый планшет с прозрачным дном с плотностью 2 × 10⁵ клеток/мл, используя 100 µL полной культуральной среды на лунку. Инкубируйте клетки в течение ночи.
- Замените культуральную среду на свежую среду, содержащую IL-4 и IL-13 в конечных концентрациях 10 ng/mL каждого. Одновременно добавьте селективные ингибиторы следующим образом: 100 nM AS1517499 (ингибитор STAT6), 2.5 µM AC-4-130 (ингибитор STAT5) или 2.5 µM Stattic (ингибитор STAT3).
- Включите контрольную группу с растворителем, содержащую 0.1% диметилсульфоксида (DMSO). Инкубируйте клетки в течение 24 ч.
- Определите жизнеспособность клеток с помощью анализа подсчета клеток, как описано в шагах 1.2.3–1.2.5.
- Измерьте люциферазную активность, как описано в шагах 1.3.6–1.3.7.
- Нормализуйте сигнал люминесценции каждой лунки относительно соответствующей жизнеспособности клеток. Выразите нормализованные значения относительно контрольной группы, обработанной цитокинами.
ПРИМЕЧАНИЕ: Снижение жизнеспособности клеток может привести к уменьшению сигнала люциферазы независимо от активности STAT6. Интерпретируйте активность репортера только после подтверждения приемлемой жизнеспособности клеток.
- Оценка робастности анализа
- Оцените робастность анализа путем расчета Z′-фактора, используя 21 параллельную лунку как для положительной, так и для отрицательной контрольных групп.
- Рассчитайте Z′-фактор с помощью уравнения 3.
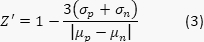
где:


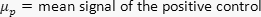

ПРИМЕЧАНИЕ: Z′-фактор в диапазоне от 0.5 до 1.0 указывает на то, что анализ подходит для высокопроизводительного скрининга.
3. Применение репортерного анализа STAT6 для скрининга экологических токсикантов
ПРЕДОСТЕРЕЖЕНИЕ: Обращайтесь с полициклическими ароматическими углеводородами и солями тяжелых металлов как с токсичными и потенциально канцерогенными материалами. Используйте соответствующие средства индивидуальной защиты, проводите все манипуляции в сертифицированном химическом вытяжном шкафу и утилизируйте загрязненные материалы в соответствии с установленными правилами учреждения по обращению с опасными отходами.
- Скрининг токсикантов окружающей среды
- Рассейте клетки-репортеры STAT6 в 96-луночный белый планшет с прозрачным дном с плотностью 2 × 10⁵ клеток/mL, используя 100 µL полной культурной среды на лунку. Инкубируйте клетки в течение ночи.
- Замените культурную среду на свежую среду, содержащую каждое исследуемое соединение в желаемой конечной концентрации (в данном протоколе 10 µM), и обработайте клетки в отсутствие IL-4 и IL-13.
- Добавьте группу отрицательного контроля, содержащую 0.1% диметилсульфоксида, и группу положительного контроля, содержащую IL-4 и IL-13 в концентрации 10 ng/mL каждого. Инкубируйте клетки в течение 24 h.
- Определите жизнеспособность клеток с помощью анализа подсчета клеток, как описано в этапах 1.2.3–1.2.5.
- Измерьте люциферазную активность, как описано в этапах 1.3.6–1.3.7.
- Нормализуйте сигнал люминесценции в каждой лунке относительно соответствующего значения жизнеспособности клеток. Выразите нормализованный результат относительно группы отрицательного контроля.
- Исключите из интерпретации активности репортера STAT6 соединения, которые снижают жизнеспособность клеток ниже 80%.
ПРИМЕЧАНИЕ: Рассматривайте сигналы репортера, полученные в условиях цитотоксичности, как недостоверные, поскольку снижение жизнеспособности клеток может изменять люминесценцию независимо от активности пути STAT6.
Результаты
Для определения оптимальной концентрации пуромицина для стабильного селектирования родительские клетки 16HBE14o− подвергали воздействию возрастающих концентраций пуромицина (0,5–4 µg/mL), и жизнеспособность клеток оценивали через 24, 48 и 72 h с помощью теста на жизнеспособность клеток. Пуромицин снижал жизнеспособность клеток дозо- и времязависимым образом, причем при всех концентрациях жизнеспособность снижалась до уровня менее 20% через 48–72 h (Рисунок 3). Концентрация 1 µg/mL была минимальной концентрацией, которая полностью элиминировала нетрансдуцированные клетки, снижая остаточный сигнал жизнеспособности примерно до 4,5% в течение 48 h (p < 0,0001). Увеличение концентрации пуромицина не приводило к дополнительному снижению жизнеспособности клеток. Таким образом, для последующего селектирования трансдуцированных клеток была выбрана концентрация пуромицина 1 µg/mL.
Для оптимизации эффективности лентивирусной трансдукции клетки 16HBE14o− трансдуцировали лентивирусом с люциферазным репортером STAT6 с кратностью заражения (MOI) 1, 5, 10 и 20 в течение 48 ч, после чего стимулировали IL-4 и IL-13 (по 10 ng/mL каждого) в течение 24 ч для активации сигналинга STAT6. Как показано на рисунке 4, относительные единицы люминесценции (RLU) увеличивались зависимо от MOI. При MOI 20 наблюдалась наибольшая индукция репортера, что привело к примерно 50-кратному увеличению люминесценции по сравнению с нестимулированным контролем (p < 0.0001). На основании этих результатов для последующих экспериментов было выбрано значение MOI 20.
После трансдукции и селекции пуромицином в оптимизированных условиях в нетрансдуцированных клетках наблюдалась массовая гибель, в то время как трансдуцированные клетки сохранили нормальную морфологию и жизнеспособность (Рисунок 5). Выжившие клетки впоследствии подвергли предельному разведению для создания моноклональных репортерных клеточных линий STAT6.
Три моноклональные репортерные клеточные линии, полученные из отдельных клеток, были оценены на предмет репортерной активности STAT6. Все клоны продемонстрировали низкую базальную люминесценцию (<1 000 RLU). Стимуляция IL-4 и IL-13 индуцировала выраженную репортерную активность в клонах 2 и 3, при этом люминесценция превышала 20 000 RLU, что соответствовало более чем 20-кратному усилению (Рисунок 6A). Клон 3 продемонстрировал самую низкую базальную люминесценцию и, следовательно, был выбран для дальнейшей характеристики. Репортерная активность в клоне 3 оценивалась на протяжении последовательных пассажей (P9–P21) для анализа долгосрочной стабильности. Как показано на Рисунке 6B, STAT6-зависимая индукция репортера оставалась стабильной в течение всего оцениваемого диапазона пассажей. Клон считался подходящим для последующих экспериментов, если он демонстрировал нормальную скорость роста, базальную люминесценцию ниже примерно 1 000 RLU и более чем 20-кратную индукцию после стимуляции цитокинами.
Поскольку IL-4 и IL-13 могут активировать дополнительные члены семейства STAT, включая STAT3 и STAT5, была проведена дополнительная оценка специфичности репортерного анализа17,18. Репортерные клетки STAT6 стимулировали IL-4 и IL-13 в присутствии или отсутствие селективных ингибиторов, нацеленных на STAT6, STAT5 или STAT3, в течение 24 ч19,20,21. Жизнеспособность клеток оставалась выше 90% при всех условиях обработки (ингибитор STAT6 AS1517499, 100 nM: 98,4%; ингибитор STAT5 AC-4-130, 2.5 µM: 97,4%; ингибитор STAT3 Stattic, 2.5 µM: 96,2%; Рисунок 7A). Ингибирование STAT6 заметно снизило активность люциферазы (p < 0,0001), тогда как ингибирование STAT5 или STAT3 не оказало значимого влияния на активность репортера (p = 0,2593 и p = 0,8857 соответственно; Рисунок 7B). Эти результаты подтвердили, что активация репортера была преимущественно зависима от STAT6.
Робастность анализа оценивали путем расчета Z′-фактора, используя клетки, стимулированные IL-4 и IL-13, в качестве контроля с высоким сигналом, и клетки, обработанные ингибитором STAT6, в качестве контроля с низким сигналом. Z′-фактор анализа составил 0,703 ± 0,097, что свидетельствует об отличных рабочих характеристиках анализа, широком окне сигнала и пригодности метода для высокопроизводительного скрининга.
Наконец, репортерный анализ STAT6 был применен для скрининга отдельных компонентов твердых частиц окружающей среды на предмет их способности модулировать сигналинг STAT6. После 24 ч воздействия бензо[b]флуорантен (10 µM) значительно увеличил активность репортера STAT6 примерно в 1,75 раза (p = 0,0006), в то время как твердые частицы (100 µg/mL) увеличили активность репортера примерно в 1,5 раза (p = 0,0398; Рисунок 8). Напротив, остальные полициклические ароматические углеводороды и соединения тяжелых металлов, включая CdCl2, HgCl2 и NiSO4 (по 10 µM каждого), не оказали значительного влияния на активность репортера. В совокупности эти результаты демонстрируют, что репортерный анализ STAT6 является стабильным, специфичным, надежным и подходящим для высокопроизводительного скрининга соединений окружающей среды, модулирующих сигналинг STAT6.
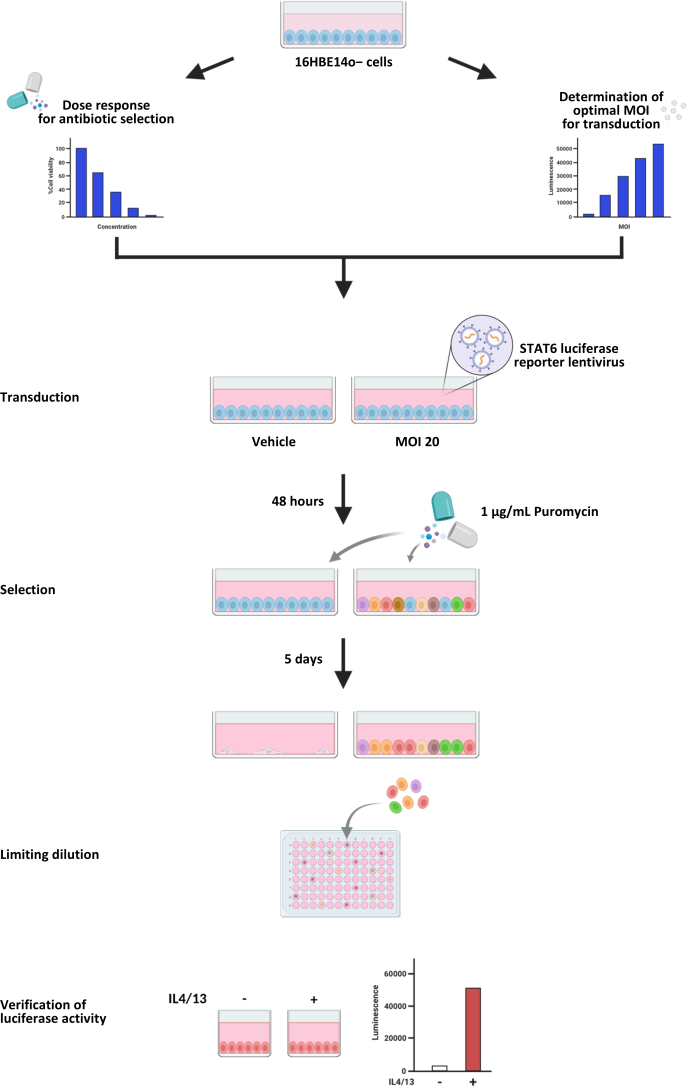
Рисунок 1: Схема создания репортерных клеток 16HBE14o− STAT6. Схематический обзор протокола создания клеток 16HBE14o−, стабильно экспрессирующих люциферазный репортер STAT6. Нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
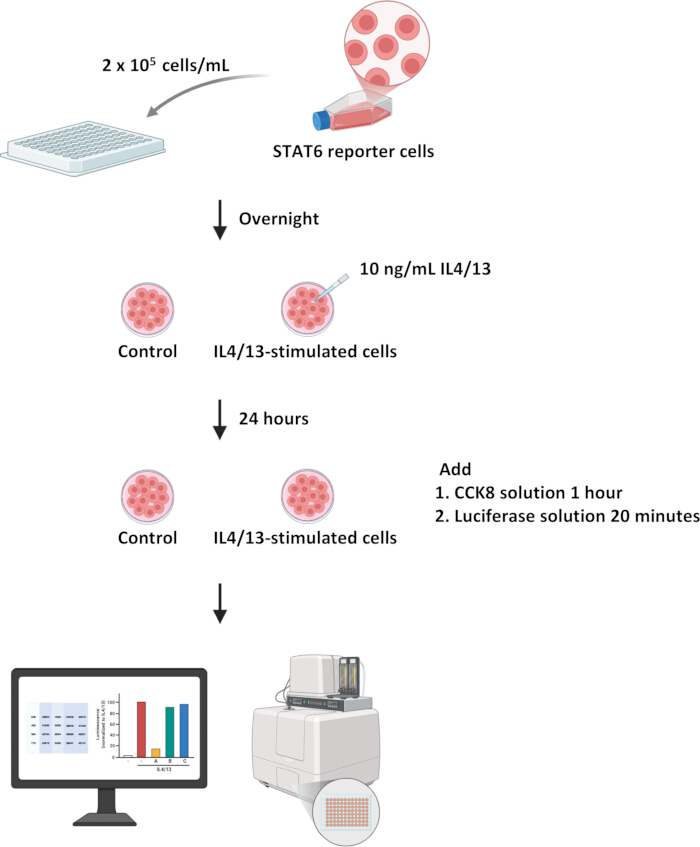
Рисунок 2: Рабочий процесс постановки и применения репортерного анализа STAT6. Схематический обзор репортерного анализа STAT6 для валидации метода и скрининга токсикантов окружающей среды. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
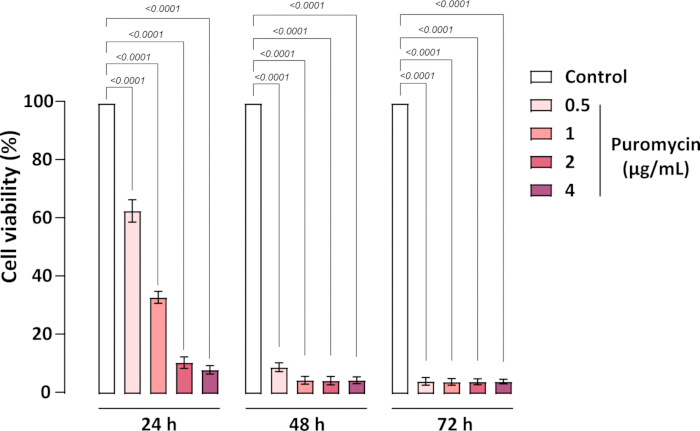
Рисунок 3: Определение оптимальной концентрации пуромицина для селекции стабильных клеток. 親клетку 16HBE14o− обрабатывали пуромицином (0,5, 1, 2 или 4 µg/mL) в течение 24, 48 или 72 ч. Клетки контрольной группы получали 0,1% диметилсульфоксида (DMSO). Жизнеспособность клеток определяли с помощью теста на жизнеспособность клеток. Жизнеспособность клеток рассчитывали на основе разности оптической плотности при 450 и 650 nm после вычитания фона и нормализации относительно контрольной группы. Данные представлены как среднее значение ± SD по трем независимым биологическим повторностям с техническими дубликатами (n = 3). Статистическую значимость определяли с помощью однофакторного ANOVA с последующим множественным сравнением по тесту Даннетта. Указаны значения p для сравнений с контрольной группой. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
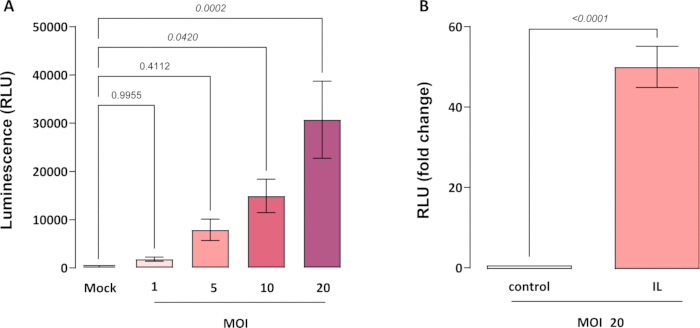
Рисунок 4: Оптимизация эффективности лентивирусной трансдукции. Клетки 16HBE14o− трансдуцировали лентивирусом с люциферазным репортером STAT6 с множественностью заражения (MOI), равной 1, 5, 10 или 20, в течение 48 ч. После 24-часового периода восстановления клетки стимулировали IL-4 и IL-13 (по 10 ng/mL каждого) в течение 24 ч. (A) Относительные единицы люминесценции (RLU) в контрольных клетках (mock-трансдукция) и клетках, трансдуцированных репортером при указанных MOI. Статистический анализ проводили с помощью однофакторного ANOVA с последующим тестом множественных сравнений Даннетта. (B) Кратность индукции после стимуляции цитокинами относительно нестимулированного контроля при MOI 20. Статистический анализ проводили с помощью unpaired Student's t-test. Данные представлены как среднее ± SD по трем независимым биологическим повторам (n = 3). Указаны p-значения. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
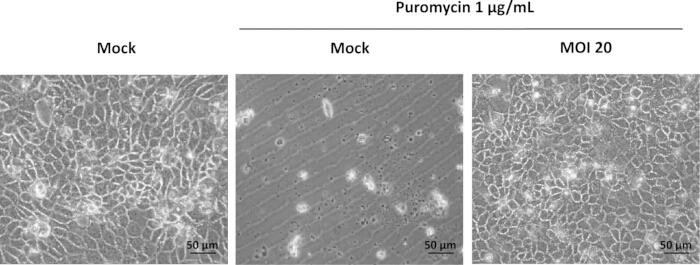
Рисунок 5: Репрезентативные изображения клеток после селекции пуромицином. Клетки 16HBE14o− трансдуцировали или не трансдуцировали лентивирусом с репортером люциферазы STAT6 (MOI = 20), после чего обрабатывали 1 µg/mL пуромицина в течение 5 дней. Изображения были получены с помощью фазово-контрастного инвертированного микроскопа при увеличении 100× в идентичных условиях съемки. Необработанные родительские клетки образовали нормальный эпителиальный монослой (слева). Нетрансдуцированные клетки, обработанные пуромицином, продемонстрировали массовую гибель и открепление клеток (в центре), в то время как трансдуцированные клетки, прошедшие селекцию пуромицином, остались жизнеспособными и сохранили нормальную морфологию (справа). Масштабная линейка = 50 µm. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
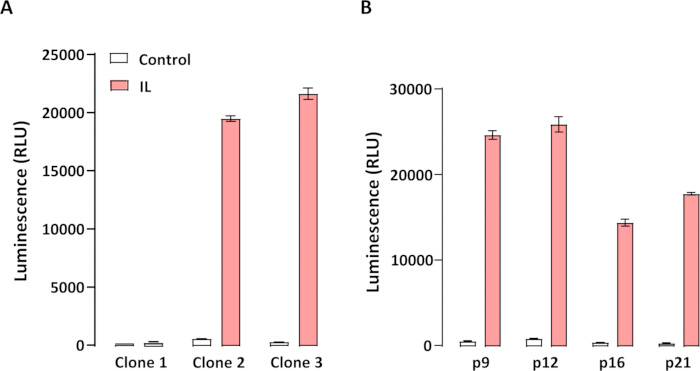
Рисунок 6: Идентификация клонов с репортером STAT6 и оценка стабильности репортера. После лимитирующего разведения три моноклональные клеточные линии с репортером STAT6 были экспансированы и стимулированы IL-4 и IL-13 (по 10 ng/mL каждого) в течение 24 ч. (A) Люциферазная активность отдельных репортерных клонов после стимуляции цитокинами по сравнению с нестимулированными контролями. (B) Стабильность активности репортера STAT6 в клоне 3 в ходе последовательных пассажей (P9–P21). Данные представлены как среднее значение ± SD по техническим дубликатам. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
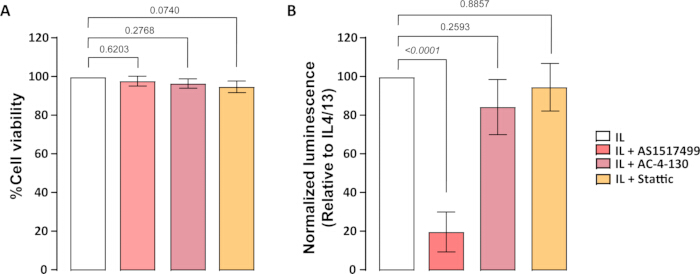
Рисунок 7: Селективное ингибирование активности репортера STAT6 без влияния на жизнеспособность клеток. Репортерные клетки STAT6 стимулировали IL-4 и IL-13 (по 10 ng/mL каждого) в течение 24 ч в присутствии ингибитора STAT6 AS1517499 (100 nM), ингибитора STAT5 AC-4-130 (2.5 µM) или ингибитора STAT3 Stattic (2.5 µM). Группа контроля с носителем, стимулированная цитокинами, получала 0.1% DMSO. (A) Жизнеспособность клеток определяли с помощью анализа жизнеспособности клеток. (B) STAT6-зависимая люциферазная активность, нормализованная по контролю, стимулированному цитокинами. Данные представлены как среднее ± SD по трем независимым биологическим повторностям (n = 3). Указаны значения p. Нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
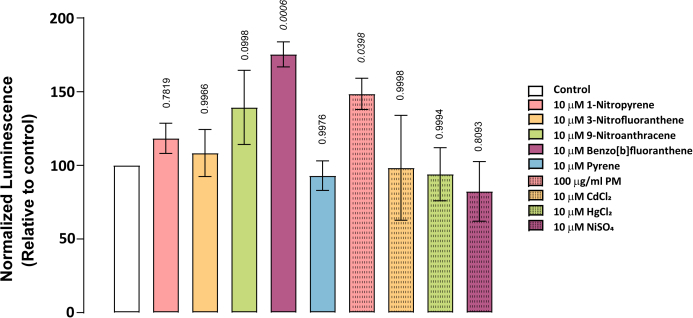
Рисунок 8: Оценка модулирующих эффектов STAT6 под воздействием токсикантов окружающей среды. Репортерные клетки STAT6 подвергали воздействию в течение 24 ч твердых частиц (100 µg/mL) или указанных токсикантов окружающей среды, включая полициклические ароматические углеводороды (ПАУ) и тяжелые металлы (по 10 µM каждого). Люциферазную активность, зависимую от STAT6, нормализовали относительно контроля с растворителем (0.1% DMSO). Данные представлены как среднее значение ± SD по трем независимым биологическим повторам (n = 3). Статистическая значимость определялась путем сравнения с контролем с растворителем; указаны значения p. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
Дополнительная таблица 1: Характеристики культуральных сосудов и параметры пассирования для культуры клеток 16HBE14o−.Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительная таблица 2: Сравнение методов измерения активности STAT6.Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Обсуждение
Сигнальный путь IL-4/IL-13–JAK–STAT6 является не только важной терапевтической мишенью, но и ключевым фактором патогенеза аллергических заболеваний, включая астму и аллергический ринит22. В данном протоколе описан простой и стабильный репортерный анализ на основе клеточной линии для идентификации модуляторов активности STAT6. Этот анализ может быть использован для оценки модулирующего воздействия на STAT6 широкого спектра соединений окружающей среды и легко адаптируется для высокопроизводительного скрининга, что продемонстрировано в исследовании по проверке концепции скрининга (Рисунок 8). Благодаря сочетанию люциферазного репортера с параллельным анализом жизнеспособности клеток данный метод позволяет проводить количественную оценку модуляции пути STAT6, сводя к минимуму искажающие эффекты, вызванные цитотоксичностью соединений.
Отличительной особенностью данного метода является использование стабильно трансдуцированных клеток эпителия бронхов человека 16HBE14o−, которые представляют собой физиологически релевантный тип клеток, в которых сигналинг IL-4/IL-13, индуцированный загрязняющими веществами, способствует развитию аллергического воспаления дыхательных путей. Существующие подходы к измерению активности STAT6 имеют серьезные практические ограничения. Детекция фосфорилирования STAT6 или белков-мишеней ниже по каскаду с помощью вестерн-блоттинга или иммуноферментного анализа (ELISA) является трудоемким процессом и обладает относительно низкой пропускной способностью. Репортерные анализы с люциферазой на основе транзиентной трансфекции позволяют напрямую измерять транскрипционную активность STAT6, однако на них влияют вариабельность эффективности трансфекции, различия между партиями клеток и необходимость повторять трансфекцию для каждого эксперимента, что снижает воспроизводимость и пропускную способность.
Стабильная репортерная клеточная линия, описанная в данном исследовании, позволяет преодолеть многие из этих ограничений. Поскольку репортерная конструкция интегрирована в геном и подверглась клональному отбору, экспрессия репортера остается единообразной во всей популяции клеток и воспроизводимой при пассировании, что исключает вариабельность, связанную с транзиентной трансфекцией. Люминесцентный сигнал измеряется в живых клетках и может быть нормализован по параллельному измерению жизнеспособности клеток для исключения цитотоксических артефактов. Кроме того, метод легко адаптируется к 96-луночному формату для приложений со средней и высокой пропускной способностью. Анализ показал Z′-фактор 0,703, что свидетельствует об отличном разделении между контролями с высоким и низким уровнем сигнала и подтверждает пригодность метода для высокопроизводительного скрининга. Сравнение общепринятых подходов к измерению активности STAT6 приведено в Дополнительной таблице 2. Тем не менее, поскольку данный анализ регистрирует активацию STAT6-зависимого промотора, а не экспрессию эндогенных генов-мишеней, важным остается ортогональное подтверждение с использованием нижестоящих мишеней STAT6, таких как MUC5AC и CCL26.
Для успешного создания и применения репортерного анализа STAT6 критически важны несколько этапов. Оптимизация множественности заражения (MOI) лентивирусом имеет принципиальное значение, так как недостаточный титр вируса снижает эффективность трансдукции, в то время как избыточное воздействие вируса может вызвать клеточный стресс и нарушить жизнеспособность клеток. Аналогичным образом, требуется оптимизация концентрации пуромицина для селекции, чтобы элиминировать нетрансдуцированные клетки, сохранив при этом жизнеспособность резистентных репортерных клеток. Поскольку чувствительность к лентивирусной трансдукции и антибиотической селекции различается в зависимости от типа клеток, оба параметра следует оптимизировать эмпирически перед созданием стабильных репортерных клеточных линий. Клеточная линия 16HBE14o− представляет собой иммортализованную линию эпителиальных клеток бронхов человека, которая широко используется для исследования воспаления дыхательных путей, поскольку она формирует функциональные плотные контакты и вырабатывает слизь8,23. Клетки, выбранные для создания репортерной линии, должны экспрессировать функциональные рецепторы IL-4 и IL-13 и сохранять интактный нижестоящий сигнальный путь JAK–STAT24. Перед созданием стабильных репортерных линий репортерную конструкцию следует валидировать, подтвердив ответ на стимуляцию цитокинами, подавление специфическими ингибиторами пути и отсутствие цитотоксических эффектов в выбранных условиях анализа. Эти этапы валидации помогают гарантировать, что изменения активности репортера точно отражают STAT6-зависимую сигнализацию, а не неспецифический клеточный стресс.
Следует также учитывать несколько ограничений данного метода. Лентивирусные векторы интегрируются в геном хозяина случайным образом, что может привести к вариабельности базальной активности репортера, индуцибельности и стабильности экспрессии между разными клонами. Кроме того, поскольку данный анализ измеряет активацию STAT6-зависимого промотора, он не позволяет напрямую оценить активацию вышележащих рецепторов или нижележащие события эндогенного сигналинга. Длительное культивирование стабильных репортерных клеток также может привести к эпигенетическому сайленсингу или снижению экспрессии трансгена. Чтобы минимизировать эти эффекты, следует создать мастер-банки клеток на ранних пассажах, а чувствительность репортера необходимо периодически проверять в определенном диапазоне пассажей. Более того, данный анализ еще не был валидирован на первичных эпителиальных клетках дыхательных путей человека или на полностью автоматизированной платформе для высокопроизводительного скрининга. Наконец, токсиканты окружающей среды, оцениваемые в данном исследовании, представляют собой панель для подтверждения концепции, а не всеобъемлющую библиотеку химических соединений.
Загрязнение воздуха, в частности мелкодисперсными частицами (PM2.5), представляет собой сложную смесь химически и физически разнообразных компонентов, включая сажу, неорганические соли, полициклические ароматические углеводороды и тяжелые металлы12,13. Вариации в источниках выбросов и атмосферных процессах приводят к существенным различиям в составе твердых частиц, что может способствовать возникновению различных неблагоприятных последствий для здоровья. Следовательно, идентификация конкретных компонентов, ответственных за аллергические реакции, остается сложной задачей в эпидемиологических исследованиях и исследованиях in vivo. Репортерный анализ STAT6, описанный в данной работе, представляет собой практическую платформу in vitro для скрининга модулирующей активности STAT6 отдельных переносимых по воздуху токсикантов, экстрактов твердых частиц из конкретных источников или химически определенных фракций частиц. Данный протокол может способствовать приоритизации потенциальных токсикантов для механистических исследований и поддержать ориентированную на риск оценку сложных смесей загрязняющих веществ в воздухе.
Раскрытие информации
Авторы заявляют об отсутствии конфликта интересов.
Благодарности
Данная работа была поддержана Национальным исследовательским советом Таиланда (NRCT) (грант № N42A680388), и этот исследовательский проект поддерживается Университетом Махидол (Стратегический исследовательский фонд: 2025) (грант № 35). Рисунки 1 и 2 были созданы с помощью BioRender.com (Pothipan, P. (2026). https://BioRender.com/h44gy3h).
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| 0.25% Trypsin-EDTA | Gibco | 25200072 | Реагент для диссоциации клеток |
| Коническая центрифужная пробирка 15 mL | Corning | CLS430791 | Стерильная полипропиленовая центрифужная пробирка |
| 16HBE14o- линия эпителиальных клеток бронхов человека | Подарено Dr. Nawiya Huipao (Prince of Songkla University, Thailand) и Prof. Dr. Dieter C. Gruenert (University of California San Francisco, USA) | RRID:CVCL_0112 | Линия эпителиальных клеток бронхов человека (пассажи 35–40); подтверждено отсутствие микоплазмы, сохранена дифференцированная морфология и барьерные свойства эпителия дыхательных путей. Ссылка: Cozens AL, et al. Am J Respir Cell Mol Biol. 1994;10(1):38–47. |
| 24-луночный прозрачный планшет с плоским дном для культивирования тканей | Corning | 3527 | Планшет для культивирования клеток |
| 6-луночный прозрачный планшет с плоским дном для культивирования тканей | Corning | 3516 | Планшет для культивирования клеток |
| 96-луночный прозрачный полистирольный микропланшет с плоским дном для культивирования тканей | Corning | 3599 | Планшет для анализа жизнеспособности клеток |
| 96-луночный белый полистирольный микропланшет с прозрачным дном для культивирования тканей | Corning | 3610 | Планшет для люминесцентного анализа |
| AC-4-130 (ингибитор STAT5) | MedChemExpress | HY-124500 | Селективный ингибитор STAT5 |
| AS1517499 (ингибитор STAT6) | MedChemExpress | HY-100614 | Селективный ингибитор STAT6 |
| Бензо[b]флуорантен | AccuStandard | H-128N | Полициклический ароматический углеводород |
| Шкаф биологической безопасности, класс II | Nuaire | NU-543-400E | Для проведения асептических процедур культивирования клеток |
| Хлорид кадмия (CdCl2) | Sigma | 202908 | Соединение тяжелого металла |
| Набор для подсчета клеток-8 (CCK-8) | MedChemExpress | HY-K0301 | Анализ жизнеспособности клеток |
| Флакон для культивирования клеток, 25 cm² (T-25) | Corning | 430639 | Флакон для культивирования тканей |
| CO2-инкубатор | Nuaire | NU-5710E | Поддерживаемые условия: 37 °C, 5% CO2, увлажненная атмосфера |
| Диметилсульфоксид (DMSO) | Sigma | D2650 | Растворитель (конечная концентрация 0.1%) и криопротектор (10%) |
| Фетальная бычья сыворотка (FBS) | Sigma | F7524 | Добавка к среде (10%) и среда для криоконсервации (10%) |
| Гемоцитометр | BOECO | BOE14 | Ручной подсчет клеток |
| Инвертированный фазово-контрастный световой микроскоп | ZEISS | Primovert | Наблюдение за морфологией клеток |
| Система анализа люциферазы (ONE-Step) | BPS Bioscience | 60690 | Репортерный анализ люциферазы |
| Хлорид ртути (HgCl2) | Sigma | 215465 | Соединение тяжелого металла |
| Ридер для микропланшетов | BioTek | Synergy Neo2 | Мультимодовый планшетный ридер/люминометр под управлением ПО Gen5 (v3.08.01). Измерение абсорбции при 450 nm с референсом 650 nm после 15–20 с линейного встряхивания. Измерение люминесценции в режиме конечной точки с усилением детектора 120 после 20 с линейного встряхивания. |
| Минимальная эфирная среда Игла (MEM) | Gibco | 11095-080 | Базальная среда для культивирования |
| Сульфат никеля (NiSO4) | Tokyo Chemical Industry | N1203 | Соединение тяжелого металла |
| Взвешенные частицы (PM) | National Institute of Standards and Technology | SRM 2975 | Стандартный образец взвешенных частиц |
| Пенициллин-стрептомицин (100×) | Gibco | 15140122 | Добавка антибиотиков (конечная концентрация 1%) |
| Фосфатно-солевой буфер (PBS) | Gibco | 18912014 | Промывочный буфер |
| Полибрен | Sigma | TR-1003-G | Усилитель лентивирусной трансдукции |
| Пуромицин | MedChemExpress | HY-B1743A | Антибиотик для селекции стабильных клеточных линий |
| Рекомбинантный IL-13 человека | Thermo Fisher Scientific | A42526 | Цитокин для стимуляции |
| Рекомбинантный IL-4 человека | Thermo Fisher Scientific | A42602 | Цитокин для стимуляции |
| Лентивирусный репортер STAT6-люцифераза | BPS Bioscience | 78799 | Лентивирусная репортерная конструкция; титр стока 5 × 10⁷ TU/mL |
| Stattic (ингибитор STAT3) | MedChemExpress | HY-13818 | Селективный ингибитор STAT3 |
Ссылки
- Organisation for Economic Co-operation and Development. The Economic Consequences of Outdoor Air Pollution. OECD Publishing; Paris; 2016.
- Thailand Pollution Control Department. Air Quality Assessments for Health and Environment Policies in Thailand. Thailand Pollution Control Department; Bangkok; 2018.
- Health Effects Institute. State of Global Air Report 2024. Available at: https://www.stateofglobalair.org/resources/report/state-global-air-report-2024
- State of Global Air. Trends in Air Quality and Health Impacts: Insights from Central, South, and Southeast Asia. 2025. Available at: https://www.stateofglobalair.org/
- Shi X. Acute effects of air pollution on human health in China: Evidence and prospects. China CDC Wkly. 2021;3(45):941-942.
- Tsai YG, et al. Long-term PM2.5 exposure impairs lung growth and increases airway inflammation in Taiwanese school children. ERJ Open Res. 2025;11(4).
- Walford HH, Doherty TA. STAT6 and lung inflammation. JAKSTAT. 2013;2(4):e25301.
- Moonwiriyakit A, et al. GPR120/FFAR4 stimulation attenuates airway remodeling and suppresses IL-4- and IL-13-induced airway epithelial injury via inhibition of STAT6 and Akt. Biomed Pharmacother. 2023;168:115774.
- Pelaia C, et al. Biological therapy of severe asthma with dupilumab, a dual receptor antagonist of interleukins 4 and 13. Vaccines (Basel). 2022;10(6).
- Yang Y, et al. Continuous exposure to PM2.5 exacerbates ovalbumin-induced asthma in mouse lung via the JAK-STAT6 signaling pathway. Adv Clin Exp Med. 2020;29(7):825-832.
- Li X, Huang L, Wang N, Yi H, Wang H. Sulfur dioxide exposure enhances Th2 inflammatory responses via activation of the STAT6 pathway in asthmatic mice. Toxicol Lett. 2018;285:43-50.
- Reiss R, et al. Evidence of health impacts of sulfate- and nitrate-containing particles in ambient air. Inhal Toxicol. 2007;19(5):419-449.
- Li R, et al. Key toxic components and sources affecting oxidative potential of atmospheric particulate matter using interpretable machine learning: Insights from fog episodes. J Hazard Mater. 2024;465:133175.
- Posimo JM, et al. Viability assays for cells in culture. J Vis Exp. 2014;(83):e50645.
- Baumlin-Schmid N, Salathe M, Fregien NL. Optimal lentivirus production and cell culture conditions necessary to successfully transduce primary human bronchial epithelial cells. J Vis Exp. 2016;(113).
- Nozeret K, Pernin A, Buddelmeijer N. Click-chemistry based fluorometric assay for apolipoprotein N-acyltransferase from enzyme characterization to high-throughput screening. J Vis Exp. 2020;(159).
- Rolling C, Treton D, Pellegrini S, Galanaud P, Richard Y. IL-4 and IL-13 receptors share the γc chain and activate STAT6, STAT3, and STAT5 proteins in normal human B cells. FEBS Lett. 1996;393(1):53-56.
- Deimel LP, Li Z, Roy S, Ranasinghe C. STAT3 determines IL-4 signalling outcomes in naïve T cells. Sci Rep. 2021;11(1):10495.
- Wingelhofer B, et al. Pharmacologic inhibition of STAT5 in acute myeloid leukemia. Leukemia. 2018;32(5):1135-1146.
- McMurray JS. A new small-molecule STAT3 inhibitor. Chem Biol. 2006;13(11):1123-1124.
- Chiba Y, Todoroki M, Nishida Y, Tanabe M, Misawa M. A novel STAT6 inhibitor, AS1517499, ameliorates antigen-induced bronchial hypercontractility in mice. Am J Respir Cell Mol Biol. 2009;41(5):516-524.
- Zhang X, et al. The immunogenetic landscape of allergic rhinitis: From cellular effectors to gene regulation and targeted therapies. Int J Biol Sci. 2026;22(3):1322-1345.
- Yu H, Li Q, Kolosov VP, Perelman JM, Zhou X. Interleukin-13 induces mucin 5AC production involving STAT6/SPDEF in human airway epithelial cells. Cell Commun Adhes. 2010;17(4-6):83-92.
- White SR, Martin LD, Stern R, Laxman B, Marroquin BA. Expression of IL-4/IL-13 receptors in differentiating human airway epithelial cells. Am J Physiol Lung Cell Mol Physiol. 2010;299(5):L681-L693.
Перепечатки и разрешения
Эта статья была опубликована
Видео скоро будет доступно