Описаны два подхода к бесконтактному совместному культивированию для качественной и количественной оценки морфологических реакций грибов при межвидовых взаимодействиях. В протоколе на примере межвидового анализа Candida демонстрируется влияние внутренних факторов на рост гиф. Эти методы могут быть легко адаптированы для исследования межвидовой коммуникации микроорганизмов у различных организмов.
Методическая статья
Методы бесконтактного совместного культивирования для морфометрических исследований межвидовых взаимодействий грибов
В этой статье
Краткое содержание
Аннотация
Поведение и морфология клеток в микробном сообществе обычно находятся под влиянием различных внутри- и внеклеточных факторов. Существующие подходы к изучению микробной коммуникации могут быть трудоемкими и/или требовать специализированного оборудования и экспертных знаний. В данной работе описаны два взаимодополняющих бесконтактных метода совместного культивирования — анализ в многолуночном планшете с мембранными вставками и анализ на основе бесклеточного супернатанта (CFS). Оба метода основаны на морфологическом переходе как измеряемом ответе для исследования роли различных факторов в конкретном межвидовом взаимодействии. Система с мембранными вставками в многолуночном планшете обеспечивает диффузию внеклеточных молекул, позволяя осуществлять взаимодействие между физически разделенными видами в режиме реального времени. Для сравнения, анализ на основе CFS представляет собой упрощенный масштабируемый подход для оценки ответов на кондиционированные среды. Представленный протокол включает стандартизированные процедуры подготовки культур, получения кондиционированных супернатантов, постановки анализа, микроскопии, получения изображений, количественного морфометрического анализа с использованием Fiji и статистической обработки. Эффективность данных методов продемонстрирована на примере морфологического ответа грибов на внутренние и внешние факторы. Описанные методы предлагают доступные и адаптируемые альтернативные инструменты для изучения новых микробных взаимодействий в сообществе и могут быть легко расширены для исследования механизмов, лежащих в основе многовидового сосуществования в сообществе.
Введение
В природных и клинических экосистемах микроорганизмы обычно обитают в составе структурированных полимикробных сообществ, регулируемых сложными сетями внутривидовой и межвидовой коммуникации1. Эти консорциумы используют разнообразные химические сигналы, включая молекулы чувства кворума, летучие органические соединения, секреторные пептиды и белки, для координации поведения на популяционном уровне2. Картирование этой динамики коммуникаций имеет решающее значение, поскольку кооперативные, конкурентные или хищнические взаимодействия в экологической нише значительно изменяют метаболизм микробов, пространственную архитектуру и адаптацию к стрессу3. В клинической практике такие полимикробные сети (например, двухвидовые бактериально-грибковые или межвидовые грибковые консорциумы) часто демонстрируют синергическую вирулентность, ускоренную колонизацию тканей и повышенную антимикробную резистентность по сравнению с монокультурами4,5. Таким образом, расшифровка молекулярных детерминант микробной коммуникации жизненно важна для выхода за рамки традиционных моделей и разработки инновационных противоинфекционных стратегий, направленных на нарушение стабильности сообщества6.
Для анализа различных механизмов микробного взаимодействия исследователи используют разнообразные экспериментальные конфигурации, которые в основном применяются в биологии клеток млекопитающих, иммунологии и онкологии7,8,9. Например, модели кокультивирования с прямым контактом служат стандартом для исследования юxtакринной сигнализации и физического межклеточного взаимодействия10. Аналогичные схемы с модификациями также используются для изучения физических взаимодействий между микробами, анализа перекрестного микробного ингибирования или ответа на препараты9,11,12. Однако бывает трудно определить лежащие в основе механизмы, поскольку в наблюдаемый ответ вносят вклад как контактно-зависимые, так и диффузные сигналы. Хотя традиционные анализы, основанные на контакте, могут дать представление о пространственной организации, они трудоемки и/или требуют специфического маркирования штаммов, что может быть затруднительно для немодельных организмов. Напротив, анализы с использованием Transwell (многолуночных планшетов с мембранными вставками), в основном в исследованиях на млекопитающих, применяются для разграничения вклада контактно-зависимых и диффузных сигналов13,14,15,16. Этот метод особенно полезен, когда клеточная коммуникация опосредована секретируемыми молекулами, что позволяет в режиме реального времени анализировать динамику сигнализации между популяциями клеток17. Кроме того, бесконтактные анализы обеспечивают преимущество мембранного разделения, что также позволяет интегрировать эксперименты с вычислительными моделями для динамического отслеживания микробов, которые упускаются при традиционных методах18. Этот подход иногда используется для одновременного изучения кинетики развития различных видов бактерий19.
Более дешевой высокопроизводительной альтернативой анализу с использованием многолуночных планшетов с мембранными вставками является анализ на основе бесклеточного супернатанта (CFS) или кондиционированной среды. Известно, что этот метод применяется в регенеративной медицине и биологии сосудов для выделения секретомов, необходимых для понимания механизмов восстановления тканей стволовыми клетками и/или опухолевого ангиогенеза20. Аналогично, в микробиологических исследованиях системы на основе CFS оказались полезными для расшифровки полимикробной конкуренции. Например, бактериальные фильтраты (такие как Pseudomonas aeruginosa ацил-гомосеринлактоны или Lactobacillus метаболиты) использовались для модуляции созревания грибковых биопленок21,22. В последнее время микрофлюидные платформы позволили достичь высокой точности физиологического биомиметизма благодаря технологиям «орган-на-чипе»23,24. Хотя микрофлюидные системы были внедрены для одновременного детектирования ответа микробного сообщества на собственные секретомы, они требуют специализированного оборудования и знаний и могут быть трудноприменимы в некоторых условиях25,26,27. Таким образом, анализ с использованием многолуночных планшетов с мембранными вставками и анализ на основе CFS остаются предпочтительными методами в большинстве случаев. Выбор между этими двумя анализами зависит от природы секреторной молекулы. Если секреторная молекула нестабильна (т. е. имеет короткий период полураспада) и требуется измерение активности в реальном времени, более подходящим является анализ с использованием многолуночных планшетов с мембранными вставками. С другой стороны, если секреторная молекула стабильна, а эксперимент проводится в крупном масштабе, анализ на основе CFS будет более экономичным.
Основная цель данного протокола заключается в представлении пошаговой методики качественного и количественного отслеживания для оценки морфологических характеристик с использованием планшетов с мембранными вставками и платформ CFS (Рисунок 1). В данной работе методика продемонстрирована на примере коммуникации между Candida albicans и Candida glabrata, опосредованной секретируемыми факторами. Кроме того, эти инструменты позволяют количественно оценить влияние внутренних генетических переменных (плоидности и статуса локуса спаривания) на изменение абсолютных геометрических параметров развития (длины, объема и диаметра) нитей C. albicans при воздействии секреторных сигнальных молекул. Данный утвержденный протокол представляет собой простую и доступную бесконтактную платформу, подходящую для изучения динамики межвидовой сигнализации.
Протокол
Оба C. albicans и C. glabrata относятся к патогенам человека с уровнем биобезопасности 2 (BSL-2). Все этапы эксперимента должны проводиться в сертифицированных шкафах биологической безопасности при строгом соблюдении правил надлежащей микробиологической практики (GMP) и установленных в учреждении процедур по локализации биологических агентов. На протяжении всей работы необходимо использовать средства индивидуальной защиты (СИЗ), включая лабораторные халаты, двойные перчатки и защитные очки. Все загрязненные расходные материалы, пластиковая посуда и жидкие культуры должны проходить валидированное автоклавирование (121 °C, 15 psi в течение 20 мин) или химическая дезинфекция с использованием свежеприготовленного 10% раствора гипохлорита натрия перед окончательной утилизацией (Рекомендовано: Руководство по утилизации отходов Национальных институтов здравоохранения (NIH) 2022 года). Все стандартные реагенты, химические вещества аналитической чистоты и оборудование, используемые в данной методике, описаны в Таблица материаловСвойства штаммов грибов и фоновые генотипы подробно описаны в Таблица 1Список сред, использованных в данном исследовании, с указанием их состава приведен в Дополнительный файл 1.
1. Приготовление бесклеточного супернатанта (БКС)
- Инициация и инкубация культуры
- С помощью стерильной пластиковой петли возьмите одну изолированную колонию C. glabrata Штамм CBS138, свежевыращенный на чашка с агаром минимальной глюкозной среды (GMM)28Перенесите колонию в стерильную стеклянную пробирку, содержащую 10 мл стандартного дрожжевого пептон-декстрозного (YPD) бульона (1% масс./об. дрожжевого экстракта, 2% масс./об. пептона, 2% масс./об. D-глюкозы).29.
- Закрепите пробирку в орбитальном инкубаторе-шейкере. Инкубируйте культуру при постоянной температуре 37 °C при непрерывном перемешивании со скоростью 200 об/мин в течение 18 ч.
- Убедитесь, что культура равномерно перешла в позднюю стационарную фазу роста, проверив оптическую плотность (OD600) находится в стабильном диапазоне от 12,0 до 14,0. Осмотрите клетки под микроскопом, чтобы убедиться, что они имеют дрожжевую форму и не загрязнены. Данное окно развития необходимо для обеспечения оптимального накопления стабильных компонентов внеклеточного секретома.
- Разделение и фильтрация клеток
- Асептически перенесите 18-часовую C. glabrata жидкую культуру в стерильную коническую полипропиленовую центрифужную пробирку объемом 15 мл.
- Сбалансируйте пробирки и центрифугируйте культуру при 5 000 x г ровно в течение 5 мин при контролируемой комнатной температуре 25 °C для спрессовывания биомассы в плотный пеллет.
- Перелейте неочищенный жидкий супернатант в чистый стерильный пластиковый шприц объемом 20 мл. Осторожно присоедините шприц к стерильному 0.22 µm Мембранный фильтр с низким связыванием белков из полиэфирсульфона (ПЭС).
- Оказывая равномерное механическое давление, пропустите жидкость через PES-фильтр в стерильную пробирку для сбора объемом 15 мл, чтобы получить рабочий бесклеточный супернатант (CFS). При возникновении сопротивления во время фильтрации не прилагайте избыточного давления, так как это может привести к разрыву мембраны. В таких случаях используйте новый мембранный фильтр.
ПРИМЕЧАНИЕ: Не подвергайте свежесобранную бесклеточную супернатант (БКС) циклам быстрого замораживания-оттаивания и не храните при температурах ниже 4 °C перед постановкой анализа, так как холодное осаждение может дестабилизировать белковые факторы с низкой концентрацией. - Если вы переходите непосредственно к сопутствующему эксперименту по совместному культивированию в планшете с мембранными вставками (шаг 4), оставьте спрессованный осадок целевых клеток в исходной пробирке для сбора.
2. Приготовление инокулята Candida albicans для анализов по индукции гиф
- Подготовка и поддержание инокулята
- Извлеките целевые штаммы C. albicans (генотипы указаны в Таблице 1) непосредственно из основных глицериновых стоков для длительного хранения при -80 °C. Высейте клетки на плотные среды GMM (0,67% w/v азотистой основы для дрожжей без аминокислот, 2% w/v D-глюкозы, 2% w/v агара) для получения рабочих колоний.
- Для диплоидных штаммов (SC5314, RBY1132, RBY1133): инокулируйте одну колонию в 5 mL жидкой среды GMM. Инкубируйте пробирку в течение 12 h при 37 °C при постоянном перемешивании со скоростью 200 rpm.
ПРИМЕЧАНИЕ: Использование минимальной среды (GMM) для ночной подготовки диплоидных клеток имеет решающее значение для подавления спонтанного автофиламентации, которая часто возникает в богатых питательными веществами средах. - Для гаплоидных штаммов (GZY896, GZY803): инокулируйте изолированную колонию в 5 mL жидкого бульона YPD с добавлением 0,1 mg/mL уридина (YPDU). Инкубируйте пробирку в течение 12 h при 37 °C при непрерывном перемешивании со скоростью 200 rpm.
- Для сохранения морфологической стабильности и обеспечения воспроизводимости ограничьте количество последовательных жидких субкультур максимум тремя пассажами. Если уровень автофиламентации или образование псевдогифальных кластеров в исходном контрольном пуле превышает 2%, утилизируйте штамм и восстановите свежие клетки из основных замороженных стоков.
- Нормализация
- Перенесите аликвоту объемом 1 mL из ночных жидких культур в стерильные кюветы. Измерьте точное поглощение при 600 nm (OD600) с помощью откалиброванного УФ-видимого спектрофотометра, используя свежий бульон GMM или YPDU в качестве контрольного бланка.
ПРИМЕЧАНИЕ: OD600 (плотность клеток) ночных жидких культур, особенно выращенных в YPDU, может превышать диапазон чувствительности спектрофотометра. В таких случаях перед проведением измерений надлежащим образом разбавьте культуры (в 10–20 раз). - Рассчитайте объем плотной культуры, необходимый для получения стандартной целевой суспензии. Разбавьте клетки предварительно нагретой (37 °C) жидкой средой GMM в стерильной пробирке, чтобы подготовить 1 mL рабочего инокулята с окончательным абсолютным значением OD600 = 0,1.
- Перенесите аликвоту объемом 1 mL из ночных жидких культур в стерильные кюветы. Измерьте точное поглощение при 600 nm (OD600) с помощью откалиброванного УФ-видимого спектрофотометра, используя свежий бульон GMM или YPDU в качестве контрольного бланка.
3. Анализ индукции гиф на основе бесклеточного супернатанта (в 96-луночном формате)
- Подготовка анализа
- Возьмите стерильный 96-луночный полистирольный микротитрационный планшет с плоским дном и высокой оптической прозрачностью.
- Конфигурация тестовых лунок: Добавьте 45 µL свежеотфильтрованной CFS C. glabrata (из этапа 1.2.4) непосредственно в назначенные тестовые лунки. Добавьте 45 µL стерильного бульона GMM (или бульона YPDU, если оцениваются гаплоидные целевые штаммы).
- Отрицательные контроли среды: Добавьте 90 µL бульона GMM в контрольные лунки. Кроме того, в отдельную лунку смешайте 45 µL стерильного бульона GMM с 45 µL чистого неинокулированного бульона YPD для мониторинга фоновых компонентов среды.
- Положительные контроли индукции: Добавьте 80 µL бульона GMM в сочетании с 10 µL фетальной бычьей сыворотки (FBS; конечная концентрация 10% v/v).
- Инокуляция: Добавьте ровно 10 µL нормированного рабочего инокулята C. albicans с OD600 = 0.1 (из этапа 2.2.2) в 90 µL соответствующей среды во все экспериментальные и контрольные лунки.
- Инкубация и сбор данных
- Накройте 96-луночный планшет подходящей пластиковой крышкой для минимизации испарения. Поместите планшет в статический инкубатор при температуре 37 °C ровно на 3 ч. Избегайте перемещения или встряхивания планшета в этот период для обеспечения стабильного формирования филаментов.
- После инкубации поместите многолуночный планшет вертикально на предметный столик инвертированного светового микроскопа, оснащенного оптикой для светлого поля и встроенным цифровым CCD-модулем камеры.
- Систематически сделайте автоматизированные или ручные снимки как минимум в пяти различных полях зрения для каждой лунки.
- Выполните данную конфигурацию анализа с четкими техническими дубликатами для каждого условия, используя не менее трех полностью независимых биологических повторностей, подготовленных в разные дни.
4. Метод сокультивирования в многолуночном планшете с мембранными вставками
- Подготовка аблюминального (нижнего) компартмента
- Возьмите стерильный 24-луночный планшет для культивирования тканей.
- В нижние аблюминальные камеры внесите точно 1,0 mL нормализованной суспензии клеток C. albicans с OD600 = 0,1 (из шага 2.2.2).
- Подготовка люминального (верхнего) компартмента
- Возьмите осадок клеток C. glabrata, отложенный на шаге 1.2.5. Ресуспендируйте осадок в 1 mL стерильного бульона GMM, центрифугируйте при 5000 x g в течение 3 мин и слейте жидкость. Повторите этот этап промывки дважды, чтобы удалить остаточные питательные компоненты или элементы старой среды.
- Ресуспендируйте финальный промытый осадок в свежем бульоне GMM и доведите конечную оптическую плотность до высокой концентрации OD600 = 5,0.
- С помощью стерильного пинцета возьмите стерильный вкладыш для лунки с поликарбонатной мембраной с трековыми порами размером 0,4 µm. Плавно опустите корпус вкладыша в заполненную лунку 24-луночного планшета, зафиксировав его верхние фланцы в позициях среднего паза.
- В верхнюю люминальную камеру вкладыша внесите точно 750 µL концентрированной культуры C. glabrata с OD600 = 5,0.
ПРИМЕЧАНИЕ: Поддержание начального соотношения клеток примерно 1:50 (C. albicans к C. glabrata) через мембранный барьер обеспечивает достаточное накопление сигнальных лигандов, предотвращая при этом возникновение локальных артефактов обратной связи.
- Инкубация и визуализация
- Закройте собранную систему из планшета с мембранными вкладышами и инкубируйте в статическом режиме или при мягком орбитальном встряхивании (30 rpm) при 37 °C в течение ровно 3 ч.
- После инкубации с помощью стерильного пинцета осторожно поднимите и извлеките верхний люминальный вкладыш из каждой лунки. Утилизируйте вкладыши как биологически опасные отходы.
ПРИМЕЧАНИЕ: Полное удаление мембраны верхнего вкладыша перед визуализацией необходимо для устранения рефракционных теней, паттернов рассеяния света и фоновых артефактов сетки при микроскопическом скрининге с высоким разрешением. - Поместите 24-луночный планшет на предметный столик инвертированного микроскопа для морфологической оценки. В данном исследовании использовался инвертированный микроскоп с объективами 10x/0,30NA, 20x/0,50NA или с увеличенным рабочим расстоянием 40x/0,60NA и набором фильтров DIC.
5. Микроскопия высокого разрешения и цифровой анализ изображений
- Цифровое получение изображений
- Просканируйте дно лунок с помощью маломощного объектива с увеличением 10x, чтобы проверить равномерность распределения клеток и отметить любые локальные ошибки трекинга или аномальные скопления клеток.
- Сделайте снимки минимум 10 отдельных полей зрения, используя калиброванный объектив с 20-кратным увеличением. Эти изображения составят основу набора данных для отслеживания стандартного количества филаментов и распределения популяции.
- Для проведения точного фенотипического анализа и детального измерения границ клеток выполняйте микрофотосъемку с использованием объектива с увеличением 40x и экстра-длинным рабочим расстоянием. Сохраняйте все исходные файлы изображений.
- Конвейер количественного фенотипирования (Fiji)
- Запустите Fiji программное обеспечение для обработки (версии 1.54p или выше). Откройте целевую микрофотографию, перейдя к Файл > Открыть или перетаскиванием файла непосредственно в Fiji панель управления
- Отслеживание длины гиф (L): щелкните правой кнопкой мыши по значку выбора линии на главной Fiji панели инструментов и выберите Инструмент «Сегментированная линия» из выпадающего меню. Установите курсор точно в точку соединения, где движущаяся нить выходит за границу клеточной стенки материнской дрожжевой клетки.
- Непрерывно нажимайте левую кнопку мыши, чтобы провести линию вдоль центральной продольной оси гифы, расставляя опорные точки для учета любых изгибов или поворотов, и завершите линию на самом ее апикальном кончике. Нажмите на Измерить зафиксировать длину в микрометрах (µm). Нажмите Ctrl+M (Windows) или Cmd+M (Mac OS) для регистрации общей длины (L) в микрометрах (µm) в окне «Результаты» (Results).
- Чтобы избежать повторных измерений одной и той же нити, используйте встроенный инструмент «Кисть» (Brush Tool) для выделения каждой обработанной клетки.
- Профилирование материнской дрожжевой клетки: найдите прикрепленное тело материнской дрожжевой клетки, соответствующее ранее отслеживаемой гифальной нити. Используйте Инструмент «Сегментированная линия» провести прямую линию вдоль максимальной продольной оси тела клетки для измерения ее максимальной длины (большая ось, определяемая как переменная «a») и выполнить Измерить команда
- Проведите вторую линию строго перпендикулярно главной оси через самый широкий поперечный участок тела клетки, чтобы измерить соответствующую перпендикулярную поперечную ось (малую ось, определяемую как переменная «b»), и выполните Измерить Команда.
- Вычислите общий объем материнской дрожжевой клетки (CV, выраженный в кубических микрометрах, µm3) путем применения стандартной геометрической модели вытянутого сфероида с использованием зарегистрированных переменных «a» и «b»: CV = 4/3 π ab2.
- Толщина структуры гиф (d): выберите Инструмент «Сегментированная линия»Измерьте расстояние между внешними стенками. т. е. линия, проведенная перпендикулярно продольной оси. Выполните эти измерения в трех отдельных равноудаленных точках по всей длине филамента, чтобы учесть естественные структурные вариации, фиксируя каждое значение. посредством the Измерить Команда
- Вычислите среднее арифметическое этих трех различных точек данных, чтобы определить точное среднее значение толщины (d). Разделите полученное среднее значение диаметра на два для определения структурной переменной радиуса (r = d/2).
- Вычислите общий объем гифального нити (HV, выраженный в µm3) путем рассмотрения филамента как неразветвленного правильного геометрического цилиндра. Используйте отслеженную длину филамента (L) и полученный структурный радиус (r) в следующей расчетной модели: HV = π Пожалуйста, предоставьте исходный текст для перевода.2 Л.
6. Статистический дизайн
- Биологические повторности
- Выполните все варианты расположения индивидуальных тестов как минимум в трех независимых биологических повторах, используя свежие, приготовленные раздельно стартовые культуры.
- В рамках каждого биологического повтора для каждого условия следует выделить минимум две идентичные технические лунки, чтобы учесть локальные краевые эффекты или погрешности пипетирования.
- Определение экспериментальной единицы: Для обеспечения статистической достоверности и предотвращения появления артефактов в каждом эксперименте следует использовать не менее трех технических повторов. Отдельные клетки, измеренные в пределах одной лунки, представляют собой технические подвыборки; соответственно, три такие лунки будут соответствовать трем техническим повторам. Аналогичным образом для каждого образца рекомендуется использовать три биологических повтора (независимых эксперимента) (N = 3).
- Для каждого отдельного условия в рамках одного биологического повтора случайным образом измерьте от 50 до 100 отдельных клеток в нескольких полях зрения. Для каждого биологического повтора рассчитайте среднее или медианное значение этих измерений клеток. Используйте данные средние или медианные значения биологических повторов для всех последующих сравнительных статистических тестов.
- Профилирование распределения и проверка гипотез
- Перед применением параметрических методов (например, сравнения средних) подвергните наборы данных биологических повторностей проверке на нормальность распределения с помощью критерия Шапиро-Уилка или критерия Д’Агостино-Пирсона.
- Сравнение двух групп: при прямом сравнении одной опытной группы с одной контрольной группой (например, дикого типа C. albicans рост в чистой среде по сравнению с ростом в изолированной среде C. glabrata CFS), примените непарный двухсторонний t-критерий Стьюдента t-критерийпри условии, что набор данных имеет нормальное распределение.
- Если данные существенно отклоняются от нормального распределения, следует перейти к непараметрическим альтернативам, таким как U-критерий Манна — Уитни (критерий ранговых сумм Уилкоксона), который сравнивает медианы ранжированных данных и не зависит от их абсолютных значений. Также известно, что непараметрические тесты устойчивы к влиянию выбросов.
- Оценка нескольких групп: при одновременном анализе трех или более генетических линий или комбинаций воздействий (например, при отслеживании морфологических вариаций в разных МАТа/а, МАТα/αи МАТа/α (штаммов), проведите стандартный однофакторный дисперсионный анализ (ANOVA) с последующим апостериорным тестом Тьюки для множественных попарных сравнений. В случае нарушения условий теста на нормальность распределения замените параметрический подход непараметрическим критерием Краскела-Уоллиса с последующим апостериорным анализом множественных сравнений Данна.
- Графическое представление и визуализация данных: Выполните весь статистический анализ и графическое представление с использованием программного обеспечения для статистической обработки и построения графиков.
ПРИМЕЧАНИЕ: Для проведения статистического анализа и построения графиков может быть использовано аналогичное программное обеспечение. Данные, полученные в ходе анализов с использованием многолуночного планшета с мембранными вставками и анализов бесклеточного супернатанта (CFS), могут быть представлены в виде диаграмм рассеяния с разделителем по столбцам (column-scatter plots), скрипичных диаграмм с разбросом (jitter-violin plots) или диаграмм «ящик с усами» с разбросом (jitter box plots), отображающих медиану (центральная линия) и 95% доверительный интервал (использовался в данном исследовании) либо медиану (центральная линия), а также первый и третий квартили (верхняя и нижняя линии соответственно). - Установите порог формальной статистической значимости на уровне альфа p < 0.05. Соблюдайте единообразие стандартных обозначений на всех созданных рисунках и в таблицах с данными. Например: ns: p > 0.05; *: p < 0.05; **: p < 0.01; ***: p < 0.001; ****: p < 0.0001.
Результаты
Бесконтактные методы совместного культивирования для изучения межвидовых взаимодействий
Растворимые внеклеточные сигнальные молекулы с низкой концентрацией часто опосредуют ключевые коммуникационные события при смешанном микробном сожительстве. Такая динамика оценивалась с использованием двух бесклеточных систем, разработанных для анализа паттернов взаимодействия между C. albicans и C. glabrata при предотвращении прямого физического контакта клеток. В первой конфигурации использовалась система культивирования в планшетах с интегрированными мембранными вкладышами, где две популяции были физически разделены инертной поликарбонатной мембраной с порами 0,4 µm, что обеспечивало беспрепятственную двунаправленную диффузию секретируемых молекул через барьер. Во второй системе контролировали рост дрожжевых клеток C. albicans, культивируемых непосредственно в микротитрационных планшетах, содержащих бесклеточный супернатант, полученный из культур C. glabrata в стационарной фазе (CgCFS).
В соответствии с результатами предыдущих скринингов30, клетки дикого типа гетерозиготного диплоида C. albicans (SC5314) легко формировали истинные гифы в ответ как на клетки C. glabrata, отделенные мембранным вкладышем, так и на фильтрованный CgCFS. В то же время клетки, поддерживаемые в чистой среде отрицательного контроля (GMM или YPD), оставались преимущественно в форме почкующихся дрожжей и псевдогиф (Рисунок 2A). Сравнительный анализ продемонстрировал согласованность результатов двух вариантов постановки анализа. Оба метода дали сопоставимые значения по всем структурным показателям, включая длину, объем и толщину филаментов (Рисунок 2). Различие в морфологических параметрах считалось значимым, если значение p при соответствующих статистических тестах с последующими апостериорными тестами для множественных сравнений соответствовало критерию 0,05. Эти наблюдения показали, что у клеток C. albicans не было значимой разницы в длине истинных гиф, индуцированных клетками C. glabrata в системе с мембранным вкладышем в многолуночном планшете (39,66 µm ± 6,81 µm) или при воздействии фильтрованного CgCFS (37,13 µm ± 6,50 µm; Рисунок 2B). Аналогично, объемы этих индуцированных филаментов в системе с мембранным вкладышем (112,10 µm3± 22,59 µm3) также значимо не отличались от объемов в кондиционированной среде CgCFS (109,78 µm3± 34,69 µm3; Рисунок 2C). Кроме того, измерения диаметра филаментов подтвердили, что средняя толщина гиф оставалась неизменной в обеих установках: 1,89 ± 0,10 µm для конфигурации с мембранным вкладышем и 1,92 µm ± 0,23 µm при обработке CgCFS (Рисунок 2D).
Уровни плоидности и конфигурации типов спаривания изменяют морфологические размеры in vitro
Роль уровней плоидности и архитектуры локуса спаривания в управлении диморфными переходами была установлена в различных модельных системах грибов. В данном исследовании аналитический конвейер отслеживания был применен для количественной оценки показателей филаментации, а именно длины гиф, структурного объема, толщины и соответствующего объема материнской дрожжевой клетки, на панели гаплоидных (MATa или MATα) и диплоидных (MATa/a, MATα/α или MATa/α) штаммов C. albicans.
Структурное профилирование показало, что при воздействии индуктивного секретома CgCFS или положительного сывороточного контроля гомозиготный диплоидный штамм альфа (MATα/α) образовывал нити со значительно более длинными осями (45.56 µm ± 9.24 µm и 46.62 µm ± 9.07 µm) и большим объемом (125.24 µm3 ± 39.94 µm3 и 119.45 µm3 ± 37.32 µm3) по сравнению с гомозиготным диплоидным штаммом MATa/a (Рисунок 3A,C). В то время как стандартные клинические изоляты C. albicans существуют преимущественно в виде гетерозиготных диплоидов, референсный штамм MATa/α после индукции (особенно сывороткой) демонстрировал более длинные нити и большие объемы по сравнению со штаммом MATa/a. Однако эти показатели были значительно ниже, чем у гомозиготного штамма MATα/α (Рисунок 3B,D).
Одновременно с этим гаплоидные штаммы продемонстрировали обратную закономерность: у гаплоидного штамма MATa наблюдалось значительное увеличение длины гиф по сравнению с гаплоидным штаммом MATα при обоих условиях индукции (CgCFS: 22.06 µm ± 5.41 µm против 17.58 µm ± 4.12 µm; сыворотка: 23.71 µm ± 6.59 µm против 21.00 µm ± 5.29 µm; Рисунок 4A). Интересно, что это увеличение длины на гаплоидном фоне привело к увеличению объема гиф (38.84 µm3 ± 19.58 µm3 против 34.25 µm3 ± 19.62 µm3) только в ответ на CgCFS (Рисунок 4B). Эти первичные измерения in vitro указывают на сложное взаимодействие между состоянием плоидности и конфигурациями локуса типа спаривания, что позволяет предположить, что локусы MATa и MATα, вероятно, по-разному влияют на динамику филаментации.
Для изучения статистических взаимосвязей между этими структурными показателями во всех объединенных наборах данных был проведен анализ ранговой корреляции Спирмена (ρ) и линейной регрессии Пирсона (R2), охватывающий все протестированные варианты плоидности и типов спаривания. Положительные корреляции наблюдались для всех проанализированных пар: длины гифы и объема гифы, длины гифы и толщины гифы, длины гифы и объема материнской клетки, а также общего объема гиф и объема материнской дрожжевой клетки (Рисунок 5, Дополнительная таблица 1 и Дополнительная таблица 2).
Наиболее сильная зависимость наблюдалась между длиной гиф и вычисленным объемом гиф (ρ = 0.91; Рисунок 5A). Напротив, самая слабая корреляция была выявлена между исходным объемом материнской дрожжевой клетки и объемом растущей гифы (ρ = 0.63; Рисунок 5C). Кроме того, толщина гиф не коррелировала с их длиной так сильно, как это делал объем гиф (Рисунок 5A,D). Объем материнской клетки, длина и толщина гиф не имели статистически значимых различий в своих корреляциях (Рисунок 5B,D). Такие геометрические распределения позволяют предположить, что больший исходный объем материнской дрожжевой клетки не обязательно приводит к формированию более длинных гиф или гиф с бóльшим объемом.
Резюмируя, данные результаты демонстрируют полезность как многолуночных планшетов с мембранными вставками, так и анализов на основе CFS для визуализации и количественной оценки морфогенетических изменений C. albicans без физического контакта. Данные, полученные с помощью этого протокола, выявляют различные морфологические характеристики при разных уровнях плоидности и конфигурациях типов спаривания. Такие бесконтактные схемы анализа предлагают гибкую и масштабируемую методологию, которую можно адаптировать для исследования динамики межвидовой сигнализации в различных комбинациях микроорганизмов.
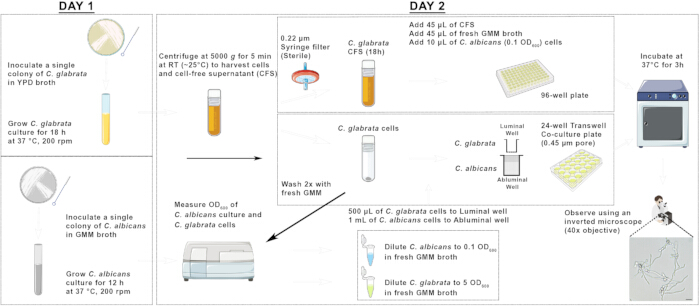
Рисунок 1: Схематическое изображение совместного культивирования в планшете с мембранными вставками и анализа индукции гиф на основе CFS с использованием видов Candida. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
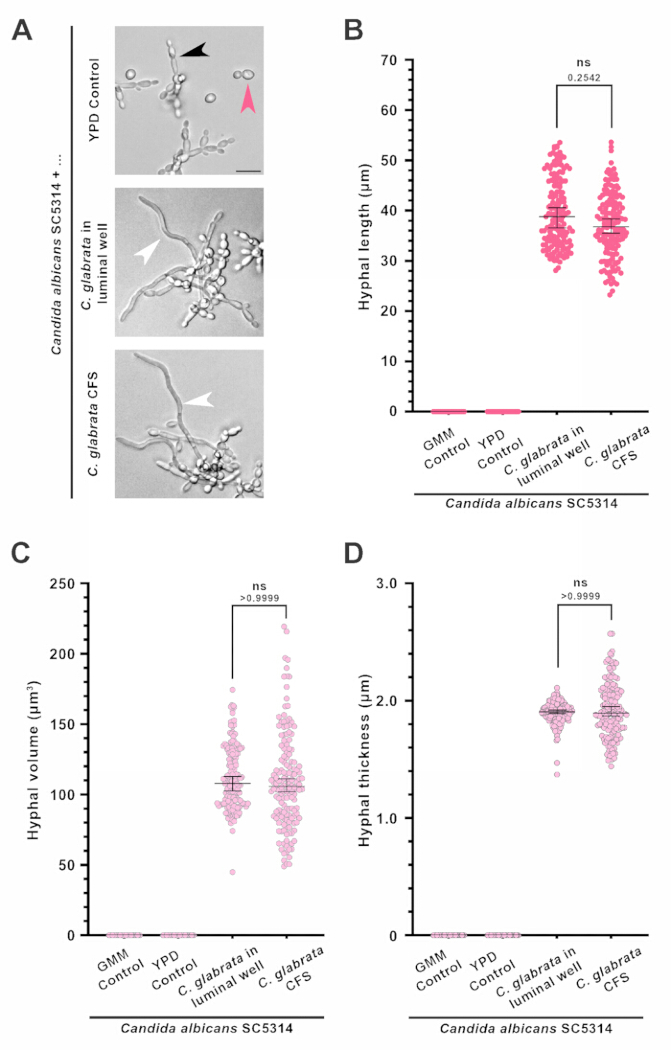
Рисунок 2: Сравнение морфологии гиф, наблюдаемой при использовании многолуночного планшета с мембранными вставками и бесконтактных анализов на основе CFS. (A) Репрезентативные микрофотографии в светлом поле, демонстрирующие морфологический ответ C. albicans на YPD (контроль), C. glabrata в системе с мембранными вставками в многолуночном планшете или на среду с бесклеточным супернатантом (CFS) C. glabrata. Розовые, черные и белые стрелки обозначают дрожжевые клетки, псевдогифы и истинные гифы соответственно. Масштабная линейка — 10 µm. Длина гиф (B), объем гиф (C) и толщина гиф (D) гетерозиготного диплоидного штамма C. albicans (SC5314), наблюдаемые в ответ на клетки C. glabrata в системе с мембранными вставками в многолуночном планшете или на CFS C. glabrata. Данные представлены как медиана ± 95% доверительный интервал по результатам трех независимых биологических экспериментов при n = 50 клеток. ns — статистически не значимо: p > 0.05. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
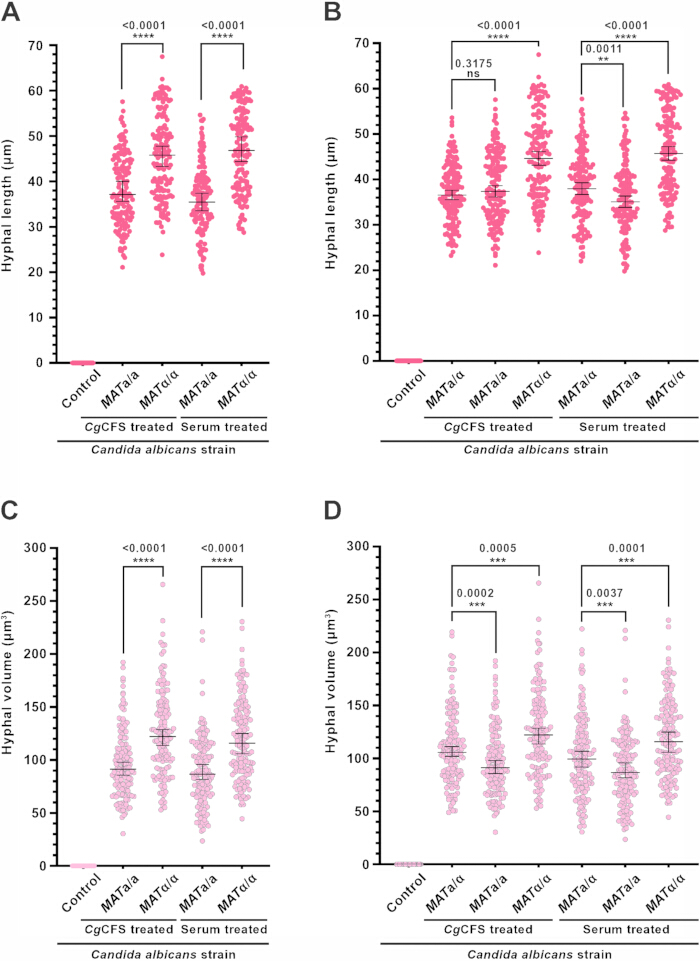
Рисунок 3: Тип спаривания и зиготность оказывают значительное влияние на морфологию гиф у диплоидных C. albicans. Графики, отображающие сравнительную длину гиф в ответ на воздействие указанной молекулы-индуктора у гомозиготных диплоидов (A), а также у гетеро- и гомозиготных диплоидов (B) C. albicans. Аналогично, приведены сравнительные объемы гиф в ответ на указанные молекулы-индукторы у гомозиготных диплоидов (C) и у гетеро- и гомозиготных диплоидов (D). Контроль: YPD, контрольная среда, не индуцирующая образование гиф. Данные представлены как медиана ± 95% доверительный интервал по результатам трех независимых биологических экспериментов при n = 50 клеток. Числа, указанные в верхней части графиков, представляют собой p-значения, определенные с помощью критерия суммы рангов Уилкоксона. **: p < 0.01, ***: p < 0.001, ****: p < 0.0001 — статистически значимо; ns, незначимо: p > 0.05. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
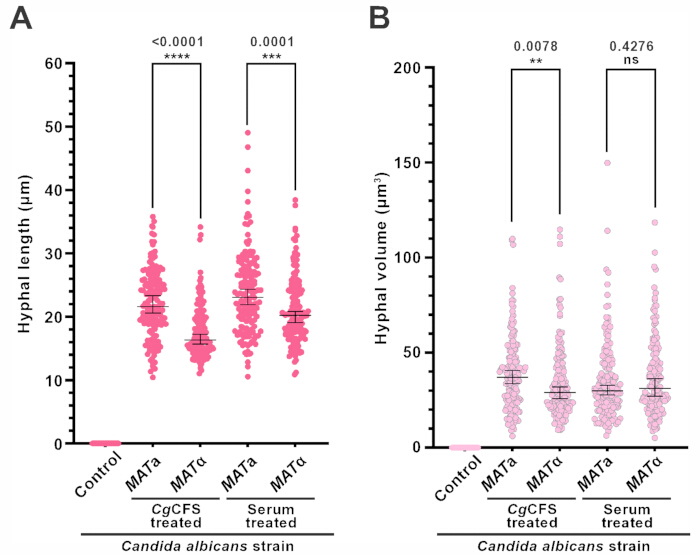
Рисунок 4: Характеристики гиф гаплоидных C. albicans в ответ на воздействие различных молекулярных индукторов. На графиках представлены длина гиф (A) и объем гиф (B) штаммов гаплоидных C. albicans в ответ на воздействие указанных индукторов. Контроль: YPD, контрольная среда, не индуцирующая образование гиф. Данные представлены как медиана ± 95% доверительный интервал по результатам трех независимых биологических экспериментов при n = 50 клеток. Указанные числа обозначают значения p, определенные с помощью критерия суммы рангов Уилкоксона. **: p < 0.01, ***: p < 0.001, ****: p < 0.0001 — статистически значимо; ns — незначимо: p > 0.05. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
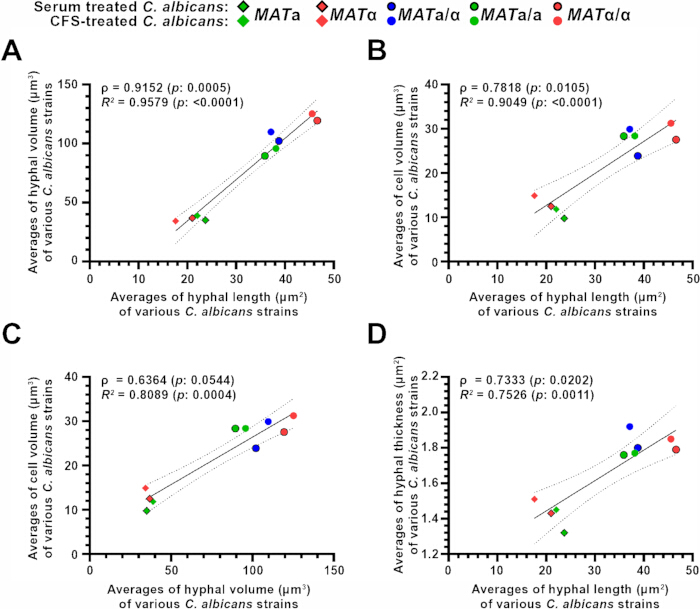
Рисунок 5: Корреляция морфологических параметров, соответствующих плоидности C. albicans. На графиках показаны корреляция Спирмена и линейная регрессия между морфологическими параметрами, использованными в данном исследовании, а именно: объемом гиф и длиной гиф (A), объемом клеток и длиной гиф (B), объемом клеток и объемом гиф (C), а также толщиной гиф и длиной гиф (D). ρ: коэффициент корреляции Спирмена; R2: коэффициент детерминации при линейном регрессионном анализе; p: значение p. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
| Штамм | Виды | Плойдия | Генотип | Пожалуйста, предоставьте исходный текст для перевода. |
| CBS138 | Candida glabrata | Гаплоидный (1n) | МАТα | ATCC 2001 |
| SC5314 | Candida albicans | Диплоидный (2n) | Гетерозиготный (MATа/α) | ATCC MYA-2876 |
| RBY1132 | Candida albicans | Диплоидный (2n) | Гомозиготный (MATа/а); arg4Δ/arg4Δ, leu2Δ/leu2Δ, his1Δ/his1Δ, URA3/ura3Δ | Шефер Д., Кот П., Уайтвей М., Беннетт Р.Д. Барьерная активность Candida albicans опосредует деградацию феромонов и способствует спариванию. Eukaryotic Cell. 6 (6), 907–918, doi: 10.1128/ec.00090-07 (2007). |
| RBY1133 | Candida albicans | Диплоидный (2n) | Гомозиготный (MATα/α); arg4Δ/arg4Δ, leu2Δ/leu2Δ, his1Δ/his1Δ, URA3/ura3Δ | |
| GZY896 | Candida albicans | Гаплоидный (1n) | Гомозиготный (MATa); ura3∆::imm434 his4 gal1∆::ura3∆::HIS4 | Хикман М. А. и др. «Облигатно диплоидный» Candida albicans образует гаплоиды, способные к спариванию. Nature. 494 (7435), 55–59, doi: 10.1038/nature11865 (2013). |
| GZY803 | Candida albicans | Гаплоидный (1n) | Гомозиготный (MATα); his4 ura3Δ::HIS4 |
Таблица 1: Штаммы Candida albicans и Candida glabrata, использованные в данном исследовании. В таблице приведены обозначения, точные генотипы, плоидность и зиготность по типу спаривания грибковых штаммов, оцененных в анализах сокультивирования в многолуночных планшетах с бесконтактными мембранными вставками и в анализах на основе бесклеточного супернатанта (CFS).
Дополнительная таблица 1: Данные статистического анализа различных морфологических параметров C. albicans. Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительная таблица 2: Исходные значения всех биологических повторностей различных морфологических параметров C. albicans, оцениваемых в данном исследовании.Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительный файл 1: Список сред, использованных в данном исследовании, с указанием их состава.Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Обсуждение
В предыдущем отчете с использованием планшета с мембранными вставками и анализа на основе CFS было показано, что C. albicans развивает гифы в ответ на клетки C. glabrata или их CFS. Однако этот ответ не индуцировался другими дрожжами, такими как Saccharomyces cerevisiae и Candida dubliniensis30. Более того, этот гифальный ответ не ограничивался только лабораторным референсным штаммом C. albicans SC5314, но также наблюдался и при других геномных фонах, включая клинический изолят WUM5A30. В данном протоколе на основе этих результатов был разработан стандартизированный рабочий процесс для количественной оценки трех морфологических показателей: длины гиф, объема гиф и толщины гиф. Кроме того, эти морфологические факторы были использованы для оценки того, как вариации плоидности и статус локуса типа спаривания влияют на морфологические характеристики C. albicans в ответ на секретируемую молекулу-индуктор.
Описанные здесь бесконтактные методики представляют собой простую экспериментальную основу для визуализации и анализа морфометрических результатов воздействия растворимых межвидовых сигнальных молекул. В то время как многолуночные планшеты с мембранными вставками обеспечивают двунаправленную диффузию между активными культурами, анализ на основе супернатанта кондиционированной среды (CFS) представляет собой масштабируемый формат, поскольку необходимые индуцирующие компоненты собираются независимо от целевой культуры. Поддержание соотношения примерно 1:50 (C. albicans в C. glabrata) в схеме расположения многолуночного планшета с мембранными вставками необходим для обеспечения согласованности результатов анализа. Такой градиент концентрации обеспечивает достаточный поток растворимых индуцирующих молекул через мембранный барьер, оставаясь при этом ниже порогов накопления эндогенных ингибиторов чувства кворума, таких как фарнезол, которые могут подавлять C. albicans кинетика филаментации31,32Аналогично, критическим этапом анализа на основе бесклеточного супернатанта (CFS) является период инкубации продолжительностью 18 ч, необходимый для C. glabrata исходную культуру для равномерного достижения поздней стационарной фазы роста. Если период инкубации для C. glabrata если культура выращивалась менее 12 ч или более 24 ч, вероятность того, что собранная бесклеточная супернатант (БКС) будет иметь оптимальную концентрацию исследуемой здесь специфической молекулы-индуктора, снижается, что приводит к субоптимальной индукции гиф. Для любой новой экспериментальной задачи и/или новых комбинаций видов микроорганизмов необходимо стандартизировать соответствующую стадию роста для сбора БКС или соотношение культур.
Для максимального повышения воспроизводимости анализа в различных лабораторных условиях рекомендуются следующие ключевые процедурные доработки. Для ночного культивирования всех диплоидных линий C. albicans рекомендуется использовать минимальную глюкозную среду (Glucose Minimal Medium, GMM). Использование GMM подавляет фоновую автофиламентацию, часто наблюдаемую в богатой питательными веществами среде YPD. Такая автофиламентация отмечалась и в других исследованиях, хотя лежащий в ее основе механизм до сих пор не ясен33. Также рекомендуется полное физическое удаление поликарбонатной мембранной вставки перед получением изображений, чтобы исключить рассеивание света и оптические аберрации, которые могут возникнуть при светлое-польной микроскопии с большим увеличением.
Хотя такие бесконтактные конфигурации помогают разделить роли растворимых сигнальных компонентов, они создают определенные экспериментальные трудности. Например, в бесконтактных анализах существуют такие риски, как разрыв мембраны из-за неправильного обращения и, как следствие, перекрестное микробное загрязнение. Поэтому при позиционировании наконечников пипеток следует проявлять осторожность, следя за тем, чтобы при отборе проб наконечники касались стенок камеры вкладыша, а не мембраны. Кроме того, физическое перекрестное загрязнение между камерами может возникнуть из-за неправильного (слишком большого) размера пор, что легко устраняется использованием вкладышей с соответствующим размером пор мембраны. Избыточный рост грибов или интенсивное отложение биопленки могут перекрыть пористую мембрану. Эта проблема решается ограничением начального инокулята до OD600 = 0.1 и ограничением времени инкубации до 12 ч. Кроме того, микробы могут распределяться в лунках устройства неоднородно, часто скапливаясь или прикрепляясь вблизи мембраны, что может привести к непредвиденным погрешностям при измерении оптической плотности. Более того, поскольку эти системы физически разделяют две популяции, они не позволяют воспроизвести или оценить взаимодействия, зависящие от прямого физического контакта клеток. Примерами могут служить созревание смешанно-видовой биопленки, механическая коагрегация или сигнализация, обусловленная закрепленными на поверхности адгезинами клеточной стенки. Хотя такие анализы на планшетах обеспечивают эффективный итоговый снимок кинетики раннего филаментации (через 3 ч), они не позволяют зафиксировать долгосрочную динамику роста или пространственное поведение. Исследователям, которым требуется непрерывное отслеживание в реальном времени в течение длительных периодов, в качестве более подходящей альтернативы могут подойти специализированные микрофлюидные перфузионные каналы или автоматизированные камеры для визуализации живых клеток.
Геометрия клетки фундаментально связана с метаболической эффективностью, при этом отношение площади поверхности к объему (SA/V) служит ключевым фактором поглощения питательных веществ и внутриклеточного транспорта. У диморфных и нитчатых грибов переход в вытянутый гифальный морфотип функционирует как структурная адаптация для поддержания оптимизированного отношения SA/V. Это обеспечивает распределенное поглощение питательных веществ вдоль протяженной стенки гифы при сохранении метаболических процессов, направленных к верхушке гифы34,35,36,37. Однако наше исследование показывает, что морфометрическое масштабирование не является равномерно пропорциональным для различных состояний плоидности и конфигураций локуса типа спаривания.
Морфометрические наборы данных, полученные via данный протокол трекинга, выявляют четкие тенденции структурного масштабирования, коррелирующие с плоидностью, при этом гаплоидные линии последовательно демонстрируют меньшие абсолютные значения по всем геометрическим показателям, чем соответствующие диплоидные штаммы (Рисунок 5). На диплоидном фоне гомозиготная конфигурация MATα/α демонстрировала более интенсивную кинетику филаментации (длина и объем) по сравнению со штаммами MATa/a или MATa/α в данных условиях in vitro. Учитывая, что усиленная филаментация часто связана с повышенной проникающей способностью, остается неясным, почему клинические изоляты C. albicans преимущественно выделяются в виде гетерозиготных диплоидов (MATa/α). Возможно, в иммунокомпетентном организме хозяина гетерозиготное состояние обеспечивает более широкое преимущество в приспособленности для долгосрочной комменсальной колонизации. Другими словами, структурные характеристики морфотипа MATa/α оптимизированы для выживания в условиях иммунного надзора хозяина. Следовательно, в будущих исследованиях следует использовать эти стандартизированные системы совместного культивирования для систематической оценки сравнительной приспособленности гомозигот разных типов спаривания при различных селективных давлениях.
В предыдущих исследованиях было показано, что морфология вакуолей, динамика их деления и слияния, а также структурное расширение играют важную роль в регулировании внутреннего объема и тургорного давления удлиняющихся грибных филаментов. Например, у возбудителя пирикуляриоза риса Magnaporthe oryzaeчеткие переходы от тонких вегетативных гиф к луковичным инвазивным структурам тесно скоординированы с изменениями в организации вакуолей38,39,40Однако в данном протоколе не осуществлялся прямой мониторинг динамики вакуолей во время C. albicans филаментации; отслеживание этих изменений внутренних органелл в соотношении с общим структурным объемом представляет собой перспективное направление для будущих исследований. Кроме того, необходимы дальнейшие исследования, чтобы определить, почему специфические компоненты секретома грибкового происхождения вызывают иную кинетику морфологического масштабирования, чем химические индукторы из организма хозяина, такие как сыворотка.
Методы бесконтактного совместного культивирования, подробно описанные в данном протоколе, могут быть адаптированы для исследования межвидовых и межцарственных взаимодействий, таких как динамика сигнализации между популяциями оппортунистических бактерий и диморфными грибами. Кроме того, поскольку форматы планшетов на 96 и 24 лунки масштабируемы, эта количественная платформа может быть использована для химического скрининга. Примерами могут служить идентификация низкомолекулярных ингибиторов или новых противогрибковых соединений для селективного подавления путей филаментации, стимулируемых секретомом, без прямого влияния на базовую жизнеспособность клеток.
Раскрытие информации
Авторы заявляют об отсутствии конкурирующих или конфликтующих интересов.
Благодарности
Данная работа была поддержана стипендией Intermediate Fellowship от DBT-Wellcome Trust India Alliance (IA/I/19/1/504294), присужденной RNP. KBSS получил поддержку в рамках специального исследовательского гранта Университета Ахмадабада (AU/SRG/SAS/20-21/07_KS_03.25) и основного исследовательского гранта SERB (URBSASE23A6/SERB/23-24/KS_02.27). Иконки, использованные на Рисунке 1, адаптированы из Servier Medical Art (https://smart.servier.com/), лицензия CC BY 4.0 (https://creativecommons.org/licenses/by/4.0/), и из BioArt Source, NIAID, NIH.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Шприцевой фильтр PES 0.22 μm | Millipore (Merck) | SLGPR33RS | |
| Агар-агар | HiMedia | GRM666 | |
| Глюкоза | HiMedia | GRM016 | |
| 24-луночный планшет Nunc Carrier Plate с вставками для культивирования клеток (0.4 μm) | Thermo Scientific | 141002 | |
| 96-луночный мультидиш Nunc BioLite, обработанный для культивирования клеток, с плоским дном | Thermo Scientific | 130188 | |
| Протеозо-пептон | HiMedia | RM005 | |
| Уридин | Sigma | U6381 | |
| Дрожжевой экстракт | HiMedia | RM027 | |
| Азотистая основа для дрожжей, с сульфатом аммония, без аминокислот | HiMedia | M878 |
Ссылки
- Peleg AY, Hogan DA, Mylonakis E. Medically important bacterial-fungal interactions. Nat Rev Microbiol. 2010;8(5):340-349.
- Waters CM, Bassler BL. Quorum sensing: cell-to-cell communication in bacteria. Annu Rev Cell Dev Biol. 2005;21:319-346.
- Foster KR, Bell T. Competition, not cooperation, dominates interactions among culturable microbial species. Curr Biol. 2012;22(19):1845-1850.
- Carolus H, Van Dyck K, Van Dijck P. Candida albicans and Staphylococcus species: a threatening twosome. Front Microbiol. 2019;10:2162.
- Pasman R, et al. Candida albicans and Staphylococcus aureus reciprocally promote their virulence factor secretion and pro-inflammatory effects. Front Cell Infect Microbiol. 2025;15:1629373.
- Grandclément C, Tannières M, Moréra S, Dessaux Y, Faure D. Quorum quenching: role in nature and applied developments. FEMS Microbiol Rev. 2016;40(1):86-116.
- Goers L, Freemont P, Polizzi KM. Co-culture systems and technologies: taking synthetic biology to the next level. J R Soc Interface. 2014;11(96):20140065.
- Burmeister A, Grünberger A. Microfluidic cultivation and analysis tools for interaction studies of microbial co-cultures. Curr Opin Biotechnol. 2020;62:106-115.
- Kapoore RV, Padmaperuma G, Maneein S, Vaidyanathan S. Co-culturing microbial consortia: approaches for applications in biomanufacturing and bioprocessing. Crit Rev Biotechnol. 2022;42(1):46-72.
- Kalluri R. The biology and function of fibroblasts in cancer. Nat Rev Cancer. 2016;16(9):582-598.
- Deveau A, et al. Bacterial-fungal interactions: ecology, mechanisms and challenges. FEMS Microbiol Rev. 2018;42(3):335-352.
- Temkin MI, Carlson CM, Stubbendieck AL, Currie CR, Stubbendieck RM. High throughput co-culture assays for the investigation of microbial interactions. J Vis Exp. 2019;(152). doi:10.3791/60275.
- Cecchelli R, et al. A stable and reproducible human blood-brain barrier model derived from hematopoietic stem cells. PLoS One. 2014;9(6):e99733.
- Wodzanowski KA, Cassel SE, Grimes CL, Kloxin AM. Tools for probing host-bacteria interactions in the gut microenvironment: from molecular to cellular levels. Bioorg Med Chem Lett. 2020;30(10):127116.
- Luo Y, McAuley DF, Fulton CR, Pessoa JS, McMullan R, Lundy FT. Targeting Candida albicans in dual-species biofilms with antifungal treatment reduces Staphylococcus aureus and MRSA in vitro. PLoS One. 2021;16(4):e0249547.
- Justus CR, Marie MA, Sanderlin EJ, Yang LV. Transwell in vitro cell migration and invasion assays. Methods Mol Biol. 2023;2644:349-359.
- McCarty NS, Ledesma-Amaro R. Synthetic biology tools to engineer microbial communities for biotechnology. Trends Biotechnol. 2019;37(2):181-197.
- Virgo M, Mostowy S, Ho BT. Emerging models to study competitive interactions within bacterial communities. Trends Microbiol. 2025;33(6):688-700.
- Moutinho TJ, Panagides JC, Biggs MB, Medlock GL, Kolling GL, Papin JA. Novel co-culture plate enables growth dynamic-based assessment of contact-independent microbial interactions. PLoS One. 2017;12(8):e0182163.
- Gnecchi M, Zhang Z, Ni A, Dzau VJ. Paracrine mechanisms in adult stem cell signaling and therapy. Circ Res. 2008;103(11):1204-1219.
- Hogan DA, Vik Å, Kolter R. A Pseudomonas aeruginosa quorum-sensing molecule influences Candida albicans morphology. Mol Microbiol. 2004;54(5):1212-1223.
- Poon Y, Hui M. Inhibitory effect of lactobacilli supernatants on biofilm and filamentation of Candida albicans, Candida tropicalis, and Candida parapsilosis. Front Microbiol. 2023;14. doi:10.3389/fmicb.2023.1105949.
- Huh D, Matthews BD, Mammoto A, Montoya-Zavala M, Hsin HY, Ingber DE. Reconstituting organ-level lung functions on a chip. Science. 2010;328(5986):1662-1668.
- Huh D, et al. Microfabrication of human organs-on-chips. Nat Protoc. 2013;8(11):2135-2157.
- Bhatia SN, Ingber DE. Microfluidic organs-on-chips. Nat Biotechnol. 2014;32(8):760-772.
- Itani A, Shida Y, Ogasawara W. A microfluidic device for simultaneous detection of enzyme secretion and elongation of a single hypha. Front Microbiol. 2023;14:1125760.
- Beneyton T, Thomas S, Griffiths AD, Nicaud JM, Drevelle A, Rossignol T. Droplet-based microfluidic high-throughput screening of heterologous enzymes secreted by the yeast Yarrowia lipolytica. Microb Cell Fact. 2017;16:18.
- Xu XL, et al. Bacterial peptidoglycan triggers Candida albicans hyphal growth by directly activating the adenylyl cyclase Cyr1p. Cell Host Microbe. 2008;4(1):28-39.
- Yeast extract-peptone-dextrose (YPD) medium (liquid or solid). Cold Spring Harb Protoc. 2017;2017(8):pdb.rec090563.
- Parnandi VA, Trivedi PM, Panchal H, Suryawanshi G, Patkar RN. A small Candida glabrata protein promotes hyphal growth in C. albicans during mixed-species invasive candidiasis. Curr Biol. 2026;36(1):1-15.e9.
- Davis-Hanna A, Piispanen AE, Stateva LI, Hogan DA. Farnesol and dodecanol effects on the Candida albicans Ras1-cAMP signalling pathway and the regulation of morphogenesis. Mol Microbiol. 2008;67(1):47-62.
- Polke M, et al. A functional link between hyphal maintenance and quorum sensing in Candida albicans. Mol Microbiol. 2017;103(4):595-617.
- Su C, Yu J, Sun Q, Liu Q, Lu Y. Hyphal induction under the condition without inoculation in Candida albicans is triggered by Brg1-mediated removal of NRG1 inhibition. Mol Microbiol. 2018;108(4):410-423.
- Senesi N, Wilkinson KJ. Biophysical Chemistry of Fractal Structures and Processes in Environmental Systems. Chichester: John Wiley & Sons; 2008: ISBN: 978-0-470-01474-5.
- Bayry J, Aimanianda V, Guijarro JI, Sunde M, Latgé JP. Hydrophobins—unique fungal proteins. PLoS Pathog. 2012;8(5):e1002700.
- Ojkic N, Serbanescu D, Banerjee S. Surface-to-volume scaling and aspect ratio preservation in rod-shaped bacteria. eLife. 2019;8:e47033.
- Li X, de Souza RA, Heinemann M. The rate of glucose metabolism sets the cell morphology across yeast strains and species. Curr Biol. 2025;35(4):788-798.e4.
- Mochizuki S, Minami E, Nishizawa Y. Live-cell imaging of rice cytological changes reveals the importance of host vacuole maintenance for biotrophic invasion by blast fungus, Magnaporthe oryzae. MicrobiologyOpen. 2015;4(6):952-966.
- Fernandez J, Orth K. Rise of a cereal killer: the biology of Magnaporthe oryzae biotrophic growth. Trends Microbiol. 2018;26(7):582-597.
- Wengler MR, Talbot NJ. Mechanisms of regulated cell death during plant infection by the rice blast fungus Magnaporthe oryzae. Cell Death Differ. 2025;32(5):793-801.
Перепечатки и разрешения
