Интегрированный метаболомный, транскриптомный, одноклеточный и функциональный анализы позволяют идентифицировать SHMT2 как биомаркер метаболического перепрограммирования SGOC, агрессивного поведения и сниженного прогнозируемого ответа на иммунотерапию при аденокарциноме легкого.
Исследовательская статья
SHMT2: метаболический и иммунный биомаркер агрессивной аденокарциномы легкого
* These authors contributed equally
В этой статье
Краткое содержание
Аннотация
Метаболизм серина/глицина и одноуглеродных единиц (SGOC) часто нарушен при аденокарциноме легкого (LUAD), однако его связь с поведением опухоли и прогнозируемым ответом на иммунотерапию остается недостаточно изученной. Метаболомное профилирование 23 пар образцов тканей LUAD и прилежащей нормальной ткани легкого было проведено с использованием масс-спектрометрии с внутренней экстракционной электроспрей-ионизацией. Данные транскриптомики и клинические данные когорты LUAD из Атласа генома рака (TCGA-LUAD) были проанализированы для оценки экспрессии SHMT2, прогноза, дифференциально экспрессируемых генов и иммуно-связанных признаков. Прогнозируемый ответ на блокаду иммунных контрольных точек оценивали с помощью системы Tumor Immune Dysfunction and Exclusion (TIDE) и Атласа иммуномов рака (TCIA), а чувствительность к препаратам определяли с помощью oncoPredict. Данные секвенирования РНК единичных клеток (scRNA-seq) использовались для изучения клеточного распределения SHMT2. Экспериментальная валидация включала количественную ПЦР с обратной транскрипцией (RT-qPCR), вестерн-блоттинг, иммуногистохимию из Human Protein Atlas (HPA), а также нокдаун SHMT2 с помощью коротких шпилечных РНК (shRNA) с последующими анализами пролиферации, заживления ран и формирования колоний. Метаболомный анализ выявил, что метаболизм глицина, серина и треонина является одним из наиболее выраженно измененных путей при LUAD. Экспрессия SHMT2 была повышена при LUAD и ассоциировалась с худшей общей выживаемостью и неблагоприятными клинико-патологическими характеристиками. Опухоли с высоким уровнем SHMT2 демонстрировали обогащение транскрипционных программ, связанных с клеточным циклом и SGOC, более низкие иммунные и стромальные баллы, а также снижение прогнозируемой чувствительности к иммунотерапии. Анализ единичных клеток показал относительное обогащение экспрессией SHMT2 в популяциях B-клеток. In vitro SHMT2 была гиперэкспрессирована в клетках LUAD, а ее нокдаун подавлял пролиферацию, миграцию и клоногенный рост. В совокупности SHMT2 ассоциируется с метаболическим перепрограммированием SGOC, агрессивным фенотипом опухоли и иммуно-дефицитным состоянием при LUAD, что подтверждает ее потенциальную значимость в качестве биомаркера; терапевтическое воздействие требует дополнительной фармакологической валидации и подтверждения in vivo.
Введение
Аденокарцинома легкого (LUAD) остается одной из ведущих причин смертности от рака во всем мире, что обусловлено выраженной молекулярной гетерогенностью, ранной склонностью к метастазированию и ограниченной эффективностью современных стратегий лечения1,2. Несмотря на то, что ингибиторы контрольных точек иммунного ответа (ICI) изменили терапевтический ландшафт при LUAD, устойчивый клинический эффект наблюдается лишь у части пациентов, при этом часто фиксируется как первичная, так и приобретенная резистентность3,4. Столь значительная межиндивидуальная вариабельность подчеркивает острую необходимость в определении биологических детерминант, которые формируют иммунное микроокружение опухоли и определяют ответ на иммунотерапию, а также в выявлении доступных терапевтических мишеней, которые могут быть использованы для улучшения стратификации пациентов и результатов лечения.
Метаболическое перепрограммирование является основным признаком злокачественной прогрессии5. Среди метаболических программ метаболизм SGOC связывает гликолитические потоки с метаболизмом аминокислот и синтезом нуклеотидов, обеспечивая одноуглеродные единицы для производства пуринов/пиримидинов и генерации метильных доноров6. Помимо продукции биомассы, метаболизм SGOC способствует поддержанию редокс-гомеостаза и взаимодействует с циклом метионина, влияя на метилирование ДНК, РНК и гистонов, что ставит его в центр регуляции пролиферации и эпигенетики7,8. Серинглицин-гидроксиметилтрансфераза 2 (SHMT2), митохондриальная изоформа серингидроксиметилтрансферазы, превращает серин в глицин, генерируя при этом 5,10-метилен-тетрагидрофолат, и представляет собой основную точку входа для митохондриального снабжения одноуглеродными единицами в сети SGOC9. SHMT2 аберрантно экспрессируется во многих злокачественных новообразованиях и ассоциируется с усилением пролиферации, инвазии, терапевтической резистентности и адаптации к окислительному стрессу10,11,12,13. SHMT2 также пересекается с воспалительной сигнализацией через комплекс BRISC, хотя прямой иммунный механизм, управляемый SHMT2 в LUAD, еще предстоит установить14,15. Соответственно, требуется комплексная оценка того, является ли SHMT2 клинически значимым метаболическим фенотипом при LUAD и как он связан с характеристиками иммунного микроокружения и прогнозируемым ответом на иммунотерапию.
Двунаправленное взаимодействие между метаболизмом опухоли и противоопухолевым иммунитетом занимает центральное место в современной биологии рака16. Опухолевые клетки могут снижать иммунную компетентность посредством конкурентного истощения питательных веществ, накопления иммуномодулирующих метаболитов и метаболически-эпигенетического сопряжения, которое перестраивает программы дифференцировки и эффекторные функции иммунных клеток7,16,17. Повышенный одноуглеродный обмен может влиять на метилирование-зависимые программы и метаболическую приспособленность T-клеток, однако направление и выраженность этих эффектов зависят от типа клеток и доступности питательных веществ17. Адаптивная иммунная регуляция также не ограничивается T-клетками: B-клетки, антительный ответ, презентация антигена и третичные лимфоидные структуры (TLS) были связаны с эффективностью иммунотерапии18. Эти наблюдения обосновывают необходимость многоуровневого анализа, позволяющего рассматривать потенциальный метаболический кандидат в контексте всей опухоли, отдельных клеток и функциональных показателей, не предполагая, что одна лишь согласованность данных разных платформ доказывает причинно-следственную связь.
В отличие от дизайна, основанного только на метаболомике, который выявляет измененные метаболиты без установления их клеточного источника или фенотипической значимости, и в отличие от дизайна, основанного только на объемной транскриптомике, который позволяет сделать вывод об активности путей без прямого наблюдения за изменениями метаболитов, данный рабочий процесс объединяет метаболомику парных тканей, объемную и одноклеточную транскриптомику, а также функциональные тесты in vitro. Согласованность данных на этих уровнях способствует приоритизации кандидатов и снижает зависимость от какой-либо одной аналитической платформы; однако полученные доказательства в отношении иммунной регуляции остаются ассоциативными, пока они не будут подтверждены в системах иммунного кокультивирования или in vivo.
Метаболомика парных образцов тканей при LUAD и прилегающей нормальной ткани легкого была впервые использована для выявления метаболических нарушений, связанных с глицином. Затем были интегрированы транскриптомные и клинические данные TCGA для оценки SHMT2 — митохондриального фермента SGOC, выбор которого был обоснован значимостью соответствующего пути, повышением экспрессии в опухоли, прогностической ассоциацией и возможностью экспериментального исследования. Профилирование иммунного микроокружения, картирование на уровне отдельных клеток и функциональная валидация in vitro впоследствии позволили создать многоуровневую систему генерации гипотез, охватывающую метаболические изменения, дисрегуляцию ферментов, клеточное распределение и фенотип опухолевых клеток. С практической точки зрения данный рабочий процесс требует свежезамороженных парных тканей. Идентификация метаболитов с помощью масс-спектрометрии является полуколичественной; кандидатные метаболиты должны быть подтверждены независимо. Прогнозы эффективности иммунотерапии (TIDE/TCIA) и выводы о чувствительности к препаратам (oncoPredict) представляют собой вычислительные оценки на основе транскриптома, которые не заменяют клиническую валидацию на реальных когортах пациентов, получающих ICI, и должны интерпретироваться как инструмент генерации гипотез.
Протокол
Данное исследование было одобрено Институциональным наблюдательным советом Второй аффилированной больницы Нанчанского университета (CDEFYYLK 3-05). До начала сбора образцов от всех пациентов было получено письменное информированное согласие в соответствии с Хельсинкской декларацией. Необработанные данные были экспортированы и проанализированы с использованием программного обеспечения и веб-ресурсов, перечисленных в Таблица материалов.
Сбор клинических образцов тканей
Парные образцы опухоли и соответствующей отдаленной нормальной ткани легкого были собраны у пациентов, перенесших хирургическую резекцию в период с января по июнь 2024 года с патологически подтвержденным диагнозом «инвазивная аденокарцинома легкого». Образцы извлекались оперирующим хирургом, обрабатывались в течение 5 min после резекции, немедленно подвергались шоковой заморозке в жидком азоте и хранились до начала анализа. Обезличенные клинико-патологические характеристики представлены в Дополнительной таблице 1.
Внутренняя экстрактивная масс-спектрометрия с электрораспылением (iEESI-MS) для дифференциации LUAD и нормальных тканей легких
Образцы тканей (1 mm3) анализировали методом iEESI-MS с использованием гибридного масс-спектрометра с линейной ионной ловушкой и электростатической орбитальной ловушкой в режиме положительных ионов. Растворитель для экстракции (метанол 100%) подавали со скоростью 3,0 µL/min при смещении +5 kV. Диапазон сканирования iEESI-MS1 составлял m/z 50–2,000. Для iEESI-MS2 использовали коллизионную диссоциацию с нормированной энергией соударений 25–35%, окном изоляции m/z 2,0 и временем динамического исключения 30 s. Ежедневная внешняя калибровка в соответствии со стандартной процедурой прибора обеспечивала погрешность определения массы <5 ppm. После медианной нормализации, log₂-преобразования и автоскейлинга проводили OPLS-DA с 200 пермутационными тестами. Аннотирование метаболитов осуществляли с помощью HMDB, а анализ обогащения метаболических путей проводили с использованием аннотаций KEGG.
Обработка данных масс-спектрометрии и идентификация метаболитов
Необработанные данные масс-спектрометрии (МС) были нормализованы методом медианной нормализации с последующим логарифмическим преобразованием (log₂) и автоскейлингом (центрирование по среднему и деление на стандартное отклонение каждой переменной). Для идентификации дискриминантных признаков m/z использовали ортогональный анализ дискриминантных функций на основе метода частичных наименьших квадратов (OPLS-DA). Признаки считались дифференциальными при VIP > 1.0, |log₂(FC)| > 0.58 и p < 0.05. Дифференциальные признаки подвергали анализу МС2 и аннотировали с помощью базы данных Human Metabolome Database. Затем для выявления измененных путей и приоритизации соответствующих им ферментов использовали анализ обогащения метаболических путей на основе KEGG. Аннотированные дифференциальные метаболиты представлены в Дополнительной таблице 2.
Анализ экспрессии SHMT2, показателей выживаемости и клинико-патологических ассоциаций на основе данных TCGA
Профили экспрессии RNA-seq и соответствующие клинические аннотации для TCGA-LUAD были загружены из Genomic Data Commons 18 декабря 2025 года; опухоли (n = 542) и нормальные ткани (n = 59). Значения количества фрагментов на килобазу транскрипта на миллион картированных прочтений (FPKM) были преобразованы как log2(FPKM + 1). В прогностический анализ были включены только образцы с полными данными о выживаемости. Значения экспрессии SHMT2 в опухолевых и нормальных тканях сравнивали с помощью рангового суммарного критерия Вилкоксона. Пациенты были разделены на группы с высокой и низкой экспрессией SHMT2 по медианному значению экспрессии. Общую выживаемость оценивали с помощью анализа Каплана-Мейера и лог-рангового критерия. Связь со стадией опухоли по системе TNM (tumor-node-metastasis), возрастом и полом оценивали с помощью критерия хи-квадрат или критерия Вилкоксона, в зависимости от ситуации. Зависимые от времени ROC-кривые (receiver operating characteristic) были построены для 1-, 3- и 5-летней выживаемости. Все статистические тесты были двухсторонними.
Анализ дифференциальной экспрессии и функциональное обогащение (GO/KEGG)
Дифференциально экспрессируемые гены (ДЭГ) между группами с высоким и низким уровнем экспрессии SHMT2 были определены с использованием ложноположительной частоты (FDR) < 0.05 и |log₂(FC)| ≥ 1. Результаты были визуализированы в виде графика «вулкан» и тепловой карты 40 наиболее значимых ДЭГ с Z-нормализацией по строкам. Для анализа обогащения Gene Ontology (GO) и KEGG использовалось скорректированное значение p < 0.05. Аннотации генов человека были получены из базы данных Ensembl в декабре 2025 года.
Иммунная инфильтрация, прогнозирование ответа на иммунотерапию и вывод о чувствительности к препаратам
Показатели микроокружения опухоли, включая ImmuneScore, StromalScore и ESTIMATEScore, были рассчитаны с помощью ESTIMATE. Состав иммунных клеток определяли с помощью CIBERSORT с использованием эталонного набора LM22 (загружен 5 декабря 2025 г.), 1000 перестановок и сохранением образцов с p < 0.05 для деконволюции. Погрупповые сравнения проводились между опухолями с высоким и низким уровнем экспрессии SHMT2. Корреляции Спирмена между SHMT2 и генами, связанными с иммунными контрольными точками, были визуализированы в виде корреляционной матрицы. Иммунофеноскоры были получены из TCIA, а TIDE использовался для дополнительного прогнозирования ответа на иммунотерапию. Чувствительность к препаратам определяли с помощью oncoPredict, обученного на выпуске GDSC от декабря 2023 г., для оценки значений IC50. Для анализа межгрупповых различий использовали критерий Вилкоксона, а для оценки взаимосвязей непрерывных переменных — корреляцию Спирмена.
Анализ РНК-секвенирования единичных клеток при LUAD
Данные транскриптомики единичных клеток19 были загружены из базы данных Gene Expression Omnibus 20 декабря 2025 г. и проанализированы. Были отобраны клетки с количеством выявленных признаков от 200 до 6 000 и содержанием митохондриальных транскриптов < 10%. Нормализация количества прочтений проводилась с помощью LogNormalize с коэффициентом масштабирования 10 000; были выбраны 2 000 наиболее вариабельных генов, после чего все гены были масштабированы. Для анализа главных компонент использовались первые 20 компонент, для UMAP — измерения 1–20, а для кластеризации — разрешение 0,5. Аннотация типов клеток выполнялась с использованием референсного атласа Human Primary Cell Atlas. Пропорции типов клеток сравнивались между опухолевыми и нормальными образцами, также были построены матрицы корреляции Спирмена. Распределение SHMT2 изучалось в различных аннотированных типах клеток. Состояния клеточного цикла определялись с помощью cyclone и визуализировались с помощью ridge-графиков.
Культура клеток
Клетки BEAS-2B, H1299 и A549 культивировали при 37 °C в увлажненном инкубаторе при содержании 5% CO22 и относительной влажности воздуха приблизительно 95%, используя среды и добавки, указанные в Список материалов.
Количественная полимеразная цепная реакция с обратной транскрипцией в реальном времени (ОТ-кПЦР)
Общую РНК экстрагировали с использованием реагента для экстракции РНК на основе фенола. Экстрагированную РНК подвергали обратной транскрипции в кДНК с помощью мастер-микса для обратной транскрипции. Обратную транскрипцию проводили в 20 µL система с удалением геномной ДНК в 42 °C в течение 2 мин, обратная транскрипция при 50 °C в течение 15 мин, и прекращение реакции при 85 °C в течение 5 с. Количественную ПЦР проводили с использованием готовой смеси для кПЦР на основе ДНК-связывающего красителя на системе ПЦР в реальном времени с использованием 95 °C в течение 3 мин, затем 40 циклов: 95 °C в течение 10 с и 60 °C в течение 30 с, а затем этап построения кривой плавления с 95 °C в течение 15 с, 60 °C в течение 60 с, и 95 °C в течение 15 с. Все реакции проводили в трех повторностях. Относительную экспрессию рассчитывали с использованием 2−ΔΔCt метод с использованием GAPDH в качестве референсного гена. Стоковые растворы праймеров готовили с концентрацией 10 µM в дважды дистиллированной воде и хранится при -20 °C в темноте. Последовательности праймеров приведены в Дополнительная таблица 3.
Вестерн-блоттинг
Общий клеточный белок экстрагировали с использованием буфера для радиоиммунопреципитационного анализа на льду в течение 30 min, после чего центрифугировали при 12,000 x g в течение 15 min при 4 °C. Белки разделяли методом 12% электрофореза в полиакриламидном геле с додецилсульфатом натрия и переносили на поливинилиденовые фторидные мембраны с размером пор 0.22 µm. Мембраны блокировали 5% (w/v) раствором обезжиренного молока в трис-солевом буфере с 0.1% Tween 20 (TBST) в течение 2 h при комнатной температуре, затем инкубировали в течение ночи при 4 °C с первичными антителами к anti-SHMT2 (1:1,000) и anti-GAPDH (1:2,000), разведенными в 5% обезжиренном молоке в TBST. После трех промывок по 8 min каждой в TBST (20 mM Tris-HCl, 150 mM NaCl, 0.1% Tween-20) мембраны инкубировали с вторичными антителами, конъюгированными с пероксидазой хрена (1:5,000), в течение 1 h при комнатной температуре. Сигналы визуализировали с использованием субстрата для усиленной хемилюминесценции, приготовленного путем смешивания равных объемов растворов A и B; инкубацию проводили в течение 2 min при комнатной температуре в темноте, после чего изображения фиксировали с помощью системы хемилюминесцентной визуализации.
Валидация иммуногистохимического анализа HPA
Профили экспрессии белка SHMT2 в нормальной ткани легкого и при LUAD оценивали с помощью HPA. В базе HPA был выполнен поиск по запросу «SHMT2», после чего для сравнения были загружены репрезентативные изображения иммуногистохимического (ИГХ) анализа и соответствующие патоморфологические аннотации. Чтобы минимизировать систематическую ошибку, связанную со специфичностью антител, приоритет отдавался антителам с более высоким уровнем валидации в HPA. При наличии данных результаты ИГХ с использованием нескольких антител подвергались перекрестной проверке (HPA020543 и HPA020549).
Нокдаун SHMT2 в клетках LUAD
Для изучения внутренней роли SHMT2 в опухолевых клетках при LUAD был выполнен нокдаун SHMT2 в клетках H1299 и A549 с использованием shRNA. shRNA переносился лентивирусным вектором с промотором H1 и селективным маркером пуромицина; при производстве вируса совместно трансфецировали упаковочные плазмиды. sh-SHMT2 был направлен на кодирующую область человеческого гена SHMT2, в то время как sh-NC служил скрамблированным отрицательным контролем. Подготовленные вирусные стоки имели титр ≥ 1 x 10⁸ трансдуцирующих единиц/мл и хранились при -80 °C. Клетки заражали подготовленными лентивирусными частицами sh-SHMT2 или sh-NC, описанными в таблице материалов. Через 48 ч эффективность нокдауна оценивали с помощью RT-qPCR и вестерн-блоттинга. Для анализов пролиферации, миграции и колониеобразования использовали только клетки с подтвержденным сайленсингом SHMT2.
Анализ пролиферации клеток
Пролиферацию клеток оценивали с помощью анализа CCK-8. Трансфицированные клетки H1299 и A549 высевали в 96-луночные планшеты в количестве 5 x 10³ клеток на лунку в шестикратной повторности. На 1, 2, 3, 4 и 5 дни в каждую лунку добавляли 10 µL реагента CCK-8 (10% от объема культуральной среды) и инкубировали в течение 2 ч при 37 °C. Оптическую плотность измеряли при 450 nm и использовали в качестве показателя жизнеспособности клеток.
Анализ заживления ран
Миграцию клеток оценивали с помощью теста на заживление раны (wound-healing assay). Трансфицированные клетки H1299 и A549 высевали в 6-луночные планшеты и культивировали до достижения 90–95% конфлюэнтности. С помощью стерильного наконечника пипетки объемом 200 µL создавали линейную «рану», после чего отделившиеся клетки удаляли осторожным промыванием фосфатно-солевым буферным раствором. Затем клетки содержали в безсывороточной или низкосывороточной среде, а область раны фотографировали через 0 h и 24 h с помощью инвертированного микроскопа. Степень закрытия раны количественно определяли с использованием программного обеспечения для анализа изображений, указанного в таблице материалов, и рассчитывали как процент сокращения площади относительно начальной площади раны.
Анализ колониеобразующей способности
Для анализа колониеобразования трансфицированные клетки H1299 и A549 высевали в 6-луночные планшеты в количестве 800 клеток на лунку и культивировали в течение примерно 10–14 дней до образования видимых колоний, осуществляя микроскопический мониторинг в процессе культивирования. Колонии фиксировали 4% параформальдегидом в течение 30 мин при комнатной температуре и окрашивали 0,1% кристаллическим фиолетовым в течение 15 мин при комнатной температуре. Под световым микроскопом подсчитывали колонии, содержащие более 50 клеток.
Статистический анализ для экспериментов in vitro
Все эксперименты in vitro проводились независимо как минимум трижды. Данные представлены в виде среднего значения ± стандартного отклонения. Для сравнения двух групп использовался t-критерий Стьюдента; значение p < 0,05 считалось статистически значимым.
Результаты
Метаболомика тканей выявляет обширное метаболическое ремоделирование при LUAD с выраженным обогащением путей, связанных с глицином
Образцы парных опухолевых и прилежащих нормальных тканей легкого от 23 пациентов с LUAD были профилированы методом прямого iEESI-MS; характеристики пациентов и аннотации дифференциальных метаболитов представлены в Дополнительной таблице 1 и Дополнительной таблице 2. После нормализации по log2 анализ OPLS-DA показал четкое разделение между метаболическими профилями опухоли и нормы (R2X = 0.824, R2Y = 0.968, Q2 = 0.757) (Рисунок 1A). Надежность модели была дополнительно подтверждена 20-кратным пермутационным тестом с перехватами R2 = 0.789 и Q2 = −0.451 (Рисунок 1B). С использованием заранее заданных критериев — значение важности переменной в проекции (VIP) > 1, |log2(FC)| > 0.58 и p < 0.05 — было выявлено 45 дифференциальных признаков m/z (Рисунок 1C). Сбор данных MS/MS и аннотация по базе HMDB позволили определить шесть измененных эндогенных метаболитов, включая глицин, серин и бутанон (Дополнительная таблица 2). Анализ обогащения KEGG выявил 1 путей, среди которых наиболее значимыми оказались метаболизм глицина, серина и треонина (Рисунок 1D), что указывает на глицин-зависимое метаболическое ремоделирование при LUAD.
Данные TCGA-LUAD подтверждают повышенную экспрессию SHMT2 в опухолях и связывают высокую экспрессию с неблагоприятным прогнозом
Белок SHMT2 был выбран в качестве приоритетного на основании четырех критериев: его прямого расположения в точке входа метаболизма SGOC в митохондрии, значительного повышения уровня экспрессии в опухолях согласно данным TCGA-LUAD, связи с общей выживаемостью и пригодности для экспериментального воздействия. Данные RNA-seq из TCGA-LUAD показали значительно более высокий уровень экспрессии SHMT2 (log2(FPKM + 1)) в опухолях по сравнению с нормальными тканями легкого (Рисунок 2A). Анализ Каплана–Мейера с использованием медианного значения отсечки показал, что высокая экспрессия SHMT2 связана с худшей общей выживаемостью (Рисунок 2B). Поисковый клинико-патологический анализ дополнительно указал на связь со стадией опухоли и состоянием лимфатических узлов (Рисунок 2C), в то время как зависимый от времени ROC-анализ дал значения AUC > 0,70 через 1, 3 и 5 лет (Рисунок 2D).
Опухоли с высоким уровнем экспрессии SHMT2 характеризуются транскрипционными программами, обогащенными генами прогрессии клеточного цикла и метаболической оси SGOC
Для определения биологических программ, связанных с SHMT2, опухоли TCGA-LUAD были разделены по медианному значению экспрессии SHMT2 на группы с высоким и низким уровнем экспрессии SHMT2 перед проведением анализа дифференциальной экспрессии (Рисунок 3A). Тепловая карта 40 наиболее дифференциально экспрессируемых генов продемонстрировала отчетливые паттерны экспрессии для каждой группы (Рисунок 3B). GO-обогащение выявило такие процессы, как прогрессирование клеточного цикла, сегрегация хромосом и митотическое деление (Рисунок 3C), что стало аналитической основой для описания пролиферативного транскрипционного фенотипа с высоким уровнем SHMT2. Обогащение по KEGG также выделило метаболизм глицина, серина и треонина (Рисунок 3D), что указывает на скоординированную транскрипцию, связанную с SGOC, а не на изолированное изменение SHMT2.
Высокая экспрессия SHMT2 ассоциирована с иммунодефицитным микроокружением, сниженным прогнозируемым ответом на иммунотерапию и особыми паттернами чувствительности к препаратам
Профилирование микроокружения опухоли с помощью ESTIMATE выявило более низкие значения ImmuneScore и StromalScore в группе с высоким уровнем SHMT2 (p < 0,01) (Рисунок 4A). Деконволюция CIBERSORT указала на более низкие доли B-клеток памяти, покоящихся CD4 T-клеток памяти, моноцитов и покоящихся тучных клеток, а также на более высокие доли активированных CD4 T-клеток памяти и фолликулярных Т-хелперов (Рисунок 4B). Корреляционный анализ также выявил положительную связь SHMT2 с BTLA, TNFSF15 и CD28 и отрицательную связь с CD160 и TNFSF14 (Рисунок 4C). Дополнительное прогнозирование на основе транскриптома с использованием TIDE и иммунофеноскоров из TCIA указало на более низкий прогнозируемый эффект иммунотерапии в опухолях с высоким уровнем SHMT2 (p < 0,05) (Рисунок 4D). Эти оценки были получены не из когорты пациентов с LUAD, прошедших клиническое лечение, и, следовательно, не демонстрируют фактическую резистентность к терапии.
Чувствительность к препаратам была определена вычислительным методом, а не измерена экспериментально. Опухоли с высоким уровнем SHMT2 имели более низкие прогнозируемые значения IC50 для ингибитора гликогенсинтазы-киназы-3 и селуметиниба, но более низкую прогнозируемую чувствительность к талазопарибу и ингибитору PLK1 (Рисунок 4E–H). Сниженная прогнозируемая чувствительность к девяти дополнительным препаратам, включая цитарабин, иринотекан и палбоциклиб, показана на Дополнительном рисунке 1A–I. Эти результаты являются гипотезами и не устанавливают клиническую или фармакологическую эффективность.
Анализ отдельных клеток выявляет особый клеточный состав при LUAD и определяет B-клетки как основную популяцию, экспрессирующую SHMT2
Для изучения клеточного распределения SHMT2 в микроокружении опухоли были проанализированы данные секвенирования РНК отдельных клеток (single-cell RNA-seq) при LUAD. Кластеризация UMAP позволила идентифицировать B-клетки, эндотелиальные клетки, эпителиальные клетки, T-клетки и другие основные группы клеток (Рисунок 5A). Пропорции типов клеток различались между опухолевыми и прилегающими нормальными тканями (Рисунок 5B–C), при этом пропорции B- и T-клеток положительно коррелировали (p < 0,01) (Рисунок 5D). Экспрессия SHMT2 была относительно обогащена в группе B-клеток, но также обнаруживалась в эпителиальных клетках (Рисунок 5E). Поскольку одно только обнаружение транскриптов не определяет функцию клетки или ее злокачественный статус, эти результаты интерпретируются как гипотеза о локализации. Внутриклеточная роль SHMT2 в опухолевых клетках была изучена отдельно на клеточных линиях LUAD.
Анализ клеточного цикла на уровне отдельных клеток проводили путем расчета нормализованных показателей фаз G1, S и G2/M для различных типов клеток. Показатели G1 были сосредоточены около нуля, в то время как показатели S и G2/M демонстрировали более широкое распределение (Дополнительная фигура 2) и выраженную гетерогенность в зависимости от типа клеток (Рисунок 5F). Эти результаты указывают на гетерогенность пролиферативного состояния внутри микроокружения LUAD и согласуются с сигнатурами клеточного цикла и митоза, выявленными при общем анализе GO/KEGG.
Экспериментальная проверка подтверждает гиперэкспрессию SHMT2 и демонстрирует, что нокдаун SHMT2 подавляет злокачественные фенотипы в клетках LUAD
Для подтверждения результатов биоинформатического анализа и оценки внутренней роли SHMT2 в опухолевых клетках сначала была изучена экспрессия этого белка в нормальных бронхиальных эпителиальных клетках (BEAS-2B) и клеточных линиях LUAD (H129 и A549), что согласуется с данными анализа совокупных образцов TCGA и эпителиальных клеток в анализе единичных клеток (Рисунок 5E). RT-qPCR показала более высокие уровни мРНК SHMT2 в клетках H129 и A549 по сравнению с клетками BEAS-2B (Рисунок 6A), а вестерн-блоттинг подтвердил более высокую экспрессию белка (Рисунок 6B–C). Репрезентативные изображения иммуногистохимического анализа HPA также продемонстрировали более интенсивное окрашивание на SHMT2 в тканях LUAD, чем в нормальных тканях легких (Рисунок 6D). Чтобы дополнительно исследовать биологическую функцию SHMT2 при LUAD, в клетках H129 и A549 был осуществлен сайленсинг SHMT2 с помощью shRNA. Анализ RT-qPCR подтвердил, что экспрессия мРНК SHMT2 была заметно снижена в группах sh-SHMT2 по сравнению с группами sh-NC в обеих клеточных линиях (Рисунок 6E). Соответственно, вестерн-блоттинг продемонстрировал эффективное снижение экспрессии белка SHMT2 после нокдауна (Рисунок 6F–G).
Функциональные анализы показали, что нокдаун SHMT2 значительно подавляет злокачественный фенотип клеток LUAD. Анализ CCK-8 выявил, что сайленсинг SHMT2 заметно ингибирует пролиферативную способность клеток H129 и A549, при этом разница становилась более выраженной с течением времени (Рисунок 6H). Анализ заживления ран дополнительно показал, что делеция SHMT2 значительно снижает миграционную способность обеих линий клеток LUAD по сравнению с контрольными клетками (Рисунок 6I). Аналогично, анализ формирования колоний продемонстрировал, что нокдаун SHMT2 значительно снижает клоногенный потенциал клеток H129 и A549 (Рисунок 6J). В совокупности эти результаты указывают на то, что SHMT2 способствует пролиферации, миграции и способности к образованию колоний клеток LUAD, что подтверждает его проопухолевую роль при LUAD.
ДОСТУПНОСТЬ ДАННЫХ:
Все необработанные данные, подтверждающие результаты этого исследования, включая данные, на которых основаны рисунки, находятся в открытом доступе в Zenodo по адресу https://doi.org/10.5281/zenodo.20676134.
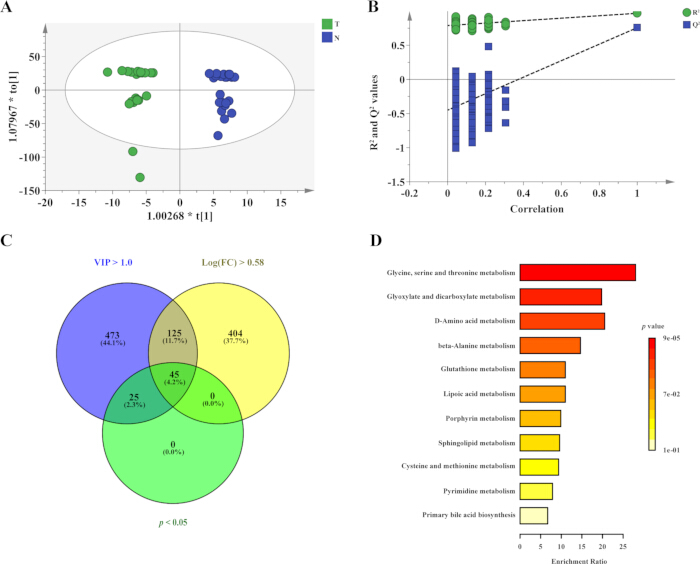
Рисунок 1Метаболомика тканей выявляет глицин-зависимое метаболическое перепрограммирование при аденокарциноме легкого. (A) График счетов OPLS-DA, демонстрирующий разделение между тканями LUAD (T, зеленый цвет) и соответствующими прилегающими нормальными тканями (N, синий цвет). (B) Пермутационный тест для оценки стабильности и прогностической способности модели OPLS-DA на основе R2 и Q2 значения. (С) Диаграмма Венна, демонстрирующая пересечение дифференциальных признаков, отобранных по показателю VIP > 1,0, |log2(FC)| > 0,58, и p < 0,05. Было сохранено сорок пять признаков. (D) Анализ обогащения наборов метаболитов дифференциальных метаболитов на основе базы данных KEGG. Длина столбца указывает на коэффициент обогащения, а интенсивность цвета представляет p значение. Сокращения: VIP = переменная важность в проекции; FC = кратность изменения. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
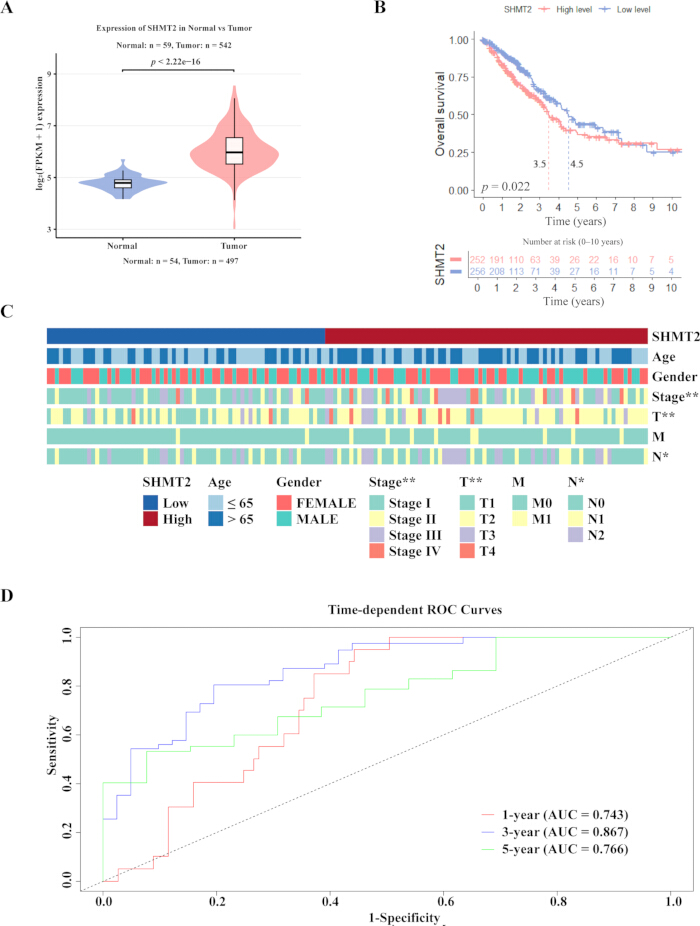
Рисунок 2Экспрессия SHMT2 повышена при аденокарциноме легкого (LUAD) и предсказывает неблагоприятный прогноз в базе данных TCGA-LUAD. (A) Скрипичная диаграмма, сравнивающая экспрессию SHMT2 в нормальных тканях легкого (n = 59) и опухолях при аденокарциноме легкого (LUAD) (n = 542) на основе данных РНК-секвенирования TCGA-LUAD. (B) Кривые общей выживаемости Каплана-Мейера для пациентов, разделенных по медианному значению экспрессии SHMT2. Высокая экспрессия SHMT2 обозначена розовым цветом, низкая экспрессия SHMT2 — синим. (C) Тепловая карта, демонстрирующая взаимосвязи между экспрессией SHMT2 и клинико-патологическими характеристиками, включая возраст, пол, общую патологическую стадию (стадии I–IV), стадию первичной опухоли (T1–T4), стадию регионарных лимфатических узлов (N0–N2) и стадию отдаленного метастазирования (M0–M1). * указывает на статистически значимые различия между группами с высокой и низкой экспрессией SHMT2 (*p < 0.05; **p < 0,01; критерий хи-квадрат). (D) Зависимые от времени ROC-кривые, оценивающие прогностическую значимость экспрессии SHMT2 для предсказания общей выживаемости в течение 1, 3 и 5 лет у пациентов с LUAD. Соответствующие значения AUC указаны на панели. Сокращения: SHMT2 = серингликогидроксиметилтрансфераза 2; FPKM = количество фрагментов на килобазу транскрипта на миллион картированных чтений; ROC = рабочая характеристика приемника; AUC = площадь под кривой. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
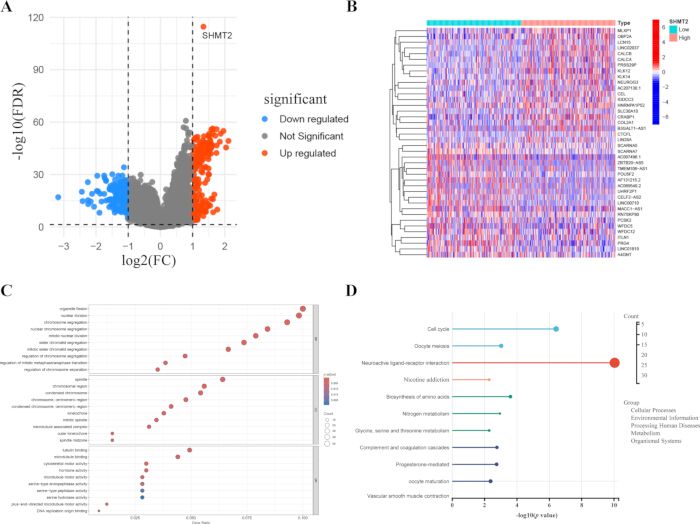
Рисунок 3Транскриптомное профилирование опухолей с высоким и низким уровнем экспрессии SHMT2 выявляет связь с метаболизмом сериновой глицин-оксалоацетат-цикл/одноуглеродным обменом и пролиферативными программами. (A) График «вулкан» (volcano plot), демонстрирующий дифференциальную экспрессию генов в опухолях LUAD с высоким и низким уровнями SHMT2. Гены с повышенной экспрессией показаны красным цветом, с пониженной — синим, и статистически незначимые гены — серым. (B) Тепловая карта репрезентативных дифференциально экспрессируемых генов (ДЭГ) с применением метода иерархической кластеризации без обучения. (C) Анализ обогащения генных онтологий для дифференциально экспрессируемых генов. Размер пузырька указывает на количество генов, цвет представляет скорректированный p значение, а ось x указывает отношение генов. (D) анализ обогащения путей KEGG для дифференциально экспрессируемых генов. Размер точки соответствует количеству генов, а ось X указывает −log₁₀(p значение). Сокращения: SHMT2 = серинглицин-гидроксиметилтрансфераза 2; FDR = скорость ложных открытий; FC = кратность изменения. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
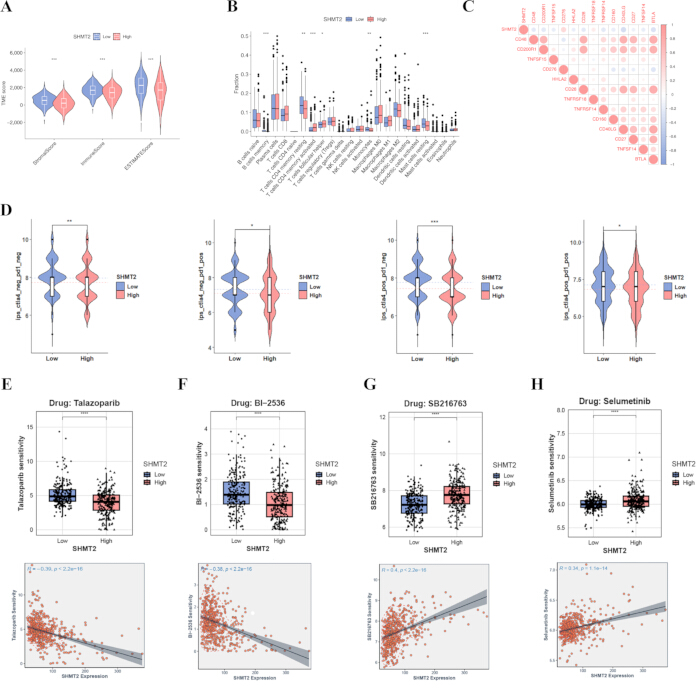
Рисунок 4Экспрессия SHMT2 связана с иммунным контекстом опухоли, прогнозируемым ответом на иммунотерапию и чувствительностью к лекарственным препаратам. (A) Сравнение показателей TME, индекса ESTIMATE, стромального индекса, иммунного индекса и чистоты опухоли между группами с высоким и низким уровнем экспрессии SHMT2. (B) Сравнение инфильтрации иммунных клеток в опухолях с низким и высоким уровнем экспрессии SHMT2, оцененное с помощью CIBERSORT. (C) Матрица корреляции Спирмена между SHMT2 и генами, связанными с иммунными контрольными точками. Размер круга отражает силу корреляции, а цвет — коэффициент ρ Спирмена (от положительного к отрицательному). (D) Сравнение показателей иммунофенотипического скоринга (immunophenoscore) при четырех режимах блокады иммунных контрольных точек (CTLA4-/PD-1-, CTLA4-/PD-1+, CTLA4+/PD-1-, CTLA4+/PD-1+), указывающее на снижение прогнозируемой пользы в опухолях с высоким уровнем экспрессии SHMT2. (Е) Прогнозируемая чувствительность к талазопарибу в группах с высоким и низким уровнем экспрессии SHMT2, представленная в виде расчетных значений IC₅₀ (сверху) и корреляции между экспрессией SHMT2 и прогнозируемой чувствительностью к препарату (снизу). (F) Прогнозируемая чувствительность к BI-2536 в группах с высоким и низким уровнем экспрессии SHMT2, представленная в виде расчетных значений IC₅₀ (вверху) и корреляции между экспрессией SHMT2 и прогнозируемой чувствительностью к препарату (внизу). (G) Прогнозируемая чувствительность к S63845 в группах с высоким и низким уровнем экспрессии SHMT2, представленная в виде расчетных значений IC₅₀ (сверху) и корреляции между экспрессией SHMT2 и прогнозируемой чувствительностью к препарату (снизу). (H) Прогнозируемая чувствительность к селуметинибу в группах с высоким и низким уровнем экспрессии SHMT2, представленная в виде расчетных значений IC₅₀ (сверху) и корреляции между экспрессией SHMT2 и прогнозируемой чувствительностью к препарату (снизу). Сокращения: SHMT2 = серинглицин (серин-гидроксиметилтрансфераза 2); TME = опухолевое микроокружение; ESTIMATE = метод оценки количества стромальных и иммунных клеток в злокачественных опухолевых тканях на основе данных об экспрессии; IC₅₀ = полумаксимальная концентрация ингибирования. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
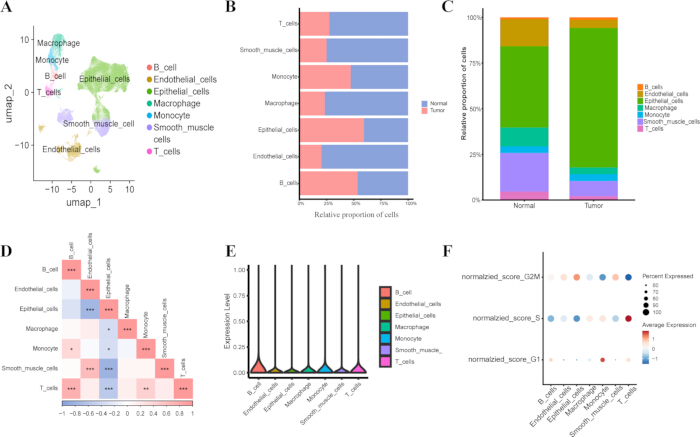
Рисунок 5Анализ ландшафта на уровне отдельных клеток выявляет изменения в клеточном составе, экспрессионный сдвиг SHMT2 и гетерогенность клеточного цикла при аденокарциноме легкого. (A) Визуализация UMAP общедоступных данных транскриптомов отдельных клеток, полученных из образцов LUAD и прилегающих нормальных тканей легкого, с цветовой маркировкой по аннотированным типам клеток. (B) Относительные пропорции типов клеток в нормальных образцах и образцах опухоли, представленные в виде горизонтальных стековых диаграмм. (C) Общий клеточный состав представлен в виде вертикальных накопленных столбчатых диаграмм. (D) Тепловая карта корреляции Спирмена для пропорций типов клеток; красный цвет указывает на положительную, а синий — на отрицательную корреляцию (*p < 0.05, **p < 0.01, ***p < 0.001). (Е) Скрипичные диаграммы экспрессии SHMT2 в основных типах клеток. (F) Точечный график, демонстрирующий показатели клеточного цикла для G1-, S- и G2/M-фаз в идентифицированных типах клеток; размер точки указывает на процент клеток, а цвет — на средний показатель клеточного цикла. Сокращения: UMAP = однообразное приближение и проекция многообразия. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
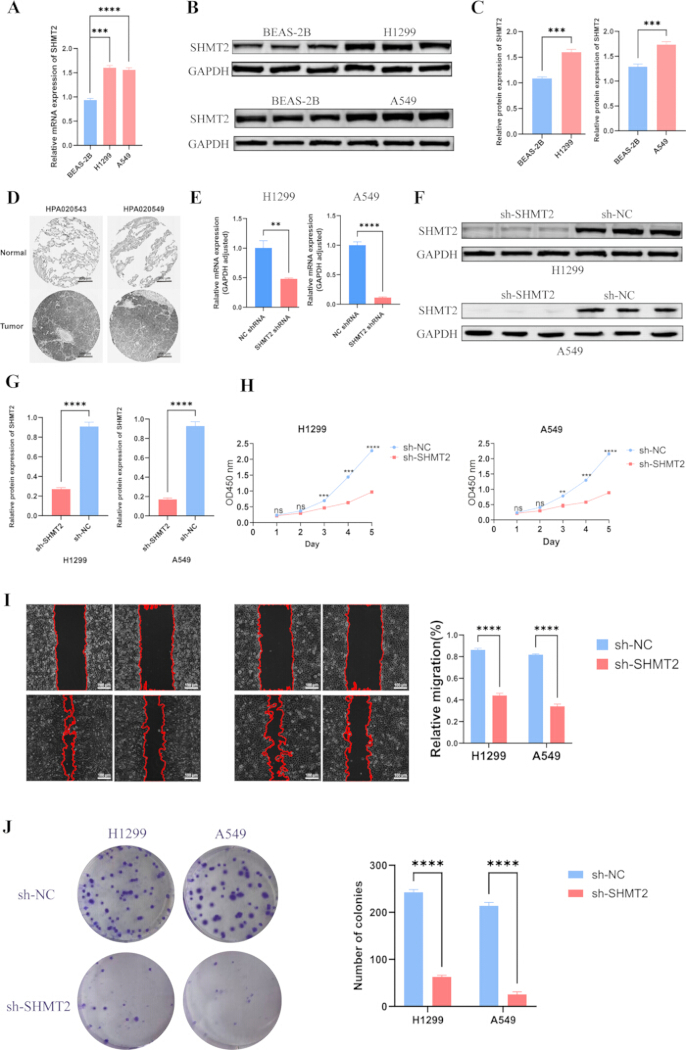
Рисунок 6Экспериментальная и гистологическая валидация экспрессии SHMT2 и функциональных эффектов нокдауна SHMT2 в клетках LUAD. (A) Анализ экспрессии мРНК SHMT2 методом RT-qPCR в нормальных бронхиальных эпителиальных клетках (BEAS-2B) и клеточных линиях LUAD (H1299 и A549). (B) Вестерн-блот-анализ экспрессии белка SHMT2 в клетках BEAS-2B, H129 и A549; в качестве контроля нагрузки использован GAPDH. (C) Денситометрическая количественная оценка экспрессии белка SHMT2, нормализованная по GAPDH, в клетках H1299 и A549 относительно BEAS-2B. (D) Репрезентативные изображения иммуногистохимического анализа (ИГХ, x20) SHMT2 в тканях нормального легкого и аденокарциномы легкого (LUAD) из базы данных HPA с использованием антител HPA020543 и HPA020549. (Е) Валидация эффективности нокдауна SHMT2 с помощью RT-qPCR в клетках H129 и A549, трансфицированных sh-SHMT2 или sh-NC. (F) Вестерн-блот-анализ экспрессии белка SHMT2 после нокдауна SHMT2 в клетках H129 и A549. (G) Денситометрическая количественная оценка уровней белка SHMT2, нормированных по GAPDH, после нокдауна SHMT2. (H) Анализы с использованием набора для подсчета клеток-8 (CCK-8), демонстрирующие влияние нокдауна SHMT2 на пролиферацию клеток H129 и A549. (I) Тесты на заживление ран (x20), демонстрирующие снижение миграционной способности после нокдауна SHMT2 в клетках H129 и A549; на правой панели представлена количественная оценка относительной миграции. (J) Анализ формирования колоний, демонстрирующий снижение клоногенной способности после нокдауна SHMT2 в клетках H129 и A549; на правой панели представлена количественная оценка числа колоний. Данные представлены как среднее значение ± SD по результатам как минимум трех независимых экспериментов. *p < 0.05, **p < 0.01, ***p < 0.001, ****p < 0.001. Сокращения: sh-NC = короткая шпилечная РНК (отрицательный контроль); sh-SHMT2 = короткая шпилечная РНК, нацеленная на SHMT2. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
Дополнительный рисунок 1: Экспрессия SHMT2 обратно коррелирует с прогнозируемой чувствительностью к препаратам в TCGA-LUAD. Прогнозируемый ответ на препараты был определен для образцов TCGA-LUAD и сравнивался между опухолями с низким и высоким уровнем экспрессии SHMT2, определенными по медианному значению. Для каждого соединения на верхней панели показаны групповые различия в IC₅₀50 балл ответа на основе полумаксимальной ингибирующей концентрации (более низкие значения указывают на более высокую прогнозируемую чувствительность), а на нижней панели показана связь между непрерывным уровнем экспрессии SHMT2 и прогнозируемой чувствительностью с аппроксимирующей линией линейной регрессии и 95% доверительным интервалом. Для сравнения групп использовался двухсторонний критерий суммы рангов Уилкоксона, а корреляции представлены в виде коэффициента корреляции Спирмена r с соответствующими p значения (* p < 0.05, ** p < 0.01, *** p < 0.001). (AЦитарабин.B) GDC0810. (C) P207. (D) Иринотекан. (Е) AZD4547. (F) Палбоциклиб. (G) VE821. (H) I-BRD9. (I) Оксалиплатин.Пожалуйста, нажмите здесь, чтобы загрузить этот файл.
Дополнительный рисунок 2: Визуализация распределения показателей фаз клеточного цикла по типам клеток на уровне отдельных клеток с помощью ридж-графиков.Ридж-графики демонстрируют нормированные распределения показателей клеточного цикла для основных типов клеток, включая B-лимфоциты, T-лимфоциты, эпителиальные клетки, макрофаги, моноциты, эндотелиальные клетки и гладкомышечные клетки. (A) Показатели фазы G1. (B) Показатели S-фазы. (C) Показатели фазы G2/M. Различия в форме распределения и положении пика указывают на гетерогенность пролиферативных состояний популяций клеток в микроокружении LUAD.Пожалуйста, нажмите здесь для скачивания этого файла.
Дополнительная таблица 1: Обезличенные клинико-патологические характеристики 23 пациентов с LUAD, включенных в метаболомный анализ парных тканей. Переменные включают номер пациента, пол, возраст, стадию первичной опухоли (T), стадию региональных лимфатических узлов (N) и общую патологическую стадию. Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительная таблица 2: Дифференциальные метаболиты, выявленные в LUAD по сравнению с парными прилегающими нормальными тканями. В таблице приведены номер доступа HMDB, название метаболита, молекулярная формула, показатель VIP, log₂(FC) и значение p для каждого дифференциального метаболита. Сокращения: HMDB = Human Metabolome Database; VIP = variable importance in projection (важность переменной в проекции); FC = fold change (кратность изменения). Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительная таблица 3: Последовательности праймеров, использованных для количественной ПЦР с обратной транскрипцией (ОТ-кПЦР). В таблице указаны целевой ген, направление праймера (прямой или обратный) и последовательность праймера (5′–3′), использованные для анализа экспрессии генов.Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Обсуждение
В данном исследовании использовался последовательный подход, включающий метаболомный поиск, приоритизацию ферментов, транскриптомную интерпретацию, оценку иммунного контекста, локализацию на уровне единичных клеток и функциональную валидацию опухолевых клеток. Анализ выявил метаболическое перестроение, связанное с глицином и SGOC, при LUAD, а также установил связь SHMT2 с неблагоприятными исходами и более низким расчетным эффектом от иммунотерапии. Такая приоритизация является более надежной, чем использование одного омиксного слоя, однако она не устанавливает иммунопричинный механизм.
SHMT2 представляет собой основную точку входа в митохондрии для превращения серина в глицин и генерации одноуглеродных единиц. Анализ TCGA-LUAD выявил опухоле-ассоциированное повышение экспрессии SHMT2 и связал высокую экспрессию с худшей выживаемостью и неблагоприятными клинико-патологическими характеристиками. Эти данные согласуются с исследованиями, связывающими SHMT2 с выживанием, пролиферацией, инвазией и терапевтической резистентностью раковых клеток20,21,22,23. Дополнительные работы связали SHMT2 с эпигенетической регуляцией, что послужило стимулом для разработки селективных ингибиторов одноуглеродных ферментов24,25. Анализ дифференциальной экспрессии и анализ обогащения дополнительно определили SHMT2 как часть скоординированной программы SGOC и клеточного цикла, а не как изолированное изменение на уровне одного гена. Таким образом, соответствие между обогащением метаболических путей и транскрипцией, связанной с SHMT2, усиливает приоритизацию кандидатов, оставаясь при этом корреляционным на разных омиксных уровнях.
Связь между опухолями с высоким уровнем экспрессии SHMT2 и иммунодефицитным контекстом может быть представлена тремя неисключающими друг друга путями. Во-первых, повышенная потребность опухолевых клеток в серине, глицине, связанных с фолатом одноуглеродных единицах и субстратах цикла метионина может изменить распределение питательных веществ и снизить метаболическую пригодность соседних лимфоцитов. Во-вторых, синтез NADPH, глутатиона и нуклеотидов, поддерживаемый SHMT2, может улучшить выживаемость опухолевых клеток в условиях окислительного и нутриентного стресса, тем самым изменяя связанные со стрессом сигналы, выделяемые в микроокружение. В-третьих, поток одноуглеродных единиц и доступность S-аденозилметионина могут влиять на метилирование-зависимые программы как в злокачественных, так и в иммунных клетках26,27,28,29. Эти механизмы биологически правдоподобны, однако проведенный анализ всего объема ткани и отдельных клеток не включал прямое измерение локальных метаболитов, секреции цитокинов или функций иммунных клеток. Следовательно, более низкий прогноз эффективности терапии, предсказанный с помощью TIDE/TCIA для опухолей с высоким уровнем SHMT2, следует интерпретировать как гипотезу, связывающую активность SGOC с иммунодефицитом, а не как доказательство того, что SHMT2 вызывает клиническую резистентность к иммунотерапии.
Анализ отдельных клеток обеспечивает дополнительное структурное разрешение. Анализ общедоступных данных секвенирования РНК отдельных клеток (single-cell RNA-seq) показал изменение клеточного состава в опухолевых тканях по сравнению с нормальными тканями легкого, а также положительную корреляцию между пропорциями B- и T-клеток, что согласуется с координированным адаптивным иммунитетом30. Экспрессия SHMT2 была относительно повышена в B-клетках, но оставалась определяемой и в эпителиальных клетках. Это наблюдение важно, поскольку B-клетки и третичные лимфоидные структуры могут поддерживать презентацию антигена, локальные антительные ответы и ответ на блокаду иммунных контрольных точек18,31,32,33; однако это не позволяет определить ответный подтип B-клеток или установить, является ли экспрессия SHMT2 в B-клетках благоприятным или вредным фактором. Результаты общего секвенирования и анализа отдельных клеток также сошлись на активности клеточного цикла: термины, относящиеся к митозу и сегрегации хромосом, были обогащены в опухолях с высоким уровнем SHMT2, а показатели S- и G2/M-фаз варьировали в зависимости от типа клеток. Поскольку митохондриальный одноуглеродный метаболизм поставляет предшественники нуклеотидов, эти данные подтверждают вероятную связь между активностью SGOC, ассоциированной с SHMT2, и потребностью в пролиферации.
Xi и др. выявили программу TP63-RAC2, которая усиливала эффероцитоз макрофагов, способствовала поляризации по M2-типу и перестраивала среду рака пищевода в сторону иммуносупрессии34, что служит прямым примером взаимодействия опухоли и макрофагов. Jiang и др. связали SATB2 при раке поджелудочной железы с пролиферацией и миграцией опухолевых клеток, а также с изменением цитотоксичности T-клеток35, иллюстрируя одновременное влияние на внутренние свойства опухоли и иммунный ответ. Напротив, Liu и др. показали, что TRIM29 стимулирует развитие глиобластомы посредством деградации NEFL и активации PI3K/AKT36; этот преимущественно внутренний механизм опухоли предостерегает от того, чтобы приписывать любую неблагоприятную иммунную ассоциацию исключительно к цитокиновому сигналингу. Zhai и др. обнаружили опосредованное WDR54 усиление сигналинга NF-κB при гепатоцеллюлярной карциноме37, выделив цитокин-зависимый воспалительный узел, который может связывать злокачественное поведение с сигналами микроокружения. Yin и др. с помощью совместного культивирования и экспериментов in vivo показали, что PLAU взаимодействует с периневральными взаимодействиями, связанными с фактором роста нервов, при раке головы и шеи38, демонстрируя, что растворимые и внеклеточные факторы могут организовывать неиммунный стромальный перекрестный обмен сигналами. Наконец, Liu и др. обобщили двойную, контекстно-зависимую роль цитокин-зависимого сигналинга JAK/STAT: стойкий сигналинг IL-6/STAT3 и IFN-зависимый сигналинг могут способствовать экспрессии PD-L1, формированию супрессивных миелоидных состояний и истощению T-клеток, тогда как своевременный сигналинг также необходим для презентации антигена и противоопухолевого иммунитета39. В совокупности эти исследования дают биологическое обоснование для проверки того, модифицирует ли репрограммирование SGOC состояния цитокинов, макрофагов, стромы или лимфоцитов, однако ни одно из них не устанавливает специфический для SHMT2 цитокиновый контур при LUAD. Таким образом, полученные данные TIDE/TCIA определяют проверяемое направление для изучения механизмов.
Редокс-регуляция обеспечивает особенно значимый механистический контекст. DeNicola и соавт. продемонстрировали на примере немелкоклеточного рака легкого, что NRF2 регулирует PHGDH, PSAT1 и SHMT2 через ATF4, поддерживая синтез глутатиона и нуклеотидов, и связали эту программу с неблагоприятным прогнозом40. Недавно Zhang и соавт. показали, что клетки аденокарциномы пищевода, выжившие после ингибирования HER2, накапливают NRF2; нокдаун NRF2 повышал цитотоксичность лапатиниба, тогда как устойчивая экспрессия NRF2 снижала чувствительность и создавала зависимость от NRF241. В последнем исследовании ингибирование SHMT2 не тестировалось напрямую, однако совокупность этих данных позволяет предположить, что SHMT2 может функционировать как часть поддерживаемой NRF2 редокс- и биосинтетической программы. При LUAD эту гипотезу следует проверить путем стратификации по статусу KEAP1/NFE2L2 и определения того, приводит ли воздействие на SHMT2 к селективному увеличению количества активных форм кислорода или восстановлению чувствительности к терапии в моделях с активным NRF2.
По сравнению с анализом исключительно метаболома или только транскриптома, интегрированный рабочий процесс связывает сигнал метаболитов на уровне ткани с экспрессией генов соответствующих путей, распределением типов клеток и фенотипом при пертурбации. Такой подход улучшает приоритизацию кандидатов и может быть масштабирован путем замены общедоступными транскриптомными когортами или данными секвенирования единичных клеток, однако каждый уровень вносит свои специфические источники вариабельности. Быстрое и равномерное замораживание тканей имеет критическое значение, поскольку задержка после иссечения может изменить содержание низкомолекулярных соединений. Дрейф масс-спектрометрии, нестабильный сигнал полного ионного тока или низкая эффективность перестановок должны стать поводом для рекалибровки, проверки качества сигнала и повторного анализа перед интерпретацией метаболитов. Балковый анализ требует предварительного определения групп и порогов фильтрации, в то время как выводы по единичным клеткам должны быть проверены при различных приемлемых настройках контроля качества и разрешения кластеризации. Валидация in vitro требует использования идентичных пассажей клеток, сопоставимой степени конфлюэнтности, равномерной ширины раны и подтвержденного нокдауна SHMT2 перед проведением анализов фенотипа. Эти контрольные точки повышают воспроизводимость, но не устраняют эффекты, специфичные для когорты, платформы или модели.
Интерпретация результатов ограничена рядом факторов. Когорта для тканевого метаболомного анализа была небольшой, а идентифицированные метаболиты требуют таргетной количественной валидации. Эффективность иммунотерапии и чувствительность к препаратам были выведены на основе моделей транскриптома, а не измерены в когорте пациентов, получавших ингибиторы контрольных точек иммунитета (ICI), или в ходе фармакологического эксперимента. Данные секвенирования единичных клеток указывают на преимущественную экспрессию SHMT2 в B-клетках, однако не позволяют определить подтип B-клеток, их пространственную организацию или SHMT2-зависимую иммунную функцию. Эксперименты in vitro демонстрируют фенотип роста и миграции опухолевых клеток после генетического нокдауна, но не устанавливают цитокин-опосредованный иммунный механизм или терапевтическую безопасность. Будущие исследования должны включать стратификацию опухолей по статусу KEAP1/NFE2L2, количественную оценку потока SGOC и секреции цитокинов, а также сочетание пертурбации SHMT2 с иммунным кокультивированием, пространственным профилированием, исследованиями фармакологической селективности и валидацией in vivo.
Резюмируя, SHMT2 связан с метаболическим ремоделированием SGOC, неблагоприятным прогнозом, пролиферативными транскрипционными программами, иммуно-невыгодным контекстом опухоли и более низкой расчетной чувствительностью к иммунотерапии при LUAD. Анализ единичных клеток выявил относительное обогащение экспрессии SHMT2 в популяциях B-клеток, в то время как нокдаун in vitro привел к снижению пролиферации, миграции и клоногенного роста клеток LUAD. Эти результаты подтверждают, что SHMT2 является перспективным биомаркером для дальнейшей валидации, и создают проверяемую основу для изучения метаболических и иммунных взаимодействий.
Раскрытие информации
Авторы заявляют об отсутствии конфликта интересов.
Благодарности
Авторы благодарят пациентов и их семьи за участие в данном исследовании. Авторы также выражают признательность участникам баз данных TCGA, GEO и HPA за предоставление своих данных в открытом доступе. Данное исследование было профинансировано в рамках Программы ключевых исследований и разработок провинции Цзянси (грант № 20223BBG71009) и Национального фонда естественных наук Китая (гранты № 81860379 и 82160410).
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| клетки A549 | CCL-185 | ATCC | |
| антитела к GAPDH | M1310-2 | Huaan Biotechnology | |
| антитела к SHMT2 | D197021 | Sangon Biotech | |
| клетки BEAS-2B | CRL-9609 | ATCC | |
| Набор для подсчета клеток Cell Counting Kit-8 (CCK-8) | K1018 | APExBIO | |
| База данных: TCGA / GDC | Дата обращения: 18.12.2025 | Национальный институт рака (NCI) | |
| База данных: GEO | Дата обращения: 20.12.2025 | NCBI | |
| База данных: HMDB | Дата обращения: 12.12.2025 | База данных метаболома человека | |
| База данных: KEGG | Дата обращения: 11.12.2025 | Лаборатории Канехисы | |
| База данных: Human Protein Atlas | Атлас белков | ||
| База данных: GDSC | выпуск 2023-12 | Институт Сэнгера | |
| База данных: Ensembl | 2025-12 | EMBL-EBI | |
| База данных: TCIA | Дата обращения: 10.12.2025 | Атлас иммунома моего рака | |
| клетки H1299 (NCI-H1299) | CRL-5803 | ATCC | |
| вторичные антитела, конъюгированные с HRP | D110087 | Sangon Biotech | |
| HiScript II Q Select RT SuperMix | KR116 | Tiangen Biotech | |
| Система LightCycler 480 | 5015278001 | Roche | |
| Обезжиренное молоко | Распространенный лабораторный реагент | БД (или как используется) | |
| ПВДФ-мембрана, 0.22 µm | GVHP00010 (или общепринятый лабораторный реагент) | MilliporeSigma (или согласно использованию) | |
| Пакет R: pRoloc | 1.40.0 | Bioconductor | |
| Пакет R: TCGAbiolinks | 2.26.0 | Bioconductor | |
| Пакет R: survival | 3.4-0 | CRAN | |
| Пакет R: survminer | 0.4.9 | CRAN | |
| Пакет R: timeROC | 1.0.4 | CRAN | |
| Пакет R: DESeq2 | 1.38.1 | Bioconductor | |
| Пакет R: ggplot2 | 3.4.4 | CRAN | |
| Пакет R: pheatmap | 1.0.12 | CRAN | |
| Пакет R: clusterProfiler | 4.6.2 | Bioconductor | |
| Пакет R: org.Hs.eg.db | 3.16.0 | Bioconductor | |
| Пакет R: estimate | 1.0.13 | Bioconductor / GitHub | |
| Пакет R: CIBERSORT | 1 | (автономный R-скрипт) | |
| Пакет R: corrplot | 0.92 | CRAN | |
| Пакет R: TIDE | 0.3.0 | пакет R | |
| Пакет R: oncoPredict | 1.1.1 | CRAN / GitHub | |
| Пакет R: GEOquery | 2.66.0 | Bioconductor | |
| Пакет R: Seurat | 4.3.0 | CRAN | |
| Пакет R: SingleR | 1.10.0 | Bioconductor | |
| Пакет R: scran | 1.26.0 | Bioconductor | |
| Мастер-микс для qPCR с SYBR Green (универсальный) | HY-K0501A | MedChemExpress (MCE) | |
| Универсальный реагент TRIzol | DP424 | Tiangen Biotech |
Ссылки
- Siegel RL, et al. Cancer statistics, 2025. CA Cancer J Clin. 2025;75(1):10-45.
- Lim ZF, Ma PC. Emerging insights of tumor heterogeneity and drug resistance mechanisms in lung cancer targeted therapy. J Hematol Oncol. 2019;12(1):134.
- Wang M, Herbst RS, Boshoff C. Toward personalized treatment approaches for non-small-cell lung cancer. Nat Med. 2021;27:1331-1340.
- Passaro A, et al. Managing resistance to immune checkpoint inhibitors in lung cancer: treatment and novel strategies. J Clin Oncol. 2022;40:598-609.
- Faubert B, Solmonson A, DeBerardinis RJ. Metabolic reprogramming and cancer progression. Science. 2020;368:eaaw5473.
- Wei S, et al. Targeting serine-glycine-one-carbon metabolism as a vulnerability in cancers. Biomark Res. 2023;11:48.
- Kao KC, Vilbois S, Tsai CH, Ho PC. Metabolic communication in the tumour-immune microenvironment. Nat Cell Biol. 2022;24(11):1574-1583.
- Wong C, Qian Y, Yu J. Interplay between epigenetics and metabolism in oncogenesis: mechanisms and therapeutic approaches. Oncogene. 2017;36:3359-3374.
- Xu M, Pei DS. Serine hydroxymethyltransferase 2: a novel target for human cancer therapy. Invest New Drugs. 2021;39:1671-1681.
- Zeng Y, et al. Roles of mitochondrial serine hydroxymethyltransferase 2 (SHMT2) in human carcinogenesis. J Cancer. 2021;12(19):5888-5894.
- Liberati FR, et al. RNA-mediated inhibition of mitochondrial SHMT2 impairs cancer cell proliferation. Cell Death Discov. 2025;11:369.
- Fu R, et al. SHMT proteins: an emerging set of serine hydroxymethyltransferase in cancer. Cell Signal. 2025;135:111977.
- Zhang Y, et al. SHMT2 promotes cell viability and inhibits ROS-dependent, mitochondrial-mediated apoptosis via the intrinsic signaling pathway in bladder cancer cells. Cancer Gene Ther. 2022;29(10):1514-1527.
- Wens M, et al. Metabolic control of BRISC-SHMT2 assembly regulates immune signalling. Nature. 2019;570:460-464.
- Ivashkiv LB. IFNγ: signalling, epigenetics and roles in immunity, metabolism, disease and cancer immunotherapy. Nat Rev Immunol. 2018;18:545-558.
- De Martino M, Rathmell JC, Galluzzi L, Vanpouille-Box C. Cancer cell metabolism and antitumour immunity. Nat Rev Immunol. 2024;24:654-669.
- Qi Y, et al. One-carbon metabolism shapes T cell immunity in cancer. Trends Endocrinol Metab. 2024;35:961-974.
- Huang D, et al. The single-cell immunogenomic landscape of B and plasma cells in early-stage lung adenocarcinoma. Cancer Discov. 2022;12:2545-2563.
- Dolgalev I, et al. Inflammation in the tumor-adjacent lung as a predictor of clinical outcome in lung adenocarcinoma. Nat Commun. 2023;14:6479.
- Han T, et al. Phosphorylated SHMT2 regulates oncogenesis through m6A modification in lung adenocarcinoma. Adv Sci (Weinh). 2024;11:e2307834.
- Lee GY, et al. Comparative oncogenomics identifies PSMB4 and SHMT2 as potential cancer driver genes. Cancer Res. 2014;74:3114-3126.
- Bernhardt S, et al. Proteomic profiling of breast cancer metabolism identifies SHMT2 and ASCT2 as prognostic factors. Breast Cancer Res. 2017;19:112.
- Yang G, Tan J, Guo J, Wu Z, Zhan Q. Exosome-mediated transfer of circ_0063526 enhances cisplatin resistance in gastric cancer cells via regulating the miR-449a/SHMT2 axis. Anticancer Drugs. 2022;33(10):1047-1057.
- Parsa S, et al. The serine hydroxymethyltransferase-2 (SHMT2) initiates lymphoma development through epigenetic tumor suppressor silencing. Nat Cancer. 2020;1:653-664.
- Cuthbertson CR, et al. A review of small-molecule inhibitors of one-carbon enzymes: SHMT2 and MTHFD2 in the spotlight. ACS Pharmacol Transl Sci. 2021;4:624-646.
- Reina-Campos M, Scharping NE, Goldrath AW. CD8+ T cell metabolism in infection and cancer. Nat Rev Immunol. 2021;21:718-738.
- Bacigalupa ZA, Landis MD, Rathmell JC. Nutrient inputs and social metabolic control of T cell fate. Cell Metab. 2024;36:10-20.
- Li S, et al. Metabolic regulation of immunity in the tumor microenvironment. Cell Rep. 2025;44(11):116463.
- Ouyang Y, et al. S-adenosylmethionine: a metabolite critical to the regulation of autophagy. Cell Prolif. 2020;53(11):e12891.
- Wang R, et al. The interaction of innate immune and adaptive immune system. MedComm. 2024;5(10):e714.
- Teillaud JL, et al. Tertiary lymphoid structures in anticancer immunity. Nat Rev Cancer. 2024;24:629-646.
- Fridman WH, et al. B cells and tertiary lymphoid structures as determinants of tumour immune contexture and clinical outcome. Nat Rev Clin Oncol. 2022;19:441-457.
- Lauss M, Donia M, Svane IM, Jönsson G. B cells and tertiary lymphoid structures: friends or foes in cancer immunotherapy? Clin Cancer Res. 2022;28(9):1751-1758.
- Xi Y, et al. Macrophage efferocytosis mediated by the TP63-RAC2 pathway promotes immunosuppressive remodeling in esophageal cancer. Cell Rep Med. 2026;7(1):102529.
- Jiang G, et al. SATB2 plays a critical role in pancreatic cancer cell proliferation, migration and T cell cytotoxicity. Cancer Genet. 2025;296-297:53-64.
- Liu Y, et al. TRIM29 promotes glioblastoma progression via ubiquitinating NEFL and activating the PI3K/AKT signaling pathway. Cancer Genet. 2025;296-297:88-99.
- Zhai H, et al. WDR54 enhances NF-κB signaling to promote progression of hepatocellular carcinoma. Cancer Genet. 2025;298-299:302-314.
- Yin H, et al. PLAU serves as a prognostic biomarker correlated with perineural invasion in HNSCC. Cancer Genet. 2025;294-295:145-155.
- Liu Z, et al. JAK inhibition in PD-1 immunotherapy and tumor microenvironment. Front Immunol. 2026;17:1790936.
- DeNicola GM, et al. NRF2 regulates serine biosynthesis in non-small cell lung cancer. Nat Genet. 2015;47(12):1475-1481.
- Zhang W, et al. NRF2-mediated persistent adaptation of oesophageal adenocarcinoma cells to HER2 inhibition. Oncogene. 2025;44(33):2929-2941.