В данном исследовании использовались сетевая фармакология и моделирование молекулярной динамики для изучения молекулярных механизмов и путей воздействия плюмбагина при лечении рака предстательной железы. Результаты показывают, что плюмбагин может стабильно связываться с AKT1, ESR1, BCL2, EGFR, TNF, MAPK3, HSP90AA1, SRC и PPARG.
Исследовательская статья
Вычислительный анализ воздействия плюмбагина на рак предстательной железы с использованием сетевой фармакологии и молекулярно-динамического моделирования
29 просмотров
⸱
11 сентября 2026 г.
* These authors contributed equally
В этой статье
Краткое содержание
Аннотация
Рак предстательной железы является одной из основных причин смертности от онкологических заболеваний среди мужчин. Поскольку у многих пациентов диагноз ставится только после того, как заболевание переходит в местнораспространенную или метастатическую стадию, радикальное лечение часто становится невозможным. В настоящем исследовании мы применили комплексный вычислительный подход, сочетающий сетевую фармакологию, молекулярный докинг и моделирование молекулярной динамики, чтобы изучить потенциальные молекулярные механизмы, лежащие в основе терапевтического действия плюмбагина при раке предстательной железы. Потенциальные терапевтические мишени были определены с помощью интегрированного анализа баз данных, после чего были построены сети белок-белковых взаимодействий, проведен функциональный анализ обогащения, молекулярный докинг и моделирование молекулярной динамики для оценки стабильности взаимодействий белок-лиганд. В результате нашего вычислительного анализа было установлено, что плюмбагин может образовывать стабильные взаимодействия с несколькими ключевыми мишенями, включая серин/треониновую киназу 1 AKT (AKT1) и рецептор эстрогена 1 (рецептор эстрогена альфа (ESR1), регулятор апоптоза BCL2 (BCL2), рецептор эпидермального фактора роста (EGFR), фактор некроза опухоли (ФНО), митоген-активируемая протеинкиназа 3 (MAPK3), белок теплового шока 90 альфа, семейство класс A, член 1 (HSP90AA1), протоонкоген SRC, нерецепторная тирозинкиназа (SRC) и гамма-рецептор, активируемый пролифератором пероксисом (PPARG), что указывает на его потенциал модулировать ключевые пути, участвующие в прогрессировании рака предстательной железы. Эти in silico полученные результаты позволяют по-новому взглянуть на возможные молекулярные механизмы действия плюмбагина и служат обоснованием для дальнейшей экспериментальной проверки. Тем не менее, дальнейшие in vitro и in vivo необходимы исследования для подтверждения его функциональной активности и терапевтической эффективности.
Введение
Рак предстательной железы гетерогенен: его клинические проявления варьируются от бессимптомных очагов, выявленных при скрининге, которые могут никогда не прогрессировать, до агрессивных злокачественных новообразований; данное заболевание является одной из основных причин заболеваемости и смертности во всем мире1,2. По прогнозам, в глобальном масштабе число новых случаев рака предстательной железы удвоится с 1,4 млн в 2020 году до 2,9 млн к 2040 году, а ежегодное число смертей вырастет с 375 0 в 2020 году до приблизительно 70 00 к 2040 году3. Будучи изначально диагностированным как андрогензависимая злокачественная опухоль, рак предстательной железы поддается лечению с помощью андрогендепривационной терапии. Тем не менее, несмотря на эффективный первичный ответ, болезнь неизбежно прогрессирует до андрогеннезависимой формы. Пациенты с гормонарефрактерным раком предстательной железы подвержены значительно повышенному риску развития костных метастазов, что приводит к клинически значимым поражениям скелета4,5,6,7. Кроме того, хотя рак предстательной железы на ранних стадиях излечим с помощью хирургического или лучевого лечения, у многих пациентов на момент диагностики уже наблюдается местнораспространенная или метастатическая форма заболевания, для которой в настоящее время не существует методов радикального лечения8,9. Таким образом, существует острая необходимость в разработке эффективных и высокоселективных средств для профилактики и/или лечения метастазирования рака предстательной железы.
Было показано, что различные натуральные экстракты, такие как ликопин, соевые продукты, зеленый чай, фенольные соединения граната, апигенин, а также витамины D и E, эффективно предотвращают развитие рака предстательной железы10,1,12,13. Плюмбагин (PLB), природное соединение класса нафтохинонов, широко встречающееся в природе и являющееся основным компонентом Plumbago zeylanica, обладает противоинфекционными14, противовоспалительными15, антиатеросклеротическими16 и противоопухолевыми17,18 свойствами. Исследования продемонстрировали, что PLB оказывает противоопухолевое действие на различные типы раковых клеток, включая рак молочной железы, немелкоклеточный рак легкого, рак печени, рак поджелудочной железы, колоректальный рак, рак яичников, рак предстательной железы, глиому и ретинобластому19,20,21. Эксперименты in vitro показали, что PLB ингибирует пролиферацию клеток рака предстательной железы2,23. PLB также регулирует экспрессию микробелков, что, в свою очередь, влияет на множество клеточных процессов в клетках рака предстательной железы, включая контроль клеточного цикла, апоптоз, аутофагию и эпителиально-мезенхимальный переход24,25. Кроме того, PLB замедляет рост андроген-независимых раковых клеток в моделях подкожных ксенотрансплантатов у мышей2,26.
Несмотря на то, что многочисленные исследования показали, что PLB подавляет пролиферацию и инвазию клеток рака предстательной железы, в настоящее время отсутствует систематическое исследование мишеней и путей, посредством которых PLB воздействует на эти клетки. С помощью сетевой фармакологии, молекулярного докинга и симуляций молекулярной динамики в данном исследовании была предпринята попытка выяснить потенциальные мишени и пути, лежащие в основе терапевтического эффекта PLB при раке предстательной железы.
Протокол
Предсказание и скрининг потенциальных мишеней PLB
Информация о химической структуре PLB была получена из базы данных PubChem (https://pubchem.ncbi.nlm.nih.gov/). Молекулярные мишени PLB были предсказаны на основе лиганд-ориентированного двухмерного и трехмерного сходства с использованием баз данных SwissTarget (https://swisstargetprediction.ch/index.php), SEA (https://sea.bkslab.org/), TargetNet (http://targetnet.scbdd.com/calcnet/index/), PharmMapper (https://www.lilab-ecust.cn/pharmmapper/index.html), Comparative Toxicogenomics Database (CTD, https://ctdbase.org/), Traditional Chinese Medicine Systems Pharmacology Database and Analysis Platform (TCMSP, https://www.tcmsp-e.com/index.php) и HERB (http://herb.ac.cn/). Для обеспечения надежности и воспроизводимости данных применялись следующие специфические для каждой базы данных пороги фильтрации: в TCMSP были сохранены мишени с биодоступностью при пероральном приеме (OB) ≥ 30% и показателем лекарственно-подобности (DL) ≥ 0.18; в SwissTargetPrediction были оставлены записи с вероятностью предсказания ≥ 0.5; в PharmMapper были отобраны мишени с нормализованным показателем соответствия (fit score) ≥ 4.0; в SEA в качестве статистически значимых были включены только мишени с E-value < 0.01; в TargetNet были сохранены мишени с вероятностью предсказания > 0.5; в CTD были включены только мишени с курируемыми доказательствами (выведенными из взаимодействий химическое вещество–ген) и баллом взаимодействия > 0.3; в HERB были сохранены мишени с баллом подтверждения в литературе ≥ 0.4. Все идентификаторы белков, полученные из вышеуказанных баз данных, были приведены к официальным символам генов человека HGNC с использованием базы данных UniProt (https://www.uniprot.org/) с ограничением по виду Homo sapiens. После удаления дубликатов из всех источников для последующего анализа было получено в общей сложности 50 уникальных мишеней, связанных с PLB.
Поиск генов, ассоциированных с раком предстательной железы
Гены, связанные с раком предстательной железы, были получены из баз данных GeneCards (https://www.GeneCardss.org/), DrugBank (https://go.drugbank.com/), CTD и HERB. Для обеспечения достоверности данных применялись специфические для каждой базы критерии включения. В GeneCards были отобраны гены с показателем релевантности ≥ 0.5, так как этот порог позволяет выделить гены с умеренными или сильными доказательствами их связи с искомым заболеванием. В DrugBank были включены только записи, имеющие экспериментальное подтверждение (например, одобренные FDA или исследуемые препараты для лечения рака предстательной железы), и исключены вычислительно предсказанные или теоретические взаимодействия. В CTD были сохранены только записи с уровнями доказательности, классифицируемыми как «маркер» или «механизм», на основе курируемых взаимодействий «химическое вещество — ген — болезнь». В HERB были включены мишени с подтвержденным литературой показателем достоверности ≥ 0.4 для обеспечения достаточных экспериментальных данных или результатов текстового анализа. Все символы генов были приведены к номенклатуре HGNC с помощью базы данных UniProt (https://www.uniprot.org/), вид был ограничен Homo sapiens, а дубликаты были удалены, что позволило получить 1 19 уникальных мишеней, связанных с раком предстательной железы, для последующего анализа.
Идентификация перекрывающихся мишеней и коррекция аннотаций конфликтов
Пересечение 50 мишеней PLB и 1 19 мишеней рака предстательной железы было выполнено с использованием стандартизированных символов HGNC в программе Venny 2.1 (https://bioinfogp.cnb.csic.es/tools/venny/index.html), в результате чего было выявлено 151 перекрывающихся потенциальных мишень. Для разрешения конфликтов аннотаций между базами данных был внедрен трехэтапный конвейер коррекции: (i) несоответствия псевдонимов генов были унифицированы с помощью инструмента сопоставления ID UniProt; (ii) избыточные паралогичные гены были исключены с использованием CD‑HIT с порогом сходства последовательностей > 0.4; и (iii) противоречивые функциональные аннотации сохранялись только в том случае, если они были подтверждены как минимум двумя независимыми базами данных, в то время как уникальные конфликтующие описания из одного источника отбраковывались.
Построение сети и идентификация хабов
Сеть белок-белковых взаимодействий (PPI) была построена путем ввода перекрывающихся мишеней в базу данных STRING (версия 12.0, https://cn.string-db.org/) с ограничением поиска по виду Homo sapiens. Для обеспечения высокой надежности были сохранены только те взаимодействия, совокупный показатель достоверности которых составлял ≥ 0.70; все узлы, не имеющие связей, были исключены из сети. Построенная PPI-сеть была визуализирована и проанализирована с точки зрения топологии в программе Cytoscape (версия 3.10.2), после чего с помощью плагина cytoHubba были определены хабовые гены, при этом в качестве основного алгоритма ранжирования использовался метод MCC (Maximal Clique Centrality), а в качестве вспомогательной метрики перекрестной проверки — Degree.
Анализ функционального обогащения
Функциональная аннотация согласно Gene Ontology (GO) и анализ обогащения путей Kyoto Encyclopedia of Genes and Genomes (KEGG) для дифференциально экспрессируемых генов были выполнены с использованием Bioinformatics Online Analysis Platform (https://www.bioinformatics.com.cn, дата последнего доступа: 4 мая 2026 г.). Платформа использует точный тест Фишера для расчета необработанных P-значений, а для коррекции множественного тестирования с целью контроля частоты ложноположительных результатов (FDR) применялся метод Бенджамини — Хохберга (BH). Термины GO (биологический процесс, клеточный компонент и молекулярная функция) и пути KEGG со значением FDR < 0.05 считались статистически значимо обогащенными.
Молекулярный докинг
Кристаллические структуры выбранных белков-мишеней, представляющие активные конформации, были получены из RCSB Protein Data Bank (https://www.rcsb.org/). Подготовка белков проводилась в программе Discovery Studio и включала удаление молекул воды и гетероатомов, удаление избыточных цепей, восстановление недостающих остатков, добавление атомов водорода при pH 7.4, присвоение зарядов Гастейгера и минимизацию энергии. Связывающий карман был определен на основе координат совместно кристаллизованного лиганда с использованием сетки, охватывающей все критические остатки, участвующие в связывании субстрата. Молекулярный докинг PLB выполнялся с помощью веб-сервера SwissDock (http://www.swissdock.ch/) с использованием модуля Attracting Cavities. Для оценки аффинности рассчитывались свободные энергии связывания, и конформация с наименьшей энергией для каждой мишени была выбрана в качестве окончательной позы докинга. Результаты моделирования молекулярного докинга были визуализированы для их валидации.
Моделирование молекулярной динамики
Моделирование молекулярной динамики (МД) проводили с помощью GROMACS 202.2. Для описания белка использовали силовое поле Amber14SB, сольватация системы осуществлялась в воде TIP3P. Параметры плюмбагина, включая частичные заряды AM1-BCC и типы атомов GAFF2, были сгенерированы с помощью Antechamber с последующим преобразованием топологии с помощью ACPYPE и назначением параметров ионов по Юнгу-Читему. Каждый комплекс белок-лиганд помещали в усеченный додекаэдрический расчетный бокс с минимальным расстоянием от белка до границы бокса 1.2 nm, сольватировали молекулами воды TIP3P и нейтрализовали добавлением 0.15 M Na⁺/Cl⁻. После минимизации энергии методом наискорейшего спуска (Fmax < 1,00 kJ·mol⁻1·nm⁻1) систему подвергали последовательному NVT- и NPT-уравновешиванию по 20 ps каждое при 298 K. Затем проводили продуктивное моделирование в течение 20 ns в условиях NPT с шагом интегрирования 2 fs, используя схему обрезания Verlet. Дальнодействующие электростатические взаимодействия рассчитывали методом PME (particle mesh Ewald), при этом для электростатических взаимодействий и взаимодействий Ван-дер-Ваальса использовали радиус обрезания 1.2 nm. Для ограничения связей, содержащих водород, применяли алгоритм LINCS. Температуру поддерживали на уровне 298 K с помощью термостата Нозе-Гувера, а давление — на уровне 1 bar с помощью баростата Парринелло-Рамана. Координаты сохраняли каждые 10 ps для последующего анализа. Анализ траекторий и визуализацию выполняли с помощью утилит GROMACS, VMD и PyMOL, а расчеты свободной энергии связывания методом MM-PBSA проводили с помощью gmx_MMPBSA в соответствующих случаях.
Оценка уравновешивания траекторий молекулярной динамики и протокол расчета свободной энергии методом MM-PBSA
Для каждого комплекса белок–плумбагин с помощью GROMACS было проведено полноатомное производство молекулярно-динамического моделирования продолжительностью 20 ns. Временная точка 10 ns была установлена в качестве границы уравновешивания: сегмент 0–10 ns был определен как фаза конформационной релаксации, в течение которой остов белка и карман связывания лиганда подвергались непрерывным конформационным перестройкам; сегмент 10–20 ns был идентифицирован как термодинамически стабильное плато, о чем свидетельствовало отсутствие однонаправленного дрифта RMSD, радиуса гирации (Rg), порезидульного RMSF, скрытой SASA лиганда, межмолекулярных водородных связей и энергий взаимодействия лиганда с рецептором, которые демонстрировали лишь незначительные стационарные флуктуации. Все количественные кинетические параметры и свободные энергии связывания MM/PBSA рассчитывались исключительно на основе равновесной фазы 100–200 ns, из которой кадры равномерно извлекались каждые 10 ps, что дало 1 0 равновесных снимков для каждой системы в качестве входных данных для gmx_MMPBSA. Первые 10 ns траекторий релаксации были отсечены, чтобы исключить влияние конформационного дрифта на расчеты свободной энергии.
Прогностический анализ целевых генов при раке предстательной железы
Прогностический анализ проводился с использованием наборов данных по раку предстательной железы из The Cancer Genome Atlas (TCGA). Данные секвенирования РНК (STAR-counts) и соответствующая клиническая информация были получены с портала Genomic Data Commons (https://portal.gdc.cancer.gov). Количество экспрессированных генов было переведено в единицы транскриптов на миллион (TPM) и нормализовано с использованием log2(TPM + 1). После исключения образцов с неполной клинической информацией в анализ было включено 498 случаев. Медианный уровень экспрессии каждого гена использовался для разделения пациентов на группы с высокой и низкой экспрессией. Для оценки общей выживаемости (OS) для SRC и выживаемости без прогрессирования (PFS) для MAPK3 был проведен анализ выживаемости Каплана-Мейера с использованием лог-рангового критерия и одномерной регрессии пропорциональных рисков Кокса; были рассчитаны отношения рисков (HRs) и 95% доверительные интервалы (CIs). Прогностическая эффективность дополнительно оценивалась путем построения временно-зависимых рабочих характеристик приемника (ROC-кривых) для периодов в 1, 3 и 5 лет. Статистический анализ выполнялся в программе R версии 4.0.3, при этом значение P < 0.05 считалось статистически значимым.
Результаты
Результаты прогнозирования мишеней PLB и рака предстательной железы
PubChem CID PLB — 10205; название по IUPAC: 5-гидрокси-2-метилнафталин-1,4-дион, SMILES: CC1=CC(=O)C2=C(C1=O)C=CC=C2O, InChIKey: VCMMXZQDRFWYSE-UHFFFAOYSA-N, InChI: InChI=1S/C11H8O3/c1-6-5-9(13)10-7(11(6)14)3-2-4-8(10)12/h2-5,12H,1H3, молекулярная масса: 188,18, молекулярная формула: C11H8O3, номер CAS: 481-42-5. После удаления дубликатов в данном исследовании с помощью баз данных SwissTarget, SEA, TargetNet, PharmMapper, CTD, TCMSP и HERB было предсказано 500 потенциальных мишеней PLB (Дополнительная таблица S1). После удаления дубликатов с помощью баз данных GeneCards, DrugBank, TCMSP, CTD и HERB было предсказано 1 199 потенциальных мишеней для рака предстательной железы (Дополнительная таблица S2).
Механизм действия PLB при раке предстательной железы, предсказанный с помощью сетевой фармакологии
Для анализа пересечения мишеней была построена диаграмма Венна, которая выявила 151 общую мишень (Рисунок 1). Впоследствии для этих пересекающихся генов была построена сеть белок-белковых взаимодействий (PPI) (Рисунок 2) и визуализирована по степени узлов, где более темный красный цвет и больший размер узла указывают на более высокую степень (Рисунок 3). С помощью программного обеспечения Cytoscape были проанализированы основные гены-мишени (топ-20) среди пересекающихся генов; при этом TP53 продемонстрировал самую высокую степень — 112, за ним следует AKT1 со степенью 111 (Рисунок 4).
Впоследствии пересекающиеся гены были загружены в базу данных DAVID для анализа обогащения генных онтологий (GO) и путей KEGG. Анализ GO выявил 4 156 биологических процессов (Дополнительная таблица S3), 292 клеточных компонента (Дополнительная таблица S4) и 562 молекулярные функции (Дополнительная таблица S5). 10 наиболее значимо обогащенных терминов в каждой категории были визуализированы (Рисунок 5A-C). Согласно анализу KEGG, значимо обогащены были 187 путей (Дополнительная таблица S6), 10 наиболее релевантных из которых представлены на Рисунке 5D. К ним относятся пути, связанные с раком предстательной железы, гепатитом B, протеогликанами при раке, резистентностью к ингибиторам тирозинкиназы EGFR, липидным обменом и атеросклерозом, инфекцией цитомегаловирусом человека, колоректальным раком, эндокринной резистентностью, путем AGE-RAGE при диабетических осложнениях и сигнальным путем PI3K-Akt.
Основные мишени PLB при лечении рака предстательной железы
Сетевой фармакологический анализ позволил выявить 151 общий ген между PLB и раком предстательной железы. На основании сети белок-белковых взаимодействий (PPI) мы отобрали 20 основных потенциальных генов-мишеней с наивысшим показателем связности: белок опухолевого подавления p53 (TP53), серин-треониновая протеинкиназа AKT 1 (AKT1), сигнальный трансдуктор и активатор транскрипции 3 (STAT3), рецептор эстрогена 1 (ESR1), регулятор апоптоза BCL2 (BCL2), интерлейкин 6 (ИЛ-6), рецептор эпидермального фактора роста (EGFR (рецептор эпидермального фактора роста)), бета-катенин 1 (CTNNB1), фактор некроза опухоли (ФНО), гомолог фосфатазы и тензина (PTEN), каспаза 3 (CASP3), митоген-активируемая протеинкиназа 3 (MAPK3), белок теплового шока 90 альфа, семейство A, член 1 (HSP90AA1), протоонкоген SRC, нерецепторная тирозинкиназа (SRC), гамма-рецептор, активируемый пролифератором пероксисом (PPARG), киназа мишени рапамицина (МТОР (MTOR), белок теплового шока 90 альфа, семейство B, член 1 (HSP90AB1)), гликогенсинтаза-киназа 3 бета (GSK3B), простагландин-эндопероксидсинтаза 2 (PTGS2)), и матриксной металлопептидазе 9 (ММП-9). TP53 продемонстрировал наивысшую связность, за которым следовал AKT1что позволяет предположить, что они могут быть ключевыми мишенями.
Для выбора окончательных мишеней для докинга и молекулярно-динамического моделирования мы отдавали приоритет генам, кодирующим проонкогенные белки с доступными кристаллическими структурами и определенными сайтами связывания, включая AKT1, STAT3, ESR1, BCL2, IL6, EGFR, TNF, MAPK3, HSP90AA1, SRC, PPARG, MTOR, HSP90AB1, GSK3B, PTGS2 и MMP9. И наоборот, гены супрессоров опухолей, включая TP53, были исключены, так как они не соответствуют терапевтической стратегии ингибирования мишени.
Следовательно, были проведены дальнейшие исследования молекулярного докинга. Результаты показали, что PLB взаимодействует с AKT1 через TRP80, SER205, LEU210, LEU264 и LYS268 с энергией связывания (BE) -7,764 kcal/mol27; PLB взаимодействует с STAT3 через GLU612, SER613, ARG609 и PRO639 с BE -5,149 kcal/mol28; PLB взаимодействует с ESR1 через LEU346, PHE404, ALA350, LEU387 и LEU391 с BE -7,165 kcal/mol29; PLB взаимодействует с BCL2 через LYS53, PHE54 и HIS50 с BE -5,564 kcal/mol30; PLB взаимодействует с IL6 через GLN28, LYS27 и ARG24 с BE -4,462 kcal/mol31; PLB взаимодействует с EGFR через LEU778, LEU707 и LEU789 с BE -6,255 kcal/mol32; PLB взаимодействует с TNF через TYR59, GLY121 и LEU120 с BE -6,570 kcal/mol33; PLB взаимодействует с MAPK3 через ALA69, VAL56, ILE48, LEU124, MET125 и LEU173 с BE -7,369 kcal/mol34; PLB взаимодействует с HSP90AA1 через LEU107, PHE138, TYR139 и TRP162 с BE -8,947 kcal/mol35; PLB взаимодействует с SRC через LEU276, TYR343, MET344, ALA296, LEU396 и VAL284 с BE -7,469 kcal/mol36; PLB взаимодействует с PPARG через LEU330, ARG288, ILE326, MET329 и ALA292 с BE -6,538 kcal/mol37; PLB взаимодействует с MTOR через ALA2073, SER2069 и HIS2024 с BE -4,672 kcal/mol38; PLB взаимодействует с HSP90AB1 через TYR134, PHE133, TRP157 и LEU102 с BE -6,928 kcal/mol39; PLB взаимодействует с GSK3B через VAL70, VAL135 и ALA83 с BE -6,799 kcal/mol40; PLB взаимодействует с PTGS2 через VAL315, THR561, ARG311 и ILE558 с BE -5,081 kcal/mol41; PLB взаимодействует с MMP9 через LEU187, ALA189, MET247, TYR248, LEU188, HIS226 и VAL223 с BE -7,101 kcal/mol42. За исключением IL6 и MTOR, энергия связывания PLB с остальными белками была ниже -5 kcal/mol, что указывает на возможность стабильного связывания PLB с этими белками (Таблица 1).
Впоследствии было проведено моделирование методом молекулярной динамики для дальнейшего анализа взаимодействий PLB с данными белками-мишенями и проверки стабильности связывания. Несмотря на то, что некоторые соединения имели высокие показатели при докинге, предварительное моделирование молекулярной динамики выявило ранний дрейф лиганда или серьезные конформационные искажения в нескольких системах. Следовательно, мы исключили эти нестабильные комплексы и оставили только те, которые сохраняли стабильные позы связывания после начальной релаксации, выбрав их в качестве кандидатов для продолжительного моделирования молекулярной динамики. В итоге были отобраны следующие мишени: AKT1 (Supplementary File 1—Supplementary Figure S1), ESR1 (Supplementary File 1—Supplementary Figure S2), BCL2 (Supplementary File 1—Supplementary Figure S3), EGFR (Supplementary File 1—Supplementary Figure S4), TNF (Supplementary File 1—Supplementary Figure S5), MAPK3 (Supplementary File 1—Supplementary Figure S6), HSP90AA1 (Supplementary File 1—Supplementary Figure S7), SRC (Supplementary File 1—Supplementary Figure S8) и PPARG (Supplementary File 1—Supplementary Figure S9). После 200 ns моделирования значения RMSD комплексных структур PLB с AKT1, ESR1, BCL2, EGFR, TNF, MAPK3, HSP90AA1, SRC и PPARG постепенно стабилизировались в ходе симуляции (см. Supplementary File 1—Supplementary Figure S1-S9, панель A). Одновременно с этим такие показатели, как Rg (см. Supplementary File 1—Supplementary Figure S1-S9, панель B), среднеквадратичные флуктуации (RMSF) (см. Supplementary File 1—Supplementary Figure S1-S9, панель C), расстояние между белком и сайтом связывания лиганда (Dock site-ligand) (см. Supplementary File 1—Supplementary Figure S1-S9, панель D), площадь поверхности, доступной для растворителя, которая стала скрытой (Buried SASA) (см. Supplementary File 1—Supplementary Figure S1-S9, панель E), и суперпозиция конформаций связывания (см. Supplementary File 1—Supplementary Figure S1-S9, панель F), постепенно стабилизировались по мере прогрессирования моделирования. Эти результаты свидетельствуют о том, что комплексы белок-лиганд сохраняли структурную стабильность на протяжении всего моделирования. RMSD, Rg, RMSF, расстояние белок-лиганд и Buried SASA постепенно достигли стабильных значений, что указывает на компактный комплекс с ограниченными атомными флуктуациями и устойчивым пребыванием лиганда в связывающем кармане. Кроме того, площадь контакта между плюмбагином и белком оставалась относительно постоянной с течением времени. Ван-дер-ваальсовы, гидрофобные и электростатические взаимодействия также демонстрировали стабильные профили на протяжении всего моделирования, что дополнительно подтверждает общую стабильность комплексов белок-плюмбагин (см. Supplementary File 1—Supplementary Figure S1-S9, панель G).
С учетом энергии сольватации и на основе комплексной оценки RMSD, Rg, расстояния, скрытой SASA и энергий взаимодействия были выбраны траектории комплексов в стабильном состоянии для расчета членов, связанных с BE, с использованием метода MM-PBSA (Molecular Mechanics-Poisson Boltzmann Surface Area). Для обеспечения достоверности представленных рейтингов аффинности все значения свободной энергии связывания указаны как среднее ± SEM, рассчитанное по снимкам, извлеченным из уравновешенных траекторий MD (Таблица 2). Среди них AKT1 продемонстрировал наиболее отрицательную свободную энергию связывания, за которым следуют ESR1, HSP90AA1, SRC и PPARG, что позволяет предположить, что PLB может стабильно связываться с этими белками-мишенями.
Кроме того, в данном исследовании были проанализированы взаимодействующие остатки между PLB и мишенями (подробно описаны в Таблице 3), в результате чего было установлено, что PLB стабильно связывается с белками-мишенями преимущественно за счет водородных связей (см. Дополнительный файл 1 — Дополнительные рисунки S1-S9, панель I), гидрофобных взаимодействий и сил Ван-дер-Ваальса. Анализ вклада энергий связывания аминокислот (см. Дополнительный файл 1 — Дополнительные рисунки S1-S9, панель H) и взаимодействий белок-PLB показал следующее: для AKT1 ключевыми аминокислотами для связывания PLB являются TRP80 и LEU264, при этом основную роль играют силы Ван-дер-Ваальса, а электростатические и гидрофобные взаимодействия играют второстепенную роль; для ESR1 ключевыми аминокислотами являются LEU346 и LEU525, при этом основную роль играют силы Ван-дер-Ваальса, вторичную роль — гидрофобные взаимодействия, а вспомогательную — электростатические взаимодействия; для BCL2 ключевыми аминокислотами являются TYR108 и PHE104, при этом основную роль играют силы Ван-дер-Ваальса, а электростатические и гидрофобные взаимодействия играют второстепенную роль; для EGFR ключевыми аминокислотами являются MET1002 и TYR998, при этом основную роль играют силы Ван-дер-Ваальса, а электростатические и гидрофобные взаимодействия играют второстепенную роль; для TNF-α ключевыми аминокислотами являются TYR59 и HIE15, при этом основную роль играют силы Ван-дер-Ваальса, а электростатические и гидрофобные взаимодействия играют второстепенную роль; для MAPK3 ключевыми аминокислотами являются TYR53 и LEU173, при этом основную роль играют силы Ван-дер-Ваальса, а электростатические и гидрофобные взаимодействия играют второстепенную роль; для HSP90AA1 ключевыми аминокислотами являются PHE138 и LEU107, при этом основную роль играют силы Ван-дер-Ваальса, а электростатические и гидрофобные взаимодействия играют второстепенную роль; для SRC ключевыми аминокислотами являются LEU276 и LEU396, при этом основную роль играют силы Ван-дер-Ваальса, а электростатические и гидрофобные взаимодействия играют второстепенную роль; для PPARG ключевыми аминокислотами являются LEU330 и ILE326, при этом основную роль играют силы Ван-дер-Ваальса, а электростатические и гидрофобные взаимодействия играют второстепенную роль.
Все использованные в данном исследовании кристаллические структуры белков, за исключением BCL2, были получены путем совместной кристаллизации с известными ингибиторами. Чтобы дополнительно подтвердить надежность нашего метода докинга и связывающий потенциал PLB, мы определили активные центры связывания на основе исходных сайтов связывания ингибиторов. Как PLB, так и соответствующие нативные ингибиторы были подвергнуты докингу в одни и те же карманы, после чего были рассчитаны и сравнены их свободные энергии связывания. Для каждой мишени при сравнении энергий учитывались только те позы докинга нативного ингибитора, которые максимально точно воспроизводили кристаллографическую конформацию связывания. Как показано в Таблица 4свободная энергия связывания PLB при докинге была сопоставима с энергией связывания соответствующих нативных ингибиторов по всем восьми мишеням, что позволяет предположить, что PLB обладает схожим сродством к связыванию в карманах с этими валидированными активными соединениями. Данный результат указывает на то, что PLB, как новая молекула-скаффолд, может служить перспективным химическим шаблоном для разработки новых противоопухолевых средств для терапии рака предстательной железы, воздействующих на эти онкогенные узлы.
Прогностическая значимость целевых генов при раке предстательной железы
В качестве репрезентативных мишеней мы оценили прогностическую значимость SRC и MAPK3 при раке предстательной железы, используя наборы данных TCGA. Для SRC анализ распределения градиента показал, что более высокая экспрессия SRC была связана с увеличением смертности и значительным сокращением времени выживаемости при последующем наблюдении (Рисунок 6A). Анализ выживаемости по методу Каплана-Мейера (Рисунок 6B) подтвердил, что в группе с высокой экспрессией общая выживаемость была заметно ниже, чем в группе с низкой экспрессией (Log-rank P = 0.0317, HR = 9.708, 95% CI: 1.22–77.234). Кривые совокупного риска указали на более высокую вероятность смерти в любой временной точке в когорте с высокой экспрессией, что позволяет рассматривать SRC как фактор риска неблагоприятного прогноза. Зависимые от времени ROC-кривые (Рисунок 6C) продемонстрировали значения AUC 0.99, 0.878 и 0.829 через 1, 3 и 5 лет соответственно; все значения превысили 0.7, что указывает на отличную прогностическую эффективность как для краткосрочной, так и для долгосрочной выживаемости. В совокупности эти данные свидетельствуют о том, что высокая экспрессия SRC может служить независимым молекулярным маркером неблагоприятного прогноза при раке предстательной железы.
Для MAPK3 градиентное распределение показало, что повышенная экспрессия была связана с более выраженным прогрессированием опухоли и более короткой выживаемостью без прогрессирования, что предварительно указывает на MAPK3 как на потенциальный ген риска (Рисунок 7A). Анализ выживаемости без прогрессирования по методу Каплана-Мейера (Рисунок 7B) показал, что в группе с высокой экспрессией выживаемость без прогрессирования была значительно короче, чем в группе с низкой экспрессией (Log-rank P = 0.0298, HR = 1.581, 95% CI: 1.046–2.391), при этом медиана выживаемости без прогрессирования в группе с высокой экспрессией составила всего 5.8 лет. Кривые кумулятивного риска дополнительно подтвердили более высокую вероятность прогрессирования в любой временной точке. Однако зависящие от времени ROC-кривые (Рисунок 7C) показали значения AUC всего 0.568, 0.563 и 0.574 через 1, 3 и 5 лет соответственно; все эти значения значительно ниже 0.7, что указывает на ограниченную независимую прогностическую ценность одного только MAPK3 для оценки риска прогрессирования рака предстательной железы. В целом, хотя высокая экспрессия MAPK3 коррелирует с худшей выживаемостью без прогрессирования при раке предстательной железы, его полезность в качестве единственного прогностического индикатора ограничена умеренной точностью прогнозирования.
Заявление о доступности данных
Оригинальные результаты, представленные в данном исследовании, включены в статью или Дополнительные материалы.
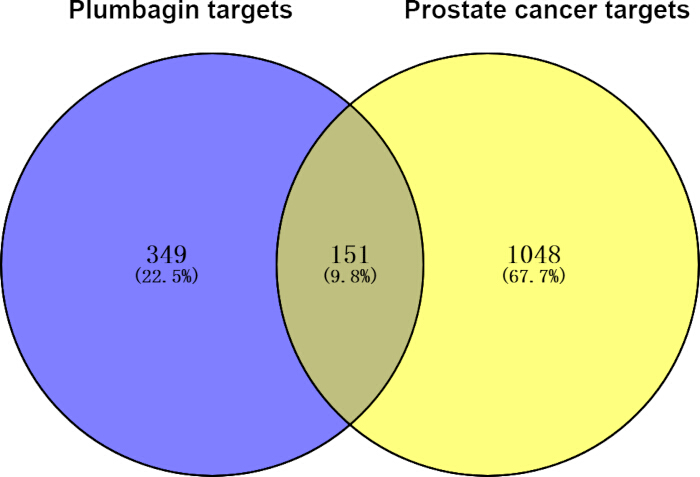
Рисунок 1: Пересечение мишеней плюмбагина и рака предстательной железы. Синим цветом indicated число мишеней плюмбагина, желтым — число мишеней рака предстательной железы.
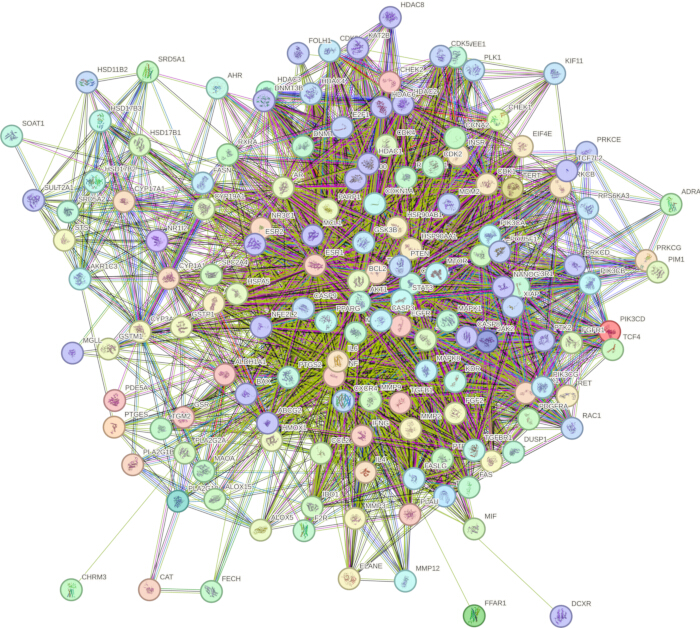
Рисунок 2: Сеть белок-белковых взаимодействий 151 пересекающейся мишени. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
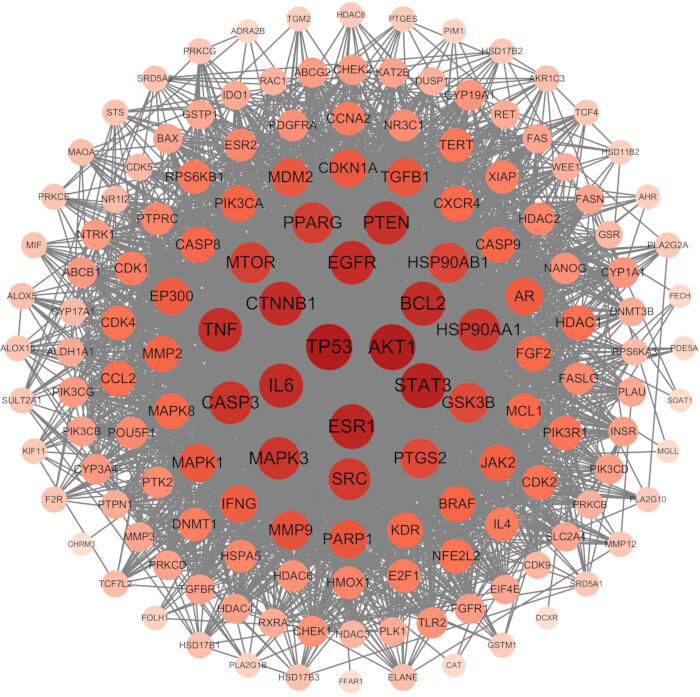
Рисунок 3: Визуализация 151 основной мишени на основе степени узла в сети белок-белковых взаимодействий. Больший размер и более насыщенный цвет кругов соответствуют более высоким значениям степени в сети. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
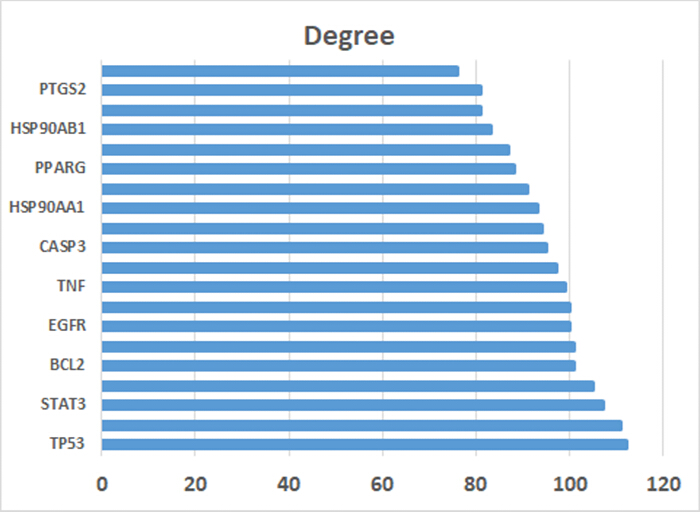
Рисунок 4: Значения степеней 20 основных мишеней. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
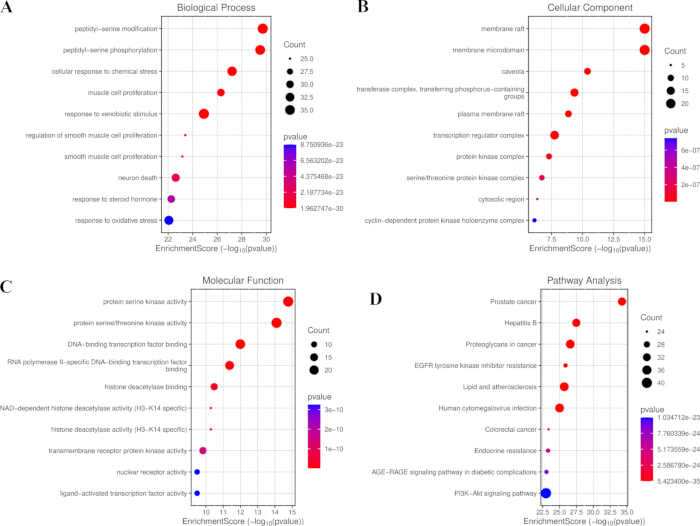
Рисунок 5: Анализ обогащения 151 основного мишени. (A) Топ-10 терминов в категории биологических процессов GO-анализа, (B) топ-10 терминов в категории клеточных компонентов GO-анализа и (C) топ-10 терминов в категории молекулярных функций GO-анализа. (D) Топ-10 наиболее обогащенных путей KEGG для 151 основной мишени. Сокращения: GO = Gene Ontology; KEGG = Киотская энциклопедия генов и геномов. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
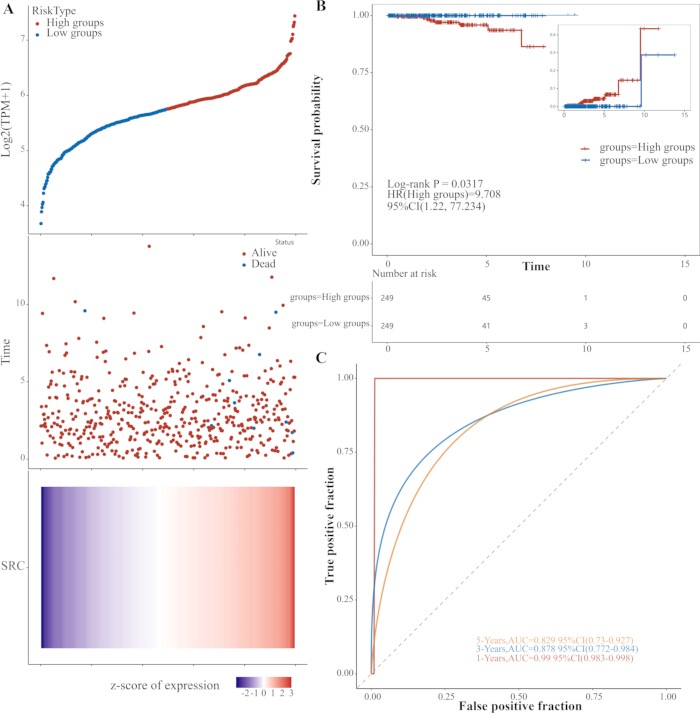
Рисунок 6: Прогностический анализ SRC при раке предстательной железы (TCGA). (A) Градиент распределения экспрессии SRC в зависимости от статуса выживаемости и времени последующего наблюдения. (B) Кривые общей выживаемости Каплана-Мейера для групп с высокой и низкой экспрессией SRC (Log-rank P = 0.0317, HR = 9.708, 95% CI: 1.22–77.234). (C) Зависящие от времени ROC-кривые через 1, 3 и 5 лет (AUC = 0.990, 0.878 и 0.829). Сокращения: TCGA = The Cancer Genome Atlas; HR = отношение рисков; CI = доверительный интервал; ROC = рабочая характеристика приемника; AUC = площадь под кривой. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
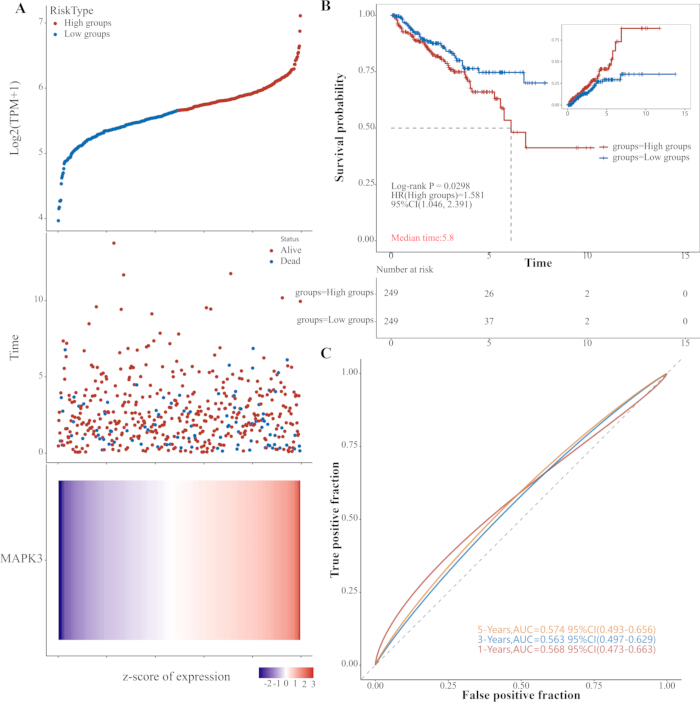
Рисунок 7: Прогностический анализ MAPK3 при раке предстательной железы (TCGA). (A) Градиент распределения экспрессии MAPK3 в зависимости от статуса прогрессирования и времени до прогрессирования. (B) Кривые выживаемости без прогрессирования Каплана-Майера для групп с высокой и низкой экспрессией MAPK3 (Log-rank P = 0.0298, HR = 1.581, 95% CI: 1.046-2.391). (C) Зависящие от времени ROC-кривые через 1, 3 и 5 лет (AUC = 0.568, 0.563 и 0.574). Сокращения: TCGA = The Cancer Genome Atlas; HR = отношение рисков; CI = доверительный интервал; ROC = рабочая характеристика приемника; AUC = площадь под кривой. Нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
Таблица 1: Энергии связывания и взаимодействующие остатки плюмбагина при молекулярном докинге с ключевыми молекулами-мишенями. Приведенные ссылки соответствуют записям структур в PDB (кристаллографическому назначению карманов связывания лигандов), а не исследованиям по биологической валидации; соответствующие PDB ID указаны явным образом. Пожалуйста, нажмите здесь, чтобы скачать эту таблицу.
Таблица 2: Энергии связывания и их компоненты для комплексов плюмбагина с мишенями в стационарных условиях (кДж/моль). Для каждого комплекса была выполнена только одна траектория длительностью 200 ns с одним случайным начальным значением скорости, без параллельных повторов. Весь конформационный анализ проводился на основе данных из области равновесного плато в интервале 100–200 ns каждой траектории. ΔEele представляет собой электростатическое взаимодействие между малой молекулой и белком, ΔEvdw — взаимодействие Ван-дер-Ваальса, ΔEpol — энергию полярной сольватации, которая может представлять электростатическую потенциальную энергию, а ΔEnonpol — энергию неполярной сольватации, которая может представлять гидрофобное взаимодействие. ΔEMMPBSA = ΔEele + ΔEvdw + ΔEpol + ΔEnonpol. Энергия связывания Гиббса, ΔGbind = ΔEMMPBSA + -TΔS. Пожалуйста, нажмите здесь, чтобы скачать эту таблицу.
Таблица 3: Схематическая диаграмма взаимодействующих остатков по результатам молекулярно-динамического моделирования плюмбагина с белками-мишенями. Пожалуйста, нажмите здесь, чтобы скачать эту таблицу.
Таблица 4: Свободная энергия связывания при докинге плюмбагина и нативных ко-кристаллизованных ингибиторов для девяти белков-мишеней. Пожалуйста, нажмите здесь, чтобы скачать эту таблицу.
Дополнительный файл 1: Анализ моделирования молекулярной динамики комплексов плюмбагина с AKT1, ESR1, BCL2, EGFR, TNF-α, MAPK3, HSP90AA1, SRC и PPARG. Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительная таблица S1: Потенциальные мишени PLB, предсказанные базами данных SwissTarget, SEA, TargetNet, PharmMapper, CTD, TCMSP и HERB.Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительная таблица S2: Потенциальные мишени при раке предстательной железы, предсказанные с помощью баз данных GeneCards, DrugBank, TCMSP, CTD и HERB.Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительная таблица S3: Биологические процессы GO, обогащенные для 151 перекрывающегося мишени PLB и рака предстательной железы.Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительная таблица S4: Компоненты клеточного состава GO, обогащенные для 151 перекрывающегося мишени PLB и рака предстательной железы.Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительная таблица S5: Молекулярные функции GO, обогащенные для 151 перекрывающейся мишени PLB и рака предстательной железы.Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительная таблица S6: Пути KEGG, значительно обогащенные для 151 перекрывающегося мишени PLB и рака предстательной железы.Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Обсуждение
Исследования показали, что AKT1, ESR1, BCL2, EGFR, TNF, MAPK3, HSP90AA1, SRC и PPARG играют разнообразные роли в стимулировании прогрессирования рака. Сигнальный путь фосфатидилинозитол-3-киназы (PI3K)/серин-треониновой протеинкиназы (AKT)/механистической мишени рапамицина (mTOR) является важнейшим путем внутриклеточной передачи сигнала, который регулирует различные патофизиологические процессы, включая рост, пролиферацию, апоптоз, ангиогенез, воспалительные реакции и хемотаксис43. AKT является важной нижележащей киназой-мишенью PI3K, а p-AKT необходима для функционирования этого сигнального пути. p-AKT оказывает антиапоптотическое действие путем активации антиапоптотического белка Bcl-2 и снижения активации проапоптотического белка Bax4. GSK3β представляет собой основную внутриклеточную киназу семейства серин-треониновых киназ и важную нижележащую молекулу-мишень AKT, регулирующую клеточный цикл, апоптоз, инвазию/метастазирование клеток и ангиогенез за счет участия в нескольких сигнальных путях45. mTOR является высококонсервативной серин-треониновой протеинкиназой и нижележащей мишенью сигнального пути PI3K/AKT. AKT фосфорилирует mTOR с образованием p-mTOR и ее активацией, что впоследствии стимулирует трансляцию мРНК и регулирует такие физиологические процессы, как метаболизм, рост, пролиферация и выживаемость клеток46.
EGFR и его лиганды EGF и TGFα присутствуют как в доброкачественных, так и в злокачественных клетках предстательной железы. Взаимодействие между лигандами EGF/TGFα и EGFR играет важную роль в росте и развитии простаты, а также в инициации и прогрессировании рака предстательной железы47. Visacorpi и др.48 обнаружили, что высокая экспрессия EGFR тесно связана с высокодифференцированным раком предстательной железы и плохим прогнозом. Ibrahim и др.49 сообщили, что экспрессия EGFR выше в нормальных или доброкачественных гиперпластических тканях простаты, чем в тканях с раком предстательной железы. Davies и др.50 обнаружили отрицательную корреляцию между экспрессией андрогенного рецептора и аффинностью связывания EGF с EGFR в образцах рака предстательной железы, что косвенно указывает на участие активации сигнальной системы EGF/EGFR в развитии и прогрессировании андроген-независимого рака предстательной железы.
Путь митоген-активируемой протеинкиназы (MAPK), также известный как каскад RAS/RAF/MEK/ERK, представляет собой критически важный сигнальный путь, участвующий в росте, пролиферации и выживании клеток. Мутации в его основных компонентах, включая RAS, RAF, MEK и ERK, часто наблюдаются при различных видах рака и существенно влияют на развитие и прогрессирование опухоли51. Сигнализация MAPK опосредуется ERK, которые являются серин-треониновыми протеинкиназами и выступают в роли ключевых молекул передачи сигнала, регулирующих передачу импульсов от факторов роста, гормонов, нейромедиаторов и других внеклеточных стимулов52. Гиперактивация компонентов этого пути, особенно вследствие мутаций или аберрантной сигнализации, связана с многочисленными типами рака. Апстрим-киназы MEK1/2 непосредственно активируют ERK1/2 на терминальном участке пути. Активированные ERK1/2 затем фосфорилируют ряд ядерных и цитоплазматических субстратов, включая факторы транскрипции и регуляторные молекулы, тем самым быстро индуцируя экспрессию генов раннего ответа, которые контролируют пролиферацию клеток53,54. В конечном счете, эти активированные белки стимулируют экспрессию нижележащих эффекторных молекул, запуская и регулируя онкогенную трансформацию или неконтролируемую пролиферацию клеток. Среди них ERK1 (MAPK3), как близкородственная киназа в сигнальном пути MAPK/ERK, играет ключевую роль в клеточной трансдукции сигнала и необходима для регуляции таких процессов, как пролиферация, дифференцировка и выживание клеток при онкологических заболеваниях, включая рак предстательной железы55.
Белки теплового шока (HSPs) представляют собой молекулярные шапероны, которые предотвращают деградацию своих клиентских белков. При раке у человека экспрессия HSPs часто повышена и тесно связана с прогрессированием опухоли, способствуя туморогенезу, ангиогенезу, резистентности к апоптозу и метастазированию56,57. Поддерживая стабильность клиентских белков, включая андрогеновый рецептор (AR), эстрогеновый рецептор (ER) и MYC, HSPs регулируют критические сигнальные пути, такие как PI3K/Akt, JAK/STAT3, PKL1 и MAPK, что в конечном итоге способствует неконтролируемому росту клеток, стойкому ангиогенезу, уклонению от апоптоза, инвазии опухоли и метастазированию58,59,60. HSP90, ключевой представитель этого семейства, был определен как потенциальная терапевтическая мишень при раке предстательной железы59,61,62. В клетках рака предстательной железы HSP90 взаимодействует с AR-FL и AR-V7 и стабилизирует их, сохраняя их способность к связыванию с лигандом, при этом экспрессия HSP90 положительно коррелирует с прогрессированием заболевания и уровнями AR-FL/AR-V763. Фармакологическое ингибирование HSP90 способствует протеасомной деградации AR-FL и AR-V7, тем самым замедляя рост опухоли и метастазирование в клетках кастрационно-резистентного рака предстательной железы63. HSP90AA1 действует как шаперон при активации AR, и его ингибирование подавляет пути AKT/mTOR и PLK1. Кроме того, снижение экспрессии HSP90AA1 значительно уменьшает миграцию, инвазию и пролиферацию клеток рака предстательной железы64.
ESR1 является одним из компонентов двойной системы эстрогеновых рецепторов в предстательной железе человека. Экспрессия ESR1 повышена при высокоградусной простатической интраэпителиальной неоплазии (HGPIN), что, вероятно, опосредует канцерогенное воздействие эстрадиола, и играет роль в развитии рака предстательной железы и прогрессировании опухоли. Предварительные клинические исследования с использованием антагониста ESR1 торемифена определили ESR1 как перспективную мишень для профилактики рака предстательной железы. Применение антагонистов ESR1 обладает огромным потенциалом для предотвращения рака предстательной железы и замедления прогрессирования заболевания65.
PPARG, представитель суперсемейства ядерных рецепторов, является ключевым регулятором воспалительных процессов6. После индуцированной лигандом гетеродимеризации с ретиноидным X-рецептором PPARG связывается с элементами ответа PPAR в ДНК для регуляции транскрипции различных генов. Активация PPARG подавляет передачу сигналов NF-κB и MAPK, снижает выработку TNF-α и IL-6 и таким образом ослабляет воспалительные реакции67. Предыдущие исследования показали, что воздействие на PPARG может быть использовано при лечении рака предстательной железы68. Белок PTGS2 локализуется в перинуклеарной области, ассоциируясь с мембранами ядра и эндоплазматического ретикулума. Он быстро экспрессируется в определенных клетках при специфической стимуляции и участвует в опосредовании воспалительных реакций69.
PLB является одним из основных противоопухолевых препаратов, применяемых при различных типах рака, включая рак предстательной железы, легких, молочной железы, меланому и рак яичников19. PLB оказывает противоопухолевое действие за счет взаимодействия с множеством мишеней и влияния на ключевые сигнальные пути, включая AMPK, NFκB, PI3K/AKT/mTOR и STAT3/PLK1/AKT, индуцируя тем самым апоптоз, вызывая остановку клеточного цикла, а также подавляя метастазирование и ангиогенез19,70. PLB также может индуцировать апоптоз и ингибировать пролиферацию и миграцию опухолевых клеток путем снижения потенциала митохондриальной мембраны, повышения уровней ROS и подавления экспрессии белка Bcl-271,72. Эти результаты указывают на то, что PLB может регулировать многочисленные клеточные процессы, включая клеточный цикл, апоптоз, образование активных форм кислорода, аутофагию и путь PI3K/Akt/mTOR. Учитывая положительную роль сигнального пути PI3K/Akt/mTOR в пролиферации клеток и тканей при раке предстательной железы, воздействие на этот путь стало очевидным выбором. Кроме того, Hafeez и др. сообщили, что лечение PLB на мышиной модели рака предстательной железы с нокаутом PTEN подавляло эпителиально-мезенхимальный переход, а также пути STAT3 и AKT, которые имеют критическое значение для прогрессирования рака предстательной железы73.
Трансляционный потенциал PLB зависит от его фармакокинетических свойств и биодоступности. Будучи высоколипофильным нафтохиноном, PLB обладает низкой растворимостью в воде и коротким периодом полувыведения (35.89 ± 7.95 min) с быстрым клиренсом, что ограничивает его клиническое применение74. Однако для преодоления этих ограничений были разработаны различные системы доставки лекарственных средств. ПЭГилированные липосомы увеличили период полувыведения в 36,38 раза (1,305.76 ± 278.16 min) и AUC в 3,13 раза по сравнению со свободным PLB, продемонстрировав при этом более высокую противоопухолевую эффективность и увеличение медианы выживаемости у мышей с меланомой без значимой токсичности74. Другие стратегии, включая микросферы из хитозана (увеличение периода полувыведения в 2,2 раза), термочувствительные липосомы, а также наноэмульсии и золотые наночастицы, конъюгированные с PLB, аналогичным образом продемонстрировали улучшенные фармакокинетические профили и повышенную противоопухолевую активность75,76,7. Важно отметить, что PLB демонстрирует благоприятный профиль безопасности на доклинических моделях: при терапевтических дозах не наблюдалось значимой токсичности в отношении основных органов или гематологических показателей74. В совокупности наши результаты компьютерного моделирования позволяют предположить, что PLB может стабильно взаимодействовать с AKT1, ESR1, BCL2, EGFR, TNF, MAPK3, HSP90AA1, SRC и PPARG, потенциально модулируя их функциональную активность и тем самым влияя на нижележащие процессы, включая рост, пролиферацию, апоптоз, ангиогенез, воспалительные реакции и хемотаксис раковых клеток. Хотя эти данные носят расчетный характер и должны интерпретироваться как гипотетические, существующие доклинические доказательства противоопухолевой активности PLB в сочетании с передовыми стратегиями формулирования создают веское основание для дальнейшей экспериментальной проверки. Для подтверждения прогнозируемых взаимодействий и терапевтического потенциала PLB при раке предстательной железы необходимы будущие исследования in vitro, in vivo и проспективные когортные исследования.
В настоящем исследовании было обнаружено, что, помимо потенциальной модуляции путей с участием AKT1, ESR1, BCL2, EGFR, TNF, MAPK3, HSP90AA1, SRC и PPARG, PLB может также взаимодействовать с этими белками, что потенциально влияет на их функциональную активность и, следовательно, воздействует на такие последующие процессы, как рост, пролиферация, апоптоз, ангиогенез, воспалительные реакции и хемотаксис раковых клеток. Однако эти результаты носят вычислительный характер и должны интерпретироваться как гипотетические. Для подтверждения прогнозируемых взаимодействий и терапевтического потенциала PLB при раке предстательной железы необходимо проведение дальнейших исследований in vitro, in vivo, а также проспективных когортных исследований.
Несмотря на ценные данные, полученные с помощью сетевой фармакологии и моделирования молекулярной динамики, данное исследование имеет несколько ограничений. Мы признаем, что опора на общедоступные базы данных может привести к систематической ошибке из-за неравномерности аннотирования генов и охвата литературы. Хотя для минимизации этой проблемы применялась перекрестная проверка по нескольким базам данных, все вычислительные прогнозы требуют экспериментального подтверждения. Следует отметить, что для каждого комплекса была выполнена только одна траектория продолжительностью 20 ns с одним случайным начальным значением скорости, без параллельных повторностей. Это ограничение может повлиять на статистическую надежность свободных энергий MM-PBSA, хотя мы попытались нивелировать этот эффект, увеличив длительность моделирования и отбросив первые 10 ns как период уравновешивания. Таким образом, сообщенные значения аффинности связывания следует интерпретировать как качественные оценки, и для валидации были бы полезны будущие повторные симуляции. Поскольку данная работа представляет собой чисто вычислительный анализ, в ней отсутствует валидация in vitro или in vivo; следовательно, предсказанное связывание PLB с AKT1, ESR1, BCL2, EGFR, TNF, MAPK3, HSP90AA1, SRC и PPARG не подтверждает функциональное ингибирование в биологических системах. Кроме того, в исследовании не рассматриваются специфичность мишеней, клеточная биодоступность или фармакокинетика in vivo. Для подтверждения или уточнения текущих результатов альтернативные экспериментальные подходы должны включать поверхностный плазмонный резонанс или изотермическую титрационную калориметрию для измерения прямой аффинности связывания, анализы киназной активности для подтверждения ферментативного ингибирования, вестерн-блоттинг для оценки нижележащего сигналинга (например, p-AKT, p-EGFR) и функциональные клеточные тесты (такие как MTT, проточная цитометрия) для оценки пролиферации и апоптоза в клетках рака предстательной железы. Кроме того, для установления причинно-следственных связей и терапевтической значимости необходим нокдаун отдельных мишеней с помощью CRISPR-Cas9 или siRNA, а также использование моделей ксенографтов на мышах in vivo. Эти экспериментальные подтверждения необходимы для перехода от вычислительных прогнозов к биологически значимым выводам.
В заключение, используя методы сетевой фармакологии, молекулярного докинга и молекулярно-динамического моделирования, данное исследование предполагает, что PLB может взаимодействовать с AKT1, ESR1, BCL2, EGFR, TNF, MAPK3, HSP90AA1, SRC и PPARG и модулировать их активность, влияя тем самым на биологические функции опухолевых клеток. Однако, поскольку эти результаты получены исключительно вычислительным путем, их следует интерпретировать как выдвижение гипотез, а не как окончательные выводы. В целом, наши результаты дают новое понимание и теоретическую основу для будущих экспериментальных исследований механизмов действия PLB при лечении рака предстательной железы, хотя исследования in vitro и in vivo необходимы для подтверждения его фактических ингибирующих эффектов и терапевтического потенциала.
Раскрытие информации
Авторы заявляют об отсутствии конфликта интересов.
Благодарности
Нет данных
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| База данных сравнительной токсикогеномики | Национальный институт исследований окружающей среды и здоровья, Национальный институт неврологических расстройств и инсульта | https://ctdbase.org/ | CTD представляет собой надежную, общедоступную базу данных, целью которой является углубление понимания того, как воздействие факторов окружающей среды влияет на здоровье человека. В базе данных представлена курируемая вручную информация о взаимодействиях химических веществ с генами/белками, а также о взаимосвязях между химическими веществами и заболеваниями, и между генами и заболеваниями. Эти данные интегрированы с функциональными данными и данными о метаболических путях для помощи в разработке гипотез о механизмах, лежащих в основе заболеваний, обусловленных воздействием факторов окружающей среды. |
| Cytoscape | Институт системной биологии, ISB, Лерой Худ | https://cytoscape.org/ | Первоначально разработанное специально для сетей биомолекулярных взаимодействий, данное программное обеспечение превратилось в универсальную платформу для анализа сложных сетей, которая широко применяется в таких областях, как биоинформатика, системная медицина, социальные и семантические сети. |
| база данных DAVID | Национальные институты здравоохранения (NIH) | https://davidbioinformatics.nih.gov/list.jsp | DAVID (сокращение от Database for Annotation, Visualization and Integrated Discovery) представляет собой наиболее классическую и широко используемую бесплатную онлайн-платформу для функциональной аннотации и анализа обогащения наборов генов |
| DrugBank | Альбертский университет, Канада | https://go.drugbank.com/ | DrugBank представляет собой интеллектуальную операционную систему для биофармацевтики, предоставляющую наиболее полные структурированные биомедицинские знания для содействия разработке методов терапии — от этапа открытия до достижения клинического эффекта для пациентов. |
| GeneCard | LifeMap Sciences | https://www.genecards.org/ | GeneCards представляет собой доступную для поиска интегративную базу данных, содержащую исчерпывающую и удобную для пользователя информацию обо всех аннотированных и предсказанных генах человека. База знаний автоматически объединяет генно-центрические данные из 193 веб-источников, включая геномную, транскриптомную, протеомную, генетическую, клиническую и функциональную информацию. |
| gmx_MMPBSA | Университет Колумбия в Медельине | https://valdes-tresanco-ms.github.io/gmx_MMPBSA/ | gmx_MMPBSA, инструмент с открытым исходным кодом для расчета свободной энергии, разработанный ValdéДля расчета свободной энергии связывания на основе методов MM/PBSA и MM/GBSA был использован пакет gmx_MMPBSA (Tresanco et al.). Данный инструмент, созданный на базе движка MMPBSA.py из AmberTools, позволяет напрямую обрабатывать файлы траекторий, сгенерированные в GROMACS, без необходимости ручной конвертации форматов. Для количественной оценки вклада ключевых аминокислот в связывание были проведены поостаточное разложение энергии, вычислительный аланиновый сканнинг и коррекция энтропии, а встроенный модуль gmx_MMPBSA_ana использовался для статистического анализа и визуализации компонентов энергии. |
| GROMACS | Королевский технологический институт (KTH), Упсальский университет | www.gromacs.org | GROMACS представляет собой универсальный пакет для проведения молекулярной динамики (т. е. моделирования ньютоновских уравнений движения для систем, содержащих от сотен до миллионов частиц) и является проектом, развиваемым сообществом. Приветствуется любой вклад в развитие проекта, включая улучшение документации, выпуск исправлений (патчей) для устранения ошибок, консультирование на форумах, сообщения об ошибках с описанием условий их воспроизведения, а также разработку новых функциональных возможностей. |
| Трава | Пекинский университет китайской медицины, Пекинский университет китайской медицины. | http://herb.ac.cn/ | Высокопроизводительная база данных традиционной китайской медицины, созданная на основе экспериментов и справочных данных. |
| PharmMapper | Факультет фармацевтических наук и технологий / Факультет информатики и инженерии, Восточно-Китайский университет науки и технологий | https://www.lilab-ecust.cn/pharmmapper/index.html | Сервер PharmMapper представляет собой веб-сервер с открытым доступом, предназначенный для идентификации потенциальных белков-мишеней для заданных малых молекул-зондов (лекарственных средств, природных соединений или других недавно обнаруженных соединений с невыявленными мишенями связывания) с использованием метода фармакофорного картирования. Благодаря высокоэффективному и надежному методу картирования PharmMapper обладает высокой пропускной способностью и может идентифицировать потенциальных кандидатов в мишени из базы данных в течение нескольких часов. |
| PubChem | Национальные институты здравоохранения (NIH) | https://pubchem.ncbi.nlm.nih.gov/ | PubChem — это открытая химическая база данных Национальных институтов здравоохранения (NIH) |
| PyMOL | Шрöдингер | https://pymol.org | PyMOL, изначально разработанный Уорреном Лайфордом Делано и поддерживаемый в настоящее время компанией SchrödringeröPyMOL, разработанный компанией Schrödinger, Inc., представляет собой кроссплатформенный инструмент молекулярной визуализации, широко используемый в структурной биологии и компьютерном дизайне лекарственных средств. Структуры комплексов белок-лиганд, загруженные из RCSB PDB, были импортированы в PyMOL для визуализации конформаций связывания, водородных связей и ключевых взаимодействующих остатков. С помощью встроенного интерфейса скриптинга на языке Python было выполнено структурное совмещение, рендеринг поверхностей и создание молекулярной графики высокого разрешения для публикаций. |
| RCSB Protein Data Bank | Исследовательский коллабораториум структурной биоинформатики | https://www.rcsb.org/ | RCSB PDB (Research Collaboratory for Structural Bioinformatics Protein Data Bank) является американским дата-центром консорциума Worldwide Protein Data Bank (wwPDB), основанного и возглавляемого Хелен М. Берман в 198 году. В базе архивируются экспериментально определенные трехмерные атомные структуры белков, нуклеиновых кислот и их комплексов, полученные методами рентгеновской кристаллографии, криоэлектронной микроскопии и ЯМР-спектроскопии, а также интегрированы миллионы моделей структур белков, предсказанных ИИ с помощью AlphaFold. Веб-портал поддерживает многомерный поиск, трехмерную визуализацию молекул в режиме реального времени, пакетную загрузку файлов координат и перекрестные аннотации, связывающие структурные данные с функциями генов, заболеваниями и лигандами из числа малых молекул, что широко используется для идентификации мишеней и исследований по молекулярному докингу. |
| SEA | Лаборатория Шойчета (Shoichet Laboratory) факультета фармацевтической химии Калифорнийского университета в Сан-Франциско (UCSF) | https://sea.bkslab.org/ | Метод ансамблевого анализа сходства (Similarity Ensemble Approach, SEA) связывает белки на основе множественного химического сходства их лигандов. Его можно использовать для быстрого поиска в больших базах данных соединений и для построения карт перекрестного сходства мишеней. |
| база данных STRING | Глобальная коалиция по биоданным (Global Biodata Coalition) и ELIXIR. | https://cn.string-db.org/ | STRING представляет собой базу данных известных и прогнозируемых белок-белковых взаимодействий. Эти взаимодействия включают прямые (физические) и косвенные (функциональные) ассоциации; они основаны на компьютерном прогнозировании, переносе знаний между организмами, а также на взаимодействиях, агрегированных из других (первичных) баз данных. |
| веб-сервер Swiss Dock | Группа молекулярного моделирования Лозаннского университета и SIB (Швейцарский институт биоинформатики) | https://www.swissdock.ch/ | SwissDock представляет собой веб-сервис для прогнозирования вероятных молекулярных взаимодействий между белком-мишенью и малой молекулой. |
| SwissTarget | Группа молекулярного моделирования SIB | Швейцарский институт биоинформатики | https://swisstargetprediction.ch/index.php | Этот веб-сайт позволяет определить наиболее вероятные макромолекулярные мишени малой молекулы, которая считается биоактивной. Прогнозирование основано на сочетании 2D- и 3D-сходства с библиотекой из 370 0 известных активных соединений, воздействующих на более чем 300 белков трех различных видов. |
| TargetNet | Вычислительная биология & Группа по разработке лекарственных препаратов | http://targetnet.scbdd.com/calcnet/index/ | TargetNet представляет собой открытый веб-сервер, который может быть использован для определения совокупности или прогнозирования связывания данной молекулы с множеством мишеней. |
| База данных и аналитическая платформа системной фармакологии традиционной китайской медицины | Zhejiang Jiwei Health Co., Ltd | https://www.tcmsp-e.com/index.php | TCMSP представляет собой уникальную платформу системной фармакологии китайских лекарственных трав, которая фиксирует взаимосвязи между препаратами, мишенями и заболеваниями. База данных включает сведения о химических веществах, мишенях, сетях «препарат-мишень» и соответствующих сетях «препарат-мишень-заболевание», а также фармакокинетические свойства природных соединений, включая пероральную биодоступность, лекарственную пригодность, проницаемость кишечного эпителия и способность преодолевать гематоэнцефалический барьер. растворимость в воде и т. д. Этот прорыв вызвал новый интерес к поиску препаратов-кандидатов в составе различных видов традиционных китайских лекарственных трав. |
| База данных UniProt | Европейский институт биоинформатики (EMBL-EBI), Швейцарский институт биоинформатики SIB и Информационный ресурс по белкам (PIR) | https://www.uniprot.org/ | UniProt — это всемирная’ведущий высококачественный, всеобъемлющий и общедоступный ресурс с информацией о последовательностях и функциях белков |
| Онлайн-инструмент Venny 2.1 | Национальный центр биотехнологииíа, (CNB-CSIC) | https://bioinfogp.cnb.csic.es/tools/venny/index.html | Venny представляет собой один стандартный HTML-файл. Вы можете сохранить его на жестком диске, открыть в любом удобном браузере и приступить к созданию качественных диаграмм Венна за считанные секунды, даже при отсутствии подключения к интернету. |
| VMD | Группа исследований в области теоретической и вычислительной биофизики (TCBG) Института Бекмана Университета Иллинойса в Урбана-Шампейн, США | VMD (Visual Molecular Dynamics) — это мощный инструмент для анализа и визуализации молекулярных динамических траекторий, а также для отображения структуры молекул. VMD позволяет визуализировать данные, полученные в результате моделирования молекулярной динамики, а также данные рентгеноструктурного анализа и криоэлектронной микроскопии. Программное обеспечение VMD предоставляет пользователю возможность интерактивно исследовать сложные молекулярные системы, анализировать их геометрию и динамику, а также создавать высококачественные изображения и анимации для научных публикаций и презентаций. Основные возможности VMD включают в себя: * Визуализация больших молекулярных систем с использованием различных типов представления (сферы, стержни, ленты и др.). * Анализ траекторий молекулярной динамики, включая расчет среднеквадратичного отклонения (RMSD) и анализ флуктуаций. * Инструменты для анализа водородных связей, расчета площадей поверхности и анализа плотности. * Расширяемость за счет встроенного языка сценариев Tcl и возможности написания плагинов на языке C. * Интеграция с различными программными пакетами для моделирования молекулярной динамики. VMD широко используется в биофизике, биохимии и материаловедении для изучения структуры и функций белков, нуклеиновых кислот, липидных мембран и других сложных молекулярных ансамблей. | VMD (Visual Molecular Dynamics) — это бесплатное кроссплатформенное программное обеспечение для визуализации молекул и анализа траекторий, разработанное группой теоретической и вычислительной биофизики под руководством профессора Клауса Шультена в Университете Иллинойса в Урбана-Шампейн. Программа поддерживает стандартные структуры PDB и траектории молекулярной динамики, созданные в GROMACS, NAMD и Amber, и обладает разнообразными стилями визуализации молекул, а также встроенным интерфейсом написания скриптов на языке Tcl. Для характеристики динамических взаимодействий белок-лиганд и конформационных флуктуаций был проведен количественный анализ, включающий расчет RMSD, степени заполнения водородных связей, SASA и геометрии кармана связывания лиганда. |
Ссылки
- Bray F, et al. Global cancer statistics 2022: GLOBOCAN estimates of incidence and mortality worldwide for 36 cancers in 185 countries. CA Cancer J Clin. 2024;74(3):229-63.
- Loeb S, et al. Overdiagnosis and overtreatment of prostate cancer. Eur Urol. 2014;65(6):1046-55.
- James ND, et al. The Lancet Commission on prostate cancer: planning for the surge in cases. Lancet. 2024;403(10437):1683-722.
- Bussard KM, Gay CV, Mastro AM. The bone microenvironment in metastasis: what is special about bone? Cancer Metastasis Rev. 2008;27(1):41-55.
- Keller ET, et al. New trends in the treatment of bone metastasis. J Cell Biochem. 2007;102(5):1095-102.
- Kingsley LA, Fournier PG, Chirgwin JM, Guise TA. Molecular biology of bone metastasis. Mol Cancer Ther. 2007;6(10):2609-17.
- Valdespino V, Tsagozis P, Pisa P. Current perspectives in the treatment of advanced prostate cancer. Med Oncol. 2007;24(3):273-86.
- Albertsen P. Predicting survival for men with clinically localized prostate cancer: what do we need in contemporary practice? Cancer. 2008;112(1):1-3.
- So A, Gleave M, Hurtado-Col A, Nelson C. Mechanisms of the development of androgen independence in prostate cancer. World J Urol. 2005;23(1):1-9.
- Gupta S. Prostate cancer chemoprevention: current status and future prospects. Toxicol Appl Pharmacol. 2007;224(3):369-76.
- Patel D, Shukla S, Gupta S. Apigenin and cancer chemoprevention: progress, potential, and promise. Int J Oncol. 2007;30(1):233-45.
- Kallifatidis G, Hoy JJ, Lokeshwar BL. Bioactive natural products for chemoprevention and treatment of castration-resistant prostate cancer. Semin Cancer Biol. 2016;40-41:160-9.
- Montuori E, et al. Marine natural products with activities against prostate cancer: recent discoveries. Int J Mol Sci. 2023;24(2):1435.
- de Paiva SR, Figueiredo MR, Aragão TV, Kaplan MAC. Antimicrobial activity in vitro of plumbagin isolated from Plumbago species. Mem Inst Oswaldo Cruz. 2003;98(7):959-61.
- Luo P, et al. Anti-inflammatory and analgesic effect of plumbagin through inhibition of nuclear factor-κB activation. J Pharmacol Exp Ther. 2010;335(3):735-42.
- Sharma I, Gusain D, Dixit VP. Hypolipidaemic and antiatherosclerotic effects of plumbagin in rabbits. Indian J Physiol Pharmacol. 1991;35(1):10-4.
- Awale S, et al. Targeting pancreatic cancer with novel plumbagin derivatives: design, synthesis, molecular mechanism, in vitro and in vivo evaluation. J Med Chem. 2023;66(12):8054-65.
- Zhang R, Jiang Q, Guo R, Guo K, Qiu J. Unveiling the power of plumbagin: revitalizing exhausted T cells to combat tongue cancer. Cancer Cell Int. 2025;25(1):271.
- Panichayupakaranant P, Ahmad MI. Plumbagin and its role in chronic diseases. Adv Exp Med Biol. 2016;929:229-46.
- Kuete V, et al. Cytotoxicity of plumbagin, rapanone, and 12 other naturally occurring quinones from Kenyan flora towards human carcinoma cells. BMC Pharmacol Toxicol. 2016;17(1):60.
- Gharbaran R, Shi C, Onwumere O, Redenti S. Plumbagin induces cytotoxicity via loss of mitochondrial membrane potential and caspase activation in metastatic retinoblastoma. Anticancer Res. 2021;41(10):4725-32.
- Aziz MH, Dreckschmidt NE, Verma AK. Plumbagin, a medicinal plant-derived naphthoquinone, is a novel inhibitor of the growth and invasion of hormone-refractory prostate cancer. Cancer Res. 2008;68(21):9024-32.
- Powolny AA, Singh SV. Plumbagin-induced apoptosis in human prostate cancer cells is associated with modulation of cellular redox status and generation of reactive oxygen species. Pharm Res. 2008;25(9):2171-80.
- Qiu JX, et al. Plumbagin elicits differential proteomic responses mainly involving cell cycle, apoptosis, autophagy, and epithelial-to-mesenchymal transition pathways in human prostate cancer PC-3 and DU145 cells. Drug Des Devel Ther. 2015;9:349-417.
- Wang F, et al. Plumbagin induces cell cycle arrest and autophagy and suppresses epithelial-to-mesenchymal transition involving the PI3K/Akt/mTOR-mediated pathway in human pancreatic cancer cells. Drug Des Devel Ther. 2015;9:537-60.
- Lai L, et al. Plumbagin inhibits tumour angiogenesis and tumour growth through the Ras signalling pathway following activation of the VEGF receptor-2. Br J Pharmacol. 2012;165(4b):1084-96.
- Wu WI, et al. Crystal structure of human AKT1 with an allosteric inhibitor reveals a new mode of kinase inhibition. PLoS One. 2010;5(9):e12913.
- Bai L, et al. A potent and selective small-molecule degrader of STAT3 achieves complete tumor regression in vivo. Cancer Cell. 2019;36(5):498-511.e17.
- Fanning SW, et al. The SERM/SERD bazedoxifene disrupts ESR1 helix 12 to overcome acquired hormone resistance in breast cancer cells. Elife. 2018;7:e37161.
- Suraweera CD, Caria S, Järvå M, Hinds MG, Kvansakul M. A structural investigation of NRZ-mediated apoptosis regulation in zebrafish. Cell Death Dis. 2018;9(10):967.
- Boulanger MJ, Chow DC, Brevnova EE, Garcia KC. Hexameric structure and assembly of the interleukin-6/IL-6 α-receptor/gp130 complex. Science. 2003;300(5628):2101-4.
- Jia Y, et al. Overcoming EGFR(T790M) and EGFR(C797S) resistance with mutant-selective allosteric inhibitors. Nature. 2016;534(7605):129-32.
- Dos Santos Nascimento IJ, da Silva-Júnior EF. TNF-α inhibitors from natural compounds: an overview, CADD approaches, and their exploration as anti-inflammatory agents. Comb Chem High Throughput Screen. 2022;25(14):2317-40.
- Chaikuad A, et al. A unique inhibitor binding site in ERK1/2 is associated with slow binding kinetics. Nat Chem Biol. 2014;10(10):853-60.
- Brasca MG, et al. Discovery of NMS-E973 as a novel, selective, and potent inhibitor of heat shock protein 90. Bioorg Med Chem. 2013;21(22):7047-63.
- Gurbani D, et al. Structure and characterization of a covalent inhibitor of Src kinase. Front Mol Biosci. 2020;7:81.
- Gellrich L, et al. L-thyroxin and the nonclassical thyroid hormone TETRAC are potent activators of PPARγ. J Med Chem. 2020;63(13):6727-40.
- Weng Z, Shen X, Zheng J, Liang H, Liu Y. Structural basis of DEPTOR to recognize phosphatidic acid using its tandem DEP domains. J Mol Biol. 2021;433(13):166989.
- Huck JD, et al. Structures of Hsp90α and Hsp90β bound to a purine-scaffold inhibitor reveal an exploitable residue for drug selectivity. Proteins. 2019;87(10):869-77.
- Luo G, et al. Discovery of isonicotinamides as highly selective, brain-penetrable, and orally active glycogen synthase kinase-3 inhibitors. J Med Chem. 2016;59(3):1041-51.
- Orlando BJ, Malkowski MG. Crystal structure of rofecoxib bound to human cyclooxygenase-2. Acta Crystallogr F Struct Biol Commun. 2016;72(Pt 10):772-6.
- Nuti E, et al. Development of thioaryl-based matrix metalloproteinase-12 inhibitors with alternative zinc-binding groups: synthesis, potentiometric, NMR, and crystallographic studies. J Med Chem. 2018;61(10):4421-35.
- Li Q, Li Z, Luo T, Shi H. Targeting the PI3K/AKT/mTOR and RAF/MEK/ERK pathways for cancer therapy. Mol Biomed. 2022;3(1):47.
- Wang B, et al. Propofol protects against hydrogen peroxide-induced injury in cardiac H9c2 cells via Akt activation and Bcl-2 up-regulation. Biochem Biophys Res Commun. 2009;389(1):105-11.
- Majewska E, Szeliga M. AKT/GSK3β signaling in glioblastoma. Neurochem Res. 2017;42(3):918-24.
- Yang H, et al. mTOR kinase structure, mechanism, and regulation. Nature. 2013;497(7448):217-23.
- Fong CJ, Sherwood ER, Mendelsohn J, Lee C, Kozlowski JM. Epidermal growth factor receptor monoclonal antibody inhibits constitutive receptor phosphorylation, reduces autonomous growth, and sensitizes androgen-independent prostatic carcinoma cells to tumor necrosis factor α. Cancer Res. 1992;52(21):5887-92.
- Visakorpi T, Kallioniemi OP, Koivula T, Harvey J, Isola J. Expression of epidermal growth factor receptor and ERBB2 (HER-2/Neu) oncoprotein in prostatic carcinomas. Mod Pathol. 1992;5(6):643-8.
- Ibrahim GK, et al. Differential immunoreactivity of epidermal growth factor receptor in benign, dysplastic, and malignant prostatic tissues. J Urol. 1993;149(1):170-3.
- Davies P, Eaton CL. Binding of epidermal growth factor by human normal, hypertrophic, and carcinomatous prostate. Prostate. 1989;14(2):123-32.
- Bahar ME, Kim HJ, Kim DR. Targeting the RAS/RAF/MAPK pathway for cancer therapy: from mechanism to clinical studies. Signal Transduct Target Ther. 2023;8(1):455.
- Guo YJ, et al. ERK/MAPK signalling pathway and tumorigenesis. Exp Ther Med. 2020;19(3):1997-2007.
- Ullah R, Yin Q, Snell AH, Wan L. RAF-MEK-ERK pathway in cancer evolution and treatment. Semin Cancer Biol. 2022;85:123-54.
- Chambard JC, Lefloch R, Pouysségur J, Lenormand P. ERK implication in cell cycle regulation. Biochim Biophys Acta. 2007;1773(8):1299-310.
- Gesmundo I, et al. Proton pump inhibitors promote the growth of androgen-sensitive prostate cancer cells through ErbB2, ERK1/2, PI3K/Akt, GSK-3β signaling and inhibition of cellular prostatic acid phosphatase. Cancer Lett. 2019;449:252-62.
- Schopf FH, Biebl MM, Buchner J. The HSP90 chaperone machinery. Nat Rev Mol Cell Biol. 2017;18(6):345-60.
- García-Alonso S, et al. Structure of the RAF1-HSP90-CDC37 complex reveals the basis of RAF1 regulation. Mol Cell. 2022;82(18):3438-52.e8.
- Chiosis G, Digwal CS, Trepel JB, Neckers L. Structural and functional complexity of HSP90 in cellular homeostasis and disease. Nat Rev Mol Cell Biol. 2023;24(11):797-815.
- Li J, Buchner J. Structure, function, and regulation of the Hsp90 machinery. Biomed J. 2013;36(3):106-17.
- Youssef ME, et al. Role of ganetespib, an HSP90 inhibitor, in cancer therapy: from molecular mechanisms to clinical practice. Int J Mol Sci. 2023;24(5):5014.
- Solit DB, Scher HI, Rosen N. Hsp90 as a therapeutic target in prostate cancer. Semin Oncol. 2003;30(5):709-16.
- Hoter A, Rizk S, Naim HY. The multiple roles and therapeutic potential of molecular chaperones in prostate cancer. Cancers (Basel). 2019;11(8):1194.
- Moon SJ, et al. Bruceantin targets HSP90 to overcome resistance to hormone therapy in castration-resistant prostate cancer. Theranostics. 2021;11(2):958-73.
- Li J, et al. Androgen-targeted hsa_circ_0085121 encodes a novel protein and improves the development of prostate cancer through facilitating the activity of the PI3K/Akt/mTOR pathway and enhancing AR-V7 alternative splicing. Cell Death Dis. 2024;15(11):848.
- Taneja SS, et al. Toremifene: a promising therapy for the prevention of prostate cancer and complications of androgen deprivation therapy. Expert Opin Investig Drugs. 2006;15(3):293-305.
- Yang J, et al. Protective effect of Fuzi Lizhong decoction against non-alcoholic fatty liver disease via an anti-inflammatory response through regulation of p53 and PPARG signaling. Biol Pharm Bull. 2020;43(11):1626-33.
- Sui Q, et al. Ganoderic acid A: an in-depth review of pharmacological effects and molecular docking analysis. J Ethnopharmacol. 2025;349:119868.
- Zhang T, et al. PPARG is a potential target of Tanshinone IIA in prostate cancer treatment: a combination study of molecular docking and dynamic simulation based on transcriptomic bioinformatics. Eur J Med Res. 2023;28(1):487.
- Astakhova A, et al. Inhibitors of oxidative phosphorylation modulate astrocyte inflammatory responses through AMPK-dependent Ptgs2 mRNA stabilization. Cells. 2019;8(10):1185.
- Liu Y, Cai Y, He C, Chen M, Li H. Anticancer properties and pharmaceutical applications of plumbagin: a review. Am J Chin Med. 2017;45(3):423-41.
- Ahmad I, et al. Synergistic inhibition of colon cancer cell proliferation via p53, Bax, and Bcl-2 modulation by curcumin and plumbagin combination. ACS Omega. 2025;10(18):19045-60.
- Bello IJ, Oyebode OT, Olanlokun JO, Omodara TO, Olorunsogo OO. Plumbagin induces testicular damage via mitochondrial-dependent cell death. Chem Biol Interact. 2021;347:109582.
- Hafeez BB, et al. Plumbagin inhibits prostate carcinogenesis in intact and castrated PTEN knockout mice via targeting PKCε, Stat3, and epithelial-to-mesenchymal transition markers. Cancer Prev Res (Phila). 2015;8(5):375-86.
- Kumar MR, et al. Formulation of plumbagin-loaded long-circulating pegylated liposomes: in vivo evaluation in C57BL/6J mice bearing B16F1 melanoma. Drug Deliv. 2011;18(7):511-22.
- Mandala Rayabandla SK, et al. Preparation, in vitro characterization, pharmacokinetic, and pharmacodynamic evaluation of chitosan-based plumbagin microspheres in mice bearing B16F1 melanoma. Drug Deliv. 2010;17(3):103-13.
- Tiwari SB, Pai RM, Udupa N. Temperature-sensitive liposomes of plumbagin: characterization and in vivo evaluation in mice bearing melanoma B16F1. J Drug Target. 2002;10(8):585-91.
- Onoue S, Yamada S, Chan HK. Nanodrugs: pharmacokinetics and safety. Int J Nanomedicine. 2014;9:1025-37.